Diese Studie zielt darauf ab, die potenziellen molekularen Mechanismen zu untersuchen, die den antioxidativen und entzündungshemmenden Wirkungen von Amygdalin im Alopecia-areata-Modell an C3H/HeJ-Mäusen sowie in einem Modell menschlicher primärer epidermaler Melanozytenverletzungen, das durch H2O2 induziert wurde, zugrunde liegen.
Forschungsartikel
Amygdalin reguliert die FOXO3a-Signalisierung, um oxidativen Stress zu hemmen und Alopecia areata bei Mäusen zu verbessern
* These authors contributed equally
In diesem Artikel
Zusammenfassung
Zusammenfassung
Diese Arbeit zielt darauf ab, den Wirkmechanismus der therapeutischen Wirkung von Amygdalin (AMG) bei der Alopecia areata (AA) zu untersuchen. Die Hämatoxylin-Eosin-Färbung wurde verwendet, um die hepatorenale Toxizität von AMG zu untersuchen. Nach der Erstellung des AA-Modells bei C3H/HeJ-Mäusen und H2O2– beschädigte humane primäre epidermale Melanozyten (HPEMs), und nach AMG-Intervention wurden der Gehalt an reaktiven Sauerstoffspezies (ROS) sowie die Spiegel des Forkhead-Box-O3A-(FOXO3a)-Proteins und -Gens überwacht. Biochemische Kits oder ELISA wurden verwendet, um die Gehalte an Superoxiddismutase (SOD), Katalase (CAT), Glutathionperoxidase 4 (GPX-4), Malondialdehyd (MDA), Interleukin-15 (IL-15), Interferon-gamma (IFN-γ) und Interleukin-6 (IL-6). Eine Western Blot-Analyse wurde durchgeführt, um die Spiegel von MHC I, IL-15, FOXO3a, SOD, CAT, GPX-4 und IFN-γ, IL-6 und IL-15. ChIP-PCR wurde durchgeführt, um die Anreicherung von AMG an den Promotoren von SOD, CAT und GPX-4 in FOXO3a zu bewerten. Gleichzeitig wurden ROS, Apoptose sowie die Proteinebenen und Genexpression von FOXO3a, SOD, CAT und GPX-4 in HPEMs mit niedriger FOXO3a-Expression untersucht. AMG weist keine potenzielle Leber- oder Nierentoxizität auf und kann die Expression der Proteine MHC I und IL-15 in der Haut sowie die Serumkonzentration von IL-15 reduzieren. AMG kann die Expression des Proteins und Gens von FOXO3a in der Haut sowie die Spiegel von SOD, CAT und GPX-4 erhöhen, während es die Konzentrationen von ROS und MDA senkt. AMG kann MHC I und IFN-γ, IL-6 und IL-15, MDA, Apoptose und ROS-Produktion in HPEMs sowie erhöhte Gehalte an SOD, CAT und GPX-4. Bedeutsamerweise kann AMG die Expression der Gene und Proteine FOXO3a, SOD, CAT und GPX-4 hochregulieren und FOXO3a an den Promotoren von SOD, CAT und GPX-4 anreichern. Diese Daten legen nahe, dass AMG die Expression von FOXO3a fördern und oxidativen Stress sowie entzündliche Reaktionen hemmen kann, wodurch die AA bei C3H/HeJ-Mäusen verbessert wird.
Einleitung
Als autoimmune Erkrankung, die sich durch plötzlichen, narbenlosen Haarausfall auszeichnet, hat die alopecia areata (AA) eine weltweite Prävalenz von etwa 2–3 %, wobei es in China über 30 Millionen Betroffene gibt1. Epidemiologische Daten zeigen, dass die Erkrankung alle Altersgruppen betreffen kann, jedoch eine höhere Prävalenz bei jungen Erwachsenen aufweist, wobei etwa 60 % der Patienten erstmals vor dem 20. Lebensjahr erkranken, mit einem nahezu gleichen Verhältnis zwischen Männern und Frauen1,2. Weltweit beträgt die jährliche Inzidenz von AA etwa 0,2–0,3 %, wobei 40 % Einzelherd-AA, 35 % Mehrherd-AA, 5 % totale Alopezie und 2 % universelle Alopezie ausmachen3,4,5. Hinsichtlich Komplikationen weisen etwa 30 % der Patienten Nageldepressionen, Längsrillen und andere Schäden auf, und die Komorbiditätsrate mit Autoimmunerkrankungen wie Schilddrüsenerkrankungen und Vitiligo liegt über den Werten der Allgemeinbevölkerung6,7. Aus schädlicher Sicht beeinträchtigt AA nicht nur das Erscheinungsbild, sondern begünstigt auch psychische Probleme wie Depressionen und Angstzustände, wobei etwa 70 % der Neuerkrankten innerhalb von drei Monaten vor dem Ausbruch belastende Lebensereignisse erlebt haben8,9. Bleibt die Erkrankung über einen längeren Zeitraum unbehandelt, können die Patienten eine totale Alopezie oder universelle Alopezie entwickeln, was ihre soziale Funktion und Lebensqualität erheblich beeinträchtigt10.
Derzeit verwendet die westliche Medizin hauptsächlich eine Kombination aus lokalen Arzneimitteln, oralen Medikamenten, physikalischer Therapie und Haartransplantation zur Behandlung von AA11,12. Die lokale Behandlung umfasst vor allem Minoxidil-Lösung und Kortikosteroide (wie Fluticason-Propionat-Creme), die Haarfollikel stimulieren und lokale Immunreaktionen hemmen, um das Haarwachstum zu fördern; langfristige Anwendung kann jedoch zu unerwünschten Wirkungen wie Hautatrophie führen13,14. Bei Patienten mit progredientem Verlauf können orale Immunsuppressiva (wie Prednison und Cyclosporin) die systemische Immunantwort effektiv regulieren, erfordern jedoch eine regelmäßige Überwachung der Leber- und Nierenfunktion12,15. Bei der physikalischen Therapie verbessern Bestrahlung mit engbandigem mittlerem UV-Licht und Low-Level-Lasertherapie die Mikrozirkulation, um das Haarwachstum zu unterstützen; mehrere Behandlungen sind jedoch erforderlich, und die Wirkung variiert von Person zu Person16,17. Bei therapieresistenten Fällen kann eine Haartransplantation gesunde Haarfollikel in die kahlen Bereiche verpflanzen, birgt jedoch das Risiko eines Transplantatversagens und erfordert eine medikamentöse Nachbehandlung18. Die Vorteile der westlichen medikamentösen Therapie liegen in ihrer schnellen Wirkungseintrittszeit und hohen Standardisierung, insbesondere bei lokalisiertem AA im Frühstadium19. Zu den Nachteilen zählen jedoch die Neigung zu Rebound-Effekten bei Hormonpräparaten, erhebliche Nebenwirkungen bei Immunsuppressiva sowie deren begrenzte Wirksamkeit bei Patienten mit totaler Glatzenbildung oder universeller Alopezie20,21. Zudem ist der Behandlungszyklus lang (in der Regel 3–6 Monate), und die Kosten sind hoch (beispielsweise jährliche Kosten für JAK-Inhibitoren, biologische Wirkstoffe, über 100.000 Yuan), was ihre breite Anwendung ebenfalls einschränkt19,22. Aufgrund der zahlreichen oben genannten Gründe müssen die Autoren dringend neue gezielte Arzneimittel erforschen.
Oxidativer Stress trägt maßgeblich zum pathogenen Mechanismus der alopecia areata (AA) bei. Während des Prozesses der Melanozyten-Pigmentierung wird eine große Menge Wasserstoffperoxid (H2O2) produziert23,24. Unter normalen Bedingungen kann dieses durch antioxidative Enzyme (wie Superoxiddismutase (SOD) und Katalase (CAT)) abgebaut werden25. Bei Personen mit AA ist die Aktivität dieser antioxidativen Enzyme jedoch häufig vermindert, was zur Anreicherung oxidativer Produkte führt und DNA-Schäden sowie Zellapoptose verursacht26,27. Dieser Zustand oxidativen Stresses aktiviert zudem die Entzündungsreaktion, wodurch proinflammatorische Mediatoren (wie TNF-α und IFN-γ) freigesetzt werden und ein Teufelskreis aus oxidativem Stress und Entzündung entsteht28. Die entzündliche Reaktion greift die Haarfollikel über T-Lymphozyten an, wodurch diese in eine Ruhephase eintreten und ausfallen29. Klinische Studien haben gezeigt, dass AA-Patienten häufig an weiteren Autoimmunerkrankungen (wie Schilddrüsenerkrankungen) leiden30, was darauf hindeutet, dass eine systemische Immunregulationsstörung einen entscheidenden auslösenden Faktor darstellt. Außerdem fördern oxidativer Stress und Entzündung gemeinsam die Apoptose von Haarfollikelzellen, und die Störung apoptotischer Signale schädigt weiterhin die Regenerationsfähigkeit der Haarfollikel, sodass ein Nachwachsen der Haare verhindert wird31. Daher muss die Behandlung der AA antioxidative, entzündungshemmende sowie die Regulation apoptotischer Signalwege berücksichtigen, um diesen Teufelskreis zu durchbrechen.
Amygdalin (AMG) ist eine natürlich vorkommende cyanogene Glykosidverbindung, die hauptsächlich in Pflanzensamen der Familie der Rosaceae (wie Aprikose, Mandel, Pfirsichkerne und Mizpe) enthalten ist32,33,34. Frühere Studien haben gezeigt, dass AMG Psoriasis verbessern kann, indem es die Barrierefunktion der Haut stärkt35. Gleichzeitig ermöglichen die antiapoptotischen und antioxidativen Stresswirkungen von AMG dessen Einsatz bei der Behandlung von AA36,37. Frühere Befunde bestätigten zudem, dass AMG die entzündliche Reaktion hemmen kann, wodurch die AA-Symptome bei C3H/HeJ-Mäusen gelindert werden38. Der molekulare Wirkmechanismus, durch den AMG die Entzündung hemmt und oxidativen Stress lindert, um AA abzuschwächen, wurde jedoch bisher nicht ausreichend beschrieben. Diese Studie demonstrierte hauptsächlich die durch AMG vermittelten, auf dem Forkhead-Box-O3A-(FOXO3a)-Signalweg beruhenden oxidative Stressereignisse bei der Behandlung des AA-Modells an C3H/HeJ-Mäusen sowie des Verletzungsmodells humaner primärer epidermaler Melanozyten (HPEMs), das durch H2O2 induziert wurde.
Protokoll
Ethics approval and consent to participate
The experimental protocols involving animals were authorized by the Ethics Committee of Scientist Biotechnology Co., Ltd. (Ethical Approval Number: SYST-2024-014), following the ARRIVE 2.0, NIH Guide for the Care and Use of Laboratory Animals. And the Ethics Committee of Sichuan Provincial People’s Hospital granted approval for the ethical use of human clinical samples for in vitro experiments (Ethical Approval Number: 2024103). Informed consent was obtained from all tissue donors. All commercial details of the reagents and the equipment used in this study are provided in the Table of Materials.
Construction of the AA model in C3H/HeJ mice and AMG administration
Based on the previous literature, the AA model of C3H/HeJ mice was induced and treated with AMG38,39. In brief, thirty female C3H/HeJ mice (6–8 weeks old) underwent a one-week acclimatization period before being randomly assigned to five distinct groups: Control, AA, AMG-L, AMG-M, and AMG-H. Except for the control group, the AA model in the remaining four groups was established by applying 0.05 g imiquimod cream to the murine dorsal skin. This application was performed three times weekly, accumulating to a total of nine doses. The area of the skin that was applied was 1.5 cm × 1.5 cm. Mice in both the control and AA cohorts received 0.02 mL/g of normal saline by gavage daily. While the mice in AMG groups were given intragastric injections of 60, 90, and 120 mg/kg daily. The administration period is 21 days. For the general observation and assessment of the AA model, a well-defined circular alopecia patch ≥ 1 cm in diameter, with no scarring or severe inflammation, and with broken hair shafts, is required. If mice show diffuse whole-body depilation, severe skin ulceration, or spontaneous rapid hair regrowth, they are excluded.
HPEMs
Following the previous method40, healthy skin tissues from patients who underwent circumcision in the hospital were selected and immersed in 75% alcohol for 5 min. The skin tissues were then repeatedly washed with PBS containing ampicillin (100 U/mL) and streptomycin sulfate (100mg/mL), and incubated in dispase II solution at 4°C overnight for digestion. The separated and isolated epidermal layers were minced and filtered via a sterile membrane to yield the cell suspension. After centrifugation, the sedimentary lower-layer cells were harvested and subsequently resuspended in melanocyte 254 medium without serum and reseeded at a density of approximately 5 × 10⁵ in culture flasks and cultured in a CO2 incubator. After three passages, pure melanocytes were employed for subsequent experiments.
Establishment of H2O2-induced human melanocyte oxidative stress injury model and AMG intervention
Human melanocytes with a fusion degree of 60% to 80% were divided into a control group and groups with different concentrations of H2O2 (200, 400, 600, 800, and 1000 µM). After a 24-h incubation, cell viability was assessed by the CCK-8 method. Subsequently, the optimal concentration of H2O2 was used to establish the melanocyte oxidative stress model, and different concentrations of AMG (0.1, 0.25, 0.5, 1, 2.5, 5, and 10 mg/mL) were added for a 24-hour culture. Cell viability was then chosen to assess and screen the concentration of AMG.
HE examination
Mouse liver and kidney tissues were fixed in 4% paraformaldehyde for 24 h and embedded with paraffin, followed by a dehydration process in the following steps: 70% ethanol for 4 h, 80% ethanol for 2 h, 90% ethanol for 2 h, 95% ethanol for 2 h, anhydrous ethanol, twice, 1 h each time; xylene, twice, 30 min each time38,39,41. Then, 4-µm paraffin sections underwent H&E staining, were dehydrated, cleared, and mounted with neutral gum. A 3D HISTECH scanner was employed to digitize the tissue sections, and images at 20× and 40× magnifications were captured.
Enzyme-linked immunosorbent assay (ELISA) and biochemical detection
Skin tissues were homogenized in a buffer solution at a 1:9 (w/v) ratio, then centrifuged at 1006–1789 × g for 10 min. After protein quantification in serum, skin tissue extracts, and cell supernatants using BCA, the levels of MDA, IL-6, IL-15, and IFN-γ were assessed using the corresponding ELISA kits. And the enzyme activities of SOD, CAT, and GPX-4 were detected according to the instructions of the respective biochemical kits.
Flow cytometry for detecting reactive oxygen species (ROS)
Serum-free culture medium was used to dilute 10µM DCFH-DA at a 1:1000 ratio. And then, mouse skin tissues or human melanocytes were prepared into cell suspensions of 1–20×106 cells/mL using 10µM DCFH-DA. Cells were incubated at 37°C for 20 min. During this period, cells were shaken and mixed every 3–5 min. Following three washes with serum-free medium, intracellular ROS levels were quantified via flow cytometry, setting the excitation and emission wavelengths at 488nm and 525nm, respectively42,43.
Immunofluorescence measurement
FOXO3a (1:1000) primary antibody was incubated with 4-µm skin tissue sections or fixed HPEMs overnight at 4°C. And then, the specimens were treated with secondary antibodies labeled with Alexa Fluor fluorophores and counterstained with DAPI solution. Finally, the sections were observed and captured through fluorescence microscopy. For fluorescence imaging with ROS, a 4-µm frozen section of skin tissue or HPEMs slides were rewarmed at room temperature and dried. A circle was drawn around the tissue with a histochemical pen. The slides were treated with an autofluorescence quencher for 5 min and then rinsed under running water for 10 min. ROS staining solution was dropped and incubated in the dark at 37°C for 30 min. The sections underwent three 5-minute washes in PBS using a decolorization shaker. Then, DAPI staining solution was dropped and incubated for a duration of 10 min under dark conditions at room temperature. The slides were sealed with an anti-fluorescence quencher medium. The specimens were then observed, and images were collected via a fluorescence microscope. The excitation/emission profiles are 330–380/420 nm for DAPI and 510–560/590 nm for Cy3.
Western blot
For mouse skin tissue or human melanocytes, 50 mg of the skin tissue or 2 × 10⁵ cells and 1 mL of RIPA lysis buffer, enriched with protease inhibitors, were dispensed into a 1.5-mL microcentrifuge tube. After an ice bath for 30 min, a 5-min centrifugation was performed at 12,000 g to collect the supernatant fraction. After protein concentration was determined by the BCA method, the protein solution and 5× SDS loading buffer were mixed in a volume ratio of 4:1, and then boiled in a metal bath at 95 °C for 5 min. After the sample was subjected to 10% SDS-PAGE electrophoresis at 80 V or 120 V, proteins were electrotransferred onto a 0.22-µm PVDF membrane at a constant current of 200 mA for 1 h44,45. The membranes were then blocked at room temperature on a centrifuge shaker for 1 h using 5% skimmed milk (prepared with TBST buffer). The membranes were then exposed to primary antibodies specific to major histocompatibility complex class I (MHC I) (1:1000), IFN-γ (1:1000), IL-6 (1:1000), IL-15 (1:1000), β-Actin (1:1000), SOD (1:1000), CAT (1:1000), glutathione peroxidase 4 (GPX-4) (1:1000), and FOXO3a (1:1000) at 4 °C overnight. And the membranes were probed with the secondary antibody (1:10000) for 1 h at room temperature. ECL chemiluminescent reagent was employed to develop and capture images using ChemiScope 6100.
Quantitative reverse transcription-polymerase chain reaction (qRT-PCR)
Firstly, the sample RNA from mouse skin tissue or human melanocytes was obtained in accordance with the manufacturer’s instructions of the total RNA extraction kit. According to the operation instructions of the reverse transcription kit, the PCR instrument parameters were set as 25°C for 10 min, 42°C for 15 min, and 85°C for 5 min to obtain cDNA samples. Similarly, the parameters for setting up the PCR instrument were as follows to obtain sufficient DNA copy numbers: Pre-denaturation: 95°C for 5 min, 1 cycle; Denaturation: 95°C for 10 s, 40 cycles; Annealing and extension: 60°C for 30 s, 40 cycles. The normalized expression of the gene of interest is calculated using the following formula: 2‑ΔΔCq (ΔΔCq = Cqtarget‑Cqβ‑Actin)46,47. The information on the gene primer sequences for qRT-PCR is shown in Table 1.
ChIP-PCR analysis
ChIP-PCR analysis was carried out in accordance with the previous protocol48. First, the cells were cross-linked with 1% formaldehyde for 10 min, and glycine solution was added to terminate the cross-linking reaction. After washing with pre-cooled PBS containing PMSF, the cells were lysed with SDS lysis buffer containing PMSF. Subsequently, the chromatin DNA was sheared into fragments mainly ranging from 200 to 1,000 bp using an ultrasonic cell disruptor, and the fragment size was verified by agarose gel electrophoresis. The sheared chromatin samples were resuspended in ChIP dilution buffer containing PMSF, and 20µL of the sample was taken as the input control group. The remaining samples were pre-treated with Protein A+G Agarose/Salmon Sperm DNA. Then, 0.5µg of primary antibody was applied, followed by an overnight incubation at 4°C with slow shaking. The negative control group was treated with an equal amount of rabbit IgG. The next day, Protein A+G agarose beads were added to capture the antigen-antibody complexes, and the complexes were washed successively with low salt immune complex wash buffer, high salt immune complex wash buffer, LiCl immune complex wash buffer, and TE buffer. The immunoprecipitated complexes were eluted with elution buffer, and both the elution products and the samples in the input control group underwent a heat treatment of 65°C for 4h to break the cross-links. Subsequent to proteinase K-mediated protein digestion, DNA was isolated via phenol-chloroform extraction followed by ethanol precipitation. The purified DNA was dissolved in TE buffer and used for subsequent qRT-PCR analysis. And the gene sequence information for ChIP-PCR is shown in Table 2.
The candidate genomic sites for ChIP-PCR were selected through in silico prediction using the JASPAR database (https://jaspar.elixir.no/). Specifically, researchers retrieved the promoter sequences spanning 2000 bp upstream of the TSS of the CAT, SOD, and GPX4 genes. These sequences were scanned for FOXO3a binding motifs using the corresponding position weight matrix. To balance sensitivity and specificity, the authors set a relative profile score threshold of >80%. Among all predicted motifs meeting this criterion, the authors selected the top two highest-scoring putative sites for each gene as candidate regions for ChIP-PCR validation. For example, in the CAT gene, the selected sites were located at -733 bp and -1259 bp relative to the TSS. The anti-FOXO3a antibody used in this study is a commercially available ChIP-grade antibody. To ensure specificity, the authors applied two independent negative controls for every ChIP-PCR assay: isotype IgG and a negative genomic locus. The isotype IgG control was performed as parallel immunoprecipitations using non-immune IgG from the same species. For the negative genomic locus, the authors designed a specific primer pair targeting a non-binding region that lacks any predicted FOXO3a consensus motif. This control region allowed the authors to exclude enrichment due to random chromatin shearing or nonspecific PCR amplification. The fold enrichment was calculated using a three-step normalization strategy.
Step 1: Input normalized ΔCt, ΔCt [normalized IP] = Ct[IP]-(Ct[Input]-log₂(DF)) (1)
ΔCt [normalized IgG] = Ct[IgG] - (Ct[Input] - log₂(DF)). (2)
DF = Input Dilution Factor; in the experiment, DF = 10, as they used 10% input.
Step 2: ΔΔCt between IP and IgG:
ΔΔCt [IP/IgG] =ΔCt [normalized IP]-ΔCt [normalized IgG] (3)
Step 3: Fold enrichment = 2(-ΔΔCt [IP/IgG]). (4)
Statistical analysis
Data are expressed as mean ± standard deviation based on a minimum of three independent experiments. Statistical analyses were performed using GraphPad Prism software (version 6.0). Comparison of data among multiple groups following a normal distribution and homogeneity of variance was assessed using one-way analysis of variance (ANOVA), followed by Tukey’s post-test. Statistical significance was established at p < 0.05.
Ergebnisse
AMG weist bei normalen C3H/HeJ-Mäusen keine hepatorenale Toxizität auf
Um die potenzielle Leber- und Nierentoxizität von AMG aus experimenteller Sicht eindeutig zu identifizieren, verabreichten Forscher die zuvor in normalen C3H/HeJ-Mäusen untersuchten drei Dosen (60, 90 und 120 mg/kg) mittels Magensonde 38. Wie in Abbildung 1 dargestellt, war nach 21-tägiger intragastraler Verabreichung von AMG in drei Dosen die Architektur der Leberläppchen deutlich erkennbar, wobei die Hepatozyten geordnet angeordnet waren. Das kortikale und marknahe Nierengewebe war normal, und es wurden keine Schäden oder Läsionen in den Glomeruli oder Nierentubuli beobachtet. Während der Verabreichung von AMG zeigten keine der Mäuse auffällige Verhaltensmanifestationen. Tatsächlich wurden in dieser Arbeit keine biochemischen Toxizitäts- oder Körpergewichtsdaten erhoben, was die Plausibilität der Annahme, dass AMG keine Leber- und Nierentoxizität besitzt, beeinträchtigen könnte. Auf der Grundlage der histopathologischen Untersuchungsergebnisse von Leber und Niere legen diese Daten jedoch nahe, dass die vom Autorenteam festgelegten Dosen von AMG zur Behandlung von AA zumindest teilweise gerechtfertigt sind.
AMG hemmt das Auftreten und die Entwicklung von AA sowie die Bildung von ROS
Zunächst maßen sie die MHC-I- und IL-15-Indikatoren, die intrinsisch mit dem Beginn und der Progression verknüpft von AA. Wie gezeigt in Abbildung 2A–C, unter den pathologischen Bedingungen der AA-Simulation stieg die Menge an MHC-I- und IL-15-Proteinen in den Hautgeweben von C3H/HeJ-Mäusen signifikant an (p < 0,001). Dagegen führten die Behandlungen mit AMG-M und AMG-H zu einer signifikanten Downregulation der Expressionsniveaus dieser beiden Proteine (p < 0,01 oder p < 0.001). Ebenso unterdrückten die drei Dosen der AMG-Behandlung signifikant den Spiegel von IL-15 im Serum (p < 0.001, Abbildung 2D). Darüber hinaus zeigten die Immunfluoreszenz-Ergebnisse, dass sich in der Haut der Mäuse der AA-Gruppe eine große Menge an reaktiven Sauerstoffspezies (ROS) befand, während die AMG-Behandlung die Expression von ROS im Vergleich zur AA-Gruppe signifikant verringerte (p < 0.001, Abbildung 2E und F). In Übereinstimmung damit zeigten die Durchflusszytometrie-Ergebnisse, dass die ROS-Spiegel in den Hautgeweben der AA-Gruppe im Vergleich signifikant erhöht waren die Kontrollgruppe. Im Vergleich zur AA-Gruppe kehrte die AMG-Intervention jedoch den Anstieg der ROS um (p < 0.001, Abbildung 2G und H).
AMG stimuliert die Proteinfunktion und Genexpression von FOXO3a
Um den Einfluss von AMG auf FOXO3a zu untersuchen, analysierten die Autoren dessen Expressionsniveaus sowohl auf Proteinebene als auch auf genetischer Ebene. Die Immunfluoreszenzergebnisse zeigten, dass die AA-Gruppe eine deutliche Verringerung der FOXO3a-Proteinexpression aufwies, während AMG das FOXO3a-Proteinniveau im Hautgewebe von C3H/HeJ-Mäusen anregte.p < 0.001, Abbildung 3A und B). Weitere qRT-PCR-Daten zeigen, dass AMG die Genexpression von FOXO3a signifikant erhöhte (p < 0.001; Abbildung 3C). Ebenso zeigte das Western-Blot-Experiment, dass AMG deutlich gesteigert die Proteinausprägung von FOXO3a (p < 0,05 oder p < 0.001, Abbildung 3D und E).
AMG hemmte die oxidativen Stressereignisse in den Hautgeweben von AA-Mäusen
Die pathologische Progression von AA, die durch oxidativen Stress ausgelöst wird, führt zu einer Verschlechterung. Die biochemischen Testergebnisse in Abbildung 4 zeigen, dass im Vergleich zur Kontrollgruppe die antioxidativen Indikatoren SOD, CAT und GPX-4 in den Hautgeweben der Mäuse der AA-Gruppe signifikant gehemmt waren (p < 0,001, Abbildung 4A und B), während der prooxidative Indikator MDA stark anstieg (p < 0,001, Abbildung 4C). Wie erwartet, fanden die Forscher heraus, dass nach Behandlung mit AMG die antioxidativen Indikatoren signifikant anstiegen, während die prooxidativen Indikatoren signifikant abnahmen (p < 0,001; Abbildung 4A–C). Ähnlich deuten die Western-Blot-Daten darauf hin, dass die AMG-Intervention die Proteinausprägungsniveaus der antioxidativen Indikatoren SOD, CAT und GPX-4 signifikant erhöhte (p < 0,001; Abbildungen 4D und 4E).
AMG verringerte die Apoptose und entzündlichen Vorgänge in HPEMs, die durch H2O2 induziert wurden
Die in Abbildung 5A gezeigten Ergebnisse zeigen, dass steigende Konzentrationen von H2O2 (200–1000 µM) die Lebensfähigkeit von HPEMs progressiv beeinträchtigten (p < 0,001). Unter diesen war eine Konzentration von 600 µM H2O2 am besten geeignet, um die Zellviabilität von HPEMs zu reduzieren (p < 0,001). Darüber hinaus fanden die Autoren heraus, dass 0,1–10 mg/mL AMG die Zellviabilität unter der Bedingung der Stimulation von HPEM-Zellen mit 600 µM H2O2 signifikant erhöhen konnten (p < 0,05 oder p < 0,001, Abbildung 5B). In Übereinstimmung mit den Ergebnissen aus Tierversuchen stellten die Autoren außerdem fest, dass AMG die durch H2O2 induzierte Apoptose in HPEMs signifikant inhibierte, wie durch Durchflusszytometrie zur Apoptosedetektion in Abbildung 5C und D gezeigt (p < 0,001). Für den MHC-I-Indikator zeigte die Western-Blot-Analyse weiterhin, dass AMG die Proteinausprägung in HPEMs, die einer H2O2-induzierten Schädigung ausgesetzt waren, deutlich unterdrückte (p < 0,05 oder p < 0,01; Abbildungen 5E und 5F). Bei der Detektion entzündungsfördernder Faktoren zeigten die ELISA-Ergebnisse, dass AMG die Menge proinflammatorischer Zytokine, einschließlich IFN-γ, IL-6 und IL-15, in durch H2O2 induzierten HPEMs signifikant verringerte (p < 0,001; Abbildung 5G). Zudem wurde die Hemmung dieser drei proinflammatorischen Proteine durch AMG mittels Western-Blot-Analyse bestätigt, wie in Abbildung 5H und I dargestellt (p < 0,01 oder p < 0,001).
AMG senkte die durch H2O2 induzierten ROS-Spiegel in HPEMs
Im Vergleich zu HPEM-Zellen, die nicht mit H2O2 und AMG behandelt wurden, förderte die Stimulation mit 600 µM H2O2 signifikant die Produktion von ROS, wie die Ergebnisse der Immunfluoreszenz (p < 0,001, Abbildung 6A und B) und der Durchflusszytometrie (p < 0,001, Abbildung 6C und D) zeigten. Interessanterweise verringerte AMG die Menge an ROS signifikant (p < 0,001, Abbildung 6).
AMG beschränkte das von H induzierte oxidativen Stressereignis in HPEMs2O2
Ebenso untersuchten die Autoren, wie AMG den durch H induzierten oxidativen Stress in HPEMs beeinflusst2O2. Im Vergleich zur Kontrollgruppe zeigte H2O2 Stimulation führte zu einer Abnahme der Funktionen von SOD, CAT und GPX-4 (p < 0.001, Abbildung 7A und B), während die MDA-Spiegel signifikant ansteigen (p < 0.001, Abbildung 7C). Überraschenderweise verbesserte die AMG-Intervention signifikant die Aktivitäten von SOD, CAT und GPX-4 (p < 0.001, Abbildung 7A und B), während der Gehalt an MDA verringert wird (p < 0.001, Abbildung 7C). Weitere Western-Blot-Ergebnisse bestätigten zudem, dass die AMG-Intervention die Proteinausprägung von SOD, CAT und GPX-4 signifikant erhöhte (p < 0,05 oder p < 0.01, Abbildung 7D und E).
AMG erhöhte den FOXO3a-Spiegel sowie die von FOXO3a-regulierten Proteine SOD, CAT und GPX-4 in HPEMs, die durch H induziert wurden2O2
Im Vergleich zur Kontrollgruppe, H2O2 Stimulation führte zu einer deutlichen Verringerung der FOXO3a-Genexpression (p < 0.001, Abbildung 8A), wohingegen die AMG-Behandlung diesen Effekt signifikant abschwächte (p < 0.05, Abbildung 8A). Weitere Western Blot (p < 0.05, Abbildung 8B und C) und Immunfluoreszenz (p < 0.05, Abbildung 8D und E) Analysen bestätigten ebenfalls, dass die Anwendung von AMG die Proteinausprägung von FOXO3a signifikant erhöhte. Das ChIP-PCR-Experiment zeigte, dass AMG die Expressionsniveaus von SOD anheben kann.p < 0,001), CAT (p < 0,01) und GPX-4 (p < 0,01), wie in gezeigt Abbildung 8F–Isowie der Anreicherungsgrad von FOXO3a an den Promotoren von SOD (p < 0,001), CAT (p < 0,001) und GPX-4 (p < 0.001) (Abbildung 8J–L).
AMG unterdrückte die durch H2O2 induzierten, von FOXO3a regulierten oxidative Stress- und apoptotischen Erscheinungen in HPEMs
Zunächst stellten die Forscher eine HPEM-Linie mit geringer Expression von FOXO3a her, die sich durch einen erheblichen Rückgang der Proteinexpression (p < 0,001, Abbildung 9A und B) und Genexpression (p < 0,001, Abbildung 9C) von FOXO3a auszeichnete. Die Durchflusszytometrie-Ergebnisse zeigten zudem, dass AMG im Vergleich zur H2O2-Gruppe die ROS-Spiegel und die Zellapoptose in HPEMs mit niedriger FOXO3a-Expression deutlich verringerte (p < 0,001, Abbildung 9D–G). Gleichzeitig erhöhte AMG signifikant die Expression von FOXO3a-Protein und -Gen (p < 0,01, Abbildung 9H–J) sowie die Expressionsniveaus der von FOXO3a-regulierten Proteine SOD, CAT und GPX-4 (p < 0,05, p < 0,01 oder p < 0,001, Abbildung 9H, K–O) und der entsprechenden Gene in HPEMs mit geringer FOXO3a-Expression.
VERFÜGBARKEIT VON DATEN:
Alle Rohdaten sind im öffentlichen Datenarchiv unter der folgenden URL verfügbar: https://doi.org/10.5281/zenodo.22090466.
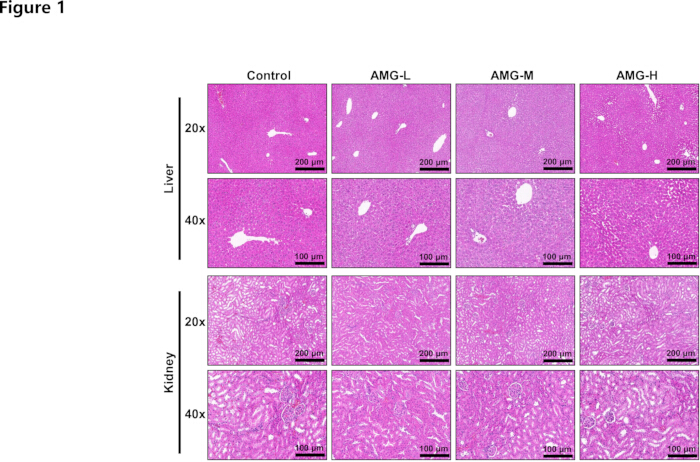
Abbildung 1: HE-Färbung. Die HE-Färbung wurde verwendet, um die dosisabhängige Toxizität von AMG (60, 90 und 120 mg/kg) an Leber und Niere normaler C3H/HeJ-Mäuse zu bewerten. Unter einer 20×- (200 µm) und 40×-Vermehrung (100 µm) wurde kein spezifischer pathologischer Schaden an Leber und Niere beobachtet. n = 6. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
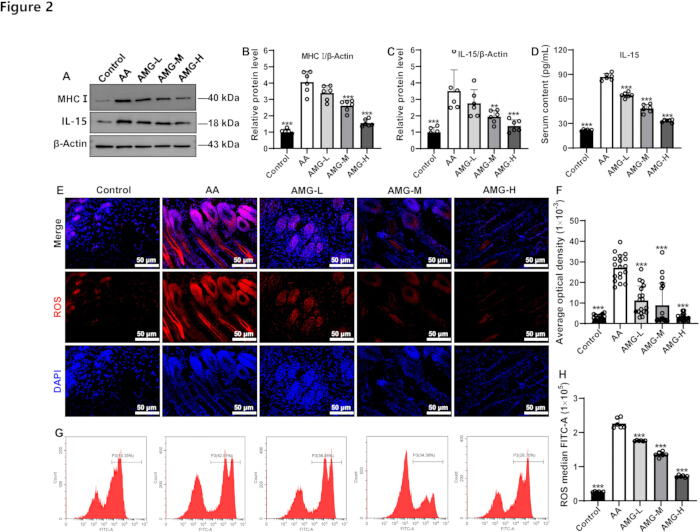
Abbildung 2: Wirkungen von AMG auf MHC I, IL-15 und ROS in Hautproben von AA-Mäusen. (A–C), reduzierte AMG die Proteinausprägung von MHC I und IL-15, wie durch Western Blot bewertet. (D), senkte AMG den IL-15-Spiegel im Serum der Mäuse. (E und F), reduzierte AMG die ROS-Spiegel in Maushautproben, wie mittels des IF-Assays nachgewiesen wurde. (G und H), reduzierte AMG die ROS-Spiegel in Maushautproben, wie durch Durchflusszytometrie bestimmt. Die experimentellen Ergebnisse werden als Mittelwert dargestellt ± SD **p < 0,01 und ***p < 0,001 im Vergleich zur AA-Gruppe; n = 6. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
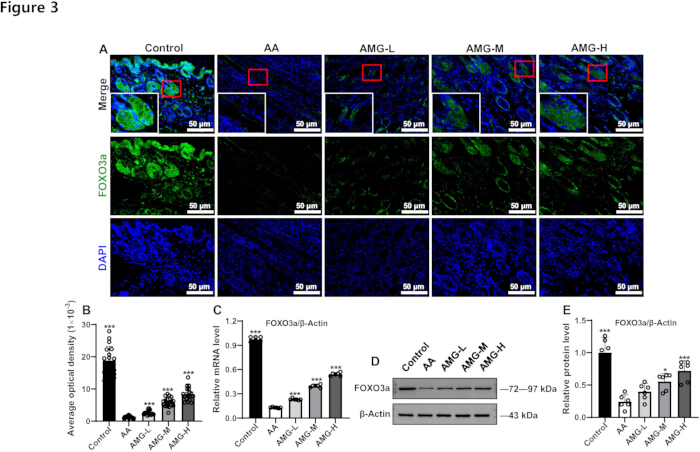
Abbildung 3: Wirkungen von AMG auf die FOXO3a-Protein- und Genlevel in Hautproben von AA-Mäusen. (A) AMG erhöhte die FOXO3a-Proteinlevel, wie durch IF-Assay bewertet. (B) Die quantitativen Ergebnisse des IF-Assays. (C) AMG erhöhte die FOXO3a-Genexpression. (D) AMG erhöhte die FOXO3a-Proteinexpression, wie durch Western Blot nachgewiesen. (E) Die quantitativen Ergebnisse des Western Blots. Die experimentellen Ergebnisse werden als Mittelwert ± SD dargestellt. *p < 0,05 und ***p < 0,001 im Vergleich zur AA-Gruppe; n = 6. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
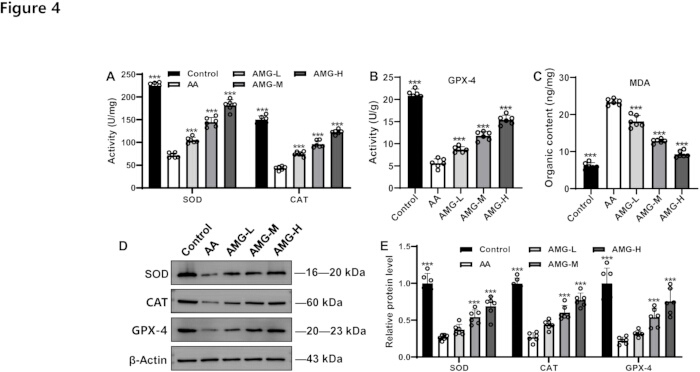
Abbildung 4: Auswirkungen von AMG auf Indikatoren des oxidativen Stresses in Hautproben von AA-Mäusen. (A) AMG stimuliert die Spiegel von SOD und CAT, wie mittels eines biochemischen Testkits bewertet. In (B) und (C) erhöhte AMG die GPX-4-Spiegel und unterdrückte die MDA-Spiegel. (D) repräsentative Proteinbänder von SOD, CAT und GPX-4. (E) Die quantitativen Ergebnisse der Proteinausprägung für SOD, CAT und GPX-4. Die experimentellen Ergebnisse werden als Mittelwert ± SD dargestellt. ***p < 0,001 im Vergleich zur AA-Gruppe; n = 6. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
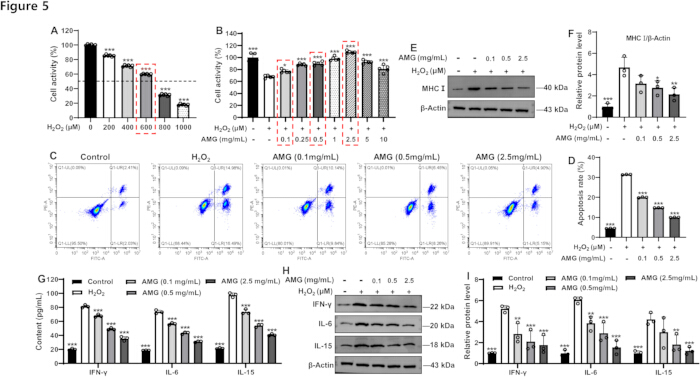
Abbildung 5: Wirkungen von AMG auf die Apoptose- und Entzündungsmarker von durch H2O2 induzierten HPEMs. (A) Auswirkungen unterschiedlicher Konzentrationen von H2O2 auf die Vitalität von HPEMs (n = 6). (B) Wirkungen unterschiedlicher Konzentrationen von AMG auf die Überlebensfähigkeit von durch H2O2-Stimuli induzierten HPEMs (n = 6). (C) Die Durchflusszytometrie wurde verwendet, um die von AMG vermittelte Apoptose in durch H2O2-Stimuli induzierten HPEMs zu bewerten. (D) Die statistischen Ergebnisse zur Zellapoptose. (E) Western-Blot-Band von MHC I. (F) Das quantitative Ergebnis der relativen Expression des Proteins MHC I. (G) Wirkungen von AMG auf IFN-γ, IL-6 und IL-15 in durch H2O2-Stimuli induzierten HPEMs. (H) Western-Blot-Bänder von IFN-γ, IL-6 und IL-15. (I) Das quantitative Ergebnis des relativen Spiegels der Proteine IFN-γ, IL-6 und IL-15. Die experimentellen Ergebnisse werden als Mittelwert ± SD angegeben. *p < 0,05, **p < 0,01 und ***p < 0,001 im Vergleich zur H2O2-Gruppe; n = 3. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
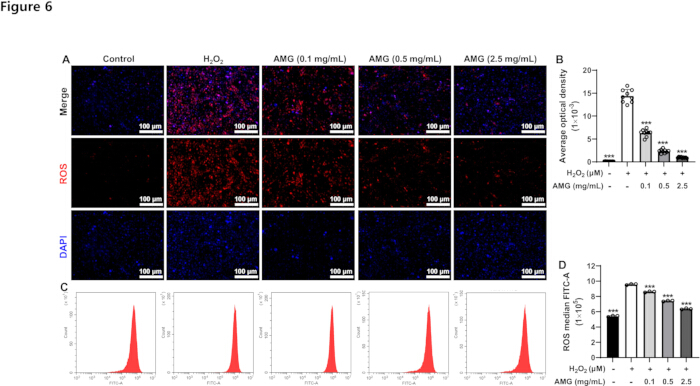
Abbildung 6: Wirkungen von AMG auf ROS in durch H2O2 induzierten HPEMs. (A) Das Fluoreszenzbild von ROS. (B) Die quantitativen statistischen Ergebnisse der Fluoreszenz von ROS. (C) Das Durchflusszytometriebild von ROS. (D) Die quantitativen statistischen Ergebnisse der Durchflusszytometrie von ROS. Die experimentellen Ergebnisse werden als Mittelwert ± SD angegeben. ***p < 0,001 im Vergleich zur H2O2-Gruppe; n = 3. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
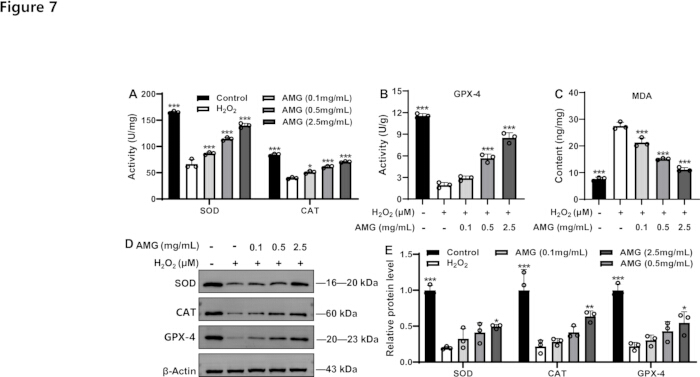
Abbildung 7: Wirkungen von AMG auf Indikatoren des oxidativen Stresses in durch H2O2 induzierten HPEMs. Die Konzentrationen von SOD, (A) CAT, (B) GPX-4 und (C) MDA in HPEMs wurden mithilfe biochemischer oder ELISA-Kits gemessen. Western-Blot-Banden von SOD, CAT und GPX-4 (D) sowie deren quantitative Ergebnisse (E). Die experimentellen Ergebnisse sind als Mittelwert ± SD dargestellt. *p < 0,05, **p < 0,01 und ***p < 0,001 im Vergleich zur H2O2-Gruppe; n = 3. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
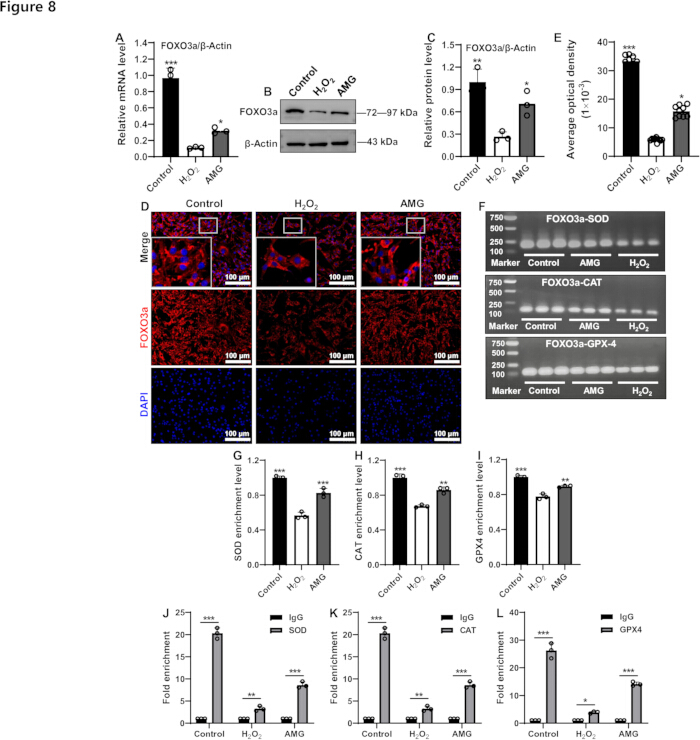
Abbildung 8: Wirkungen von AMG auf FOXO3a in durch H2O2 induzierten HPEMs. (A) der Expressionsgrad des FOXO3a-Gens. Western-Blot-Banden von FOXO3a (B) und deren quantitative Ergebnisse (C). Das Fluoreszenzbild von FOXO3a (D) und die quantitativen statistischen Ergebnisse der Fluoreszenz (E). (F) repräsentative elektrophoretische Muster der ChIP-PCR für FOXO3a-SOD, FOXO3a-CAT und FOXO3a-GPX-4. Quantitative Analyse der Grauwerte der ChIP-PCR-Banden für SOD (G), CAT (H) und GPX-4 (I). Die Anreicherungsgrade von FOXO3a an den Promotoren von SOD (J), CAT (K) und GPX-4 (L) wurden mittels ChIP-PCR bestimmt. Die experimentellen Ergebnisse werden als Mittelwert ± SD angegeben. *p < 0,05, **p < 0,01 und ***p < 0,001 im Vergleich zur H2O2-Gruppe oder zu den angegebenen Gruppen; n = 3. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
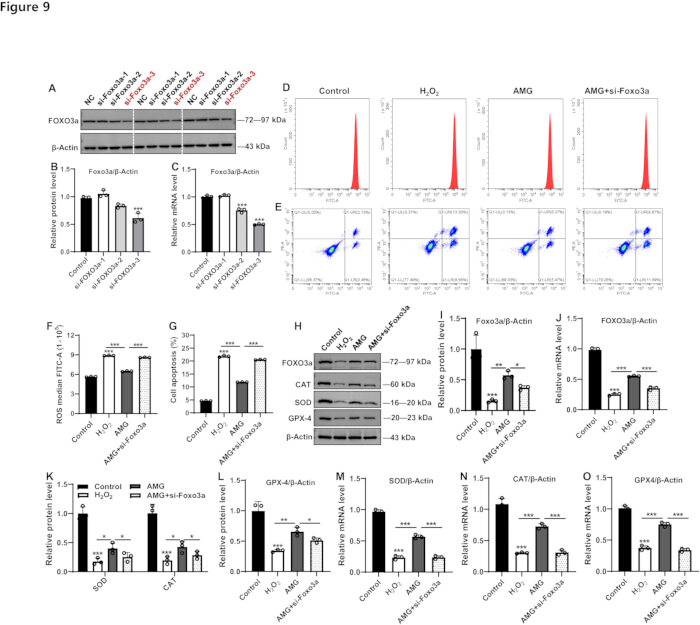
Abbildung 9: Wirkungen von AMG auf oxidativen Stress und Apoptose in HPEMs-Zellen mit geringer Expression von FOXO3a und H2O2-Stimuli. (A) Western-Blot-Banden von FOXO3a und deren quantitative Ergebnisse (B). (C) Quantitative Ergebnisse der FOXO3a-mRNA-Expression. (D) Durchflusszytometrie-Diagramm von ROS und Zellapoptose (E). Und die zugehörigen statistischen Ergebnisse (F und G). (H) Western-Blot-Banden von FOXO3a, SOD, CAT und GPX-4. (I) Das quantitative Ergebnis der FOXO3a-Proteinexpression. (J) Quantitative Ergebnisse der FOXO3a-mRNA-Expression. (K und L) Quantitative Ergebnisse der SOD-, CAT- und GPX-4-Proteinexpression. Quantitative Ergebnisse der SOD- (M), CAT- (N) und GPX-4- (O) Genexpression. Die experimentellen Ergebnisse werden als Mittelwert ± SD angegeben. *p < 0,05, **p < 0,01 und ***p < 0,001 im Vergleich zur Kontrollgruppe oder zu den angegebenen Gruppen; n = 3. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
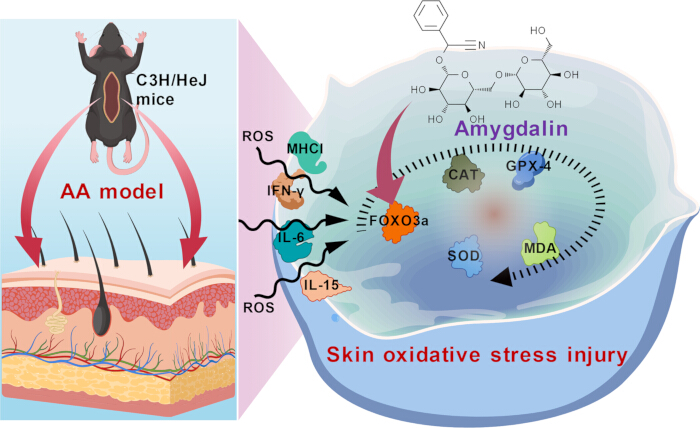
Abbildung 10: Schematisches Diagramm Dieses Diagramm veranschaulicht den Mechanismus, durch den AMG die Expression von FOXO3a stimuliert, wodurch oxidativer Stress und Entzündungen gehemmt sowie die AA verbessert werden. Es wird von den Autoren erstellt mit BioGDP.com, und es bestehen keine Urheberrechtsbedenken. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
| Gene | Spezies | Sequenzen (5' - 3') | Länge (bp) |
| FOXO3a | Maus | Forward: GCAAGCCGTGTACTGTGGA | 116 |
| Reverse: CGGGAGCGCGATGTTATCC | |||
| FOXO3a | Mensch | Forward: CGGACAAACGGCTCACTCT | 150 |
| Reverse: GGACCCGCATGAATCGACTAT | |||
| SOD | Mensch | Forward: AAAGATGGTGTGGCCGATGT | 167 |
| Reverse: CAAGCCAAACGACTTCCAGC | |||
| CAT | Mensch | Forward: CTATCCTGACACTCACCGCC | 129 |
| Reverse: CCACCCTGATTGTCCTGCAT | |||
| GPX-4 | Mensch | Forward: GCAAGGGCATCCTGGGAAAT | 84 |
| Reverse: GTTCTTGTCGATGAGGAACTGTG | |||
| β-Actin | Mensch | Forward: AATCTGGCACCACACCTTCTACAA | 172 |
| Reverse: GGATAGCACAGCCTGGATAGCAA | |||
| β-Actin | Maus | Forward: GTGCTATGTTGCTCTAGACTTCG | 174 |
| Reverse: ATGCCACAGGATTCCATACC |
Tabelle 1: Gen-Sequenzinformationen für die qRT-PCR. Die für die qRT-PCR verwendeten Primer.
| Gene | Spezies | Sequenzen (5' - 3') | Länge (bp) |
| SOD | Mensch | Forward: TGCCAGAAGAGGGACAGAACAGG | 173 |
| Reverse: ATCCGCCCACAGACACGAGAG | |||
| CAT | Mensch | Forward: GGGAAGCAGATTTCTCCAGTG | 141 |
| Reverse: GGGTGTTGATTTCCTCCTTTACC | |||
| GPX-4 | Mensch | Forward: TGGCACATTTTGGGGTTGGAAC | 103 |
| Reverse: TGAACGCTCCTCCTCCTTAAACG |
Tabelle 2: Gen-Sequenzinformationen für ChIP-PCR. Die für die ChIP-PCR verwendeten Primer.
Diskussion
AMG selbst weist keine direkte Toxizität auf. Es wird durch intestinale mikrobielle Enzyme oder Magensäure hydrolysiert, wodurch hochgiftiges Wasserstoffcyanid49 gebildet und freigesetzt wird. Anschließend wird Wasserstoffcyanid rasch über den Verdauungstrakt in den Blutkreislauf aufgenommen und im gesamten Körpergewebe verteilt, wodurch eine Hypoxie in den Geweben des Nervensystems, des Herz-Kreislauf-Systems und des Atmungssystems verursacht wird50. Hinsichtlich des Wirkmechanismus bindet sich Wasserstoffcyanid an die Eisenionen der Cytochromoxidase, blockiert dadurch die zelluläre Atmungskette und führt zu Gewebehypoxie sowie zellulären Stoffwechselstörungen, was eine akute Vergiftung auslöst51. Zu den toxischen Symptomen gehören Kopfschmerzen, Übelkeit, Erbrechen und Atembeschwerden49,52. In schweren Fällen kann es zu Atemstillstand und Tod kommen49,52. Daher ist die Sicherstellung eines sicheren Dosierungsbereichs von AMG eine Voraussetzung für die Untersuchung seiner pharmakologischen Wirkungen. In dieser Studie bestätigten die Autoren zunächst durch pathologische Untersuchungen, dass die von ihnen verwendeten Dosen (60, 90 und 120 mg/kg) bei normalen C3H/HeJ-Mäusen keine Leber- oder Nierentoxizität hervorriefen, was die Grundlage für weitere Forschungen zur Behandlung der alopecia areata mit AMG darstellt.
IFN-γ wirkt als entscheidender Auslöser der Entzündung während der Entwicklung der AA und wird hauptsächlich von aktivierten CD4+/CD8+-T-Zellen sezerniert53,54,55. Es stört das immunologische Privileg der Haarfollikel (beispielsweise durch Hemmung der geringen Expression von MHC I), wodurch autoreaktive T-Zellen die Melanozyten der Haarfollikel angreifen, was zu einer Vakuolisierung der Haarmutterzellen und einer abnormalen Keratinisierung der Haarwurzel führt56,57. Tierversuche haben gezeigt, dass Mäuse, denen das IFN-γ-Gen fehlt, resistent gegen AA sind58. IL-6 und IL-15 können Th1-Typ-Immunantworten verstärken, indem sie die JAK/STAT-Signaltransduktionskaskade aktivieren und die Freisetzung von IFN-γ fördern59. Darüber hinaus kann IL-15 die Proliferation von NK-Zellen und T-Zellen stimulieren und so die entzündliche Infiltration um die Haarfollikelstrukturen verschärfen60. Normale Haarwurzeln entziehen sich der Immunüberwachung durch geringe Expression von MHC I, während bei AA-Patienten MHC I abnormal hochreguliert ist, wodurch die Melanozyten der Haarfollikel Ziel eines T-Zell-Angriffs werden61. In dieser Studie stellten die Autoren fest, dass die AMG-Behandlung die Spiegel der MHC I und IL-15-Proteine in der Haut von C3H/HeJ-Mäusen signifikant herunterregulierte. Frühere Tierversuche bestätigten ebenfalls, dass AMG die Spiegel von IFN-γ und IL-6 bei AA-Mäusen hemmen kann38. Bei H2O2-induzierter HPEMs-Schädigung wurden MHC I sowie proinflammatorische Zytokine wie IFN-γ, IL-6 und IL-15 nach AMG-Behandlung deutlich reduziert. Diese Daten legen nahe, dass das therapeutische Potenzial von AMG bei der Behandlung der AA möglicherweise mit der Aufrechterhaltung des Gleichgewichts zwischen Immunität und Entzündung zusammenhängt.
Das Ungleichgewicht zwischen dem antioxidativen Enzymsystem (SOD, CAT und GPX-4) und den Markern der Lipidperoxidation, MDA und ROS, spielt eine entscheidende Rolle in der Pathogenese von AA62. SOD verringert oxidativen Stress, indem es die Umwandlung von O2·⁻ zu H2O2 katalysiert, während CAT und GPX-4 H2O2 weiter in H2O zersetzen und so die Anreicherung von ROS verhindern. Befunde deuten darauf hin, dass übermäßige ROS die Lipidperoxidation auslösen können, was zu erhöhten MDA-Spiegeln führt und Haarfollikelzellen direkt schädigt63. Bei Patienten mit AA nimmt die Fähigkeit der Haarfollikel zur Entfernung von ROS ab, und die Anreicherung von MDA verschärft den apoptotischen Zelltod der Papillazellen, wodurch die Haarfollikel vorzeitig in die Ruhephase eintreten63. Darüber hinaus könnte oxidativer Stress die Freisetzung des proinflammatorischen Faktors IFN-γ fördern und dadurch den Immunangriff sowie die Degeneration der Haarfollikel weiter verschlimmern64. In dieser Studie zeigten die Forscher, dass die AMG-Behandlung die übermäßige Produktion von ROS in der Haut von AA-Mäusen sowie die H2O2-induzierte Schädigung von HPEM-Zellen reduzierte. Gleichzeitig zeigten sowohl in-vivo- als auch ex-vivo-Experimente, dass die AMG-Behandlung die antioxidativen Parameter (SOD, CAT und GPX-4) signifikant erhöhte, während der prooxidative Marker MDA abnahm. Diese Ergebnisse deuten darauf hin, dass die Aufrechterhaltung des Gleichgewichts des oxidativen Stresses zum therapeutischen Effekt von AMG bei AA beiträgt. Da eine verminderte GPX-4-Aktivität zu unkontrollierter MDA-Produktion führen könnte, könnte dies den Ferroptose-Prozess auslösen. Diese molekularen Vorgänge könnten ebenfalls zur Verschlimmerung der AA beitragen und einen möglichen Wirkmechanismus der AMG-Behandlung darstellen. All dies bedarf jedoch zukünftig weiterer experimenteller Bestätigung.
Als wichtiger Transkriptionsfaktor könnte FOXO3a an der Pathogenese der Agranulozytose über oxidative Stress- und Immunregulationswege beteiligt sein.65Es kann unter oxidativem Stress in den Zellkern translozieren und dadurch wichtige antioxidative Enzyme wie SOD und CAT hochregulieren, um überschüssige ROS abzubauen und oxidative Schäden im Kopfhautgewebe zu reduzieren. Durch die Verringerung der lokalen oxidativen Belastung kann FOXO3a das immunologische Privileg der Haarfollikel stabilisieren und den autoimmun vermittelten Angriff, der der nicht-zyklischen Alopezie zugrunde liegt, eindämmen. Hinsichtlich der Regulation des oxidativen Stresses kann die Aktivierung von FOXO3a die Expression antioxidativer Enzyme wie SOD und CAT erhöhen und die Anreicherung von ROS hemmen.65. Eine beeinträchtigte FOXO3a-Funktion kann jedoch eine erhöhte Bildung von MDA, einem zentralen Produkt der Lipidperoxidation, auslösen und dadurch die zelluläre Apoptose verstärken 66. Auf der Ebene der Immunregulation induziert FOXO3a autoimmune Angriffe, indem es die MHC-I-gebundenen Antigene reguliert67Diese Studie berichtete, dass AMG die FOXO3a-Protein- und Genexpression im Hautgewebe von C3H/HeJ-Mäusen sowie in H2O2-induzierten HPEM-Zellen stark erhöhte. Darüber hinaus senkte AMG die ROS-Spiegel und die Zellapoptose, während es gleichzeitig die Expression von FOXO3a sowie die Spiegel der von FOXO3a-regulierten SOD, CAT und GPX-4 in HPEM-Zellen mit niedriger FOXO3a-Expression anhob. Insgesamt deuten diese Befunde darauf hin, dass die therapeutische Wirkung von AMG auf AA eng mit dem FOXO3a-vermittelten regulatorischen Gleichgewicht zwischen oxidativem Stress und zellulärer Apoptose verknüpft ist. Angesichts der kausalen Beziehung zwischen AMG-vermitteltem FOXO3a und der Verbesserung von AA ist es in zukünftigen Studien notwendig, unter AMG-Intervention eine FOXO3a-Überexpression oder pharmakologische Hemmung durchzuführen. Darüber hinaus bleibt zu untersuchen, ob AMG-vermitteltes FOXO3a oxidativen Stress abschwächen und entzündliche Reaktionen modulieren kann, um Haarfollikel-Stammzellen vor ROS-induzierten Schäden und immunvermittelter Zerstörung zu schützen. Ein weiterer bemerkenswerter Aspekt ist, ob AMG seine antioxidative Wirkung ausübt, indem es direkt der Toxizität von H entgegenwirkt₂O₂ oder durch die Regulation der intrazellulären Signaltransduktion bleibt in dieser Forschung eine ungelöste Frage.
Zusammenfassend bestätigte diese Studie erstmals, dass AMG bei den getesteten Dosierungen nicht potenziell toxisch für Leber und Nieren war. Darüber hinaus wurde auf molekularer Ebene gezeigt, dass AMG die Expression von FOXO3a fördern könnte, wodurch die Expressionen von SOD, CAT und GPX-4 transkriptionell aktiviert, entzündliche Reaktionen und apoptotische Ereignisse gehemmt werden, um AA zu behandeln (Abbildung 10). Es bestehen jedoch einige Limitationen dieser Studie, die in nachfolgenden Untersuchungen noch erforscht und geklärt werden müssen. Erstens ist die Klärung der Langzeittoxizität und der pharmakokinetischen Eigenschaften von AMG bei AA-Tieren die Grundlage und Voraussetzung für tiefgreifende Forschungen zu seinen pharmakologischen Wirkungen und molekularen Mechanismen. Zweitens bedürfen die pharmakologischen Wirkungen von AMG bei der Behandlung von AA weiterer Bestätigung durch großangelegte Studien in mehreren Tiermodellen sowie klinische Studien. Hinsichtlich des molekularen Mechanismus sind weiterhin Rettungsexperimente erforderlich, um zu bestätigen, ob tatsächlich FOXO3a den pharmakologischen Effekt von AMG vermittelt. Ob die direkte antioxidative Wirkung von AMG oder der durch AMG-vermittelte antioxidative Effekt vorliegt, muss weiter untersucht werden.
Offenlegungen
The authors have no conflicts of interest to declare.
AUTHORS’ CONTRIBUTION:
Xun He: Investigation, Methodology, Writing – original draft. Jingsong Liu, Jiawei Wang, and Zhe Dai: Data curation. Yugang Gong, Wei Lu, and Xiaowei Sha: Software, Visualization, and Validation. Xun He: Conceptualization, Writing – Review & Editing, Funding acquisition, and Supervision.
Danksagungen
Diese Arbeit wurde von dem Gesundheitsausschuss für Kadermitglieder der Provinz Sichuan (2024-221) unterstützt.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 5×All-In-One-MasterMix (mit AccuRT genomischem DNA-Entfernungs-Kit) | Applied Biological Materials Inc., Jiangsu, China | G492 | |
| β-Actin-Antikörper | Affinity Biosciences Co., Ltd., Wuhan, China | AF7018 | |
| Amygdalin | Chengdu Herbpurify Co., Ltd., Chengdu, China | K-001-181216 | |
| Katalase-Antikörper | Proteintech, Wuhan, China | 66765-1-Ig | |
| Katalase-Kit | Elabscience, Wuhan, China | E-BC-K031-M | |
| C3H/HeJ-Mäuse | Chengdu Yaokang Biotechnology Co., Ltd., Chengdu, China | N000190 | |
| ChIP-Assay-Kit | Beyotime Biotechnology, Shanghai, China | P2078 | |
| 254 Kulturmedium | Gibco, Thermo Fisher Scientific, America | M-254-500 | |
| DAPI-Färbereagenz | Servicebio, Wuhan, China | G1012 | |
| Dispase II | Shanghai Yuanye Bio-Technology Co., Ltd., Shanghai, China | S25046 | |
| EvaGreen Express 2×qPCR MasterMix – ohne Farbstoff | Applied Biological Materials Inc., Jiangsu, China | MasterMix-ES | |
| Schnell-Schwarz HB | Sangon Biotech Co., Ltd., Shanghai, China | A602008-0025 | |
| Fötales Rinderserum | Every Green | 13011-8611 | |
| Fluoreszenzmikroskop | SOPTOP | CX40 | |
| FOXO3a-Antikörper | Proteintech, Wuhan, China | 10849-1-AP | |
| Gefriermikrotom | Thermo | Cryotome E | |
| Glutathionperoxidase 4-Antikörper | Proteintech, Wuhan, China | 67763-1-Ig | |
| Glutathionperoxidase 4-Kit | Elabscience, Wuhan, China | E-BC-K883-M | |
| Image-pro plus 6.0 | Media Cybernetics, Inc., Rockville, MD, USA | —— | |
| Imiquimod-Creme | Sichuan Mingxin Pharmaceutical Co. Ltd., Chengdu, China | H20030129 | |
| Interferon-gamma-Antikörper | Proteintech, Wuhan, China | 15365-1-AP | |
| Interferon-gamma-Kit | Elabscience, Wuhan, China | E-EL-H0108 und E-EL-M0048 | |
| Interleukin-6-Antikörper | Proteintech, Wuhan, China | 21865-1-AP | |
| Interleukin-6-Kit | Elabscience, Wuhan, China | E-EL-H6156 und E-EL-M0044 | |
| Interleukin-15-Antikörper | Affinity Biosciences Ltd., Wuhan, China | DF2521 | |
| Interleukin-15-Kit | Elabscience, Wuhan, China | E-EL-H0222 und E-EL-M0728 | |
| Malondialdehyd-Kit | Elabscience, Wuhan, China | E-EL-0060 | |
| MHC-Antikörper | Affinity Biosciences Ltd., Wuhan, China | DF8558 | |
| Optisches Mikroskop | ZEISS | Primo Star | |
| Paraffinschneider | Thermo scientific | HM325 | |
| Pathologische Scansoftware | 3DHISTECH (Ungarn) | Slide Viewer 2.5.0 | |
| Penicillin-Synthroid-Lösung | Biosharp, Beijing, China | BL505A | |
| Kaninchen-IgG | Beyotime Biotechnology, Shanghai, China | A7016 | |
| ROS-Assay-Kit | Beyotime Biotechnology, Shanghai, China | S0033M | |
| Superoxiddismutase 1-Antikörper | Proteintech, Wuhan, China | 10269-1-AP | |
| Gewebepelletier | Wuhan Junjie Electronics Co., Ltd., Wuhan China | JB-P5 | |
| Gewebetrockner | Thermo scientific | STP420 ES | |
| Gesamt-RNA-Isolationskit | Foregene, Chengdu, China | RE-03014 | |
| Gesamt-Superoxiddismutase-Kit | Elabscience, Wuhan, China | E-BC-K020-M | |
| Weißes Vaseline | Shanghai Aladdin Biochemical Technology Co., Ltd., Shanghai, China | P434227 |
Referenzen
- Li XQ, et al. Burden of alopecia areata in China, 1990-2021: Global Burden of Disease Study 2021. Chin Med J (Engl). 2025;138:318-324.
- Rodríguez-Tamez G, Maskan-Bermudez N, Tosti A. Alopecia areata incognita: Current evidence. Dermatol Ther (Heidelb). 2025;15:635-645.
- Zhou J, et al. Global burden of alopecia areata and associated diseases: A trend analysis from 1990 to 2021. J Cosmet Dermatol. 2025;24:e70076.
- Jeon JJ, Lee S, Kim MS, Kim YS, Hong SH, Yon DK, et al. The burden of alopecia areata among United States, 2000-2021: A systematic analysis for the global burden of disease study 2021. J Am Acad Dermatol. 2025;S0190-9622(25)02673-8.
- Todorova L, Kluger N. Alopecia: A Google trends analysis of the past 5 years (2018-2023). Skin Appendage Disord. 2025;11:282-286.
- Pratt CH, King LEJr, Messenger AG, Christiano AM, Sundberg JP. Alopecia areata. Nat Rev Dis Primers. 2017;3:17011.
- Mistry J, Sibbald C. Clinical presentations and comorbidities of pediatric alopecia areata. Pediatr Dermatol. 2025;42 Suppl 1:5-11.
- Kuty-Pachecka M. Psychological and psychopathological factors in alopecia areata. Psychiatr Pol. 2015;49:955-964.
- Marahatta S, Agrawal S, Adhikari BR. Psychological impact of alopecia areata. Dermatol Res Pract. 2020;2020:8879343.
- Dainichi T, Iwata M, Kaku Y. Alopecia areata: What's new in the epidemiology, comorbidities, and pathogenesis J Dermatol Sci. 2023;112:120-127.
- Lintzeri DA, Constantinou A, Hillmann K, Ghoreschi K, Vogt A, Blume-Peytavi U. Alopecia areata - Current understanding and management. J Dtsch Dermatol Ges. 2022;20:59-90.
- Singh R, Kumar P, Kumar D, Aggarwal N, Chopra H, Kumar V. Alopecia areata: Review of epidemiology, pathophysiology, current treatments and nanoparticulate delivery system. Ther Deliv. 2024;15:193-210.
- Rizzetto G, De Simoni E, Gioacchini H, Molinelli E, Offidani A, Simonetti O. Fractionated CO2 laser in combination with topical tacrolimus for chronic alopecia areata: A case series study. Life (Basel). 2024;14:1128.
- Gasques L, de Brito FF, Zobiole R, Bortolini L, Assumpção VCC, Carvalho CL. Corticosteroid atrophy plaque on the scalp treated with 5-fluourouracil and bleomycin infusion in the MMP technique. Skin Appendage Disord. 2024;10:425-428.
- Lee D, et al. Serum levels of IL-18 and sIL-2R in patients with alopecia areata receiving combined therapy with oral cyclosporine and steroids. Exp Dermatol. 2010;19:145-147.
- Mlacker S, et al. A review on laser and light-based therapies for alopecia areata. J Cosmet Laser Ther. 2017;19:93-99.
- Jafari MA, Bazgir G, Hosseini-Baharanchi FS, Jafarzadeh A, Goodarzi A. Efficacy and safety of laser therapy and phototherapy in cicatricial and noncicatricial alopecia: A systematic review study. Health Sci Rep. 2024;7:e70180.
- Civaş E, Aksoy B, Aksoy HM, Eski M, Yucel K. Hair transplantation for therapy-resistant alopecia areata of the eyebrows: is it the right choice J Dermatol. 2010;37:823-826.
- King BA, Craiglow BG. Janus kinase inhibitors for alopecia areata. J Am Acad Dermatol. 2023;89:S29-S32.
- Chim I, Ghiya R, Sinclair RD, Eisman S. Novel investigational drugs for alopecia areata and future perspectives. Expert Opin Investig Drugs. 2024;33:441-449.
- Valdez-Zertuche JA, Ramírez-Marín HA, Tosti A. Efficacy, safety and tolerability of drugs for alopecia: A comprehensive review. Expert Opin Drug Metab Toxicol. 2025;21:347-371.
- Liu M, et al. Janus kinase inhibitors for alopecia areata: A systematic review and meta-analysis. JAMA Netw Open. 2023;6:e2320351.
- Sohn KC, et al. Effect of thioredoxin reductase 1 on glucocorticoid receptor activity in human outer root sheath cells. Biochem Biophys Res Commun. 2007;356:810-815.
- Sun C, Ding HH, Zhang L, Wang JL, Su MY. Co-regulatory mechanisms and potential markers of oxidative stress-related genes in vitiligo and alopecia areata. Skin Res Technol. 2024;30:e70001.
- Perlmutter J, et al. The role of reactive oxygen species in the pathogenesis of alopecia areata: A systematic review and meta-analysis. Skin Pharmacol Physiol. 2025;38:59-67.
- Xie B, Sun JY, Song XZ. Hair follicle melanocytes initiate autoimmunity in alopecia areata: A trigger point. Clin Rev Allergy Immunol. 2022;63:417-430.
- Shin JM, et al. The crosstalk between PTEN-induced kinase 1-mediated mitophagy and the inflammasome in the pathogenesis of alopecia areata. Exp Dermatol. 2024;33:e14844.
- Mustafa AI, Khashaba RA, Fawzy E, Baghdady SMA, Rezk SM. Cross talk between oxidative stress and inflammation in alopecia areata. J Cosmet Dermatol. 2021;20:2305-2310.
- Cohen JN, et al. Regulatory T cells in skin mediate immune privilege of the hair follicle stem cell niche. Sci Immunol. 2024;9:eadh0152.
- Kinoshita-Ise M, Martinez-Cabriales SA, Alhusayen R. Chronological association between alopecia areata and autoimmune thyroid diseases: A systematic review and meta-analysis. J Dermatol. 2019;46:702-709.
- Chen DY, Yang XY, Wang HX, Fan WL, He YQ. Molecular mechanism of polygonum multiflorum in the treatment of androgenic alopecia: based on bioinformatics and molecular docking method. Diagnosis and Therapy Journal of Dermato-Venereology 2022;29:101–108.
- Iwasa K, et al. Long term administration of loquat leaves and their major component, ursolic acid, attenuated endogenous amyloid-β burden and memory impairment. Sci Rep. 2023;13:16770.
- Makovi CM, Parker CH, Zhang K. Determination of amygdalin in apricot kernels and almonds Using LC-MS/MS. J AOAC Int. 2023;106:457-463.
- Li XJ, et al. Identifying the active components and mechanisms of Persicae Semen in treating androgenetic alopecia: Insights from network pharmacology and experimental evaluations. J Ethnopharmacol. 2025;347:119755.
- Wang Q, et al. Amygdalin alleviates psoriasis-like lesions by improving skin barrier function. Arch Dermatol Res. 2025;317:115.
- Li SY, et al. Effects of amygdalin on ferroptosis and oxidative stress in diabetic retinopathy progression via the NRF2/ARE signaling pathway. Exp Eye Res. 2023;234:109569.
- Kimura K, Liu YH, Hsieh CL. Amygdalin's neuroprotective effects on acute ischemic stroke in rats. J Ethnopharmacol. 2025;345:119621.
- He X, et al. Amygdalin ameliorates alopecia areata on C3H/HeJ mice by inhibiting inflammation through JAK2/STAT3 pathway. J Ethnopharmacol. 2024;331:118317.
- He X, et al. The antiinflammatory effects of Xuefu Zhuyu decoction on C3H/HeJ mice with alopecia areata. Phytomedicine. 2021;81:153423.
- Ma LP, et al. Melatonin inhibits senescence-associated melanin pigmentation through the p53-TYR pathway in human primary melanocytes and the skin of C57BL/6 J mice after UVB irradiation. J Mol Med (Berl). 2023;101:581-593.
- Hou Y, et al. Longzhibu disease and its therapeutic effects by traditional Tibetan medicine: Ershi-wei Chenxiang pills. J Ethnopharmacol. 2020;249:112426.
- Hou Y, Fan FH, Xie N, Zhang Y, Wang XB, Meng XL. Rhodiola crenulata alleviates hypobaric hypoxia-induced brain injury by maintaining BBB integrity and balancing energy metabolism dysfunction. Phytomedicine. 2024;128:155529.
- Hou Y, et al. Salidroside intensifies mitochondrial function of CoCl2-damaged HT22 cells by stimulating PI3K-AKT-MAPK signaling pathway. Phytomedicine. 2023;109:154568.
- Fan FH, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule’s protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Wang XB, et al. Mechanistic insights into salidroside's mitochondrial protection via AMPK/Sirt1/HIF-1α pathway in hypoxic HT22 cells. JoVE. 2025;218:e66923.
- Wang XB, et al. Rhodiola crenulata attenuates apoptosis and mitochondrial energy metabolism disorder in rats with hypobaric hypoxia-induced brain injury by regulating the HIF-1α/microRNA 210/ISCU1/2(COX10) signaling pathway. J Ethnopharmacol. 2019;241:111801.
- Fan SJ, et al. PRMT5 encourages cell migration and metastasis of tongue squamous cell carcinoma through methylating ΔNp63α. Cell Death Differ. 2026; 33:465-479.
- Zhao Y, et al. Integrated analysis reveals that EGR1 promotes epithelial IL33 production in T2 asthma. J Transl Med. 2025;23:203.
- He XY, Wu LJ, Wang WX, Xie PJ, Chen YH, Wang F. Amygdalin - A pharmacological and toxicological review. J Ethnopharmacol. 2020;254:112717.
- Alan-Albayrak E, Simonsen U. Cyanide beyond toxicity: A systematic review of its effects on vascular function. Basic Clin Pharmacol Toxicol. 2025;137:e70124.
- Lachowicz JI, Alexander J, Aaseth JO. Cyanide and cyanogenic compounds-toxicity, molecular targets, and therapeutic agents. Biomolecules. 2024;14:1420.
- Jaszczak-Wilke E, Polkowska Ż, Koprowski M, Owsianik K, Mitchell AE, Bałczewski P. Amygdalin: Toxicity, anticancer activity and analytical procedures for its determination in plant seeds. Molecules. 2021;26:2253.
- Deeths MJ, Endrizzi BT, Irvin ML, Steiner LP, Ericson ME, Hordinsky MK. Phenotypic analysis of T-cells in extensive alopecia areata scalp suggests partial tolerance. J Invest Dermatol. 2006;126:366-373.
- Garzorz N, et al. Dissecting susceptibility from exogenous triggers: the model of alopecia areata and associated inflammatory skin diseases. J Eur Acad Dermatol Venereol. 2015;29:2429-2435.
- Belpaire A, Demeyer A, Van Caelenberg E, van Geel N, Speeckaert R. The AhR pathway is dysregulated in alopecia areata. J Transl Autoimmun. 2025;10:100282.
- Gilhar A, Schrum AG, Etzioni A, Waldmann H, Paus R. Alopecia areata: Animal models illuminate autoimmune pathogenesis and novel immunotherapeutic strategies. Autoimmun Rev. 2016;15:726-735.
- Oelert T, Gilhar A, Paus R. T-cell "induced-self" MHC class I/peptide complexes may enable "de novo" tolerance induction to neo-antigens occurring outside of the thymus: Lessons from the hair follicle. Exp Dermatol. 2017;26:529-531.
- Freyschmidt-Paul P, et al. Interferon-γ-deficient mice are resistant to the development of alopecia areata. Br J Dermatol. 2006;155:515-521.
- Lensing M, Jabbari A. An overview of JAK/STAT pathways and JAK inhibition in alopecia areata. Front Immunol. 2022;13:955035.
- Suzuki T, et al. Interleukin-15 is a hair follicle immune privilege guardian. J Autoimmun. 2024;145:103217.
- Fitzhugh MH, Hansen JG, Jabbari A, Berrebi KG. Pathophysiology of Alopecia Areata in the Pediatric Patient. Pediatr Dermatol. 2025;42:24-30.
- Ma YQ, Sun Z, Li YM, Xu H. Oxidative stress and alopecia areata. Front Med (Lausanne). 2023;10:1181572.
- Bakry OA, Elshazly RM, Shoeib MA, Gooda A. Oxidative stress in alopecia areata: A case-control study. Am J Clin Dermatol. 2014;15:57-64.
- Peterle L, Sanfilippo S, Borgia F, Cicero N, Gangemi S. Alopecia areata: A review of the role of oxidative stress, possible biomarkers, and potential novel therapeutic approaches. Antioxidants (Basel). 2023;12:135.
- Yang X, et al. Exosomes derived from platelet-rich plasma promote hair regeneration by regulating the SIRT1/FoxO3a pathway to alleviate oxidative stress. Regen Ther. 2025;30:710-718.
- Xu SC, Huang P, Yang JH, Du HX, Wan HT, He Y. Calycosin alleviates cerebral ischemia/reperfusion injury by repressing autophagy via STAT3/FOXO3a signaling pathway. Phytomedicine. 2023;115:154845.
- Tang QY, et al. Orlistat facilitates immunotherapy via AKT-FOXO3a-FOXM1-mediated PD-L1 suppression. J Immunother Cancer. 2025;13:e008923.