Acht Wochen Laufbandtraining waren bei diabetischen Mäusen mit kardialen, intestinalen Barrieren- und Nlrp3-bezogenen transkriptionellen Veränderungen sowie veränderter Darmmikrobiota, insbesondere einer Zunahme von Akkermansia muciniphila, assoziiert.
Forschungsartikel
Laufbandtraining ist mit Veränderungen der Darmbarriere und der Herzens-Nlrp3-Genexpression bei diabetischen Mäusen assoziiert
In diesem Artikel
Zusammenfassung
Zusammenfassung
Diese Studie untersuchte Zusammenhänge zwischen körperlicher Aktivität, der Genexpression von intestinalen Barrierefunktionen und der Herzfunktion Nlrp3 Expressionsinflammasomenbezogener Gene in einem diabetischen Mausmodell. Die metabolische Dysregulation wurde bei männlichen C57BL/6J-Mäusen durch eine fettreiche Diät in Kombination mit niedrig dosiertem Streptozotocin induziert, gefolgt von achtwöchigem Laufbandtraining (5° Steigung, 12 m/min, 20–50 min/Tag, 5 Tage/Woche). Im Vergleich zu sedentären diabetischen Mäusen wiesen die trainierten Mäuse niedrigere Werte bei nüchternem Blutzucker, Insulinresistenz und serumlipiden Konzentrationen sowie höhere koloniale Occludin mRNA-Expression (relative Expression: 0,38) ± 0,04 bei diabetischen Mäusen im Vergleich zu 0,79 ± 0,05 bei trainierten Mäusen, P < 0,001), geringere kardiale Nlrp3, IL-1β, TNF-α, Col1a1, und Tgfb1 mRNA-Expression und ein niedrigeres Bax/Bcl-2-mRNA-Verhältnis (3,06 ± 0,19 vs. 1,48 ± 0.10, P < 0,001). Die qPCR-Analyse von sechs ausgewählten Taxa in Fäkalproben zeigte, dass mit der körperlichen Aktivität eine erhöhte relative Häufigkeit der folgenden Taxa assoziiert war: Akkermansia muciniphila (0.31 ± 0,04 bis 0,84 ± 0,07) und Lactobacillus (0.48 ± 0,05 bis 1,01 ± 0,07) und abgenommen Escherichia coli (3.84 ± 0,33 bis 1,68 ± 0.13, P < 0,01). In trainierten Mäusen, A. muciniphila die Häufigkeit war negativ mit der Herzfunktion korreliert Nlrp3 mRNA-Expression (R = −0,81, P = 0,0046). Diese korrelativen Befunde deuten auf Assoziationen zwischen körperlicher Aktivität, transkriptionellen Veränderungen im Herzen und Darm sowie ausgewählten Darmmikroben-Taxa bei diabetischen Mäusen hin, belegen jedoch keine kausalen Zusammenhänge. Alle molekularen Befunde beschränken sich auf Veränderungen auf mRNA-Ebene und belegen keine Funktion der Darmbarriere, Aktivierung des Inflammasoms, myokardiale Fibrose, Apoptose oder andere funktionelle beziehungsweise proteinebene Effekte.
Einleitung
Diabetes mellitus ist eine zunehmende globale Gesundheitsbedrohung, und diabetische Herzkomplikationen bleiben schwerwiegende Erkrankungen mit begrenzten spezifischen Therapiemöglichkeiten1,2,3,4. Bewegungstraining kann die Herzfunktion bei diabetischen Tiermodellen verbessern5,6, doch die zugrundeliegenden Mechanismen, insbesondere jene, die die Darmmikrobiota und die intestinale Barriere betreffen, sind noch nicht vollständig verstanden.
Die Darmmikrobiota reguliert den Stoffwechsel und die Immunität des Wirts7. Bei Diabetes kann eine Darmdysbiose und eine beeinträchtigte Barrierefunktion die Translokation von Lipopolysacchariden (LPS) erhöhen, eine TLR4-vermittelte Entzündung fördern und eine myokardiale Schädigung verschlimmern8,9. Diese aus dem Darm stammende entzündliche Belastung könnte zum Fortschreiten diabetischer Komplikationen, einschließlich einer kardialen Dysfunktion, beitragen. Nützliche Bakterien wie Akkermansia und Faecalibacterium können vermindert sein, während Bakterien wie E. coli zunehmen können10,11. Solche mikrobiellen Veränderungen könnten zu einer lokalen intestinalen Entzündung und systemischer Endotoxämie führen und möglicherweise entfernt liegende Organe wie das Herz beeinflussen. Das NLRP3-Inflammasom ist ein wichtiger Vermittler der kardialen Entzündung bei diabetischer Herzerkrankung, und seine Aktivierung kann durch mikrobielle Metabolite des Darms moduliert werden12,13. Bestimmte mikrobielle Produkte, insbesondere kurzkettige Fettsäuren und LPS, wirken sich entgegengesetzt auf die Priming- und Assemblierungsschritte von NLRP3 aus, was auf einen möglichen Zusammenhang zwischen der mikrobiellen Darmumgebung und dem entzündlichen Status des Myokards hindeutet.
Körperliche Aktivität kann die Darmmikrobiota verändern und die intestinale Barrierefunktion verbessern14,15, doch die Zusammenhänge zwischen körperlicher Betätigung, der Genexpression von proteinkodierenden Genen der intestinalen Barriere und der Genexpression des kardialen NLRP3-Inflammasoms in diabetischen Modellen sind bisher unvollständig verstanden. Das intestinale Epithel fungiert als Grenzfläche zwischen luminalen Mikroben und dem systemischen Kreislauf und könnte daher zu den Zusammenhängen zwischen Veränderungen der Darmmikrobiota und kardialen entzündlichen Reaktionen beitragen. Direkte experimentelle Belege für einen kausalen Zusammenhang zwischen durch körperliche Aktivität hervorgerufenen Veränderungen der intestinalen Barriere, der Aktivierung des NLRP3-Inflammasoms und kardialem Schutz in diabetischen Modellen fehlen jedoch bisher.
Daher lautete die Hypothese, dass ein Laufbandtraining mit kardialen transkriptionellen Veränderungen, einer veränderten Zusammensetzung ausgewählter Darmmikrobiota, der Erhaltung der genetischen Expression von darmassoziierten Barrierefunktionen und einer verminderten kardialen Expression NLRP3-Inflammasom-bezogener Gene bei diabetischen Mäusen verbunden sein würde. Ein diabetisches Mausmodell wurde mittels einer fettreichen Ernährung in Kombination mit einer niedrigen Dosis Streptozotocin etabliert, gefolgt von einer achtwöchigen Laufbandtrainingsintervention. Die Untersuchungen umfassten metabolische Parameter, die mRNA-Expression von Occludin im Kolon, die kardiale Expression NLRP3-Inflammasom-bezogener Gene sowie Marker der Entzündungs-, Fibrose- und Apoptose-assoziierten Genexpression. Ausgewählte Darmmikrobiota wurden ebenfalls quantifiziert, um trainingsassoziierte Veränderungen der Darmmikrobiota zu bewerten. Korrelationsanalysen dienten der Untersuchung von Zusammenhängen zwischen ausgewählten Darmmikrobiota, der genetischen Expression von darmassoziierten Barrierefunktionen und kardialen transkriptionellen Markern. Diese Analysen waren darauf ausgelegt, Assoziationen zu identifizieren, ohne einen kausalen Mechanismus zwischen Darmbarriere und NLRP3 zu etablieren.
Protokoll
Alle Tierversuche wurden in einer von einer internationalen Organisation zur Akkreditierung von Versuchstierhaltungen akkreditierten Einrichtung durchgeführt. Das Protokoll wurde von dem zuständigen Ausschuss für institutionellen Tierschutz und Tierversuche (IACUC; Genehmigungs-ID: VS212500103) geprüft und genehmigt. Die Experimente wurden an einer externen, zugelassenen Einrichtung durchgeführt, da die Heiminstitution über keine lizenzierte Tierhaltung für dieses spezifische Modell verfügt.
Herstellung des diabetischen Mausmodells
Männliche C57BL/6J-Mäuse (8 Wochen alt, frei von definierten Krankheitserregern, Körpergewicht 20–22 g) wurden eine Woche lang unter kontrollierten Bedingungen (22 ± 2 °C, 50 ± 10 % relative Luftfeuchtigkeit, 12-Stunden-Licht-/Dunkelwechsel) akklimatisiert und hatten ständigen Zugang zu Standardfutter und Wasser.
Nach der Akklimatisierung wurden die Mäuse mithilfe einer Zufallszahlentabelle einer normalen Kontrollgruppe (Control, n = 10) oder einer Diabetes-induzierten Gruppe zugewiesen. Die experimentellen Verfahren und Messungen der Ergebnisse erfolgten unter Ausschluss der Kenntnis der Gruppenzugehörigkeit durch die Untersucher. Die Tiere wurden zu je vier pro Käfig in standardmäßigen Polycarbonatkäfigen mit angereichertem Einstreu unter spezifisch pathogenfreien Bedingungen gehalten. Es wurden ausschließlich männliche Mäuse verwendet, um potenzielle Variabilität im Zusammenhang mit dem Östruszyklus zu minimieren und da das Modell mit fettreicher Diät/Streptozotocin (STZ) bei Männchen konsistentere metabolische Phänotypen hervorbrachte.
Mäusen zur Induktion von Diabetes wurde vier Wochen lang eine fettreiche Diät (60 % kcal aus Fett) verabreicht, gefolgt von intraperitonealen Injektionen von Streptozotocin (STZ; 30 mg/kg Körpergewicht) an fünf aufeinanderfolgenden Tagen. STZ wurde frisch in 0,1 mol/L Citratpuffer (pH 4,5) gelöst, vor Licht geschützt und innerhalb von 15 Minuten nach der Zubereitung verabreicht. Kontrollmäuse erhielten äquivalente Volumina des Citratpuffers. Eine Woche nach der letzten Injektion wurde der nüchterne Blutzucker (FBG) aus Blut der Schwanzspitze nach einem 6-stündigen Fasten bestimmt. Mäuse mit einem FBG ≥ 11,1 mmol/L galten als diabetisch. Diese Mäuse wurden weitere vier Wochen lang mit der fettreichen Diät gefüttert, um die Entwicklung diabetesbedingter Veränderungen in der Genexpression zu ermöglichen.
Insgesamt wurden 35 Mäuse der Modellinduktion unterzogen, von denen 28 das Kriterium für Diabetes erfüllten. Das Körpergewicht und die Nahrungsaufnahme wurden wöchentlich überwacht, dienten jedoch nicht als Ausschlusskriterien. Es verstarb kein Tier und es wurden keine Tiere während der Modellierungs- oder Interventionsphase ausgeschlossen. Die erfolgreich modellierten Mäuse wurden zufällig in eine Diabetesgruppe (DM, n = 10) und eine Bewegungsinterventionsgruppe (DM+Ex, n = 10) unterteilt. Die endgültige Stichprobengröße betrug n = 10 pro Gruppe in allen Analysen, wobei jede einzelne Maus als experimentelle Einheit galt.
Laufband-Trainingsintervention
Mäuse der DM+Ex-Gruppe absolvierten ein Laufbandtraining mit einer Neigung von 5° und einer Geschwindigkeit von 12 m/min, 5 Tage pro Woche über einen Zeitraum von 8 Wochen. Alle Trainingsseinheiten fanden zwischen 9:00 und 11:00 Uhr statt. Vor Beginn der Intervention wurden die Mäuse drei Tage lang an das Laufbandlaufen gewöhnt, wobei sie täglich 5 Minuten lang mit 6 m/min bei einer Neigung von 0° liefen. Jede Trainingseinheit beinhaltete ein 5-minütiges Aufwärmen und ein 5-minütiges Abkühlen, jeweils mit 6 m/min. Leichte mechanische Anreize wurden verwendet, um das Laufen zu fördern; elektrische Stimulation kam nicht zum Einsatz.
Die tägliche Laufdauer betrug 20 min in Woche 1, 25 min in Woche 2, 30 min in Woche 3, 35 min in Woche 4, 40 min in Woche 5, 45 min in Woche 6 und 50 min in den Wochen 7–8. Kontroll- und DM-Mäuse wurden für entsprechende Zeiträume auf stationäre Laufbänder gestellt, um den Einfluss von Handhabung und Umweltexposition auszuschließen. Ein vorab definierter Ausschlusskriterium war das Nichtabsolvieren von mehr als 80 % der vorgeschriebenen Trainingsseinheiten. Kein Tier erfüllte dieses Kriterium; alle Tiere absolvierten die vorgeschriebenen Trainingsseinheiten, und es wurden keine unerwünschten Ereignisse beobachtet.
Probenentnahme
Zwölf Stunden nach der letzten Trainingseinheit wurden die Mäuse 6 h lang nüchtern gehalten und durch Inhalation von Isofluran (3 % Induktion und 1,5–2 % Erhaltung in 100 % O₂ bei 1 L/min) anästhesiert. Etwa 500 µL Blut wurden aus dem retroorbitalen Venenplexus entnommen, 30 min bei Raumtemperatur gerinnen lassen und anschließend 15 min bei 4 °C mit 3.000 × g zentrifugiert. Das resultierende Serum wurde bei −80 °C gelagert.
Die Mäuse wurden anschließend unter tiefer Anästhesie durch Halsbruch euthanasiert. Die Herzen wurden rasch entfernt und mit eiskalter, phosphatgepufferter Kochsalzlösung (PBS) durchgespült. Das Gewebe des linken Ventrikels wurde isoliert; ein Teil wurde sofort in flüssigem Stickstoff schockgefroren und bei −80 °C zur RNA-Extraktion gelagert, während das verbleibende Gewebe in 4 % Paraformaldehyd fixiert wurde. Etwa 1 cm distales Kolon gewebe wurde entnommen, mit PBS durchgespült, schockgefroren und bei −80 °C gelagert. Frische Fäkalproben wurden direkt aus dem Rektum zwischen 9:00 und 10:00 Uhr morgens entnommen, um Kontaminationen durch den Käfig zu minimieren, in sterile Röhrchen überführt und innerhalb von 15 Minuten nach der Sammlung bei −80 °C eingefroren.
Serumbiochemische Messungen
Der FBG wurde mit einem Blutglukose-Messsystem bestimmt. Das serumständige Insulin wurde mittels enzymgekoppelter Immunadsorption gemessen, und die Gesamtcholesterin- sowie Triglyceridkonzentrationen wurden mit einem automatisierten biochemischen Analysengerät ermittelt. Die Insulinresistenz wurde anhand der Homöostasemodellbewertung berechnet: HOMA-IR = FBG (mmol/L) × Insulin (mIU/L)/22,5.
RNA-Extraktion und echtzeit quantitative PCR aus myokardialem Gewebe
Etwa 30 mg Gewebe des linken Ventrikels wurden in einem auf Phenol-Guanidinium basierenden Reagenz zur RNA-Extraktion homogenisiert, und die Gesamt-RNA wurde gemäß dem Reagenzprotokoll extrahiert. Die RNA-Konzentration und -Reinheit wurden spektrophotometrisch bestimmt, wobei ein A260/A280-Verhältnis von 1,8–2,0 als akzeptabel galt. Aus der Gesamt-RNA (1 µg) wurde komplementäre DNA (cDNA) durch Reverse Transkription synthetisiert.
Die quantitative PCR (qPCR) wurde in einem 20 µL großen Reaktionsgemisch durchgeführt, das eine fluoreszierende, DNA-bindende qPCR-Mastermixlösung, jeweils 0,4 µmol/L Vorwärts- und Rückwärtsprimer sowie 2 µL cDNA-Vorlage enthielt. Die Amplifikationsbedingungen bestanden aus einer Inkubation bei 95 °C für 30 s, gefolgt von 40 Zyklen mit jeweils 95 °C für 5 s und 60 °C für 34 s. Eine Schmelzkurvenanalyse wurde im Bereich von 65–95 °C durchgeführt, um die Spezifität der Amplifikation zu überprüfen. Alle Reaktionen wurden im Duplikat durchgeführt, und es wurden Kontrollen ohne Matrize sowie ohne Reverse Transkription mitgeführt. Die Amplifikationswirkungsgrade aller Primerpaare lagen zwischen 90–105 %. Die Primer für Tnfa, Il1b, Tgfb1, Col1a1, Nlrp3 und Gapdh sind in Tabelle 1 aufgeführt. Die relative Genexpression wurde nach der 2−ΔΔCt-Methode berechnet und als Faltungsänderung im Vergleich zur Kontrollgruppe angegeben.
Extraktion von DNA aus dem fäkalen Mikrobiom und qPCR-Quantifizierung
Die gesamte mikrobielle DNA wurde aus Stuhlproben mithilfe eines Protokolls zur DNA-Extraktion aus Stuhl gewonnen. Die relativen Häufigkeiten von sechs ausgewählten bakteriellen Taxa – Faecalibacterium prausnitzii, Akkermansia muciniphila, die Gattung Lactobacillus, die Gattung Bifidobacterium, Escherichia coli und die Gattung Desulfovibrio – wurden mittels qPCR mit taxon-spezifischen Primern bestimmt, die in Tabelle 1 aufgeführt sind. Als Referenz für die Gesamtanzahl der Bakterien wurden universelle bakterielle 16S-rRNA-Primer verwendet.
Die relative Abundanz wurde mit der 2−ΔΔCt-Methode unter Verwendung der gesamten bakteriellen 16S rRNA als Referenz berechnet und auf die Kontrollgruppe normiert. Für jedes Ziel wurden Standardkurven durch serielle Verdünnungen von Plasmid-DNA mit bekannten Konzentrationen erstellt, um die Amplifikationseffizienz zu überprüfen. Alle Reaktionen wurden im Duplikat mit Schmelzkurvenanalyse durchgeführt. Da bakterielle Taxa in der Kopienzahl des 16S-rRNA-Gens variieren, wurden die Ergebnisse als relative Abundanz gemäß 2−ΔΔCt und nicht als absolute Kopienzahlen angegeben.
Beurteilung der okkludinären Expression im Kolon
Etwa 30 mg kolisches Gewebe wurden zur Gesamt-RNA-Extraktion und cDNA-Synthese wie oben beschrieben aufgearbeitet. Die mRNA-Expression von Occludin wurde mittels qPCR mit den folgenden Primern gemessen: forward, 5′-GTCGAATGTCTTTGCTGGTGGT-3′; reverse, 5′-GCAGCAGCCATGTACTCTTCAC-3′. Gapdh diente als interne Referenz, und die relative Expression wurde mit der 2−ΔΔCt-Methode berechnet.
Statistische Analyse
Die Daten wurden als Mittelwert dargestellt ± Standardabweichung (SD). Die Normalverteilung wurde mit dem Shapiro-Wilk-Test überprüft, die Varianzhomogenität mit dem Levene-Test. Zwischengruppenvergleiche mit parametrischen Annahmen wurden mittels einfaktorieller Varianzanalyse (ANOVA) durchgeführt, gefolgt vom Tukey-Test (honestly significant difference, HSD) für post-hoc paarweise Vergleiche. Zwei-Gruppen-Vergleiche erfolgten mit dem ungepaarten zweiseitigen Student-t-Test. t-Test.
Die Rangkorrelation nach Spearman wurde verwendet, um Zusammenhänge zwischen Variablen zu bewerten. Für die Korrelations-Heatmap wurden partielle Spearman-Korrelationen berechnet, wobei die experimentelle Gruppe als Kontrollvariable berücksichtigt wurde. Die P-Werte wurden mittels der False-Discovery-Rate-(FDR)-Methode nach Benjamini-Hochberg für multiple Vergleiche angepasst, und ein FDR-korrigierter P-Wert < 0,05 galt als statistisch signifikant. Effektgrößen (Cohens f für ANOVA und r für Korrelationen) sowie 95-%-Konfidenzintervalle für wesentliche Mittelwertsunterschiede wurden, wo zutreffend, angegeben. Alle statistischen Analysen wurden mit einer Software für statistisches Rechnen (Version 4.2.0) durchgeführt.
Ergebnisse
Laufbandtraining war mit einer Verbesserung metabolischer Störungen bei diabetischen Mäusen assoziiert
Im Vergleich zur Kontrollgruppe wiesen diabetische Mäuse signifikant höhere Werte bei nüchternem Blutzucker (18,23 ± 0,61 vs. 6,03 ± 0,21 mmol/L, P < 0,001), Seruminsulin (16,30 ± 1,04 vs. 8,23 ± 0,38 mIU/L, P < 0,001), HOMA-IR (13,19 ± 1,18 vs. 2,21 ± 0,17, P < 0,001), Gesamtcholesterin (4,62 ± 0,23 vs. 2,01 ± 0,09 mmol/L, P < 0,001) und Triglyceriden (2,12 ± 0,15 vs. 0,80 ± 0,08 mmol/L, P < 0,001) auf. Nach der achtwöchigen Laufband-Intervention sanken diese Parameter im Vergleich zu den diabetischen Mäusen auf 12,03 ± 0,63 mmol/L, 10,61 ± 0,71 mIU/L, 5,69 ± 0,67, 3,09 ± 0,24 mmol/L bzw. 1,20 ± 0,14 mmol/L (jeweils P < 0,01 oder P < 0,001); die meisten Werte blieben jedoch höher als in der Kontrollgruppe (Abbildung 1A–E). Die einfaktorielle ANOVA zeigte signifikante Gruppeneffekte für alle Parameter (alle F(2,27) > 25,0, P < 0,001).
Das körperliche Training war mit einer höheren mRNA-Expression von Occludin im Kolon und einer niedrigeren expressionsbezogenen Genexpression des Herz-Inflammasoms verbunden
Bei diabetischen Mäusen war die mRNA-Expression von kolonischem Occludin etwa 62 % niedriger als in der Kontrollgruppe (0,38 ± 0,04 vs. 1,00 ± 0,06, P < 0,001). Gleichzeitig stieg die mRNA-Expression von Nlrp3, Il1b und Tnfa im Herzen auf das 5,6-fache, 6,5-fache bzw. 5,1-fache der Kontrollwerte an (alle P < 0,001). Nach der Bewegungsintervention erhöhte sich die mRNA-Expression von Occludin auf 0,79 ± 0,05 (P < 0,001 gegenüber diabetischen Mäusen), während die mRNA-Expression von Nlrp3, Il1b und Tnfa auf 2,30 ± 0,21, 2,66 ± 0,25 bzw. 2,14 ± 0,17 sank (alle P < 0,001 gegenüber diabetischen Mäusen; Abbildung 2A–D).
Die körperliche Betätigung war mit einer geringeren Genexpression in Verbindung mit myokardialer Fibrose und Apoptose assoziiert
Die diabetische Gruppe zeigte eine erhöhte kardiale Expression der fibrosebezogenen Gene Col1a1 (4,46 ± 0,29-fach, P < 0,001) und Tgfb1 (4,17 ± 0,24-fach, P < 0,001) sowie ein höheres Bax/Bcl2-mRNA-Verhältnis (3,06 ± 0,19, P < 0,001) im Vergleich zur Kontrollgruppe. Nach dem Training sank die mRNA-Expression von Col1a1 und Tgfb1 auf 2,02 ± 0,16 bzw. 1,92 ± 0,16 (beide P < 0,001 vs. diabetische Mäuse), und das Bax/Bcl2-mRNA-Verhältnis verringerte sich auf 1,48 ± 0,10 (P < 0,001 vs. diabetische Mäuse; Abbildung 3A–C).
Die körperliche Betätigung war mit Veränderungen ausgewählter mikrobieller Darmtaxa bei diabetischen Mäusen assoziiert
Im Vergleich zur Kontrollgruppe wiesen diabetische Mäuse signifikant geringere relative Häufigkeiten von vier ausgewählten bakteriellen Taxa auf: F. prausnitzii (0,25 ± 0,03 vs. 1,01 ± 0,07), A. muciniphila (0,31 ± 0,04 vs. 1,00 ± 0,06), Lactobacillus (0,48 ± 0,05 vs. 0,99 ± 0,04) und Bifidobacterium (0,56 ± 0,06 vs. 1,00 ± 0,06; alle P < 0,001). Dagegen waren die relativen Häufigkeiten von E. coli (3,84 ± 0,33 vs. 0,99 ± 0,08) und Desulfovibrio (3,07 ± 0,26 vs. 0,99 ± 0,07) signifikant höher (beide P < 0,001). Die Bewegungsintervention war mit signifikant höheren relativen Häufigkeiten von F. prausnitzii, A. muciniphila, Lactobacillus und Bifidobacterium assoziiert (P < 0,01 oder P < 0,001), wobei A. muciniphila 0,84 ± 0,07 erreichte. Gleichzeitig sanken die relativen Häufigkeiten von E. coli und Desulfovibrio auf 1,68 ± 0,13 bzw. 1,52 ± 0,08 (beide P < 0,001 im Vergleich zu diabetischen Mäusen; Abbildung 4A–F).
Ausgewählte mikrobielle Veränderungen wurden mit der Genexpression im Herzen und im Kolon korreliert
Die Spearman-Korrelationsanalyse wurde durchgeführt, um Assoziationen zwischen den relativen Häufigkeiten ausgewählter mikrobieller Taxa und Genexpressionsmarkern in Herz- und Kolongewebe zu bewerten (Abbildung 5A). Die relative Häufigkeit von A. muciniphila korrelierte negativ mit der Nlrp3-mRNA im Herzen (R = −0,81, P = 0,0046) und mit der Tnfa-mRNA (R = −0,80, P = 0,0054). Die relative Häufigkeit von E. coli korrelierte positiv mit der mRNA-Expression von Occludin im Kolon (R = 0,66, P = 0,036; Abbildung 5B–D). Diese Ergebnisse zeigten Assoziationen zwischen ausgewählten Darmmikrobiota-Taxa und transkriptionellen Markern des Herzens und des Kolons auf, bewiesen jedoch keine kausalen Zusammenhänge.
VERFÜGBARKEIT VON DATEN:
Die während der vorliegenden Studie generierten und/oder analysierten Datensätze sind auf begründete Anfrage beim entsprechenden Autor erhältlich.
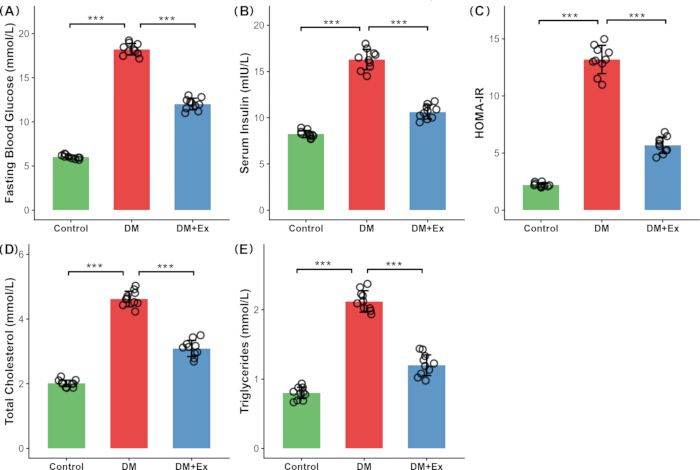
Abbildung 1: Auswirkungen des Laufbandtrainings auf metabolische Parameter bei diabetischen Mäusen. (A) Nüchternblutzucker. (B) Seruminsulin. (C) HOMA-IR. (D) Gesamtcholesterin. (E) Triglyceride in den Gruppen Kontrolle, DM und DM+Ex. Die Daten sind als Mittelwert ± SD dargestellt (n = 10 pro Gruppe), wobei die einzelnen Datenpunkte auf jedem Balken aufgezeichnet sind. Der Vergleich zwischen den Gruppen erfolgte mittels einfaktorieller ANOVA, gefolgt vom Tukey’schen post-hoc-Test. *P < 0,05, **P < 0,01, ***P < 0,001; ns = nicht signifikant. Abkürzungen: DM = Diabetes-Modell; Ex = Training; HOMA-IR = homöostatisches Modell zur Beurteilung der Insulinresistenz; SD = Standardabweichung. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
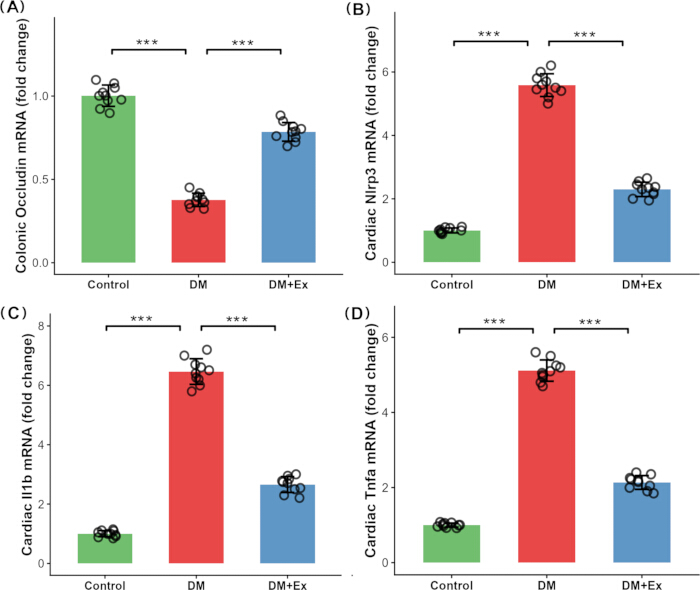
Abbildung 2: Auswirkungen des Laufbandtrainings auf die Genexpression von Darmbarriere-assoziierten und herzassoziierten Inflammasomen bei diabetischen Mäusen. (A) Relative kolonale Occludin-mRNA-Expression. (B) Relative kardiale Nlrp3-mRNA-Expression. (C) Relative kardiale Il1b-mRNA-Expression. (D) Relative kardiale Tnfa-mRNA-Expression. Die Genexpression wurde auf Gapdh normalisiert und als Faltungsänderung relativ zur Kontrollgruppe angegeben. Die Daten sind als Mittelwert ± SD dargestellt (n = 10 pro Gruppe). *P < 0,05, **P < 0,01, ***P < 0,001. Abkürzungen: IL-1β = Interleukin-1β; TNF-α = Tumornekrosefaktor-α; SD = Standardabweichung. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
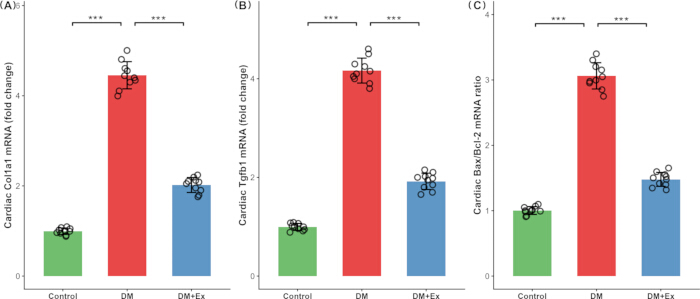
Abbildung 3: Auswirkungen des Laufbandtrainings auf die Genexpression von myokardialer Fibrose und Apoptose in diabetischen Mäusen. (A) Relative kardiale Col1a1-mRNA-Expression. (B) Relative kardiale Tgfb1-mRNA-Expression. (C) Bax/Bcl2-mRNA-Verhältnis. Die Genexpression wurde auf Gapdh normalisiert und als Faltungsänderung relativ zur Kontrollgruppe angegeben. Das Bax/Bcl2-Verhältnis wurde aus den relativen mRNA-Expressionswerten berechnet. Die Daten sind als Mittelwert ± SD (n = 10 pro Gruppe) dargestellt, wobei die einzelnen Datenpunkte überlagert sind. *P < 0,05, **P < 0,01, ***P < 0,001. Abkürzungen: Col1a1 = Kollagen Typ I Alpha 1; Tgfb1 = Transformierender Wachstumsfaktor-β1; Bax = BCL2-assoziertes X-Protein; Bcl2 = B-Zell-Lymphom 2; SD = Standardabweichung. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
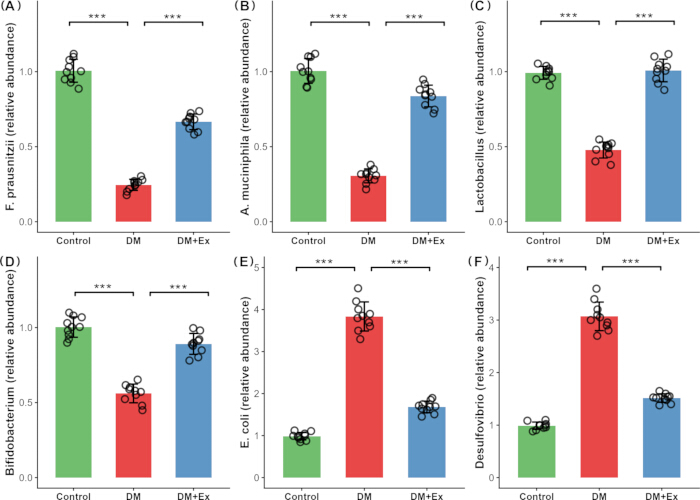
Abbildung 4: Auswirkungen des Laufbandtrainings auf die relativen Häufigkeiten ausgewählter Darmmikrobiota bei diabetischen Mäusen. (A) Faecalibacterium prausnitzii. (B) Akkermansia muciniphila. (C) Lactobacillus. (D) Bifidobacterium. (E) Escherichia coli. (F) Desulfovibrio. Die relativen Häufigkeiten wurden mittels qPCR unter Verwendung taxonenspezifischer 16S-rRNA-Ziele im Verhältnis zur gesamten bakteriellen 16S rRNA bestimmt und auf die Kontrollgruppe normiert. Die Daten sind als Mittelwert ± SD dargestellt (n = 10 pro Gruppe). *P < 0,05, **P < 0,01, ***P < 0,001. Abkürzung: SD = Standardabweichung. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
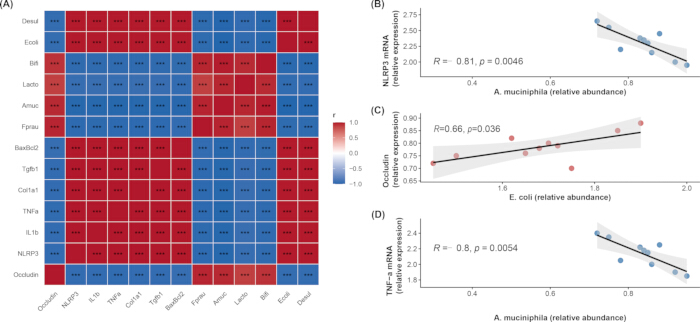
Abbildung 5: Korrelationsanalyse zwischen ausgewählten Darmmikrobiota-Taxa und kardialen sowie kolonalen Genexpressionsparametern. (A) Wärmekarte, die Spearman-Korrelationskoeffizienten zwischen ausgewählten bakteriellen Taxa und kolonalem Occludin-mRNA-, kardialem Nlrp3-, Il1b- und Tnfa-mRNA-, Col1a1- und Tgfb1-mRNA-Spiegeln sowie dem Bax/Bcl2-mRNA-Verhältnis zeigt. Die Korrelationen wurden anhand von Daten aus allen drei Gruppen (n = 30) als partielle Spearman-Korrelationen unter Kontrolle der experimentellen Gruppe berechnet. Die Farbskala reicht von blau für negative Korrelationen bis rot für positive Korrelationen. Sterne innerhalb der Wärmekarte kennzeichnen die Signifikanz nach FDR-Korrektur (*P < 0,05, **P < 0,01, ***P < 0,001). (B) Korrelation zwischen der relativen Häufigkeit von A. muciniphila und der kardialen Nlrp3-mRNA-Expression in der DM+Ex-Gruppe. (C) Korrelation zwischen der relativen Häufigkeit von E. coli und der kolonalen Occludin-mRNA-Expression in der DM+Ex-Gruppe. (D) Korrelation zwischen der relativen Häufigkeit von A. muciniphila und der kardialen Tnfa-mRNA-Expression in der DM+Ex-Gruppe. Jeder Punkt repräsentiert eine einzelne Maus. Lineare Regressionslinien und 95 %-Konfidenzintervalle sind zur Veranschaulichung dargestellt. Abkürzungen: DM = Diabetesmodell; Ex = Bewegung; FDR = Falsch-Entdeckungs-Rate. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
| Gen/Mikroorganismus | Forward-Primer | Reverse-Primer |
| Tnfa | CCCTCACACTCAGATCATCTTCT | GCTACGACGTGGGCTACAG |
| Il1b | GCAACTGTTCCTGAACTCAACT | ATCTTTTGGGGTCCGTCAACT |
| Tgfb1 | CTCCCGTGGCTTCTAGTGC | GCCTTAGTTTGGACAGGATCTG |
| Col1a1 | GCTCCTCTTAGGGGCCACT | CCACGTCTCACCATTGGGG |
| Bax | AGACAGGGGCCTTTTTGCTAC | AATTCGCCGGAGACACTCG |
| Bcl2 | GCTACCGTCGTGACTTCGC | CCCCACCGAACTCAAAGAAGG |
| Nlrp3 | GTGAGCCCACACCACAGTTC | GACGTTCACCTCGCAGATGA |
| Gapdh | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| Gesamtanzahl Bakterien (16S rRNA) | ACTCCTACGGGAGGCAGCAG | ATTACCGCGGCTGCTGG |
| F. prausnitzii | GGAGGAAGAAGGTCTTCGG | AATTCCGCCTACCTCTGCACT |
| A. muciniphila | CAGCACGTGAAGGTGGGGAC | CCTTGCGGTTGGCTTCAGAT |
| Lactobacillus | AGCAGTAGGGAATCTTCCA | ATTYCACCGCTACACATG |
| Bifidobacterium | TCGCGTCCGGTGTGAAAG | CCACATCCAGCATCCAC |
| E. coli | AGGCCTTCGGGTTGTAAAGT | GTTAGCCGGTGCTTCTTCTG |
| Desulfovibrio | CCGTAGATATCTGGAGGAACATCAG | ACATCTAGCATCCATCGTTTACAGC |
Tabelle 1: Primersequenzen, die für die Echtzeit-quantitative PCR verwendet wurden.
Diskussion
In der vorliegenden Studie wurde ein durch eine fettreiche Diät in Kombination mit niedrig dosiertem STZ induziertes diabetisches Mausmodell verwendet, um metabolische, intestinale, kardiale und mikrobielle Veränderungen im Zusammenhang mit körperlicher Aktivität zu untersuchen. Acht Wochen Laufbandtraining waren mit verbesserten metabolischen Parametern, einer höheren Expression von Occludin-mRNA im Kolon, einer geringeren kardialen Expression von Genen, die mit dem Nlrp3-Inflammasom assoziiert sind, sowie einer verringerten myokardialen Entzündungs-, Fibrose- und apoptosebezogenen Genexpression verbunden. Das Training war außerdem mit Veränderungen in den relativen Häufigkeiten ausgewählter Darmmikroben-Taxa assoziiert. Insgesamt legen diese Ergebnisse nahe, dass kardiale transkriptionelle Veränderungen im Zusammenhang mit körperlicher Aktivität möglicherweise mit Modifikationen der Genexpression von intestinalen Barrieremolekülen und ausgewählten Darmmikroben-Taxa verknüpft sind, obwohl ein kausaler Zusammenhang nicht nachgewiesen wurde.
Wie für das diabetische Modell erwartet, entwickelten die Mäuse ausgeprägte Stoffwechselstörungen, einschließlich Hyperglykämie, Hyperinsulinämie, Insulinresistenz und Dyslipidämie, was mit dem gut etablierten pathologischen Paradigma übereinstimmt16,17. Das achtwöchige Trainingsprogramm war mit einer Verringerung des nüchternen Blutzuckers um etwa 34 % und des HOMA-IR um 57 % verbunden, was auf eine teilweise Verbesserung der Insulinresistenz hindeutet. Auf myokardialer Ebene ging die körperliche Aktivität mit einer Abnahme der Expression proinflammatorischer (Tnfa, Il1b), profibrotischer (Tgfb1, Col1a1) und apoptosebezogener (Bax/Bcl2) mRNA-Marker um 40–60 % einher, was mit früheren Studien übereinstimmt, die aerobes Training mit der Aktivierung von AMPK und der Hemmung von NF-κB verbinden18,19. Keiner dieser Parameter kehrte jedoch auf Kontrollniveau zurück, was darauf hindeutet, dass die achtwöchige Intervention nicht ausreichte, um das etablierte, diabetesassoziierte transkriptionelle Phänomen zu normalisieren, was möglicherweise mit anhaltenden glykämischen Gedächtniseffekten zusammenhängt20.
Die koloniale Occludin-mRNA-Expression war bei diabetischen Mäusen um etwa 62 % niedriger, was auf eine verminderte Expression genbedingter Faktoren der Darmbarriere hindeutet. Gleichzeitig stieg die cardiale mRNA-Expression von Nlrp3, Il1b und Tnfa um das 5,6-Fache, 6,5-Fache bzw. 5,1-Fache an. Das NLRP3-Inflammasom ist ein wichtiger Sensor des angeborenen Immunsystems und wurde mit der diabetischen Herzerkrankung in Verbindung gebracht. Hyperglykämie kann die myokardiale Nlrp3-Genexpression über reaktive Sauerstoffspezies (ROS) und den Thioredoxin-Interaktionsprotein (TXNIP)-Signalweg erhöhen, was anschließend die entzündliche Signalübertragung über IL-1β und IL-18 beeinflusst21,22. Eine erhöhte systemische Translokation von Lipopolysaccharid (LPS) infolge einer gestörten Darmbarriere wurde ebenfalls als upstream-Reiz für die Priming-Phase des NLRP3 beschrieben23. LPS kann die Expression von Nlrp3 und pro-Il1b über die TLR4/MyD88/NF-κB-Signalachse steigern und damit das erste Signal liefern, das für die Inflammasom-Priming erforderlich ist24. Im vorliegenden diabetischen Modell wurde eine erhöhte relative Häufigkeit von E. coli beobachtet, zusammen mit einer verminderten kolonialen Occludin-mRNA-Expression und einer erhöhten cardialen Expression inflammasombezogener Gene. Diese parallelen Veränderungen sind vereinbar mit einem möglichen, darmassoziierten entzündlichen Signalweg, belegen jedoch weder eine erhöhte LPS-Translokation noch einen kausalen Darm-Herz-Mechanismus.
Die Trainingsintervention war mit einer Zunahme der kolonischen Occludin-mRNA-Expression auf etwa 79 % des Kontrollwerts verbunden, während die kardiale Expression der Nlrp3-, Il1b- und Tnfa-mRNA auf etwa das 2,3-, 2,7- bzw. 2,1-Fache der Kontrollwerte sank. Diese Befunde deuten auf einen Zusammenhang zwischen einer höheren Expression von Genen, die mit der Darmbarriere in Verbindung stehen, und einer geringeren Expression inflammatorischer Gene im Herzen nach körperlicher Betätigung hin. Frühere Studien haben vorgeschlagen, dass körperliche Aktivität die Darmbarrierefunktion durch eine gesteigerte Schleimproduktion, die Regulation von Tight-Junction-Proteinen und eine verbesserte intestinale Perfusion unterstützen könnte25,26,27,28. Die vorliegenden Daten beschränkten sich jedoch auf mRNA-Messungen und bestätigten daher nicht diese funktionellen Mechanismen.
Die gezielte Analyse der Darmmikrobiota zeigte, dass körperliche Aktivität mit einer teilweisen Umkehr diabetesassoziiierter Veränderungen in den relativen Häufigkeiten ausgewählter Taxa verbunden war, insbesondere mit einem Anstieg von A. muciniphila und einem Rückgang von E. coli. Diese entgegengesetzten Veränderungen stimmen mit zuvor beschriebenen Assoziationen zwischen diesen Taxa und der Aufrechterhaltung der Barrierefunktion sowie endotoxinbezogenen Prozessen überein29,30,31. Da jedoch nur ausgewählte Taxa quantifiziert wurden, sollten die Ergebnisse als übungsassoziierte Veränderungen in den relativen Häufigkeiten spezifischer Bakterien und nicht als umfassende Neugestaltung der Darmmikrobiota interpretiert werden.
Die Korrelationsanalyse identifizierte zudem Zusammenhänge zwischen ausgewählten mikrobiellen Taxa und transkriptionellen Markern. Innerhalb der Gruppe mit Bewegungsintervention zeigte die Häufigkeit von A. muciniphila eine negative Korrelation mit der cardialen Nlrp3- (R = −0.81, P = 0.0046) und Tnfa-mRNA-Expression (R = −0.80, P = 0.0054). Im Gegensatz dazu war die Häufigkeit von E. coli positiv mit der kolonischen Occludin-mRNA-Expression korreliert (R = 0.66, P = 0.036; Abbildung 5C). Die positive Assoziation zwischen E. coli und Occludin-mRNA stand im Widerspruch zur anfänglichen Hypothese und deutet darauf hin, dass die Beziehung zwischen ausgewählten Darmmikroben und der Genexpression im Zusammenhang mit der Darmbarriere nicht durch ein einfaches lineares Modell erklärbar ist. Diese Korrelationen stimmten mit den Zusammenhängen zwischen körperlicher Aktivität, ausgewählten mikrobiellen Taxa und transkriptionellen Wirtsmarkern überein, bewiesen jedoch keine Kausalität. Frühere Befunde, wonach eine Verringerung von A. muciniphila die intestinale Permeabilität und die metabolische Endotoxämie erhöhen kann32, zusammen mit Hinweisen darauf, dass NLRP3 an der diabetischen Kardiopathologie beteiligt ist33, liefern einen biologischen Kontext für diese Assoziationen. Dennoch konnte die vorliegende Studie nicht direkt nachweisen, dass eine erhöhte Anzahl von A. muciniphila die Schleimbarrierefunktion verbessert, die LPS-Translokation verringert oder die TLR4/NLRP3-vermittelte Herzentzündung abgeschwächt hat.
Die vorliegende Studie wies mehrere Einschränkungen auf. Erstens wurde eine gezielte 16S-rRNA-qPCR verwendet, um sechs repräsentative bakterielle Taxa zu quantifizieren, anstatt 16S-Amplicon-Sequenzierung oder metagenomische Sequenzierung. Daher konnte keine umfassende Bewertung der Struktur der Darmmikrobiota-Gemeinschaft und ihrer funktionellen Kapazität erreicht werden, und breitere Gemeinschaftsveränderungen oder funktionelle Signalwege konnten nicht bewertet werden. Die Ergebnisse wurden deshalb als Veränderungen der relativen Häufigkeiten ausgewählter Taxa und nicht als Umbau der Darmmikrobiota beschrieben. Zweitens wurden zirkulierende LPS-Spiegel, Plasmaspiegel kurzkettiger Fettsäuren (SCFA) und intestinale Permeabilität nicht direkt gemessen, was die mechanistische Interpretation einschränkte. Drittens stützte sich die Studie hauptsächlich auf mRNA-Expressionsdaten. Eine Validierung auf Proteinebene und funktionelle Analysen bezüglich Barriereintegrität, Inflammasom-Aktivierung, Fibrose und Apoptose wurden nicht durchgeführt. Folglich beschränkten sich die Schlussfolgerungen auf transkriptionelle Veränderungen und belegten keine funktionellen oder proteinauf Ebene nachweisbaren Effekte. Viertens wurde nur ein Trainingsintensitäts- und Dauerprotokoll untersucht, was die Schlussfolgerungen bezüglich einer optimalen Trainingsvorgabe für diabetesassoziierte kardiale transkriptionelle Veränderungen einschränkt. Fünftens wurden ausschließlich männliche Mäuse untersucht, sodass die Ergebnisse möglicherweise nicht auf weibliche Tiere übertragbar sind. Sechstens war die Abwesenheit einer gesunden, trainierenden Kontrollgruppe eine Einschränkung hinsichtlich der Unterscheidung diabetes-spezifischer Reaktionen von den physiologischen Effekten des Trainings. Siebentens wurden Echokardiographie und kardiale Histopathologie nicht durchgeführt; daher wurde das Modell als diabetisches Mausmodell und nicht als bestätigtes Modell der diabetischen Kardiomyopathie beschrieben, und alle kardialen Befunde beschränkten sich auf transkriptionelle Veränderungen. Schließlich könnten einige beobachtete Korrelationen eine Gruppentrennung widerspiegeln statt innerhalb der Gruppe bestehender biologischer Zusammenhänge, obwohl eine partielle Korrelationsanalyse unter Kontrolle der Gruppenzugehörigkeit verwendet wurde, um diese Bedenken zu verringern.
Zusammenfassend waren acht Wochen Laufbandtraining mit einer metabolischen Verbesserung sowie transkriptionellen Veränderungen im Herzen und Kolon bei diabetischen Mäusen verbunden. Diese Veränderungen gingen mit Veränderungen in den relativen Häufigkeiten ausgewählter Darmmikrobiota einher, insbesondere mit Zunahmen von A. muciniphila und Abnahmen von E. coli. Die beobachteten Assoziationen stützen weitere Untersuchungen der Zusammenhänge zwischen körperlicher Aktivität, ausgewählten Darmmikrobiota, der Genexpression von darmassoziierten Barrierefunktionen und der transkriptionellen Regulation herzassoziierten Inflammasoms. Künftige Studien, die eine umfassendere Profilierung des Mikrobioms, Quantifizierung kurzkettiger Fettsäuren (SCFA), Darmpermeabilitätstests sowie Validierungen auf Proteinebene oder histologische Analysen einschließen, werden erforderlich sein, um die vorgeschlagenen Mechanismen zu überprüfen und Kausalität zu belegen. Weitere Interventionsstudien unter Verwendung von fäkaler Mikrobiota-Transplantation, einer Supplementierung mit A. muciniphila oder einer Hemmung von NLRP3 wären notwendig, um zu klären, ob die beobachteten Assoziationen kausale Wirkwege widerspiegeln.
Offenlegungen
Die Autoren erklären, dass keine konkurrierenden finanziellen Interessen oder persönliche Beziehungen bestehen, die den in dieser Arbeit berichteten Forschungsarbeiten Einfluss hätten verleihen können. Bei der Erstellung dieses Manuskripts oder der Abbildungen kamen keine KI-Tools zum Einsatz.
AUTORENBEITRÄGE:
H.H. und G.Z. entwarfen die Studie und trafen die Versuchsplanung. H.H., G.Z. und Y.X. führten die Tierversuche und die Probensammlung durch. H.H. und G.Z. führten die molekularbiologischen Experimente durch und gewannen die Daten. H.H. und Y.X. führten die statistische Analyse durch. H.H. verfasste den Manuskriptentwurf. H.W. überarbeitete den Entwurf kritisch hinsichtlich wichtiger intellektueller Inhalte. Alle Autoren lasen und genehmigten das endgültige Manuskript.
Danksagungen
Diese Forschung erhielt keine spezifische Förderung durch öffentliche, kommerzielle oder gemeinnützige Förderorganisationen.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Accu-Chek-Glukometer und Teststreifen | Roche | Accu-Chek Active | Wird zur Messung des nüchternen Blutzuckerspiegels verwendet |
| Automatischer biochemischer Analysator | Hitachi | 7180 | Wird für serumchemische Messungen verwendet |
| C57BL/6J-Mäuse (männlich, 8 Wochen) | Beijing Vital River Laboratory Animal Technology Co., Ltd. | SCXK (Beijing) 2021-0006 | Experimentelle Tiere zur Erstellung des diabetischen Mausmodells |
| Citratpuffer (0,1 mol/L, pH 4,5) | Sigma-Aldrich | C8532 | Wird zur Herstellung der Streptozotocin-Lösung verwendet |
| Enzyme-gekoppelte Immunosorbens-Assay (ELISA)-Kit für Mausinsulin | Wuhan HuaMei Biotech | CSB-E05070m | Wird zur Messung von Seruminsulin verwendet |
| Fetthaltige Diät (60 % kcal aus Fett) | Research Diets | D12492 | Wird zur Induktion und Aufrechterhaltung des diabetischen Modells verwendet |
| Desfluran | RWD Life Science | R510-22-10 | Wird für die Inhalationsanästhesie verwendet |
| Mikrozentrifuge | Eppendorf | 5424 R | Wird zur Zentrifugation von Proben verwendet |
| NanoDrop 2000-Spektrophotometer | Thermo Fisher Scientific | ND-2000 | Wird zur Bestimmung der RNA-Konzentration und -Reinheit verwendet |
| Paraformaldehyd (4 % in PBS) | Servicebio | G1101 | Wird zur Fixierung von Gewebeproben verwendet |
| Phosphatgepufferte Kochsalzlösung (PBS) | Servicebio | G0002 | Wird zum Waschen und Spülen von Gewebeproben verwendet |
| Power SYBR Green PCR Master Mix | Applied Biosystems (Thermo Fisher) | 4367659 | Wird für die Echtzeit-quantitative PCR verwendet |
| PrimeScript RT Reagenzienkit (für qPCR) | TaKaRa (Takara Bio) | RR037A | Wird zur reversen Transkription von RNA in cDNA verwendet |
| QIAamp Fast DNA Stuhl Mini Kit | Qiagen | 51604 | Wird zur Extraktion mikrobieller DNA aus Stuhlproben verwendet |
| R-Software | R Foundation | 4.2.0 | Wird für die statistische Analyse verwendet |
| Echtzeit-PCR-System (StepOnePlus) | Applied Biosystems (Thermo Fisher) | StepOnePlus | Wird für die Echtzeit-quantitative PCR-Amplifikation und -Detektion verwendet |
| Streptozotocin (STZ) | Sigma-Aldrich | S0130 | Wird zusammen mit einer fettreichen Diät zur Induktion des diabetischen Mausmodells verwendet |
| Gesamtcholesterin (TC)-Testkit | Nanjing Jiancheng Bioengineering Institute | A111-1 | Wird zur Messung des gesamten Serumcholesterins verwendet |
| Laufband (motorisiert, mit Neigungsregelung) | Zhongshi Dichuang (Beijing) | ZS-PT-1 | Wird für die Laufband-Trainingsintervention verwendet |
| Triglycerid (TG)-Testkit | Nanjing Jiancheng Bioengineering Institute | A110-1 | Wird zur Messung von Serumtriglyceriden verwendet |
| TRIzol-Reagenz | Invitrogen (Thermo Fisher) | 15596018 | Wird zur Gesamt-RNA-Extraktion aus Gewebeproben verwendet |
Referenzen
- Lu Y, et al. Vascular complications of diabetes: A narrative review. Medicine. 2023;102(40):e35285.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. International Journal of Molecular Sciences. 2022;23(7):3587.
- Abdullah AR, et al. A comprehensive review on diabetic cardiomyopathy (DCM): histological spectrum, diagnosis, pathogenesis, and management with conventional treatments and natural compounds. Naunyn-Schmiedeberg's Archives of Pharmacology. 2025;398(8):9929-9969.
- Hassooni FRH, et al. Advances in diabetic cardiomyopathy: current and potential management strategies and emerging biomarkers. Annals of Medicine and Surgery. 2025;87(1):224-233.
- Zhong L, et al. Exercise and dietary interventions in the management of diabetic cardiomyopathy: mechanisms and implications. Cardiovascular Diabetology. 2025;24(1):159.
- Ma X, et al. Beneficial effects of different types of exercise on diabetic cardiomyopathy. Biomolecules. 2025;15(9):1223.
- Liu Y, et al. Decoding the gut microbiota-immune dialogue: from bidirectional axis to therapeutic applications. Journal of Nanobiotechnology. 2026;24(1):469.
- Du L, et al. Lipopolysaccharides derived from gram-negative bacterial pool of human gut microbiota promote inflammation and obesity development. International Reviews of Immunology. 2022;41(1):45-56.
- Alhamar G, et al. Toll like receptor 4: A potential link between obesity and metabolic diseases. Obesity Reviews. 2026;16:e70107.
- Wu R, et al. Desulfovibrio vulgaris exacerbates sepsis by inducing inflammation and oxidative stress in multiple organs. Frontiers in Microbiology. 2025;16:1574998.
- Mohammadi K, Zhang D, Saris EJ. Strain-specific effects of Desulfovibrio on neurodegeneration and oxidative stress in a Caenorhabditis elegans PD model. npj Parkinson's Disease. 2025;11(1):236.
- Abbate A, et al. Interleukin-1 and the inflammasome as therapeutic targets in cardiovascular disease. Circulation Research. 2020;126(9):1260-1280.
- Chauhan R, et al. Decoding the gut microbiota-mitochondrial-inflammasome axis in cardiovascular disease. Molecular and Cellular Biochemistry. 2026;481(3):1081-1101.
- Yu C, et al. Exercise remodels Akkermansia-associated eicosanoid metabolism to alleviate intestinal senescence: Multi-omics insights. Microorganisms. 2025;13(6):1379.
- Zhang Y, et al. Enhancing intestinal barrier efficiency: A novel metabolic diseases therapy. Frontiers in Nutrition. 2023;10:1120168.
- Evangelista I, et al. Molecular dysfunction and phenotypic derangement in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2019;20(13):3264.
- Parim B, et al. Diabetic cardiomyopathy: molecular mechanisms, detrimental effects of conventional treatment, and beneficial effects of natural therapy. Heart Failure Reviews. 2019;24(2):279-299.
- Liu J, et al. The combination of exercise and metformin inhibits TGF-β1/Smad pathway to attenuate myocardial fibrosis in db/db mice by reducing NF-κB-mediated inflammatory response. Biomedicine & Pharmacotherapy. 2023;157:114080.
- Zhang X, et al. Exercise improves heart function after myocardial infarction: the merits of AMPK. Cardiovascular Drugs and Therapy. 2025;39(5):1153-1161.
- Berezin A. Metabolic memory phenomenon in diabetes mellitus: achieving and perspectives. Diabetes & Metabolic Syndrome: Clinical Research & Reviews. 2016;10(2):S176-S183.
- Date S, Bhatt LK. Exploring thioredoxin-interacting protein (TXNIP) as a therapeutic target for cardiovascular diseases. Archiv der Pharmazie. 2025;358(8):e70082.
- Zhang L, et al. NLRP3 inflammasome/pyroptosis: a key driving force in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2022;23(18):10632.
- Tilg H, et al. The intestinal microbiota fuelling metabolic inflammation. Nature Reviews Immunology. 2020;20(1):40-54.
- Huang P, et al. TREM2 deficiency aggravates NLRP3 inflammasome activation and pyroptosis in MPTP-induced Parkinson's disease mice and LPS-induced BV2 cells. Molecular Neurobiology. 2024;61(5):2590-2605.
- Li T, et al. Six weeks of moderate-intensity treadmill exercise improves intestinal barrier and intestinal inflammation in Parkinson's disease mice. Molecular Neurobiology. 2025;62(8):10779-10791.
- He XQ, et al. Prevention of ulcerative colitis in mice by sweet tea (Lithocarpus litseifolius) via the regulation of gut microbiota and butyric-acid-mediated anti-inflammatory signaling. Nutrients. 2022;14(11):2208.
- Wang J, et al. Microbial short chain fatty acids: Effective histone deacetylase inhibitors in immune regulation. International Journal of Molecular Medicine. 2025;57(1):16.
- Deng F, et al. Intestinal ischemia/reperfusion injury: mechanisms, diagnosis, and therapeutic advances. International Journal of Biological Sciences. 2026;22(8):4059.
- Mo C, et al. The influence of Akkermansia muciniphila on intestinal barrier function. Gut Pathogens. 2024;16(1):41.
- Di Vincenzo F, et al. Gut microbiota, intestinal permeability, and systemic inflammation: a narrative review. Internal and Emergency Medicine. 2024;19(2):275-293.
- Birg A, Lin HC. The role of bacteria-derived hydrogen sulfide in multiple axes of disease. International Journal of Molecular Sciences. 2025;26(7):3340.
- Macchione IG, et al. Akkermansia muciniphila: key player in metabolic and gastrointestinal disorders. European Review for Medical and Pharmacological Sciences. 2019;23(18):8075-8083.
- Song S, et al. Sirtuin 3 deficiency exacerbates diabetic cardiomyopathy via necroptosis enhancement and NLRP3 activation. Acta Pharmacologica Sinica. 2021;42(2):230-241.