Diese Studie beschreibt ein Protokoll zur Quantifizierung biogener Amine in Drosophila-Gehirnen mittels Hochleistungsflüssigkeitschromatographie gekoppelt mit elektrochemischer Detektion (HPLC-ECD). Unter Ausnutzung der genetischen Zugänglichkeit von Drosophila und der HPLC-ECD kann dieser Ansatz Forschern helfen, die molekularen und genetischen Mechanismen aufzuklären, die Änderungen biogener Amine bei Gehirnerkrankungen zugrunde liegen.
Methodenartikel
Hochleistungs-Flüssigkeitschromatographie zur Untersuchung von Veränderungen biogener Amine in Drosophila-Modellen von Hirnerkrankungen
* These authors contributed equally
In diesem Artikel
Zusammenfassung
Zusammenfassung
Viele neuropsychiatrische und neurodegenerative Erkrankungen zeichnen sich durch Störungen der Gehirn-Neurotransmitter aus, einschließlich Veränderungen der Konzentrationen der biogenen Amine (BA) Dopamin (DA) und Serotonin (5-Hydroxytryptamin; 5-HT) sowie deren Freisetzung oder Wiederaufnahme. Diese neurochemischen Veränderungen korrelieren mit spezifischen zentralen Verhaltensphänotypen wie Bewegungsstörungen, fragmentiertem Schlaf und veränderten Stressreaktionen unter anderem. Da die wichtigsten biogenen Aminesysteme miteinander interagieren, zeigen Krankheitsmodelle häufig koordinierte Verschiebungen über mehrere Amine hinweg statt isolierter Veränderungen eines einzelnen Neurotransmitters. Daher ist eine genaue, simultane Quantifizierung mehrerer biogener Amine entscheidend für die Interpretation verhaltensbezogener und genetischer Befunde. Drosophila melanogaster bietet ein genetisch zugängliches System zur Modellierung solcher Erkrankungen und neurochemischer Veränderungen, doch die biogenen Amine liegen im Fliegenhirngewebe in sehr niedrigen, im nanomolaren bis femtomolaren Bereich liegenden Konzentrationen vor, und die geringe Größe des zentralen Nervensystems von Drosophila macht deren Nachweis technisch anspruchsvoll. Diese Studie beschreibt ein Protokoll zum Nachweis und zur Quantifizierung von DA, 5-HT und Octopamin in Fliegengehirnen mittels Hochleistungsflüssigkeitschromatographie gekoppelt mit elektrochemischer Detektion (HPLC-ECD). HPLC-ECD wurde angewandt, um Veränderungen von DA und 5-HT im Gehirn in einem Fliegenmodell der Parkinson-Krankheit zu detektieren, das auf der dopaminergen Überexpression des menschlichen alpha-Synucleins basiert. Die Anwendung dieses Protokolls auf das alpha-Synuclein-Modell der Parkinson-Krankheit zeigt signifikant erhöhte Dopaminkonzentrationen, während Serotonin unverändert bleibt, verglichen mit Kontrollen – ein Befund, der mit frühen kompensatorischen dopaminergen Mechanismen übereinstimmt. Diese Methode stellt eine empfindliche, kostengünstige und leicht zugängliche Technik zur multiplexen Quantifizierung biogener Amine aus limitiertem Drosophila-Gewebe bereit. Zudem ermöglicht sie systematische Screenings für genetische Modifikatoren und kandidatenbasierte Therapeutika, die monoaminerge Signalwege betreffen, die für menschliche Hirnerkrankungen relevant sind.
Einleitung
Monoamin-Neurotransmitter, auch als biogene Amine (BA) bekannt, regulieren bekanntlicherweise mehrere entscheidende neurologische und verhaltensrelevante Merkmale in tierischen Taxa, einschließlich, aber nicht beschränkt auf, Motivationszustände, Schlaf, Lernen, Gedächtnis und Stimmungsregulation1,2,3,4. Eine Dysregulation von BAs, wie Dopamin (DA) und Serotonin (5-Hydroxytryptamin; 5-HT), ist ein zentrales Merkmal neurodegenerativer Erkrankungen wie der Parkinson-Krankheit sowie psychiatrischer Störungen wie der Schizophrenie3,5. Die Beziehung zwischen Krankheitsprogression und spezifischen neurochemischen Veränderungen in verschiedenen Hirnregionen und neuronalen Subtypen ist jedoch noch nicht vollständig erfasst. Die Beantwortung solcher Fragen erfordert ein Modellsystem, das nicht nur genetisch zugänglich ist, sondern auch in der Lage ist, krankheitsrelevante physiologische und verhaltensbezogene Phänotypen nachzubilden. Drosophila melanogaster hat sich zu einem leistungsfähigen Modellsystem für diesen Zweck entwickelt6,7. Die Fruchtfliege besitzt gut definierte, klar charakterisierte Populationen dopaminerger und serotonerger Neuronen7,8, und die biosynthetischen Wege, Transporter sowie Rezeptorfamilien, die diese Systeme steuern, sind funktionell konserviert im Vergleich zu ihren Säugetier-Pendants9. Diese Konservierung bietet eine mechanistische Grundlage dafür, neurochemische Befunde bei der Fliege auf den breiteren Kontext menschlicher Erkrankungen zu übertragen.
Die Eignung von Fliegen zur Modellierung neurologischer und psychiatrischer Erkrankungen geht weit über die genetische Homologie hinaus. Als genetisch zugängliches System ermöglichen Werkzeuge in Fliegen die zellspezifische Untersuchung von Genen und Signalwegen und offenbaren Faktoren, die entweder krankheitsrelevante Symptome verschärfen oder umkehren, wodurch die Entdeckung neuartiger therapeutischer Zielstrukturen erleichtert wird10. Darüber hinaus können binäre Expressionssysteme nicht nur spezifische monoaminerge neuronale Subtypen, sondern auch bestimmte Entwicklungsphasen gezielt ansprechen11, wodurch bemerkenswerte räumliche und zeitliche Präzision erreicht wird. Das Modellsystem der Fruchtfliege bietet außerdem ein Repertoire quantifizierbarer Verhaltensweisen, mit denen die Rekapitulation krankheitsrelevanter Symptome beurteilt sowie Interventionsstrategien auf ihre Wirksamkeit getestet werden können7. Beispielsweise umfassen etablierte genetische Modelle der Parkinson-Krankheit in Fliegen Tiere mit Funktionsverlust-Mutationen in Pink1 und parkin sowie Fliegen, die Wildtyp- oder Punkt-mutierte Formen des menschlichen α-Synucleins (α-Syn), SNCA, überexprimieren12,13,14. Alle diese Fliegenmodelle weisen einige der wichtigsten Merkmale der Erkrankung auf, darunter motorische Defizite, Degeneration dopaminerger Neuronen, mitochondriale Dysfunktion und α-Syn-Aggregation in Fliegen, die die humane Sequenz tragen15,16,17,18,19. Andererseits gelten neurodevelopmentelle Störungen und abnorme Dopaminsignalisierung ebenfalls als zugrundeliegende Ursachen von Erkrankungen wie Schizophrenie20. In Übereinstimmung damit wurde Drosophila verwendet, um schizophrenieähnliche Symptome zu modellieren, einschließlich Hyperaktivität, veränderter sensorischer Reagibilität und verminderten Erregungszustands bei adulten Fliegen21,22,23,24,25. Insgesamt zeigen diese Modelle, dass Drosophila sowohl den Verlauf neurodegenerativer Erkrankungen als auch die Entwicklungsursachen psychiatrischer Störungen abbilden kann.
Die Zuordnung von Verhaltensänderungen bei genetischen Modellen zu neurochemischen Veränderungen erfordert genaue, reproduzierbare quantitative Messungen biogener Amine (BAs). Außerdem ist die Dysregulation von Monoaminen bei mehreren Erkrankungen nicht auf ein einziges Neurotransmittersystem beschränkt. Bei Pink1B9-Mutantenfliegen ist der Serotoninspiegel vermindert, und die Aktivität des Serotonintransporters ist bereits vor dem Auftreten motorischer Dysfunktionen beeinträchtigt26. Eine frühe pharmakologische Wiederherstellung der serotonergen Signalübertragung verhindert den späteren Verlust betroffener dopaminergen Neurone in Pink1B9-Mutantenfliegen. Serotonerge Veränderungen können somit der dopaminergen Pathologie vorausgehen und kausal zu ihr beitragen – ein Zusammenhang, der bei Verhaltensanalysen oder Einzelanalytenmessungen unentdeckt bliebe. Ebenso werden Veränderungen im serotonergen System in Modellen der Schizophrenie beobachtet22,27,28. Darüber hinaus interagieren die wichtigsten biogenen Amine in Drosophila teilweise redundant und teilweise antagonistisch, sodass der Zustand eines Systems kein zuverlässiger Indikator für die anderen Systeme ist29. Daher ist die Quantifizierung einzelner biogener Amine in diesen Modellen von größter Bedeutung.
Biogene Amine sind elektrochemisch aktive Monoamine (z. B. Katecholamine, Indolamine), die in biologischem Gewebe in Konzentrationen von wenigen Nanomolaren bis Femtomolaren vorkommen, was ihre gleichzeitige Detektion technisch anspruchsvoll macht30,31. Die Beantwortung von Fragen zur genetischen und molekularen Grundlage von Veränderungen biogener Amine bei Erkrankungen erfordert daher ein analytisches Verfahren, das in der Lage ist, mehrere strukturell ähnliche Amine voneinander zu trennen. Dieses Verfahren muss außerdem biologisch relevante Konzentrationen in den kleinen Gewebemengen nachweisen können, die aus Präparationen des zentralen Nervensystems von Drosophila gewonnen werden. Die Hochleistungsflüssigkeitschromatographie (HPLC) gekoppelt mit elektrochemischer Detektion (ECD) erfüllt diese Anforderungen. HPLC ist eine analytische Technik, die die Trennung verschiedener Moleküle innerhalb einer Probe anhand ihrer physikochemischen Eigenschaften ermöglicht. Die Kopplung des chromatographischen Systems mit einem elektrochemischen Detektor ermöglicht eine schnelle, hochsensitive Analyse elektrochemisch aktiver Analyten wie biogener Amine. Elektrochemische Detektoren funktionieren, indem sie die Oxidation der Analyten induzieren, während diese aus der Säule eluieren, und die Wechselwirkungen an der Elektrodenoberfläche in ein quantifizierbares elektrisches Signal umwandeln. Andere Techniken wie die Massenspektrometrie können vergleichbare Selektivität und Empfindlichkeit bieten32,33. Aufgrund der geringen Kosten pro Probe und der Zuverlässigkeit eignet sich HPLC-ECD jedoch ideal für den routinemäßigen und zugänglichen Nachweis biogener Amine in biologischen Forschungslaboren. Die Kombination dieser Technik mit der Leistungsfähigkeit der Drosophila-Genetik ermöglicht eine schnelle und unkomplizierte Analyse der genetischen und molekularen Grundlagen von Veränderungen aminergischer Systeme.
Diese Studie verwendet ein genetisches Parkinson-Modell, das auf der Überexpression von α-Syn basiert, um einen Protokollansatz zur Bestimmung von Unterschieden im BA-Gehalt in Drosophila-Gehirnproben darzustellen. Der Artikel beschreibt außerdem, wie dieser Ansatz zur Untersuchung der molekularen Grundlagen von Hirnerkrankungen genutzt werden kann.
Protokoll
Die in dieser Arbeit präsentierten Rohdaten sind verfügbar unter https://doi.org/10.6084/m9.figshare.33868519.
Die verwendeten Reagenzien und Geräte sind in der Tabelle der Materialien aufgeführt.
1. Anpassung und Sammlung der Fliegen
- Synchronisieren Sie die Fliegen von Interesse über einen Zeitraum von 3 Tagen unter konstanten 12-Stunden-Licht- und 12-Stunden-Dunkelzyklen bei konstanten 25 °C, bevor Sie sie sammeln. Um sicherzustellen, dass pro Genotyp/Bedingung genügend Fliegen vorbereitet sind, synchronisieren Sie 3–9 biologische Wiederholungen mit jeweils 5 Fliegen.
- Am Tag der Probennahme stellen Sie 1,5-mL-Röhrchen auf Trockeneis. Verwenden Sie ein Röhrchen pro Fliegengenotyp/Bedingung. Geben Sie die Fliegen mithilfe eines Trichters direkt in die Röhrchen, um sie augenblicklich einzufrieren.
HINWEIS: Die direkte Probennahme auf Trockeneis ermöglicht die Sammlung zu unterschiedlichen Tageszeiten, ohne die potenziell schädlichen Effekte einer Anästhesie. Ab diesem Zeitpunkt können die Proben unbegrenzt bei -80 °C gelagert oder unmittelbar weiterverarbeitet werden. Sammeln Sie experimentelle und Kontrollgruppen gleichzeitig, um störende Einflüsse durch tageszeitliche Schwankungen auszuschließen. In den hier dargestellten repräsentativen Ergebnissen wurden die Fliegen 3 h nach der Licht-Einschaltphase gesammelt.
2. Gehirndissektion und Probenpräparation
- Bereiten Sie die Gewebeentnahme vor, indem Sie einen flachen Behälter, wie zum Beispiel den Deckel einer Pipettenspitzenbox, mit Eis füllen. Stellen Sie eine 30-mm-Petri-Schale darauf, um als Dissektionsplattform zu dienen. Die Durchführung der Gewebeentnahme auf Eis, insbesondere bei Verwendung eines Stereomikroskops mit warmer Beleuchtung, verhindert den Abbau des Gewebes.
- Geben Sie einen 200-µL-Tropfen eiskalte 1x Phosphatgepufferte Kochsalzlösung (PBS) auf die Schale und dissezieren Sie jede Fliege unter dem Stereomikroskop mit feinen, scharfen Pinzetten.
- Um das Gehirn zu entnehmen, halten Sie eine Fliege mit einem Paar Pinzetten am Abdomen fest und tauchen Sie sie in den PBS-Tropfen ein. Ohne die Fliege loszulassen, entfernen Sie den Kopf, indem Sie die Verbindung zwischen Kopf und Körper ergreifen.
- Sowohl der Körper als auch der Kopf schwimmen auf der PBS-Oberfläche. Entfernen Sie den Körper aus dem Tropfen und entsorgen Sie ihn. Greifen Sie den Kopf mit einem Paar Pinzetten am Proboscis und drücken Sie ihn zurück in den PBS-Tropfen.
- Greifen Sie mit dem freien Paar Pinzetten am Augenrand, um den Kopf zu fixieren, und entfernen Sie das Proboscis.
- Ergreifen Sie das Gewebe um die Öffnung herum, die durch das Entfernen des Proboscis entstanden ist, und ziehen Sie daran. Das Gehirn sollte sich freilegen.
- Reinigen Sie das Gehirn vorsichtig, um Kopfreste zu entfernen, da verbliebene Gewebeteile die Quantifizierung beeinträchtigen könnten. Entnehmen Sie außerdem jeweils nur eine Fliege aus dem Röhrchen auf Trockeneis, um eine Probenzerstörung zu vermeiden.
- Überführen Sie mit einer Pipettenspitze ein kleines Volumen, das das dissezierte Gehirn enthält, direkt in ein Röhrchen mit eiskalter 1x PBS. Wiederholen Sie diesen Schritt, bis insgesamt fünf Gehirne pro biologischem Replikat erreicht sind. Um zu verhindern, dass das Gehirn an der Pipettenspitze haftet, konditionieren Sie diese zuvor mit der Lösung von der Dissektionsplatte, indem Sie mehrmals auf- und abpipettieren.
- Nach Abschluss der Dissektion führen Sie eine kurze 10-s-Zentrifugation bei 2.000 x g durch, um die Gehirne am Boden des Röhrchens zu sammeln.
- Ersetzen Sie vorsichtig die 1x PBS durch 50 µL 0,2 N Perchlorsäure (PCA) auf Eis.
ACHTUNG: PCA ist stark ätzend. Bereiten Sie die Aliquote vorab im Abzug vor und tragen Sie geeignete persönliche Schutzausrüstung beim Umgang. Dazu gehören chemikalienbeständige Schutzbrille, robuste Neoprenhandschuhe und eine Gummischürze.
>HINWEIS: Alternativ können die Gehirne auch direkt in 50 µL 0,2 N PCA gesammelt werden. In diesem Fall verwenden Sie eine Nadel zur Übertragung der Gehirne, um eine unerwünschte Mitübertragung von PBS zu vermeiden. - Homogenisieren Sie das Gewebe mit einem Ultraschallhomogenisator. Steuern Sie die Amplitude, um Wärmeentwicklung zu vermeiden. Hier verwenden wir 10 kHz mit kurzen 3-s-Impulsen, gefolgt von 3 s auf Eis.
- Zentrifugieren Sie die Probe 15 min bei 15.000 x g und 4 °C. Sammeln Sie 40 µL des Überstandes in einem neuen, auf Eis gelagerten Röhrchen. Die Aufbewahrung der Proben in PCA verhindert die Oxidation von Biogenen Aminen (BA). Vermeiden Sie in diesem Schritt die Mitnahme von Gewebe, da dies das System verstopfen könnte. Falls doch Gewebe mitübertragen wird, können Spritzenfilter verwendet werden, wobei sich die Probenrückgewinnung jedoch negativ auswirken kann.
- Fügen Sie unmittelbar vor der Analyse der Proben 8 µL 1 M Natriumacetat hinzu. Dadurch wird der pH-Wert der Probe näher an den pH-Wert der mobilen Phase von 3,5 gebracht, was die Erhaltung der Peakform gewährleistet, während die Probe durch den Detektor läuft. Die Proben sind nun bereit zur Injektion.
3. Herstellung der mobilen Phase
- Stellen Sie 1 L Zitrat-Acetat-Puffer als mobile Phase her, indem Sie 870 mL ultrareines Wasser in eine Glasflasche geben.
- Fügen Sie 5,61 g Natriumacetat-Trihydrat und 8,79 g wasserfreie Zitronensäure hinzu und rühren Sie, bis sich die Substanzen vollständig gelöst haben. Stellen Sie sicher, dass der pH-Wert bei 3,5 liegt; falls erforderlich, entsprechend korrigieren.
- Geben Sie im Abzug 130 mL methanolischer HPLC-Reinheitsstufe hinzu.
- Fügen Sie 130 mg Natrium-1-octansulfonat-Hydrat hinzu und mischen Sie gründlich.
- Filtrieren Sie die Lösung unter Vakuum über einen 0,2-µm-Filter, während Sie 1 Stunde lang rühren. Das Rühren ermöglicht es eingeschlossenen Gasen, aus der Lösung auszutreten, und das Vakuum unterstützt diesen Prozess sowie die Filtration.
- Behandeln Sie die Lösung 30 Minuten lang in einem Ultraschallbad (42 kHz), um Luftblasen zu entfernen.
- Umhüllen Sie den Behälter mit Aluminiumfolie und beschriften Sie ihn entsprechend.
HINWEIS: Die Qualität der Reagenzien beeinflusst die Retentionszeiten stark. Die Verwendung von Reagenzien in HPLC-Qualität trägt zur Konsistenz zwischen den Analysen bei. Auch die Verwendung derselben Reagenzien beim erneuten Ansetzen der mobilen Phase gewährleistet konsistente Ergebnisse.
4. Herstellung der Standards
- Um die Standardlösungen herzustellen, wiegen Sie 10 mg OA, DA und 5-HT jeweils einzeln auf Wägepapier ab.
- Geben Sie die gewogene Menge in separate 125-mL-Glaskolben, um individuelle Stammlösungen herzustellen. Wiegen Sie das leere Papier erneut, um die exakte Menge an OA, DA oder 5-HT zu berechnen, die in die Kolben gelangt ist.
- Berechnen Sie die Menge an Lösungsmittel, die zugegeben werden muss, um eine Konzentration von 100 ng/µL des Analyten zu erreichen. Falls die gesamten 10 mg zugegeben wurden, verwenden Sie 100 mL Lösungsmittel. Für OA und DA verwenden Sie 0,1 M Salzsäure als Lösungsmittel. Für 5-HT verwenden Sie stattdessen 0,1 M Essigsäure.
- Versetzen Sie die Standardlösungen mit 2Na-EDTA auf eine Endkonzentration von 1 mg/mL. Mischen Sie gründlich, bis die Substanz vollständig gelöst ist. Wickeln Sie den Kolben mit Aluminiumfolie ein, um Lichteinwirkung zu vermeiden, und lagern Sie bei 4 °C.
HINWEIS: Unter diesen Bedingungen können die Standardlösungen bis zu 3 Monate lang aufbewahrt werden.
5. Herstellung der Kalibrierlösungen
HINWEIS: Zur Erstellung einer Kalibrierkurve bereiten Sie drei Standardlösungen mit gemischten BAs in unterschiedlichen Konzentrationen vor. In diesem Beispiel verwenden wir Arbeitslösungen mit 0,03 ng/µL, 0,01 ng/µL und 0,001 ng/µL. Das Injizieren von 10 µL ergibt jeweils Standardmengen von 0,3 ng, 0,1 ng und 0,01 ng.
- Bereiten Sie zunächst eine 1 ng/µL-Stammlösung vor, indem Sie 1 µL jeder 100 ng/µL-BA-Stammlösung zu 97 µL 0,02 M Essigsäure-1 mg/mL 2Na-EDTA hinzufügen. Mischen Sie gründlich.
- Entnehmen Sie 2 µL der 1 ng/µL-Stammlösung und geben Sie sie zu 64,6 µL 0,02 M Essigsäure-1 mg/mL 2Na-EDTA. Mischen Sie gründlich. Dies ist die 0,03 ng/µL-Arbeitslösung.
- Entnehmen Sie 2 µL der 1 ng/µL-Stammlösung und geben Sie sie zu 18 µL 0,02 M Essigsäure-1 mg/mL 2Na-EDTA. Mischen Sie gründlich. Dies ist die 0,1 ng/µL-Arbeitslösung. Diese Lösung wird in diesem Protokoll nicht injiziert, sondern ausschließlich für serielle Verdünnungen verwendet.
- Entnehmen Sie 4 µL der 0,1 ng/µL-Stammlösung und geben Sie sie zu 36 µL 0,02 M Essigsäure-1 mg/mL 2Na-EDTA. Mischen Sie gründlich. Dies ist die 0,01 ng/µL-Arbeitslösung.
- Schließlich entnehmen Sie 4 µL der 0,01 ng/µL-Stammlösung und geben Sie sie zu 36 µL 0,02 M Essigsäure-1 mg/mL 2Na-EDTA. Mischen Sie gründlich. Dies ist die 0,001 ng/µL-Arbeitslösung.
HINWEIS: Bewahren Sie diese Standards in einer lichtgeschützten Box auf. Alle Arbeitslösungen müssen frisch hergestellt werden.
6. Injektionsaufbau und -durchführung
HINWEIS: Alle HPLC-Systeme funktionieren nach denselben Prinzipien. Unterschiede in der Hardware können jedoch erhebliche Auswirkungen auf die Retentionszeit und die Laufdauer haben. Darüber hinaus führt die Empfindlichkeit des ECD zu unterschiedlichen Nachweisgrenzen. Diese müssen empirisch bestimmt werden. Diese Studie verwendete ein System der Hochleistungsflüssigkeitschromatographie (HPLC) mit einer umgekehrten Phase C18-Säule.
- Schalten Sie die HPLC-Ausrüstung, einschließlich der Pumpe und des elektrochemischen Detektors, ein. Stellen Sie die Flussrate auf 100 µL/min ein und lassen Sie den elektrochemischen Detektor eine stabile Basislinie erreichen. Dies sollte 10 bis 30 Minuten dauern.
- Sobald die Proben zur Injektion bereit sind, stellen Sie die Flussrate auf 500 µL/min ein. Lassen Sie das System 5 Minuten lang stabilisieren. In der Zwischenzeit spülen Sie eine 20 µL Hamilton-Spritze dreimal mit ultrareinem Wasser durch.
- Ziehen Sie 10–20 µL Probe in die Spritze auf. Das Volumen hängt von der Kapazität der Probenschleife ab. Weitere Informationen finden Sie im Handbuch der Probenschleife.
- Stellen Sie sicher, dass sich beim Injizieren keine Blasen in der Spritze befinden. Eingeschlossenes Gas stört die korrekte Förderung der mobilen Phase oder die ECD-Messungen. Falls Blasen vorhanden sind, geben Sie die Probe zurück und versuchen Sie erneut, die Spritze zu befüllen.
- Führen Sie die Nadel vollständig in die Injektionsöffnung ein. Stellen Sie den Hebel in die „Laden“-Position und injizieren Sie die Probe, indem Sie den Spritzenkolben so weit eindrücken, bis die gesamte Flüssigkeit die Spritze verlassen hat. Senken Sie den Hebel des Injektors auf die „Injizieren“-Position ab. Der Lauf hat begonnen und sollte unter diesen Bedingungen in 30–35 Minuten abgeschlossen sein.
- Wenn weitere Proben analysiert werden sollen, lassen Sie das System vor der nächsten Injektion 10–15 Minuten lang bei 500 µL/min laufen.
HINWEIS: Wenn das ECD-Signal kontinuierlich schwankt, überprüfen Sie Änderungen im Systemdruck. In der Anlage eingeschlossenes Gas kann zu ungleichmäßigem Fluss und einem höheren als normalen Hintergrund führen. Spülen Sie das System mit einer frischen Lösung bei hoher Geschwindigkeit durch, wobei der ECD umgangen wird, um dieses Problem zu beheben.
7. Datenerfassung und Analyse
HINWEIS: Es sind verschiedene Analog-Digital-Wandler und Softwarelösungen zur Erfassung und Analyse dieser Art von Daten verfügbar. Diese können sich in der Art und Weise unterscheiden, wie sie Daten verarbeiten; sie basieren jedoch auf allgemeinen Prinzipien. In dieser Studie wurden jeweils Software für die Datenkonvertierung sowie Software zur Erfassung und Analyse von Chromatographiedaten verwendet.
- Änderungen des Stroms/der Spannung, die durch die Oxidation der BAs erfasst vom ECD stammen, werden vom Analog-Digital-Wandler umgewandelt. Die BAs-Konzentration ist proportional zur Änderung des Stroms/der Spannung.
- Verwenden Sie die Fläche unter der Kurve, die aus den Strom-Zeit-Diagrammen der Standardläufe der BAs erhalten wurde, um eine Kalibrierkurve abzuleiten. Die Werte werden durch eine lineare Regression in einem Diagramm Strom/Spannung (nA oder mV) gegen Menge (ng) dargestellt.
- Berechnen Sie mithilfe der linearen Gleichung die Konzentration der BAs in Ihrer Probe.
Ergebnisse
Biologische Verbindungen werden bei unterschiedlichen Spannungen oxidiert. In einer komplexen Matrix wie Gehirngewebe ermöglicht die Wahl des geeigneten ECD-Potentials eine sauberere und genauere Quantifizierung. Hier wählten wir zwei verschiedene Spannungen, um den Einfluss dieses Faktors auf die Identifizierung und Quantifizierung von OA, DA und 5-HT in Drosophila-Gehirnproben zu zeigen. Bei Verwendung von 950 mV können diese drei Amine in einer Mischung leicht nachgewiesen werden (Abbildung 1A), während bei 650 mV nur Dopamin und Serotonin beobachtet werden (Abbildung 1B). Dies steht im Einklang mit den Oxidationsspannungen für diese Verbindungen: 900–1000 mV für OA, 600–700 mV für DA und 5-HT. Die Retentionszeiten für OA, DA und 5-HT betragen jeweils 6 min, 11 min und 29 min. Die Quantifizierung von drei verschiedenen Mengen – 0,01 ng, 0,1 ng und 0,3 ng – ergibt vergleichbare Kalibrierkurven für 950 mV bzw. 650 mV (Abbildung 1C,D). Diese Kurven zeigen die Linearität und Empfindlichkeit des Assays für jeden Analyten über den getesteten Konzentrationsbereich bei jedem Detektionspotential.
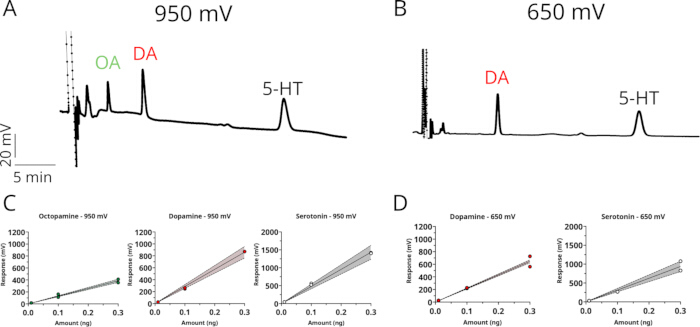
Abbildung 1: Nachweis und Quantifizierung biogener Amine mittels HPLC-ECD bei zwei Oxidationspotentialen. (A,B) Repräsentative Chromatogramme, die die Trennung der Standards von Octopamin (OA), Dopamin (DA) und Serotonin (5-HT) zeigen, detektiert bei einem angelegten Potential von (A) 950 mV bzw. (B) 650 mV. Vertikale Achse: Signal (mV); horizontale Achse: Retentionszeit (5 min pro Markierung, angegeben durch den Maßstabsbalken). (C,D) Kalibrierkurven für jeden Analyten bei (C) 950 mV und (D) 650 mV, aufgetragen als Peak-Signal (mV) gegen Standardmengen (ng; 0,01–0,3 ng). Durchgezogene Linien stellen lineare Regressionsanpassungen dar, schattierte Bänder zeigen 95 % Konfidenzintervalle, und ausgefüllte bzw. offene Kreise repräsentieren jeweils zwei individuelle Standardinjektionen pro Konzentration. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Komplexe Proben wie solche aus Gehirnextrakten sind in der Regel für einen erheblichen biologischen Hintergrund verantwortlich. Gemäß dem hier beschriebenen Protokoll untersuchten wir den Einfluss der Elektrodenspannung auf die Detektion und Quantifizierung von Biogenen Aminen (BAs) in Gehirnproben. Adulte männliche Fliegen wurden gesammelt, nachdem das Licht nach zwei vollständigen Tagen der Synchronisation eingeschaltet wurde; die Gehirne wurden in eiskaltem PBS präpariert und anschließend in 0,2 N PCA auf Eis gegeben. Nach Gewebeaufschluss und Zentrifugation wurde der Überstand mit 1 M Natriumacetat ausgeglichen, und 10 µL wurden injiziert. Bei einer Elektrodenspannung von 950 mV ergeben sich Peaks für Octopamin, Dopamin und Serotonin zu den jeweiligen Retentionszeiten (Abbildung 2A, schwarze Spur). Ihre Identitäten wurden weiterhin durch Analyse einer Probe bestätigt, die mit bekannten Mengen (jeweils 0,01 ng) jedes BA angereichert wurde (Abbildung 2A, rote Spur). Es sind jedoch mehrere zusätzliche Peaks in der Nähe der Zielanalyten zu beobachten, was die Quantifizierung erschweren kann. Die Einstellung der Elektrodenspannung auf 650 mV löst dieses Problem, geht jedoch zu Lasten der Octopamin-Detektion (Abbildung 2B). Wie in Abbildung 1 dargestellt, wird OA bei 650 mV nicht aufgelöst, was mit seinem höheren Oxidationspotential übereinstimmt.
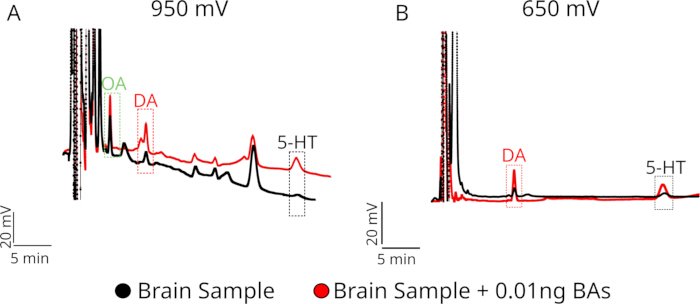
Abbildung 2: Nachweis endogener biogener Amine in Gehirnproben mittels Peak-Verstärkung (Spike-in) bei zwei Oxidationspotentialen. (A,B) Repräsentative Chromatogramme eines Gehirnextrakts, analysiert per HPLC-ECD bei einer angelegten Spannung von (A) 950 mV oder (B) 650 mV, dargestellt vor (schwarze Linie, „Gehirnprobe“) und nach (rote Linie, „Gehirnprobe + 0,01 ng BAs“) der Zugabe einer bekannten Menge (0,01 ng) an Octopamin (OA), Dopamin (DA) und Serotonin (5-HT) als Standard. Gestrichelte Kästen markieren die Retentionszeitfenster für jeden Analyten. Vertikale Achse: Signalantwort (20 mV, angegeben durch Skala); horizontale Achse: Retentionszeit (5 min, angegeben durch Maßstabsbalken). Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Nach dem gleichen Protokoll verwendeten wir HPLC-ECD, um Unterschiede im Gehalt biogener Amine in den Gehirnen von Fliegen zu detektieren, die α-Synuclein in dopaminergen Neuronen exprimieren (TH-T2A-GAL4 > UAS-SNCA.J34), ein Fliegenmodell der Parkinson-Krankheit. Frühere Studien, die ein PD-Modell basierend auf Mutationen im Gen Pink1 verwendeten, zeigten bereits bei 0–3 Tage alten Fliegen Unterschiede in den Dopaminspiegeln35. In der vorliegenden Arbeit wurden 3–6 Tage alte Fliegen verwendet, um Dopamin- und Serotoninspiegel zu vergleichen. Die Dopaminspiegel waren bei den PD-Fliegen im Vergleich zu Kontrollfliegen signifikant erhöht (Abbildung 3A), während die Serotoninspiegel unverändert blieben (Abbildung 3B). Die erhöhten Dopaminspiegel in den frühen Stadien könnten kompensatorische Mechanismen widerspiegeln, die vor dem Auftreten von PD-Symptomen in diesem Modell auftreten (Überblick bei Blesa J et al.36).
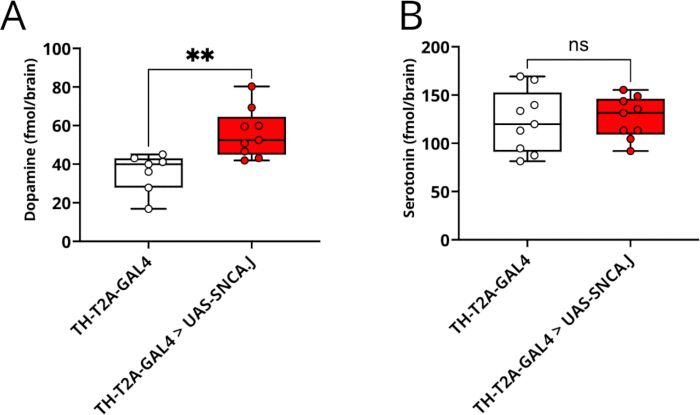
Abbildung 3: Quantifizierung der Dopamin- und Serotoninspiegel in einem Drosophila-Modell der Parkinson-Krankheit mittels HPLC-ECD. Gesamtgehirn-Gehalte an Dopamin (A) und Serotonin (B), angegeben als fmol/Gehirn, in Kontrollfliegen (TH-T2A-GAL4, n = 7 in A und n = 9 in B) und Fliegen mit Parkinson-Modell (TH-T2A-GAL4 > UAS-SNCA.J, n = 9). In diesem Modell wird die codonoptimierte humane α-Synuclein-Sequenz (SNCA.J) gezielt in dopaminergen Neuronen unter Kontrolle des TH-T2A-GAL4-Treibers überexprimiert. Die Daten werden als Box-und-Whisker-Diagramme (Median, Interquartilsabstand und Minimum–Maximum) dargestellt, überlagert mit einzelnen Datenpunkten, wobei jeder Punkt eine biologische Wiederholung (n) aus 5 gepoolten Gehirnen repräsentiert. Die statistische Signifikanz wurde mittels ungepaartem t-Test bestimmt (**p < 0,01, ns, nicht signifikant). Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Diskussion
HPLC ist eine hochgradig anpassungsfähige Trennmethode. Daher können viele Schritte dieses Protokolls modifiziert werden. Zuverlässige Ergebnisse hängen von sorgfältiger Beachtung und Konsistenz dieser Modifikationen ab. Die relative Polarität der stationären und mobilen Phase definiert den Trennmodus: Bei der Normalphase wird eine polare stationäre Phase mit einer unpolaren mobilen Phase kombiniert, während bei der Umkehrphase eine unpolare stationäre Phase mit einer polaren mobilen Phase kombiniert wird. Die Analyse biogener Amine in biologischem Gewebe erfolgt typischerweise unter Umkehrphasenbedingungen. Diese Studie verwendete eine Zitrat-Acetat-Mobile Phase mit Methanol als Hauptlösungsmittel; ähnliche Messungen wurden jedoch erfolgreich auch mit einem Phosphatpuffer und Acetonitril als Lösungsmittel durchgeführt22,26,35. Die Pufferzusammensetzung kann daher je nach gewünschter Peakauflösung und -form angepasst werden. Eine Änderung der Zusammensetzung der mobilen Phase würde vermutlich die Elutionszeiten verändern37. Dies könnte zu Peaküberlappungen führen, wodurch die Quantifizierung schwierig oder unmöglich wird. Zur Fehlerbehebung sind pH-Änderungen die wirksamste Lösung, da die Wechselwirkung der Analyten mit der Säule stark von deren pKa-Wert abhängt38.
Amine können einer oxidativen Degradation unterliegen, daher sind die Gewebesammlung und -behandlung wichtige Punkte im Protokoll. Das Sammeln der Proben auf Trockeneis und das Aufbewahren bei -80 °C bis zur Verarbeitung ist ein entscheidender Schritt. Sobald die Proben präpariert sind, müssen sie schnell unter sauren Bedingungen homogenisiert werden. Dies verhindert den Zerfall der BAs30,39,40. In diesem Zusammenhang könnten andere Säuren nützlich sein, falls der Zugang zu PCA eingeschränkt ist. Eine Kombination aus Ameisensäure, einer nicht explosiven Oxidationsmittelalternative zu PCA, und Methanol könnte ebenfalls zur Extraktion verwendet werden; dies wurde jedoch in Drosophila-Gehirnproben nicht getestet41.
Die Wahl des Detektors bestimmt, was gemessen werden kann und mit welcher Empfindlichkeit; gängige Optionen umfassen UV/sichtbare, Fluoreszenz- und Massenspektrometrie-Detektoren, die jeweils für unterschiedliche Analyteigenschaften und Empfindlichkeitsanforderungen geeignet sind. Die elektrochemische Detektion eignet sich besonders gut für Katecholamine und Indolamine wie DA und 5-HT, die direkt an der Arbeitselektrode oxidiert werden, um einen Strom zu erzeugen, der proportional zu ihrer Konzentration ist. ECD wurde als eine einfachere und genauere Methode im Vergleich zu alternativen Nachweisverfahren wie der Fluoreszenzdetektion und der Ultraviolettdetektion beschrieben, bei denen oft mehr Schritte erforderlich sind, bevor Proben analysiert werden können, was sie komplexer oder zeitaufwändiger macht42,43. HPLC-ECD bietet hervorragende Empfindlichkeit, da es Analyten in biologischen Proben im Femtomolarbereich nachweisen kann44. Da ein einzelnes Drosophila-Gehirn nur eine sehr geringe Menge an Gewebe liefert, ist diese Empfindlichkeit unerlässlich. Entscheidend ist, dass HPLC-ECD auch die gleichzeitige Quantifizierung mehrerer biogener Amine aus einer einzelnen Probe ermöglicht, sodass das vollständige Monoaminprofil einer Drosophila-Zentralnervensystempräparation in einem einzigen analytischen Durchlauf erfasst werden kann.
Die Methode weist inhärente Einschränkungen auf, die ihren Anwendungsbereich definieren. Obwohl diese Methode äußerst empfindlich ist, erfordert die Quantifizierung von Biogenen Aminen (BAs) aus Drosophila-Proben das Zusammenlegen von Gehirnen. Daher wurde bisher keine Detektion aus einzelnen Gehirnen berichtet, ebenso wie bei anderen Ansätzen45. Ein weiterer Nachteil ist die Elektrodenverunreinigung. Im Laufe der Zeit können oxidative Nebenprodukte eine dünne isolierende Schicht auf der Oberfläche bilden, was die Empfindlichkeit beeinträchtigt und zu Signaldrift führt46. Dies zeigt sich besonders deutlich in unseren Ergebnissen bei Verwendung einer höheren Oxidationsspannung (Abbildung 2). Um solche Veränderungen zu berücksichtigen, kann es hilfreich sein, Standardinjektionen nach mehreren Durchläufen zu wiederholen. Standardinjektionen müssten außerdem jedes Mal erneut durchgeführt werden, wenn eine Änderung der mobilen Phase oder des Detektionspotentials vorgenommen wird, um eventuelle Verschiebungen der beobachteten Peaks auszugleichen. Eine gelegentliche Reinigung der Elektrode kann dieses Problem verringern. Ein weiterer Nachteil besteht darin, dass HPLC-ECD eine integrierte, statische Gesamtmessung des Amingehalts über das analysierte Gewebe liefert. Sie gibt keine Auskunft darüber, wo im Gehirn sich diese Amine befinden oder welchen relativen Beitrag spezifische neuronale Populationen leisten. Unter Standard-ECD-Bedingungen sind nicht-elektroaktive Verbindungen wie GABA und Glutamat nicht nachweisbar und erfordern separate Assays. Am wichtigsten ist jedoch, dass HPLC-ECD eine zielgerichtete Methode ist. Sie kann nicht verwendet werden, um unbekannte Moleküle zu identifizieren, die möglicherweise mit einem Verhaltensphänotyp korreliert sind, da sie vollständig auf dem Vergleich von Retentionszeiten mit bekannten, gut charakterisierten Standards beruht. Für die ungerichtete Entdeckung neurochemischer Korrelate des Verhaltens wären Techniken wie LC-MS/MS besser geeignet, allerdings mit höheren Kosten verbunden.
Innerhalb dieser Grenzen beantwortet HPLC-ECD eine klar abgegrenzte und biologisch relevante Reihe von Fragestellungen in Drosophila -Krankheitsmodellen. Es kann bestimmen, ob ein Genotyp oder eine Behandlung die stationären Aminspiegel verändert, und ob solche Veränderungen auf ein bestimmtes Transmittersystem beschränkt sind oder das gesamte Monoaminprofil beeinflussen. Es ermöglicht die Verfolgung neurochemischer Veränderungen über Entwicklungsstadien oder den Krankheitsverlauf hinweg und liefert Hinweise auf präsymptomatische biochemische Zustände, die vor erkennbaren Verhaltensphänotypen auftreten47. Außerdem eignet es sich gut dafür, zu überprüfen, ob eine pharmakologische oder genetische Intervention Aminmangelzustände in einem gegebenen Modell normalisiert, überschreitet oder nicht beheben kann26. Die Beantwortung von Fragen wie, zu welchem Zeitpunkt sich jeweils einzelne Amine verändern, ob die Korrektur eines Systems ein anderes stört und ob eine Entwicklungsstörung langfristige neurochemische Spuren hinterlässt, ist genau der Anwendungsbereich einer quantitativen, empfindlichen, mehrfachen Amine-Methode. In Kombination mit den in Drosophila verfügbaren Verhaltensanalysen und genetischen Werkzeugen liefert HPLC-ECD eine quantitative biochemische Ebene, die den interpretativen Rahmen dieser Krankheitsmodelle erheblich erweitert.
Offenlegungen
Die Autoren geben keine Interessenkonflikte an.
Danksagungen
Diese Arbeit wurde unterstützt durch einen Zuschuss der National Institutes of Health, R00NS133470 (S.H.). Der Inhalt liegt allein in der Verantwortung der Autoren und stellt nicht notwendigerweise die offiziellen Ansichten der National Institutes of Health dar. R.V.Z. wird unterstützt durch die Subvención a la Instalación en la Academia (SIA) N°85250142, und J.M.C. wird durch FONDECYT 1231556, Agencia Nacional de Investigación y Desarrollo, Chile, unterstützt.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| (±) Octopamin-Hydrochlorid | Sigma Aldrich | 770-05-8 | |
| 500 mL Filtereinheit | Thermo Scientific | FB12566504 | 0,2 µm aPES-Membran, 75 mm Durchmesser |
| Essigsäure, wasserfrei | Fisher Scientific | 64-19-7 | |
| Citronensäure, wasserfrei | USB | 77-92-9 | |
| Chromatographie-Software Clarity | Data Apex | Version 10.1 | |
| Colibrick-Datenkonverter | Data Apex | A/D-Wandler | |
| Dopamin-Hydrochlorid | Sigma Aldrich | 62-31-7 | |
| Dumont #5 Pinzette (Dumoxel Biology) | Fine Science Tools | 11252-30 | Präparationspinzette |
| EDTA, Dinatriumsalz, Dihydrat, Kristall (2Na-EDTA) | J.T Baker | 6381-92-6 | |
| EICOMPAK-5ODS | Eicom | 680.060.00 | Umkehrphasen-Trennsäule |
| EMD Milipore Synergy UV-R ultrareines (Typ 1) Wasser | Milipore | ||
| Hamilton-Spritze 25 µl (22s/2"/3) | Hamilton | 80465 | |
| HTEC-600 | Eicom | HPLC-Gerät | |
| Salzsäure | Sigma Aldrich | 7647-01-0 | |
| Leichte Reinigungstücher für Gewebe | VWR | 82003-820 | |
| Methanol, HPLC-Reinheit | Fisher Scientific | 67-56-1 | 0,2-Mikron-gefiltert |
| Perchlorsäure, 70 % in Wasser | Fisher Scientific | AC424032500 | Zur Herstellung von 0,2 N PCA |
| Serotonin-Hydrochlorid, 98 % | Fisher Scientific | 153-98-0 | |
| Natrium-1-octansulfonat-Hydrat, HPLC-Reinheit, 99+ % | Thermo Scientific | 5324-84-5 | |
| Natriumacetat, Trihydrat, Kristall | J.T Baker | 6131-90-4 | |
| Sonikator 1510 Bransonic Ultraschallreiniger | Branson | Modell #: 1510R-MT | Sonikator |
| Ultraschallprozessor (Sonikator) | Fisherbrand | Modell FB50 | Mit CL18-Sonde |
Referenzen
- Barron AB, Søvik E, Cornish JL. The roles of dopamine and related compounds in reward-seeking behavior across animal phyla. Front Behav Neurosci. 2010;4:163.
- Cardozo Pinto DF, et al. Opponent control of reinforcement by striatal dopamine and serotonin. Nature. 2025;639(8053):143-152.
- Jiang Y, et al. Monoamine neurotransmitters control basic emotions and affect major depressive disorders. Pharmaceuticals (Basel). 2022;15(10):1203.
- Swallow JG, Bubak AN, Grace JL. The role of monoamines in modulating behavior. Curr Zool. 2016;62(3):253-255.
- Ramesh S, Arachchige ASPM. Depletion of dopamine in Parkinson's disease and relevant therapeutic options: A review of the literature. AIMS Neurosci. 2023;10(3):200-231.
- Elgueta-Reyes M, Hidalgo S, Campusano JM. Beyond vertebrates: Drosophila melanogaster as a model to study negative symptoms of schizophrenia. Front Psychiatry. 2025;16:1622281.
- Kasture AS, Hummel T, Sucic S, Freissmuth M. Big lessons from tiny flies: Drosophila melanogaster as a model to explore dysfunction of dopaminergic and serotonergic neurotransmitter systems. Int J Mol Sci. 2018;19(6):1788.
- Owald D, Lin S, Waddell S. Light, heat, action: Neural control of fruit fly behaviour. Philos Trans R Soc Lond B Biol Sci. 2015;370(1677):20140211.
- Rosikon KD, Bone MC, Lawal HO. Regulation and modulation of biogenic amine neurotransmission in Drosophila and Caenorhabditis elegans. Front Physiol. 2023;14:970405.
- Pandey UB, Nichols CD. Human disease models in Drosophila melanogaster and the role of the fly in therapeutic drug discovery. Pharmacol Rev. 2011;63(2):411-436.
- Duffy JB. GAL4 system in Drosophila: A fly geneticist's Swiss army knife. Genesis. 2002;34(1-2):1-15.
- Feany MB, Bender WW. A Drosophila model of Parkinson's disease. Nature. 2000;404(6776):394-398.
- Narwal S, Singh A, Tare M. Analysis of α-syn and parkin interaction in mediating neuronal death in Drosophila model of Parkinson's disease. Front Cell Neurosci. 2024;17:1295805.
- Park J, et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 2006;441(7097):1157-1161.
- Aryal B, Lee Y. Disease model organism for Parkinson disease: Drosophila melanogaster. BMB Rep. 2019;52(4):250-258.
- Clark IE, et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 2006;441(7097):1162-1166.
- Park S, Kozhushko N, Wight TH, Whitworth AJ. Insights into PINK1/Parkin function and dysfunction from Drosophila models. Biochem J. 2025;483(1):BCJ20253459.
- Mohite GM, et al. Parkinson's disease associated α-synuclein familial mutants promote dopaminergic neuronal death in Drosophila melanogaster. ACS Chem Neurosci. 2018;9(11):2628-2638.
- Ordonez DG, Lee MK, Feany MB. α-Synuclein induces mitochondrial dysfunction through spectrin and the actin cytoskeleton. Neuron. 2018;97(1):108-124.e6.
- Eyles D, Feldon J, Meyer U. Schizophrenia: Do all roads lead to dopamine or is this where they start? Evidence from two epidemiologically informed developmental rodent models. Transl Psychiatry. 2012;2(2):e81.
- Calcagno B, Eyles D, van Alphen B, van Swinderen B. Transient activation of dopaminergic neurons during development modulates visual responsiveness, locomotion and brain activity in a dopamine ontogeny model of schizophrenia. Transl Psychiatry. 2013;3(1):e206.
- Hidalgo S, et al. The behavioral and neurochemical characterization of a Drosophila dysbindin mutant supports the contribution of serotonin to schizophrenia negative symptoms. Neurochem Int. 2020;138:104753.
- Hidalgo S, Campusano JM, Hodge JJL. Assessing olfactory, memory, social and circadian phenotypes associated with schizophrenia in a genetic model based on Rim. Transl Psychiatry. 2021;11(1):292.
- Hidalgo S, Campusano JM, Hodge JJL. The Drosophila orthologs of the schizophrenia-associated CACNA1A and CACNA1B voltage-gated calcium channels regulate memory, sleep and circadian rhythms. Neurobiol Dis. 2021;155:105394.
- Shao L, et al. Schizophrenia susceptibility gene dysbindin regulates glutamatergic and dopaminergic functions via distinctive mechanisms in Drosophila. Proc Natl Acad Sci U S A. 2011;108(46):18831-18836.
- Zárate RV, et al. An early disturbance in serotonergic neurotransmission contributes to the onset of Parkinsonian phenotypes in Drosophila melanogaster. Cells. 2022;11(9):1544.
- Nakao K, et al. 5-HT2A receptor dysregulation in a schizophrenia relevant mouse model of NMDA receptor hypofunction. Transl Psychiatry. 2022;12(1):168.
- Zhou W, et al. DISC1 mutant macaques capture behavioral and neural hallmarks of psychiatric disease. Natl Sci Rev. 2026;13(8):nwag200.
- Chen A, et al. Dispensable, redundant, complementary, and cooperative roles of dopamine, octopamine, and serotonin in Drosophila melanogaster. Genetics. 2013;193(1):159-176.
- Plenis A, Olędzka I, Kowalski P, Miękus N, Bączek T. Recent trends in the quantification of biogenic amines in biofluids as biomarkers of various disorders: a review. J Clin Med. 2019;8(5):640.
- Fredj Z, Sawan M. Advanced nanomaterials-based electrochemical biosensors for catecholamines detection: challenges and trends. Biosensors (Basel). 2023;13(2):211.
- Hori A, Nitta T, Inamori Kichiro, Kanoh H, Kuraishi T. High-throughput single-fly LC-MS/MS for quantitative profiling of biogenic amines in Drosophila. PLoS One. 2026;21(1):e0341188.
- Davla S, et al. An LC-MS/MS method for simultaneous analysis of up to six monoamines from brain tissues. J Chromatogr B. 2023;1216:123604.
- Chouhan AK, et al. Uncoupling neuronal death and dysfunction in Drosophila models of neurodegenerative disease. Acta Neuropathol Commun. 2016;4(1):62.
- Molina-Mateo D, et al. Characterization of a presymptomatic stage in a Drosophila Parkinson's disease model: unveiling dopaminergic compensatory mechanisms. Biochim Biophys Acta Mol Basis Dis. 2017;1863(11):2882-2890.
- Blesa J, et al. Compensatory mechanisms in Parkinson's disease: circuits adaptations and role in disease modification. Exp Neurol. 2017;298(Pt B):148-161.
- Snyder LR, Quarry MA, Glajch JL. Solvent-strength selectivity in reversed-phase HPLC. Chromatographia. 1987;24(1):33-44.
- Lewis JA, et al. Computer simulation for the prediction of separation as a function of pH for reversed-phase high-performance liquid chromatography: I. Accuracy of a theory-based model. J Chromatogr A. 1992;592(1):183-195.
- Chan EC, Wee PY, Ho PC. Evaluation of degradation of urinary catecholamines and metanephrines and deconjugation of their sulfoconjugates using stability-indicating reversed-phase ion-pair HPLC with electrochemical detection. J Pharm Biomed Anal. 2000;22(3):515-526.
- Bicker J, Fortuna A, Alves G, Falcão A. Liquid chromatographic methods for the quantification of catecholamines and their metabolites in several biological samples: a review. Anal Chim Acta. 2013;768:12-34.
- Miękus N, et al. Comparison of three extraction approaches for the isolation of neurotransmitters from rat brain samples. Int J Mol Sci. 2018;19(6):1560.
- Van Dam D, Vermeiren Y, Aerts T, De Deyn PP. Novel and sensitive reversed-phase high-pressure liquid chromatography method with electrochemical detection for the simultaneous and fast determination of eight biogenic amines and metabolites in human brain tissue. J Chromatogr A. 2014;1353:28-39.
- Han S, et al. A sensitive HPLC-ECD method for detecting serotonin released by RBL-2H3 cells stimulated by potential allergens. Anal Methods. 2015;7(20):8918-8924.
- Guiard BP, Gotti G. The high-precision liquid chromatography with electrochemical detection (HPLC-ECD) for monoamines neurotransmitters and their metabolites: a review. Molecules. 2024;29(2):496.
- Fang H, Vickrey TL, Venton BJ. Analysis of biogenic amines in a single Drosophila larva brain by capillary electrophoresis with fast-scan cyclic voltammetry detection. Anal Chem. 2011;83(6):2258-2264.
- Hanssen BL, Siraj S, Wong DKY. Recent strategies to minimise fouling in electrochemical detection systems. Rev Anal Chem. 2016;35(1):1-28.
- Meissner WG. When does Parkinson's disease begin? From prodromal disease to motor signs. Rev Neurol (Paris). 2012;168(11):809-814.
Nachdrucke und Genehmigungen
Dieser Artikel wurde veröffentlicht
Video demnächst verfügbar