Dieses Protokoll ermöglicht die zuverlässige Isolierung lebensfähiger ventrikulärer Kardiomyozyten aus dem kurzlebigen jährlichen Killifisch, Nothobranchius furzeri, über verschiedene Altersgruppen hinweg und liefert Zellen, die für Ganzzell-Patch-Clamp-Untersuchungen der altersassoziierten Herzzellumgestaltung geeignet sind.
Methodenartikel
Isolierung von ventrikulären Kardiomyozyten aus dem jährlichen Killifisch Nothobranchius furzeri für Ganzzell-Patch-Clamp-Aufzeichnungen
In diesem Artikel
Zusammenfassung
Zusammenfassung
Isolierte arbeitende Kardiomyozyten stellen weiterhin den Standardansatz zur Untersuchung der kardialen Elektrophysiologie dar. Präparationen einzelner Zellen ermöglichen die direkte Untersuchung und präzise Messung ionischer Ströme sowie Aktionspotentiale, ohne die strukturelle Komplexität intakten Herzmuskels. Nothobranchius furzeri (afrikanischer Türkis-Prachtbarsch) hat sich rasch als bedeutendes Modellorganismus für gerontologische Forschung aufgrund seiner außergewöhnlich kurzen Lebensdauer und der Ähnlichkeiten bei Alterungsmechanismen mit Säugetieren, einschließlich des Menschen, etabliert. Diese Art vereint praktische Vorteile wie geringe Körpergröße, kostengünstige Haltung und einen schnellen Lebenszyklus mit translationaler Relevanz. N. furzeri zeigt altersabhängige Abnahme der motorischen Aktivität, kognitiver Leistungen und Organfunktionen, Ansammlung molekularer Alterungsmarker sowie Empfindlichkeit gegenüber pharmakologischen Behandlungen, die Lebensdauer und Gesundheitsdauer beeinflussen. Die Untersuchung des funktionellen Abbaus des alternden Herzens erfordert jedoch eine zuverlässige Methode zur Gewinnung hochwertiger, lebensfähiger Zellen, die für anspruchsvolle Einzelzelltechniken geeignet sind. Diese Studie optimierte ein zuvor beschriebenes Protokoll zur Isolation von Danio rerio-Kardiomyozyten, um eine konsistente Gewinnung gesunder arbeitender Myozyten sowohl aus jungen als auch aus seneszenten N. furzeri zu gewährleisten. Dieses Protokoll beschreibt die Isolation ventrikulärer Kardiomyozyten aus N. furzeri, speziell optimiert für die Ganzzell-Patch-Clamp-Technik. Der Artikel zeigt, wie das Herz effizient entnommen, die enzymatische Dissoziation des Myokards durch retrograde Perfusion durchgeführt und die isolierten Kardiomyozyten gelagert werden. Wir erörtern die Auswahl der Enzyme, die erforderlich sind, um die extrazelluläre Matrix und interzellulären Verbindungen abzubauen, ohne die Struktur der Ionenkanäle zu beeinträchtigen. Frisch isolierte Kardiomyozyten eignen sich für hochauflösende elektrophysiologische Assays, einschließlich der Ableitung von Aktionspotentialen und der Messung wesentlicher ein- und ausgehender ionischer Ströme über verschiedene Altersgruppen hinweg. Der Artikel behandelt zudem Besonderheiten der Kardiomyozytenisolation bei Fischen, die sich von standardmäßigen Säugetier-Isolationsverfahren unterscheiden.
Einleitung
Der altersbedingte funktionelle Rückgang des Herzens wird durch strukturelle, molekulare und elektrophysiologische Umbauprozesse verursacht, die gemeinsam die kardiale Reserve beeinträchtigen und die Anfälligkeit für Arrhythmogenese erhöhen1. Um die Mechanismen des kardialen Alterns auf zellulärer Ebene zu verstehen, ist die Ganzzell-Patch-Clamp-Technik ein unverzichtbares experimentelles Werkzeug. Sie ermöglicht die direkte, quantitative Beurteilung einzelner transmembraner Ionenströme und deren Kinetik sowie von Aktionspotentialen (AP) und liefert so Einblicke in die spezifischen Veränderungen der Ionenströme, die der altersassoziierten myokardialen Dysfunktion zugrunde liegen. Die Untersuchung dieser Mechanismen erfordert zuverlässige Wirbeltiermodelle der kardialen Seneszenz. In den letzten Jahren hat sich der afrikanische Türkisprachtsalmler (Nothobranchius furzeri) aufgrund seiner natürlichen Kurzlebigkeit als vielversprechendes Modell zur Erforschung des kardialen Alterns herauskristallisiert2,3. Vorläufige molekulare und histologische Studien haben Gemeinsamkeiten bei den Alterungsprozessen zwischen Nothobranchius und Säugetieren aufgezeigt. Untersuchungen anderer Arbeitsgruppen haben bestätigt, dass N. furzeri wesentliche Merkmale des mammalen kardialen Alterns aufweist, darunter Telomererosion, verminderten mitochondriellen DNA-Gehalt und verringerte Expression antioxidativer Enzyme, strukturelle und elektrophysiologische Veränderungen des Myokards sowie die Anreicherung von Alterungsmarkern wie Lipofuszin und erhöhte β-Galactosidase-Aktivität4,5,6.
Trotz der zunehmenden Bedeutung von N. furzeri in der kardiovaskulären Forschung ist eine detaillierte elektrophysiologische Charakterisierung auf Einzelzell-Ebene durch anhaltende technische Herausforderungen begrenzt. Hochwertige Patch-Clamp-Aufzeichnungen setzen die Isolierung funktionstüchtiger Kardiomyozyten voraus, die ihre strukturelle Integrität, intakte Ionenkanäle und eine nicht hyperkontrahierte Morphologie beibehalten. Während enzymatische Dissoziationsprotokolle für Säugetier-Kardiomyozyten gut etabliert sind, bleibt die Gewinnung lebensfähiger Herzmuskelzellen aus Fischange schwer, bedingt durch die nicht-säugerartige Gewebsarchitektur, eine vergleichsweise geringe Zellausbeute und die kleine Herzgröße7,8. Die Hauptbeschränkungen dieses Verfahrens liegen in der technischen Schwierigkeit, das Herz korrekt zu kanülieren, sowie in der Empfindlichkeit der Präparation gegenüber geringen Variationen in der enzymatischen Behandlung. Jede Störung des Perfusionsflusses führt zu einer deutlichen Verschlechterung sowohl der Zellqualität als auch der Ausbeute. Darüber hinaus können bereits geringfügige Abweichungen in der Enzymkonzentration oder der Verdauungszeit die Zellviabilität und die Qualität nachfolgender elektrophysiologischer Messungen erheblich beeinträchtigen. Auch das Alter des Versuchstieres sollte berücksichtigt werden. Obwohl Herzen älterer Fische aufgrund ihres erhöhten Gehalts an Kollagenfasern und Fibroblasten leicht höhere Enzymkonzentrationen und längere Verdauungszeiten erfordern2, bleiben die grundlegenden Prinzipien der Isolierung gleich, wobei Enzymkonzentrationen und Einwirkzeiten um maximal 10 % variieren, um optimale Ergebnisse zu erzielen.
Daher ist ein detailliertes, hoch reproduzierbares enzymatisches Isolationsprotokoll eine Voraussetzung für die Weiterentwicklung elektrophysiologischer Forschung zum Herzalterungsprozess bei Fischmodellen. Trotz bestimmter morphologischer Ähnlichkeiten in den linearen Abmessungen erfordert die Kardiomyozyten-Isolation aus N. furzeri mehrere wesentliche Modifikationen im Vergleich zum Protokoll für Danio rerio. Bei dem klassischen Verfahren zur Zellisolierung aus dem Zebrafischangeht das Einlegen des intakten Herzens in eine enzymatische Lösung über einen relativ langen Zeitraum7,8,9. Obwohl dieses Vorgehen lebensfähige Zellen liefert, kann es für das Nothobranchius-Herz zu aggressiv sein und zu einer übermäßigen enzymatischen Verdauung führen. Diese Methode gewährleistet einen stabilen Durchfluss der Lösungen direkt in die Herzkammern, ermöglicht dadurch eine effizientere Ausspülung des Blutes aus dem Herzen und erlaubt eine präzisere und schonendere enzymatische Behandlung. Dieser Artikel beschreibt eine optimierte Methodik zur Isolierung lebensfähiger, für die Patch-Clamp-Technik geeigneter kardialer Myozyten aus N. furzeri und geht auf die entscheidenden Anpassungen ein, die notwendig sind, um qualitativ hochwertige elektrophysiologische Aufzeichnungen sicherzustellen.
Protokoll
Die Studie wurde an N. furzeri der GRZ-Stammeslinie durchgeführt. Junge, geschlechtsreife Fische beiderlei Geschlechts im Alter von 1,5–2 Monaten (N = 19, Körpermasse = 0,71 g ± 0,36 g) wurden verwendet, um Aktionspotentiale und ionische Ströme in isolierten ventrikulären Kardiomyozyten zu registrieren. Die Tiere wurden gezüchtet und bereitgestellt vom A.N. Severtsov-Institut für Ökologie und Evolution der Russischen Akademie der Wissenschaften. Die Tiere wurden in Aquarien bei 24 °C ± 1 °C unter einem 12‑h-Licht/Dunkel-Wechsel in Wasserbehältern mit einem Volumen von 60–100 L gehalten. Die Tierdichte betrug 10–20 Tiere pro Becken, entsprechend zuvor veröffentlichten Empfehlungen10.
Das Prinzip der Kardiomyozyten-Isolierung aus N. furzeri basiert auf der klassischen Isolationsmethode für Fische, die zuvor beschrieben wurde und an kleine Fische angepasst wurde11,12. Alle Experimente wurden gemäß den Richtlinien für die Pflege und Verwendung von Laborversuchstieren (US National Institutes of Health) und der EU-Richtlinie 2010/63/EU durchgeführt. Das Versuchsprotokoll wurde von der Bioethik-Kommission der Lomonossow-Universität Moskau genehmigt (Antrag №202-a, genehmigt während der Sitzung der Bioethik-Kommission №169-d am 27.02.2025). Die verwendeten Reagenzien und Geräte sind in der Tabelle der Materialien aufgeführt.
1. Herstellung der Lösungen
- Bereiten Sie die Ca2+-freie Isolationslösung mit folgender Zusammensetzung (in mmol L-1) vor: 100 NaCl, 10 KCl, 1,2 KH2PO4, 4 MgSO4, 50 Taurin, 20 Glukose und 10 HEPES. Stellen Sie den pH-Wert mit NaOH auf 6,9 bei Raumtemperatur (24 °C) ein. Führen Sie die Isolation mit einer isotonischen Lösung bei Raumtemperatur durch. Eine Sauerstoffanreicherung der Lösung ist für die Isolation nicht erforderlich.
ANMERKUNG: Die Isolationslösung kann 3–4 Tage bei 4 °C in einer Glasflasche aufbewahrt werden. - Bereiten Sie 3 mL enzymatische Lösung auf Basis der Ca2+-freien Lösung vor, die 0,8 mg mL-1 Kollagenase Typ 1A, 0,5 mg mL-1 Trypsin und 0,8 mg mL-1 Rinderserumalbumin (BSA) enthält. Geben Sie die Enzyme unmittelbar vor dem Isolationsverfahren hinzu, um die enzymatische Aktivität zu erhalten.
ANMERKUNG: Die Enzymkonzentrationen müssen möglicherweise angepasst werden, da die Enzymaktivität zwischen Chargen variieren kann. - Kühlen Sie 50–100 mL Leitungswasser im Kühlschrank auf +4 °C vor. Das gekühlte Wasser wird zur Analgesie bei Fischen benötigt.
2. Vorbereitung des Isolationssystems
- Befestigen Sie zwei 10-mL-Spritzenzylinder an einem Stativ in einer Höhe von etwa 35 cm.
- Verbinden Sie Silikonschläuche (d = 8 mm) mit den Zylindern und verbinden Sie deren freie Enden über einen 3-Wege-Infusionshahn.
- Füllen Sie einen Schlauch mit der Ca2+-freien Isolationslösung und den anderen mit der enzymatischen Lösung. Achten Sie darauf, dass keine Luftblasen in den Schläuchen verbleiben, da diese den Durchfluss behindern und die Isolationsqualität verringern. Stellen Sie den Fluss ab.
- Füllen Sie eine 32-G-Dosierspitze mit Ca2+-freier Lösung unter Verwendung einer 1-mL-Insulinspritze, um Luftblasen an der Nadelspitze zu vermeiden.
- Befestigen Sie die gefüllte Nadel am freien Ende des 3-Wege-Hahns.
- Befestigen Sie die Nadel mithilfe von Montageknetmasse parallel zur Unterseite einer 100-mm-Petri-Schale.
- Platzieren Sie die mit dem Perfusionsystem verbundene Petri-Schale unter dem Stereomikroskop und sichern Sie sie mit Bühnenklammern und Montageknetmasse (Abbildung 1A).
3. Dissektion und Herzisolierung
- Bereiten Sie die chirurgischen Instrumente vor: zwei Paar mikrochirurgische Augenchirurgiescheren und -pinzetten sowie ein Präparationsbrett mit vier medizinischen Nadeln.
- Nehmen Sie das vorab gekühlte Leitungswasser aus dem Kühlschrank und tauchen Sie den Fisch schnell darin ein. Warten Sie, bis sich die Kiemendeckel nicht mehr bewegen.
ACHTUNG: Überprüfen Sie das Erliegen der Operkelbewegungen, um eine ausreichende Analgesie sicherzustellen, bevor Sie fortfahren. - Entfernen Sie den Fisch aus dem Wasser, legen Sie ihn mit der dorsalen Seite nach oben auf das Präparationsbrett und durchtrennen Sie die Wirbelsäule mit Augenscheren.
- Drehen Sie den Fisch auf den Rücken und befestigen Sie ihn mit Nadeln auf dem Tablett. Stecken Sie Kopf, Schwanz und Kiemendeckel fest, wobei die Kiemendeckel weit zurückgeklappt und in vollständig geöffneter Position fixiert werden, um mehr Platz zu schaffen.
- Führen Sie einen Querschnitt durch das Peritoneum durch. Verlängern Sie den Schnitt entlang der Hauptkörperachse, wobei Sie vorsichtig mit einer Pinzette die Haut von den Eingeweiden abheben. Setzen Sie den Schnitt bis zum Rand des Unterkiefers fort und fixieren Sie die Hautränder links und rechtsAbbildung 1B).
- Lokalisieren Sie das Ventrikel und den Bulbus arteriosus. Fassen Sie den Bulbus arteriosus mit einer Pinzette so weit wie möglich vom Ventrikel entfernt und heben Sie ihn vorsichtig aus dem Körper. Ohne die Pinzette loszulassen, schneiden Sie kaudal zum Ventrikel, um dieses intakt zu belassen.
- Überführen Sie das isolierte Herz in die Petrischale unter dem Stereomikroskop. Sichern Sie die Kanülenspitze im Ventrikel, indem Sie sie zunächst in den Bulbus arteriosus einführen und sie dann vorsichtig durch die Aortenklappe führen, ohne das umliegende Gewebe zu beschädigen. Eine erfolgreiche Kanülierung konnte erreicht werden in > 90 % der Herzen.
- Fixieren Sie den Bulbus arteriosus mit einer Ligatur an der Kanüle (Abbildung 1C).
HINWEIS: Ein menschliches Haar (d = 50–70 µm) eignet sich gut als Ligatur, da herkömmlicher Nahtfaden für das kleine Herz zu dick ist.
4. Isolation von Kardiomyozyten
- Öffnen Sie den Dreiventil, um den Fluss aus dem Zylinder mit Ca zuzulassen2+-freie Lösung. Bei korrekter Durchführung füllt sich das Ventrikel mit der Lösung und dehnt sich aus. Die Flussrate wurde eingestellt auf 43 µL min-1.
- Entfernen Sie Reste des Atriums und des Sinus venosus mit mikrochirurgischen Scheren, ohne die ventrikulären Wände zu beschädigen.
- Perfudieren Sie das Herz 10–12 Minuten lang, während Sie einen gleichmäßigen Fluss überwachen. Drücken Sie vorsichtig auf den Silikonrohr, um einen kurzen Lösungsstromimpuls zu erzeugen, der die ventrikulären Trabekeln erweitert und verbleibendes Blut auswäscht. Ein erfolgreicher Auswaschvorgang zeigt sich durch Herzstillstand und das Erliegen des Erythrozytenflusses im Stereomikroskop.
- Schalten Sie den Hahn um, sodass die enzymatische Lösung in das Ventrikelinnere geleitet wird. Perfundieren Sie 4–6 Minuten lang. Überprüfen Sie die enzymatische Behandlung visuell anhand der Auflockerung der Ventrikelwandintegrität und der Ablösung kleiner myokardialer Fragmente.
ACHTUNG: Vermeiden Sie die Entnahme oder Übertragung des Perfusats auf ein invertiertes Mikroskop zur Untersuchung, da dies zum Verlust oder mechanischen Schaden zellulären Materials führen und die kontinuierliche Überwachung der Perfusionsqualität unterbrechen kann. Es ist besser, sich auf die oben beschriebenen Anzeichen einer erfolgreichen Isolation zu verlassen, die unter einem Binokularmikroskop deutlich sichtbar sind. - Geben Sie eine kleine Aliquot (300–400 µL) von Ca2+freie Lösung in eine 35-mm-Zellkulturschale. Schneiden Sie den Ventrikel vom Bulbus arteriosus ab und überführen Sie ihn in die Schale.
- Zerkleinern Sie den Ventrikel mit einer feinen Schere und trituriern Sie das Gewebe vorsichtig durch wiederholtes Auf- und Abpipettieren mit einer 100 µL Mikropipette mit abgeschniffelter Spitze
- Überführen Sie die Zellsuspension in eine 1500 µL Röhrchen. Überprüfen Sie eine Aliquotprobe unter einem umgekehrten Mikroskop bei niedriger Vergrößerung (10×). Schätzen Sie visuell die Dichte stabförmiger, gestreifter Kardiomyozyten im Sichtfeld ein. Falls das Sichtfeld überfüllt ist und viele überlappende stabförmige Zellen aufweist (>50 pro 10× Feld), fügen Sie Ca hinzu2⁺freie Lösung, um die Zelldichte zu verringern und eine übermäßige Überlagerung in der Ableitungskammer zu vermeiden. Die Zellen ansetzen lassen bei 4 °C für 40–50 min vor der Aufnahme.
HINWEIS: Die Zellen können aufbewahrt werden bei 4 °C während der Sedimentationsphase; verwenden Sie sie für Aufnahmen innerhalb von 8 h nach der Isolation.
5. Ganzzell-Patch-Clamp-Aufnahmen
- Bereiten Sie die extrazelluläre und intrazelluläre Lösung für die verschiedenen Aufzeichnungen ionischer Ströme und Aktionspotentiale vor, die in Tabelle 1 aufgeführt sind.
- Ziehen Sie Patch-Pipetten aus dünnwandigen Borosilikatglas-Kapillaren (ohne Filament) mit einem vertikalen Ziehgerät und füllen Sie sie mit intrazellulärer Lösung. Der Widerstand der gefüllten Pipette sollte bei allen Aufzeichnungskonfigurationen 2,0–3,0 MΩ betragen.
- Füllen Sie das Perfusionsreservoir mit der extrazellulären Badlösung und spülen Sie die Leitungen vor, um alle Luftblasen zu entfernen, bevor Sie die Zellen in die Aufzeichnungskammer geben.
- Geben Sie ein kleines Volumen (30–40 µL) der isolierten Kardiomyozytensuspension in die glasbodige Aufzeichnungskammer und lassen Sie die Zellen 5–10 Minuten lang absinken.
- Befestigen Sie die Pipette am Verstärkerkopf. Senken Sie unter mikroskopischer Kontrolle die Pipette mithilfe des Mikromanipulators auf den Zielkardiomyozyten ab, bis die Spitze die Membran berührt, was als geringe Delle und ein Ansteigen des Pipettenwiderstands sichtbar wird.
- Üben Sie sanften negativen Sog aus, um einen hochwiderständigen GΩ-Siegel zu erzeugen, der sich normalerweise innerhalb weniger Sekunden bildet.
- Stellen Sie das Haltepotential auf -80 mV ein. Durchbrechen Sie die Membran durch eine Serie kurzer Saugimpulse. Nach Herstellung der Ganzzellkonfiguration minimieren Sie kapazitive Transienten und kompensieren Sie die Zellkapazität sowie den Serien- (Zugangs-)Widerstand mithilfe der Kompensationsschaltung des Verstärkers.
- Kompensieren Sie diese kapazitiven Ströme mithilfe der Regler für Zellkapazität und Serienwiderstand am Verstärker. Stellen Sie den Zellkapazitätsregler so ein, dass die primäre kapazitive Transiente minimiert wird, dann justieren Sie den Serienwiderstandsregler, um die verbleibende Überschwingung zu reduzieren, bis diese weitgehend kompensiert ist und der Basisstrom flach verläuft.
- Nehmen Sie nur Zellen mit einem nach Kompensation geschätzten Zugangswiderstand von ≤10–12 MΩ für die Aufzeichnung von Aktionspotentialen und ionischen Strömen. Fahren Sie mit der Aufzeichnung von Aktionspotentialen oder ionischen Strömen fort und geben Sie gegebenenfalls vor der Aufzeichnung die in Tabelle 2 aufgeführten spezifischen Blocker hinzu.
- Nehmen Sie die Aufzeichnungen mit Patch-Clamp-Aufnahmesoftware vor, die die Konfiguration benutzerdefinierter Stimulationsprotokolle für jeden Zielstrom ermöglicht. Die in dieser Studie verwendeten Spannungs-Klemm-Protokolle sind in Abbildung 2 dargestellt.
Ergebnisse
Dieses Protokoll liefert einzelne, stabförmige ventrikuläre Kardiomyozyten aus N. furzeri, die für hochauflösende Ganzzell-Patch-Clamp-Aufzeichnungen geeignet sind. Ein erfolgreicher Zellisolierung wird zunächst anhand der Zellmorphologie und der Qualität des Verschlusses beurteilt und anschließend funktionell bestätigt durch die Fähigkeit, stabile Aktionspotentiale sowie alle wesentlichen ionischen Ströme mit der erwarteten Spannungsabhängigkeit und Amplitude aufzuzeichnen. Die repräsentativen Aufzeichnungen unten stammen von jungen N. furzeri und definieren die Referenzwerte, die auf eine gesunde, gut angekoppelte Zelle hinweisen. Abweichungen von diesen Referenzwerten deuten typischerweise auf eine suboptimale Isolierung hin und werden jeweils zusammen mit dem entsprechenden Kriterium beschrieben.
Zellmorphologie und Bildung der Dichtung
Lebensfähige ventrikuläre Kardiomyozyten von N. furzeri erscheinen gestreckt und stabförmig mit einer glatten, morphologisch intakten Sarkolemma (Abbildung 3). Bei einigen Zellen war unter dem Lichtmikroskop eine schwache quer verlaufende Streifung erkennbar, obwohl diese nicht in jeder Zelle eindeutig aufgelöst war; daher wurden die glatte, intakte Membran und die gestreckte, stabförmige Morphologie als primäre Kriterien für die Auswahl der Zellen zur Ableitung herangezogen. Solche Zellen bilden leicht eine dichte Versiegelung (>1 GΩ) und vertragen den Membranruptur. Im Gegensatz dazu weisen runde, kontrahierte, granuläre oder geschwollene Zellen auf eine Überverdauung oder mechanische Schädigung hin: Sie versiegeln schlecht, zeigen ein schnelles Abklingen der Signale und sollten verworfen werden. Eine gesunde Zelle weist ein stabiles Ruhepotential auf und zeigt einen minimalen Leckstrom bei einem Haltepotential von -80 mV.
Aufzeichnungseigenschaften der Patch-Clamp-Technik
Ganzzell-Patch-Clamp-Aufnahmen wurden bei 22–24 °C unter Verwendung eines Patch-Clamp-Verstärkers durchgeführt. Die Signale wurden mit 10 kHz abgetastet und mit einem Tiefpassfilter bei 1–2 kHz gefiltert. Die Ausgangsverstärkung (α) wurde auf ×0,5 eingestellt, um die Signalauflösung am Digitalisierer zu optimieren. Der Serienwiderstand wurde um 70–80 % kompensiert; Verzögerung 10 µs. Die Aufnahmen wurden verworfen, wenn der geschätzte Zugangswiderstand 10–12 MΩ überschritt oder während der Aufnahme um mehr als ~10 % anstieg. Bei der Aufnahme von Aktionspotentialen und ionischen Strömen wurde keine lineare Leckstromsubtraktion angewendet.
Zellen wurden von der Analyse ausgeschlossen, wenn sie eines der folgenden Kriterien erfüllten: Ruhemembranpotential weniger negativ als −70 mV im Strom-Klemm-Modus; Unfähigkeit, eine stabile Gigaseal (>1 GΩ) zu bilden; Zugangswiderstand >10–12 MΩ nach Kompensation; schneller Abfall der ionischen Ströme während der Aufzeichnung; morphologische Schädigung (abgerundetes, granuläres oder hyperkontrahiertes Aussehen).
Aktionspotentiale (positive Kontrolle der Vitalität)
In der Strom-Klemm-Messung aufgezeichnete Aktionspotentiale liefern die direkteste Beurteilung der elektrischen Vitalität eines isolierten Kardiomyozyten. Lösen Sie Aktionspotentiale durch 1 ms lange depolarisierende Stromimpulse (0,4–1 nA, etwa 30 % über der Schwelle) aus. Stellen Sie die Stimulationsfrequenz auf 0,3 Hz ein. Nehmen Sie die Aktionspotentiale nach etwa 5 Minuten auf, sobald die Wellenform einen stabilen, stationären Zustand erreicht hat. Bei einem gut isolierten Kardiomyozyten junger N. furzeri ist das Ruhemembranpotential (RMP) stabil und liegt nahe bei -85 mV (Abbildung 4B). Das Aktionspotential überschwingt bis etwa +30 mV, wodurch ein klarer Alles-oder-Nichts-Anstieg entsteht (Abbildung 4A). Typische Merkmale des Aktionspotentials umfassen eine APD90 von etwa 530 ms, eine APD50 von etwa 460 ms und eine maximale Anstiegsgeschwindigkeit (dV/dtmax) von etwa 50 V s-1. Ein depolarisiertes RMP (weniger negativ als etwa -70 mV), vermindertes oder fehlendes Überschwingen, verlangsamte Anstiegsgeschwindigkeit oder die Unfähigkeit, in den meisten Fällen eine wiederholte Aktivität mit stabiler Amplitude und Dauer aufrechtzuerhalten, weist auf eine beschädigte oder schlecht geklammerte Zelle hin, die nicht zur Beurteilung der Aktionspotentialmerkmale verwendet werden kann.
Schneller Natriumstrom (INa)
Der schnelle Natriumstrom liegt der Aufwärtsflanke des Aktionspotentials zugrunde und ist ein empfindlicher Marker für die Integrität der Membran und die Qualität der Spannungsfixierung. Unter Verwendung der auf Cs+ basierenden Lösungen in Tabelle 1 wird INa als großer, schnell aktivierender und inaktivierender Innenstrom registriert (Abbildung 5A). In gesunden jungen Myozyten wird INa nahe -60 mV nachweisbar, erreicht eine maximale Stromdichte von etwa -13 pA pF−1 bei etwa -30 mV und kehrt nahe +20 mV um (Abbildung 5B). Die Inaktivierungszeitkonstante sinkt von ~8 ms bei -50 mV auf ~2 ms bei -10 mV, und die Halbinaktivierungsspannung liegt nahe -70 mV13 (Abbildung 5C,D). Eine deutlich verminderte Amplitude des Spitzenstroms, ein verschobenes oder unscharf definiertes Umkehrpotential oder verlangsamte und verzerrte Aktivierungs-/Inaktivierungskinetik weisen auf unzureichende Spannungskontrolle (Fehler durch Serienwiderstand) oder beeinträchtigte Membranintegrität hin, nicht jedoch auf die Isolierung selbst.
Calciumströme (ICaL und ICaT)
Aufgezeichnet mit den Calciumstrom-Lösungen (Tabelle 1) zeigen N. furzeri-Kardiomyozyten einen netto einwärts gerichteten Calciumstrom mit zwei Komponenten. Der Strom beginnt sich bei etwa -60 mV zu aktivieren, was auf eine T-Typ-Komponente (ICaT) neben dem dominierenden L-Typ-Strom (ICaL) hinweist, und erreicht eine maximale Dichte von etwa -7 pA pF−1 zwischen -10 mV und 0 mV (Abbildung 6B). Die Identität der Komponenten wird pharmakologisch bestätigt: 10 µM Nifedipin blockieren den Strom teilweise, während 100 µM eine nahezu vollständige Hemmung bewirken (Abbildung 6A). Es ist wichtig anzumerken, dass eine Nifedipin-Konzentration von 100 µM nur in bestimmten Kontrollexperimenten verwendet wurde, um zu überprüfen, ob der verbleibende Strom nach 10 µM Nifedipin vollständig gegenüber höheren Konzentrationen empfindlich ist und somit als ICaT identifiziert werden konnte. Für Standard-Messungen reichen 50 µM aus, um den gesamten ICa-Strom vollständig zu blockieren. Die ICaL-Komponente wird definiert als der Strom, der von einem Haltepotential von -50 mV aus ausgelöst wird, und ICaT ergibt sich als Differenz zwischen dem Strom, der von -90 mV aufgezeichnet wurde, und dem isolierten ICaL (Abbildung 6C,D). Ein klar abgegrenzter, Nifedipin-empfindlicher einwärts gerichteter Strom mit den beschriebenen Aktivierungs- und Spitzenstromspannungen weist auf gut erhaltene Calciumkanäle hin.
Verzögerte rectifizierende Kaliumströme (IKr und IKs)
Das Vorhandensein von nach außen gerichteten Kaliumströmen bestätigt, dass die Repolarisierungsausrüstung nach der Isolation funktionsfähig bleibt. Unter den pharmakologischen Bedingungen (Tabelle 2) führt eine Depolarisation auf -40 mV und darüber in allen gesunden Zellen zu einem nach außen gerichteten Strom. Mit selektiven Blockern lassen sich zwei Komponenten unterscheiden: der langsame verzögerte Rektifikationsstrom (IKs), empfindlich gegenüber Chromanol 293B (20 µM), und der schnelle verzögerte Rektifikationsstrom (IKr), empfindlich gegenüber E4031 (1 µM) (Abbildung 7A,B). In Myozyten junger Fische erreichen sowohl IKs als auch IKr bei starker Depolarisation eine Dichte von etwa 1 pA pF−1 (Abbildung 7C,D). Das Vorhandensein beider Komponenten des verzögerten Rektifikationsstroms, die bei der humanen ventrikulären Repolarisation eine wesentliche Rolle spielen, jedoch in Standard-Rodent-Modellen geringer zum Tragen kommen14, dient als zentrale Bestätigung dafür, dass die aufgezeichnete Zelle ein N. furzeri-Ventrikelmyozyt mit intakten repolarisierenden Strömen ist.
Hintergrund-inward-Rektifier-Strom (IK1)
Der Hintergrund-Inward-Rectifier-Strom bestimmt das Ruhe-Membranpotenzial und lässt sich bequem mittels eines Spannungsanstiegsprotokolls von +60 auf -120 mV bewerten (Abbildung 7E). In einer gesunden Zelle kehrt sich IK1 nahe -80 mV um, was mit dem im Strom-Klemm-Modus gemessenen RMP übereinstimmt. Bei Potentialen positiv zum Umkehrpotenzial zeigt IK1 eine charakteristische outward-wandige Erhebung, die bei mehreren pA pF−1 ihr Maximum erreicht (Abbildung 7F). Ein Umkehrpotenzial, das weit von -80 mV entfernt liegt, oder ein großer Ruhestromwechsel weisen auf eine schlechte Dichtung oder eine beschädigte Membran hin.
Insgesamt gilt eine Präparation als erfolgreich, wenn sie langgestreckte, stabförmige Zellen mit glatten, intakten Membranen ergibt, die Gigaohm-Dichtungen bilden und die oben beschriebenen charakteristischen Aktionspotenzial-Wellenformen sowie Stromsignatur aufweisen. Die Gewinnung mehrerer solcher Zellen aus einem einzigen Herz bestätigt, dass die enzymatische Dissoziation sowohl die Membranintegrität als auch das vollständige Repertoire kardialer Ionenkanäle bewahrt hat, die für nachgeschaltete elektrophysiologische Untersuchungen erforderlich sind.
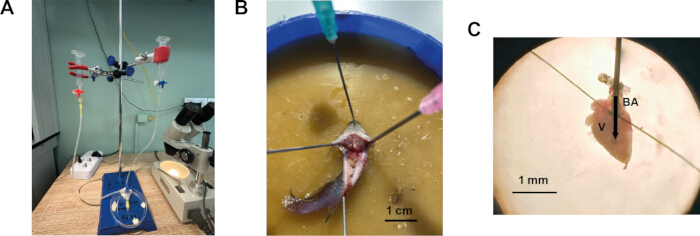
Abbildung 1: Verfahren zur Isolierung ventrikulärer Kardiomyozyten aus dem Herzen von N. furzeri. (A) Für kleine Fische modifiziertes System zur Kardiomyozyten-Isolierung. (B) Fisch in einer Präparationswanne fixiert, Bauchseite nach oben, mit quer und längs eingeschnittener Peritonealhaut. (C) Herz von N. furzeri kaniert und zur Perfusion fixiert. BA – Bulbus arteriosus, V – Ventrikel. Der Pfeil zeigt die Strömungsrichtung der Lösung in den Ventrikel an. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
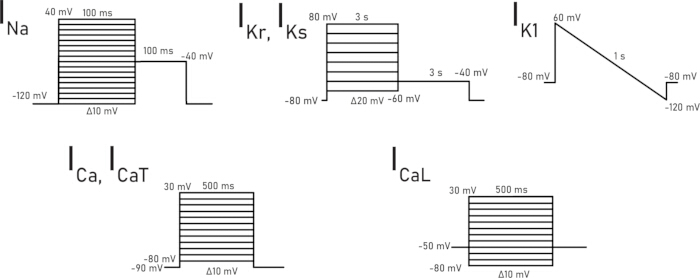
Abbildung 2: Spannungs-Klemm-Protokolle, die zur Aufzeichnung jedes spezifischen ionischen Stroms verwendet wurden. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
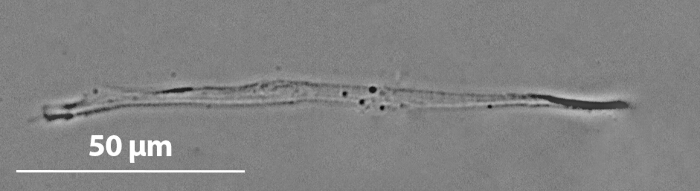
Abbildung 3: Repräsentatives Mikrofotografie eines ventrikulären Kardiomyozyten von jungen N. furzeri. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
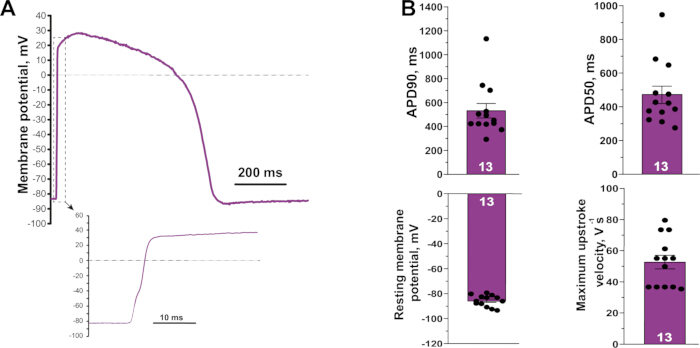
Abbildung 4: Repräsentatives Aktionspotential, aufgezeichnet von einem ventrikulären Kardiomyozyten eines jungen N. furzeri. (A) Aktionspotential-Wellenform. Der Ausschnitt zeigt den schnellen Anstieg auf einer vergrößerten Zeitskala. (B) Aktionspotential-Charakteristika, gemessen an isolierten jungen Myozyten (Ruhemembranpotential, APD50, APD90 und maximale Anstiegsgeschwindigkeit). (N = 7, n = 13). Die Werte sind als Mittelwert ± Standardfehler des Mittelwerts dargestellt. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
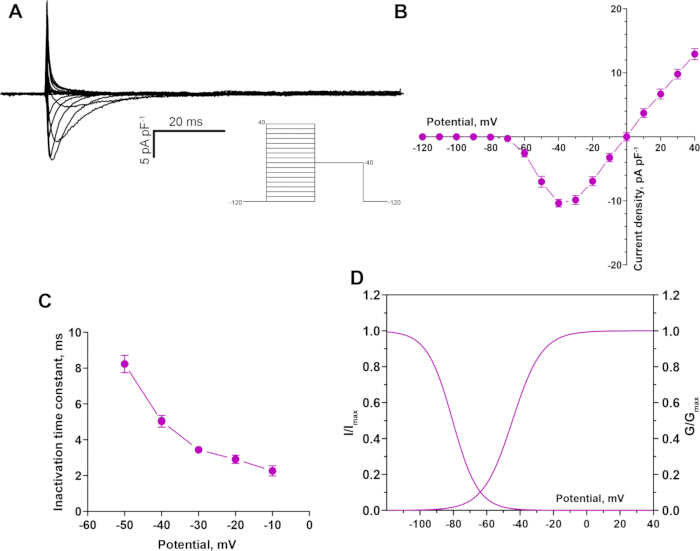
Abbildung 5: Schneller Natriumstrom (INa) aus einem ventrikulären Kardiomyozyten eines jungen N. furzeri aufgezeichnet. (A) Repräsentative Aufzeichnung des INa. (B) Strom-Spannungs-Beziehung für INa, aktivierend bei etwa -60 mV mit einem Maximum bei etwa -30 mV. (C) Spannungsabhängigkeit der Inaktivierungszeitkonstante. (D) Steady-State-Aktivierungs- und Inaktivierungskurven. (N = 5, n = 11). Die Werte sind als Mittelwert ± S.E.M. dargestellt. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
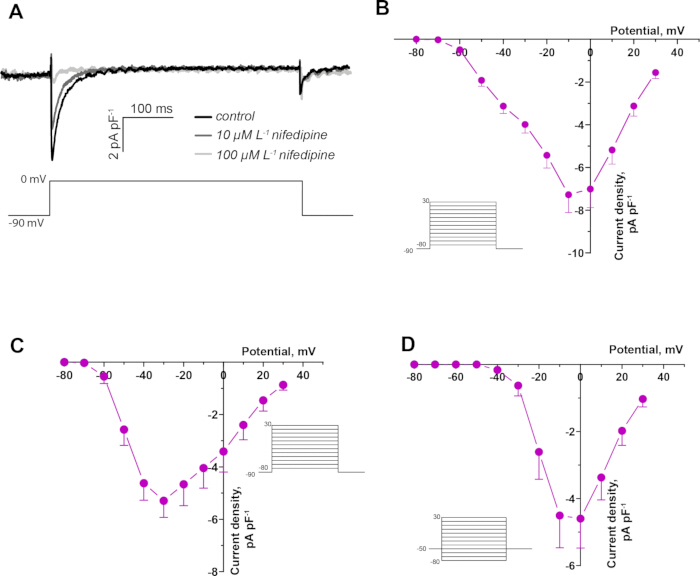
Abbildung 6: Kalziumströme in einem jungen N. furzeri-ventrikulären Kardiomyozyten. (A) Repräsentative Aufzeichnung des netto Kalziumstroms unter Kontrollbedingungen sowie in Gegenwart von 10 µM und 100 µM Nifedipin in einem jungen N. furzeri-ventrikulären Kardiomyozyten. (B) Strom-Spannungs-Beziehung für den netto Kalziumstrom, der nahe -60 mV aktiviert wird und ein Maximum nahe -10 mV aufweist (N = 5, n = 11). (C) Strom-Spannungs-Beziehung für die T-Typ-Komponente (ICaT) (N = 3, n = 6). (D) Strom-Spannungs-Beziehung für die L-Typ-Komponente (ICaL) (N = 5, n = 7). Die Werte sind als Mittelwert ± S.E.M. dargestellt. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
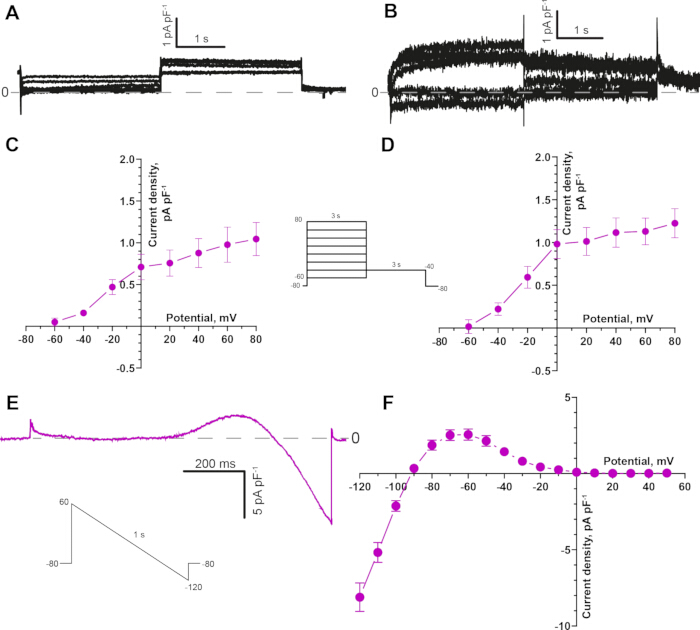
Abbildung 7: Kaliumströme in ventrikulären Kardiomyozyten junger N. furzeri. (A) Repräsentative Aufnahme des langsamen verzögerten Rektifikationsstroms (IKs), isoliert in Gegenwart von E4031 (1 µM) zur Blockade von IKr. (B) Repräsentative Aufnahme des schnellen verzögerten Rektifikationsstroms (IKr), isoliert in Gegenwart von Chromanol 293B (20 µM) zur Blockade von IKs. (C) Strom-Spannungs-Beziehung für den IKs-Strom (N = 5, n = 9). (D) Strom-Spannungs-Beziehung für den IKr-Strom (N = 5, n = 10). (E) Repräsentativer IK1-Strom, aufgezeichnet mit einem absteigenden Spannungsanstiegsprotokoll von +60 mV auf -120 mV. (F) Strom-Spannungs-Beziehung für IK1, mit Umkehrung nahe -80 mV (N = 5, n = 18). Die Werte sind als Mittelwert ± S.E.M. dargestellt. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
| Lösungsname | Reagenz und Konzentration (mM) |
| Extrazelluläre Lösung für Aktionspotenzial und Kaliumströme | 150 NaCl, 3 KCl, 1,2 MgCl2, 1,8 CaCl2, 10 Glukose, 10 HEPES; pH 7,4 mit NaOH eingestellt |
| Intrazelluläre Lösung für Aktionspotenzial und Kaliumströme | 140 KCl, 1 MgCl2, 5 EGTA, 4 MgATP, 0,03 Na2GTP und 10 HEPES; pH 7,2 mit KOH eingestellt |
| Extrazelluläre Lösung für Natriumstrom | 20 NaCl, 123 CsCl, 1 MgCl2, 1,8 CaCl2, 10 Glukose und 10 HEPES; pH 7,2 mit CsOH eingestellt |
| Intrazelluläre Lösung für Natriumstrom | 5 NaCl, 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0,03 Na2GTP und 15 TEA; pH 7,2 mit CsOH eingestellt |
| Extrazelluläre Lösung für Calciumstrom | 150 NaCl, 3 CsCl, 1 MgCl2, 1,8 CaCl2, 10 Glukose und 10 HEPES; pH mit NaOH auf 7,2 eingestellt |
| Intrazelluläre Lösung für Calciumstrom | 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0,03 Na2GTP und 15 TEA; pH 7,2 mit CsOH eingestellt. |
Tabelle 1: Zusammensetzung der extrazellulären und intrazellulären Lösungen für die Patch-Clamp-Aufzeichnung von Aktionspotentialen und ionischen Strömen.
| Aufgezeichneter Strom | Blockerkonzentration (μM) | |
| 1. | Aktionspotential | Keine Blocker erforderlich |
| 2. | IKr | 50 Nifedipin, 20 Chromanol 293B |
| 3. | IKs | 50 Nifedipin, 1 E4031 |
| 4. | IK1 | 50 Nifedipin, 20 Chromanol 293B, 1 E4031 |
| 5. | INa | 50 Nifedipin |
| 6. | ICaT | 1 Tetrodotoxin |
| 7. | ICaL | 1 Tetrodotoxin |
Tabelle 2: Pharmakologische Blocker, die den extrazellulären Lösungen zur selektiven Ableitung eines bestimmten ionischen Stroms hinzugefügt wurden.
Diskussion
Eine erfolgreiche Isolierung lebensfähiger ventrikulärer Kardiomyozyten aus N. furzeri stellt einen methodischen Fortschritt dar, der eine direkte elektrophysiologische Charakterisierung altersbedingter kardialer Umbauprozesse auf zellulärer Ebene ermöglicht. Diese Auflösung ist entscheidend, um die spezifischen ionischen Mechanismen zugrunde liegender altersbedingter Herzfunktionsstörungen zu identifizieren, die allein mit Organ- oder Ganzherz-Präparationen nicht unterscheidbar sind. Die Untersuchung nativer Kardiomyozyten liefert direkte Einblicke, wie das Altern grundlegende elektrophysiologische Eigenschaften verändert, einschließlich ionischer Ströme und Aktionspotential-Charakteristika.
Mehrere Schritte im vorliegenden Protokoll sind entscheidend, um hochwertige, für die Patch-Clamp-Technik geeignete Kardiomyozyten aus N. furzeri zu gewinnen. Zunächst variiert die Enzymaktivität zwischen Chargen, weshalb die Konzentrationen von Kollagenase und Trypsin bei jeder Präparation angepasst werden sollten. Eine Überverdauung führt zu Schäden an der Membran und zum Verlust der Ionenkanalfunktion, während eine Unterdigestion nur wenige Zellen liefert und einen stabilen Pipetten-Membran-Kontakt verhindert. Die isolierten Zellen behalten eine langgestreckte, stabförmige Morphologie mit einer glatten, intakten Sarkolemma bei, was auf die Erhaltung der zellulären Integrität während der Isolation hinweist; bei einigen Zellen konnte unter dem Lichtmikroskop außerdem eine schwache streifige Anordnung der Sarkomere erkennbar sein. Diese Erhaltung ist entscheidend für verlässliche elektrophysiologische Daten, da beschädigte Zellen häufig veränderte Ionenkanalfunktionen und beeinträchtigte Membraneigenschaften aufweisen. Zweitens stellt die geringe Größe des N. furzeri-Herzens eine technische Herausforderung dar, die eine sorgfältige Optimierung der enzymatischen Isolation und eine präzise manuelle Dissektion erfordert, und die Zellausbeute pro Herz ist geringer als bei Säugetierpräparationen. Außerdem gehört eine inkonsistente Perfusion oder ein Leck am kanierten Herzen zu den häufigsten Problemen, die während des Verfahrens auftreten können. Üben Sie die Kanülierung an mehreren Herzen, um einen gleichmäßigen Zugangswinkel und -tiefe zu entwickeln. Stellen Sie sicher, dass sich an der Nadelspitze keine Luftblasen befinden und dass der Bulbus sicher abgebunden ist, ohne das Gewebe zu durchtrennen. Bestätigen Sie außerdem vor Beginn der Aufzeichnung, dass die Zellen stabförmig sind und eine glatte, intakte Membran aufweisen (bei einigen Zellen kann eine schwache Streifung sichtbar sein). Runde oder granuläre Zellen sollten verworfen werden. Prüfen Sie, ob alle Lösungen frisch zubereitet und korrekt auf den pH-Wert eingestellt wurden. Stellen Sie sicher, dass der Pipettenwiderstand im empfohlenen Bereich liegt (2,0–3,0 MΩ). Überprüfen Sie während der Aufzeichnung die oben beschriebenen Verstärkerparameter; der Zugangswiderstand nach Kompensation sollte 10–12 MΩ nicht überschreiten; das Ruhepotenzial ist im Current-Clamp-Modus weniger negativ als −70 mV, und die Zelle bildet eine stabile Gigaseal.
Trotzdem liefert das Protokoll zuverlässig hochwertige Zellen, die für Patch-Clamp-Aufzeichnungen und möglicherweise andere Anwendungen geeignet sind, und etabliert damit N. furzeri als praktikables Modell der zellulären kardialen Alterung. Da N. furzeri klare Vorteile gegenüber traditionellen Säugetiermodellen für die Untersuchung der kardialen Alterung bietet, ermöglicht es als kürzestlebiger Wirbeltier, der in Gefangenschaft gezüchtet werden kann, Längsschnittstudien zur kardialen Alterung innerhalb praktikabler Zeiträume im Vergleich zu Mausmodellen, die 18–24 Monate benötigen, um ein vergleichbares biologisches Alter zu erreichen15. Trotz seiner kurzen Lebensdauer zeigt es zentrale Merkmale der kardialen Alterung bei Wirbeltieren, einschließlich elektrophysiologischer Remodellierung, erhaltener Aktionspotenzialdauer bei vermindelter Aufwärtsgeschwindigkeit und einer Herunterregulation wichtiger ionischer Ströme6.
Vergleich mit bestehenden Ansätzen zur Kardiomyozyten-Isolierung.
Die enzymatische Isolierung lebensfähiger ventrikulärer Kardiomyozyten ist eine etablierte Voraussetzung für die Einzelzell-Elektrophysiologie bei einer Vielzahl von Arten. Bei Säugetieren beruht die Goldstandard-Methode auf der retrograden aortalen Perfusion des intakten Herzens mit einer calciumfreien Pufferlösung, gefolgt von einer enzymhaltigen Lösung, typischerweise Kollagenase und Proteasen, unter kontrolliertem Druck und Temperatur. Diese Strategie ermöglicht eine gleichmäßige Zufuhr der Enzyme über das koronare Gefäßsystem, eine effiziente Ausspülung des Blutes und eine relativ schonende Dissoziation des Myokards, wodurch große Mengen stabförmiger Myozyten gewonnen werden, die sich für hochauflösende Patch-Clamp-Aufzeichnungen eignen16,17.
Bei Knochenfischen hingegen erfordern die anatomische Organisation des Herzens und das Fehlen eines koronaren arteriellen Systems, das mit dem von Säugetieren vergleichbar wäre, wesentliche Modifikationen. Bei Zebrafischen, einem der am häufigsten verwendeten Kleinfischmodelle in der kardiovaskulären Forschung, basiert die erfolgreiche Isolierung ventrikulärer Kardiomyozyten auf der Verdauung des intakten Herzens in einer enzymatischen Lösung über einen relativ langen Zeitraum8,9. In diesen Protokollen wird das entfernte Herz direkt in einen Tropfen oder ein geringes Volumen der Enzymlösung überführt, wo es bei Raumtemperatur oder einer artgemäßen Temperatur inkubiert wird, gefolgt von einer mechanischen Trituration, um einzelne Zellen freizusetzen. Es wurde gezeigt, dass dieser Ansatz lebensfähige, quergestreifte Kardiomyozyten liefert, die die Ableitung wesentlicher ionischer Ströme ermöglichen11.
Trotz ihrer Nützlichkeit weist die Batch-Verdauungsstrategie mehrere Einschränkungen auf, wenn sie auf sehr kleine oder besonders empfindliche Herzen angewendet wird. Erstens ist die enzymatische Einwirkung weniger kontrollierbar: Die äußeren Schichten des Ventrikels sind einer höheren effektiven Enzymkonzentration über einen längeren Zeitraum ausgesetzt als die inneren Schichten, was zu einer heterogenen Verdauung und einem Gemisch unter- und überverdauter Zellen führen kann. Zweitens erhöht ein verlängerter Aufenthalt in der Enzymlösung das Risiko einer Überverdauung, insbesondere wenn die Enzymchargen in ihrer Aktivität variieren oder das Herz außergewöhnlich klein ist. Drittens beruht die Blutwäsche hauptsächlich auf passiver Diffusion und sanftem manuellem Spülen, was möglicherweise nicht ausreicht, um die engen Lumenräume eines winzigen Teleost-Ventrikels vollständig zu reinigen.
Wir behielten die allgemeinen Prinzipien einer calciumfreien Behandlung, enzymatischen Verdauung und schonenden Trituration bei. Die Studie modifizierte jedoch die Zufuhr der Lösungen, indem der Bulbus arteriosus kaniert und das ventrikuläre Lumen direkt perfundiert wurde. Dieser Ansatz ermöglicht es dem Forscher, das Blut aus den ventrikulären Hohlräumen vor der Verdauung auszuwaschen, zwischen Lösungen zu wechseln, ohne das Herz zu transferieren, und die enzymatische Behandlung abzubrechen, sobald die ventrikuläre Wand beginnt, sich zu lösen. Diese Modifikationen sind besonders wichtig für das kleine und empfindliche N. furzeri-Herz, bei dem eine verlängerte Einweichung in Enzymlösung zu übermäßiger Verdauung und verminderten Zellqualität führen kann.
Zukünftige Anwendungen
Die vorliegende Isolationsmethode eröffnet mehrere Ansatzpunkte für zukünftige Forschung. Erstens ermöglicht sie die systematische Charakterisierung altersabhängiger Veränderungen in der Aktionspotential-Morphologie sowie in der Dichte, Kinetik und spannungsabhängigen Eigenschaften ionischer Ströme in N. furzeri-Kardiomyozyten, was die jüngsten molekularen und histologischen Beschreibungen der kardialen Alterung bei dieser Art ergänzt2,3,4,5. Zweitens kann das Protokoll mit pharmakologischen Werkzeugen kombiniert werden, um zu untersuchen, wie Interventionen, die Lebensdauer oder Gesundheitsdauer modulieren, die kardiale Elektrophysiologie auf Einzelzell-Ebene beeinflussen. Drittens können isolierte N. furzeri-Kardiomyozyten für Anwendungen jenseits von Patch-Clamp-Aufzeichnungen genutzt werden, einschließlich molekularer Analysen (qPCR, RNA-Seq, Proteomik) altersbedingter Veränderungen in der Ionenkanalexpression und posttranslationalen Modifikationen, Immunzytochemie sowie hochauflösender Bildgebung der Sarkomer-Organisation. Schließlich kann der hier beschriebene methodische Rahmen auf andere kleine Knochenfisch-Modelle mit ähnlicher Herzgröße und -anatomie übertragen werden, wodurch die Eignung von N. furzeri als translationsorientiertes Modell für die Forschung zur kardialen Alterung erweitert wird.
Offenlegungen
Die Autoren erklären, dass sie keine konkurrierenden finanziellen Interessen haben.
Danksagungen
Diese Arbeit wurde von der Russischen Wissenschaftsstiftung (Grant Nr. 22-14-00075) unterstützt. Die Autoren danken Andrei Nikiforov für seine Unterstützung bei der Zucht und Pflege der in dieser Studie verwendeten Nothobranchius furzeri-Population.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 1-mL-Insulinspritze | Med Aim | 939863 | |
| 10-mL-Spritzen | Changzhou Jinlong Medical Plastic Appliancy Co | - | |
| 100-mm-Petri-Schale | SARSTEDT | 83.3902 | |
| 100 μL-Mikropipette | Thermo Scientific | 4640040 | |
| 35-mm-Zellkulturschale | SPL LIFE SCIENCES | 11035 | |
| Drei-Wege-Injektionshahn | iLife Medical Devices Pvt. Ltd | 902.07.10 | |
| 500-μL-Röhrchen | Eppendorf | EP0030124537-500EA | |
| 5–200-μL-Pipettenspitze | Deltalab | 200009 | |
| Verstärker | Molecular devices | Axopatch 200B | |
| Blu Tack | BOSTIK | 202401906 | |
| Borosilikatglas-Kapillaren | Sutter Instrument | B150-110-10 | |
| Rinder-Serumalbumin | Dia-M | 9048-46-8 BSA.0100 | |
| CaCl2*2H20 | Sigma-Aldrich | C5080 | |
| Chromanol 293B | Sigma-Aldrich | C2615 | |
| Kollagenase Typ 1A | Sigma-Aldrich | C9891 | |
| CsCl | Acros Organics | 422855000 | |
| CsOH | Sigma-Aldrich | 232068 | |
| Dosier-Nadel (32G) | BSTEAN | 744370739503 | |
| E4031 | MedChemExpress | HY-15551 | |
| EGTA | Sigma-Aldrich | E-4378 | |
| Glukose | helicon | Solarbio G8150-500G | |
| HEPES | Sigma-Aldrich | H3375 | |
| Invertiertes Mikroskop | Nikon | - | Eclipse Ti-S |
| KCl | Chimmed | 00000000089 | |
| KH2PO4 | helicon | SRL-90654-500G | |
| KOH | helicon | SRL-38630-1KG | |
| MgATP | MACKLIN | A922363 | |
| MgCl2*6H2O | helicon | Solarbio M8161 | |
| MgSO4*7H2O | helicon | SRL-74440-500G | |
| Mikromanipulator | RWD | MM-500 | |
| Augenchirurgische Mikrozange | CILITA | F-111T | |
| Augenchirurgische Mikroschere | CILITA | S-056S | |
| Na2GTP | Sigma-Aldrich | 51120 | |
| NaCl | helicon | H-1418-1.0 | |
| NaOH | helicon | SRL-13913-500G | |
| Nifedipin | Sigma-Aldrich | N7634 | |
| Perfusionssystem | Biotechnologies | Bio_4_p | |
| Pipettenzieher | Narishige Group | PC-10 | |
| Silikonrohre (d = 8 mm) | MEDSIL | TY 9398-004-18037666-94 | |
| Stativ | NV-lab | 00000034085 | |
| Stereo-Mikroskop | Labkompleks LCC | 10557 | |
| Taurin | Acros Organics | 166545000 | |
| Tetraethylammoniumchlorid (TEA) | Merck | 822148 | |
| Tetrodotoxin | Tocris Bioscience | 1078 | |
| Trypsin | Sigma-Aldrich | T0303 | |
| WinWCP-Software | University of Strathclyde | - | V5.7.5 |
Referenzen
- Nakou E et al. Healthy aging and myocardium: a complicated process with various effects in cardiac structure and physiology. Int J Cardiol. 2016;209:167-175.
- Ma X et al. Nothobranchius furzeri: a vertebrate model for studying cardiac aging and cellular senescence. NPJ Aging. 2025;11(1):63.
- Valdesalici S, Cellerino A. Extremely short lifespan in the annual fish Nothobranchius furzeri. Proc R Soc Lond B Biol Sci. 2003;270(Suppl 2):S189-191.
- Platzer M, Englert C. Nothobranchius furzeri: a model for aging research and more. Trends Genet. 2016;32(9):543-552.
- Otsuka T, Matsui H. The African turquoise killifish (Nothobranchius furzeri): a model of age-related diseases and declining regenerative capability across multiple organs. Mech Ageing Dev. 2025;226:112087.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Abramochkin DV. Aging-associated remodeling of ionic currents in ventricular myocytes of seasonal fish Nothobranchius furzeri. Comp Biochem Physiol A Mol Integr Physiol. 2026;317:112013.
- Sander V et al. Isolation and in vitro culture of primary cardiomyocytes from adult zebrafish hearts. Nat Protoc. 2013;8(4):800-809.
- Singareddy SS, McClenaghan C, Roessler HI, Tryon R, Nichols CG. Isolation of cardiac and vascular smooth muscle cells from adult, juvenile, larval and embryonic zebrafish for electrophysiological studies. J Vis Exp. 2022;(180):63225.
- Vornanen M. Sarcolemmal Ca influx through L-type Ca channels in ventricular myocytes of a teleost fish. Am J Physiol Regul Integr Comp Physiol. 1997;272(5):R1432-R1440.
- Polačik M, Blažek R, Reichard M. Laboratory breeding of the short-lived annual killifish Nothobranchius furzeri. Nat Protoc. 2016;11(8):1396-1413.
- Dzhumaniiazova I, Vornanen M, Pustovit OB, Voronkov YI, Abramochkin DV. Effects of tetrodotoxin and ranolazine on the late INa of zebrafish ventricular myocytes. J Evol Biochem Phys. 2022;58(Suppl 1):S22-S30.
- Brette F et al. Characterization of isolated ventricular myocytes from adult zebrafish (Danio rerio). Biochem Biophys Res Commun. 2008;374(1):143-146.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Pustovit OB, Abramochkin DV. Reduction of fast sodium current in the myocardium of fish (N. furzeri) during aging. Bull Exp Biol Med. 2026;181(1):109-116.
- Joukar S. A comparative review on heart ion channels, action potentials and electrocardiogram in rodents and human: extrapolation of experimental insights to clinic. Lab Anim Res. 2021;37(1):25.
- Holtze S et al. Alternative animal models of aging research. Front Mol Biosci. 2021;8.
- Wolska BM, Solaro RJ. Method for isolation of adult mouse cardiac myocytes for studies of contraction and microfluorimetry. Am J Physiol Heart Circ Physiol. 1996;271:H1250-H1255.
- Louch WE, Sheehan KA, Wolska BM. Methods in cardiomyocyte isolation, culture, and gene transfer. J Mol Cell Cardiol. 2011;51(3):288-298.
Nachdrucke und Genehmigungen
Dieser Artikel wurde veröffentlicht
Video demnächst verfügbar