Los niveles de óxido nítrico (NO), molécula de señalización celular inflamatoria, se analizan comúnmente utilizando el reactivo de Griess. En este protocolo, hemos creado un ensayo de Griess modificado que utiliza tejido cerebral vivo de Drosophila para detectar la secreción de NO en un método simple, cuantificable y altamente repetible.
Artículo de método
Nuevo ensayo cuantitativo de tejido completo de los niveles de óxido nítrico en la respuesta neuroinflamatoria de Drosophila
En este artículo
Resumen
Resumen
La neuroinflamación es una compleja respuesta inmunitaria innata vital para el funcionamiento saludable del sistema nervioso central (SNC). En condiciones normales, una intrincada red de inductores, detectores y activadores responde rápidamente al daño neuronal, la infección u otras infracciones inmunitarias. Esta inflamación de las células inmunitarias está íntimamente asociada a la patología de los trastornos neurodegenerativos, como la enfermedad de Parkinson (EP), la enfermedad de Alzheimer y la ELA. En estados patológicos comprometidos, la inflamación crónica, destinada a minimizar el daño neuronal, puede conducir a una sobreexcitación de las células inmunitarias, lo que en última instancia resulta en la exacerbación de la progresión de la enfermedad. Por ejemplo, la pérdida de neuronas dopaminérgicas en el mesencéfalo, un sello distintivo de la EP, se acelera por la activación excesiva de la respuesta inflamatoria. Aunque se desconoce en gran medida la causa de la enfermedad de Parkinson, la exposición a toxinas ambientales se ha implicado en la aparición de casos esporádicos. Por ejemplo, se ha demostrado que el herbicida paraquat induce una patología similar a la parkinsoniana en varios modelos animales, incluida la Drosophila melanogaster. Aquí, hemos utilizado la respuesta inmune innata conservada en Drosophila para desarrollar un ensayo capaz de detectar niveles variables de óxido nítrico, una molécula de señalización celular crítica para la activación de la cascada de respuesta inflamatoria y la muerte de las neuronas dirigidas. Utilizando el daño neuronal inducido por paraquat, evaluamos el impacto de estas agresiones inmunitarias en la estimulación neuroinflamatoria mediante el uso de un nuevo ensayo cuantitativo. Se extraen cerebros enteros de moscas expuestas a neurotoxinas o de genotipos que elevan la susceptibilidad a la neurodegeneración, y luego se incuban en medios de cultivo celular. Luego, utilizando los principios de la reacción del reactivo de Griess, podemos detectar cambios menores en la secreción de óxido nítrico en medios de cultivo celular, creando esencialmente un modelo primario de tejido vivo en un procedimiento simple. La utilidad de este modelo se ve amplificada por la robusta complejidad genética y molecular de Drosophila melanogaster, y este ensayo puede modificarse para que sea aplicable a otros tejidos de Drosophila o incluso a otros modelos de inflamación de organismos enteros pequeños.
Introducción
La neuroinflamación es una respuesta inmunitaria compleja que se ha demostrado que está íntimamente asociada con la patología de una amplia gama de enfermedades, la mayoría de las cuales son trastornos neurodegenerativos. En condiciones basales, esta red multifacética de células inmunitarias peripatéticas mantiene la salud de los tejidos a través de su rápida respuesta a infecciones, placas o lesiones1,2. Una respuesta neuroinflamatoria del sistema nervioso central de los mamíferos puede desencadenarse debido a agresiones menores, como el estrés oxidativo celular asociado con el envejecimiento normal, o agresiones importantes, como el daño neuronal que se produce por la exposición aguda a una toxina química. Cuando se produce esta inducción, las células de vigilancia fagocítica conocidas como microglía se activan y migran al sitio del daño celular neuronal. Estas células inmunitarias tipo carroñero, que son similares a las células de macrófagos que existen en la periferia, comienzan una sofisticada cascada de señalización con la neurona dañada, así como con los astrocitos, apoyando a las células gliales que actúan junto a la microglía para la respuesta microglial típicamente robusta3-7. Una vez activada, la microglía inicia un proceso de inflamación para estimular el sistema inmunitario y favorecer la reparación de los tejidos1,8.
En condiciones de insulto sostenido, como en enfermedades neurodegenerativas como la enfermedad de Parkinson (EP), la enfermedad de Alzheimer y la esclerosis lateral amiotrófica, la inflamación crónica también causa un daño significativo al tejido sano. Estudios recientes han demostrado que esta respuesta persistente y agresiva del sistema inmunológico puede, de hecho, estar conduciendo a una reacción sobreexcitatoria que exacerba el estado de la enfermedad en lugar de mejorar la condición9-11.
En Drosophila melanogaster, la respuesta inmune innata está genéticamente bien conservada. Aunque carece de una verdadera red inmunitaria adaptativa, Drosophila mantiene un sofisticado sistema inmunitario innato que contiene una clase de fagocitos conocidos como hemocitos. Estas células inmunitarias han sido previamente identificadas como células similares a los macrófagos que migran al sitio de la lesión12,13 y sufren fagocitosis durante el choque séptico14, la introducción de un parásito15 o la infección viral16.
Es importante destacar que, al igual que los macrófagos de los mamíferos, los hemocitos fagocíticos expresan óxido nítrico sintasa (NOS) y producen óxido nítrico (NO), un componente de señalización crítico de la inmunidad contra Drosophila 15,16. Todos estos estudios, sin embargo, solo han podido demostrar las respuestas de los hemocitos durante el desarrollo embrionario y en las larvas.
Nuestro laboratorio ha observado una neuroinflamación robusta mediada por hemocitos en cerebros adultos de Drosophila, un fenómeno previamente desconocido17. Esta respuesta fue inducida a través de la exposición al tóxico paraquat. Los estudios epidemiológicos realizados por los Institutos Nacionales de Salud han identificado el herbicida ampliamente utilizado como un factor de riesgo potencial en la aparición de la EP en los seres humanos18. Las investigaciones que investigaban el tratamiento con paraquat en modelos de mamíferos ya habían validado sus propiedades neurotóxicas y habían demostrado que el herbicida provocaba síntomas parkinsonianos, como anomalías motoras y pérdida selectiva de neuronas19-21. En Drosophila, el tratamiento con paraquat conduce a una amplia gama de fenotipos conductuales parkinsonianos, así como a la muerte de las neuronas dopaminérgicas consistentes con la patología de la EP22. Aunque los mecanismos y factores genéticos asociados con esta respuesta neuroinflamatoria aún no se han dilucidado completamente en Drosophila, hemos observado una inducción conservada de NOS durante la neurodegeneración.
Utilizando este método, hemos detectado adicionalmente una respuesta neuroinflamatoria similar, aunque menos dramática, utilizando genotipos mutantes con sensibilidad neurotóxica conocida. Codificada por el gen Punch, la ciclohidrolasa GTP es la primera proteína limitante de la velocidad en la biosíntesis de BH4, que luego actúa como un cofactor necesario para NOS23,24. La mutación de pérdida de función PuZ22 causa una disminución en la respuesta inflamatoria y una mayor susceptibilidad al paraquat25. Con este protocolo, pudimos cuantificar modificaciones relativamente sutiles de los niveles de óxido nítrico inducidas por esta variación genética.
Para detectar NO en nuestras muestras, utilizamos el reactivo de Griess, un método colorimétrico ampliamente aceptado para medir los niveles de NO. Este reactivo mide indirectamente la abundancia relativa de NO mediante la detección de la presencia de nitritos, uno de los dos productos finales de la producción de óxido nítrico. Los protocolos de detección de nitritos existentes con el reactivo Griess se han aplicado principalmente para análisis in vitro o en cultivo celular, donde el NO se difunde en el medio de cultivo. Inicialmente desarrollamos un método basado en reactivos de Griess para detectar NOS en homogeneizados de cabeza de Drosophila crudos 25. Sin embargo, hemos encontrado que el método es algo variable con las condiciones alteradas, presumiblemente debido a la inestabilidad, la alta reactividad y la baja concentración relativa de NO en los tejidos de la cabeza completa. Por lo tanto, se buscó desarrollar un método basado en protocolos de cultivo celular que permitiera una mayor sensibilidad y fiabilidad en la cuantificación de la actividad de NOS. En este trabajo describimos un método conceptualmente similar al empleado anteriormente para detectar NOS en túbulos de Malpighi larvales de Drosophila 26. En este procedimiento, utilizamos cerebros enteros que fueron diseccionados inmediatamente después de un tratamiento con toxinas para inducir la respuesta inflamatoria. Luego, incubamos estas muestras en un medio de cultivo de insectos para preservar la integridad del tejido y mejorar la sensibilidad y confiabilidad de un ensayo basado en reactivos de Griess.
Anticipamos que, con el uso de las sofisticadas herramientas genéticas disponibles, este modelo tiene la capacidad de servir como una utilidad prometedora para investigar la red dinámica de inflamación/neurodegeneración. Con la capacidad de cuantificar con precisión la activación y la intensidad relativa de la respuesta neuroinflamatoria, este novedoso ensayo crea un cultivo tisular primario capaz de detectar marcadores neuroinflamatorios secretados. Este método ofrece a los modelos de inflamación de organismos pequeños una técnica barata y altamente sensible para analizar rápidamente muestras de todo el organismo o de tejido vivo donde antes no existían.
Protocolo
1. Exposición al paraquat
- Mantener los cultivos de las moscas de prueba en un medio de cultivo estándar de Drosophila a 25 °C bajo densidades de cultivo equivalentes que consistan en aproximadamente 35 hembras y 15 machos.
- Para preparar las cámaras de alimentación, coloque una pequeña cantidad de algodón absorbente en el fondo de un vial vacío con papel de filtro directamente sobre el algodón.
- Anestesiar a las moscas macho adultas de 3 a 5 días después de la eclosión utilizando coma frío o CO2. Para los experimentos aquí descritos, utilice machos del genotipo y w1118.
- Para la separación por coma frío, golpee los viales de alimentación que contienen moscas y luego retire rápidamente el tapón y transfiera las moscas directamente a un vial limpio y vacío, asegurándose de etiquetar correctamente.
- Una vez que las moscas se transfieran con éxito a los viales de comida vacíos, golpee los viales y luego colóquelos inmediatamente en un cubo >nota: No sumerja completamente el vial en hielo. Esto puede hacer que el agua o la humedad entren en el frasco y ahoguen a las moscas. Como otra precaución, use hielo fresco en lugar de hielo derretido en cubos de hielo.
nota: Preste mucha atención al número de moscas necesarias para cada ensayo y, cuando sea posible, agregue moscas adicionales a cada grupo como precaución en caso de error humano, por ejemplo, moscas que se escapan durante la alimentación o la transferencia. El ensayo de detección de óxido nítrico, por ejemplo, requiere 20 cerebros de mosca por conjunto de muestras, por lo que hay que tener en cuenta el nivel de habilidad de disección y la eficiencia al alimentarse (es decir, los novatos deben colocar más de 20 moscas en caso de errores de transferencia o disección).
- Una vez que las moscas estén anestesiadas, transfiera cada grupo al vial de alimentación correspondiente como se preparó anteriormente.
- Después de que las moscas estén completamente despiertas en viales de alimentación, déjelas morir de hambre durante 1,5 horas y, mientras tanto, prepare las soluciones que se describen a continuación:
- Prepare una solución madre de sacarosa al 5% (solución de control) añadiendo 5 g de sacarosa en 100 ml de agua bidestilada. Remover hasta que se disuelva por completo y almacenar a 4 °C.
nota: Utilice una solución madre de sacarosa al 5% como disolvente para todas las soluciones de alimentación posteriores. - Prepare una solución madre de paraquat de 10 mM utilizando sacarosa al 5% como diluyente y almacene a 4 °C. Prepare todas las demás concentraciones utilizando diluciones en serie según sea necesario.
PRECAUCIÓN: EL PARAQUAT ES EXTREMADAMENTE TÓXICO. CONSULTE MSDS PARA CONOCER LAS PAUTAS DE SEGURIDAD Y EL MANEJO/ELIMINACIÓN ADECUADOS. - Prepare soluciones madre de 10 mM de clorhidrato de éster metílico de N-nitro-L-arginina (L-NAME), clorhidrato de éster metílico de N-nitro-D-arginina (D-NAME) utilizando sacarosa al 5% como diluyente y almacene a 4 °C. Para coincubaciones de L-NAME o D-NAME con paraquat, administre cada compuesto en una proporción de 1:1 con la concentración de paraquat. Prepare todas las demás concentraciones utilizando diluciones en serie según sea necesario.
nota: Filtre todas las soluciones directamente después de la preparación. Las cepas de paraquat, D-NAME y L-NAME deben utilizarse en el plazo de una semana de preparación para garantizar la consistencia experimental. - Pipetear 150 μl al día (o menos, dependiendo de la duración de la alimentación) de la solución de alimentación sobre el papel de filtro, teniendo cuidado de no ahogar moscas ni dejar escapar ninguna.
- Prepare una solución madre de sacarosa al 5% (solución de control) añadiendo 5 g de sacarosa en 100 ml de agua bidestilada. Remover hasta que se disuelva por completo y almacenar a 4 °C.
2. Ensayo de supervivencia/mortalidad
- Configure las cámaras de alimentación como se describió anteriormente.
nota: Use al menos 3 capas de papel de filtro por vial para evitar la desecación. - Coloque 10 moscas macho de 3 a 5 días después de la eclosión en cada vial y aliméntelas como se indicó anteriormente, teniendo cuidado de no dejar que el papel de filtro se seque durante la noche.
nota: Mantenga los viales a temperatura ambiente, lejos de la luz solar directa para evitar acelerar la evaporación de las soluciones. - A partir del día siguiente (designado como "Día 1"), número récord de moscas muertas por vial dos veces al día durante 10 días consecutivos.
nota: Regule tanto la puntuación como la alimentación a horas específicas cada día para disminuir la variación y proporcionar una mayor consistencia. - Calcule la supervivencia media utilizando al menos tres réplicas independientes de todos los grupos.
3. Disección de cerebros de moscas adultas e incubación
- Antes de las disecciones, pipetee 50 μl de Grace's Insect Medium en el número apropiado de pocillos (un pocillo para cada conjunto de muestras + uno para el "blanco"/control) en una placa de microtitulación de 96 pocillos y etiquete adecuadamente. Cubra con la tapa de la placa hasta su uso.
nota: Alternativamente, también se pueden usar tubos de centrífuga estériles si se prefiere. - Anestesiar moscas de un conjunto de muestras usando coma frío como se describe en los pasos 1.3.1-1.3.2.
- Una vez que las moscas estén completamente anestesiadas, coloque varias moscas en un portaobjetos de microscopio
nota: Comience con un pequeño subconjunto de moscas si no tiene experiencia con disecciones. - Decapita las cabezas de las moscas bajo un microscopio de disección usando pinzas y una cuchilla quirúrgica o dos pinzas, descartando los cuerpos de las moscas cuando termines.
- Use una pequeña cantidad de PBS como tampón de disección; se debe evitar la desecación.
- Extraiga todo el cerebro siguiendo el método de Williamson y Hiesinger (2010)27, eliminando cuidadosamente las partículas de la cutícula y cualquier tejido no cerebral (por ejemplo, tejido pigmentario de ojos) (ver Figura 1).
- Transfiera el cerebro diseccionado al pocillo debidamente etiquetado y repita hasta que haya un mínimo de 20 cerebros por pocillo.
- Mantenga las placas en hielo durante el período de disección y no exceda más de 20-30 minutos de tiempo total entre el inicio de la disección y el inicio del ensayo><. nota: Se pueden usar más de 20 cerebros siempre y cuando cada grupo tenga el mismo número en cada pozo. El número mínimo de cerebros para lograr una lectura precisa puede variar (consulte la sección de Discusión para obtener más detalles).
- Una vez que se complete el conjunto de trabajo, deje que los cerebros se incuben durante 6 horas a 25 ° C con una ligera agitación.
- Siga los pasos 1.2-1.6 para todos los grupos restantes.
nota: Registre y ajuste la hora de finalización de la incubación en función de las diferencias entre el momento en que se completó cada conjunto de muestras.
4. Preparación durante el período de incubación
- Prepare el reactivo de Griess modificado según las indicaciones del fabricante (consulte la tabla) y manténgalo en la oscuridad hasta su uso. La cantidad de reactivo necesaria depende de la cantidad de muestras. Por ejemplo, el reactivo de Griess se añadirá en una proporción de 1:1 al medio de Grace (paso 5.5). Por lo tanto, se deben preparar 50 μl por conjunto de muestras + 50 μl para el control en blanco.
- Construya una curva estándar de nitrito utilizando nitrito de sodio en una dilución en serie que oscile entre 0,78125 y 100 mM de nitrito para un total de 8 concentraciones.
nota: Esto debe hacerse para cada experimento para garantizar la consistencia y la precisión en la concentración de la muestra y la actividad del reactivo Griess. - Además, prepare y etiquete tubos de centrífuga estériles de 0,5 ml, dos tubos para cada grupo de tratamiento y dos para el control.
5. Detección de niveles de nitritos
- Una vez finalizado el período de incubación, transfiera el Medio Grace (al menos 45 μl) de los pocillos de microtitulación al primer conjunto de tubos de centrífuga correspondientes a cada grupo.
nota: Como se señaló anteriormente, asegúrese de tener en cuenta las diferencias en los períodos de incubación debido al tiempo que se tarda entre cada serie de disecciones. - Paso opcional: Agregue nitrato reductasa y NADPH en este paso para convertir los nitratos en nitritos. (Este paso no se llevó a cabo en los resultados mostrados)
nota: Si se desea, se puede realizar un ensayo de nitrato/nitrito con una alícuota de sobrenadante de muestra, como se describe en los kits de ensayo. - Centrifugar suavemente (alrededor de 8,175 x g) durante 2 minutos para granular cualquier partícula de cerebro o tejido que pueda haber sido aspirada de los pocillos.
- Pipetear 30 μl del sobrenadante del primer juego de tubos de centrífuga en el segundo juego de tubos correspondientes, asegurándose de no romper el pellet después de girar las muestras.
- Agregue el reactivo Griess en una proporción de 1:1, incube durante 5-10 minutos y ensaye con el espectrofotómetro NanoDrop a 548 nm de absorbancia dentro de 30 min.
Nota: Las muestras también se pueden analizar utilizando un lector de microplacas a una longitud de onda de absorbancia de 540 nm con una longitud de onda de referencia de 620 nm. - Repita cada lectura un mínimo de tres veces y promedie las lecturas.
nota: Asegúrese de "blanquear" la máquina entre cada 6 a 10 lecturas y, antes de completarla, ejecute el control de blanco (Grace's Medium más reactivo de Griess sin cerebro) como una muestra para usar como desviación estándar. - Utilice la curva estándar de nitrito generada en el paso 4.2 para calcular los niveles relativos de nitrito de cada muestra.
- Para calcular concentraciones desconocidas, primero trace los valores de las concentraciones conocidas a partir de la curva estándar utilizando la absorbancia (es decir, la densidad óptica) en el eje y y la concentración en el eje x.
- Una vez graficados todos los valores de la curva estándar, encuentre la pendiente de la línea de mejor ajuste y resuelva la ecuación para x.
nota: Si las diluciones en serie se realizan correctamente, la línea de mejor ajuste debe ser lineal o muy cercana a ella. Si este no es el caso, reconstruya la curva estándar. Si los problemas persisten, compruebe si todas las soluciones, medios y reactivos han caducado y asegúrese de que el equipo funciona correctamente y está dentro de su rango de detección. - A continuación, simplemente sustituya los valores de absorbancia por y y resuelva x, que representa la concentración.
Para obtener información adicional sobre el uso del equipo NanoDrop, consulte Desjardins et al. 2009 y Desjardins & Conklin, 201028,29.
6. Western Blot
- Alimente a 30 moscas por condición como se describió anteriormente y decapitar las cabezas, preferiblemente usando nitrógeno líquido y vórtice.
- Homogeneice cabezas enteras en hielo en tampón RIPA de 60 μl con 2 mM de ditiotreitol (DTT) y 1x cóctel de inhibidores de la proteasa añadidos justo antes de su uso.
- Centrifugar las muestras durante 5 min a 8.175 x g a 4 °C.
- Transfiera el sobrenadante a los nuevos tubos de centrífuga.
- Mezcle las muestras suavemente y pipetee 17 μl de sobrenadante en tubos de centrífuga que contengan 6,5 μl de tampón de muestra LDS 4x y 2,5 μl de DTT de 500 mM.
nota: Muestra restante congelada en nitrógeno líquido y almacenada a -20 °C hasta su uso. - Mezclar bien las muestras y calentar a 70 °C durante 10 min, mezclando una vez a mitad de la incubación.
- Mientras se calienta, ensamble el aparato de funcionamiento de electroforesis en gel de poliacrilamida (PAGE) con minigel NuPage Bis-Tris prefabricado al 4-12%, tampón de funcionamiento MOPS SDS con 500 μl de antioxidante en la cámara interior.
- Centrifugar rápidamente las muestras y dejar enfriar.
- Cargue 25 μl en cada carril.
- Ejecute la electroforesis en gel a 200 V sobre hielo o a 4 °C durante 45 min o hasta que el gel esté completo.
- Una vez completada la electroforesis, transfiera las proteínas separadas del gel a las membranas de nitrocelulosa utilizando las pilas de transferencia iBlot y detecte la señal utilizando el kit de detección Western Blot.
nota: Los anticuerpos utilizados son los siguientes: anticuerpos primarios α-nNOS de ratón (1:250), α-sintaxina de ratón (1:200); anticuerpos secundarios (1:250) proporcionados en el kit de detección de Western Blot (ratón). - Detecte la señal quimioluminiscente utilizando el sistema de imágenes Western blot o una película de rayos X.
Nota: Se puede utilizar cualquier método estándar de detección y cuantificación de inmunoblot para el análisis de blot.
Resultados
Se ha demostrado que el paraquat induce degeneración neurológica, consistente con una patología similar a la enfermedad de Parkinson, en numerosos modelos animales, como ratones19, ratas20 y moscas de la fruta22. Anteriormente informamos que la minociclina, un antibiótico antiinflamatorio, cuando se administra junto con paraquat, prolonga la supervivencia, reduce la producción de especies reactivas de oxígeno y previene la muerte de neuronas dopaminérgicas25. Por lo tanto, dado que la minociclina actúa suprimiendo la inflamación, comenzamos a investigar la óxido nítrico sintasa (NOS), una proteína clave en la activación de la respuesta inflamatoria, y su papel en la modulación de la toxicidad del paraquat.
Se realizó una curva de toxicidad de paraquat para establecer una dosis letal efectiva y un rango de tratamiento tóxico, utilizando concentraciones de paraquat entre 1,25 y 10 mM (Figura 2A). También evaluamos los efectos de concentraciones de paraquat de 20 mM y 40 mM, pero encontramos que la toxicidad era demasiado aguda a estas concentraciones más altas como para evaluar con precisión las respuestas celulares frente a este agente de estrés oxidativo; por lo tanto, no incluimos los resultados correspondientes a estas concentraciones en este informe. Utilizando L-NAME, un inhibidor competitivo de la NOS, y D-NAME, el isómero inactivo de NAME, tratamos simultáneamente a moscas adultas macho con paraquat y uno de los isómeros de NAME. El tratamiento conjunto de las moscas con paraquat y L-NAME produjo una recuperación significativa de la reducción de la longevidad causada por la ingesta de paraquat, mientras que las moscas tratadas conjuntamente con paraquat y D-NAME no mostraron mejora en la supervivencia (Figura 2B), lo que respalda la hipótesis de que la supresión de la inflamación mediante la inhibición de la NOS mejora la supervivencia de las moscas tratadas con paraquat.
Como validación adicional de una respuesta al paraquat mediada por NOS, detectamos cambios en los niveles de proteína NOS inmediatamente después de la exposición al paraquat. Los niveles de proteína NOS aumentaron de manera dependiente de la concentración de paraquat (Figura 3A). Al tratar las moscas con 10 mM de paraquat durante periodos de exposición que variaron entre 6 y 30 horas, observamos un aumento inicial seguido de una disminución a medida que aumentó el tiempo de exposición (Figura 3B), lo cual es consistente con los patrones de niveles de nitrito observados en nuestra variante del ensayo de Griess (Figura 5B). Estos resultados son coherentes con nuestros informes previos de que el tratamiento con paraquat induce la expresión de NOS y que la inhibición de NOS o el tratamiento con L-NAME o minociclina proporcionan protección parcial17,25.
Figura 4A demuestra una relación lineal entre el aumento en la concentración de paraquat y la magnitud de la respuesta inflamatoria definida por la secreción y detección de NO. En niveles basales, los mutantes heterocigotos Punch secretaron niveles ligeramente más bajos de NO, una variación demasiado sutil para ser determinada mediante métodos previos de detección. Cuando se alimentaron con paraquat, se observó un aumento pronunciado en los niveles de NO en el mutante Punch, sin embargo, significativamente menor que en las moscas tratadas del tipo silvestre (Figura 4B). Los valores relativos de las moscas del tipo silvestre y Punch pueden cuantificarse con precisión y reproducibilidad, aunque la variación en los niveles no tratados fue extraordinariamente sutil.
Al trabajar con toxinas o productos químicos, es fundamental establecer tanto una curva de tiempo de exposición como una curva de toxicidad basada en la concentración, ya que estas condiciones pueden alterar drásticamente la sensibilidad del ensayo. Por ejemplo, el tratamiento con 5 mM de paraquat produce la detección máxima de NO tras 24 horas de exposición (Figura 5A), mientras que la exposición a 10 mM de paraquat provocó una inducción más rápida (niveles máximos a las 12 horas), pero también una disminución más rápida de la actividad durante exposiciones prolongadas (Figura 5B). Aunque una concentración más alta con inducción rápida podría parecer preferible, una respuesta maximizada acelera la muerte tanto de las neuronas como posiblemente de los hemocitos, hasta el punto de que la reproducibilidad puede volverse difícil.
Las moléculas de NO son inestables y altamente reactivas. Por lo tanto, un ensayo exitoso debe incluir condiciones de incubación que proporcionen un equilibrio óptimo entre la inducción continua de NOS y el rápido recambio de NO. Con el fin de definir condiciones óptimas de incubación, evaluamos el efecto del tiempo durante el cual los cerebros disecados se incubaron en el medio de cultivo antes de añadir el reactivo de Griess. Descubrimos que una incubación de 6 horas a temperatura ambiente produjo niveles máximos de nitrito en la reacción subsecuente de Griess (Figura 5C). Esperamos que puedan ser necesarias variaciones en el período de incubación para optimizar la detección en diversos modelos de inflamación. El establecimiento cuidadoso de todos los parámetros óptimos para el organismo, genotipo y tejido específicos que se analicen será esencial para obtener resultados fiables y precisos, ya que el proceso es altamente dinámico. En particular, se espera que las variantes genéticas y los modelos de expresión de transgenes requieran una optimización sustancial, especialmente en relación con la etapa de desarrollo o la edad de los adultos.
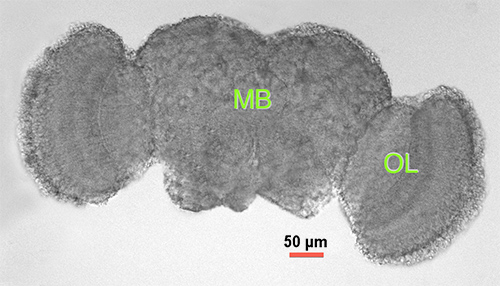
Figura 1. Cerebro adulto de Drosophila. Microscopía de luz de cerebro adulto macho disecado, 2-3 días posteriores a la eclosión. MB = cerebro medio (corteza central), OL = lóbulo óptico.
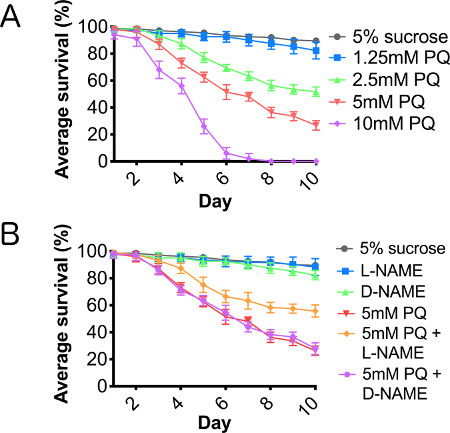
Figura 2. El paraquat provoca una reducción dependiente de la dosis en la longevidad, mediada a través de la óxido nítrico sintasa. Moscas macho de tipo silvestre alimentadas con (A) sacarosa al 5 % (control) y diluciones seriadas de paraquat en concentraciones que varían de 1,25 a 10 mM en sacarosa al 5 %, y (B) alimentadas simultáneamente con paraquat junto con L-NAME o D-NAME durante 10 días consecutivos. N = 3 grupos de 10. Las barras de error corresponden al error estándar de la media (SEM).
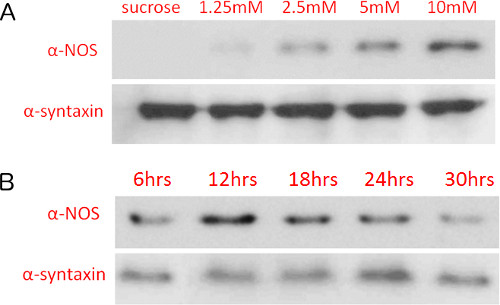
Figura 3. Los niveles de la proteína sintasa del óxido nítrico aumentan con la concentración de paraquat y la duración de la exposición. Detección por inmunotransferencia de los niveles de sintasa del óxido nítrico en moscas tratadas con diferentes (A) concentraciones de paraquat (exposición de 12 horas) y (B) paraquat 10 mM con distintas duraciones de exposición. Los niveles de proteína se detectaron en membranas de nitrocelulosa mediante quimioluminiscencia y exposición a película de rayos X.
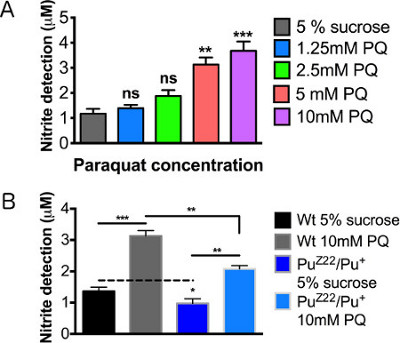
Figura 4. Niveles de detección de óxido nítrico tras la exposición al paraquat. Se analizaron moscas macho de tipo silvestre (WT) de 2-3 días posteriores a la eclosión tras 12 horas de alimentación. (A) Curva de concentración de paraquat. (B) Mutantes heterocigotos macho de Punch alimentados con control de sacarosa y paraquat 10 mM. N = 20 cerebros/grupo. Los resultados representan 3 réplicas por grupo. Las barras de error = error estándar de la media (SEM). Los análisis estadísticos se realizaron mediante ANOVA de un factor con la prueba post hoc de comparaciones múltiples de Dunnett (*, p < 0,05; **, p < 0,01; ***, p < 0,001).

Figura 5. Optimización de la detección de la producción de óxido nítrico mediante la modificación de la duración de la exposición a paraquat y del tiempo de incubación del tejido. Niveles relativos de óxido nítrico en cerebros masculinos 2-3 días después de la eclosión, tras un tratamiento de 12 horas con (A) paraquat al 5 mM y (B) paraquat al 10 mM. (C) Curva de NO utilizando diferentes periodos de incubación del tejido tras 12 horas de alimentación con paraquat al 10 mM. Los valores de significancia se calcularon en relación con los siguientes controles: (A, B) controles de sacarosa al 5% para cada tiempo de exposición (no mostrados en la gráfica), (C) controles de sacarosa al 5% para cada tiempo de incubación (no mostrados en la gráfica). N = 20 cerebros/grupo. Los resultados representan 3 réplicas por grupo. Las barras de error = error estándar de la media (SEM). Los análisis estadísticos se realizaron mediante ANOVA de un solo factor con la prueba post hoc de comparación múltiple de Dunnett (*, p<0.05, **, p<0.01, ***, p<0.001).
Discusión
Este método, aunque de enfoque simple, proporciona un método rentable, altamente repetible y extremadamente sensible para cuantificar los niveles de neuroinflamación mediada por NOS. Como se muestra en la sección Resultados, hay muchas variables que se pueden ajustar para mejorar u optimizar la respuesta en diferentes modelos u organismos de inducción. Sin embargo, debido a que este es un sistema altamente sensible, estas variables también pueden dar lugar a resultados muy variables si todos los aspectos del protocolo no se manejan con cuidado. Cuando se realiza la primera prueba con cualquier modelo, recomendamos configurar los parámetros probando variables, que incluyen la concentración química (Figura 4A), la duración de la exposición (Figuras 5A y 5B) y la duración de la incubación (Figura 5C). Tenga en cuenta otras variables, como la cantidad de muestras de cerebros/tejidos necesarias para lograr el umbral de detección y la consistencia, incluso cuando aplique este método a modelos similares de Drosophila . Además, en los modelos genéticos de inflamación dependientes de la edad, se necesitará una optimización prolongada del punto de tiempo.
Como se mencionó anteriormente, debido a la naturaleza sensible del ensayo, las inconsistencias en el protocolo pueden producir resultados poco confiables. Con esto en mente, todos los equipos y materiales se esterilizaron antes de su uso. Debido al corto tiempo de incubación, no se agregaron antibióticos a los medios de cultivo en estos experimentos. Sin embargo, si el protocolo se adapta para tiempos de incubación más largos o si se observa crecimiento bacteriano en cultivos o medios, se deben agregar antibióticos de cultivo típicos como penicilina-estreptomicina y se debe volver a esterilizar el equipo. Como en cualquier experimento de tratamiento químico, se debe tener precaución para garantizar que todos los grupos se críen en condiciones bien controladas, que coincidan con el sexo y la edad, y que todos los grupos reciban exactamente las mismas condiciones de alimentación. Algunos ejemplos de condiciones de alimentación a considerar incluyen variaciones en las concentraciones, disponibilidad y acceso a la fuente de alimentación, duración de la alimentación y la hora del día en que se administra la alimentación. Los registros detallados de todas las condiciones experimentales y la atención a los patrones de alimentación naturales de su modelo ayudarán a minimizar la variabilidad. Si se emplean cepas mutantes o transgénicas que afectan los circuitos neuronales o los patrones de comportamiento, un control importante incluiría el monitoreo del comportamiento alimentario.
Una vez más, si bien existen protocolos similares en cultivos celulares y lisados, una de las principales ventajas de este método es que se mantiene la integridad del tejido, lo que permite que prácticamente todas las relaciones celulares dentro del cerebro permanezcan intactas. Este sistema representa un estado relativamente natural, in vivo , de señalización neuroinflamatoria y secreción celular. Establecida en Drosophila, esta técnica se puede adaptar fácilmente a otros organismos modelo pequeños y no se limita al sistema nervioso central, como lo demuestra una aplicación similar para la señalización de NO en un modelo de túbulo de Malpighian para la función renal26. La ventaja más significativa de este protocolo es la capacidad de manipular y adaptar este ensayo para que se ajuste a las necesidades e intereses del investigador o del sistema modelo.
Mediante el uso de enfoques químico-genéticos combinados, este ensayo tiene el potencial de mejorar significativamente la capacidad de los sistemas modelo pequeños para investigar los mecanismos, los componentes genéticos y los moduladores químicos de la inflamación.
Divulgaciones
Los autores declaran que no tienen intereses financieros contrapuestos.
Agradecimientos
Agradecemos al Dr. Guy y al Dr. Kim Caldwell por el uso de su espectrofotómetro NanoDrop durante el desarrollo de este ensayo y a J. Gavin Daigle por sus comentarios críticos y sugerencias. El desarrollo de este método fue financiado por una subvención de los Institutos Nacionales de Salud (NS-078728) a J.M.O.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Cámaras de alimentación | |||
| Empty Drosophila vial | Genesee Scientific | #32-116 | |
| Algodón | absorbente Se puede utilizar cualquier producto estándar. | ||
| Papel de filtro | Fisher | #09-802-1B | |
| Paraquat exposure | |||
| Sacarosa | Sigma-Aldrich | #S0389 | |
| Paraquat (hidrato de dicloruro de viológeno de metilo) | Sigma-Aldrich | #856177 | Tóxico. Manéjelo con cuidado y dentro de las pautas de MSDS |
| L-NAME (N-Nitro-L-arginina clorhidrato de éster metílico) | Sigma-Aldrich | #N5751 | |
| D-NAME (N-Nitro-D-arginina clorhidrato de éster metílico) | Sigma-Aldrich | #N4770 | |
| Diseccionando cerebros de moscas adultas e incubación | |||
| Grace's Insect Medium | Invitrogen | #11605-094 | El medio de Grace también puede ser sustituido por Sf-900 II SFM o Sf-900 III SFM Medium para una mayor consistencia de lote a lote. |
| Placa de 96 pocillos | Corning | #3596 | Se puede utilizar cualquier producto estándar. |
| de microscopio | Se puede utilizar cualquier producto estándar. | ||
| Cuchilla quirúrgica | Feather | #0197 | Se puede utilizar cualquier producto estándar. |
| Pinzas médicas 5 | Dumont | EMS #72877-D | Se puede utilizar cualquier producto estándar. |
| 10x tampón PBS | OmniPur | #6508 | |
| Detección de niveles de nitrito | |||
| Griess modificado | con fuerza Sigma-Aldrich | #4410 | |
| Nitrito de sodio | Sigma-Aldrich | #S2252 o #237213 | |
| Kit de ensayo de proteínas | Bio-Rad | 500-0001 | |
| Cubetas | Se puede utilizar cualquier producto estándar. | ||
| Nitrato reductasa | opcional | ||
| NADPH | opcional | ||
| Western Blot Analysis | |||
| RIPA tampón de lisis | Amresco | 97063-270 | |
| ditiotreitol (DTT)- Agente reductor | Novex | B0009 | |
| Cóctel de inhibidores de la proteasa | Amresco | 97063-082 | |
| 4x tampón de muestra LDS | Novex | B0007 | |
| Prefabricado 4-12% Bis-Tris minigel | Novex | BG04125BOX | |
| MOPS SDS tampón de funcionamiento | Novex | B0001 | |
| Antioxidante | NuPage | NP0005 | |
| iBlot Pilas de transferencia (nitrocelulosa) | Invitrogen | IB301002 | |
| Western blot kit de detección | Invitrogen | IB711002 | |
| Ratón α-nNOS | BD Biosciences | 611853 | |
| Ratón α-sintaxina | DSHB | 8C3 |
Referencias
- Gehrmann, J., Matsumoto, Y., Kreutzberg, G. W. Microglia: Intrinsic immuneffector cell of the brain. Brain Res. Rev. 20, 269-287 (1995).
- Dissing-Olesen, L., et al. Axonal lesion-induced microglial proliferation and microglial cluster formation in the mouse. Neuroscience. 149, 112-122 (2007).
- Aloisi, F., Penna, G., Cerase, J., Menendez Iglesias, B., Adorini, L. IL-12 production by central nervous system microglia is inhibited by astrocytes. J. Immunol. 159, 1604-1612 (1997).
- Vincent, V. A., Tilders, F. J., Van Dam, A. M. Inhibition of endotoxin-induced nitric oxide synthase production in microglial cells by the presence of astroglial cells: a role for transforming growth factor beta. Glia. 19, 190-198 (1997).
- Rohrenbeck, A. M., et al. Upregulation of COX-2 and CGRP expression in resident cells of the Borna disease virus-infected brain is dependent upon inflammation. Neurobiol. Dis. 6, 15-34 (1999).
- Walsh, D. T., Perry, V. H., Minghetti, L. Cyclooxygenase-2 is highly expressed in microglial-like cells in a murine model of prion disease. Glia. 29, 392-396 (2000).
- Aloisi, F., Serafini, B., Adorini, L. Glia-T cell dialogue. J. Neuroimmunol. 107, 111-117 (2000).
- Minghetti, L., Levi, G. Microglia as effector cells in brain damage and repair: focus on prostanoids and nitric oxide. Prog. Neurobiol. 54, 99-125 (1998).
- Mrak, R. E., Griffin, W. S. T. Glia and their cytokines in progression of neurodegeneration. Neurobiol. Aging. 26, 349-354 (2005).
- Zhang, W., et al. Aggregated alpha-synuclein activates microglia: a process leading to disease progression in Parkinson's disease. FASEB J. 19, 533-542 (2005).
- Beers, D. R., et al. Neuroinflammation modulates distinct regional and temporal clinical responses in ALS mice. Brain Behav. Immun. 25, 1025-1035 (2011).
- Wood, W., Faria, C., Jacinto, A. Distinct mechanisms regulate hemocyte chemotaxis during development and wound healing in Drosophila melanogaster. J. Cell Biol. 173, 405-416 (2006).
- Babcock, D. T., et al. Circulating blood cells function as a surveillance system for damaged tissue in Drosophila larvae. Proc. Natl. Acad. Sci. U.S.A. 105, 10017-10022 (2008).
- Vlisidou, I., et al. Drosophila embryos as model systems for monitoring bacterial infection in real time. PLoS Pathog. 5, e1000518(2009).
- Foley, E., O'Farrell, P. H. Nitric oxide contributes to induction of innate immune responses to gram-negative bacteria in Drosophila. Genes Dev. 17, 115-125 (2003).
- Costa, A., Jan, E., Sarnow, P., Schneider, D. The Imd pathway is involved in antiviral immune responses in Drosophila. PloS One. 4, e7436(2009).
- Daigle, J. G. Integrated microglial-like neuroinflammatory and hypoxia responses in a Drosophila model for Parkinson's disease. , in preparation Forthcoming.
- Tanner, C. M., Kamel, F., Ross, G. W., Hoppin, J. A., Goldman, S. M., Korell, M., Marras, C., Bhudhikanok, G. S., Kasten, M., et al. Rotenone, Paraquat and Parkinson's Disease. Environ. Health Perspect. 119 (6), 866-8672 (2011).
- Manning-Bog, A. B., McCormack, A. L., Li, J., Uversky, V. N., Fink, A. L., Di Monte, D. A. The herbicide paraquat causes up-regulation and aggregation of alpha- synuclein in mice: paraquat and alpha-synuclein. J. Biol. Chem. 277, 1641-1644 (2002).
- Ossowska, K., Wardas, J., Smialowska, M., Kuter, K., Lenda, T., Wieronska, J. M., Zieba, B., Nowak, P., Dabrowska, J., Bortel, A., et al. A slowly developing dysfunction of dopaminergic nigrostriatal neurons induced by long-term paraquat administration in rats: An animal model of preclinical stages of Parkinson's disease. Eur. J. Neurosci. 22, 1294-1304 (2005).
- McCormack, A. L., et al. Role of oxidative stress in paraquat-induced dopaminergic cell degeneration. J. Neurochem. 93, 1030-1037 (2005).
- Chaudhuri, A., et al. Interaction of genetic and environmental factors in a Drosophila parkinsonism model. J. Neurosci. 27, 2457-2467 (2007).
- Krishnakumar, S., Burton, D., Rasco, J., Chen, X., O'Donnell, J. Functional interactions between GTP cyclohy- drolase I and tyrosine hydroxylase in Drosophila. J. Neurogenet. 14 (1), 1-23 (2000).
- Foxton, R. H., Land, J. M., Heales, S. J. R. Tetrahydro- biopterin availability in Parkinson's and Alzheimer's disease; potential pathogenic mechanisms. Neurochem. Res. 32 (4-5), 751-756 (2007).
- Inamdar, A. A., Chaudhuri, A., O'Donnell, J. The Protective Effect of Minocycline in a Paraquat-Induced Parkinson's Disease Model in Drosophila is Modified in Altered Genetic Backgrounds. Parkinson's Disease. 2012, 938528(2012).
- Kean, L., Cazenave, W., Costes, L., Broderick, K. E., Graham, S., Pollock, V. P., Davies, S. A., Veenstra, J. A., Dow, J. A. Two nitridergic peptides are encoded by the gene capability in Drosophila melanogaster. Am. J. Phys. Reg. Integr. Comp. Phys. 282, R1297-R1307 (2002).
- Williamson, W. R., Hiesinger, P. R. Preparation of Developing and Adult Drosophila Brains and Retinae for Live Imaging. J. Vis. Exp. (37), (2010).
- Desjardins, P., Hansen, J. B., Allen, M. Microvolume Protein Concentration Determination using the NanoDrop 2000c Spectrophotometer. J. Vis. Exp. (33), (2009).
- Desjardins, P., Conklin, D. NanoDrop Microvolume Quantitation of Nucleic Acids. J. Vis. Exp. (45), (2010).
Reimpresiones y permisos
