Las glándulas de las plantas son estructuras especializadas responsables de la biosíntesis y secreción de muchos compuestos implicados en las interacciones con el entorno biótico. Para permitir el estudio de sus características moleculares y bioquímicas, se estableció una técnica de micropreparación mecánica con el fin de aislar glándulas metabólicamente activas, en este caso de la planta carnívora Nepenthes.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de método
Aislamiento de glándulas multicelulares viables a partir de tejido de la planta carnívora Nepenthes
En este artículo
Resumen
Resumen
Muchas plantas poseen estructuras especializadas que están involucradas en la producción y secreción de compuestos y proteínas específicos de bajo peso molecular. Estas estructuras casi siempre se localizan en las superficies de las plantas. Entre ellos se encuentran los nectarios o tricomas glandulares. Los compuestos secretados se emplean a menudo en interacciones con el entorno biótico, por ejemplo, como atrayentes para los polinizadores o disuasivos contra los herbívoros.
Las glándulas que son únicas en varios aspectos se pueden encontrar en las plantas carnívoras. En las llamadas plantas de jarra del género Nepenthes, las glándulas bifuncionales dentro de la trampa de caída secretan por un lado el líquido digestivo, incluidas todas las enzimas necesarias para la digestión de la presa, y por otro lado absorben los nutrientes liberados. Por lo tanto, estas glándulas representan un tejido ideal y especializado predestinado a estudiar los mecanismos moleculares, bioquímicos y fisiológicos subyacentes de la secreción de proteínas y la absorción de nutrientes en las plantas. Además, en general, la biosíntesis de compuestos secundarios producidos por muchas plantas equipadas con estructuras glandulares podría investigarse directamente en las glándulas.
Para trabajar en estructuras tan especializadas, necesitan ser aisladas de manera eficiente, rápida, metabólicamente activas y sin contaminación con otros tejidos. Por lo tanto, se desarrolló y aplicó una técnica de micropreparación mecánica para estudios sobre el fluido de digestión Nepenthes. Aquí, se presenta un protocolo que se utilizó para preparar con éxito glándulas bifuncionales individuales a partir de trampas Nepenthes, basado en una plataforma de micromuestreo mecanizado. Las glándulas podrían aislarse y utilizarse directamente para el análisis de la expresión génica mediante técnicas de PCR después de la preparación del ARN.
Introducción
Las plantas producen una gran variedad de compuestos con diversas aplicaciones industriales y farmacéuticas, que van desde moléculas de bajo peso molecular hasta polímeros. Dichos compuestos son frecuentemente producidos y secretados por estructuras altamente especializadas, muchas de las cuales se localizan en la superficie de las plantas, como los tricomas glandulares o nectarios, o internamente, como los idioblastos o los conductos de látex y resina, respectivamente. Sin embargo, se conoce relativamente poco sobre la biología de estas estructuras secretoras especializadas, aunque todos los tipos de estas glándulas presentan muchas características indicativas de un metabolismo activo. En particular, las glándulas de plantas carnívoras como Nepenthes pueden considerarse sistemas modelo en biología celular vegetal1.
Las plantas carnívoras son objeto de diversos estudios desde 1875, cuando se publicó Las plantas insectívoras de Charles Darwin2. Sin embargo, solo en los últimos años se han realizado investigaciones a nivel molecular, y aún así nuestro conocimiento es limitado. Por ejemplo, la composición proteica del fluido digestivo en las plantas pitónidas del género Nepenthes aún no se conoce completamente. Solo recientemente se han identificado varias proteínas hidrolíticas, así como algunos de los genes correspondientes3. En las trampas en forma de embudo de Nepenthes (Figura 1), existen glándulas multicelulares localizadas en la parte interna inferior de las urnas. Estas glándulas realizan tanto la producción y secreción de enzimas digestivas hacia el fluido de la urna como la absorción de nutrientes disueltos provenientes de dicho fluido4. Por lo tanto, estas glándulas bifuncionales representan un microtejido único con una posición y función centrales en la carnivoría de Nepenthes, lo que las convierte en un tema digno de estudio detallado.
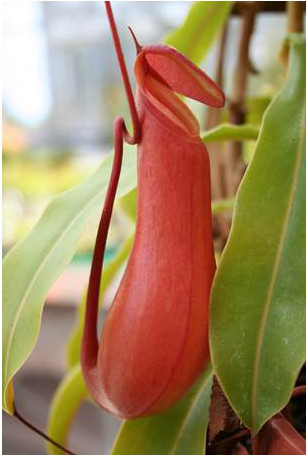
Figura 1. Jarro de Nepenthes alata. La parte inferior del jarro contiene el líquido digestivo y glándulas en su interior.
Haga clic aquí para ver la imagen en mayor tamaño.
En las ciencias vegetales, muchos enfoques experimentales dependen de «material en bloque» porque no se investiga un tejido definido, sino órganos enteros. Como consecuencia, su homogenización y análisis solo pueden proporcionar resultados diluidos y proporcionales respecto a tejidos y células individuales5. Para resolver este problema, se desarrollaron y utilizaron con éxito técnicas de micropreparación, como la denominada microdisección por captura láser (LCM), para recolectar tejidos vegetales específicos y analizar sus contenidos individuales6. Sin embargo, la LCM suele tener limitaciones cuando se dirige a componentes celulares inestables y/o de rápida degradación, como el ARN. En tales casos, la necesidad de una fijación previa del tejido, que es un proceso lento y a menudo acompañado de degradación de las biomoléculas, resulta desventajosa. Además, debido al alto contenido de agua de muchos tejidos vegetales y a la resistencia de las paredes celulares, la LCM a menudo no logra preparar directamente a partir de tejido fresco7. Cualquier enfoque para investigar componentes celulares presentes en glándulas secretoras, desde genes, ARNm y proteínas hasta compuestos secundarios y su biosíntesis, requiere técnicas alternativas de preparación específica. Por lo tanto, son necesarias técnicas específicas para aislar células individuales o incluso glándulas multicelulares que permanezcan intactas tras la preparación.
Aquí se presenta un método que emplea una plataforma automatizada de microtoma que incluye una visualización microscópica directa. Esta técnica es rápida y eficiente para la preparación de glándulas individuales provenientes de las trampas de las especies de Nepenthes. Estas glándulas pluricelulares son bifuncionales, es decir, participan tanto en procesos de secreción como de absorción, son sésiles y poseen capas celulares no expuestas que se impregnan para formar un endodermis. Las glándulas completas pueden aislarse sin tejido adyacente y depositarse de manera bien definida en un tubo para PCR. Esta técnica se aplica para estudiar genes específicos así como la expresión génica en los tejidos de las glándulas.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Protocolo
1. Preparación del material vegetal
- Todas las especies de Nepenthes se cultivaron en los invernaderos del MPI de Ecología Química o en el Jardín Botánico de Jena, Alemania.
- Para la preparación del tejido secretor, coseche una jarra y retire el tercio superior, incluida la tapa, el peristomo y la zona resbaladiza. La jarra puede utilizarse fresca o congelada en nitrógeno líquido y almacenarse a -80 °C.
2. Microdisección de tejido de jarra
- La plataforma de micromuestreo consta de un microscopio estereoscópico y un micromanipulador, que se conecta directamente al cuerpo del microscopio y es operado por un joystick 3D. Aquí, se utilizó un prototipo temprano de aureka como se documentó (Figura 2A).
- Para la disección de las glándulas secretoras de las jarras Nepenthes, utilice una micropinza y fíjela al manipulador (Figuras 2A y 2B).
- Para la extracción de ARN, trate todos los instrumentos (hojas de afeitar, pinzas, micromanipulador, micropinzas, portaobjetos) con RNaseZAP.
- Prepare los tubos de recolección añadiendo 9 μl de agua libre de nucleasa y 1 μl de inhibidor de RNasa en un tubo de PCR para la extracción de ARN. Para la PCR directa a partir de muestras de tejido, utilice únicamente agua sin nucleasas (10 μl).
- Tome la jarra fresca o congelada y retire un trozo de tejido de 1-2 cm2 que contiene las glándulas secretoras con una cuchilla de afeitar y pinzas. Lave el pañuelo con agua; añadir 0,1% de dietilpirocarbonato (DEPC) si se va a extraer el ARN.
- Fije el material vegetal con cinta adhesiva de doble cara en un portaobjetos (la superficie cubierta de prensaestopas debe mirar hacia arriba, Figuras 2C y 2D) y asegure el portaobjetos con cinta adhesiva en un escenario universal, que debe aplicarse con una mesa móvil.
- Para extraer ácidos nucleicos, la preparación debe realizarse con hielo. Por lo tanto, tome una caja plana de espuma de poliestireno, coloque la etapa universal que contiene la muestra dentro y llene la caja con hielo. A continuación, coloque la caja bajo el microscopio.
- Para la preparación, la posición de las glándulas es muy importante. Las glándulas secretoras están parcialmente cubiertas por una capucha protectora (Figura 3) y solo son accesibles por las pinzas desde un lado. Además, el ángulo de la muestra con respecto a las pinzas debe ajustarse inclinando la mesa de la platina universal aproximadamente 135°, dependiendo de la especie de Nepenthes.
- La microdisección se realiza bajo control visual. Para el aislamiento de glándulas, use un filtro sin rayos UV para limitar la degradación del ADN y el ARN.
- Mueva el micromanipulador y las pinzas a través del panel de control a la glándula seleccionada. Cuando llegue a la glándula, coloque cada brazo de las pinzas a cada lado de la glándula. Retire la glándula del tejido restante cerrando las pinzas (Figura 4A).
- Dirija la glándula conectada a las pinzas lejos del objeto y hacia el tubo de recolección. Ponga las puntas de las pinzas en contacto con la solución en el tubo (Figura 4B). La liberación de la glándula al abrir las pinzas debe observarse bien, porque las glándulas tienden a pegarse en la punta de la herramienta. El tejido puede almacenarse a -80 °C hasta la extracción por PCR o ARN.
3. Amplificación directa por PCR a partir de tejido Nepenthes
- Para demostrar la eficacia del método de preparación, se puede realizar un enfoque de PCR directamente desde el tejido de la glándula sin un paso de extracción de ADN.
- Para la amplificación de la PCR se utilizan cebadores específicos de genes; aquí se codifica para la secuencia de una proteína similar a la taumatina (TLP) (adelante: 5'-CAATGAGCCAATTCATAAAATTTG-3', reverso: 5'-CAGTTATACTTTAAGGGCAAAACACAAC-3').
- Recoja de 1 a 5 glándulas en un tubo de PCR que contenga 10 μl de agua libre de nucleasas. Para una reacción de 50 μl, agregue 5 μl de tampón Taq 10x, 1 μl de trifosfatos desoxinucleósidos (dNTP) de 10 mM, 3 μl de 25 mM de MgCl2, 0,4 μl (1,25 U) de ADN polimerasa Taq, 1 μl (100 pmol) de cada cebador y 28,6 μl de agua libre de nucleasas.
- Realizar reacciones de PCR en un termociclador con el siguiente programa: desnaturalización inicial a 94 °C durante 3 min; 35 ciclos de desnaturalización (94 °C durante 30 seg), recocido (59 °C durante 30 seg) y extensión (72 °C durante 1 min); y un paso final de extensión de 10 min a 72 °C.
- Demostrar la amplificación del producto de PCR mediante electroforesis en gel de agarosa. Por lo tanto, utilice agarosa al 1,5% (p/v) y disuélvala en 1x tampón TAE (40 mM de base Tris, 20 mM de ácido acético glacial, 1 mM de EDTA, pH 8). Calienta la solución en el microondas hasta que la agarosa se disuelva. A 100 ml de solución de agarosa, añadir 1 μl de bromuro de etidio (10 μg/μl) para la visualización posterior. Haga funcionar el gel en 1x tampón TAE a 300 V, 115 mA durante aproximadamente 20 minutos en una cámara de electroforesis. El tamaño correcto del amplicón TLP debe ser de 690 pb.
4. Extracción de ARN a partir de pequeñas muestras de tejido y transcripción inversa
- Realice los siguientes pasos en hielo. Para la extracción de ARN se utilizaron dos métodos de extracción, un Micro Kit para la extracción de ARN total y un kit de aislamiento de ARNm aplicado con perlas magnéticas.
- Recoja al menos 30 glándulas secretoras por micropreparación en un tubo de PCR que contenga 1 μl de inhibidor de RNasa y 9 μl de agua libre de nucleasas. A continuación, lisar el tejido en un termociclador durante 10 min a 75 °C.
- Extracción de ARN total.
- Después de la preparación, añadir 90 μl de solución de lisis a la muestra e incubar durante 10 min a 75 °C. A continuación, cargar la mezcla de reacción en la columna (suministrada con el kit) y continuar con los pasos de lavado descritos en el manual del fabricante.
- Eluir el ARN dos veces con 10 μl de solución de elución respectivamente y continuar con el tratamiento con DNasa I.
- A 20 μl de ARN extraído se añaden 2 μl de tampón de DNasa I 10x y 1 μl de DNasa I (suministrado con el kit de extracción de ARN) e incubar 1 hora a 37 °C. Detenga la reacción añadiendo 2 μl de reactivo de inactivación de DNasa e incube durante 2 min a temperatura ambiente. Después de una etapa de centrifugación durante 1,5 minutos a máxima velocidad, el ARN se puede transferir a un tubo nuevo sin ARNasa. Determine la concentración de ARN de cada muestra utilizando un espectrofotómetro. Las muestras deben almacenarse a -80 °C.
- Extracción de ARNm mediante perlas magnéticas.
- Ajustar el volumen de la muestra a 100 μl con tampón de lisis/unión (suministrado en el kit) e incubar durante 10 min a 75 °C. Añadir 20 μl de perlas magnéticas suministradas con un voladizo Oligo (dT)25 y mezclar la reacción durante 5 min a temperatura ambiente. El ARNm se une por la cola de poli(A) al saliente Oligo (dT)25 de las perlas.
- Realice los pasos de lavado del ARNm unido a las perlas magnéticas siguiendo el protocolo del fabricante. Las soluciones se pueden eliminar mediante el uso de un imán. Vuelva a suspender las perlas en 20 μl 10 mM de tampón Tris-HCl (pH 7,5).
- Elimine las contaminaciones de ADN genómico tratando la muestra con 2U (1 μl) de DNasa (2 μl de tampón de DNasa 10x y 17 μl de agua libre de nucleasa) durante 1 hora a 37 °C. A continuación, el imán elimina la solución enzimática y las perlas se resuspenden en 20 μl de tampón Tris-HCl de 10 mM. No es posible medir la concentración de ARN ya que está unido a las perlas. Las muestras deben almacenarse a -80 °C.
- Para la transcripción inversa utilice un kit de síntesis de ADNc. Las reacciones se realizaron siguiendo el protocolo del fabricante.
- Para la transcripción inversa del ARN total, agregue 1 μl (100 pmol) de cebador Oligo (dT)20 o 1 μl (0,4 μg) de hexámeros aleatorios, 1 μl de inhibidor de ARNasa y 1 μl de mezcla de dNTP de 10 mM a 1 μg de ARN y ajuste el volumen a 14 μl con agua sin nucleasas. Incubar a 65 °C durante 5 min y luego colocar las muestras en hielo. Agregue 1 μl de DTT 0,1M, 1 μl de transcriptasa inversa y 4 μl de tampón RT 5x. Las reacciones se incuban durante 55 min a 50 °C, seguidas de una etapa de inactivación a 70 °C durante 10 min. Después de la transcripción inversa, las muestras se pueden almacenar a -20 °C.
- Para el ARNm unido a perlas magnéticas, reemplace el tampón Tris-HCl con la primera mezcla de reacción (1 μl de inhibidor de ARNasa, 1 μl de mezcla de dNTP de 10 mM y 12 μl de agua sin nucleasa) e incube durante 5 min a 65 °C. Debido al saliente de Oligo (dT)25 de las perlas, no es necesario agregar un cebador Oligo (dT)20 o hexámeros aleatorios a las muestras. A continuación, siga el protocolo anterior (paso 4.5.1).
- Mida la concentración de ADNc con un espectrofotómetro. Almacene las muestras a -20 °C.
5. PCR en tiempo real
- Para los análisis con PCR en tiempo real, utilice ARN total extraído con el Micro Kit y una mezcla maestra SYBR Green QPCR. Para garantizar una cantidad igual de transcripciones, ajuste la concentración de ADNc de cada muestra al mismo valor después de la transcripción inversa.
- Además de las muestras inserte reacciones de control. Utilice un control sin plantilla para detectar contaminación en los reactivos y para comprobar la calidad de los cebadores. Para verificar la ausencia de ADN genómico, ejecute un control no RT. Ambas reacciones deben ser negativas (sin señal de fluorescencia) en la PCR en tiempo real.
- Para garantizar un nivel de transcripción igual entre las diferentes muestras, utilice al menos un gen de referencia. En este caso, se utilizaron pares de cebadores diseñados que codifican para una actina (adelante: 5'-CTCTTAACCCCAAAGCAAACAGG-3', reverso: 5'-GTGAGAGAACAGCCTGGATG-3') y un 18SrRNA (adelante: 5'-CTTGATTCTATGGGTGTGTGTG-3', reverso: GTTAGCAGGCTGAGGTCTC-3'). Como gen diana se eligió el TLP (adelante: 5'- GTGGGCAACAATTGGACCCAG-3', reverso: 5'-CATTCGATCCGGAAAGGCTAC-3'). El tamaño de cada fragmento amplificado era de unos 100 pb.
- Para una reacción de 25 μl, agregue 12,5 μl 2x SYBR Green QPCR Master Mix, ADNc (≥20 ng), 400 nM de cada cebador y 30 nM del colorante de referencia pasivo ROX (suministrado con el kit). Ajuste el volumen de la muestra a 25 μl con agua sin nucleasas.
- Las reacciones se realizaron en un termociclador QPCR con el siguiente programa: desnaturalización inicial a 95 °C durante 10 min para activar la polimerasa; 40 ciclos de desnaturalización (95 °C durante 30 seg), recocido (61 °C durante 60 seg) y extensión (72 °C durante 1 min); seguido de la curva de disociación (95 °C durante 60 seg, 55 °C durante 30 segundos, 95 °C durante 30 segundos). La curva de disociación es necesaria para determinar la ausencia de dímeros de cebador, que pueden ser detectados por un pico adicional.
- Determine la eficiencia (E) de cada reacción de PCR utilizando el método de Liu y Saint8. La eficiencia se puede desviar de la parte lineal de la curva de amplificación. Aquí, el número relativo de amplicones (Rn, A) de un punto de ciclo (CPA) está vinculado a la cantidad de amplicones (Rn, B) de otro ciclo (CPB).
- Analice los resultados de PCR en tiempo real con la herramienta de software de expresión relativa (REST 2009, http://www.gene-quantification.de/rest-2009.html) o un software similar. Utilice el programa para calcular la proporción de expresión de un gen en una muestra tratada en comparación con un control.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Resultados
Para la preparación de glándulas individuales a partir del tejido de cántaros de Nepenthes, se desarrolló y aplicó una técnica de microdisección mecanizada. La plataforma de micropreparación debe estar equipada con micropinzas, sujetas al micromanipulador, las cuales a su vez se operan mediante un panel de control. Las glándulas individuales, visibles bajo el microscopio, podían ser seleccionadas con las pinzas que agarraban el tejido glandular y lo extraían mecánicamente (Figura 4A).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
Durante mucho tiempo, los estudios de las estructuras secretoras de las plantas, en particular los tricomas, se han realizado esencialmente en anatomía y eran puramente descriptivos. Hay una gran cantidad de publicaciones de este tipo, como se resume en las revisiones de9-11. Nuestro conocimiento bioquímico y molecular de las estructuras secretoras de las plantas aún es limitado a pesar de algunos trabajos notables tempranos , por ejemplo, sobre tricomas glandulares de menta que muestran que los trico...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
No tenemos nada que revelar.
Agradecimientos
Agradecemos al equipo de invernaderos del MPI-CE en el Jardín Botánico de la Universidad Friedrich Schiller, Jena, por cultivar plantas y a Wilhelm Boland y a la Sociedad Max Planck por su apoyo.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| ARNacuoso-Micro Kit | Life Technologies GmbH, Alemania | AM1931 | Aislamiento de ARN total, 50 muestras |
| Dynabeads mRNA DIRECT Micro Kit | Life Technologies GmbH, Alemania | 61011 | 5 ml Dynabeads Oligo (dT)25 |
| DynaMag-2 imán | Life Technologies GmbH, Alemania | 12321D | |
| SuperScript CellsSistema directo de síntesis de ADNc | Life Technologies GmbH, Alemania | 18080-200 | 25 reacciones |
| RNaseOUT | Life Technologies GmbH, Alemania | 10777-019 | Inhibidor de la rnasa, 5.000 unidades |
| Hexámeros aleatorios (0,4 μ g/μ l) | QIAGEN GmbH, Alemania | 79236 | 100 μ l |
| 10 mM dNTP Mix, grado de biología molecular | Fermentas GmbH, Alemania | R0192 | 1 ml |
| Taq ADN polimerasa, (recombinante) | Fermentas GmbH, Alemania | EP0402 | Suministrado con 10x tampón Taq (con KCl o (NH4)2SO4) y 25 mM MgCl2 |
| TURBO DNase | Life Technologies GmbH, Alemania | AM2238 | 1.000 unidades |
| Agarose | Carl Roth GmbH Co. Alemania | T846.3 | |
| GeneRuler Escalera de ADN de gama baja, lista para usar | Fermentas GmbH, Alemania | SM1193 | 50 μ g |
| Brilliant II SYBR Green QPCR Master Mix | Agilent Technologies, Inc., EE. UU. | 600828 | Kit individual |
| RNaseZAP | Sigma-Aldrich, Taufkirchen, Alemania | R2020 | |
| Hoja de afeitar | Carl Roth GmbH Co., Alemania | CK08.1 | |
| Pinzas | Carl Roth GmbH Co., Alemania | 2801.1 / 2855.1 | |
| GE Espectrofotómetro NanoVue | GE Healthcare Europe GmbH, Alemania | 28-9569-62 | |
| Mastercycler gradiente | Eppendorf AG, Hamburgo, Alemania | 5331 000.010 | |
| Mx3000P Sistema de PCR en tiempo real | Stratagene, EE. UU. | 401403 | |
| Agagel Cámara de electroforesis de gel horizontal estándar | Biometra | Descatalogado | |
| Micromanipulador | Aura Optik GmbH | Aureka | Equipado con una |
| micropinza Microscopio estereoscópico | Carl Zeiss, Jena, Alemania | SteREO Lumar.V12 | Equipado con un AxioCam |
| Lumar Juego de filtros 01 | Carl Zeiss, Microscopía, Jena, Alemania | 485001-0000-000 | Filtro UV |
| Lumar Juego de filtros 09 | Carl Zeiss, Microscopía, Jena, Alemania | 485009-0000-000 | Filtro no UV |
Referencias
- Adlassnig, W., Peroutka, M., Land, I., Lichtscheidl, I. K. Glands of carnivorous plants as a model system in cell biological research. Acta Bot. Gall. 152, 111-124 (2005).
- Darwin, C. Insectivorous plants. , John Murray. London. (1875).
- Mithöfer, A. Carnivorous pitcher plants: Insights in an old topic. Phytochemistry. 72, 1678-1682 (2011).
- Owen Jr., T. P., Lennon, K. A., Santo, M. J., Anderson, A. N. Pathways for nutrient transport in the pitchers of the carnivorous plant. Nepenthes alata Ann. Bot. 84, 459-466 (1999).
- Brandt, S. P. Microgenomics: gene expression analysis at the tissue-specific and single-cell levels. J. Exp. Bot. 56, 495-505 (2005).
- Hölscher, D., Schneider, B. Application of laser-assisted microdissection for tissue and cell-specific analysis of RNA, proteins, and metabolites. Prog. Bot. 69, 141-167 (2008).
- Rottloff, S., Müller, U., Kilper, R., Mithöfer, A. Micropreparation of single secretory glands from the carnivorous plant Nepenthes. Anal. Biochem. 394, 135-137 (2009).
- Liu, W. H., Saint, D. H. A new quantitative method of real time reverse transcription polymerase chain reaction assay based on simulation of polymerase chain reaction kinetics. Anal. Biochem. 302, 52-59 (2002).
- Werker, E. Trichome diversity and development. Adv. Bot. Res. Inc. Adv. Plant Pathol. 31, 1-35 (2000).
- Fahn, A. Structure and function of secretory cells. Adv. Bot. Res. Inc. Adv. Plant Pathol. 31, 37-75 (2000).
- Juniper, B. E., Robins, R. J., Joel, D. M. The carnivorous plants. , Academic Press. London. (1989).
- Gershenzon, J., McCaskill, D., Rajaonarivony, J., Mihaliak, C., Karp, F., Croteau, R. Isolation of secretory-cells from plant glandular trichomes and their use in biosynthetic-studies of monoterpenes and other gland products. Anal. Biochem. 200, 130-138 (1992).
- Rontein, D., Onillon, S., et al. CYP725A4 from yew catalyzes complex structural rearrangement of taxa-4(5),11(12)-diene into the cyclic ether 5(12)-oxa-3(11)-cyclotaxane. J. of Biol. Chem. 283 (5), 6067-6075 (2008).
- Aharoni, A., Jongsma, M. A., Bouwmeester, H. J. Volatile science? Engineering of terpenoid biosynthesis in plants. Trends Plant Sci. 10, 594-602 (2005).
- Mithöfer, A., Boland, W., Maffei, M. E. Chemical ecology of plant-insect interactions. Ann. Plant Rev. 34, 261-291 (2009).
- Kennedy, G. G. Tomato pests, parasitoids, and predators: Tritrophic interactions involving the genus Lycopersicon. Ann. Rev. Entomol. 48, 51-72 (2003).
- Mithöfer, A., Boland, W. Plant defense against herbivores: Chemical aspects. Ann. Rev. Plant Biol. 63, 431-450 (2012).
- Rottloff, S., Stieber, R., Maischak, H., Turini, F. G., Heubl, G., Mithöfer, A. Functional characterization of a class III acid endochitinase from the traps of the carnivorous pitcher plant genus, Nepenthes. J. Exp. Bot. 62, 4649-4647 (2011).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Reimpresiones y permisos
