Ciertas perturbaciones genéticas o la exposición a toxinas pueden interrumpir los procesos normales de desarrollo y provocar la muerte de tipos específicos de células. El análisis de la caspasa 3 activada por inmunofluorescencia de montaje completo en embriones de pez cebra revela la localización específica de la etapa y el tejido de las células que experimentan específicamente la apoptosis.
Artículo de método
Análisis de la apoptosis en embriones de pez cebra en Todo el montaje de inmunofluorescencia para detectar la caspasa 3 activada
En este artículo
Resumen
Resumen
La inmunofluorescencia de montaje completo para detectar Caspasa 3 activada (ensayo Casp3) es útil para identificar células que experimentan apoptosis intrínseca o extrínseca en embriones de pez cebra. El análisis de montaje completo proporciona información espacial con respecto a la especificidad tisular de las células apoptosicas, aunque en última instancia se requiere el seccionamiento y/o coetiquetado para identificar los tipos exactos de células que experimentan apoptosis. El ensayo Casp3 de montaje completo está optimizado para el análisis de embriones fijos entre la etapa de 4 células y 32 horas después de la fertilización y es útil para una serie de aplicaciones, incluido el análisis de mutantes y morfantes del pez cebra, la sobreexpresión de ARNm mutantes y de tipo salvaje y la exposición a productos químicos. En comparación con la tinción con naranja de acridina, que puede identificar células apoptóticas en embriones vivos en cuestión de horas, los ensayos Casp3 y TUNEL tardan mucho más en completarse (2-4 días). Sin embargo, debido a la naturaleza dinámica de la formación y eliminación de células apoptóticas, el análisis de embriones fijos garantiza una comparación precisa de las células apoptóticas en múltiples muestras en puntos de tiempo específicos. También hemos encontrado que el ensayo Casp3 es superior al análisis de células apoptóticas mediante el ensayo TUNEL de montaje completo en lo que respecta al costo y la confiabilidad. En general, el ensayo Casp3 representa un ensayo robusto y altamente reproducible en el que analizar células apoptóticas en embriones tempranos de pez cebra.
Introducción
Aquí describimos cómo realizar inmunofluorescencia de montaje completo en embriones tempranos de pez cebra para detectar células con Caspasa 3 activada (referido en lo sucesivo como el ensayo Casp3). El objetivo general de este método es identificar la abundancia relativa y la ubicación de las células apoptóticas en el pez cebra desde la etapa de 4 células hasta las 32 horas posteriores a la fertilización (hpf).
Tanto las vías apoptóticas intrínsecas (mediadas por mitocondrias) como las extrínsecas (mediadas por receptores de muerte) median la muerte celular a través de la activación de la cascada de caspasas1-2. Las caspasas iniciadoras normalmente existen como monómeros dentro de la célula, y una vez reclutadas en plataformas específicas de la vía en respuesta a una señal pro-apoptótica, se convierten en dímeros activados. Las caspasas iniciadoras activadas (Caspasa 9; vía intrínseca, y Caspasa 8; vía extrínseca) se dirigen a las caspasas efectoras inactivas y predimerizadas (Caspasa 3, 6, 7) para que la escisión forme heterotetrámeros activos. A continuación, las caspasas efectoras activas escinden las dianas celulares con residuos de tetrapéptidos específicos para iniciar la destrucción proteolítica específica que culmina en las características ultraestructurales de la apoptosis, como la condensación de la cromatina y la formación de ampollas en la membrana, y las señales de la superficie celular que median el empaquetamiento de la célula para ser engullida por los fagocitos de forma inmune y silenciosa. En las células de mamíferos, se cree que las caspasas efectoras activas realizan la mayoría de los eventos de escisión celular que median la apoptosis a través de las vías intrínsecas y extrínsecas1-2. El protocolo descrito en este documento utiliza un anticuerpo que se une específicamente a la forma heterotetrámera escindida de la caspasa 3, pero no al dímero inactivo de la caspasa 3.
Una de las ventajas del ensayo Casp3 es la capacidad de visualizar la distribución espacial de las células apoptóticas dentro del contexto de todo el embrión. Por lo tanto, los tejidos de interés pueden examinarse para detectar la presencia de células apoptóticas, y si existen anticuerpos o cepas transgénicas fluorescentes que etiquetan tipos específicos de células, entonces es posible determinar la identidad exacta de las células que sufren apoptosis a través de experimentos de coetiquetado. Varios grupos han utilizado con éxito la caspasa 3 activada como marcador de apoptosis en embriones de pez cebra (por ejemplo, 3-7). Otras técnicas de montaje completo para identificar células apoptóticas en embriones de pez cebra incluyen el ensayo TUNEL8 y la tinción con naranja de acridina (AO)9. Hemos utilizado los tres métodos para identificar células apoptóticas en embriones de pez cebra4,6,10.
La tinción TUNEL (Terminal deoxynucleotidyl transferasa dUTP nick end labeling) aprovecha la enzima desoxinucleotidil transferasa terminal (TdT) que se utiliza para agregar nucleótidos a los extremos hidroxilo 3' del ADN durante la recombinación de VDJ en linfocitos11. El TdT añade dUTP-biotina a los grupos hidroxilo 3' libres en el ADN, que son abundantes principalmente en las células apoptóticas. A continuación, los tejidos se exponen a la avidina-peroxidasa y las células apoptóticas se tiñen tras la adición del sustrato 3-amino-9-etilcarbazol. El ensayo TUNEL se utilizó para realizar un análisis exhaustivo de células apoptóticas durante el desarrollo embrionario en tejidos de pez cebra de tipo salvaje12. Al igual que el ensayo Casp3, el ensayo TUNEL solo se realiza en embriones fijos. Hemos encontrado que el ensayo Casp3 es más consistente y menos costoso que el ensayo TUNEL.
La tinción AO se describió por primera vez como un mecanismo para identificar específicamente las células apoptóticas en Drosophila13. La AO tiñe tanto el citoplasma como el núcleo de las células apoptóticas, pero no necróticas. Es bien sabido que AO se une a los ácidos nucleicos14, y se cree que esto explica la tinción nuclear. Sin embargo, el AO no tiñe la cromatina de las células vivas; Más bien, parece que los cambios específicos que ocurren durante la apoptosis permiten la intercalación y la tinción de los núcleos apoptóticos condensados15. La tinción AO tiene la ventaja de un análisis apoptótico rápido de embriones vivos. Sin embargo, la documentación de las muestras debe realizarse rápidamente debido a la naturaleza dinámica de la formación y el aclaramiento de las células apoptóticas. Por otro lado, la fijación simultánea de todas las muestras proporciona una instantánea de la apoptosis en un momento dado en todas las muestras y no está sujeta a esta variable temporal. Por lo tanto, dado que el análisis de células apoptóticas mediante tinción AO no es compatible con embriones fijos, el ensayo Casp3 es preferible para experimentos en los que se requiere documentación fotográfica y/o cuantificación en múltiples muestras.
Protocolo
1. Preparación de soluciones
- Prepare 500 ml de 1x PBST (1x PBS, 0.1% Tween-20) y filtre la esterilización. 1x PBST se puede mantener a temperatura ambiente (RT) indefinidamente siempre que no haya signos de crecimiento bacteriano.
- PRECAUCIÓN: Prepare 50 ml de paraformaldehído (PFA) al 4% en una cubierta química disolviendo PFA en polvo en 1x PBS a 60 °C durante 1 hora y cubriendo con papel de aluminio para protegerlo de la luz. Almacenar a 4 °C durante 1 mes o a -20 °C durante 2 años.
- Prepare 500 ml de 1x PDT fresco (1x PBST, 0,3% Triton-X, 1% DMSO) 1x PDT puede almacenarse a 4 °C hasta un mes.
- Preparar 50 ml de tampón bloqueante (1x PBST, 10% suero fetal bovino inactivado por calor, 2% albúmina sérica bovina). Elabore alícuotas de 10 ml y almacene a -20 °C durante un máximo de 1 año. Una vez descongelado, el tampón de bloqueo puede almacenarse a 4 °C durante un máximo de 48 horas.
- Prepare 100 ml de metilcelulosa al 4% calentando 30 ml de agua a 80 °C. Agregue 4 g de metilcelulosa al agua caliente y mezcle con una barra de agitación en una placa de agitación a temperatura ambiente. La mezcla completa suele tardar entre 4 horas y toda la noche. Agregue el resto de agua (sin calentar) y mezcle a 4 °C durante 1 hora. Tienda en RT.
- Si se utilizan embriones entre la fase de brotación y 32 hpf, prepare 50 ml de pronasa de 10 mg/ml y almacene hasta 1 semana a 4 °C. De lo contrario, almacene en alícuotas de 10 ml a -20 °C durante un máximo de 1 año.
- Colocar 50 ml de metanol al 100% a -20 °C.
- Prepare 60 veces agua de huevo disolviendo 280 g de sal marina instantánea del océano en 2 L de agua destilada (como en Westerfield16). Prepare 1x agua de huevo diluyendo el caldo 60x en agua desionizada.
2. Preparación de embriones
- Recoja embriones de pez cebra en una placa de Petri en 1x agua de huevo entre la etapa de 4 celdas y 32 hpf.
- Para embriones entre las etapas de 4 células y yemas de cola, continúe con el paso 2.2.
- Para embriones entre la fase de yema y 32 hpf, eliminar los coriones añadiendo 100 μl de 10 mg/ml de pronasa a los embriones en 10 ml de 1x agua de huevo.
- Nota: La actividad de Pronase puede variar entre lotes. Por lo tanto, la concentración final de pronasa debe optimizarse para la decorionación cuando se obtengan nuevos lotes.
- Deje incubar a temperatura ambiente durante 30 min.
- Vierta el agua de huevo / solución de pronasa en los desechos y vuelva a agregar lentamente 1 agua de huevo fresca.
- Enjuague 2 veces vertiendo el agua de huevo existente (y los coriones que flotan libremente) y agregue suavemente agua de huevo nueva.
- Nota: La mayoría de los coriones deben eliminarse en este punto. Con una pipeta de transferencia, succiona suavemente los embriones hacia arriba y hacia abajo hasta que se eliminan los coriones restantes.
- Transfiere hasta 40 embriones a un tubo de 1,5 ml. Enjuague 2 veces con 1 ml de 1x PBST.
- Retire el PBST, dejando el líquido justo encima de los embriones (aproximadamente 100 μl de volumen deben permanecer en el tubo). Añadir 1 ml de PFA al 4%. Coloque los tubos de lado (de modo que los embriones se extiendan a lo largo del tubo) en un recipiente de tamaño adecuado para facilitar su transporte (por ejemplo, una placa de Petri o una caja de pipetas) y colóquelos en un balancín suave a 4 °C durante la noche o hasta una semana.
- En el caso de los embriones entre las etapas de 4 células y yemas de cola, descorionar manualmente los embriones fijados con pinzas.
3. Procedimiento de inmunofluorescencia
- Coloque los tubos en una rejilla para tubos de modo que todos los embriones se hundan hasta el fondo del tubo. Retire el PFA (al contenedor de desechos apropiado) dejando el líquido justo por encima del nivel de los embriones. Después de la fijación (paso 2.3), los embriones nunca deben exponerse al aire para evitar la tinción de anticuerpos de fondo.
- Añadir 1 ml de metanol 100% helado (para permeabilizar) gota a gota. Los embriones ahora son frágiles después de la fijación, y se debe tener especial cuidado para evitar que caigan dentro del tubo durante toda la extracción / adición posterior de líquidos. Coloque los tubos de lado y colóquelos a -20 °C durante 2 horas. Alternativamente, los embriones pueden dejarse a -20 °C durante un máximo de 24 horas.
- Coloque los tubos en una rejilla para recoger los embriones en la parte inferior del tubo. Eliminar el metanol, dejando el líquido justo por encima del nivel de los embriones.
- Agregue con cuidado 1 ml 1x PDT. Retire la PDT y agregue 1 ml de 1x PDT fresca. Coloque los tubos de lado y meciéndalos suavemente en RT durante 30 minutos. Retire la PDT y repita el lavado durante 30 minutos con PDT nueva.
- Retire la PDT hasta que el líquido esté justo por encima del nivel de los embriones y agregue 500 μl de tampón de bloqueo.
- Coloque los embriones de lado en un contenedor de transporte y asegúrese de que los embriones no viajen más de 2/3 de la longitud del tubo. De lo contrario, los embriones quedan atrapados en la tapa del tubo y fuera del líquido.
- Coloque con cuidado el recipiente de transporte con tubos en un balancín muy suave a RT durante 1 hora.
- Coloque los tubos en posición vertical en una rejilla para tubos y abra todos los tubos para verificar si hay embriones atascados en la tapa. En el caso de los tubos con embriones en la tapa, cierre la parte superior y balancee suavemente el tubo con la mano para que todos los embriones vuelvan al líquido.
- Añadir 1 μl de anticuerpo anti-caspasa 3 anti-conejo (dilución 1:500).
- Si se realiza un experimento de comarcaje, simplemente agregue la dilución adecuada del segundo anticuerpo no derivado del conejo además del anticuerpo antiactivado Caspasa 3.
- Coloque cuidadosamente los embriones de lado y mézclelos suavemente a temperatura ambiente durante 2 horas. Alternativamente, los embriones se pueden incubar a 4 °C durante la noche.
- Coloque los tubos en un soporte para tubos. Retire la solución de bloque/anticuerpo. Añadir 1 ml de 1x PDT. Asegúrese de invertir el tubo con la mano para recoger los embriones atascados en la tapa del tubo. Luego, abra todos los tubos para asegurarse de que todos los embriones se hayan extraído de la tapa.
- Repita el paso 3.4.
- Repita los pasos 3.5-3.10, pero sustituya el anticuerpo anti-caspasa 3 anti-activado por la dilución adecuada de un anticuerpo anti-conejo conjugado con fluoróforos que absorbe la luz azul y emite luz verde. Sin embargo, en este caso se puede utilizar cualquier anticuerpo conjugado con fluoróforos con un espectro de absorción/emisión preferible para el usuario. Después de la adición del anticuerpo secundario, es importante mantener los embriones en la oscuridad durante el resto del ensayo. Cubra el recipiente de transporte con papel de aluminio durante los pasos de incubación, pero no se preocupe por la exposición a la luz al cambiar los tampones.
- Si realiza un experimento de comarcaje, simplemente agregue la dilución adecuada de un anticuerpo secundario complementario conjugado con fluoróforos en este paso.
- Nota: Si el usuario desea etiquetar la caspasa 3 activa con células que expresan Gfp, el anticuerpo anti-caspasa 3 anti-activo de conejo debe ir seguido aquí por un anticuerpo secundario anti-conejo no fluorescente verde, y el anticuerpo anti-GFP debe ser seguido por un anticuerpo secundario no conejo de fluorescencia verde. Esto eliminará la confusión si alguna fluorescencia de Gfp permanece visible después de la fijación de los embriones.
4. Análisis de células apoptóticas por microscopía de fluorescencia
- Analice embriones en 1x PDT en una pequeña placa de Petri o placa puntual de vidrio bajo un microscopio fluorescente utilizando el filtro de luz adecuado. Si los controles positivos tienen una fluorescencia brillante con un fondo mínimo, continúe con el paso 4.2. (Si no es así, consulte la sección de solución de problemas en la Discusión y repita el protocolo con nuevos embriones). Los embriones pueden almacenarse a 4 °C en 1x PDT durante un máximo de 48 horas.
- Vierta un 4% de metilcelulosa en una placa de Petri de 3,5 cm, lo suficiente para cubrir el fondo de la placa. Alternativamente, se puede usar una placa de punto de vidrio o un portaobjetos de depresión con una gran gota de metilcelulosa en la depresión. Succionar cuidadosamente los embriones desde el fondo del tubo hasta una pipeta de transferencia limpia y transferirlos a la placa de Petri para su visualización.
- Orientar un embrión de interés para su documentación utilizando una sonda en ángulo. Es probable que haya cierta variabilidad entre los embriones de la misma muestra, por lo que es importante tomar imágenes que representen la intensidad y el patrón de fluorescencia observados en la mayoría de los embriones de esa muestra. La documentación debe realizarse dentro de las 48 horas posteriores a la finalización del ensayo para evitar la acumulación de fluorescencia de fondo inespecífica. La metilcelulosa residual al 4% no interferirá con las reacciones posteriores de PCR necesarias para el genotipado de embriones.
- Nota: Para ayudar en la inmovilización de un embrión en un cierto ángulo, es útil empujar suavemente el embrión hacia el fondo de la placa para que la yema o alguna otra parte del embrión (dependiendo de la vista deseada) descanse en el fondo de la placa. A continuación, utilice la sonda para mover el embrión o la metilcelulosa que lo rodea inmediatamente (mientras se visualiza simultáneamente bajo el microscopio) para obtener el ángulo deseado para la documentación.
Resultados
El ensayo de Casp3 proporciona evidencia clara de células apoptóticas desde la etapa de 4 células hasta las 32 hpf. Figura 2A muestra que la inyección de embriones con altas concentraciones de ARNm que codifican proteínas proapoptóticas potentes del tipo solo BH3, como Bim o Noxa, induce rápidamente la aparición de Caspasa 3 activa ya en la etapa de 4 células del desarrollo. Posteriormente, la muerte embrionaria ocurre dentro de la primera hora4. Tenga en cuenta que la intensidad de la fluorescencia es moderada, pero los resultados son concluyentes. En etapas más avanzadas, la intensidad de la fluorescencia es más intensa. Por ejemplo, Figura 2B muestra células activas positivas para Caspasa 3 en embriones en estadio de esfera que han sido inyectados con niveles moderadamente tóxicos4 de ARNm que codifica para el pro-apoptótico solo bh3 gen puma. ARN mensajero que codifica el antiapoptótico bcl-2 el gen se coinyectó para demostrar que la inyección de puma El ARNm induce apoptosis a través de la vía intrínseca mediada por mitocondrias.
La apoptosis inducida por radiación infrarroja en el pez cebra requiere la transcripción mediada por p53 de genes exclusivos de BH3 como puma5-6. El retraso en la apoptosis inducida por radiación infrarroja en la Figura 3 es consistente con el requisito de transcripción mediada por p53.
El protocolo de Casp3 debe generar una relación señal-ruido robusta. Figura 4 compara el resultado óptimo del ensayo de Casp3 con dos resultados subóptimos comunes que surgen cuando se ven comprometidos pasos críticos (véase la Discusión): una relación señal-ruido débil debido a la fluorescencia de fondo en el tejido animal y la fluorescencia del vitelo que interfiere con la señal de interés.
Los experimentos de doble marcado utilizando líneas transgénicas que expresan GFP aproximan los tejidos que experimentan apoptosis (Figura 5).
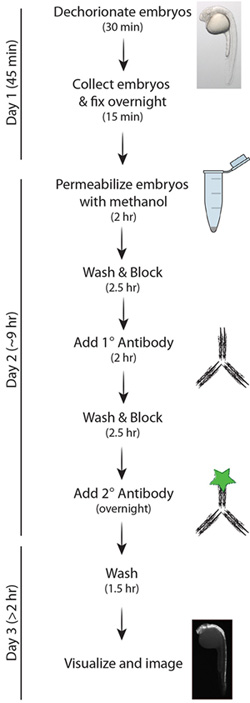
Figura 1. Esquema simplificado del protocolo de Casp3.

Figura 2. (A) Análisis de la apoptosis en embriones en estadio de 4 células. Los embriones fueron inyectados en el estadio de una célula con 50 pg de ARNm que codifica egfp (control) o el pro-apoptótico solo bh3 genes bim y noxa. En el estadio de 4 células (aproximadamente una hora después de la inyección, hpi), los embriones se analizaron mediante inmunofluorescencia para detectar Caspasa 3 activada. Bim y noxa El ARNm induce apoptosis rápida en embriones de pez cebra inmediatamente después de la inyección, lo que, si se deja que los embriones se desarrollen, conduce a la muerte a las 2 hpi4. Se muestra una imagen de campo brillante de un embrión silvestre en estadio de 4 células para comparación.B) Análisis de la apoptosis en embriones de pez cebra en estadio de esfera. Los embriones fueron inyectados en el estadio de una sola célula con ARNm que codifica ya sea para 50 pg egfp (control), 5 pg puma más 45 pg egfp (puma), o 5 pg puma más 45 pg de bcl-2 (bcl-2). En la fase de blástula (aproximadamente 4 hpi), los embriones se analizaron mediante el ensayo Casp3. Se muestran vistas laterales y del polo animal para visualizar las células apoptóticas. Rescate del apoptosis inducida por puma mediante bcl-2 indica que la inyección de puma El ARNm induce apoptosis específicamente a través de la vía intrínseca mediada por mitocondrias. Se muestra una imagen de campo brillante de un embrión silvestre en etapa de esfera para comparación.

Figura 3. Curso temporal de la apoptosis inducida por radiación ionizante (IR) entre las 17-20 hpf. Los embriones de pez cebra fueron irradiados con 8 Gy de IR a las 17 hpf y analizados a las 0, 1,5, 2 y 3 horas posteriores a la IR (hpIR) mediante el ensayo Casp3. Las flechas a las 20 hpf muestran la acumulación de células apoptóticas en la médula espinal a las 3 hpIR. Se muestra una imagen de campo claro de un embrión de 17 hpf para su comparación.
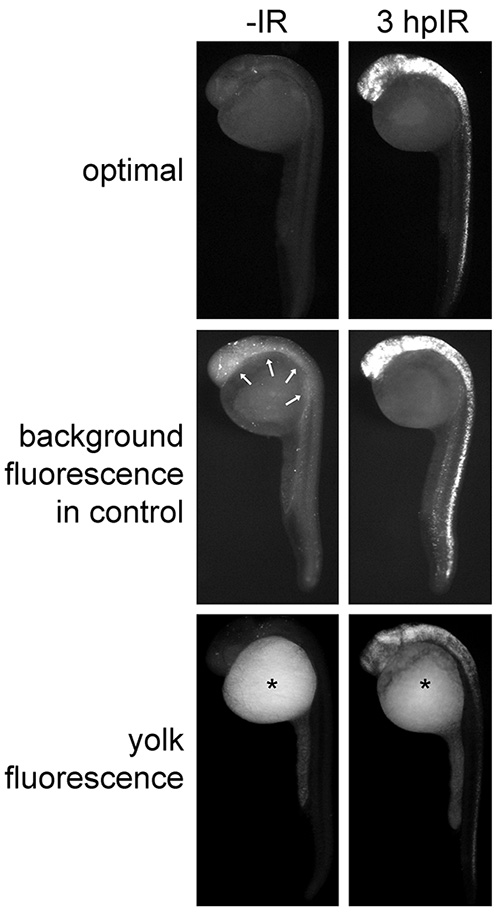
Figura 4. Resultados óptimos y subóptimos de inmunofluorescencia de Casp3 en embriones de 27 hpf. Los embriones de pez cebra fueron irradiados (o no) a las 24 hpf con 15 Gy y analizados mediante el ensayo de Casp3. El grupo «óptimo» muestra resultados ideales en los que las células apoptóticas fluorescen intensamente, mientras que las células no apoptóticas y la yema presentan fluorescencia de fondo mínima. Las flechas en el grupo «fluorescencia de fondo en control» indican una fluorescencia de fondo excesiva en el tejido animal de los embriones control. Los asteriscos en el grupo «fluorescencia de la yema» demuestran una fluorescencia inespecífica excesiva en la yema.
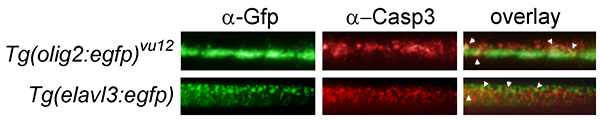
Figura 5. Los experimentos de doble marcado aproximan la especificidad tisular de la apoptosis inducida por radiación ionizante. La línea transgénica Tg(olig2:egfp)vu12 marca neuronas motoras y oligodendrocitos17, y la línea Tg(elavl3:egfp) marca todas las neuronas en diferenciación18. Cada línea transgénica fue irradiada con 15 Gy a las 24 hpf y analizada 3 horas después mediante el uso de anticuerpos primarios ratón anti-GFP y conejo anti-caspasa 3 activa, seguidos de anticuerpos secundarios con fluorescencia verde y roja, respectivamente. Se muestra una ampliación de la médula espinal (ubicada dorsalmente al extremo de la extensión del vitelo en embriones de 27 hpf, 3 h después de la irradiación). Las células apoptóticas parecen estar parcialmente localizadas en las poblaciones Tg(elavl3:egfp) y Tg(olig2:egfp)vu12 (ver cabezas de flecha en la superposición), lo que sugiere que las neuronas y los oligodendrocitos son sensibles a la apoptosis inducida por radiación ionizante.
Discusión
El ensayo Casp3 tal como se presenta en este protocolo está destinado a ser sencillo y, si se realiza como se indica en este documento, debería dar lugar a una relación señal-ruido sólida. Los pasos críticos de este protocolo incluyen el uso de tampón PDT fresco 1x para todos los lavados, una longitud suficiente de los pasos de lavado en el tampón PDT después de la incubación de embriones en el anticuerpo primario, un manejo cuidadoso de los embriones y una contabilidad meticulosa de todos los embriones dentro de tubos o pipetas de transferencia durante todos los pasos del protocolo.
En nuestra experiencia, las siguientes son las razones más comunes de la falta de una señal en los controles positivos: 1) 1x PBST se sustituye por 1x PDT durante los pasos de lavado, 2) 1x tampón PDT tiene más de un mes, 3) se utilizó el anticuerpo secundario incorrecto, 4) los embriones tienen más de 32 hpf y/o 5) se analizaron más de 40 embriones en un tubo. Cuando surgen resultados inconsistentes o variabilidad dentro de las muestras, esto generalmente se debe a que 1) no se tuvo cuidado para garantizar que todos los embriones permanecieran dentro del líquido en todo momento durante el procedimiento, y / o 2) los embriones no se incubaron con suficiente balanceo. Los altos niveles de ruido de fondo a menudo se visualizan como una neblina fluorescente general que surge en todo el tejido animal del embrión (ver Figura 4, "fluorescencia de fondo"). Puede surgir una mala relación señal-ruido cuando 1) los embriones no se lavaron durante el tiempo suficiente después del anticuerpo primario, y / o 2) los embriones se dejaron en PFA o metanol durante más tiempo del recomendado. Si los embriones no permanecen intactos al final del ensayo: 1) las soluciones no se agregaron gota a gota después de la fijación con PFA, y / o 2) la velocidad del balancín durante los pasos de incubación se estableció demasiado alta.
La visualización de montaje completo inherente al ensayo Casp3 es útil para la localización espacial de células apoptóticas. Sin embargo, la especificidad del tejido es aproximada y probablemente dependerá de técnicas de coetiquetado (ver Figura 5) y / o seccionamiento de embriones para identificar la identidad exacta de las células que experimentan apoptosis. En el protocolo descrito aquí, el comarcaje está limitado por el requisito del anticuerpo específico derivado de conejo utilizado en nuestro ensayo. No hemos identificado un anticuerpo anti-Caspasa 3 antiactivado no derivado de conejo disponible comercialmente que marque específicamente las células apoptóticas mediante inmunofluorescencia de montaje completo en embriones de pez cebra. Por lo tanto, los anticuerpos específicos del tipo celular que se crían en conejos no serán compatibles con el ensayo Casp3 para experimentos de coetiquetado. Una alternativa es realizar un ensayo TUNEL que requiere un anticuerpo derivado de ratón para marcar células apoptóticas6. Sin embargo, hemos encontrado que el ensayo TUNEL de montaje completo realizado en embriones de pez cebra es muy sensible a una serie de variables en la reacción, incluida la concentración de la enzima TdT, la duración de la incubación del embrión en la enzima TdT y el número de embriones presentes por tubo (nuestras observaciones no publicadas). Por lo tanto, es un desafío encontrar un equilibrio de enzimas que brinde una interpretación consistente de los resultados. Por lo tanto, una alternativa preferible es analizar células apoptóticas en embriones de pez cebra transgénicos que expresan un fluoróforo (con anticuerpos robustos disponibles comercialmente) como GFP en un tipo de célula específico. Luego, se pueden realizar experimentos de coetiquetado utilizando un anticuerpo primario anti-Gfp de ratón seguido de un anticuerpo secundario anti-ratón fluorescente verde. Consulte la Figura 5 para ver un ejemplo.
Si bien el protocolo Casp3 proporciona una tinción robusta y confiable de células apoptóticas en embriones desde la etapa de 4 células hasta 32 hpf, tiene una aplicación limitada más allá de 32 hpf debido a la incapacidad de los anticuerpos para penetrar en la piel de embriones más viejos. Las técnicas adicionales para permeabilizar los embriones, incluido el tratamiento con colagenasa, tripsina, acetona o etanol, podrían optimizarse para adaptar este ensayo al análisis de embriones más viejos. Sin embargo, la tinción con AO se puede realizar en peces cebra vivos hasta al menos 5 días de edad9. Por lo tanto, el ensayo AO elude la restricción de la etapa embrionaria y representa un ensayo rápido para analizar células apoptóticas (1-2 horas). Por el contrario, el ensayo Casp3 requiere la fijación nocturna de los embriones y tarda de 2 a 4 días en completarse. Las desventajas del ensayo AO incluyen que la documentación fotográfica eficiente de los embriones puede ser un desafío con múltiples muestras, ya que los embriones están vivos y las células apoptóticas se forman y eliminan rápidamente. Esto puede ser especialmente problemático si es necesario montar embriones para obtener una orientación específica para la documentación. Además, hemos encontrado que la tinción de AO disminuye después de la fijación con PFA, por lo que no es compatible con experimentos de comarcaje que involucran inmunofluorescencia.
El análisis cuantitativo de la caspasa 3 activada se puede realizar utilizando programas de software que miden la intensidad de fluorescencia de las imágenes documentadas. Hemos cuantificado la apoptosis inducida por IR en el tejido neural, un método que hemos descrito en detalle en otra parte10. Dependiendo del experimento, el análisis cuantitativo de la caspasa 3 activada puede requerir una manipulación adicional de los embriones, como el montaje plano, para obtener la orientación adecuada para un análisis óptimo de los tejidos. Además, la linealidad del análisis dependerá del grosor del tejido que se esté analizando. Por ejemplo, analizamos la apoptosis inducida por IR en el tejido neural midiendo la inmunofluorescencia de caspasa 3 activa en el tejido neural poco profundo de la médula espinal en lugar del tejido denso en neuronas del cerebro4,10.
En nuestra experiencia, el ensayo Casp3 es el ensayo más robusto y confiable disponible para analizar la apoptosis en embriones de pez cebra entre la etapa de 4 células y 32 hpf cuando el análisis requiere mucho tiempo para la documentación. Cuando se dispone de anticuerpos o líneas transgénicas apropiadas para identificar células específicas, este ensayo también es muy susceptible de comarcaje para identificar los tipos específicos de células que sufren apoptosis.
Divulgaciones
Los autores no tienen nada que revelar.
Agradecimientos
La financiación fue proporcionada por la Fundación Huntsman contra el Cáncer (CJ, CT), la subvención de la Sociedad Americana contra el Cáncer #RSG-13-025-01-CSM (RS) y NIH T32 GM007464-36 (SS).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Tubos de 1,5 ml | Denville Scientific | c2170 | No peligroso. Cualquier tubo de plástico similar de 1,5 m será suficiente. |
| 10x solución salina tamponada con fosfato (PBS) | Sigma Aldrich | P5493 | No peligroso. |
| Anticuerpo de caspasa-3 humano activado | por Fisher Scientific | BDB559565 | Puede ser perjudicial si se inhala o se ingiere. |
| Anticuerpo monoclonal a-GFP (ratón) | Life Technologies | 33-2600 | Puede ser perjudicial si se inhala o se ingiere. |
| a-HuC/HuD proteína neuronal humana, IgG2b de ratón, monoclonal 16A11 - UNCONJ | Life Technologies | A21271 | Puede ser perjudicial si se inhala o se ingiere. |
| Albúmina, Aislamiento de choque térmico BSA bovino | Amresco | CAS 9048-46-8 | No peligroso. También se puede comprar a través de Bioexpress: 0332-1006 |
| Alexa Fluor 488 Donkey anti-mouse IgG | Life Technologies | A11029 | Uso en dilución 1:200. Puede ser dañino si se inhala o se ingiere. |
| Alexa Fluor 488 Burro anti-Conejo IgG | Life Technologies | A21206 | Úselo con dilución 1:200. Puede ser dañino si se inhala o se ingiere. |
| Alexa Fluor 568 Burro anti-Conejo IgG | Life Technologies | A10042 | Úselo con dilución 1:200. Puede ser dañino si se inhala o se ingiere. |
| Dimetilsulfóxido (DMSO) | Sigma Aldrich | D8418 | Inflamable. |
| Pinzas de acero inoxidable Dumont #5 (puntas estándar/rectas) | Fine Science Tools | 11251-20 | ¡Afiladas! |
| Suero fetal bovino FBS HyClone | Thermo-Fisher | SH3091003 | no peligroso. |
| Fisher Scientific Rotador de ocelotes | Fisher Scientific | 05-450-21 | Cualquier rotador con control de velocidad manual es adecuado. |
| Sal instantánea del acuario oceánico | Petco | 1373684 | no peligroso. |
| Metanol (sin acetona) | Sigma Aldrich | M1775 | Inflamable: tóxico por inhalación, ingestión y contacto. |
| Metilcelulosa | Sigma Aldrich | M0387-1006 | No peligroso. |
| Paraformaldehído | Sigma Aldrich | P6148 | Inflamable: tóxico por inhalación, ingestión y contacto. |
| Sonda (Angulado 80 corto / 15,5 cm / 0,15 mm de diámetro de punta) | Fine Science Tools | 10140-02 | ¡Afilado! |
| Pronase | Roche | 11459643001 | no peligroso. |
| Placa de punto Pyrex | Fisher Scientific | 13-748B | No peligroso. |
| Pipetas de transferencia, Samco de uso general | Thermo-Scientific | 204 | No peligrosas. |
| Triton X-100 | Sigma Aldrich | T8787 | Irritante: nocivo por ingestión o contacto. |
| Tween-20 | Sigma Aldrich | P7949 | No peligroso. Otras marcas incluyen VWR #97063-872. |
Referencias
- Tait, S. W., Green, D. R. Mitochondria and cell death: outer membrane permeabilization and beyond. Nat. Rev. Mol. Cell Biol. 11, 621-632 (2010).
- Taylor, R. C., Cullen, S. P., Martin, S. J. Apoptosis: controlled demolition at the cellular level. Nat. Rev. Mol. Cell Biol. 9, 231-241 (2008).
- Eimon, P. M., et al. Delineation of the cell-extrinsic apoptosis pathway in the zebrafish. Cell Death Differ. 13, 1619-1630 (2006).
- Jette, C. A., et al. BIM and other BCL-2 family proteins exhibit cross-species conservation of function between zebrafish and mammals. Cell Death Differ. 15, 1063-1072 (2008).
- Kratz, E., et al. Functional characterization of the Bcl-2 gene family in the zebrafish. Cell Death Differ. 13, 1631-1640 (2006).
- Sidi, S., et al. Chk1 suppresses a caspase-2 apoptotic response to DNA damage that bypasses p53, Bcl-2, and caspase-3. Cell. 133, 864-877 (2008).
- Zhao, X., et al. Interruption of cenph causes mitotic failure and embryonic death, and its haploinsufficiency suppresses cancer in zebrafish. J. Biol. Chem. 285, 27924-27934 (2010).
- Yager, T. D., Ikegami, R., Rivera-Bennetts, A. K., Zhao, C., Brooker, D. High-resolution imaging at the cellular and subcellular levels in flattened whole mounts of early zebrafish embryos. Biochem. Cell Biol. 75, 535-550 (1997).
- Furutani-Seiki, M., et al. Neural degeneration mutants in the zebrafish, Danio rerio. Development. 123, 229-239 (1996).
- Sorrells, S., et al. Ccdc94 Protects Cells from Ionizing Radiation by Inhibiting the Expression of p53. PLoS Genet. 8, (2012).
- Gavrieli, Y., Sherman, Y., Ben-Sasson, S. A. Identification of programmed cell death in situ via specific labeling of nuclear DNA fragmentation. J. Cell Biol. 119, 493-501 (1992).
- Cole, L. K., Ross, L. S. Apoptosis in the developing zebrafish embryo. Dev. Biol. 240, 123-142 (2001).
- Abrams, J. M., White, K., Fessler, L. I., Steller, H. Programmed cell death during Drosophila embryogenesis. Development. 117, 29-43 (1993).
- Beers Jr, R. F., Hendley, D. D., Steiner, R. F. Inhibition and activation of polynucleotide phosphorylase through the formation of complexes between acridine orange and polynucleotides. Nature. 182, 242-244 (1958).
- Delic, J., Coppey, J., Magdelenat, H., Coppey-Moisan, M. Impossibility of acridine orange intercalation in nuclear DNA of the living cell. Exp. Cell Res. 194, 147-153 (1991).
- Westerfield, M. The Zebrafish Book. , University of Oregon Press. Eugene, OR. (1993).
- Shin, J., Park, H. C., Topczewska, J. M., Mawdsley, D. J., Appel, B. Neural cell fate analysis in zebrafish using olig2 BAC transgenics. Methods Cell Sci. 25, 7-14 (2003).
- Park, H. C., et al. Analysis of upstream elements in the HuC promoter leads to the establishment of transgenic zebrafish with fluorescent neurons. Dev. Biol. 227, 279-293 (2000).
Reimpresiones y permisos
