A diferencia del VIH-1 partículas libres de células, las células T CD4 + infectados son detectados con eficacia por las células dendríticas plasmocitoides (PDC). Este manuscrito describe un método donde las células mononucleares de sangre periférica (PBMCs) o PDC aisladas son co-cultivadas con VIH-1 en las células T infectadas para evaluar detección innata por PDC según la evaluación de liberación de IFN de tipo I.
Artículo de método
La evaluación de la innata de detección de VIH-1 CD4 infectados
En este artículo
Resumen
Resumen
VIH-1 de detección innata requiere el contacto directo de las células T CD4 + infectadas con células dendríticas plasmacitoides (PDC). Con el fin de estudiar este proceso, los protocolos descritos aquí utilizan recién aisladas células humanas mononucleares de sangre periférica (PBMCs) o células dendríticas plasmacitoides (PDC) para detectar infecciones en cualquiera de las líneas de células T (MT4) o células primarias heterólogos T CD4 +. A fin de garantizar una detección adecuada, es esencial que PBMC se aíslan inmediatamente después de la recogida de sangre y que porcentaje óptimo de las células T infectadas se utilizan. Además, la tinción de citometría de flujo multiparamétrica se puede utilizar para confirmar que contienen muestras de PBMC los diferentes linajes de células en proporciones fisiológicas. Una serie de controles también puede ser incluido para evaluar la viabilidad y la funcionalidad de PDC. Estos incluyen, la presencia de marcadores de superficie específicos, la evaluación de las respuestas celulares a agonista conocido de receptores toll-like (TLR) vías, y confirmando la falta de Spontáneo interferón de tipo I (IFN) de producción. En este sistema, las PBMC recién aisladas o PDC son co-cultivadas con VIH-1 en las células infectadas en placas de 96 pocillos durante 18-22 h. Los sobrenadantes de estos co-cultivos se utilizan entonces para determinar los niveles de IFN de tipo I bioactivos mediante el control de la activación de la vía ISGF3 en IFN-alfa células / beta HEK-Blue. Antes y durante las condiciones de co-cultivo, las células diana pueden ser sometidos a análisis de citometría de flujo para determinar una serie de parámetros, incluyendo el porcentaje de células infectadas, los niveles de marcadores de superficie específicos, y diferenciado muerte de las células infectadas. Aunque, estos protocolos se desarrollaron inicialmente para seguir la producción de IFN de tipo I, que podrían ser utilizadas para estudiar otras moléculas Imuno-modulador liberados de PDC y para obtener una mayor comprensión de los mecanismos moleculares que regulan el VIH-1 de detección innata.
Introducción
Tipo I IFN-producción de PDC representan la primera línea de defensa contra las infecciones virales, y como tal, sirven como un vínculo vital entre la inmunidad innata y adaptativa 1. Si bien el VIH-1 partículas libres de células están mal detectados por el sistema inmune innato, las células T CD4 + infectados por el VIH-1 se detectan efectivamente por PDC 2. El mecanismo de detección requiere un contacto inicial entre la glicoproteína de la envoltura viral (gp120) en la superficie de la célula T infectada y moléculas CD4 en el PDC, que es seguido por la captura de virus y la internalización por la PDC. Reconocimiento subsiguiente del transferida ARN VIH-1 por TLR7 desencadena la activación de la Myd88 / vía IRF7 y en última instancia conduce a la de tipo I la producción de IFN 3. Es importante destacar que la segunda vía presente en PDC de detección, que está mediada por TLR9, se inhibe por la interacción de la glicoproteína viral, gp120, con el BDCA2 marcador de superficie específico PDC-4.
Los TLR7 y TLR9 vías de detección de pDC potencialmente puede ser modulada negativamente por la participación de BST2 (también designado teterina o CD317) con otro receptor pDC específica inhibidora superficie llamada ILT7 5. BST2 se expresa en altos niveles en la superficie de PDC y algunas células cancerosas, pero a niveles relativamente inferiores en otros tipos de células, tales como células B, macrófagos, y células T. Es importante destacar que, BST2 puede ser inducida por IFN de tipo I en un número de líneas celulares transformadas así como en cultivos celulares primarios de los orígenes humanos y murinos 6. Aparte de su función inmuno-reguladora, BST2 se ha descubierto recientemente para inhibir la liberación de VIH-1 y otra envuelta partículas virales por partículas virales nacientes de reticulación sobre la superficie de células infectadas 7. En el caso del VIH-1, la proteína accesoria codificada por el virus U (Vpu) fue mostrado para actuar como un antagonista BST2. Se cree que regula a la baja Vpu BST2 de la superficie celular de las células infectadas por VIH-1, el sitio de su ataduraing actividad y como resultado aumenta la liberación viral y la propagación 7, aunque esta noción ha sido cuestionada 8,9. En ausencia de Vpu, un gran número de completamente formadas y la progenie madura VIH-1 partículas son retenidas en la superficie celular. Si estas partículas atados podrían representar objetivos eficaces para la detección inmunológica sigue siendo una cuestión abierta. Además, no está claro si Vpu podría dysregulate producción de IFN-I Tipo de PDC por la superficie modulación BST2 niveles.
Los primeros estudios diseñados para evaluar el VIH-1 se realizaron utilizando detección de VIH-1 partículas libres de células, que generalmente se consideran inductores pobres de tipo I IFN 3,10-12. Dado que los estudios recientes sugieren que PBMCs y PDC detectan de manera eficiente T infectadas por el VIH CD4 + linfocitos 2,13,14, como se describe aquí un método simple para medir las respuestas innatas desencadenados por PDC sobre el reconocimiento de las células infectadas por VIH-1 in vitro.
Protocolo
Notas generales
Es importante mantener las células en cultivo sin ningún antibiótico, ya que las infecciones bacterianas incluso controlada puede ser detectada por PBMCs. Tal detección de componentes bacterianos inducirá un fondo producción de interferón que no se puede distinguirse de la provocada por el VIH-1 específica de detección. Además, todas las células tienen que ser probados rutinariamente para la ausencia de contaminación por micoplasma.
Siempre use soluciones de endotoxina libre siempre que sea posible.
Flow caracterización de citometría de las diferentes células que se utilizará en los co-cultivos (PBMCs, PDC, MT4 y las células T CD4 +) es un paso opcional, pero muy recomendable, ya que puede proporcionar información valiosa necesaria para la correcta interpretación de un experimento dado.
1. Preparación de las células diana infectadas
- Mantener humano línea de células T CD4 + MT4 en RPMI 1640 mediun suplementado con 10% de suero bovino fetal (FBS), que se refiere de ahora en adelante como medio RPMI-1640 completo.
- Aislamiento de células primarias T CD4 +.
- Aislar las células mononucleares de sangre periférica humana mediante centrifugación en gradiente de densidad.
- Aislar los linfocitos T CD4 + utilizando un kit de selección negativa células T CD4 +, siguiendo las recomendaciones del fabricante.
- Activar los linfocitos T CD4 + con PHA-L (5 mg / ml) durante 48 horas y después mantener las células en medio RPMI-1640 completo suplementado con IL-2 recombinante (100 U / ml). Infectar las células T 5 días después de aislamiento primario.
- La infección de las células diana (línea celular MT4 T o células primarias heterólogos T CD4 +).
- Dos días antes de la co-cultivo, infectar las células T con virus VIH-1. En el ejemplo específico descrito aquí se utilizaron-GFP_ires_Nef pNL4.3 tipo salvaje (WT) o pNL4.3-GFP_ires_Nef delta Vpu (dVpu) virus. Estas cepas virales representan green proteína fluorescente (GFP) -marcado clones moleculares infecciosos isogénicas que difieren únicamente en su capacidad para expresar Vpu.
- Utilice diferentes multiplicidades de infección (MOI) y seleccione culturas con niveles similares de infección para los compañeros de las culturas. El día del co-cultivo, determinar el porcentaje de células GFP + por citometría de flujo como un marcador de la infección. Utilice sólo las culturas con un rango de 20 a 50% de células infectadas para co-cultivos.
Pasos opcionales: Realizar tinción de citometría de flujo en este momento para evaluar la expresión superficial de moléculas / ligandos de interés como BST2, y CD4. Para la tinción de la superficie celular, resuspender 0,5 x 10 6 células T en 100 l de solución de lavado, añadir 1 l de anti-CD4_PerCP / Cy5.5 y 1 l de anti-BST2_A660. Incubar los tubos durante 45 min a 4 ° C, antes de lavar con citometría de flujo solución de lavado. Si los estudios están dirigidos a evaluar el papel de la mediada Vpu antagonismo BST2, realice una partícula de VIH-1ensayo de liberación en este momento como se ha descrito previamente 15.
2. El aislamiento y enriquecimiento de Sintiendo células (PBMCs enteros o enriquecidos PDC)
Nota: Cuando se utilizan PBMC para la detección, se inicia el aislamiento dentro de media hora después de la extracción de sangre y llevar a cabo de una manera oportuna. Utilice PBMCs de inmediato para los compañeros de culturas o de enriquecimiento PDC.
- Aislar las células mononucleares de sangre periférica humana mediante centrifugación en gradiente de densidad.
Paso opcional: Realizar la tinción de citometría de flujo multiparamétrica para confirmar que los PBMCs recién aisladas contienen los diferentes linajes de células en proporciones fisiológicas. Para la tinción de superficie celular, resuspender 10 6 PBMCs en 100 l de solución de bloqueo Fc, y se incuba durante 15 min a 4 ° C. Después del bloqueo, añadir 1 l de anti-CD3_Pacific azul (para las células T), 1 l de anti-CD14-PE_Texas Rojo (por células mieloides), 4 l de anti-BDCA2_APC y 1 l de anti-ILT7_PE (por PDC). Incubartubos durante 45 min a 4 ° C, antes de lavar con citometría de flujo solución de lavado. - Enriquecer PDC utilizando un kit de selección negativa pDC, siguiendo las recomendaciones del fabricante. Se recomienda trabajar con rapidez, mantener las células en frío, y el uso de soluciones pre-enfriado. Esto evitará que la nivelación de anticuerpos en la superficie celular y el etiquetado de células no específico, así como asegurar la actividad pDC máxima.
- Realizar multi-paramétrico de análisis de citometría de flujo de las PDC recién aisladas para confirmar la pureza, el porcentaje de enriquecimiento, y cantidades relativas de pDC- marcadores de superficie específica (tales como ILT7 y BDCA2). Para la tinción de superficie celular, resuspender 10 4 PDC en 100 l de solución de bloqueo Fc, y se incuba durante 15 min a 4 ° C. Después del bloqueo, añadir 1 l de anti-CD3_Pacific Azul, 1 l de anti-CD14_PE_Texas Rojo, 4 l de anti-BDCA2_APC y 1 l de anti-ILT7_PE. Incubar los tubos durante 45 min a 4 ° C, antes de lavar con citometría de flujo solución de lavado (PBS, 5EDTA mM, 5% de FBS). Se recomienda un mínimo de 40% de pureza pDC (si el material de partida tiene 0,4% pDC, esto sería equivalente a un enriquecimiento de 100 veces).
3. Co-cultivo de células infectadas T CD4 + y células de detección (PBMCs enteros o enriquecidos PDC)
- Mezclar 220 l de PBMCs (diluido a 850.000 células / ml) o 220 l de PDC (a una concentración que varía de 100.000 a 500.000 células / ml) con 30 l de células T infectadas (diluido en 10 6 células / ml) por pocillo en una placa de fondo en U 96.
- Como solo los controles, PBMCs placa o PDC y células T. Ajustar el volumen en el pozo a 250 l con medio RPMI 1640 completo.
- Evaluar las respuestas celulares a conocido agonista de las vías TLR7 y TLR9. Con este fin, la placa 220 l de PBMCs (diluido a 850.000 células / ml) o 200 l de PDC (a una concentración que varía de 100.000 a 500.000 células / ml) por pocillo en una placa de fondo en U de 96 pocillos y añadir TLR7 agonista ( Imiquimod, concentración final: 2,5 mg / ml) o TLR9 agonista (ODN CpG-A 2,216, concentración final: 5 mM). Se incuban las células a 37 ° C y 5% de CO 2 durante 18-22 hr y procesarlos en una manera similar a los co-cultivos se describen a continuación.
- Incubar co-cultivos a 37 ° C y 5% de CO2 durante 18 a 22 horas, y luego transferir a una placa de 96 pocillos-V inferior. Centrifugar durante 5 min a 400 x g.
- Traslado sobrenadantes a una placa de fondo plano de 96 pocillos. Los sobrenadantes pueden ser almacenadas a -80 ° C o se utilizan para la detección de IFN de tipo I inmediatamente.
- Resuspender las células co-cultivaron en 2% de paraformaldehído y analizarlos usando citometría de flujo. Debido a diferencias en el tamaño y la granulación, las células MT4 se distinguen fácilmente de PBMCs o PDC en función de su dispersión lateral (SS) frente a la dispersión frontal (FS) perfiles. Si las células T primarias se utilizan como células diana infectadas, estos pueden ser teñidas con un colorante de rastreador celular, tal como CSFE, para co-cultivo antes.
- Medición de bioactivo tipo I IFN utilizando células reportero beta HEK-Blue IFN-a /.
Nota: Estas células fueron generados por transfección estable de células HEK293 con los genes STAT2 y irf9 humanos para obtener un tipo completamente activo I IFN vía de señalización. También contienen la fosfatasa alcalina secretada (SEAP) gen informador bajo el control de la IFN-α / ß promotor inducible ISG54. La estimulación de estas células con IFN de tipo I activa el JAK / STAT / ISGF3 vía e induce la producción de SEAP.- Mantener las células HEK-Blue IFN-α / ß en DMEM suplementado con 10% FBS. Placa de ellos a una densidad de 50.000 células por pocillo en una placa de fondo plano de 96 pocillos, en un volumen final de 180 microlitros.
- Añadir 20 l de co-cultivo sobrenadante a cada pocillo por duplicado. Cada placa también requiere un conjunto de controles estándar interno (IFN humano, concentración final de 100 U / ml a 2.500 U / ml). Incubar las placas a 37 ° C y 5% de CO2 durante 18H -22.
- Determinar los niveles de actividad de la fosfatasa alcalina utilizando solución de QUANTI azul, que cambia de rosa a púrpura / azul en presencia de la enzima. Preparar QUANTI-Blue siguiendo las recomendaciones del fabricante. Añadir 180 l de esta solución a cada pocillo de una placa de fondo plano de 96 pocillos. A cada pocillo también añadir 20 l de los sobrenadantes de células HEK-Blue IFN-α / ß inducidas, y se incuba la placa en una incubadora a 37 ° C hasta que el color se desarrolla en los pocillos de control estándar de IFN.
- Evaluar los niveles de SEAP utilizando un espectrofotómetro a 620 a 655 nm y determinar la concentración de IFN de tipo I por extrapolación de la parte lineal de la curva estándar de IFN.
Resultados
El sistema de co-cultivo descrito en la figura 1 permite un estudio controlado del VIH-1 de detección innata. Debido a la naturaleza variable de las células primarias, es importante que se respeten las proporciones normales de células mieloides y T (CD14 + y CD3 +, respectivamente), como en el ejemplo mostrado en la Figura 2A. Además, sólo un bajo número de células T activadas (FS más altos y niveles CD3 superiores en comparación con las células no activadas T) son deseables en los cultivos de PBMC recién aisladas. PBMCs con relaciones anormales entre los diversos tipos de células son a menudo incapaces de montar una respuesta inmune innata adecuada in vitro, probablemente debido a un fenotipo ya activado como consecuencia de una infección en curso. Lo más importante, el porcentaje relativo de PDC necesita ser evaluado como se muestra en la Figura 2B. Aunque este porcentaje puede variar de 0,2 a 1,2%, un fenotipo de detección anormal también se observa con ambos extremes de este rango. Enriquecimiento de PDC utilizando selección negativa a menudo produce el 50-95% pDC pureza, como se ve en los dos ejemplos de en la Figura 2B (92% y 72%). Un ejemplo prototípico para el experimento global se muestra en las figuras 3 y 4. En este ejemplo, las células MT4 se infectaron con pNL4.3-GFP_ires_Nef WT o delta Vpu para lograr la infección 30% en el momento de co-cultivo (Figura 3A). Como se describió anteriormente, sólo la infecciones con el virus WT dieron como resultado una regulación a la baja significativa de BST2 superficie (Figura 3B). Debido a sus diferencias en tamaño y granularidad, células MT4 pueden distinguirse fácilmente de las PBMC por citometría de flujo (Figura 4A). Después de la incubación de co-cultivo, sólo los PBMCs en contacto con conocido TLR7 o TLR9 agonista y PBMCs en contacto con el VIH-1 en las células infectadas liberados cantidades significativas de IFN de tipo I (Figura 4B). No se detectó IFN en PBMCs solo, en PBMCs co-cultured con células MT4 falsamente infectadas o en células MT4 infectadas por sí solos (Figura 4B). En el ejemplo que aquí se presenta, se encontró detección innata de las células MT4 infectadas por VIH-1 por PBMCs que se reduzca significativamente en la presencia de Vpu.
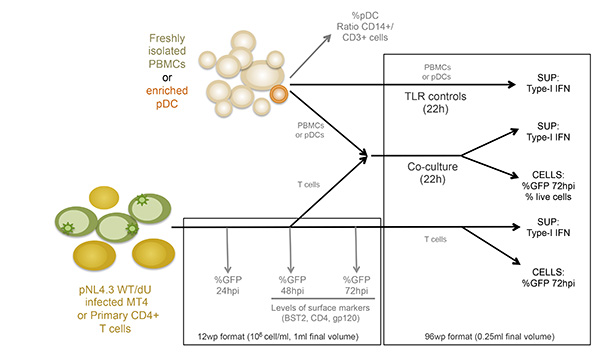
Figura 1:. Visión esquemática del diseño experimental SUP: sobrenadante Haga clic aquí para ver la imagen más grande.
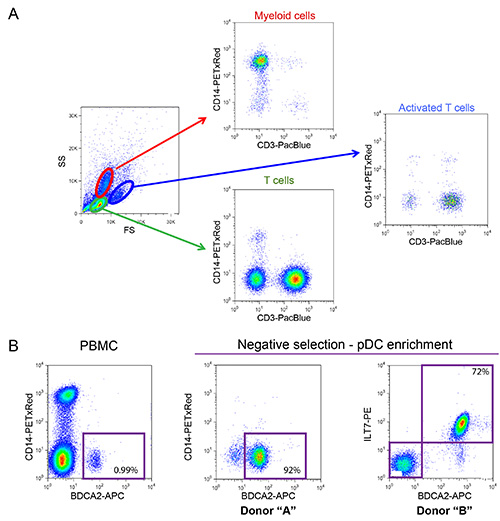
Figura 2: Caracterización fenotípica de PBMCs y enr recién aisladasPDC iched. (A) La distribución normal de las células mieloides y las células T observadas en PBMCs aisladas de un donante sano (Porcentaje de células mieloides deberían oscilar entre 10-20% y las células T entre el 55-65%). Muestra de PBMC se tiñeron utilizando anticuerpos conjugado con fluoróforo que reconocen CD14 de superficie (marcador de linaje mieloide) y CD3 (marcador de células T). (B) la caracterización fenotípica de PDC. Antes de PDC de enriquecimiento representan entre 0,2 a 1,2% del número total de células dentro de los PBMCs (0,99% en el ejemplo mostrado). Estas células pueden ser identificados basado en la expresión de marcadores específicos, tales como BDCA2 y ILT7, presentes en la superficie celular. La selección negativa se puede utilizar para enriquecer significativamente el número de PDC y eliminar contaminaciones potencialmente perjudiciales, tales como CD14 + células mieloides (enriquecimiento que alcanzan 92% y 72% en los dos ejemplos se muestra). Click aquí para ver la imagen más grande.
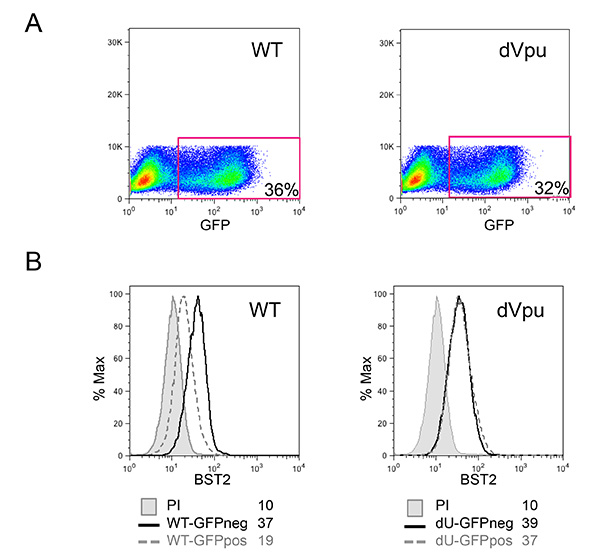
Figura 3:. Caracterización de células MT4 diana infectadas por el VIH-1 (A) Porcentaje de células infectadas dentro de las culturas MT4 infectadas con pNL4.3-GFP_ires_Nef WT o dVpu según lo determinado por el porcentaje de células positivas para GFP. Expresión en la superficie (B) de células BST2 en las células infectadas se evaluó después de tinción de la superficie. Los histogramas grises lleno representan células falsamente infectadas teñidos con el suero de conejo pre-inmune (control sin teñir); los histogramas restantes representan células teñidas con anti-suero de conejo policlonal BST2. Los histogramas con líneas continuas representan las células negativas GFP control (neg); mientras histogramas con líneas de puntos corresponden a las células infectadas GFP positivas (POS). La media de la gripeintensidad orescence valores (IMF) se indican para cada muestra. La citometría de flujo se realizó y se analizaron como se describe en la figura 2. Haga clic aquí para ver la imagen más grande.
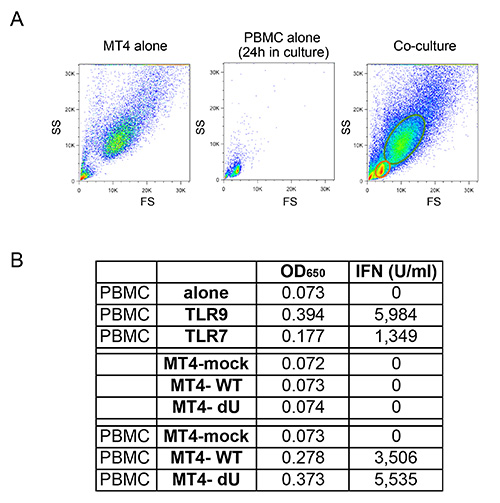
Figura 4:. La cultura Co de PBMC recién aisladas y células MT4 T infectadas (A) Comparación de la citometría de flujo perfiles FS / SS observados para células MT4 T solamente, PBMC solas o compañeros de culturas entre PBMCs y células MT4 T. Debido a las diferencias de tamaño y granularidad, las células MT4 T pueden distinguirse fácilmente de PBMCs en co-cultivos utilizando citometría de flujo. (B) Ejemplo representativo de la cantidad de tipo I IFN liberado después de la estimulación de PBMC con TLR7 o TLR9 agonista (hace), o después de co-cultivos con fingida o las células MT4 indicados infectadas con pNL4.3-GFP_ires_Nef WT o dVpu. Los datos brutos muestran como OD 650 valores y su correspondiente converseion tipo I a la concentración de IFN expresados en U / ml. Haz click aquí para ver la imagen más grande.
Discusión
Los protocolos descritos aquí miden la detección de las células T infectadas con el virus VIH-1 GFP-etiquetados que difieren únicamente en su capacidad para expresar Vpu, como se describe en nuestro informe reciente 18. Sin embargo, estos métodos podrían ser fácilmente modificados para estudiar la detección de los virus sin etiquetar, así como virus que carecen de otros genes virales que potencialmente podrían modular de detección innata. Si los virus utilizados no expresan GFP, el porcentaje de células diana infectadas deben ser determinados por otros medios antes de co-cultivo, tales como p24 (cápsida) tinción intracelular y citometría de o por p24 ELISA fluir. Además, estos protocolos se pueden utilizar con diferentes células T diana, incluyendo una variedad de líneas celulares y células primarias disponibles.
Los métodos descritos en este manuscrito tienen una serie de ventajas en comparación con los primeros metodologías utilizadas para estudiar el VIH-1 de detección. En primer lugar se ha establecido por un número de grupos que libre de células VIH-1 partículos son inductores pobres de tipo I IFN 2,13,14. Además, los primeros estudios se basaban en métodos más antiguos basados en ELISA IFNa para cuantificar la cantidad de IFN de tipo I producido. Una limitación de esta técnica de detección es que la mayoría de los kits ELISA IFN antiguos sólo miden un tipo de IFN, mientras que con vistas a los otros tipos de IFN y IFNß. El uso de las líneas de células reportero descritas supera esta limitación como la concentración de todas las formas bioactivas de IFNs humanos de tipo I se puede medir a la vez. La técnica es muy sensible, menos costoso que la nueva generación de kit ELISA IFN y para muchos donantes grandes cantidades de tipo I IFN se pueden detectar fácilmente. Sin embargo, este protocolo se puede adaptar fácilmente para su uso con otros-yo tipo IFN métodos de lectura de tales como ELISA.
Los pasos críticos: Es importante que la calidad de todos los componentes celulares (ambos objetivos y efectores) ser estrechamente controlada. Contaminación potencial, incluso cuando asymptomatic, necesita ser monitoreado y controlado. Como mencionamos anteriormente, los antibióticos controla la contaminación bacteriana asintomática, y potencialmente otros patógenos intracelulares, tales como micoplasmas, puede generar respuestas inmunes similares a los observados después de la infección por VIH-1, a saber, la producción de IFN de tipo I. Por otra parte, todos los reactivos deben estar libres de LPS o de otras endotoxinas potenciales. Del mismo modo, el seguimiento de PBMCs y PDC también es importante ya que las muestras humanos a menudo pueden ser preparados por infecciones en curso subyacentes, que pueden afectar de detección normal. Recomendamos siempre incluyendo las propuestas de controles negativos, como la ausencia de las células diana, así como co-cultivos con células infectadas. Viabilidad de las células infectadas también es importante para la detección pDC adecuada ya que el tipo-I IFN no se produce después de co-cultivo con células apoptóticas 2,14.
Una limitación importante de la técnica es la necesidad de que las células primarias recién aisladas. Este procedimiento no eraprobado utilizando PBMCs o PDC que fueron ya sea previamente congelados o en cultivo. El aislamiento de PBMCs es mano de obra intensiva y estas células tienen una vida útil muy limitada. Además, los protocolos estándar para la protección contra patógenos de transmisión sanguínea deben usarse mientras se trabaja con sangre humana. A menudo hay varias fuentes de variabilidad asociados con el trabajo que implican las células humanas recién aisladas. Entre ellos se encuentran los diferentes procedimientos implementados para aislar estas células y la variabilidad hereditaria encontradas de los donantes a los donantes. Si bien es imposible evitar la variabilidad entre los donantes, el uso de las sugeridas controles positivos, como la medición de la respuesta a los agonistas conocidos de TLR7 y TLR9 vías, proporcionaría un importante control interno para estos experimentos. Hemos observado que una respuesta robusta a los agonistas de la vía TLR9 podría correlacionarse con una respuesta pDC sano, mientras que se requiere una vía de TLR7 de respuesta para una respuesta adecuada contra el VIH-1 3.
En base a las observaciones hechas por nosotros y otros 2, a menudo no se necesita enriquecimiento de PDC de PBMCs. Sin embargo, si el diseño experimental lo requiere (por ejemplo, en el contexto donde se necesita el agotamiento de los marcadores específicos de la superficie PDC) selección negativa es preferible a la selección positiva, como las células permanecen libres de anticuerpo después del proceso de selección. PDC aisladas sufren apoptosis rápida en la cultura. Para los experimentos que requieren estas células para ser cultivadas durante un período prolongado de tiempo, medios de cultivo se pueden complementar con IL-3. Esta citoquina induce la proliferación pDC e inhibe su apoptosis 16. Sin embargo, el uso de IL-3 necesita ser estrictamente controlada ya que puede dar lugar a la maduración PDC o la diferenciación.
El método descrito aquí combina diana del VIH-1 en las células infectadas con PBMCs o PDC recién aisladas con el fin de recrear los pasos iniciales que participan durante la detección innata. Este método, sin duda, será útil para explorcorreos primeros eventos inmunes innatas asociadas con la infección por el VIH. Aunque los protocolos asociados están dirigidos a medir tipo I IFN, que fácilmente podrían ser modificados para medir otras moléculas bioactivas liberadas de PDC en el reconocimiento de las células infectadas. Estos podrían incluir: Tipo III-IFN (IFN-λ), citoquinas pro-inflamatorias (tales como TNF-α e IL-6) y el CXCL10 quimiocinas, CCL4, CCL5 y 17.
Agradecimientos
Damos las gracias a E. Massicotte y J. señor de asistencia técnica de expertos durante la citometría de flujo y experimentos con células de clasificación. Además, nos gustaría dar las gracias al personal de la clínica IRCM y todos los donantes para proporcionar muestras de sangre. Muestras de sangre periférica se obtuvieron de donantes adultos sanos que dieron su consentimiento informado por escrito de conformidad con la Declaración de Helsinki bajo protocolos de investigación aprobados por la junta de revisión del Institut de Recherches Cliniques de Montréal (IRCM) ética de la investigación. Los siguientes reactivos se obtuvieron a través del Programa de reactivos NIH SIDA, División de SIDA, NIAID, NIH: células MT4 del Dr. Douglas Richman; y RIL-2 humana del Dr. Maurice Gately, Hoffmann - La Roche Inc.
El Dr. Cohen es el destinatario de la Cátedra de Investigación de Canadá en Retrovirología humana. Este trabajo fue apoyado por becas de CIHR (CIHR 111.226) con el Dr. Cohen y del Fonds de recherche du Québec-Santé (FRQ-S) de la red del SIDA al Dr. Bego y el Dr. Cohen.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Células MT4 | Programa de reactivos para el SIDA de los NIH | 120 | Este reactivo se obtuvo a través del Programa de reactivos para el SIDA de los NIH, División de SIDA, NIAID, NIH: MT-4 del Dr. Douglas Richman. |
| HEK-Blu IFN-α/β células reporteras | Invivogen | HKB-IFNAB | |
| RPMI | Wisent | 350-000-CL | |
| DMEM | Wisent | 319-005-CL | |
| FBS | Wisent | 080-150 | |
| Ficoll-Pâ que Plus | Myltenyi | 17-1440-03 | |
| Kit de aislamiento de células T CD4+ II | Myltenyi | 130-091-155 | |
| Kit de aislamiento de células dendríticas plasmocitoide de diamante II | Myltenyi | 130-097-240 | |
| PHA-L | Sigma-Aldrich | O2769 | |
| RIL-2 humano Programa de | reactivos | 136 | Este reactivo se obtuvo a través del Programa de reactivos para el SIDA de los NIH, División de SIDA, NIAID, NIH: RIL-2 humano del Dr. Maurice Gately, Hoffmann - La Roche Inc. |
| Imiquimod | Invivogen | TLRL-IMQS | |
| ODN 2216 CpG-A | Hycult Biotec | HC4037 | |
| IFN&alfa humano; | Fuente de interferón PBL | 11100-1 | |
| QUANTI-Azul | Cedarlane | REP-QB2 | |
| Citometría de flujo (anticuerpos/reactivos) | |||
| Solución de bloqueo Fc (composición a continuación): | Nota: hacer en solución de lavado (PBS, 5mM EDTA, 5% FBS) | ||
| 10% Suero de cabra | Sigma-Aldrich | G 9023 | |
| 10% Suero de conejo | Sigma-Aldrich | R 9133 | |
| 10% Suero de ratón | Sigma-Aldrich | M 5909 | |
| 2,5 mg/ml de IgG humana | Sigma-Aldrich | I 4506 | |
| anti-CD3_Pacific Azul | Biolegend | 300417 | |
| anti-CD14_PE-TxRed | Life Technologie | MHCD1417 | |
| anti-BDCA2_APC | Myltenyi | 130-090-905 | |
| anti-ILT7_PE | Biolegend | 326408 | |
| anti-CD4_PerCP/Cy5.5 | Biolegend | 317427 | |
| anti-BST2_Alexa 660 | eBioscience | 50-3179 | |
| Paraformaldehído | Sigma-Aldrich | P 6148 | |
| Filtro de celdas | BD Falcon | 352340 | |
| Instrumento ADP cian | Beckman Coulter | CY20030 |
Referencias
- Colonna, M., Trinchieri, G., Liu, Y. J. Plasmacytoid dendritic cells in immunity. Nature immunology. 5, 1219-1226 (2004).
- Lepelley, A., et al. Innate sensing of HIV-infected cells. PLoS pathogens. 7, e1001284(2011).
- Beignon, A. S., et al. Endocytosis of HIV-1 activates plasmacytoid dendritic cells via Toll-like receptor-viral RNA interactions. The Journal of clinical investigation. 115, 3265-3275 (2005).
- Martinelli, E., et al. HIV-1 gp120 inhibits TLR9-mediated activation and IFN-{alpha} secretion in plasmacytoid dendritic cells. Proceedings of the National Academy of Sciences of the United States of America. 104, 3396-3401 (2007).
- Cao, W., et al. Regulation of TLR7/9 responses in plasmacytoid dendritic cells by BST2 and ILT7 receptor interaction. The Journal of experimental medicine. 206, 1603-1614 (2009).
- Bego, M. G., Mercier, J., Cohen, E. A. Virus-activated interferon regulatory factor 7 upregulates expression of the interferon-regulated BST2 gene independently of interferon signaling. Journal of virology. 86, 3513-3527 (2012).
- Neil, S. J., Zang, T., Bieniasz, P. D. Tetherin inhibits retrovirus release and is antagonized by HIV-1 Vpu. Nature. 451, 425-430 (2008).
- Miyagi, E., Andrew, A. J., Kao, S., Strebel, K. Vpu enhances HIV-1 virus release in the absence of Bst-2 cell surface down-modulation and intracellular depletion. Proceedings of the National Academy of Sciences of the United States of America. 106, 2868-2873 (2009).
- McNatt, M. W., Zang, T., Bieniasz, P. D. Vpu binds directly to tetherin and displaces it from nascent virions. PLoS pathogens. 9, e1003299(2013).
- Manel, N., et al. A cryptic sensor for HIV-1 activates antiviral innate immunity in dendritic cells. Nature. 467, 214-217 (2010).
- Yan, N., Regalado-Magdos, A. D., Stiggelbout, B., Lee-Kirsch, M. A., Lieberman, J. The cytosolic exonuclease TREX1 inhibits the innate immune response to human immunodeficiency virus type 1. Nature immunology. 11, 1005-1013 (2010).
- Fonteneau, J. F., et al. Human immunodeficiency virus type 1 activates plasmacytoid dendritic cells and concomitantly induces the bystander maturation of myeloid dendritic cells. Journal of virology. 78, 5223-5232 (2004).
- Ankel, H., Capobianchi, M. R., Frezza, F., Castilletti, C., Dianzani, F. Interferon induction by HIV-1-infected cells: a possible role of sulfatides or related glycolipids. Virology. 221, 113-119 (1996).
- Schmidt, B., Ashlock, B. M., Foster, H., Fujimura, S. H., Levy, J. A. HIV-infected cells are major inducers of plasmacytoid dendritic cell interferon production, maturation, and migration. Virology. 343, 256-266 (2005).
- Bego, M. G., Dube, M., Mercier, J., Cohen, E. A. Effect of calcium-modulating cyclophilin ligand on human immunodeficiency virus type 1 particle release and cell surface expression of tetherin. Journal of virology. 83, 13032-13036 (2009).
- Grouard, G., et al. The enigmatic plasmacytoid T cells develop into dendritic cells with interleukin (IL)-3 and CD40-ligand. The Journal of experimental medicine. 185, 1101-1111 (1997).
- Fitzgerald-Bocarsly, P., Jacobs, E. S. Plasmacytoid dendritic cells in HIV infection: striking a delicate balance. Journal of leukocyte biology. 87, 609-620 (2010).
- Bego MG,, Côté, É, Aschman, N., Mercier, J., Weissenhorn, W. Cohen ÉA. Exploits the Cross-Talk between BST2 and the ILT7 Receptor to Suppress Anti-HIV-1 Responses by Plasmacytoid Dendritic Cells. PLoS Pathog. 11 (7), e1005024(2015).
Reimpresiones y permisos
