Describimos aquí un sistema que utiliza un bloque de proteínas in vivo reversible y específico del sitio para detener y colapsar las horquillas de replicación en Escherichia coli. El establecimiento del bloque de replicación se evalúa mediante microscopía de fluorescencia y se utiliza electroforesis en gel de agarosa en 2 dimensiones neutro-neutro para visualizar los intermedios de replicación.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de método
Induciendo un bloqueo de replicación de sitios en específico
En este artículo
Resumen
Resumen
Los obstáculos presentes en el ADN, incluyendo proteínas unidas herméticamente y varias lesiones, pueden inhibir seriamente la progresión de la maquinaria de replicación de la célula. El estancamiento de un replisome puede conducir a su disociación de los cromosomas, ya sea en parte o en su totalidad, lo que lleva al colapso del tenedor de replicación. La recuperación de este colapso es una necesidad para que la célula con precisión completa la duplicación cromosómica y, posteriormente, dividir. diversos mecanismos, por lo tanto, cuando se produce el colapso, la célula ha evolucionado que se realizan para restaurar el tenedor de replicación del ADN y permitir que se completen con alta fidelidad. Anteriormente, estas vías de reparación de replicación en bacterias se han estudiado utilizando los rayos UV, que tiene la desventaja de no ser localizado en un sitio conocido. Este manuscrito describe un sistema que utiliza un sistema de fluorescencia represor de operador (FROS) para crear un bloque de proteína específica de sitio que puede inducir el estancamiento y el colapso de la replicación foRKS en Escherichia coli. Protocolos detalle cómo el estado de la replicación se puede visualizar en las células vivas individuales mediante microscopía de fluorescencia y la replicación del ADN intermedios pueden ser analizados por electroforesis en gel de agarosa al 2-dimensional. Mutantes sensibles a la temperatura de los componentes replisome (por ejemplo DnaBts) se pueden incorporar en el sistema para inducir un colapso síncrono de las horquillas de replicación. Por otra parte, las funciones de las proteínas de recombinación y helicasas que están implicados en estos procesos pueden ser estudiados utilizando knockouts genéticos dentro de este sistema.
Introducción
Durante la replicación del ADN, la replisome se enfrenta a obstáculos en el ADN que deterioran su progresión. Daño del ADN incluyendo lesiones y vacíos, así como estructuras aberrantes pueden prevenir la replisome de proceder 1. Recientemente, se ha encontrado que las proteínas unidas al ADN son la fuente más común de impedimento a la replicación progresión tenedor 2. El conocimiento de los eventos siguientes el encuentro de la replisome con un bloque de nucleoproteína previamente ha sido limitado por la incapacidad para inducir un bloque de este tipo en el cromosoma de una célula viva en una ubicación conocida. El análisis in vitro ha mejorado nuestra comprensión del comportamiento cinético de un replisome activa cuando se encuentra con una obstrucción nucleoproteína 3, así como los detalles mecanicistas de la propia 4,5 replisome. El conocimiento actual de la reparación de la replicación se realiza generalmente con UV como agente dañino y estudió el uso de ADN plásmido in vivo 6-8 . Mientras que las proteínas que pueden estar implicados en la reparación del ADN después de que se encuentra un bloque de nucleoproteína in vivo son generalmente comprendidas a partir de estos estudios, si hay variaciones en los eventos moleculares dentro de las vías de reparación debido a la causa distinta en el bloque de la replicación sigue siendo todavía estar determinado.
A continuación, describimos un sistema que permite a un bloque de nucleoproteína que se establecerá en una ubicación específica del cromosoma usando un sistema de operador represor fluorescente (FROS). Utilizamos una cepa de E. coli que ha tenido una serie de 240 sitios teto incorporados en el cromosoma 9. Cada sitio tetO dentro de la matriz tiene una secuencia aleatoria de 10 pb que lo flanquean para aumentar la estabilidad de la matriz mediante la prevención de la recombinación mediada por RecA dentro de la matriz. Esta matriz, y variaciones de la misma, se utilizaron originalmente para entender E. coli dinámica de los cromosomas 10,11, pero luego fueron adaptados a prevent replicación in vivo 12. La matriz se ha encontrado que se mantiene de manera estable y para bloquear cerca de 100% de las horquillas de replicación cuando se une por TetR 10,12. El uso de la matriz Laco similares in vitro ha encontrado tan pocos como 22 sitios eran suficientes para bloquear el 90% de la replicación, aunque esta matriz más corto fue menos eficaz in vivo 13. Para adaptar la matriz para crear un bloqueo nucleoproteína, la proteína represora debe ser altamente producida en exceso en condiciones optimizadas donde se une a la matriz para crear un control de carretera. La formación de la obstrucción, y su posterior liberación, pueden ser controlados mediante el uso de microscopía de fluorescencia si se utiliza una variante marcado con fluorescencia del represor Tet. El estado de la replicación en cada celda se indica mediante el número de focos visto, donde un único punto focal significa sólo una copia de la matriz está presente dentro de la célula y múltiples focos son indicativos de replicación activa. Esta re activaplicatura está habilitada cuando el bloqueo nucleoproteína se invierte por la adición del inductor gratuito que disminuye la afinidad de unión de TetR para el sitio operador suficientemente para que el replisome para proceder a través de la matriz. La proteína represora es todavía capaz de unirse al ADN con afinidad suficientemente alta para que los ahora múltiples copias de la matriz pueden ser visualizados.
Más detalles intrincados de los eventos en el bloqueo de la nucleoproteína se pueden descubrir mediante electroforesis en gel neutro neutro de dos dimensiones de agarosa y la hibridación de Southern 14-16. Estas técnicas permiten el análisis de estructuras de ADN en toda la población. Los intermediarios de replicación que se forman durante el evento, y potencialmente permanecen sin reparar, puede ser visualizado. Mediante la variación de la enzima de restricción y la sonda se utilizan, los intermedios se pueden visualizar no sólo en la región de matriz, pero también aguas arriba de la matriz cuando el tenedor de replicación retrocede 17,18. losregresión se hayan producido después de la disociación replisome; los principales y menos hebras nacientes separan de las cadenas de molde y recocido entre sí como las cadenas de molde simultáneamente re-recocido resulta en una estructura de ADN de cuatro direcciones (una unión de Holliday).
El uso de este sistema se ha demostrado que el tenedor de replicación no es estable cuando se encuentra con este bloque 18. Además, los derivados sensibles a la temperatura de los componentes replisome se pueden utilizar para evitar la recarga de la tenedor de replicación una vez que se ha colapsado. Una vez que se estableció un bloque, la cepa se puede desplazar a una temperatura no permisiva para asegurar una desactivación síncrona del replisome y una prevención controlada de recarga. Esta desactivación inducida por la temperatura asegura todas las horquillas dentro de la población se han derrumbado en un momento dado y permite la evaluación de lo que sucede cuando el replisome colapsa, cómo se procesa el ADN, y lo que se requiere para volveriniciar el proceso de replicación del ADN.
Una ventaja del sistema descrito aquí es que el bloque de nucleoproteína es completamente reversible; Por lo tanto, la capacidad de las células para recuperarse de la nucleoproteína bloque es capaz de seguir. La adición de anhidrotetraciclina a las células aliviará la estrecha unión del represor, permitiendo que un tenedor de replicación para proceder a través de la célula y para recuperar la viabilidad. El alivio de la obstrucción se puede visualizar por electroforesis en gel de agarosa de dos dimensiones neutral-neutral después de 5 min, y por microscopía dentro de 10 min. Además, el análisis de viabilidad puede revelar la capacidad de la cepa para recuperarse de la obstrucción replicación y continuar proliferando.
Al alterar el fondo genético de las cepas utilizadas en el procedimiento experimental descrito aquí, las vías de reparación de este tipo de obstrucción puede ser dilucidado.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Protocolo
1. El bloqueo de la replicación con FROS
- La inducción de la replicación de bloqueo
- Diluir un cultivo de una noche fresco de una E. cepa de E. coli que lleva una matriz de tetO y pKM1 18 a OD 600 nm = 0,01 en un medio complejo diluido (0,1% de triptona, 0,05% de extracto de levadura, 0,1% NaCl, M KH 2 PO 4, 0,72 MK 2 HPO 4 0,17) con antibióticos como se requiere para la selección.
Nota: No añadir tetraciclina para la selección, ya que no es compatible con este sistema. Hacer que el volumen del cultivo equivalente a 10 ml por muestra requeridos. Por ejemplo, el volumen de cultivo para el diseño experimental en la Figura 1 es de 60 ml. - Crecer a 30 ° C con agitación hasta una DO600 nm = 0,05-0,1. Retirar una muestra de 10 ml para servir como control no inducido y añadir 0,1% de arabinosa al cultivo restante para inducir la producción de TetR-YFP de pKM1. Continuar para crecer tanto la no inducida e inducidaculturas. Después de 1 hora, comprobar la presencia de un solo punto focal dentro de cada célula del cultivo inducido mediante microscopía de fluorescencia (véase la sección 2).
- Si se confirman bloqueado las células inducidas (más del 70% de las células tienen un único punto de mira), registre la OD 600 nm y tomar una muestra de 7,5 ml para el análisis de los geles 2-D (véase la sección 3). Tomar una muestra equivalente a partir del cultivo de control no inducido.
- Diluir un cultivo de una noche fresco de una E. cepa de E. coli que lleva una matriz de tetO y pKM1 18 a OD 600 nm = 0,01 en un medio complejo diluido (0,1% de triptona, 0,05% de extracto de levadura, 0,1% NaCl, M KH 2 PO 4, 0,72 MK 2 HPO 4 0,17) con antibióticos como se requiere para la selección.
- Al soltar el bloqueo de replicación
- Para liberar el bloque de replicación, añadir 100 ng ml -1 de la anhidrotetraciclina inductor gratuito (AT) a una muestra de las células bloqueadas 10 ml. Continuará creciendo a 30 ° C durante 10 minutos y tomar muestras para la densidad celular (1 ml), análisis de microscopía (10 l) y geles de agarosa al 2 dimensiones neutro-neutro (7,5 ml).
- La inducción del colapso de la replisome
- Si las células contienen un alelo sensible a la temperatura, tales como TS dnaB o TS dnaC que requiere deactivación, mueva el frasco que contiene las células bloqueadas a 42 ° C. Tomar muestras para su análisis en puntos de tiempo requeridos (por ejemplo, 1 hora después de la incubación). Después de que las células se han incubado a 42 ° C durante 1 hr, cambiar las células a 30 ° C durante 10 min (ver Figura 1).
Nota: Las células se pueden desplazar a 30 ° C para el análisis de reinicio.
- Si las células contienen un alelo sensible a la temperatura, tales como TS dnaB o TS dnaC que requiere deactivación, mueva el frasco que contiene las células bloqueadas a 42 ° C. Tomar muestras para su análisis en puntos de tiempo requeridos (por ejemplo, 1 hora después de la incubación). Después de que las células se han incubado a 42 ° C durante 1 hr, cambiar las células a 30 ° C durante 10 min (ver Figura 1).
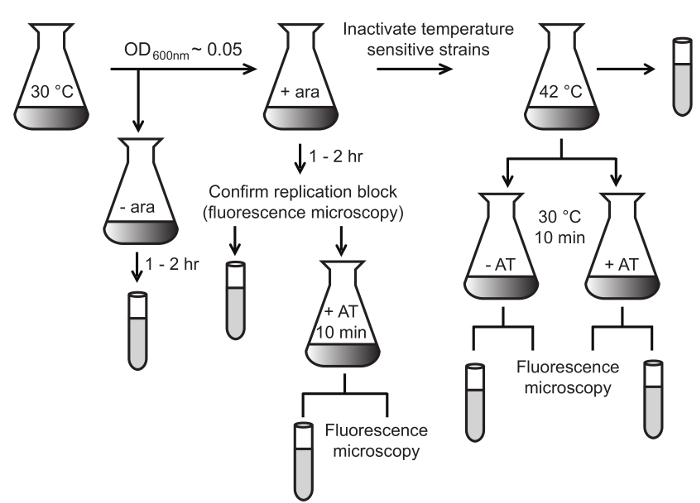
Figura 1:. Aspectos generales del procedimiento de bloques y la liberación experimental FROS replicación de E. cepas de E. coli que llevan la matriz tetO se hacen crecer a 30 ° C. Cuando las células alcanzan un 600 nm OD por encima de 0,05, la producción TetR-YFP se indujo con arabinosa (ara; 0,1%). Continuar creciendo una subpoblación de células no inducidas para actuar como controles en 30 ° C. Una muestra de las células inducidas se analiza a través de microscopía de fluorescencia después de 1-2 horas (véase 2.1). Si la replicación esconfirmó a ser bloqueado, se toman muestras para el análisis 2-D gel indicado por los tubos de ensayo (véase el apartado 3.1) y para las pruebas de viabilidad (opcional). El bloqueo de replicación se puede quitar con anhidrotetraciclina (AT; 0,1 mg / ml) y las células se analizó 10 min más tarde. Si las células llevan un alelo sensible a la temperatura (por ejemplo dnaB ts), esto puede ser inactivado por el desplazamiento de las células bloqueadas a 42 ° C para el análisis correspondiente. Por favor, haga clic aquí para ver una versión más grande de esta figura.
2. Microscopía de Fluorescencia
- Preparar una almohadilla de agarosa pipeteando 500 l de agarosa fundido (1% en agua) en un portaobjetos de microscopio; superponer el cubreobjetos inmediatamente antes de que solidifique de agarosa. Almacenar la corredera (s) en los tejidos húmedos a 4 ° C hasta que se necesite.
- Cuando la agarosa se ha solidificado, retirar el cubreobjetos de la almohadilla de agarosa y pipeta de 10 l de bacteriascultura en el centro de la almohadilla para evitar el movimiento de las células durante la visualización. Una vez que la muestra se ha secado (aproximadamente 5 min), vuelva a colocar el cubreobjetos. Coloque una gota de aceite de inmersión sobre la hoja de la cubierta y colocar el portaobjetos bajo la óptica.
- Visualizar las células utilizando microscopía de fase a 100 aumentos.
- En el cuadro de diálogo adquieren el software de imagen, ajustar el tiempo de exposición a 100 ms. Capturar la imagen seleccionando Adquirir. No mueva el escenario. En el cuadro de diálogo Adquirir, seleccione YFP como la iluminación para el obturador externo vinculado a la cámara. Ajuste el tiempo de exporsure a 1.000 ms. Apagar la luz de la etapa. Capturar la imagen de fluorescencia mediante la selección de Adquisición.
Nota: El tiempo puede variar dependiendo de la fuente de luz, microscopio y cámara utilizada. - Para superponer la fase y las imágenes fluorescentes, seleccionar color Combine desde dentro del menú de pantalla. En el cuadro de diálogo Combinar color, seleccione la imagen YFP como la imagen de fase como el componente verde y blue componente. Haga clic en el color de la cosechadora. Determinar si la población se había bloqueado la replicación con éxito por establecer si la mayoría de las células tienen uno de los focos por célula.
Nota: La comparación con una muestra de control sin arabinosa añadida es útil para identificar visualmente la diferencia en la producción eYFP.
- En el cuadro de diálogo adquieren el software de imagen, ajustar el tiempo de exposición a 100 ms. Capturar la imagen seleccionando Adquirir. No mueva el escenario. En el cuadro de diálogo Adquirir, seleccione YFP como la iluminación para el obturador externo vinculado a la cámara. Ajuste el tiempo de exporsure a 1.000 ms. Apagar la luz de la etapa. Capturar la imagen de fluorescencia mediante la selección de Adquisición.
3. Extracción de ADN de agarosa / Tapones
- Añadir azida de sodio (concentración final de 0,1%) a los 7,5 ml muestras de cultivo de los pasos 1.1.3 y 1.2.1. Incubar en hielo durante al menos 5 min.
Nota: La azida sódica es extremadamente tóxico. Consulte la Hoja de datos de seguridad antes de comenzar el trabajo y no manejarlo hasta que todas las precauciones de seguridad que se hayan leído y comprendido. - Centrifugar las células 5.000 xg durante 10 minutos para sedimentar las células. Eliminar el sobrenadante y resuspender el precipitado en 200 l de Pett IV (PIV) de tampón (10 mM Tris: HCl (pH 8,0), 1 M NaCl). Microcentrífuga (13, 000 xg durante 2 min) para sedimentar las células. discard el sobrenadante. En esta etapa, el proceso de los gránulos más o almacenar a -20 ° C.
- Resuspender las células con la densidad celular más baja en PIV 50 l y el lugar a 50 ° C. Para todas las demás muestras, ajustar los volúmenes de PIV por lo que la densidad celular final es el mismo en cada tubo (por ejemplo, la muestra 1 (OD 600 nm = 0,128) se resuspendió en 50 l; Muestra 2 (OD 600 nm = 0,138) se resuspendió en 54 l).
- Añadir un volumen igual de solución recién preparada de agarosa al 0,8% en PIV (concentración final 0,4%;. Por ejemplo, la muestra 1 50 l, Muestra 2 54 l). Asegurar que las muestras, agarosa y PIV están por encima de 50 ° C para evitar la solidificación.
- Tratar a un portaobjetos de microscopio con 40 l de una solución que repele el agua de vidrio o silicona apropiado. Frote la diapositiva con un pañuelo de papel hasta que se seque.
Nota: Esto se puede hacer con antelación y los portaobjetos tratados almacena a largo plazo a temperatura ambiente. - Coloque 20 gotas l de tque la suspensión de células / agarosa en la diapositiva para producir tapones que son semiesférica.
Nota: La primera muestra (se resuspendió en 50 l PIV) producirá 5 tapones en una diapositiva. - Cuando los tapones han solidificado, deslice suavemente en un tubo de microcentrífuga y añadir tampón de lisis celular 1 ml (10 mM Tris-HCl [pH 8], 1 M NaCl, ácido 100 etilendiaminotetraacético mM (EDTA), 0,2% desoxicolato de sodio, 0,5% sal de N-lauroilsarcosina de sodio (Sarkosyl), 100 mg ml - 1 lisozima, 50 mg ml - 1 RNasa A). Incubar a 37 ° C durante 2 hr.
- Eliminar el tampón de lisis celular y añadir Sarcosilo / proteinasa K (ESP) solución de 1 ml de EDTA / (0,5 M EDTA, sal de sodio de N-lauroilsarcosina 1% (Sarkosyl), 1 mg ml - 1 de proteinasa K). Incubar a 50 ° C durante la noche o hasta que los tapones son transparentes. Si se requiere una segunda incubación durante la noche, sustituir la solución ESP con tampón fresco después de aproximadamente 18 hr.
- Eliminar elESP tampón y lavar las clavijas 5 veces con 12 ml de Tris-EDTA (TE) tampón (10 mM Tris-HCl, EDTA 1 mM, pH 8,0), lo que permite un equilibrio de 30 min con cada lavado. Almacenar a 4 ° C en 1 ml de tampón TE.
4. neutral-neutral de 2 dimensiones electroforesis en gel
- Transferir un tapón de agarosa desde el paso 3.8 a un tubo de microcentrífuga y añadir 150 l de tampón de enzima de restricción (1x concentración). Añadir 25-100 unidades de enzima de restricción (por ejemplo, 60 unidades de EcoRV; (véase la Figura 3A)). Digerir a 37 ° C durante 6-8 horas.
- A 4 ° C, se vierte un gel de agarosa al 0,4% (300 ml) en 1 x Tris / borato / EDTA (TBE) en una bandeja de gel de aproximadamente 25 x 25 cm. Insertar un peine para hacer pozos aproximadamente la misma anchura que el diámetro de la clavija. Cuando se establece el gel, retire el peine y mover el gel a temperatura ambiente.
- Deslizar uno de los bloques de agarosa digeridos en un pozo, el posicionamiento de la guía plana de la clavija contra el lado del pozo, donde tADN que va a entrar en el gel. Insertar un solo enchufe de la misma manera en cada segundo también.
- Pipetear fundido 0,4% de agarosa en los pocillos para sellar los tapones en posición.
- Cargar escalera de ADN 1 kb en un pozo vacío, dejando de nuevo una brecha entre la escalera y muestras, y ejecutar el gel durante la noche (16 h, 55 V) en TBE 1x a temperatura ambiente.
- Tinción del gel en un baño de agua que contenía bromuro de etidio (0,3 mg ml -1) para los 20 min.
Nota: El bromuro de etidio se considera un potente mutágeno y una toxina. Consulte la Hoja de datos de seguridad antes de comenzar el trabajo y no manejarlo hasta que todas las precauciones de seguridad que se hayan leído y comprendido. - Visualizar el ADN con un transiluminador UV de onda larga y corta cada fragmento de carril con una recta, incluso cortar, minimizando la inclusión de exceso de agarosa a cada lado del carril.
Nota: Por ejemplo, si el fragmento de interés es de 5,5 kb, cortar un fragmento de 7,5 cm para incluir los fragmentos de ADN a partir de 5 kb a approximatEly 12 kb (véase la Figura 3A). - Coloque el carril de gel escindido en una bandeja de gel en 90 ° a la dirección de la migración del ADN.
Nota: Dos filas de 3 fragmentos de gel pueden caber en una bandeja de gel de 25 x 25 cm 2. La primera fila de carriles de gel es en la parte superior de la bandeja, la segunda fila en 12,5 cm. - Preparar 300 ml de agarosa para la segunda dimensión de gel (0,9% en TBE 1x con 0,3 mg ml-1 de bromuro de etidio). Cuando la agarosa se enfría a 50 ° C, pipetear la agarosa fundida alrededor de los cortes de gel para solidificar su posición. Verter la agarosa restantes en la bandeja hasta una profundidad que es al menos la altura de los cortes de gel.
- Una vez se solidifica el gel, a electroforesis a 4 ° C en TBE 1x que contenía 0,3 mg ml -1 de bromuro de etidio a 220 V hasta que el ADN ha migrado aproximadamente 10 cm.
Nota: 4 hr es suficiente para un fragmento de 5,5 kb, pero un fragmento más pequeño será necesario menos tiempo. - Escindir los bloques en los que el ADN genómico está presente ucantar el borde de una regla de metal, incluyendo el gel por encima de él para incluir el ADN que no es visible (véase la Figura 3C).
5. hibridación Southern
- Preparación de la solución
- Preparar tampón de despurinización (solución 0,125 M HCl).
Nota: Este tampón puede ser reutilizado y es estable a temperatura ambiente por hasta 1 mes. - Preparar tampón de desnaturalización (NaCl 1,5 M, NaOH 0,5 M).
Nota: La desnaturalización de amortiguación puede ser reutilizado una vez y es estable durante un máximo de 3 meses a temperatura ambiente. - Preparar tampón de neutralización (NaCl 1,5 M, Tris 0,5 M). Ajustar a pH 7,5 con HCl.
Nota: Tampón de neutralización puede ser reutilizado una vez y es estable durante un máximo de 3 meses a temperatura ambiente. - Preparar Saline citrato de sodio (SSC) de tampón 10x (M citrato 0,15 Tri-sodio, 1,5 M NaCl, pH es 7-8) para su uso en los pasos 5.2.4 y 5.2.6. A partir de este tampón, hacer una SSC 2x social (para su uso en el paso 5.2.9).
Nota: SSC 10x SSC 2x y unare estable a temperatura ambiente durante 3 meses. - Preparar Modificado Buffer 19 Church y Gilbert hibridación (tampón fosfato 0,5 M [pH 7,2], 7% (w / v) de dodecilsulfato de sodio (SDS), EDTA 10 mM). Deja a 65 ° C para disolver a fondo antes de su uso.
- Preparar tampón de despurinización (solución 0,125 M HCl).
- Transferir
- Enjuague los bloques de gel extirpados en solución despurinización durante 10 min a RT en un agitador o agitador orbital. Mantener la velocidad de agitación baja para evitar daños en los bloques de agarosa.
- Enjuague los bloques de gel brevemente con agua destilada y después con tampón de desnaturalización durante 30 min. Enjuague de nuevo brevemente en agua destilada y luego se incuban los bloques de gel en tampón de neutralización de 30 min con agitación suave a temperatura ambiente.
- Cortar una membrana de nylon con el tamaño exacto del gel (s). Cortar una muesca en la esquina superior derecha para ayudar en la orientación de la membrana en los pasos futuros.
Nota: Dos bloques de gel (6 muestras) se puede visualizar en una membrana. - Vierta suficiente 10x SSC en un tray para que no se seque durante la noche. Crear una plataforma aproximadamente 5 cm por encima del nivel de la memoria intermedia. Saturar 3 hojas de papel de cromatografía 3MM con 10x SSC y lugar en la plataforma. Cortar el papel de cromatografía de modo que es lo suficientemente largo para ser sumergido en tampón en ambos extremos y lo suficientemente amplia como para adaptarse a la membrana de gel sobre.
- El gel de sílice (s) en la parte superior del papel cromatográfico saturado. Enmarcar el gel con una envoltura de plástico para evitar que el buffer sin pasar por el gel durante la transferencia. Con cuidado, colocar la membrana de corte en la parte superior del gel (s). Eliminar burbujas de aire entre la membrana y el gel haciendo rodar una botella o una pipeta serológica suavemente a través de la membrana.
- Cortar tres hojas de papel de cromatografía 3MM con el mismo tamaño que el de la membrana. Saturar las hojas de papel de cromatografía con 10x SSC y colocar en la parte superior de la membrana. Eliminar las burbujas de aire que se han formado.
- toallas de papel pila por lo menos 5 cm de alto en la parte superior del papel secante seguido de un soporte sólido (apropeso ximate de 1 kg para una membrana de 23 x 16 cm). Permitir la transferencia de proceder durante la noche.
- Exponer a la membrana (ADN hacia arriba) a 1,200 J / m 2 de UV para reticular el ADN a la membrana. No enjuague antes de este paso.
- Enjuague la membrana a fondo en SSC 2x para prevenir la elevada fondo en las imágenes blot. Utilice la mancha de inmediato para la hibridación (véase 5.3) o secar a temperatura ambiente, envolver en papel film y se almacena a 4 ° C.
- Hibridación
- Precalentar el horno de hibridación y botellas a 55 ° C.
- Añadir 100 mg ml -1 albúmina de suero bovino (BSA) y 10 mg ml -1 ADN no específica (por ejemplo, ADN de esperma de salmón) a tampón de hibridación precalentado.
- Para permitir una cobertura uniforme del tampón de hibridación cuando la membrana se enrolla, colocar la mancha en un cuadrado de tamaño similar de malla de nylon con el lado unido al ADN de la membrana hacia arriba. Rollo de la mancha lo largo de su borde largo. Diapositivala mancha / malla dentro de una botella de hibridación. Añadir una cantidad apropiada de tampón de hibridación precalentado a desenrollar el blot (por ejemplo, 30 ml para una membrana de 23 x 16 cm 2).
- Incubar en un horno precalentado, la rotación de las botellas, por 1 hr.
- Preparar la sonda mediante la mezcla de 50 ng de producto de PCR purificado homóloga a la región de interés, 150 ng de cebadores hexámeros aleatorios, tampón para el fragmento Klenow y H 2 O para hacer un volumen de 13 l. Hervir durante 3 minutos y después se colocan inmediatamente en hielo. Añadir 1 l de 1 mM dCTP mezcla / dGTP / dTTP, 1 l de fragmento Klenow (5 U) y 50 Ci desoxiadenosina radiomarcado 5'-trifosfato en el fosfato alfa (α 32 P-dATP).
- Incubar a temperatura ambiente durante 1 hr. Añadir 1 l de 1 mM de la mezcla dNTP y 1 l de fragmento de Klenow. Incubar 20 min a RT.
- Hervir la sonda durante 5 minutos y añadir de inmediato a los tubos de hibridación. Hibridar durante la noche a 55 ° C, con la rotación.
- Decantar el probe de membrana.
Nota: La sonda es capaz de ser reutilizada una vez. - Enjuague la membrana brevemente en pre-calentado, tampón de lavado de baja rigurosidad (2x SSC, 0,1% (w / v) SDS). Añadir un nuevo buffer de lavado de baja rigurosidad e incubar durante 5 minutos a 55 ° C con rotación. Repetir.
- Lavar dos veces en tampón de lavado rigurosidad media (1x SSC, 0,1% (w / v) SDS) durante 10 minutos a 55 ° C con rotación.
- Lavar dos veces en tampón de lavado de alta rigurosidad (0,1 x SSC, 0,1% (w / v) SDS) durante 5 min a 55 ° C con rotación.
- Retire la membrana y aplique con el tejido para eliminar el exceso de líquido. Envolver en papel de plástico asegurando que no hay restos de humedad en la envoltura de plástico y colocar en casete de la exposición con una pantalla de fósforo de almacenamiento pre-troquelada. Cierre la casete y exponer por lo menos 2 h antes de la visualización utilizando un generador de imágenes de fósforo.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Resultados
El FROS es un bloque de nucleoproteína inducible, específico del sitio que permite intermediarios de replicación para ser visualizados en las células vivas 12,18. Un diseño experimental general para el muestreo de células se ilustra en la Figura 1. El momento de la toma de muestras y variaciones en los antecedentes genéticos hacen de este un sistema versátil para el estudio de la reparación de un bloque de este tipo. El esquema ilustra cómo sensibles a la temp...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
Durante la duplicación cromosómica, la maquinaria de replicación encontrará varios impedimentos que impiden su progreso. Para garantizar que se replique todo el cromosoma de origen único, las bacterias tienen numerosas vías para la reparación del ADN que luego permiten que el replisoma se recargue20,21. Las lesiones, las roturas monocatenarias, las roturas bicatenarias y las proteínas estrechamente unidas al ADN pueden tratarse utilizando una vía dedicada, aunque es probable que haya una superposición signific...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
Los autores declaran que no tienen intereses financieros contrapuestos.
Agradecimientos
Este trabajo fue apoyado por el Consejo Australiano de Investigación [DP11010246].
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Triptona | Sigma-Aldrich | 16922 | Componente del medio |
| de crecimiento Cloruro de sodio | VWR | 27810.364 | Componente del medio de crecimiento |
| Extracto | de levadura Sigma-Aldrich | 92144 | Componente del medio de crecimiento |
| Fosfato de potasio monobásico | Sigma-Aldrich | P9791 | Componente del medio de crecimiento; Componente tampón de potasio |
| Fosfato de potasio dibásico | Sigma-Aldrich | P3786 | Componente del medio de crecimiento; Componente tampón de potasio |
| L-arabinosa | Sigma-Aldrich | A3256 | Para la inducción de la producción de TetR-YFP |
| Clorhidrato de anhidrotetraciclina | Sigma-Aldrich | 37919 | Liberación de bloackage de replicación |
| Axioskop 2 Microscopio de fluorescencia | Zeiss | 452310 | Visualización de células |
| Juego de filtros eYFP | Chroma Technology | 41028 | Visualización de la cámara CCD YFP |
| Hamamatsu | Orca-AG | Visualización de células | |
| MetaMorph Software (Molecular Devices) | SDR Scientific | 31282 | Versión 7.8.0.0 utilizado en la preparación de este manuscrito |
| Agarose | Bioline | BIO-41025 | Para tapones de agarosa y electroforesis en gel |
| Vidrio original Repelente al agua (Rain-X) | Autobarn | DIO1470 | Para la fabricación de tapones de agarosa |
| TRIS | VWR | VWRC103157P | TE, componente |
| tampón TBEÁcido etilendiaminotetraacético | Ajax Finechem | AJA180 | 0,5 M EDTA solución salina disódica ajustada a pH 8,0 con NaOH. |
| Azida sódica | Sigma-Aldrich | S2002 | Agente bacteriostático |
| Ácido clorhídrico | Sigma-Aldrich | 258148 | Componente tampón TE |
| Desoxicolato de sodio | Sigma-Aldrich | D6750 | Componente tampón de lisis celular |
| N-Lauroilsarcosina sal sódica (Sarkosyl) | Sigma-Aldrich | L5125 | Lisis celular y componente tampón ESP |
| Rnasa A | Sigma-Aldrich | R6513 | Componente tampón de lisis celular |
| Lisozima | Amresco | 6300 | Componente tampón de lisis celular |
| Proteinasa K | Amresco | AM0706 | Componente tampón ESP |
| Sub-Cell Model 192 Cell | BioRad | 1704507 | Sistema de electroforesis |
| Transiluminador UV 2000 | BioRad | 1708110 | Visualización del ADN |
| Bromuro de etidio | BioRad | 1610433 | Visualización del ADN |
| Ácido bórico | VWR | PROL20185.360 | TBE componente |
| Hybond-XL nylon Memrbane | Amersham | RPN203S | Zeta-Probe Memrbane (BioRad 1620159) también se puede utilizar papel de |
| cromatografía Whatman de 3 mm | GE Healthcare Life Sciences | 3030690 | Southern blot |
| HL-2000 Hybrilinker | UVP | 95-0031-01/02 | Reticulación de ADN e hibridación |
| Ácido desoxirribonucleico de esperma de salmón | Sigma-Aldrich | 31149 | Componente tampón de hibridación |
| Hidróxido de sodio | Sigma-Aldrich | S5881 | Componente tampón de desnaturalización |
| Citrato trisódico dihidratado | VWR | PROL27833.363 | Tampón de transferencia |
| Sulfato de dodecilo de sodio (SDS) | Amresco | 227 | Componente tampón de lavado |
| Albúmina sérica bovina | Sigma-Aldrich | A7906 | Componente tampón de hibridación |
| Imprimadores de hexámero aleatorio | Bioline | BIO-38028 | |
| Fragmento de Klenow | New England BioLabs | M0212L | |
| dNTP Set | Bioline | BIO-39025 | |
| Adenosina 5'-trifosfato-< sup>32P-ATP | PerkinElmer | ||
| GE Healthcare Life Sciences | GEHE28-9564-76 | BAS-IP MS 3543 E pantalla estándar multiusos de 35 cm x 43 cm | |
| Typhoon FLA 7000 | GE Healthcare Life Sciences | 28-9558-09 | Visualización de blot |
| Botella de hibridación | UVP | 07-0194-02 | 35 mm x 300 mm |
Referencias
- Mirkin, E. V., Mirkin, S. M. Replication fork stalling at natural impediments. Microbiol Mol Biol Rev. 71 (1), 13-35 (2007).
- Gupta, M. K., et al. Protein-DNA complexes are the primary sources of replication fork pausing in Escherichia coli. Proc Natl Acad Sci U S A. 110 (18), 7252-7257 (2013).
- McGlynn, P., Guy, C. P. Replication forks blocked by protein-DNA complexes have limited stability in vitro. J Mol Biol. 381 (2), 249-255 (2008).
- Tanner, N. A., et al. Single-molecule studies of fork dynamics in Escherichia coli DNA replication. Nat Struct Mol Biol. 15 (2), 170-176 (2008).
- Hamdan, S. M., Loparo, J. J., Takahashi, M., Richardson, C. C., van Oijen, A. M. Dynamics of DNA replication loops reveal temporal control of lagging-strand synthesis. Nature. 457 (7227), 336-339 (2009).
- Rudolph, C. J., Upton, A. L., Lloyd, R. G. Replication fork stalling and cell cycle arrest in UV-irradiated Escherichia coli. Genes Dev. 21 (6), 668-681 (2007).
- Jeiranian, H. A., Courcelle, C. T., Courcelle, J. Inefficient replication reduces RecA-mediated repair of UV-damaged plasmids introduced into competent Escherichia coli. Plasmid. 68 (2), 113-124 (2012).
- Le Masson, M., Baharoglu, Z., Michel, B. ruvA and ruvB mutants specifically impaired for replication fork reversal. Mol Microbiol. 70 (2), 537-548 (2008).
- Wang, X., Liu, X., Possoz, C., Sherratt, D. J. The two Escherichia coli chromosome arms locate to separate cell halves. Genes Dev. 20 (13), 1727-1731 (2006).
- Lau, I. F., et al. Spatial and temporal organization of replicating Escherichia coli chromosomes. Mol Microbiol. 49 (3), 731-743 (2003).
- Gordon, G. S., et al. Chromosome and low copy plasmid segregation in E. coli: visual evidence for distinct mechanisms. Cell. 90 (6), 1113-1121 (1997).
- Possoz, C., Filipe, S. R., Grainge, I., Sherratt, D. J. Tracking of controlled Escherichia coli replication fork stalling and restart at repressor-bound DNA in vivo. EMBO J. 25 (11), 2596-2604 (2006).
- Payne, B. T., et al. Replication fork blockage by transcription factor-DNA complexes in Escherichia coli. Nucleic Acids Res. 34 (18), 5194-5202 (2006).
- Brewer, B. J., Fangman, W. L. The localization of replication origins on ARS plasmids in S. cerevisiae. Cell. 51 (3), 463-471 (1987).
- Jeiranian, H. A., Schalow, B. J., Courcelle, J. Visualization of UV-induced replication intermediates in E. coli using two-dimensional agarose-gel analysis. J Vis Exp. (46), (2010).
- Southern, E. M. Detection of specific sequences among DNA fragments separated by gel electrophoresis. J Mol Biol. 98 (3), 503-517 (1975).
- Courcelle, J., Donaldson, J. R., Chow, K. H., Courcelle, C. T. DNA damage-induced replication fork regression and processing in Escherichia coli. Science. 299 (5609), 1064-1067 (2003).
- Mettrick, K. A., Grainge, I. Stability of blocked replication forks in vivo. Nucleic Acids Res. , (2015).
- Church, G. M., Gilbert, W. Genomic sequencing. Proc Natl Acad Sci U S A. 81 (7), 1991-1995 (1984).
- Michel, B., Grompone, G., Flores, M. J., Bidnenko, V. Multiple pathways process stalled replication forks. Proc Natl Acad Sci U S A. 101 (35), 12783-12788 (2004).
- Michel, B., Boubakri, H., Baharoglu, Z., LeMasson, M., Lestini, R. Recombination proteins and rescue of arrested replication forks. DNA Repair (Amst). 6 (7), 967-980 (2007).
- Carl, P. L. Escherichia coli mutants with temperature-sensitive synthesis of DNA. Mol Gen Genet. 109 (2), 107-122 (1970).
- Nawotka, K. A., Huberman, J. A. Two-dimensional gel electrophoretic method for mapping DNA replicons. Mol Cell Biol. 8 (4), 1408-1413 (1988).
- Cole, R. S., Levitan, D., Sinden, R. R. Removal of psoralen interstrand cross-links from DNA of Escherichia coli: mechanism and genetic control. J Mol Biol. 103 (1), 39-59 (1976).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Reimpresiones y permisos
Etiquetas
Sistema de operador represor de fluorescenciahorquilla de replicación de Escherichia colivisualización mediante microscopía de fluorescenciaelectroforesis bidimensional en gelmutantes sensibles a la temperaturaanálisis de knockout genéticointermediarios de la replicación del ADNpreparación de moldes de agarosadetección mediante hibridación Southern
