Los detalles se presentan sobre cómo mapeo QTL con un mapa genético basado en la secuencia del genoma completo se puede utilizar para identificar un gen de resistencia a los medicamentos en Toxoplasma gondii y cómo esto se puede verificar con el sistema CRISPR / Cas9 que edita eficientemente un objetivo genómico, en este caso el Gen de resistencia a fármacos.
Artículo de método
QTL Mapping y CRISPR / Cas9 Edición para identificar un gen de resistencia a fármacos en
En este artículo
Resumen
Resumen
El conocimiento científico está intrínsecamente ligado a las tecnologías y métodos disponibles. Este artículo presentará dos métodos que permitieron la identificación y verificación de un gen de resistencia a fármacos en el parásito de Apicomplexan Toxoplasma gondii , el método de cartografía de Locus de Rasgo Cuantitativo (QTL) usando un mapa genético basado en la secuencia de Genoma Entero (WGS) y el método De Clustered Regularmente Interspaced Palindromic Corto Repeticiones (CRISPR) / Cas9-basado en la edición de genes. El enfoque de mapeo QTL permite a uno para probar si hay una correlación entre una región genómica (s) y un fenotipo. Dos conjuntos de datos se requieren para ejecutar una exploración QTL, un mapa genético basado en la progenie de una cruz recombinante y un fenotipo cuantificable evaluado en cada uno de la progenie de esa cruz. Estos conjuntos de datos se formatean a continuación para ser compatibles con el software R / qtl que genera una exploración QTL para identificar loci significativo correlacionado con el fenotipo. Aunque esto puede reducir en gran medida la búsqueda wIndow de posibles candidatos, QTLs span regiones que contienen una serie de genes de los que el gen causal necesita ser identificado. Tener WGS de la progenie fue fundamental para identificar la mutación causal de la resistencia a los fármacos en el nivel del gen. Una vez identificado, la mutación candidata puede ser verificada mediante manipulación genética de parásitos sensibles a fármacos. El método más fácil y eficiente para modificar genéticamente a T. gondii es el sistema CRISPR / Cas9. Este sistema comprendía sólo 2 componentes codificados en un solo plásmido, un solo ARN guía (gRNA) que contenía una secuencia de 20 pb complementaria a la diana genómica y la endonucleasa Cas9 que genera una ruptura de ADN de doble hebra (DSB) en el blanco, Cuya reparación permite la inserción o deleción de secuencias alrededor del sitio de rotura. Este artículo provee protocolos detallados para usar las herramientas de edición de genomas basadas en CRISPR / Cas9 para verificar el gen responsable de la resistencia a la sinefungina y para construir parásitos transgénicos.
Introducción
La gama de huéspedes determina la extensión de la prevalencia de un parásito. Algunos parásitos tienen requisitos muy específicos del anfitrión que limitan el área de la cual se encuentran, otros son generalistas. Uno de estos generalistas es Toxoplasma gondii ( T. gondii) . Este parásito se encuentra en todo el mundo, ya que puede infectar a todos los mamíferos y muchas aves. Los seres humanos también son susceptibles y se estima que aproximadamente 1/3 de la población mundial ha sido infectada. Afortunadamente, una respuesta inmune robusta normalmente controla el crecimiento del parásito, pero en situaciones donde el sistema inmune está comprometido, el parásito puede crecer sin control y causar enfermedades, a menudo encefálico. Además, este parásito puede causar enfermedades congénitas si las mujeres previamente no infectadas se infectan durante el embarazo ya que carecen de memoria inmune para limitar rápidamente la propagación del parásito. Además, hay una carga de toxoplasmosis ocular que puede resultar en pérdida de la visión 1 . Por estas razonesNs T. gondii se ha convertido en un foco de estudio, y debido a los muchos métodos moleculares desarrollados para su estudio, un modelo para los parásitos Apicomplexan. Dos métodos que se discutirán aquí son el mapeo de locus de rasgo cuantitativo (QTL) y el clúster de repetición de palindrómicos cortos regularmente intercalados (CRISPR) / edición de genes Cas9. La cartografía QTL y la edición CRISPR / Cas9 son, respectivamente, enfoques genéticos directos e inversos que se han utilizado en estudios previos para identificar y / o caracterizar genes de virulencia de T. gondii . Aquí, estos métodos se combinan para identificar y confirmar la función de un gen de resistencia a la sinefungina (SNF r ), TgME49_290860, y sus orthologs (anotado como SNR1 ) 2 .
Aunque T. gondii puede infectar una amplia variedad de huéspedes intermedios, debe pasar a través e infectar las células epiteliales intestinales de un felino para completar el ciclo de vida. Los gatos son los anfitriones definitivos del parásito donde el sSe producen etapas exuales y se produce la recombinación genética a través de la meiosis. Para llevar a cabo un estudio QTL se debe crear una cruz genética y en el caso de Toxoplasma esto significa pasar dos cepas parásitas diferentes que difieren en un rasgo fenotípico, las manchas parentales, a través de un gato para producir progenie recombinante 3 . Antes de ser alimentados a gatos, las cepas parentales se hacen resistentes a fármacos separados para permitir una identificación más eficaz de recombinantes por selección de doble fármaco de la progenie 4 . Para ello se han utilizado tres fármacos en T. gondii ; Fluorodeoxirribosa (FUDR) para la cual la uracilo fosforribosil transferasa ( UPRT ) es el gen de resistencia 5 , adenosina arabinósido (ARA) para el cual la adenosina quinasa ( AK ) es el gen de resistencia 6 y la sinefungina (SNF) para la cual el gen de resistencia era desconocido 7 . Varios cruces genéticos han sidoCreado para T. gondii , pero sólo la progenie 24 de la ME49-FUDR r X VAND-SNF r cruz fueron genotipados utilizando secuenciación del genoma total (WGS) [ 8] . Esto abrió la posibilidad de cartografiar e identificar el gen de resistencia a SNF usando este cruce como el padre VAND se hizo resistente a sinefungina por mutagénesis química de la cepa VAND (VAND-SNFs) sensible a fármacos y el genoma de referencia VAND se secuenció usando el VAND- SNF s permitiendo así la identificación de todos los polimorfismos entre la progenie WGS y el VAND-SNF s genoma de referencia, incluyendo la hereditaria parental VAND-SNF r mutación que hizo que algunos de los progenie sinefungina resistente.
Con el fin de identificar el polimorfismo causal de un solo nucleótido (SNP) en la progenie SNF r , varios recursos de código abierto basados en computación se pueden utilizar para analizar los datos. Para crear el mapa genético para el ME49-Se desarrolló la suite de software REDHORSE 9 que utiliza alineaciones WGS de los padres y progenie para detectar con precisión las posiciones genómicas de los cruces genéticos. Esta información de mapeo se puede combinar entonces con los datos fenotípicos (SNF r en la progenie) para dar formato a un conjunto de datos compatible con el paquete 'qtl' 10 en el software de programación de estadística R donde puede realizarse una exploración QTL para revelar loci significativos correlacionados con el Fenotipo Para identificar el SNP causal localizado dentro del locus QTL, las lecturas WGS de la progenie pueden alinearse individualmente con el genoma VAND sensible a sinefunggin utilizando el programa de alineación Bowtie 2 11 desde el cual se pueden llamar SNPs usando el programa llamador Variscan mpileup2snp variante 12 . Usando estos SNPs, el locus QTL puede ser escaneado para polimorfismos que están presentes en el SNF r, pero noEn la progenie del SNF. Con el SNP causal identificado en la región codificadora de un gen, la modificación genética del gen candidato SNF r puede realizarse en una cepa de SNF para verificar la función de resistencia a fármacos.
El sistema de edición del genoma CRISPR / Cas9 se estableció recientemente en Toxoplasma 13 , que agregó importantes herramientas para la exploración de la biología compleja de este parásito, en particular para estudios genéticos en cepas no adaptadas al laboratorio. Debido a la altamente activa No Homologous End Joining (NHEJ) en las células WT Toxoplasma , modificación del genoma dirigida es difícil de lograr desde introducido exógenamente DNA se integra al azar al genoma a una frecuencia extremadamente alta [ 14] . Para aumentar la tasa de éxito de la modificación específica de locus, se han empleado diferentes enfoques para aumentar la eficacia de la recombinación homóloga y / o disminuirE Actividad NHEJ 15 , 16 . Uno de estos enfoques es el sistema CRISPR / Cas9. Comparado con otros métodos, el sistema CRISPR / Cas9 es eficiente en la introducción de modificaciones específicas del sitio y es fácil de diseñar 13 , 17 , 18 . Además, puede utilizarse en cualquier cepa de Toxoplasma sin modificación adicional al parásito 13 , 19 .
El sistema CRISPR / Cas9 se originó del sistema inmune adaptativo de Streptococcus pyogenes , que lo utiliza para defender la invasión de elementos genéticos móviles como los fagos 20 , 21 , 22 . Este sistema utiliza la enzima de endonucleasa de ADN guiada por ARN Cas9 para introducir la rotura de ADN de doble hebra (DSB) en el blanco, que posteriormente se recuperaYa sea por el error propensos NHEJ para inactivar los genes objetivo a través de cortas indel mutaciones, o por homología dirigida a la recombinación de alterar el lugar de destino exactamente como se ha diseñado [ 23 , 24] . La especificidad objetivo se determina mediante una molécula de ARN pequeña denominada ARN guía simple (ARNg), que contiene una secuencia de 20 nt individualmente diseñada que tiene una homología del 100% con el ADN diana 22 . La molécula de gRNA también contiene firmas reconocidas por Cas9 que guían la nuclease al sitio diana, que incluye un Motivo Adyacente Protospacer (PAM, secuencia es 'NGG') 25 , 26 . Por lo tanto, la molécula de gRNA y la secuencia PAM trabajan conjuntamente para determinar el sitio de escisión Cas9 en el genoma. Uno puede cambiar fácilmente la secuencia de gRNA para dirigirse a sitios diferentes para la escisión.
Cuando el sistema CRISPR / Cas9 se desarrolló por primera vez en ToxopLasma, se usó un único plásmido que expresaba la nucleasa Cas9 y la molécula de ARNg para introducir DSB en el sitio de orientación 13 , 17 . Se ha demostrado que el CRISPR / Cas9 sistema aumenta drásticamente la eficiencia de sitio específico de la modificación del genoma, no sólo por la recombinación homóloga, sino también la integración no homóloga de ADN exógeno [ 13] . Lo hace en cepas de tipo salvaje que contienen actividad NHEJ. Por lo tanto, este sistema se puede utilizar en esencialmente cualquier cepa de Toxoplasma para la edición eficiente del genoma. En un experimento típico, el plásmido CRISPR específico para el objetivo y el fragmento de ADN usado para modificar el objetivo se cotransfectan en parásitos. Si el fragmento de ADN utilizado para modificar el objetivo contiene secuencias homólogas al locus diana, se puede usar la recombinación homóloga para reparar el DSB introducido por CRISPR / Cas9 para permitir la modificación precisa del objetivo. Por otro lado, si el intEl fragmento de ADN roduced no contiene la secuencia homóloga, todavía puede ser integrado en el sitio que apunta CRISPR / Cas9. Este último se utiliza a menudo para interrumpir los genes mediante la inserción de marcadores seleccionables o para complementar mutantes en loci que permiten la selección negativa [ 13] . Aquí el locus SNR1 sirve como un ejemplo para mostrar cómo CRISPR / Cas9 puede ser utilizado para la interrupción de genes y la generación de parásitos transgénicos.
Protocolo
1. Evaluar SNF r en la progenie de la ME49-FUDR r x VAND-SNF r Cruz
NOTA: T. gondii es un parásito intracelular obligado y la fase de taquizoíto crece fácilmente en el cultivo de tejidos.
- Para cultivar el parásito de T. gondii , mantenerlos en un cultivo de monocapa de Fukroblast de Prepucio Humano confluente (HFF) sembrado en matraces T25 con medio de Medio de Eagle Modificado de Dulbecco (DMEM) suplementado con suero bovino fetal al 10% (medio D10) a 37 ° C y 5% de CO $ ₂ $.
NOTA: Véase Protocolo 1.1 Nota en archivo adicional 1 . - Para probar clones de progenie individuales para resistencia a sinefungina, cultivar cada clon a alta densidad de parásitos en un matraz de cultivo T25 HFF durante 2-3 d, hasta que la mayoría de los parásitos comienzan a lisar las células huésped.
- Raspar la monocapa con un raspador de células y pasar la solución del parásito a través de una jeringa de 10 ml / 22 G aguja romo 2-3x tO lyse las células huésped liberación de parásitos. La solución puede ser arrastrada hacia arriba en la jeringa para múltiples pasajes de aguja.
- Filtrar la solución del parásito en un nuevo tubo cónico a través de una membrana con el tamaño de poro de 3 μ m para eliminar las células HFF y desechos celulares.
- Contar los parásitos en un hemocitómetro y determinar el número de parásitos por ml.
- Usando un pipeteador, pase 2,5 x 10 5 parásitos a un nuevo frasco de cultivo T25 HFF que contenga medio D10 con concentración de trabajo 0,3 μM del fármaco de sinefungina.
- Cultivar los parásitos a 37 ° C y 5% de CO 2 durante 7-10 d.
- Anote la progenie del fenotipo de crecimiento en el fármaco de sinefungina. Observar la monocapa bajo un microscopio de contraste de fase invertido y puntuación 0 para no crecimiento (sensibilidad a la sinefungina), puntuación 1 para el crecimiento y lisis de la monocapa (resistente a la sinefungina).
NOTA: Véase el Protocolo 1.8 Nota en el archivo suplementario 1 .
2. RUn a QTL Escaneo del SNF r Fenotipo en R / qtl
NOTA: Véase Protocolo 2 Nota en archivo suplementario 1 .
- Instale el software de lenguaje de programación R en un equipo local. Véase 27 .
- Ejecute R e instale el paquete 'qtl'. O bien, haga esto desde la opción de interfaz R GUI 'Packages-> Install package (s)' o ejecute el siguiente comando desde la línea de comandos R (el primer símbolo ">" en cada ejemplo denota el inicio de un comando, no debe ser Copiado):
> Install.packages ("qtl")
NOTA: Una vez que R y el paquete 'qtl' se han instalado, hay dos maneras de ejecutar R / qtl, desde la línea de comandos R o utilizando un programa de interfaz gráfica de usuario (GUI) llamado J / qtl 28 : vea 29 para descargar J / Qtl. Este protocolo proporcionará la sintaxis de línea de comandos R / qtl con referencia ocasional a la función equivalente en J / qtl. - Cargue el paquete 'qtl':
> Biblioteca (qtl)
NOTA: Consulte el Protocolo 2.3 Nota en el archivo suplementario 1 para el formato de dataset y descargas. - Cargue el archivo de conjunto de datos en R / qtl.
- Para el formato "csv" (Ver: Archivo de datos 1):
> SNFR <- read.cross (formato = "csv", archivo = "$ PATH / Rqtl-SNFR.csv", genotipos = c ("0", "1"), na.strings = c ("-" , ConvertXdata = FALSE) - O para el formato "gary" (Ver: Archivo de datos 2):
> SNFR <- read.cross (formato = "gary", dir = "$ PATH", chridfile = "chrid.txt", mnamesfile = "mname.txt", mapfile = "markerpos.txt", genfile = "genotipo. Txt ", phefile =" phenos.txt ", pnamesfile =" fenonames.txt ", convertXdata = FALSE)
Donde $ PATH es la ruta del directorio al archivo (s) que contiene el dataset qtl. Por ejemplo: / Users / HotDiggityDog / QTLfiles
NOTA: Los archivos también se pueden cargarEd en J / qtl con los comandos anteriores utilizando la opción 'Insertar comentario o comando' o cargar los datos con la opción GUI 'Archivo-> Cargar datos cruzados'.
- Para el formato "csv" (Ver: Archivo de datos 1):
- Calcular probabilidades para el mapa:
> SNFR <- calc.genoprob (SNFR, paso = 2.0, off.end = 0.0, error.prob = 1.0E-4, map.function = "haldane", stepwidth = "fixed") - Ejecutar un único escán utilizando una distribución binaria del fenotipo de resistencia sinefungina en todos los cromosomas:
> SNFR.scan <- scanone (cruz = SNFR, chr = c ("Ia", "Ib", "II", "III", "IV", "V", "VI", "VIIa", "VIIb "," VIII "," IX "," X "," XI "," XII "), pheno.col = c (1), modelo =" binario ", method =" em "
NOTA: Si ejecuta el fenotipo VIR, utilice la opción de distribución 'model = "normal"'. - Ejecutar 1000 permutaciones para calcular umbrales de significación y luego attrIbute las permutaciones a la variable SNFR.scan:
> SNFR.scan.permutations <- scanone (cruz = SNFR, chr = c ("Ia", "Ib", "II", "III", "IV", "V", "VI", "VIIa" «VIIb», «VIII», «IX», «X», «XI», «XII»), pheno.col = c (1), modelo = "binario", method = "em", n.perm = 1000, perm.Xsp = FALSE, verbose = FALSE)
> Attr (SNFR.scan, "pheno.col") <- c (1)
NOTA: Los pasos 2.5 a 2.7 se pueden ejecutar en J / qtl con la opción 'Análisis-> Exploración principal-> Ejecutar un análisis de genoma QTL'. - Trace los resultados del análisis:
> Plot (SNFR.scan, gap = 0, bandcol = "gray")
NOTA: La trama producida en J / qtl es interactiva.- Trace los resultados de la exploración para sólo el cromosoma IX, el cromosoma con el pico más alto:
> Plot (SNFR.scan, chr = c ("IX"), intervalo = 0, bandcol = "gris", show.marker.names = TRUE)
- Trace los resultados de la exploración para sólo el cromosoma IX, el cromosoma con el pico más alto:
- Mostrar todas las posiciones de marcador y LOD resultados de la exploración única:
> SNFR.scan - Mostrar los resultados de umbral de la prueba de permutación:
> Resumen (SNFR.scan.permutations) - Mostrar sólo aquellos marcadores mayores que el valor de umbral alpha = .05 (tomado de la salida anterior):
> SNFR.scan [SNFR.scan $ lod> 2,68,] - Muestre los marcadores con la puntuación LOD más alta en cada cromosoma:
> Resumen (SNFR.scan) - Muestre los marcadores que tienen el valor de puntuación LOD máximo (tomado de la salida anterior):
> SNFR.scan [SNFR.scan $ lod> = 6.57,]
NOTA: Consulte el Protocolo 2.13 Nota en el archivo adicional 1 .
3. Identificar la mutación del SNF r causal usando WGS Lee de la progenie
NOTA: Consulte el Protocolo 3 Nota en archivo suplementario 1 .
- Alinee las lecturas de WGS de la progenie individual a la sensibilidad sinefungina VAND(VAND-SNF s ) genoma parental.
NOTA: Descargue el genoma de referencia VAND (SNF) de NCBI Assembly AEYJ00000000.2 y el WGS lee (archivos .sra) para la progenie 24 de NCBI SRA PRJNA258152. Además, descargue los siguientes programas: Bowtie2 11 , NCBI SRA Toolkit, SAMtools 30 , VarScan 12 y MUMmer 31 .- Cree un índice compatible con Bowtie 2 del archivo FASTA del genoma de referencia VAND usando el programa bowtie2-build, aquí nombrando el índice "VAND":
> Bowtie2-build GCA_000224845.2_TGVAND_v2_genomic.fna VAND - Convierta los archivos de lectura WGS formateados de SRA a archivos FASTQ usando fastq-dump con la opción --split-files para lecturas emparejadas (el archivo SRR1555372.sra para la progenie P1_14VB se usará como ejemplo):
> Fastq-dump --split-files SRR1555372.sra
NOTA: Ejecute esto y todos los comandos siguientes en Protocolo 3.1 para todos los 24progenie. - Alinee el WGS lee al genoma de referencia usando bowtie2 con salida a un archivo SAM (.sam) y la opción - end-to-end:
> Bowtie2 -x VAND -1 SRR155372_1.fastq -2 SRR1555372_2.fastq -S SRR155372.sam - extremo a extremo - Convierta el archivo .sam en un archivo BAM (.bam):
> Vista de samtools -bS SRR155372.sam> SRR155372.bam - Ordenar el archivo .bam:
> Samtools clase SRR155372.bam SRR155372.sort - Indexar el archivo .bam clasificado:
> Índice de samtools SRR155372.sort.bam
- Cree un índice compatible con Bowtie 2 del archivo FASTA del genoma de referencia VAND usando el programa bowtie2-build, aquí nombrando el índice "VAND":
- Llame a SNPs para la progenie usando VarScan
NOTA: Véase el Protocolo 3.2 Nota en el archivo suplementario 1 .- Convierta todos los archivos BAM (.sort.bam) indexados en un archivo con formato de pileup utilizando samtools mpileup con el archivo de referencia del genoma VAND, todos los archivos .sort.bam de progenie y salida a un archivo llamado AllProgeny-mpileup.txt:
> Samtools mpileup -f GCA_000224845.2_TGVAND_v2_genomic.fna SRR1555599.Sort.bam SRR1555372.sort.bam SRR1555660.sort.bam SRR1555672.sort.bam SRR1556052.sort.bam SRR1556122.sort.bam SRR1556192.sort.bam SRR1556194.sort.bam SRR1556195.sort.bam SRR1556199.sort.bam SRR1556200. Sort.bam SRR1556202.sort.bam SRR1556203.sort.bam SRR1556274.sort.bam SRR1556276.sort.bam SRR1556278.sort.bam SRR1556395.sort.bam SRR1556396.sort.bam SRR1556397.sort.bam SRR1556398.sort.bam SRR1556399. Sort.bam SRR1556400.sort.bam SRR1556401.sort.bam SRR1556402.sort.bam> AllProgeny-mpileup.txt - Llamar a todos los SNPs utilizando el programa VarScan mpileup2snp usando el archivo AllProgeny-mpileup.txt, la cobertura mínima de lectura de 5, la frecuencia mínima de la variante a través de lecturas de .8, un valor p de .01 y la salida a un nombre de archivo AllProgeny-SNPs. TXT:
> Java -jar VarScan.jar mpileup2snp AllProgeny-mpileup.txt --min-cobertura 5 --min-var-freq .8 --p-valor .01> AllProgeny-SNPs.txt
NOTA: El archivo AllProgeny-SNPs.txt es un archivo de texto delimitado por tabuladores que se utilizará en el Protocolo 3.4 para localizarEl SNP causal.
- Convierta todos los archivos BAM (.sort.bam) indexados en un archivo con formato de pileup utilizando samtools mpileup con el archivo de referencia del genoma VAND, todos los archivos .sort.bam de progenie y salida a un archivo llamado AllProgeny-mpileup.txt:
- Buscar VAND genoma coordenadas que corresponden a las coordenadas de la ME49 basado QTL locus
NOTA: Véase el Protocolo 3.3 Nota en el archivo suplementario 1 .- Utilice el programa MUMmer nucmer para alinear el genoma ME49 (disponible para descargar desde ToxoDB.org 32 ) y el archivo de genoma de referencia VAND (la salida va al archivo out.delta):
> Nucmer ToxoDB-28_TgondiiME49_Genome.fasta GCA_000224845.2_TGVAND_v2_genomic.fna - Utilice el programa MOMER show-coords para obtener las coordenadas de las dos alineaciones del genoma, la salida a un archivo llamado ME49vsVAND-coords.txt:
> Show-coords out.delta> ME49vsVAND-coords.txt
NOTA: El archivo ME49vsVAND-coords.txt se puede usar para encontrar los contigs VAND y las posiciones que corresponden al locus QTL; Marcadores MV359 a MV366 localizado en el cromosoma IX de ME49 entre 3,187,537 a 4,202,258 pb. Hay dos contigs VAND que cubren el correspLocalización QTL; KN044604.1: 657.441-1 pb y KN042501.1: 430.910-41.870 pb (ambos contigs se alinean inversamente con el cromosoma ME49).
- Utilice el programa MUMmer nucmer para alinear el genoma ME49 (disponible para descargar desde ToxoDB.org 32 ) y el archivo de genoma de referencia VAND (la salida va al archivo out.delta):
- Evalúe los SNPs de progenie localizados dentro del locus QTL para SNP heredados sólo en la progenie SNF r
NOTA: Consulte el Protocolo 3.4 Nota en el archivo suplementario 1 .- Revise el archivo de datos 3 para identificar la mutación causal localizada dentro del locus QTL. Escanee los datos para un patrón en el que la progenie SNF r tenga un SNP y los SNF no lo sean (posible porque los SNPs de la progenie fueron obtenidos por comparación con el genoma de referencia de VAND-SNF). Esto sólo debería resultar en una posición con este patrón, la posición 348130 en VAND contig KN042501.1.
- Vea la fila 6604 en el archivo de datos 3 ( Figura 3 ).
NOTA: Consulte el Protocolo 3.4.2 Nota en el archivo suplementario 1 .
4. Verificación de Hits Identificados por CRISPR / Cas9-La inactivación génica mediada.
NOTA: Para confirmar el SNP causal identificado por el mapeo de QTL y el análisis de WGS SNP, los cambios genéticos correspondientes deben realizarse en un fondo de WT SNF y el fenotipo resultante examinado. En el caso de resistencia a la sinefungina, la mutación responsable resulta en la inactivación del gen SNR1 por terminación temprana [ 2] . Por lo tanto, la interrupción de SNR1 se puede utilizar para la confirmación. Aquí un protocolo detallado se proporciona para el uso de CRISPR / Cas9 indu indu mutaciones para interrumpir SNR1 , para demostrar su participación en la resistencia sinefungina ( Figura 4 ].
- Construcción específica de plásmidos CRISPR de SNR1
NOTA: Véase el Protocolo 4.1 Nota en el Archivo Suplementario 1 para obtener plásmidos y mapas.- Obtener la secuencia genómica para el gen diana ( SNR1 , TGME49_290860) de ToxoDB 32 .
- Use herramientas en línea como E-CRISP 33 para diseñar gRNAs específicos de destino. No incluya la secuencia de PAM (NGG) en el gRNA.
NOTA: Consulte el Protocolo 4.1.2 Nota en el archivo suplementario 1 . - Sintetizar los cebadores para construir el plásmido CRISPR específico para el objetivo.
- De acuerdo con el diseño de la etapa 4.1.2, sintetizar dos cebadores para cambiar el UPRT que apunta al gRNA en el plásmido CRISPR original a la secuencia de gRNA seleccionada por mutagénesis dirigida al sitio.
NOTA: Las secuencias de estos dos cebadores son las siguientes: gRNA - Fw: NNNNNNNNNNNNNNNNNNNNGTTTTAGAGCTAGAAATAGC (N20 es la secuencia de gRNA específica para diana) y gRNA - Rv: AACTTGACATCCCCATTTAC 2 .
- De acuerdo con el diseño de la etapa 4.1.2, sintetizar dos cebadores para cambiar el UPRT que apunta al gRNA en el plásmido CRISPR original a la secuencia de gRNA seleccionada por mutagénesis dirigida al sitio.
- Realizar las reacciones de mutagénesis dirigida al sitio.
- Usando la UPRT dirigida al plásmido CRISPR (pSAG1 :: CAS9-U6 :: sgUPRT) como plantilla y los dos cebadores listados anteriormente, realizan reacciones de mutagénesis dirigida al sitioDe acuerdo con las instrucciones del fabricante.
NOTA: Utilice las siguientes condiciones de ciclo para PCR: 98 ° C durante 1 min, seguido de 25 ciclos de 98 ° C durante 10 s, 55 ° C durante 30 s y 72 ° C durante 5 min, seguido de extensión final durante 2 min A 72 ° C.
- Usando la UPRT dirigida al plásmido CRISPR (pSAG1 :: CAS9-U6 :: sgUPRT) como plantilla y los dos cebadores listados anteriormente, realizan reacciones de mutagénesis dirigida al sitioDe acuerdo con las instrucciones del fabricante.
- Transformar los productos de mutagénesis que contienen los plásmidos CRISPR específicos de GOI a células competentes de E. coli mediante transformación química de acuerdo con el protocolo del proveedor (ver Tablas de Materiales ). Se cultivan los transformantes en placas de caldo de lisogénesis (LB) que contienen ampicilina (100 mu g / ml) a 37ºC. Posteriormente, recoger 2-4 clones y cultivarlos individualmente en 5 ml de medio LB suplementado con 100 μg / ml de ampicilina durante 12-16 h.
- Extraer los plásmidos de los cultivos utilizando un kit de aislamiento de ADN y analizarlos mediante electroforesis en gel de ADN para comprobar el tamaño de los plásmidos (el tamaño esperado del plásmido es 9674 pb, usar el plásmido CRISPR original como cOntrol). Utilizar el cebador M13-Rev (5'-CAGGAAACAGCTATGACC) para secuenciar los plásmidos para confirmar la secuencia específica de gRNA específico.
- Una vez que se identifican los clones positivos, almacenar el ADN del plásmido a -20 ° C y el cultivo bacteriano correspondiente a -80 ° C para uso futuro.
NOTA: El plásmido CRISPR que se va a utilizar para la transfección debe disolverse en agua desionizada y la concentración se determinará mediante espectrofotometría o un método alternativo.
- Una vez que se identifican los clones positivos, almacenar el ADN del plásmido a -20 ° C y el cultivo bacteriano correspondiente a -80 ° C para uso futuro.
- Extraer los plásmidos de los cultivos utilizando un kit de aislamiento de ADN y analizarlos mediante electroforesis en gel de ADN para comprobar el tamaño de los plásmidos (el tamaño esperado del plásmido es 9674 pb, usar el plásmido CRISPR original como cOntrol). Utilizar el cebador M13-Rev (5'-CAGGAAACAGCTATGACC) para secuenciar los plásmidos para confirmar la secuencia específica de gRNA específico.
- Transfección de parásitos.
NOTA: Los métodos generales para cultivar T. gondii en células HFF en medio D10 se han descrito previamente 34 .- Dos o tres días antes de la transfección, a~nadir suficientes parásitos a un matraz T25 que contiene una monocapa de células HFF confluentes (0,5-1 x 10 6 para cepas de tipo 1, 1-2 x 10 6 para otras cepas) para conseguir una célula HFF de 70-80% Lisis dentro de 2-3 d.
- ExamenEl cultivo bajo un microscopio de contraste de fase invertida, cuando la monocapa HFF es 70-80% lisada por los parásitos. Elimine suavemente el medio con una pipeta y lave las células de la superficie del matraz con 5 ml de tampón citomix (KCl 120 mM, CaCl2 0,15 mM, K2HPO4 10 mM / KH2PO4 pH = 7,6, HEPES 25 mM, MM de EDTA, 5 mM de MgCl $ ₂ $, pH = 7,6). Posteriormente, transfiera la solución del parásito a un tubo cónico de 15 ml.
NOTA: Véase Protocolo 4.2.2 Nota en el archivo suplementario 1 . - Pasar la solución del parásito a través de una jeringa de 10 ml / 22 G aguja romo 2-3x.
- Filtrar la solución del parásito en un nuevo tubo cónico a través de una membrana con el tamaño de poro de 3 μ m para eliminar las células HFF y desechos celulares.
- Pellet los parásitos filtrados por centrifugación a 400 xg durante 10 min.
- Se desprende el sobrenadante y se resuspenden los parásitos granulados con 10 ml de tampón citomix, se toma una alícuota de 10 μl a detArminar la concentración del parásito con un hemocitómetro y sedimentar el resto por centrifugación a 400 × g durante 10 min.
- Eliminar el sobrenadante y resuspender el sedimento en tampón citomix para obtener una densidad de 4 x 10 7 parásitos / mL.
- En una cubeta de separación de 4 mm, mezcle 250-300 μL de solución parasitaria (1-1,3 x 10 7 parásitos) con 7,5 μg de plásmido CRISPR, 6 μl de ATP (100 mM) y 6 μL de glutatión (GSH) (250 mM).
- Electroporación de los parásitos 35 . Incluyen una electroporación separada como un control negativo en el que un plásmido CRISPR se dirige a otros lugares, tales como el plásmido CRIPSR dirigido a UPRT.
NOTA: Los ajustes de electroporación dependen del dispositivo. Para el electroporador listado en los Materiales utilice las cubetas de separación de 4 mm. Se recomienda el siguiente protocolo: 1.700 V, 176 μs de longitud de impulso, 2 pulsos con intervalo de 100 ms.
- Determinar la frecuencia de sinefungin resistaNce después de la orientación de CRISPR.
- Sembrar las células HFF a los cubreobjetos colocados en placas de 24 pocillos 3-4 d antes de la electroporación para que sean confluentes en el tiempo para realizar la transfección en 4.2.
- Se tripsinizan las células HFF de un matraz T25 confluente y posteriormente se añaden 12 ml de medio D10 y se mezclan bien.
- Añadir una cubreobjetos a cada pocillo de una placa de 24 pocillos y colocar alícuota de 500 μl de solución de células HFF en cada pocillo. Incubar la placa a 37 ° C durante 3 4 d para dejar que las células crecen hasta confluentes.
NOTA: Las células de un matraz T25 son suficientes para sembrar una placa de 24 pocillos. - Añadir 50 μl de solución de parásito electroporado de la etapa 4.2.9 en un pocillo de una placa de 24 pocillos que contenga una cubreobjetos sembrados con células HFF confluentes. Transferir el resto de la solución de parásito electroporado en un matraz T25 sembrado con células HFF confluentes.
- Evaluar la eficiencia de la transfección.
- Cultivar las células en la placa de 24 pocillos durante 24 hY posteriormente fijar las células (células huésped y parásitos) con 500 μl de formaldehído al 4% para comprobar la expresión de Cas9-GFP por ensayo inmunofluorescente (IFA).
- Pruebe las células con un anticuerpo anti-GFP y un anticuerpo específico Toxoplasma (como anti-TgALD) para etiquetar los parásitos totales. Consulte la hoja de productos de anticuerpos para la dilución recomendada (por lo general, 1: 1.000 es suficiente para los IFA). Si los anticuerpos no están conjugados, utilice dos anticuerpos secundarios diferentes conjugados con colorantes fluorescentes para marcar los anticuerpos primarios.
- Observe las células etiquetadas en un microscopio fluorescente con filtros apropiados para los colorantes fluorescentes secundarios. Obtener la eficacia de transfección dividiendo el número de parásitos positivos de GFP por el número de parásitos totales.
NOTA: Los dos anticuerpos utilizados para IFA deben provenir de dos especies diferentes de huésped, por ejemplo usando la combinación de anti-GFP de ratón y anti-TgALD de conejo.
- Determine el fDe resistencia a la sinefungina en parásitos transfectados.
- Para los parásitos transfectados cultivados en frascos T25, cultivarlos durante 2-3 d hasta la salida natural. A continuación, recoger los parásitos, romper aguja lyse células huésped para liberar parásitos intracelulares, y purificar por filtración a través de membranas con un tamaño de poro de 3 μ m. Contar los parásitos con un hemocitómetro para estimar la densidad.
- Agregar parásitos purificados en placas de 6 pocillos sembradas con células HFF confluentes: para la primera fila (3 pocillos), añadir 200 parásitos / pocillo y cultivarlos en medio D10 regular (2 ml / pocillo); Para la segunda fila, añadir 5000 parásitos / pozo y cultivarlos en medio D10 que contiene 0,3 μ M sinefungina.
- Poner las placas en una incubadora de CO 2 al 5% y cultivar los parásitos a 37 ° C 8-10 d sin perturbación para permitir que se formen placas. Se fijan las muestras con etanol al 70% (2 ml / pocillo) y se tiñe la monocapa con violeta de cristal al 0,1% (2 ml / pocillo). Lavar los pocillos con agua para visualizarLas placas (zonas claras) formadas por el crecimiento del parásito.
NOTA: El control negativo debe ser procesado de la misma manera lado a lado.
- Calcular la tasa de resistencia a la sinefungina inducida por CRISPR.
- Obtener el número promedio (X) de placas de los pozos que no contienen fármaco y calcular la viabilidad del parásito como X / 200. Obtenga el número promedio (Y) de placas de pozos que contienen sinefungina para calcular la tasa de resistencia a sinefungina inducida por CRISPR como sigue:
Tasa de resistencia inducida por CRISPR = 200 × Y / (5000 × X × eficiencia de transfección)
NOTA: La eficiencia de transfección se obtiene de 4.3.2.
- Obtener el número promedio (X) de placas de los pozos que no contienen fármaco y calcular la viabilidad del parásito como X / 200. Obtenga el número promedio (Y) de placas de pozos que contienen sinefungina para calcular la tasa de resistencia a sinefungina inducida por CRISPR como sigue:
- Sembrar las células HFF a los cubreobjetos colocados en placas de 24 pocillos 3-4 d antes de la electroporación para que sean confluentes en el tiempo para realizar la transfección en 4.2.
- Examinar las mutaciones indel inducidas por CRISPR / Cas9
- Cultivar los parásitos electroporados de la sección 4.2.9 en un matraz T25 sembrado con células HFF durante 2 d a 37 ° C. A continuación, se sustituye el medio por 5 ml de medio D10 que contiene 0,3 μM de sinefungina (medio de selección).
- Mantener los parásitos en el medio de selección durante al menos 3 pasadas hasta que el grupo resistente se estabilice (indicado por la ausencia de crecimiento del parásito en el grupo de control negativo pero crecimiento robusto del parásito en el grupo experimental).
- Subclonar el grupo de resistencia a sinefungina para obtener cepas clonales.
- Recolectar parásitos recién egresados, purificar mediante filtración de membrana de 3 μm y subclonar en placas de 96 pocillos sembradas con células HFF confluentes en 150 μl de medio D10. Cultivar los cultivos de subclonación en un incubador de CO 2 a 37 ° C durante 7 - 10 d sin alterar las placas.
NOTA: Véase el Protocolo 4.4.2.1 Nota en el Archivo complementario 1 .
- Recolectar parásitos recién egresados, purificar mediante filtración de membrana de 3 μm y subclonar en placas de 96 pocillos sembradas con células HFF confluentes en 150 μl de medio D10. Cultivar los cultivos de subclonación en un incubador de CO 2 a 37 ° C durante 7 - 10 d sin alterar las placas.
- Compruebe las placas de 96 pocillos bajo un microscopio de contraste de fase invertido para buscar pozos que contengan sólo una placa. Marcar tales pozos y posteriormente transferir las células de cada pocillo a placas de 24 pocillos sembradas con células HFF usando una pipeta.
- Para el aislamiento del ADN genómico del clon de SNF r , pellet los parásitos (pequeñas cantidades de contaminación de células HFF es tolerable) a 1.000 xg durante 10 min. Lave los parásitos granulados con solución salina tamponada con fosfato (PBS) una vez y pételos de nuevo. Aísle el ADN genómico de las células sedimentadas usando un kit comercial o por ebullición. Resuspender los parásitos en 50-100 μ l de PBS.
NOTA: Realizar PCR para obtener un fragmento del gen SNR1 para la secuenciación. Utilizar los siguientes cebadores para amplificar el locus SNR1 2 : SNR1-Amp-Fw: 5 'CCGACCACAA CAATTTTC y SNR1-Amp-Rv: 5'GACGTGATTCACTTTTTTACAGACAGAC. Utilice ADN polimerasas de alta fidelidad. Amplificar el locus WT para fines de control.
- Cultivar los parásitos electroporados de la sección 4.2.9 en un matraz T25 sembrado con células HFF durante 2 d a 37 ° C. A continuación, se sustituye el medio por 5 ml de medio D10 que contiene 0,3 μM de sinefungina (medio de selección).
- EjecutarPCR con 20 mu l de volumen de reacción y se lleva a cabo con el siguiente programa: 98ºC durante 1 min, seguido de 30 ciclos de 98ºC durante 10 s, 55ºC durante 30 s y 72ºC durante 2,5 min, seguido por Extensión final durante 2 min a 72 ° C.
NOTA: Secuencia de los productos de PCR usando los siguientes cebadores: SNR1-Seq1: 5 'GCC ACA TGC TTT AGC GTG, SNR1-Seq2: 5' TCC TCT CCA TCA CGG GTT GG, SNR1-Seq3: 5 'GCA AGA GCC GCG TGA CG , SNR1-Seq4: 5 'CTC TCC CGC GGT CGA G, SNR1-Seq5: 5' GCA CCG TCC GCA AGC y SNR1-Seq6: 5 'CCG GAA GGT GAA TCG TTC TTC. - Comparar las secuencias del gen SNR1 de mutantes resistentes a sinefungina a la de la cepa WT utilizando una herramienta de alineación de secuencias.
NOTA: Véase el Protocolo Adicional 2 Protocolo 5 para detalles sobre la utilización de la selección negativa en el locus SNR1 para la complementación genética o la construcción de la cepa transgénica.
Resultados
En este artículo se describen en detalle varios métodos que pueden utilizarse sucesivamente para identificar un gen responsable de la resistencia a fármacos ( Figura 1 ). La progenie 24 de la ME49-FUDR r X VAND-SNF r se evaluó la resistencia al fármaco sinefungina, tal como se describe en el Protocolo 1. Usando el mapa genético y el SNF r fenotipo de la progenie, se realizó una exploración QTL en R / Qtl - Protocolo 2 ( Figura 2 ). Esto resultó en un pico significativo en el cromosoma IX que abarca aproximadamente 1 Mbp. Es en esta región donde se localiza la mutación causal.
Para identificar la mutación causal, las lecturas de WGS de la progenie se alinearon con el genoma de referencia de VAND-SNF utilizando Bowtie2 - Protocolo 3.1, se usaron SNPs usando VarScan mpileup2snp - Protocolo 3.2 y se identificó el locus QTL en el genoma de VAND usando MUMmer - ProtocOl 3.3. Progeny SNPs dentro de la QTL locus fueron extraídos y escaneados para un patrón donde el SNF r progeny tienen un SNP y el SNF s no, lo que es factible porque la progenie SNPs se obtuvieron por comparación con el VAND-SNF s genoma de referencia ( Figura 3 ] . Sólo un SNP coincide con este patrón que resulta en un codón de parada temprana en un gen portador de aminoácidos putativo llamado SNR1 .
La confirmación de que SNR1 es el SNF r gen de resistencia se realizó utilizando el sistema CRISPR / Cas9. Se preparó un nuevo plásmido CRISPR / Cas9 diseñado para la edición del gen de T. gondii que contenía un gRNA dirigido al gen SNR1 cerca de la mutación SNF r identificada en la progenie - Protocolo 4 ( Figura 4A ). El SNR1 dirigida CRISPR / Cas9 plásmido fue electroporated en un SNF s WT parásito cepa y resistente mutantes se obtuvieron cuando el cultoDe sinefungina 0,3 μM. No se obtuvieron parásitos SNF r cuando se electroporaron con el UPRT dirigido al plásmido CRISPR / Cas9. Varios SNF r CRISPR mutantes fueron clonados y la región alrededor de la SNR1 gRNA objetivo fue secuenciado. Cada mutante tenía un indel que interrumpió la secuencia codificante del SNR1 gen ( Figura 4B ]. Este método también puede usarse para insertar una construcción de orientación en el locus SNR1 a través de NHEJ ( Figura 5), o por HR ( Figura 6 ) - Supplemental File 2 .
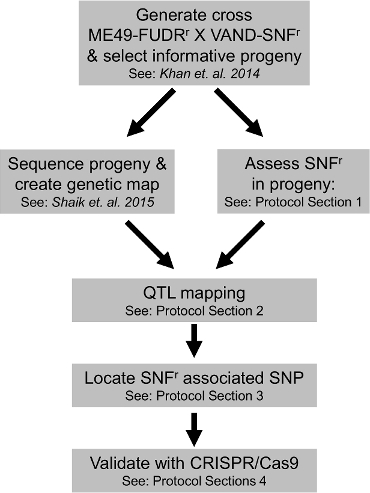
Figura 1: Flujo de trabajo esquemático para los experimentos resumidos en los protocolos. Los principales pasos en la identificación y confirmación del gen SNF r utilizando el ME49-FUDR r X VAND-SNF r se muestran con referencia a los protocolos apropiados esbozados en tSu artículo. Haga clic aquí para ver una versión más grande de esta figura.
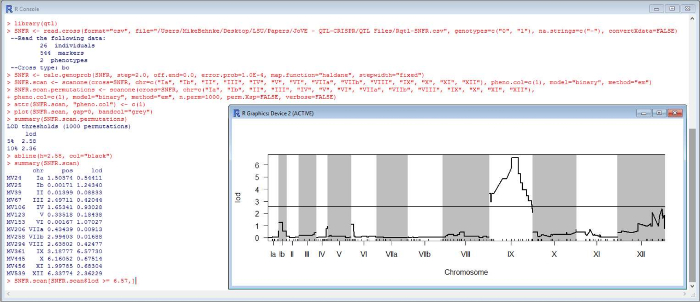
Figura 2: Comandos R / qtl para ejecutar QTL Scan en el SNF r Fenótipo. Los comandos descritos en el Protocolo 2 se ejecutaban en R usando el paquete qtl. Se muestran comandos representativos y diagrama. Haga clic aquí para ver una versión más grande de esta figura.
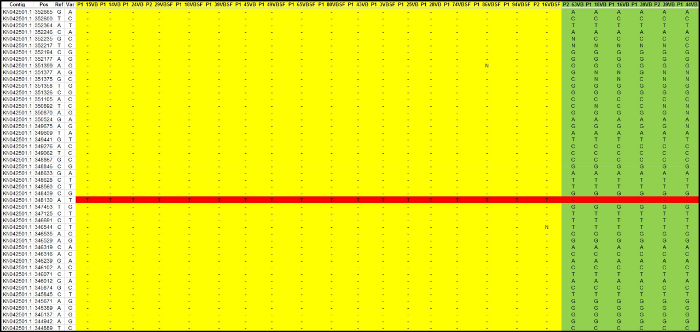
Figura 3: Localización del SNP Causal. Progeny WGS lecturas se alinearon a la VAND-SNF s genoma de referencia con Bowtie 2, SNPs fueron llamados con VarScan, y el correspondiente Locus VAND QTL identificado con MUMmer. SNPs ubicados dentro del locus QTL fueron importados en una hoja de cálculo y el causal SNP fue identificado. SNF r progenie (amarillo), SNF s progenie (verde), SNF r SNP (rojo) (véase el archivo de datos 3 ). Haga clic aquí para ver una versión más grande de esta figura.
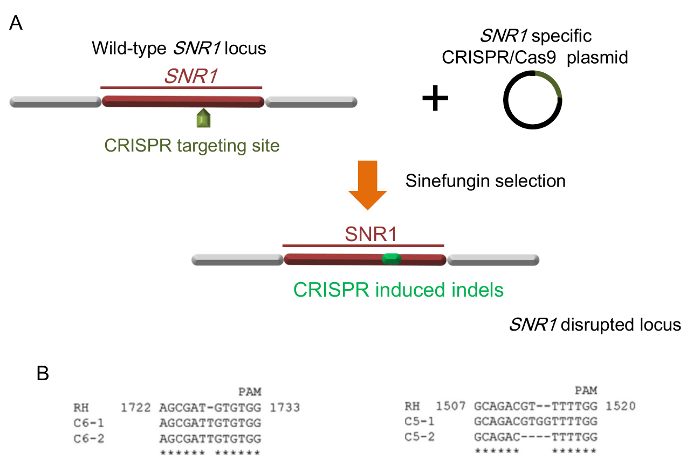
Figura 4: Confirmación de SNR1 como SNF r Gene usando CRISPR / Cas9. ( A ) CRISPR / Cas9 indujo mutaciones indel (verde) en el locus SNR1 . ( B ) Indels representativos en SNR1 causados por dos plásmidos CRISPR específicos de SNR1 diferentes (C5 y C6 respectivamente). RH es la cepa WT y C5 y C6 son SNF r mutantes. (B se toma de la referenciaS = "xref"> 2). Haga clic aquí para ver una versión más grande de esta figura.
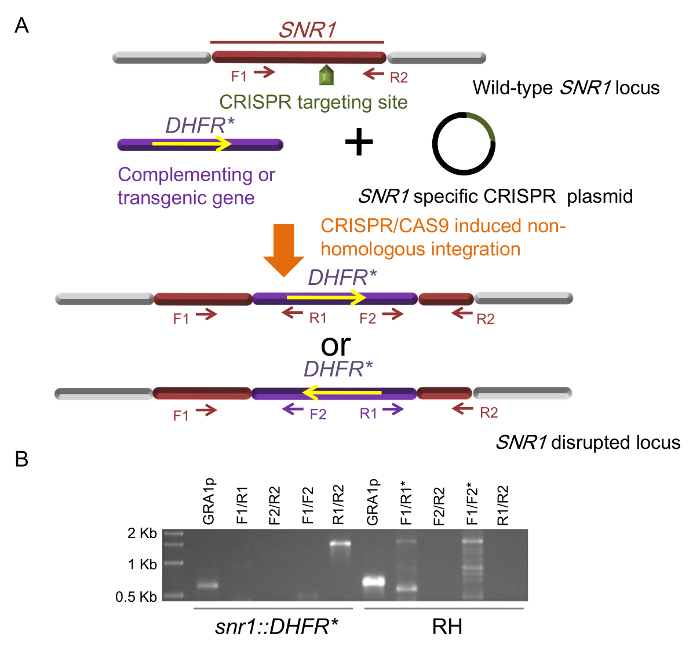
Figura 5. Mutagénesis Insercional usando CRISPR / Cas9. ( A ) Inserción de genes complementarios o transgénicos en el locus SNR1 mediante integración específica del sitio mediada por CRISPR / Cas9. Dos orientaciones posibles del mini gen DHFR insertado y los cebadores utilizados para la identificación, F1 / 2 y R1 / 2 representan los sitios de cebado de oligos utilizados en PCR de diagnóstico. ( B ) PCR de diagnóstico de un clon snr1 :: DHFR * , RH se utiliza como un control WT. La PCR del GRA1p se incluye como un control que comprueba la calidad del ADN genómico como plantillas. Los asteriscos indican carriles con bandas inespecíficas (la figura 5B se toma de referenCe 2 ). Haga clic aquí para ver una versión más grande de esta figura.
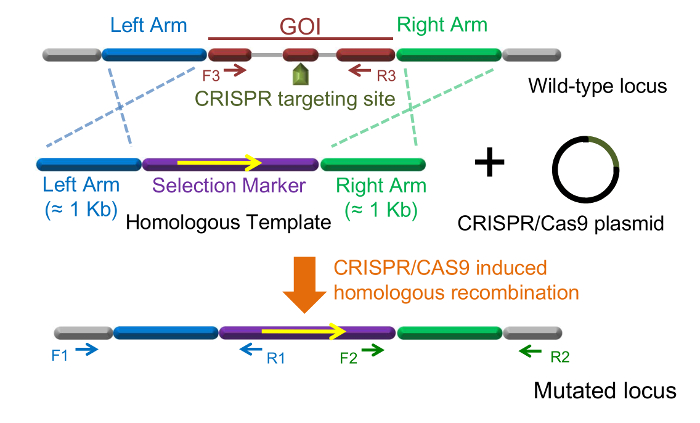
Figura 6: Gene Knockout utilizando CRISPR / Cas9. Un diseño clásico para el reemplazo de genes homólogos mediados por CRISPR / Cas9 en T. gondii . La orientación del transgén insertado se fija en este caso. F1 / R1, F2 / R2 y F3 / R3 representan los sitios de cebado de oligos utilizados en PCR de diagnóstico. Haga clic aquí para ver una versión más grande de esta figura.
Archivo de datos 1: ME49-FUDR r X VAND-SNF r Fichero cruzado fO utilizar en R / qtl, "csv" Formato. Un archivo .csv que se puede cargar en R / qtl con la opción format = "csv". Haga clic aquí para descargar este archivo.
Archivo de datos 2: (txt chrid, txt genotipo, markerpos.txt, mname.txt, phenonames.txt y phenos.txt). ME49-FUDR r VAND-SNF r Archivos cruzados para uso en R / qtl, "gary" Formato. Seis archivos .txt que se pueden cargar en R / qtl con la opción format = "gary". Haga clic aquí para descargar este archivo.
Archivo de datos 3. Hoja de cálculo con progenie SNPs a través del SNF r QTL Locus. Contiene una hoja de trabajo con la progenie SNPs, y una segunda hoja de trabajo con los datos fenotípicos de los progenitores y progenie de la cruz. Haga clic aquí para descargar este archivo.
Archivo suplementario 1: Detalles adicionales del protocolo. Haga clic aquí para descargar este archivo.
Archivo Suplementario 2: Protocolo 5 - Utilización de la selección negativa en el lugar SNR1 para la complementación genética o la construcción de la cepa transgénica. Haga clic aquí para descargar este archivo.
Discusión
Estos protocolos presentan varios métodos que cuando se combinan permiten la identificación de un gen de resistencia a fármacos en T. gondii . Dos en particular eran parte integrante del proyecto, el método relativamente experimentado de mapeo QTL y el recientemente desarrollado método de edición de genes CRISPR / Cas9. Lander y Botstein publicaron su influyente artículo en 1989 demostrando el mapeo QTL que correlaciona loci genéticos con fenotipos [ 36] . Más recientemente, en 2012, Dounda y Charpentier describieron el sistema de edición CRISPR / Cas9 en Streptococcus pyogenes 22 que se adaptó rápidamente como una herramienta genética en muchos modelos diferentes, incluyendo T. gondii 13 , 17 . Ambos métodos fueron útiles aquí, donde la cartografía QTL define el locus que contiene la mutación de resistencia a los fármacos que se identificó en última instancia mediante la detección de SNP basada en WGS, y la edición de CRISPR / Cas9 me proporcionó Ans para confirmar SNR1 es el gen de resistencia a fármacos sinefungina.
El ME49-FUDR r X VAND-SNF r cruz 8 se desarrolló originalmente para interrogar un fenotipo de virulencia 19 , pero las cepas parentales también tuvieron una diferencia fenotípica adicional para la cual el gen causal no se conocía, resistencia a la sinefungina en el gen VAND. Esto pone de relieve un beneficio de los cruces en que pueden ser reutilizados cuando se observan diferencias fenotípicas adicionales en los padres. Este fue el caso de otra cruz Toxoplasma , tipo 2 x tipo 3, donde varios genes implicados en la virulencia se encontraron por la cartografía de múltiples fenotipos [ 37 , 38 , 39 , 40] . Hasta la fecha, se han descrito cuatro diferentes cruces de T. gondii para asignar genes responsables de los fenotiposSs = "xref"> 8 , 37 , 41 , 42 , todos los cuales tienen el potencial de ser reutilizados para asignar nuevos fenotipos para los cuales la base genética es desconocida. En este sentido, los genomas de 62 T. gondii cepas que representan la conocida diversidad genética mundial se han secuenciado [ 43] . Podrían hacerse nuevas cruces de este grupo para las cepas que difieren en fenotipos interesantes. Habiendo alabado las ventajas de la cartografía QTL, hay que decir que la generación de una cruz no es una empresa menor. Existen otros métodos que pueden usarse para identificar genes causales. Una técnica potente utiliza la mutagénesis química para crear mutantes que pueden ser seleccionados para detectar fenotipos. Para encontrar el gen causal, los mutantes pueden ser complementados con bibliotecas de cósmidos [ 44] o métodos de resecuenciación del genoma se puede utilizar para encontrar la mutación causal [ 45] . Para moRe sobre esto, ver dos artículos de JoVE por Coleman et al. Y Walwyn et al. Que describen estos enfoques 46 , 47 .
Muchas de las etapas que conducen a la identificación de la mutación causal SNF r (Protocolos 2 y 3) se basan en métodos computacionales realizados con software que está libremente disponible para uso académico. Se proporcionan comandos detallados para cada paso y cuando se ejecutan con los archivos adecuados permitirá al usuario volver a crear los conjuntos de datos necesarios para encontrar SNF SNP causal. Tenga en cuenta que algunos de la sintaxis en los comandos se refieren a los nombres de archivo o estructura de directorios ($ PATH) que se pueden modificar a la preferencia del usuario. Aunque los comandos dados aquí ciertamente no agotan las formas en que se puede analizar una cruz con análisis QTL y la identificación SNP basada en WGS, son lo suficientemente amplias para repetir el experimento descrito en este artículo y deberían permitir al usuario convertirse en m Familiarizarse con cómo estos enfoques se utilizan de una manera paso a paso.
Aunque la cartografía QTL y WGS secuencia basada en la detección de SNP fueron suficientes para identificar un candidato SNF r gen, experimentos adicionales son necesarios para confirmar su papel en la resistencia a los medicamentos. Esto puede ser demostrado de manera convincente a través de la interrupción génica o knockout técnicas, ambos de los cuales se puede lograr utilizando CRISPR / Cas9 edición de genes. Se proporcionan métodos detallados para usar CRISPR / Cas9 para generar mutaciones indel o insertar constructos transgénicos en un gen diana en T. gondii . La especificidad de direccionamiento que CRISPR / Cas9 proporciona aumenta la eficacia de la edición de genes sobre los métodos tradicionales. Además, este aumento eficientemente ha hecho posible utilizar cepas no adaptadas para estudios genéticos que antes eran difíciles de modificar 13 . Aunque en su infancia, CRISPR / Cas9 ya se ha utilizado para hacer interrupciones de genes, Y hacen los knockouts de genes 16 , 19 , 50 , 51 , 52 , 53 , 54 en T. gondii , lo que promete ser una herramienta útil Para muchos otros estudios en el futuro.
El descubrimiento de que la inactivación de SNR1 conduce a la resistencia a la sinefungina hace que el locus SNR1 sea un sitio prometedor para la inserción de transgenes o la complementación genética. Para maximizar el éxito del uso de la orientación de genes mediados por CRISPR / Cas9 para dirigir la integración del transgén en el locus SNR1 , deben tenerse en cuenta los siguientes aspectosRojo durante el diseño experimental. En primer lugar, se recomienda incluir un marcador de selección en la construcción transgénica para aumentar la eficiencia de la construcción de deformación. Si se incluye un marcador de selección, se pueden usar tanto la selección positiva como la negativa, resultando que casi el 100% de los parásitos doblemente seleccionados son transgénicos con el GOI integrado en el locus SNR1 . Por el contrario, si la construcción transgénica no contiene rasgos seleccionables adicionales y se basa en la selección negativa en el locus SNR1 , la eficacia de la transgénesis satisfactoria depende en gran medida de la eficacia de la cotransfección del plásmido CRISPR y la construcción transgénica.
En segundo lugar, aunque la integración de un fragmento de ADN no homólogo mediada por CRISPR / Cas9 se utiliza frecuentemente para la complementación y la transgénesis, debe observarse que la orientación de la inserción no puede garantizarse en estos casos ya que es posible cualquier dirección. Esto puede plantear problemasMs para algunas aplicaciones. Por ejemplo, para complementar un mutante con diferentes alelos génicos, es difícil asegurar que todos los alelos se insertan en la misma orientación, y las discrepancias en la orientación pueden causar diferencias de expresión. Para este tipo de aplicación, se recomiendan construcciones de ADN con secuencias homólogas al locus SNR1 , lo que impulsará la orientación de integración adecuada ( Figura 6 ).
Tercero, durante la transfección, la relación entre el plásmido CRISPR y la molécula de ADN transgénico es crítica para la construcción de la tensión transgénica exitosa. Esta relación debe ajustarse de acuerdo con las estrategias de selección. Se recomiendan las siguientes directrices: 1) Si la construcción transgénica contiene un marcador resistente a los fármacos y el fármaco correspondiente es la única selección utilizada para generar parásitos transgénicos, es decir , no se utiliza la sinefungina, la relación molar sugerida entre la construcción transgénica y el plasma CRISPRId es 1: 5. El uso de más plásmido CRISPR en este caso aumenta la probabilidad de que los parásitos que reciben la construcción transgénica también recibirán el plásmido CRISPR, por lo tanto los parásitos resistentes a los fármacos tienen más probabilidades de tener el marcador insertado en el sitio de selección de CRISPR. Si la proporción se invierte, la mayoría de los parásitos que reciben la construcción transgénica no obtendrán el plásmido CRISPR. Como consecuencia, la gran mayoría de los parásitos resistentes a los fármacos obtienen la construcción transgénica mediante una integración aleatoria no asociada con la inserción específica del sitio mediada por CRISPR / CAS9. 2) Si la construcción transgénica contiene un marcador resistente a fármacos y el fármaco correspondiente se usa junto con la sinefungina para seleccionar parásitos transgénicos, la relación molar sugerida entre la construcción transgénica y el plásmido CRISPR es de 1: 1. Esta estrategia proporciona la mayor eficiencia de la construcción de deformación transgénica. 3) Si la construcción transgénica no contiene un fabricante seleccionable, dependiendo de la selección negativaPor sinefungin sola para obtener parásitos transgénicos, la relación molar sugerida entre la construcción transgénica y el plásmido CRISPR es 5: 1. La justificación para este diseño es la misma que en la primera directriz anterior. Puesto que tanto la pirimetamina como la sinefungina se usaron para la selección en el Protocolo 5, la relación entre el gen mini DHFR * y el plásmido CRISPR dirigido por SNR1 se estableció como 1: 1.
En conjunto, los métodos descritos aquí tienen un nivel de detalle que no fue posible transmitir en la publicación original que identificó SNR1 2 . Estos protocolos; Específicamente, la sintaxis de la línea de comandos, el diseño secuencial de los programas utilizados y el uso de CRISPR / Cas9 deberían ayudar a futuros esfuerzos para identificar nuevos genes responsables de los fenotipos.
Divulgaciones
Los autores declaran que no tienen intereses financieros contrapuestos.
Agradecimientos
Agradecemos a L. David Sibley y Asis Khan por su contribución a la publicación original en la que se basan estos protocolos. Este trabajo fue financiado por los Institutos Nacionales de Salud otorgar AI108721.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Matraces T25 | Corning | 430639 | |
| Fibroblastos de prepucio humano (HFF) | ATCC SCRC-1041 | ||
| T. gondii ME49 cepa | ATCC | 50840 | |
| T. gondiiVAND cepa | ATCC | PRA-344 | |
| DMEM (bicarbonato sin sodio) | Ciencias de la Vida | 12800017 | |
| Bicarbonato de sodio | Sigma Aldrich | S5761 | |
| HEPES | Sigma Aldrich | H3375 | |
| Suero fetal bovino (FBS) de primera calidad | VWR International | 97068-085 | |
| L-Glutamina 200 mM | Sigma Aldrich | G7513 | |
| Gentamicina (10 mg/mL) | Life Technologies | ||
| Rascador de células para matraces | VWR International | 10062-904 | |
| Jeringa 10 mL | BD | 309604 | |
| Agujas romas 22 G x 1" | Productos BRICO | BN2210 | |
| Filtro de nucleporos 3.0 y micro; m, 25 mm | GE Healthcare | 110612 | |
| Swin-Lok Portafiltros 25 mm | GE Healthcare | 420200 | |
| Hemacitómetro | Propper MFG | 90001 | |
| Sinefungin | Enzo Life Sciences | 380-070-M001 | |
| R | La Fundación R | https://www.r-project.org/ | |
| J/qtl | El Grupo Churchill | http://churchill.jax.org/software/jqtl.shtml | |
| Bowtie2 | Universidad John Hopkins | http://bowtie-bio.sourceforge.net/bowtie2/index.shtml | |
| NCBI SRA Toolkit | NCBI | http://www.ncbi.nlm.nih.gov/Traces/sra/?view=toolkit_doc | |
| SAMtools | Wellcome Trust Sanger Institute | http://www.htslib.org/ | |
| VarScan | Universidad de Washington, San Luis | http://varscan.sourceforge.net/ | |
| MUMmer | JCVI & Univ Hamburg | http://mummer.sourceforge.net/ | |
| pSAG1::CAS9-U6::sgUPRT | Plásmido Addgene #54467 | T. gondii Plásmido CRISPR para cortar el gen UPRT | |
| pSAG1::CAS9-U6::sg290860-6 | Addgene | Plásmido #59855 | T. gondii plásmido CRISPR para cortar el gen TG*_290860 SNR1 |
| pUPRT::D HFR-D | Addgene | Plasmid #58528 | Plantilla para DHFR* mini gen |
| Q5 Site-Directed Mutagenesis Kit | New England Biolabs | E0552S | |
| QIAprep Spin Miniprep Kit | QIAGEN | 27106 | |
| NanoDrop 2000 | Thermo Scientific | ND-2000 | |
| LB Caldo | Fisher Scientific | DF0446-07-5 | |
| Cloruro de potasio | Sigma Aldrich | P9541 | |
| Cloruro de calcio | Sigma Aldrich | 746495 | |
| Fosfato de potasio monobásico | Sigma Aldrich | P9791 | |
| Fosfato de potasio dibásico | Sigma Aldrich | P5504 | |
| EDTA | Sigma Aldrich | E5134 | |
| Cloruro de magnesio | Sigma Aldrich | M1028 | |
| Trifosfato de adenosina (ATP) | Sigma Aldrich | A6419 | |
| L-glutatión (GSH) | Sigma Aldrich | G4251 | |
| ECM 830 Sistema de electroporación | BTX | 45-0002 | |
| Cubeta de electroporación 4 mm | Aparato Harvard | 45-0126 | |
| Crytal Violeta | Alfa Aesar | B21932-14 | |
| Placa TC de 6 pocillos | Corning | 353046 | |
| Placa TC de 24 pocillos | Corning | 353935 | |
| Cubreobjetos redondo de 12 mm | VWR International | 89015-724 | |
| Placa TC de 96 pocillos | Corning | 353075 | |
| Gibson Assembly Cloning Kit (multifragmento) | New England Biolabs | E5510S | |
| Q5 Polimerasa de alta fidelidad | New England Biolabs | M0491S | |
| resistentes a la pirimetamina - ver Protocolo |
Referencias
- Dubey, J. P. The history of Toxoplasma gondii--the first 100 years. J Eukaryot Microbiol. 55 (6), 467-475 (2008).
- Behnke, M. S., Khan, A., Sibley, L. D. Genetic Mapping Reveals that Sinefungin Resistance in Toxoplasma gondii Is Controlled by a Putative Amino Acid Transporter Locus That Can Be Used as a Negative Selectable Marker. Eukaryot Cell. 14 (2), 140-148 (2015).
- Dubey, J. P. History of the discovery of the life cycle of Toxoplasma gondii. Int J Parasitol. 39 (8), 877-882 (2009).
- Pfefferkorn, L. C., Pfefferkorn, E. R. Toxoplasma gondii: genetic recombination between drug resistant mutants. Exp Parasitol. 50 (3), 305-316 (1980).
- Donald, R. G., Roos, D. S. Insertional mutagenesis and marker rescue in a protozoan parasite: cloning of the uracil phosphoribosyltransferase locus from Toxoplasma gondii. Proc Natl Acad Sci U S A. 92 (12), 5749-5753 (1995).
- Sullivan, W. J. Jr Insertional tagging of at least two loci associated with resistance to adenine arabinoside in Toxoplasma gondii, and cloning of the adenosine kinase locus. Mol Biochem Parasitol. 103 (1), 1-14 (1999).
- Khan, A. Composite genome map and recombination parameters derived from three archetypal lineages of Toxoplasma gondii. Nucleic Acids Res. 33 (9), 2980-2992 (2005).
- Khan, A. NextGen sequencing reveals short double crossovers contribute disproportionately to genetic diversity in Toxoplasma gondii. BMC Genomics. 15 (1), 1168(2014).
- Shaik, J. S., Khan, A., Beverley, S. M., Sibley, L. REDHORSE-REcombination and Double crossover detection in Haploid Organisms using next-geneRation SEquencing data. BMC Genomics. 16 (1), 133(2015).
- Arends, D., Prins, P., Jansen, R. C., Broman, K. W. R/qtl: high-throughput multiple QTL mapping. Bioinformatics. 26 (23), 2990-2992 (2010).
- Langmead, B., Salzberg, S. L. Fast gapped-read alignment with Bowtie 2. Nat Methods. 9 (4), 357-359 (2012).
- Koboldt, D. C. VarScan 2: somatic mutation and copy number alteration discovery in cancer by exome sequencing. Genome Res. 22 (3), 568-576 (2012).
- Shen, B., Brown, K. M., Lee, T. D., Sibley, L. D. Efficient gene disruption in diverse strains of Toxoplasma gondii using CRISPR/CAS9. MBio. 5 (3), e01114(2014).
- Fox, B. A., Ristuccia, J. G., Gigley, J. P., Bzik, D. J. Efficient gene replacements in Toxoplasma gondii strains deficient for nonhomologous end joining. Eukaryot Cell. 8 (4), 520-529 (2009).
- Huynh, M. H., Carruthers, V. B. Tagging of endogenous genes in a Toxoplasma gondii strain lacking Ku80. Eukaryot Cell. 8 (4), 530-539 (2009).
- Wang, J. L. The Past, Present, and Future of Genetic Manipulation in Toxoplasma gondii. Trends Parasitol. , (2016).
- Sidik, S. M., Hackett, C. G., Tran, F., Westwood, N. J., Lourido, S. Efficient genome engineering of Toxoplasma gondii using CRISPR/Cas9. PLoS One. 9 (6), e100450(2014).
- Sugi, T., Kato, K., Weiss, L. M. An improved method for introducing site-directed point mutation into the Toxoplasma gondii genome using CRISPR/Cas9. Parasitol Int. , (2016).
- Behnke, M. S. Rhoptry Proteins ROP5 and ROP18 Are Major Murine Virulence Factors in Genetically Divergent South American Strains of Toxoplasma gondii. PLoS Genet. 11 (8), e1005434(2015).
- Barrangou, R. CRISPR provides acquired resistance against viruses in prokaryotes. Science. 315 (5819), 1709-1712 (2007).
- Garneau, J. E. The CRISPR/Cas bacterial immune system cleaves bacteriophage and plasmid DNA. Nature. 468, 67-71 (2010).
- Jinek, M. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Cong, L. Multiplex genome engineering using CRISPR/Cas systems. Science. 339 (6121), 819-823 (2013).
- Mali, P. RNA-guided human genome engineering via Cas9. Science. 339 (6121), 823-826 (2013).
- Jiang, F., Zhou, K., Ma, L., Gressel, S., Doudna, J. A. STRUCTURAL BIOLOGY. A Cas9-guide RNA complex preorganized for target DNA recognition. Science. 348 (6242), 1477-1481 (2015).
- Nishimasu, H. Crystal Structure of Staphylococcus aureus Cas9. Cell. 162 (5), 1113-1126 (2015).
- The R Project for Statistical Computing. , Available from: https://www.r-project.org (2016).
- Smith, R., Sheppard, K., DiPetrillo, K., Churchill, G. Quantitative trait locus analysis using J/qtl. Methods Mol Biol. 573, 175-188 (2009).
- The Churchill Group. , J/qtl. http://churchill.jax.org/software/jqtl.shtml (2013).
- Li, H. The Sequence Alignment/Map format and SAMtools. Bioinformatics. 25 (16), 2078-2079 (2009).
- Kurtz, S. Versatile and open software for comparing large genomes. Genome Biol. 5 (2), (2004).
- Gajria, B. ToxoDB: an integrated Toxoplasma gondii database resource. Nucleic Acids Res. 36 (Database issue), D553-D556 (2008).
- Heigwer, F., Kerr, G., Boutros, M. E-CRISP: fast CRISPR target site identification. Nat Methods. 11 (2), 122-123 (2014).
- Roos, D. S. Molecular genetic tools for the identification and analysis of drug targets in Toxoplasma gondii. Curr Top Microbiol Immunol. 219, 247-259 (1996).
- Soldati, D., Boothroyd, J. C. Transient transfection and expression in the obligate intracellular parasite Toxoplasma gondii. Science. 260 (5106), 349-352 (1993).
- Lander, E. S., Botstein, D. Mapping mendelian factors underlying quantitative traits using RFLP linkage maps. Genetics. 121 (1), 185-199 (1989).
- Saeij, J. P. Polymorphic secreted kinases are key virulence factors in toxoplasmosis. Science. 314 (5806), 1780-1783 (2006).
- Saeij, J. P. Toxoplasma co-opts host gene expression by injection of a polymorphic kinase homologue. Nature. 445 (7125), 324-327 (2007).
- Rosowski, E. E. Strain-specific activation of the NF-kappaB pathway by GRA15, a novel Toxoplasma gondii dense granule protein. J Exp Med. 208 (1), 195-212 (2011).
- Reese, M. L., Zeiner, G. M., Saeij, J. P., Boothroyd, J. C., Boyle, J. P. Polymorphic family of injected pseudokinases is paramount in Toxoplasma virulence. Proc Natl Acad Sci U S A. 108 (23), 9625-9630 (2011).
- Taylor, S. A secreted serine-threonine kinase determines virulence in the eukaryotic pathogen Toxoplasma gondii. Science. 314 (5806), 1776-1780 (2006).
- Behnke, M. S. Virulence differences in Toxoplasma mediated by amplification of a family of polymorphic pseudokinases. Proc Natl Acad Sci U S A. 108 (23), 9631-9636 (2011).
- Lorenzi, H. Local admixture of amplified and diversified secreted pathogenesis determinants shapes mosaic Toxoplasma gondii genomes. Nat Commun. 7, 10147(2016).
- Gubbels, M. J. Forward genetic analysis of the apicomplexan cell division cycle in Toxoplasma gondii. PLoS Pathog. 4 (2), e36(2008).
- Farrell, A. A DOC2 protein identified by mutational profiling is essential for apicomplexan parasite exocytosis. Science. 335 (6065), 218-221 (2012).
- Coleman, B. I., Gubbels, M. J. A genetic screen to isolate Toxoplasma gondii host-cell egress mutants. J Vis Exp. (60), (2012).
- Walwyn, O. Forward genetics screens using macrophages to identify Toxoplasma gondii genes important for resistance to IFN-gamma-dependent cell autonomous immunity. J Vis Exp. (97), (2015).
- Rugarabamu, G., Marq, J. B., Guerin, A., Lebrun, M., Soldati-Favre, D. Distinct contribution of Toxoplasma gondii rhomboid proteases 4 and 5 to micronemal protein protease 1 activity during invasion. Mol Microbiol. 97 (2), 244-262 (2015).
- Varberg, J. M., Padgett, L. R., Arrizabalaga, G., Sullivan, W. J. Jr TgATAT-Mediated alpha-Tubulin Acetylation Is Required for Division of the Protozoan Parasite Toxoplasma gondii. mSphere. 1 (1), (2016).
- Zheng, J., Jia, H., Zheng, Y. Knockout of leucine aminopeptidase in Toxoplasma gondii using CRISPR/Cas9. Int J Parasitol. 45 (2-3), 141-148 (2015).
- Long, S., Wang, Q., Sibley, L. D. Analysis of Noncanonical Calcium-Dependent Protein Kinases in Toxoplasma gondii by Targeted Gene Deletion Using CRISPR/Cas9. Infect Immun. 84 (5), 1262-1273 (2016).
- Wang, K. Identification of Novel O-Linked Glycosylated Toxoplasma Proteins by Vicia villosa Lectin Chromatography. PLoS One. 11 (3), e0150561(2016).
- Yang, M., Zheng, J., Jia, H., Song, M. Functional characterization of X-prolyl aminopeptidase from Toxoplasma gondii. Parasitology. , 1-7 (2016).
- Zhang, W. Analysis of the virulence determination mechanisms in a local Toxoplasma strain (T.gHB1) isolated from central China. Parasitol Res. , (2016).
Reimpresiones y permisos
