Estudios a largo plazo son esenciales para entender el proceso de evolución y los mecanismos de adaptación. Generalmente, estos estudios requieren compromisos más allá de la vida en tiempo de los investigadores. Aquí, un método de gran alcance se describe que avanza dramáticamente la colección de datos para generar datos longitudinales en los sistemas naturales.
Artículo de método
Resurrección de latente Daphnia magna: protocolo y aplicaciones
En este artículo
Resumen
Resumen
Estudios a largo plazo permiten la identificación de los procesos eco-evolutivo que se producen durante períodos de tiempo extendidos. Además, proporcionan datos empíricos que pueden utilizarse en la modelización predictiva para la previsión de respuestas evolutivas de los ecosistemas naturales a los cambios ambientales futuros. Sin embargo, excepto algunos casos excepcionales, estudios a largo plazo son escasos debido a las dificultades logísticas asociadas con el acceso a muestras temporales. Dinámica temporal con frecuencia se estudia en el laboratorio o en experimentos de mesocosmos controlados con estudios excepcionales que reconstrucción la evolución de las poblaciones naturales en la naturaleza.
Aquí, se provee un procedimiento de funcionamiento de estándar (SOP) para revivir o resucitar latente Daphnia magna, una especie de clave de zooplancton generalizada en los ecosistemas acuáticos, para avanzar considerablemente en la colección de datos longitudinales en sistemas naturales. El campo de la ecología de la resurrección fue definido en 1999 por Kerfoot y compañeros de trabajo, aunque los primeros intentos en eclosión diapausa zooplancton huevos datan de la década de 1980. Desde papel seminal de Kerfoot, la metodología de resucitar especies de zooplancton se ha aplicado cada vez más frecuentemente, aunque propagada entre los laboratorios sólo a través de transferencia de conocimiento directo. Aquí, se describe una compensación que proporciona un protocolo paso a paso en la práctica de resucitar latente Daphnia magna huevos.
Dos estudios claves son siempre en que la respuesta de la aptitud del Resucitado Daphnia magna las poblaciones se mide el calentamiento, aprovechando la posibilidad de estudiar poblaciones históricas y modernas en la configuración del mismo. Finalmente, se discute la aplicación de tecnologías de secuenciación de próxima generación a etapas restablecidas o aún latentes. Estas tecnologías proporcionan una potencia sin precedentes en los procesos y mecanismos de la evolución si se aplica a poblaciones que han experimentado cambios en la presión de selección en el tiempo de la disección.
Introducción
Estudios a largo plazo son fundamentales para la comprensión de procesos ecológicos y evolutivos en la naturaleza y en la evaluación de cómo las especies responderan a y persisten durante el cambio del medio ambiente1. Esto es debido a procesos eco-evolutivo ocurren a través de generaciones y cambios en el ambiente durante largo tiempo se extiende. Además, estudios a largo plazo proporcionan datos empíricos claves que mejoran la exactitud del modelo predictivo para pronosticar las respuestas evolutivas de los ecosistemas naturales a cambios ambientales2. La precisión de estos modelos es fundamental para implementar estrategias de manejo y conservación para preservar la biodiversidad y los servicios ecosistémicos.
Excepto algunos casos excepcionales (por ejemplo, Galápagos Darwin pinzones algas de3 y4), estudios a largo plazo son en gran parte limitados a especies con el tiempo de generación corto que puede ser propagado en el laboratorio5,6 , 7 , 8. por lo tanto, los procesos que sustentan la dinámica evolutiva permanecen fuera de alcance. Debido a dificultades logísticas asociadas con el acceso a las muestras temporales, datos empíricos se estudian con más frecuencia en un espacial que en un contexto temporal, y procesos eco-evolutivo temporales son inferidos o modelados de datos espaciales. Este enfoque se conoce como sustitución de 'espacio de tiempo'9, por el que se adopta el espacio como un sustituto para el estudio de la dinámica evolutiva temporal. La principal limitación de la sustitución de 'espacio de tiempo' es que las tasas de adaptación a diferentes escalas espaciales difieren de variación temporal en la misma población; por lo tanto, deducciones basadas en reemplazo de tiempo con el espacio son parciales10.
Una poderosa alternativa que permite estudiar la dinámica evolutiva de los ecosistemas naturales con el tiempo es el análisis de los cambios ecológicos y genéticos en especies produciendo etapas latentes11. Estas etapas latentes se acumulan de forma estratificada archivos biológicos que pueden ser datados con precisión y paleolimnologically caracteriza12,13. Importante, estas etapas latentes pueden ser resucitadas y utilizadas en experimentos de laboratorio, donde su respuesta evolutiva a los cambios ambientales puede medirse directamente. Poblaciones históricas pueden compitió contra sus modernos descendientes evolucionados para estudiar cambios de aptitud y la función de genes evolucionando en sintonía con el cambio ambiental14,15,16.
Etapas latentes incluyen semillas, quistes, esporas y los bancos de huevos. Aunque los primeros estudios en reanimación huevos latentes remonta a los finales del decenio de 1980 de17y un puñado de estudios han aplicado esta técnica en el decenio de 1990 temprano18,19, el campo de la ecología de la resurrección ha sido formalmente establecido por el artículo seminal de Kerfoot y colaboradores en 199920. Esta práctica ha sido aplicada principalmente en reconstrucciones paleolimnológicos de especies de agua dulce17,21,22. Sin embargo, una concesión aún no está disponible. Aquí, se proporciona una descripción paso a paso el protocolo de resurrección aplicada a los huevos latentes de las especies de zooplancton Daphnia magna , de la toma de muestras de sedimentos para el establecimiento de cultivos clonales de crías. Pasos del SOP que son fácilmente transferibles a otras especies de Dafnia, así como medidas que requieran optimización adicional, se discuten.
Daphnia son zooplankters de agua dulce presentes en la mayoría de los hábitats lóticos23 . Especies de Daphnia son cualquiera obligan partenógenos asexual o cíclica. D. magna es un parthenogen cíclica que reproduce clonalmente bajo condiciones ambientales favorables24. Cuando se deterioran las condiciones ambientales, ocurre la producción masculina y recombinación sexual conduce a la formación de huevos fertilizados que entran en un estado de latencia que protege contra el ambiente por un caso de quitina llamado ephippium. Una proporción de estos huevos latentes de la portilla cuando vuelven las condiciones ambientales favorables. Sin embargo, una gran proporción de lo Banco de óvulos latentes nunca tiene la oportunidad de eclosionar y así construir archivos biológicos con el tiempo. Etapas latentes permanecen enterradas en el sedimento de lagos y estanques y pueden ser resucitadas para el estudio de la dinámica evolutiva durante períodos de tiempo extendidos. Porque los huevos latentes de D. magna están el resultado de la recombinación sexual, son una buena representación de la diversidad genética natural de la especie25. Por otra parte, se puede mantener mediante reproducción clonal en el laboratorio. Estas características proporcionan la ventaja única de organismos modelo isogénicas, conservando la diversidad genética natural.
Dos estudios claves se presentan para demostrar las ventajas de comparar directamente los descendientes históricos y modernos de la misma población de D. magna experimentando presiones de selección ambiental con el tiempo. D. magna especímenes fueron resucitados del lago anillo (Dinamarca), un poco (5 m de profundidad, superficie 22 hectáreas) estanque mixto que ha experimentado un aumento en la ocurrencia de temperatura y olas de calor promedio en el tiempo. D. magna (sub) poblaciones fueron resucitadas a lo largo de este gradiente temporal que abarca 60 años (1960-2005) y estudios para investigar la respuesta evolutiva al calentamiento de la temperatura. En el primer estudio en un experimento de jardín común, cambios en rasgos de historia de la vida fitness-ligado se midieron en respuesta a un aumento de temperatura de + 6 ° C, en consonancia con las predicciones del Panel Intergubernamental de cambio climático para los próximos 100 años 26. en el segundo estudio, un experimento de mesocosmos se utilizó para medir las capacidades competitivas de las tres poblaciones (sub) bajo calentamiento. Estos experimentos combinados demuestran que en presencia de calentamiento como el estrés único, todos los rasgos de historia de la vida y las poblaciones muestran un alto nivel de plasticidad y tienen iguales habilidades competitivas. Estos resultados sugieren que calienta como un estrés único no impone costes de adecuación significativa, al menos en la población estudiada.
Protocolo
El SOP siguiente proporciona una descripción paso a paso del protocolo usado para resucitar Daphnia magna huevos latentes, incluyendo una descripción detallada del muestreo, aislamiento de efipios del sedimento y establecimiento de cultivos clonales ( Figura 1).

Figura 1: guía paso a paso para la resurrección de Daphnia magna. Sedimento de un hábitat de agua dulce (A) se muestrea con un nucleador de pistón (B). La base del sedimento (C) es cortada en capas incrementales de 1 o 0,5 cm (D). Cada capa de sedimento se guarda en una bolsa de ziplock de muestra (E) en condiciones de oscuras y frío (4 ° C). Cada capa de sedimentos es pesado y tamizado usando tamices geológicos (1 mm y 125 μm malla, F). Bandejas de fondo blanco se utilizan para aislar efipios Daphnia magna (G). Decapsulated huevos latentes (H) se transfirió a cajas Petri y expuestos a los estímulos de luz y temperatura para inducir la eclosión. Crías se transfieren para separar los frascos (yo) para establecer líneas de isoclonal. Haga clic aquí para ver una versión más grande de esta figura.
1. muestreo de testigos de sedimentos
- Sedimento de la muestra de lagos o estanques con un nucleador de pistón. Este protocolo utiliza Big Ben27, un tubo de aproximadamente 1,5 m de longitud con un diámetro interno de 14 cm. Big Ben consta de un pistón en una cuerda y una cabeza de corer, que barras se unen para impulsar el tubo en el sedimento. Un sacatestigos ayuda el apoyo del tubo cuando esté lleno de sedimentos. Para sacar el sedimento, un marco mantiene el tubo vertical y estacionaria, y un gato de botella modificado se utiliza para empujar el pistón hacia arriba durante el proceso de extrusión (Video complementario 1).
- Para estanques poco profundos de menos de 1 m de profundidad, use un corer de gravedad de plexiglás de no más de 6 cm de diámetro empujado manualmente en el sedimento.
- Para lagos profundos (> 6 m de profundidad), usar Livingston pistón equipos28 o equipos de sedimento de Griffith de una unidad de disco con las ayudas de un barco el pontón anclado. El corer de Livingstone-tipo unidad varilla del pistón puede utilizarse en agua hasta unos 30 m profundidad para recoger sucesivas unidades de un metro de suave al sedimento del lago consolidado. El tubo de Griffith de una unidad de disco consiste en una cabeza de núcleo simple pero robusto que conecta tubos de policarbonato estándar a las barras de accionamiento de Livingstone. Los equipos se empujan en el sedimento con las varillas, y un pistón proporciona la succión necesaria para la recuperación de sedimentos (figura 2).
- Para la recuperación continua, corazones, uso vibracoring. Estos equipos trabajan en una variedad de profundidades del agua y pueden recuperar muestras de diferentes longitudes, dependiendo de la litología de los sedimentos. Vibración de baja amplitud que se transfiere de la cabeza vibracore hacia abajo a través del barril conectado o el tubo licua los sedimentos, lo que permite el cañón del núcleo la unidad de vibracore para penetrar en los sedimentos licuados. Algunos vibracorers son pequeño, ligero y portátil, otros son grandes unidades pesadas que sólo pueden ser implementadas de grandes vasos. La elección de los equipos depende de la litología de los sedimentos.
- Cortar la base horizontalmente en capas incrementales de 1 cm o menos usando una superficie metálica plana (1 vídeo complementario). Equipos de sedimentos como el que se usa aquí están diseñados para reducir presiones hidrostáticas en extrusión, reducción de la perturbación de las capas de sedimento. Cuando se utilizan otros equipos, la corteza exterior de cada capa de sedimento puede ser quitada con una especie de cookie-cutter de cuchilla para limitar la contaminación entre capas.
- Recoger cada capa de sedimento en una bolsa de muestreo separado (complementario 1 de Video) y almacenar en oscuridad y frío (4 ° C) condiciones.
- Recoger un mínimo de 5 g de sedimento de todas las capas para la datación radiométrica. Como la datación radiométrica es un protocolo establecido para una descripción detallada de la prueba de datación, consulte existentes publicaciones12,13.

Figura 2: historieta del pistón metálico procedimiento. Corer de pistón, un tubo hueco con un interno sello deslizante (pistón) que produce un vacío débil. Cuando el pistón toca la interface agua sedimento, el peso empuja el cañón del núcleo en el sedimento y el vacío hace que el sedimento se tubular para entrar y moverse por el tubo sin molestar a las capas de sedimento. Haga clic aquí para ver una versión más grande de esta figura.
2. tamizado de capas de sedimentos
- Usando una balanza de precisión, pesar cada capa de sedimento para referencia futura. Utilice el área de la superficie y el peso para calcular la densidad de especies en el lago.
- Tamiz de cada capa de sedimento utilizando dos tamices geológicos apilados uno encima del otro. El primer tamiz tiene un tamaño de malla de 1 mm y arcilla, invertebrados grandes y partículas, por ejemplo, semillas, plantas e insectos, separa el resto del sedimento. El segundo tamiz tiene una malla de 125 μm y separa el resto del sedimento (Video complementario 2) D. manga efipios y partículas pequeñas.
-
Transferencia de pequeñas alícuotas de la fracción de sedimento recogida en el tamiz de malla de 125 μm en una bandeja de fondo blanco. Dependiendo del tipo de sedimento, alícuotas más pequeñas o más grandes de sedimentos pueden ser transferidos en cada momento.
- Añadir volúmenes pequeños (hasta 200 mL) del medio a la bandeja de muestreo blanco para volver a suspender la fracción de sedimento transferido y facilitar ojo manchado de efipios (figura 3). El medio utilizado para Resuspender el sedimento puede ser agua del grifo declorada, agua de pozo, COMBO29o ADaM medio (Aachener Daphnien)30. En lo sucesivo, se utilizará el término 'mediana' para referirse a cualquiera o todas las soluciones mencionadas.

Figura 3: Daphnia magna ephippium. Huevos latentes Daphnia magna inmediatamente después de la desencapsulación. Ephippium (A), la membrana interna del huevo (B) y los huevos latentes (C) se muestran. Barra de escala = 500 μm.
3. desencapsulación de efipios y eclosión
- Con una pipeta de Pasteur desechable o usar pinzas de microdisección, llenan de efipios individuales de transferencia a cajas Petri con 10 mL de medio. Utilice al menos un plato de Petri por capas de sedimentos.
- Microscopio estéreo, desencapsulan cada efipios con unas pinzas de microdisección obligando a abrir el caso de la quitina (3 Video complementario). Quitar la membrana interna del huevo descanso delicadamente, prestando atención a no interrumpir los huevos y transferir a la caja Petri con medio utilizando una pipeta Pasteur. Desencapsulación aumenta el éxito de eclosión en D. magna; sin embargo, puede que no sea necesario o puede ser un reto para otras especies de Dafnia produciendo efipios más pequeños.
- Exponer los huevos decapsulated luz de fotoperíodo de día largo de espectro completo (16:8 luz: oscuridad) y de alta temperatura (20 ± 1 ° C) para inducir la eclosión de un dispositivo de temperatura controlada (incubadora) o una habitación. Eclosión se produce entre 48 horas y varias semanas (hasta cuatro; Video complementario 4). En ausencia de desencapsulación, exponer directamente los efipios a eclosión estímulos (luz de fotoperiodo largo del día (16:8 luz: oscuridad) y alta temperatura (20 ± 1 ° C)).
4. establecer líneas de Isoclonal de Daphnia magna
- Establecer líneas de isoclonal de crías solo transfiriendo individual D. magna de paso 3.3 para separar los frascos con 200 mL de medio con una pipeta Pasteur desechable. Cada individuo es genéticamente distinto, siendo el resultado de la recombinación sexual.
- Mantener líneas isoclonal indefinidamente en condiciones de la población que consta de 10 ± 1 ° C, régimen de 16:8 luz: oscuridad, semanalmente alimentaron con 0,2 mg C/L de Chlorella vulgaris u otras algas verdes (p. ej., Scenedesmus obliquus). Renovar el medio de cada tercera semana. Condiciones de la población pueden cambiar con la temperatura, regímenes de alimentación, especies.
5. principales estudios
Nota: Una descripción de dos estudios claves se proporciona en que resucitado D.magna (sub) poblaciones del archivo sedimentaria del lago anillo (Dinamarca) se utilizan para evaluar la respuesta evolutiva al calentamiento. Resucitaron a tres poblaciones de (sub) de los siguientes períodos: 1960-1970, 1970-1985, y > 1999. D. magna eclosión éxito del archivo sedimentario oscilado entre el 11 y el 58% (figura 4). De las crías obtenidas de cada timeperiod, un subconjunto aleatorio fue elegido para los dos principales estudios aquí descritos. Estos estudios fueron diseñados para evaluar si las poblaciones de (sub) resucitadas de diferentes períodos de tiempo a lo largo del gradiente de la temperatura mostraron diferencias en rasgos de historia de la vida fitness-ligado (5.1), y si tenían diferentes habilidades competitivas (5.2) después de la exposición al calentamiento.

Figura 4: éxito en un archivo sedimentario muestreado del lago anillo de eclosión. La proporción de crías exitosas a lo largo del archivo sedimentario del lago anillo utilizado en los principales estudios. Haga clic aquí para ver una versión más grande de esta figura.
-
Experimentos de jardín común
- Transferir diez crías por población (sub) de culturas comunes a condiciones comunes de jardín: 16 ° C; fotoperíodo largo (régimen de 16:8 luz: oscuridad); alimentar diariamente con 0,8 mg C/L de Chlorella vulgarisy renovar la media cada dos días. Mantener las crías en condiciones comunes de jardín durante al menos dos generaciones (aprox. 45 días). Condiciones comunes de jardín reducen la interferencia del efecto materno y sincronización la reproducción entre crías.
- Sobre el lanzamiento de la segunda cría en la cámara de cría, transferencia de hembras adultas de la segunda generación para frascos de 500 mL llenados de medio hasta que suelten la segunda cría de juveniles.
- Transferencia al azar individuales juveniles de 24 – 48 h, nacido de la segunda cría de la segunda generación, en frascos de 100 mL llena con medio y expuesto a las siguientes condiciones experimentales: 18 ° C (temperatura actual en el lago) y 24 ° C (calentamiento, temperatura previsto por el IPCC 26 para los próximos 100 años), 16:8 luz: oscuridad régimen y alimentación diaria de 0,8 mg C/L de Chlorellavulgaris.
- En cada animal experimental, medir el tamaño en la madurez con un estereomicroscopio como la distancia entre la cabeza y la base de la espina dorsal de la cola (figura 5). Fotografía de cada animal y posteriormente analizar su tamaño utilizando un software de imagen adecuado.
- Medir la edad de madurez: el día en que los huevos se observan por primera vez en la cámara de cría.
- Medir la mortalidad: el número de individuos a estar extinto durante el experimento.
- Medir la fecundidad: el número total de descendientes en primera y segunda clónica reproducción.
- Medir la tasa de crecimiento de la población, estimada usando la ecuación de Euler (1):
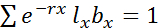 (1)
Lx es la proporción de supervivencia en la edad x, bx es el número de recién nacidos producidas por individuo sobrevive en la edad x, y r es la tasa intrínseca de incremento natural. - Realizar el análisis estadístico utilizando el software disponible en el mercado. Aquí, utilice R31 para trazar normas de reacción (expresión fenotípica de un genotipo único a través de entornos) para cada rasgo de la historia de la vida, utilizando el paquete ggplot2. Calcular las tasas de mortalidad por la población por medio de análisis de supervivencia (R paquete rms; https://cran.r-project.org/web/packages/rms/rms.pdf). Por último, realizar un análisis de varianza (ANOVA, tabla 2) en R31 para determinar si el efecto de la temperatura sobre las características puede explicarse por la evolución (diferencias entre poblaciones), plasticidad (respuesta al tratamiento), o la evolución de plasticidad (población x tratamiento).
-
Experimento de competencia
- Transferir diez crías por habitantes de culturas comunes a condiciones comunes de jardín: 20 ° C, largo fotoperiodo (régimen de 16:8 luz: oscuridad), alimentar diariamente con 0,8 mg C/L de Chlorella vulgaris y renovar el medio cada dos días. Mantener condiciones comunes jardín de por lo menos dos generaciones (aprox. 45 días) reducir la interferencia de efectos maternos.
- Asignar al azar cinco menores de edad de 24 a 48 h de la segunda cría de la segunda generación de cada eclosión al mesocosmos experimentales (20 L plástico acuarios llenados de medio), en triplicado, con una densidad de 10 animales/L.
- Exponer el mesocosmos a 24 ° C, régimen de l: 16:8 y alimentan diariamente con 0,8 mg C/L de Chlorellavulgaris en una cámara de temperatura controlada o en incubadora para un mínimo de cuatro semanas (> 3 generaciones clonales).
- Sacrificar cada mesocosmos semanalmente, refrescantes 10% del medio para simular una población dinámica que Daphnia puede encontrar en el medio natural. Imponer el sacrificio mediante la eliminación de un volumen conocido de medio y los animales de cada acuario (1.2 L en este caso) y sustituyendo el volumen sacrificado por medio fresco. Iniciar el régimen de sacrificio después de que los animales alcanzan la madurez (día 10).
- Al final de la cuarta semana, la muestra 32 animales de cada mesocosmos para evaluar cambios en la composición genotípica en comparación con el inóculo inicial.
- Coloque cada Daphnia en tubos de microcentrífuga y eliminar exceso de líquido con la ayuda de una pipeta Pasteur.
- Flash congelar los tubos en nitrógeno líquido y conservar a-80 ° C.
- Extraer la DNA de genomic de individuos aislados utilizando protocolos disponibles y siguiendo las instrucciones del fabricante.
- Amplificar el ADN extraído mediante una serie de marcadores genéticos suficientes para proporcionar un único genotipo multilocus por crías. Aquí, se utilizaron 8 microsatélites dispuestas en un solo múltiplex (M01, tabla 1) siguiendo protocolos establecidos32,33.
- Genotipo amplificaron fragmentos en un analizador de fragmento.
- Realizar el análisis del fragmento con un software comercial o libre disponible con un estándar de tamaño adecuado.
- Evaluar composición genotípica en el final del experimento por individuos genotyping los 32 con un conjunto de loci microsatélites descrito33, como calcular la frecuencia de cada genotipo en el final del experimento en comparación con el inóculo inicial.

Figura 5: hembra adulta Daphnia magna. Adulto hembra Daphnia magna con huevos partenogenéticos en la cámara de cría. La distancia entre la cabeza y la base de la espina dorsal de la cola se utiliza para medir el tamaño del animal. Las líneas rojas indican las medidas del tamaño. Barra de escala = 500 μm.
Resultados
Datos empíricos a largo plazo son esenciales para la comprensión de la dinámica evolutiva y persistencia de las poblaciones naturales. Estos datos son generalmente difíciles de obtener debido a las dificultades logísticas asociadas con el acceso a las muestras temporales y el requisito de comprometerse a largo plazo para la recolección de datos. En los dos principales estudios presentados aquí, se ofrece evidencia empírica de la respuesta a la temperatura de una central zooplankter en ecosistemas de agua dulce sobre tiempo evolutivo. Esta opción está activada por el uso de los bancos de huevos latentes capas que proporcionan la oportunidad para estudiar la respuesta de las poblaciones históricas y sus descendientes modernos a la tensión ambiental en común configuración experimental.
Experimento de jardín común
El experimento de jardín común demostró que todos los rasgos de historia de la vida respondieron a la temperatura (figura 6 y figura 7). El análisis de varianza reveló que todas las poblaciones (sub) responden a la temperatura mediante plasticidad (tabla 2), excepción de la mortalidad, que es insensible. Evidencia de cambios evolutivos (diferencias entre poblaciones (sub)) sólo se observó en tasa de crecimiento poblacional (tabla 2), que aumentó significativamente en dos de las tres poblaciones (sub) a 24 ° C (figura 6).

Figura 6: experimento de jardín común. Normas de reacción para rasgos de historia de la vida (fecundidad, tamaño y edad de madurez) y tasa de crecimiento poblacional (r) se muestran para cada población (sub) bajo temperatura calentamiento (24 ° C) en comparación con el jardín común y el actual régimen de temperatura (18 ° C). La tasa de crecimiento de la población 'r' se calcula mediante la ecuación de Eulerian (1). Se muestran los intervalos de confianza. Las poblaciones (sub) están codificadas por color: azul (): 1960-1970; (ii) verde: 1970-1985; (iii) rojo: > 1999. Haga clic aquí para ver una versión más grande de esta figura.

Figura 7: mortalidad. Las tasas de mortalidad por población (sub) (1960-1970, 1970-1985; > 1999) aparecen bajo calentamiento (24 ° C) en comparación con los regímenes modernos de temperatura (18 ° C). Haga clic aquí para ver una versión más grande de esta figura.
Experimento de mesocosmos
Después de cuatro semanas de selección, representada por el calentamiento a 24 ° C, la frecuencia de las tres poblaciones (sub) no cambió significativamente (χ2 = 0.55, P = 0.76) en comparación con el inóculo inicial (figura 8). Entre los 30 genotipos inoculados en el experimento de mesocosmos, la mayoría fue identificada después de cuatro semanas de selección (figura 9). Concretamente, el 70% de los genotipos inoculados fueron recuperados, compatible con Poissonian expectativa de recuperar al menos un representante de cada genotipo en una muestra de 32 personas.

Figura 8: experimento de competencia - frecuencia de la población. Promedio de población mediana y cuartiles (25 demayo y 75th), se muestra para las tres poblaciones (sub) de D. magna después de cuatro semanas de selección en los experimentos de competencia de mesocosmos (24 ° C), en comparación con una frecuencia igual inicial (en el comienzo). Las poblaciones (sub) son colores como se muestra en la figura 6. Haga clic aquí para ver una versión más grande de esta figura.

Figura 9: experimento de competencia - frecuencia de genotipo. Frecuencias genotípicas: promedio mediana y cuartiles (25 demayo y 75th), aparecen después de cuatro semanas de exposición al calentamiento (24 ° C) en comparación con una inicial igual frecuencia de genotipos (línea punteada). Nombres en el eje x son el ID de genotipos inoculados, agrupado por población (sub) (azul, 1960-1970; verde, 1970-1985; rojo, > 1999). Haga clic aquí para ver una versión más grande de esta figura.
| Lugar geométrico | UN | Gama del tamaño (bp) | Cebadores (5' - 3') | Etiqueta de tinte | Repetir el motivo | TM | |
| B008 | HQ234154 | 150 – 170 | F: TGGGATCACAACGTTACACAA | VIC | (TC) 9 | 56 | |
| R: GCTGCTCGAGTCCTGAAATC | |||||||
| B030 | HQ234160 | 154-172 | F: CCAGCACACAAAGACGAA | MASCOTA | (GA) 11 | 56 | |
| R: ACCATTTCTCTCCCCCAACT | |||||||
| B045 | HQ234168 | 118 – 126 | F: GCTCATCATCCCTCTGCTTC | NED | (TG) 8 | 56 | |
| R: ATAGTTTCAGCAACGCGTCA | |||||||
| B050 | HQ234170 | 234-248 | F: TTTCAAAAATCGCTCCCATC | 6FAM | (GAA) 6 | 56 | |
| R: TATGGCGTGGAATGTTTCAG | |||||||
| B064 | HQ234172 | 135-151 | F: CTCCTTAGCAACCGAATCCA | 6FAM | (TC) 8 | 56 | |
| R: CAAACGCGTTCGATTAAAGA | |||||||
| B074 | HQ234174 | 196-204 | F: TCTTTCAGCGCACAATGAAT | NED | (GT) 9 | 56 | |
| R: TGTGTTCCTTGTCAACTGTCG | |||||||
| B096 | HQ234181 | 234-240 | F: GGATCTGGCAGGAAGTGGTA | VIC | (AC) 15 | 56 | |
| R: TTGAACCACGTCGAGGATTT | |||||||
| B107 | HQ234184 | 250-274 | F: GGGGTGAAGCATCAAAGAAA | MASCOTA | (CT) 8 | 56 | |
| R: TGTGACCAGGATAAGAGAAGAGG | |||||||
Tabla 1: multiplex de Microsatellite. El NCBI adhesión número (AN), la información multiplex, las secuencias de la cartilla PCR, el rango de tamaño de polimerización en cadena, el motivo de repetición, el tinte usado para etiqueta que aparecen el primer avance y la temperatura de recocido (Tm).
| Tasa de crecimiento del pop (r) | DF | F | P | |
| Evolución (Pop) | 2 | 30.309 | < 0.001 | |
| Plasticidad (Temp) | 1 | 531.546 | < 0.001 | |
| Evol. Plasticidad (Pop x Temp) | 2 | 65.137 | < 0.001 | |
| Mortalidad | DF | F | P | |
| Evolución (Pop) | 2 | 2.234 | 0.1162 | |
| Plasticidad (Temp) | 1 | 2.679 | 0.1071 | |
| Evol. Plasticidad (Pop x Temp) | 2 | 1.8657 | 0.164 | |
| Fecundidad | DF | F | P | |
| Evolución (Pop) | 2 | 1.8852 | 0.1633 | |
| Plasticidad (Temp) | 1 | 6.8934 | 0.0117 | |
| Evol. Plasticidad (Pop x Temp) | 2 | 1.6511 | 0.203 | |
| Talla de madurez | DF | F | P | |
| Evolución (Pop) | 2 | 0.211 | 0.8106 | |
| Plasticidad (Temp) | 1 | 11.1361 | 0,0017 | |
| Evol. Plasticidad (Pop x Temp) | 2 | 0.6586 | 0.5225 | |
| La edad en la madurez | DF | F | P | |
| Evolución (Pop) | 2 | 0.7811 | 0.4637 | |
| Plasticidad (Temp) | 1 | 8.0764 | 0.0066 | |
| Evol. Plasticidad (Pop x Temp) | 2 | 0.088 | 0.9159 | |
Tabla 2: Análisis de varianza (ANOVA). Análisis de varianza prueba si cambios en rasgos de historia de la vida y la tasa de crecimiento demográfico de las poblaciones de resucitado (secundaria) expuestos al calentamiento se explican por adaptación evolutiva (poblaciones), plasticidad (tratamiento de temperatura) y su término de interacción (evolución de la plasticidad). Significativas p-valores (p< 0,05) se muestran en negrita.
Video complementario 1: toma de muestras de núcleos de sedimento. Se muestra el uso de un nucleador de Big Ben. Big Ben es un tubo de aproximadamente 1,5 m de longitud con un diámetro interno de 14 cm. Consiste en un pistón en una cuerda y una cabeza de corer, que barras se unen para impulsar el tubo en el sedimento. Un sacatestigos se utilizan para el tubo de base que se implementa desde una pequeña embarcación de apoyo. El pistón es empujado hacia abajo en el sedimento por presión gravitatoria. Un marco se utiliza para apoyar el tubo durante el proceso de extrusión utilizando un gato de botella modificados que empuja el pistón hacia arriba. Cada capa de sedimento se recoge en una superficie plana de metal y transferido a las bolsas de muestreo transparente para almacenamiento a largo plazo [oscuro y frío (4 ° C) condiciones]. Haga clic aquí para descargar este archivo.
Video complementario 2: sedimento tamizado. El equipo requerido para tamizar el sedimento es una balanza de precisión, tamices geológicos y bandejas de muestreo blanco. De cada capa de sedimento, por lo menos de 5 g se conservan para la datación radiométrica. El resto del sedimento se utiliza para aislar efipios. El sedimento es tamizado a través de dos tamices geológicos, uno con 1 mm y un segundo con 125 μm tamaño de malla, apilados uno encima del otro. Medio se vierte en el tamiz de malla de 1 mm para separar arcilla, invertebrados grandes y partículas. Medio de vertido en el segundo tamiz con malla de 125 μm separa D. magna efipios y pequeñas partículas. Alícuotas de sedimento se transfieren a una bandeja de muestreo blanco. D. magna efipios son vistos por el ojo en la bandeja de fondo blanco. Efipios de cada capa se recogen en cajas Petri separadas. Haga clic aquí para descargar este archivo.
Video complementario 3: Decapsulation. Bajo un estereomicroscopio, efipios D. magna se abren con pinzas para microdisección mediante la aplicación de presión en el lomo de la caja de la quitina. La membrana interna del huevo se retira delicadamente y huevos de reclinación suavemente transferidos con una pipeta Pasteur a un plato de Petri que contiene 10 mL de medio. Haga clic aquí para descargar este archivo.
Video complementario 4: eclosión. Después de la exposición a fotoperiodo largo y 20 ° C, desarrollo del embrión se reanuda entre 48 horas y algunas semanas. Cuando el desarrollo es completo, los embriones liberarse de la cáscara de huevo y nadan libremente en el medio. Haga clic aquí para descargar este archivo.
Discusión
Debido a la alta conductividad térmica del agua, ecosistemas de agua dulce están en mayor riesgo de pérdida de la biodiversidad de los ecosistemas terrestres ante global calentamiento34. Por lo tanto, es fundamental para entender la respuesta de la especie en estos ecosistemas e identificar mecanismos para sobrevivir el estrés térmico. La comprensión de estos mecanismos a nivel especie y comunidad puede ayudar a predecir cómo las especies se ven afectadas por el calentamiento global y cómo las cascadas del efecto en las especies individuales a otros niveles tróficos. En definitiva, entender mecanismos de respuestas al calentamiento global permite la identificación de estrategias de rehabilitación para mitigar la extinción.
Los estudios de caso presentados aquí demuestran que la respuesta de D. magna a aumento de la temperatura es pervasively mediada por plasticidad en rasgos de historia de la vida y que respuesta al aumento de la temperatura solamente imponer costos fitness claro, al menos en el población estudiada aquí. Alta plasticidad en rasgos de historia de la vida está sustentada en diferencias no significativas en competencia las capacidades de las poblaciones de (sub) en presencia de calentamiento. Sin embargo, experimentos de competencia a largo plazo en poblaciones múltiples pueden ser necesarios para generalizar estos resultados.
Resurrección de etapas latentes proporciona un recurso sin precedentes para estudiar mecanismos de adaptación y trayectorias de evolución de una especie a través de tiempo de10. Especies de zooplancton se benefician de un tiempo de generación rápido (2 semanas) y la viabilidad de etapas latentes, que permite un antepasado competir enfrentamientos contra sus propios descendientes, o a 'reproducir' evolución que inicia desde diversos Estados últimos. Ecología de resurrección esencialmente permite la investigación de si un resultado evolutivo particular depende de algún acontecimiento previo. La identificación de los elementos genéticos de la evolución es actualmente posible en experimentos de laboratorio con microorganismos para que 'líneas ancestrales' son congeladas y resucitadas para el análisis comparativo con su descendiente evolucionado6. Sin embargo, una de las principales limitaciones de trabajar con organismos de laboratorio es que el 'estado ancestral' es una referencia ya cambiada de puesto. El estudio de etapas latentes permite el muestreo de especimenes de tiempo anteriores a cualquier evento de estrés (p. ej., prístinas condiciones ambientales) y para medir trayectorias evolutivas de las condiciones ambientales a distintos Estados últimos hasta tiempos modernos. En los últimos años, el estudio del polimorfismo de la DNA en etapas de zooplancton resucitado o aún latente ha proporcionado importantes conocimientos sobre últimos procesos demográficos y adaptativos que han contribuido a la composición genética de las poblaciones actuales14 , 16 , 25 , 33 , 35 , 36. con la mayor accesibilidad de tecnologías de secuenciación de alto rendimiento, el genoma y transcriptoma de etapas resucitadas o aún latentes pueden ser secuenciados y el tipo y el número de cambios genéticos acumularon en la evolución de las poblaciones en tiempo medido.
La resurrección SOP presentado aquí tiene aplicaciones importantes en el campo de la multi-omics en dos niveles. Las tecnologías multi-ómicas pueden aplicarse a muestras de resucitado, permitiendo un análisis exhaustivo de los elementos moleculares implicados en las respuestas de adaptación a las presiones de selección ambiental. Además, las tecnologías ómicas pueden aplicarse a decapsulated pero etapas todavía latentes. Hasta ahora, la aplicación de tecnologías de secuenciación de alto rendimiento en etapas de descanso ha sido limitada por la exigencia de una gran cantidad de material de entrada. Estas limitaciones están siendo levantado37. Con los requisitos de descenso para entrada material y el progreso en nanofluídica, secuenciación del genoma entero (WGS) ahora es posible desde tan poco como 1 ng o pg unos de a partir de material38. El uso de amplificación (WGA) de todo el genoma y transcriptoma conjunto técnicas de amplificación (WTA), que permite el enriquecimiento de ADN y ARN de muy pequeñas cantidades de tejido, ha revolucionado la metagenómica39,40 y médica 41la investigación. Estas tecnologías aplicadas a los huevos latentes decapsulated permiten superar limitaciones asociadas con viabilidad de etapas latentes y la investigación de los periodos de tiempo prolongado (p. ej., siglos).
La resurrección de las comunidades invertebradas produciendo etapas de reposo permite la alineación de las historias de la comunidad con los conocidos cambios en los paisajes naturales, o con cambios ambientales que se infiere del análisis de los sedimentos orsoils2. El análisis de los cambios de la comunidad en respuesta a los cambios ambientales nos proporciona la capacidad de cuantificar eco-evolutivo votos42 que tienen consecuencias sustanciales sobre la población persistencia43, interacciones tróficas44 , comunidad Asamblea45y cambios en el ecosistema funciones y servicios46. Finalmente, predicciones exactas acerca de las respuestas biológicas a los cambios ambientales son fundamentales para guiar la protección de la biodiversidad47. Los modelos predictivos actuales son inexactos en este sentido porque no tienen en los mecanismos biológicos importantes cuenta como demografía, dispersión, evolución e interacciones de las especies. Entender cómo estos procesos cambian con el tiempo y el uso de esta información como un prior en modelado de pronóstico mejorará nuestra capacidad para predecir la especie y persistencia de la comunidad frente al medio ambiente cambiar2.
La aplicación de la compensación presentada aquí no es sin problemas. La limitación principal de reconstruir etapas latentes es la necesidad de equipo especializado para toma de muestras. Además, todo el proceso de tamizado de sedimentos para el establecimiento de cultivos clonales, requiere bastante tiempo de práctico.
Algunas de las medidas de compensación presentadas aquí son fácilmente transferibles a otras especies de Dafnia . Estas son: muestreo, el establecimiento de líneas clonales y diseño experimental. Sin embargo, otras medidas del SOP pueden requerir más optimización adaptado a la especie bajo estudio. Desencapsulación a menudo se aplica a los especímenes de D. magna para mejorar el éxito de eclosión. Sin embargo, este enfoque puede no ser adecuado para los especímenes más pequeños. Estímulos de eclosión puede variar entre especies48 y49de la misma especie muestra. Por lo tanto, una especial optimización de los pasos de eclosión de la compensación puede ser requerida antes de aplicaciones a otros crustáceos. Mientras que el éxito de eclosión de la población de D. magna resucitado de lago anillo (30,5% en el archivo sedimentario) está en línea con anteriores resultados49, éxito de eclosión varía con el estado de conservación de los sedimentos, la especie 50,51y el origen geográfico de los48del sedimento. Futuros estudios sobre los mecanismos que regulan la entrada y la progresión a través de las fases de la diapausa es necesaria para identificar estímulos eclosión óptima adaptados a diferentes especies.
Finalmente, conocimiento del sistema de estudio de fondo, en particular la presencia de las especies de interés con el tiempo, es recomendable. Esto puede lograrse a través de registros históricos. Si no hay registros históricos, muestreo y detección de las capas superficiales de los sedimentos del lago antes de la toma de muestras de núcleo es recomendable, aunque puede proporcionar información sólo sobre la historia más reciente.
Divulgaciones
Los autores no tienen nada que revelar
Agradecimientos
Este trabajo fue apoyado por la concesión de puntos destacados NERC (NE/N016777/1). Ensis Ltd, servicios científicos ambientales, centro de investigación de cambio ambiental, University College London muestreados y de la base de sedimento.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| bolsas de muestreo | Fisher Scientific | 11542783 | Bolsa de muestreo cables redondos giratorios sistema de cierre y lengüetas de seguridad polietileno estéril con área de escritura transparente 89µ m espesor 140 mm x 229 mm, 720 ml Fisherbrand |
| pistón perforador | ENSIS ltd | na | Tubo largo y pesado sumergido en el mar, lago, fondo del estanque para extraer muestras de sedimentos de lodo. Los sacanúcleos de pistón tienen un diámetro viable y generalmente están en |
| escala | de precisión de PVC Veritas-M124A | TLP-50 | Balanza analítica |
| tamiz geológico | UKGE limited | SV7521 | Tamiz geológico de 200 mm de diámetro - 1 mm |
| tamiz geológico | UKGE limited | SV7525 | Tamiz geológico de 200 mm de diámetro - 0,125 mm Bandeja |
| muestreo blanca | NHBS | http://www.nhbs.com/title/view/159614?ad_id=1509 | Bandejas de laboratorio multipropósito estándar pipeta |
| pasteur | Globe Scientific inc. | 138020B | Pipeta de transferencia, 1,7 ml, uso general, 87 mm, extracción de bombilla - 0,9 ml |
| Microscopio estereoscópico | Nikon | SMZ800 | Microscopio con rango de aumento 1x -8x conectado a una unidad de control de cámara |
| de Petri | EduLab | 153-533 | Placa de Petri de plástico estéril de 90 mm |
| de diámetro Frascos de vidrio | Compak | Tarros de mermelada redondos Tarros de 4oz | 100 mL frascos |
| de vidrio | compak | Tarros Atum / Tarro Bonta 10oz | Frascos de 200 mL frascos de |
| vidrio | botellacompanysouth | 500ml Tarro de mermelada de alimentos con tapa giratoria | Frascos de 500 mL |
| software estadístico R | https://cran.r-project.org/ | na | Lenguaje y entorno GNU en línea gratuito para la computación estadística y gráficos |
| pinzas de microdisección | Fisher Scientific | 41122405 Pinzas de acero inoxidable de punta fina para software de imágenes para microdisecciones | |
| https://imagej.nih.gov/ij/index.html | na | Kit de herramientas de procesamiento de imágenes ImageJ de código abierto escrito en | |
| Java mesocosmos | amazon | na | Nobby Fauna-Box III, 41 x 23 x 29 cm, 20.0 Litros |
| tubos de microcentrífuga | Sigma_Aldrick - Merck | Z606340 | tubos de microcentrífuga premium 1.5 mL |
| AGENCOURT DNAdvance | Beckman Coulter | A48705 | Kit de extracción de ADN |
| tamaño estándar | Thermo Fisher Scientific | 4322682 | LIZ500 - Estándar de tamaño compatible con secuenciadores ABI |
| ABI3032 secuenciador | ABI | na | Secuenciador utilizado para realizar análisis de fragmentos o secuenciación de sanger |
Referencias
- Lindenmayer, D. B., et al. Value of long-term ecological studies. Austral Ecol. 37 (7), 745-757 (2012).
- Orsini, L., et al. The evolutionary time machine: using dormant propagules to forecast how populations can adapt to changing environments. TREE. 28, 274-282 (2013).
- Grant, P. R., Grant, B. R. Unpredictable evolution in a 30- year study of Darwin's finches. Science. 296, 707-711 (2002).
- Lohbeck, K. T., Riebesell, U., Reusch, T. B. H. Adaptive evolution of a key phytoplankton species to ocean acidification. Nature Biosci. 5, 346-351 (2012).
- Barrick, J. E., et al. Genome evolution and adaptation in a long-term experiment with Escherichia coli. Nature. 461 (7268), 1243-1247 (2009).
- Barrick, J. E., Lenki, R. Genome dynamics during experimental evolution. Nat Rev Genet. 14, 827-839 (2013).
- Blount, Z. D., Barrick, J. E., Davidson, C. J., Lenski, R. E. Genomic analysis of a key innovation in an experimental Escherichia coli population. Nature. 489 (7417), 513-518 (2012).
- Kawecki, T. J., et al. Experimental evolution. TREE. 27, 547-560 (2012).
- Fukami, T., Wardle, D. A. Long-term ecological dynamics: reciprocal insights from natural and anthropogenic gradients. P Roy Soc B-Biol Sci. 272, 2105-2115 (2005).
- Merila, J., Hendry, A. P. Climate change, adaptation, and phenotypic plasticity: the problem and the evidence. Evol Appl. 7 (1), 1-14 (2014).
- Evans, M. E., Dennehy, J. J. Germ banking: bet-hedging and variable release from egg and seed dormancy. Q Rev Biol. 80 (4), 431-451 (2005).
- Appleby, P. G. Chronostratigraphic techniques in recent sediments. 1, Kluwer Academic Publisher. (2001).
- Appleby, P. G., et al. PB-210 dating by low background gamma-counting. Hydrobiologia. 143, 21-27 (1986).
- Bidle, K. D., Lee, S. H., Marchant, D. R., Falkowski, P. G. Fossil genes and microbes in the oldest ice on Earth. PNAS. 104, 13455-13460 (2007).
- Geerts, A. N., et al. Rapid evolution of thermal tolerance in the water flea Daphnia. Nat Clim Change. 5, 665-668 (2015).
- Jansen, M., et al. Thermal tolerance in the keystone species Daphnia magna-a candidate gene and an outlier analysis approach. Mol Ecol. 26 (8), 2291-2305 (2017).
- Hairston, N. G. Jr, De Stasio, B. T. Jr Rate of evolution slowed by a dormant propagule pool. Nature. 336, 239-242 (1988).
- Hairston, N. G. Jr, et al. Lake ecosystems: Rapid evolution revealed by dormant eggs. Nature. 401, 446(1999).
- Weider, L. J., Lampert, W., Wessel, M., Colbourne, J. K., Limburg, P. Long-term genetic shifts in a microcrustacean egg bank associated with anthropogenic changes in the Lake Constance ecosystem. Proc. R. Soc. Lond. B. 264, 1613-1618 (1997).
- Kerfoot, W. C., Robbins, J. A., Weider, L. J. A new approach to historical reconstruction: Combining descriptive and experimental paleolimnology. Limnol Oceanogr. 44 (5), 1232-1247 (1999).
- Cousyn, C., et al. Rapid, local adaptation of zooplankton behavior to changes in predation pressure in the absence of neutral genetic changes. PNAS. 98, 6256-6260 (2001).
- Decaestecker, E., et al. Host-parasite Red Queen dynamics archived in pond sediment. Nature. 450, 870-874 (2007).
- Miner, B. E., De Meester, L., Pfrender, M. E., Lampert, W., Hairston, N. G. Linking genes to communities and ecosystems: Daphnia as an ecogenomic model. P Roy Soc B-Biol Sci. 279 (1735), 1873-1882 (2012).
- Ebert, D. Ecology, epidemiology, and evolution of parasitism in Daphnia. , National Library of Medicine (US), National Center for Biotechnology. (2005).
- Orsini, L., et al. Temporal genetic stability in natural populations of the waterflea Daphnia magna in response to strong selection pressure. Mol Ecol. 25, 6024-6038 (2016).
- IPCC. Summary for policymakers. , Cambridge, United Kingdom and New York, NY, USA. 1-32 (2014).
- Patmore, I. R., et al. Big Ben: a new wide-bore piston corer for multi-proxy palaeolimnology. J Paleolimnol. 51 (1), 79-86 (2014).
- Wright, H. E. Jr A square-rod piston sampler for lake sediments. J Sedimentary Petrology. 37, 975-976 (1967).
- Kilham, S. S., Kreeger, D. A., Lynn, S. G., Goulden, C. E., Herrera, L. COMBO: a defined freshwater culture medium for algae and zooplankton. Hydrobiologia. 377, 147-159 (1998).
- Klüttgen, B., Kuntz, N. orbert, Ratte, H. T. Combined effects of 3,4-dichloroaniune and food concentration on life-table data of two related cladocerans, Daphnia magna and Ceriodaphnia quadrangula. Chemosphere. 32, 2015-2028 (1996).
- R: A language and environment for statistical computing. , Vienna, Austria. (2017).
- Jansen, B., Geldof, S., De Meester, L., Orsini, L. Isolation and characterization of microsatellite markers in the waterflea Daphnia magna. Mol Ecol Res. 11, 418-421 (2011).
- Orsini, L., Spanier, K. I., De Meester, L. Genomic signature of natural and anthropogenic stress in wild populations of the waterflea Daphnia magna: validation in space, time and experimental evolution. Mol Ecol. 21, 2160-2175 (2012).
- Verberk, W. C. E. P., et al. Does oxygen limit thermal tolerance in arthropods? A critical review of current evidence. Comp Biochem Physiol A Mol Integr Physiol. 192, 64-78 (2016).
- Frisch, D., et al. A millennial-scale chronicle of evolutionary responses to cultural eutrophication in Daphnia. Ecol Lett. 17 (3), 360-368 (2014).
- Yashina, S., et al. Regeneration of whole fertile plants from 30,000-y-old fruit tissue buried in Siberian permafrost. PNAS. 109, 4008-4013 (2012).
- Southam, A. D., Weber, R. J. M., Engel, J., Jones, M. R., Viant, M. R. A complete workflow for high-resolution spectral-stitching nanoelectrospray direct-infusion mass-spectrometry-based metabolomics and lipidomics. Nat Protoc. 12 (2), 310-328 (2017).
- Rhodes, J., Beale, M. A., Fisher, M. C. Illuminating Choices for Library Prep: A Comparison of Library Preparation Methods for Whole Genome Sequencing of Cryptococcus neoformans Using Illumina HiSeq. Plos One. 9 (11), (2014).
- Baym, M., et al. Inexpensive Multiplexed Library Preparation for Megabase-Sized Genomes. Plos One. 10 (5), 6(2015).
- Bourcy, C. F. A., et al. A Quantitative Comparison of Single-Cell Whole Genome Amplification Methods. Plos One. 9 (8), (2014).
- Hasmats, J., et al. Assessment of whole genome amplification for sequence capture and massively parallel sequencing. PLoS One. 9 (1), e84785(2014).
- Becks, L., Ellner, S. P., Jones, L. E., Hairston, N. G. Jr The functional genomics of an eco-evolutionary feedback loop: linking gene expression, trait evolution, and community dynamics. Ecol Lett. 15 (5), 492-501 (2012).
- Ellner, S. P., Geber, M. A., Hairston, N. G. Does rapid evolution matter? Measuring the rate of contemporary evolution and its impacts on ecological dynamics. Ecol Lett. 14 (6), 603-614 (2011).
- Yoshida, T., Jones, L. E., Ellner, S. P., Fussmann, G. F., Hairston, N. G. Jr Rapid evolution drives ecological dynamics in a predator-prey system. Nature. 424 (6946), 303-306 (2003).
- Urban, M., et al. The evolutionary ecology of metacommunities. TREE. 23, 311-317 (2008).
- Dokulil, M. T. Eutrophication: Causes, Consequences and Control. , Springer. Netherlands. 81-88 (2014).
- Urban, M. C., et al. Improving the forecast for biodiversity under climate change. Science. 353 (6304), (2016).
- Schwartz, S. S., Hebert, P. D. N. Methods for the activation of the resting eggs of Daphnia. Freshwater Biol. 17, 373-379 (1987).
- Vanderkerhove, J., et al. Hatching of cladoceran resting eggs: temperature and photoperiod. Freshwater Biol. 50, 96-104 (2005).
- Caceres, C. E. Temporal variation, dormancy, and coexistence: a field test of the storage effect. PNAS. 94 (17), 9171-9175 (1997).
- Caceres, C. E. Interspecific variation in the abundance, production, and emergence of Daphnia diapausing eggs. Ecology. 79 (5), 1699-1710 (1998).
Reimpresiones y permisos
