La arquitectura de complejos de la proteína es esencial para su función. Combinando varias técnicas de espectrometría de masa probado poderoso para el estudio de su montaje. Ofrecemos protocolos de reticulación química y espectrometría de masas nativa y mostrar cómo estas técnicas complementarias ayudan a dilucidar la arquitectura de los conjuntos de multi-subunidades de proteína.
Artículo de método
La combinación de reticulación química y espectrometría de masas de complejos de proteína intacta para el estudio de la arquitectura de multi-subunidades proteína asambleas
* These authors contributed equally
En este artículo
Resumen
Resumen
Proteínas interactúan con sus ligandos a asambleas activa y dinámica de forma que llevar a cabo diversas funciones celulares. Aclaración de estas interacciones es fundamental para la comprensión de los procesos celulares. Sin embargo, muchos complejos de la proteína están ensamblados dinámicos y no son accesibles mediante técnicas estructurales convencionales. Espectrometría de masas contribuye a la investigación estructural de estas asambleas, y particularmente la combinación de varias técnicas de espectrometría de masa proporciona penetraciones valiosas en su arreglo estructural.
En este artículo, describimos la aplicación y combinación de dos técnicas complementarias de espectrometría de masa, es decir, reticulación química junto con la espectrometría de masas y espectrometría de masas nativa. Reticulación química involucra el acoplamiento covalente de aminoácidos cerca mediante el uso de reactivos químicos. Después de la digestión con proteasas, reticulados di-péptidos están identificados por espectrometría de masas y sitios de interacción de la proteína están al descubierto. Espectrometría de masas nativa por otra parte es el análisis de conjuntos de proteínas intactas en la fase gaseosa de un espectrómetro de masas. Revela stoichiometries de proteína así como las interacciones de la proteína y de ligando. Ambas técnicas por lo tanto ofrecen información complementaria sobre la estructura de las Asambleas de proteína-ligando y su combinación probada en estudios previos de gran alcance.
Introducción
La investigación estructural de los conjuntos de proteínas se ha vuelto particularmente importante para la comprensión de los procesos celulares. En consecuencia, muchas técnicas se han desarrollado y mejorado en biología estructural1. Sin embargo, estas técnicas son a veces limitadas en su aplicación debido al tamaño, la flexibilidad o la heterogeneidad de los complejos de proteína bajo investigación. Espectrometría de masas puede hacer frente a estos desafíos y, por lo tanto, surgió como una poderosa herramienta en biología estructural2,3,4,5. La mayor ventaja de espectrometría de masas, sin embargo, es la capacidad de identificar inequívocamente proteínas en mezclas complejas y heterogéneas6. Para ello, proteínas generalmente son digeridas con endoproteinases y la mezcla resultante del péptido se separa por cromatografía líquida y eluyen directamente en el espectrómetro de masas. Posteriormente se determinan las masas de los péptidos y los iones precursores seleccionados de mayor fragmentación de los péptidos. Las proteínas entonces se identifican por péptido busca y masas de fragmento correspondiente contra una base de datos conocido. Este procedimiento no sólo permite la identificación de péptidos/proteínas sino también sus modificaciones post-traduccionales que causan un cambio de masa de los péptidos precursores y los iones fragmento que la modificación7. Algunas de las muchas técnicas de espectrometría de masas estructural se basan en este principio4,8. Por ejemplo, etiquetado técnicas como hidrógeno deuterio intercambio9,10, de11,de estrategias de etiquetado químico12o radical hidroxilo pie de impresión13,14 , dar información sobre la accesibilidad de la superficie de las proteínas bajo ciertas condiciones.
Otra técnica es (química) Cross-linking que involucra el acoplamiento covalente de aminoácidos en proximidad cercana a través de sus grupos funcionales. Para ello, reactivos químicos, reactivos UV-activatable o aminoácidos son empleados15,16. Después de cross-linking, las proteínas generalmente son hidrolizadas con proteasas y reticulados di-péptidos, son analizados por espectrometría de masas acoplada a cromatografía de líquidos. La identificación de los productos Cross-linking de base de datos de búsqueda, sin embargo, requiere el uso de software especializado que concatenar secuencias de péptidos de diferentes proteínas y dispares regiones17,18,19. El uso de cross-linkers química tiene la ventaja de que puede ser empleado para casi cada complejo de la proteína de interés y no requiere la incorporación de aminoácidos UV-activatable, que sólo se logra expresar la proteína de interés en las células del huésped. Como tal, Cross-linking es una herramienta versátil y fue empleado con éxito en muchos estudios estructurales de proteínas grandes asambleas20.
Espectrometría de masas de complejos de proteína intacta (a veces llamado 'nativo' espectrometría de masas), por el contrario, implica el análisis de proteínas intactas y complejos de la proteína sin hidrólisis en péptidos. Revela composición, heterogeneidad, estequiometría, topología y las interacciones de la subunidad de la proteína complejos21,22. En combinación con la movilidad de iones, espectrometría de masas nativa más permite la determinación de su conformación23,24. Esto es una poderosa herramienta para la investigación estructural de complejos de proteína que son difíciles de evaluar mediante técnicas estructurales convencionales. Sin embargo, espectrometría de masas nativa requiere buffers de análisis que las interacciones no covalentes de proteínas durante la ionización por electrospray. Esto se logra mediante el uso de buffers acuosos, volátiles como amonio acetato25. Además, instrumento modificaciones son necesarias para evitar la disociación durante la transmisión en la fase gas del espectrómetro de masas26. Aplicado de esta manera, se analizaron muchos complejos de la proteína (grande). Ejemplos impresionantes son los estudios de ribosomas intactos27, ATP sintasas28o29de virus.
La combinación de espectrometría de masas nativa y cross-linking resultó particularmente exitosa en estudios anteriores. Por ejemplo, los stoichiometries de complejos de acompañante, incluyendo un inesperado dimer de Hsp70, podrían obtenerse experimentos de espectrometría de masas de los complejos de proteína intacta, mientras que el cross-linking químico reveló los arreglos de las proteínas en el Asambleas de30,31. En un estudio, se estudiaron los efectos de modificaciones poste-de translación en un intacto synthase del ATP complejo. Espectrometría de masas nativa proporciona penetraciones en la estabilidad complejos de proteína en la presencia o ausencia de fosforilación o acetilación de32,33. Una estrategia Cross-linking comparativo34 reveló cambios conformacionales de la proteína del complejo bajo las diferentes condiciones.
Presentamos los protocolos para la identificación de proteínas por espectrometría de masas, Cross-linking (química) y espectrometría de masas nativa, incluyendo análisis de datos e interpretación (figura 1). La combinación de resultados complementarios de estos métodos con la ayuda de dos complejos de la proteína bien caracterizado es demostrada35. Nuestro protocolo se puede aplicar a cualquier conjunto de proteínas que puede ser purificado en cierta pureza y concentración. El enfoque es en algunos casos limitadas por el análisis de los datos de la reticulación de los datos, es decir, el tamaño de la base de datos empleado, que determina la búsqueda requiere espacio y tiempo. Además, validación manual de enlaces cruzados identificados a menudo es necesario y reduce aún más la salida. Espectrometría de masas nativa está limitada sobre todo por la calidad de la muestra, por ejemplo, tampones y aductores utilizado durante la purificación y la posibilidad de canjearlos por buffers acuosos y volátiles. Sin embargo, complejos de la proteína purificados para análisis estructural generalmente tienen la calidad necesaria para el análisis de éxito con nuestros protocolos.
Protocolo
1. purificación de complejos proteicos
- Preparar el complejo según protocolos estándar optimizados de la proteína.
Nota: El protocolo se demuestra aquí con el complejo RvB1/B2 de Chaetomium Chloracidobacterium y la Carbamoil fosfato sintasa (CPS) de Escherichia coli. RvB1/B2 y CPS se purificaron como describe36,37. Cada complejo de la proteína requiere un protocolo de purificación individual. Ajuste el protocolo según corresponda. Amina-libre almacenadores intermediarios tales como tampón fosfato salino (PBS) o ácido 2-[4-(2-hydroxyethyl)piperazin-1-yl]ethanesulfonic (HEPES) puede usarse para reticulación química. Cambie el búfer durante la purificación si es posible.
PRECAUCIÓN: No aplique cualquier métodos o reactivos que perturbe la Asamblea nativa de la proteína del complejo.
2. identificación de proteínas masa basado en la espectrometría de
-
Electroforesis en gel de
Nota: Se dispone de gel de diferentes sistemas y cada laboratorio utiliza su propia configuración. Ajustar las condiciones según el sistema de gel. Use guantes y bata de laboratorio en todo el protocolo como las queratinas están entre los contaminantes más comunes de análisis de espectrometría de masa.- Aplicar 7.5 μl de tampón de muestra 4 x y 3 agente de reducción de x 10 μl (concentración final 50 mM Ditiotreitol (DTT)) a 20 μl de muestra de la proteína. Utilice 10 μm CPS o 2,5 μm RvB1/B2. Desactivación durante 1 min a 16.200 × g y el calor durante 10 minutos a 70 ° C.
Nota: Cuando utiliza un sistema de gel de diferentes ajuste los volúmenes requeridos y temperatura. - Preparar un gel de gradiente de 4-12% para electroforesis. Diluir el buffer corriente 20 veces con agua y llenar la cámara de electroforesis. Uso 2-(N-morfolino) (n-2-hidroxietilpiperazina-N'-2-ácido ácido (MES) tampón de proteínas de peso molecular más pequeño (2-200 kDa) y 3-(N-morfolino) el ácido propanesulfonic (MOPS) tampón de las proteínas más grandes (14-200 kDa). Añadir antioxidantes de 0.5 mL a la cámara interior.
Nota: Cuando utiliza un sistema de gel de diferentes preparar buffer de corriente y el gel de acuerdo a los protocolos del fabricante. - Un marcador de proteína adecuada (previamente barnizados, sin manchas, diferentes tamaños moleculares) en la primera cavidad de carga y cargar las muestras de proteína en las restantes cavidades.
- Proteínas separadas durante 35 minutos (MES) o 50 minutos (MOPS) de 200 V.
Nota: Ajuste los tiempos de electroforesis y voltaje para gel de diferentes sistemas. - Para teñir las bandas de proteínas, transferir el gel a un gel caja de tinción y cubrir el gel con un Coomassie basados en agua, solución de tinción. Incubar durante la noche y a temperatura ambiente en un agitador horizontal gel.
- Desteñir el gel mediante la sustitución de la solución de tinción con agua. Repita este paso varias veces (aproximadamente 3 - 5 veces) hasta que aparezca claro el fondo del gel.
- Aplicar 7.5 μl de tampón de muestra 4 x y 3 agente de reducción de x 10 μl (concentración final 50 mM Ditiotreitol (DTT)) a 20 μl de muestra de la proteína. Utilice 10 μm CPS o 2,5 μm RvB1/B2. Desactivación durante 1 min a 16.200 × g y el calor durante 10 minutos a 70 ° C.
-
Digestión en gel
Nota: Para evitar la contaminación, utilizar solventes de grado HPLC en el protocolo de la digestión y para todos los siguientes pasos (es decir, análisis de espectrometría de masa). Preparar todas las soluciones antes de uso de filtrado de agua y bicarbonato de amonio.- Corte las bandas de proteínas que son visualizadas por azul Coomassie tinción del gel con un bisturí. Corte con cuidado las bandas de proteínas en pequeños trozos de aproximadamente 1 mm × 1 mm. Enjuague el bisturí con agua entre bandas de proteínas diferentes. Lave las bandas de gel con agua y acetonitrilo (ACN).
- Reducir enlaces de disulfuro con TDT, alquilato residuos de cisteína con Yodoacetamida y proteínas de la digestión con tripsina como describieron anteriormente38; generalmente se utiliza una enzima: relación de 1:20 hasta 1: 100. Uso de bicarbonato de amonio 100 mM durante el protocolo de la digestión.
- Extracto de péptidos en dos pasos.
- Primero Incube las piezas de gel con bicarbonato de amonio y ACN y recoger el sobrenadante que contiene el péptido. En segundo lugar, incubar las piezas de gel con ácido fórmico al 5% (v/v) y la CAN. Incubar durante 15 min a cada paso. Combinar ambos sobrenadantes. Seque los péptidos extraídos por evaporación de los solventes en una centrífuga de vacío.
Nota: Péptidos secas pueden almacenarse a-20 ° C durante varios meses.
- Primero Incube las piezas de gel con bicarbonato de amonio y ACN y recoger el sobrenadante que contiene el péptido. En segundo lugar, incubar las piezas de gel con ácido fórmico al 5% (v/v) y la CAN. Incubar durante 15 min a cada paso. Combinar ambos sobrenadantes. Seque los péptidos extraídos por evaporación de los solventes en una centrífuga de vacío.
-
Espectrometría de masas acoplada a cromatografía de líquidos
- Disolver los péptidos secos en ácido fórmico al 2% ACN/0.1%. Disolver los péptidos en un baño de sonicación de 2-3 min y vuelta abajo en una centrifugadora a 16.200 x g por 30 min transferencia las muestras en frascos del muestreador automático.
Nota: Ajustar el volumen según la cantidad de proteína. Bandas bien tinción de Coomassie utilizamos 20 μl. - Inyectar 5 μl de la muestra que el sistema de nano-LC-MS/MS usando el muestreador automático. Carga de la mezcla del péptido en una columna la fase inversa C18 (C18, 150 μm I.D., 2 cm, tamaño de poro de 5 μm) a desalar y concentrar los péptidos en línea.
- Utilice el ácido fórmico 0.1% (v/v) como fase móvil A y 80% ACN/0.1% (v/v) el ácido fórmico como móvil la fase B. separa los péptidos en una columna analítica de fase inversa C18 (C18, 75 μm I.D., 50 cm, tamaño de poro de 3 μm) mediante un gradiente de 4 80% B (que contiene 0.1% de ácido fórmico) en 300 nL / min más de 65 minutos.
Nota: Se utiliza una fuente de ion nanospray transferir eluídas péptidos en el espectrómetro de masas. - Uso condiciones de MS (típicas): tensión de 1.6 del aerosol kV; capilar temperatura de 250 ° C; energía de la colisión normalizado de 30. Operar el espectrómetro de masas en el modo de datos dependientes.
- Adquisición de los espectros de MS en el analizador de masa(por ejemplo, el orbitrap) (m/z 350−1, 600) con una resolución de 70.000 y un objetivo de control automático de ganancia de 3 x 10⁶. 20 selección de los iones más intensos para la fragmentación de la HCD en un objetivo de control automático de ganancia de 1 x 10⁵. Dinámicamente excluir previamente seleccionados los iones para 30 s. excluir individualmente cargado iones así como los iones con carga desconocida.
Nota: Calibración interna de los espectros de masas se realizó mediante el bloqueo de opción masa39.
- Disolver los péptidos secos en ácido fórmico al 2% ACN/0.1%. Disolver los péptidos en un baño de sonicación de 2-3 min y vuelta abajo en una centrifugadora a 16.200 x g por 30 min transferencia las muestras en frascos del muestreador automático.
-
Búsqueda de base de datos
Nota: Hay diferentes software para la búsqueda de la base de datos. MaxQuant40, por ejemplo, está disponible gratuitamente.- Convertir RAW-.mgf-usando una herramienta de conversión de pXtract (http://pfind.ict.ac.cn/downloads.html).
- Realizar búsqueda de base de datos mediante parámetros de búsqueda típicas: base de datos swissprot; tolerancia total de péptido, 10 ppm; fragmento de la tolerancia de masa, Da 0,5; enzimas, tripsina; sitios de frustrada escote, 2; modificaciones de la variable, carbamidomethylation (cisteína) y oxidación (metionina).
Nota: Cambiar los parámetros de búsqueda según la configuración experimental. - Revise el resultado de la búsqueda de la base de datos. Evaluar el puntaje de la proteína, número de péptidos identificados, partituras de péptido y total precisión; la cobertura de la secuencia devuelve la cobertura de proteína identificada.
Nota: Cada motor de búsqueda tiene su algoritmo de puntuación individual. Evaluar el sistema de calificación por la calidad de la espectrometría de masas tándem observado de péptido. Las principales señales de un buen espectro deben mostrar serie ion (completo) para verificar el péptido identificado. Generalmente el puntaje péptido está basada en la probabilidad, es decir, el puntaje péptido es una medida de la probabilidad de que la secuencia del péptido identificado coincide con el espectro obtenido. El puntaje de la proteína se deriva generalmente de partituras de péptido y se utiliza para clasificar una proteína en una lista de las proteínas identificadas.
3. espectrometría de masas de complejos de proteína intacta (espectrometría de masas nativa)
- Preparación de emisores cubierto de oro de la ionización por electrospray
- Utilice un extractor de la micropipeta para preparar nanoflow emisores de Capillares de vidrio como se describió anteriormente25,41. Utilice capilares de borosilicato con un diámetro interno de 0,78 mm.
Nota: Al cambiar los parámetros para tirar de la aguja, la forma de la punta y el tamaño pueden ser modificados y ajustados para la muestra. Tubos capilares con diferentes interior diámetro y espesor de pared están disponibles. - Capa los tubos capilares de vidrio con material conductor(por ejemplo, oro o paladio); es común el uso de un recubridor sputter generando un plasma gold. Siga las instrucciones del fabricante para obtener la capa de buena calidad.
Nota: El recubrimiento debe ser suficiente para obtener un chorro estable al aplicar tensiones capilares comunes (véase abajo).
- Utilice un extractor de la micropipeta para preparar nanoflow emisores de Capillares de vidrio como se describió anteriormente25,41. Utilice capilares de borosilicato con un diámetro interno de 0,78 mm.
- Preparación de muestras para espectrometría de masas nativa
Nota: Sales, detergentes o grandes cantidades de glicerol no son compatibles con ionización por electrospray. Por lo tanto, el búfer de purificación se intercambia por un buffer acuoso, volátil. acetato de amonio 200 mM es de uso general. Uso tamaño exclusión centrifugado columnas o dispositivos de ultrafiltración para cambio de buffer. En algunos casos, compleja estabilidad o actividad pueda verse afectada por el cambio de buffer. Evaluar cuidadosamente los espectros de masas y controlar la actividad del complejo. Añadir los cofactores o aditivos en el búfer de análisis, si es necesario.- Utilizar tamaño exclusión centrifugado columnas para el intercambio rápido de búfer. Retire el búfer de almacenamiento por centrifugación a 1.000 x g y 4 ° C por 1min deseche el flujo a través. Lavar tres veces al agregar 500 μl 200 mM de acetato de amonio, seguida por centrifugación. Carga 20 μl de la muestra de proteínas en la columna y centrifugar a 1.000 x g y 4 ° C durante 4 minutos.
Nota: La concentración de la proteína del complejo debe ser 1-10 μm. El procedimiento puede ser repetido si no volátil componentes aún perturban el análisis. - Para concentrar la muestra de proteína e intercambiar el tampón en el mismo experimento utilizar filtros centrífugos. Utilizar una membrana de filtración de poro tamaño 50% más pequeño que el tamaño de las proteínas analizadas.
- Transferir la muestra de proteínas en el aparato de filtración y agregar acetato de amonio 200 mM. Desactivación a 15.000 x g y descartar el flujo a través. Agregar acetato de amonio 200 mM y repita la centrifugación. Repita este paso varias veces. Siga las instrucciones del fabricante para la velocidad de centrifugación. Realizar la centrifugación a 4 ° C.
PRECAUCIÓN: Proteínas de membrana tienden a precipitar en la membrana del aparato de filtro.
- Transferir la muestra de proteínas en el aparato de filtración y agregar acetato de amonio 200 mM. Desactivación a 15.000 x g y descartar el flujo a través. Agregar acetato de amonio 200 mM y repita la centrifugación. Repita este paso varias veces. Siga las instrucciones del fabricante para la velocidad de centrifugación. Realizar la centrifugación a 4 ° C.
- Utilizar tamaño exclusión centrifugado columnas para el intercambio rápido de búfer. Retire el búfer de almacenamiento por centrifugación a 1.000 x g y 4 ° C por 1min deseche el flujo a través. Lavar tres veces al agregar 500 μl 200 mM de acetato de amonio, seguida por centrifugación. Carga 20 μl de la muestra de proteínas en la columna y centrifugar a 1.000 x g y 4 ° C durante 4 minutos.
- Análisis de espectrometría de masa de complejos de la proteína intacta
Nota: Hay diferentes tipos de espectrómetros de masas de diferentes fabricantes que pueden ser modificados para espectrometría de masas nativa, por ejemplo, espectrómetros de masas de cuadrupolo tiempo de vuelo (Q-ToF) o espectrómetros de masas orbitrap. El protocolo que se describe a continuación fue realizado en un instrumento de Q-ToF.- Coloque un tubo capilar recubierto de oro capilar y llenar el tubo capilar de 1-4 μL de la muestra de proteína. Abra la punta de la aguja con una pinza.
- Conecta el cable porta capilar con la fuente del nano-electrospray y ajustar la posición del tubo capilar. Colocar la punta del tubo capilar en 0.5-1.5 cm en el orificio del cono. Utilice 80-150 L/h nanoflow para iniciar el chorro y ajustar el flujo de gas para mantener un chorro estable.
- Ajustar los parámetros en la página de melodía del instrumento de Q-ToF. Condiciones de arranque típicas son: tensión capilar, 1.50 kV; voltaje de cono, 80 V; Energía de RF lente 1, 80 V; energía de la colisión, 20 V; Aperture 3, 13,6 V. modificar estos parámetros para obtener espectros de masa buena. Iniciar la adquisición haciendo clic en el botón "adquirir" y combinar tantos análisis como sea posible para obtener un buen espectro de masas.
Nota: Se recomienda la combinación de al menos 100 exploraciones.
- Spectrometry total en tándem de complejos de la proteína intacta
- Adquirir el espectro de masas como se describe anteriormente (apartado 3.3 del Protocolo). Elegir un ión precursor de un complejo proteico.
- Cambiar de MS en modo MS/MS en el archivo de adquisición. Establecer la selección de MS/MS para el precursor de la masa.
- Comenzar la adquisición a la energía de la colisión bajo. Combinar varias exploraciones (aproximadamente 20 análisis) para verificar la selección del correcto precursor masa. Aumentar la energía de la colisión hasta que se disocia el complejo de la proteína. Para obtener un buen espectro de masas combinan exploraciones al menos 500.
Nota: Complejos a veces tienen poca intensidad. Combinar tantos análisis como sea posible puede aumentar la relación señal a ruido y resolución.
- Disociación en solución de los complejos de la proteína intacta
Nota: Para ganar la penetración adicional en las interacciones de la proteína dentro de los complejos de proteínas, puede realizarse la disociación en solución.- Preparar la muestra de proteína como se describió anteriormente (sección 3.2). Agregar solventes a la muestra de proteína o cambiar el pH para disociar complejos intactos en los complejos. Los solventes típicos son metanol, isopropanol y ACN; cambiar el pH del acetato de amonio por adición de ácido acético o solución de amoníaco. Adquisición de espectros de masas como se describió anteriormente (secciones 3.3 y 3.4).
- Variar la cantidad de solvente o el rango de pH para generar varios complejos de sub. Típicamente, la cantidad de solvente es 5-50% (concentración final) y un rango de pH típico es 4-9. Comience con una baja concentración de disolvente (5%) o ligeros cambios en el pH y adquirir un espectro de masas (ver sección 3.3).
- Aumentar la cantidad de solvente o cambiar el pH de manera gradual hasta que los complejos se generan en la solución. Adquisición de espectros de masas para analizar los complejos.
- Calibrar los datos
Nota: Adquiridos espectros de masas se calibran externamente con solución de yoduro (CsI) de cesio.- Disolver 100 mg de CsI en 1 mL de agua.
- Adquirir un espectro de masas de CsI. Variar la energía de la colisión para obtener racimos de CsI en el mismo rango de m/z como el complejo de la proteína analizados anteriormente.
PRECAUCIÓN: CsI rápidamente se precipita en el extremo emisor y contamina el cono. Adquirir solamente como muchos análisis según sea necesario para obtener un espectro suficiente. Remueva el emisor de la fuente cuando haya terminado. - Hacer un archivo de calibración mediante el espectro de masas adquirido y un archivo de referencia de CsI.
- Calibración se aplica a espectros de masas adquiridos.
PRECAUCIÓN: La calibración de espectros de masas podría ser un cambio permanente de los datos en bruto. Si se necesitan espectros no calibrado, realizar una copia de respaldo del archivo.
- Procesamiento de datos y análisis
Nota: Hay muchas herramientas de software libre disponible para el análisis de datos de espectros de masas nativos; por ejemplo, Massign42 o43de la UniDec. El protocolo a continuación describe el análisis manual de datos con la ayuda del software del instrumento así como el uso de Massign para muestras complejas. Este software es muy adecuado para el análisis de espectros de masas complejos. Siga las instrucciones en línea para el uso del programa (http://massign.chem.ox.ac.uk/).- Para el análisis de datos, lisa espectros ajustando parámetros de suavizado. Espectros de centroide ajustando parámetros. Calcular masas complejas de dos picos adyacentes de la proteína del complejo ' envolvente pico utilizando herramientas de software del instrumento.
PRECAUCIÓN: Suavizado demasiado intensivo puede causar pérdida de datos (p. ej., pérdida de ligands encuadernados). - Para el análisis con Massign42, generar una lista de pico para el espectro de masas. Alinear los puntos de datos del espectro y lisa. Utilizar las diferentes herramientas de software para asignar complejos proteicos, composición compleja de calcular o simular sobres pico complejo.
- Para el análisis de datos, lisa espectros ajustando parámetros de suavizado. Espectros de centroide ajustando parámetros. Calcular masas complejas de dos picos adyacentes de la proteína del complejo ' envolvente pico utilizando herramientas de software del instrumento.
4. química Cross-linking acoplada con espectrometría de masas
Nota: Se dispone de numerosas estrategias de cross-linking. Aquí, describimos el uso de Bis (sulfosuccinimidyl) suberate (BS3), una amina reactiva vinculante que se utiliza comúnmente para el estudio de las interacciones proteína-proteína.
- Disolver 1,43 mg BS3 en 100 μl de agua para preparar una solución stock de 25 mM.
Nota: Otros reactivos como disuccinimidyl suberate (DSS) no son solubles en agua y son generalmente disuelto en dimetil sulfóxido (DMSO). Algunos cross-linkers también están disponibles en formas de marcado isotópicamente pesadas. Incorporación de isótopos pesados estables genera pares de pico de reticulado di-péptidos en espectros de MS, que ayuda durante la evaluación de los datos. Cuando utilizar diferencialmente con la etiqueta cross-linkers, soluciones de ambas variantes están preparadas y mezcladas 1:1.
PRECAUCIÓN: Para evitar la disociación de los complejos de la proteína por DMSO, una solución altamente concentrada se prepara y diluida con agua o buffer antes de la reacción de reticulación. - Añadir BS3 al complejo de la proteína. Utilizar diferentes cantidades de BS3 oscilan entre 0.5-5 mM para determinar la concentración óptima de vinculante. Incubar las mezclas de reacción a 25 ° C por 1 h en un Termomezcladores. Usar geles de gradiente de 4-12% y realizar SDS-PAGE para evaluar resultados Cross-linking (ver figura 2 para un ejemplo).
Nota: La concentración óptima de BS3 se alcanza cuando se obtienen más bandas de proteínas de peso molecular, que no son visibles en el control no-cruz-ligado, en SDS-PAGE mientras que subunidades individuales son todavía visibles (figura 2). - Repita la reacción de reticulación con la concentración óptima de BS3. Incubar las mezclas de reacción a 25 ° C por 1 h en un Termomezcladores.
Nota: Algunos complejos de proteína no son estables a temperatura ambiente. También se puede realizar la reacción de reticulación en el hielo; sin embargo, el tiempo de reacción debe ajustarse. -
Saciar la reacción reticulante por adición de buffer de Amina (por ejemplo, 50-100 mM de tampón Tris, pH 7,5, concentración final) o realizar la precipitación del etanol para eliminar cualquier reactivo de reticulación residual.
- Añadir agua o buffer a la mezcla de reacción para alcanzar un volumen final de 200 μl. Añadir 600 μl helada etanol y 20 μl 3 M acetato de sodio pH 5.3. Mezclar bien e incubar a-20 ° C durante 2 h o durante la noche.
Nota: Alternativamente, las proteínas se pueden precipitar a 80 ° C por 30 min o en nitrógeno líquido. - Desactivación a 16.200 x g y 4 ° C durante 30 minutos Retire con cuidado el sobrenadante.
- Lavar el pellet con 1 mL helado 80% (v/v) de etanol. Desactivación a 16.200 x g y 4 ° C durante 30 minutos Retire con cuidado el sobrenadante. Secar el precipitado en una centrífuga de vacío.
- Añadir agua o buffer a la mezcla de reacción para alcanzar un volumen final de 200 μl. Añadir 600 μl helada etanol y 20 μl 3 M acetato de sodio pH 5.3. Mezclar bien e incubar a-20 ° C durante 2 h o durante la noche.
- Realizar SDS-PAGE de las proteínas reticuladas. Corte las bandas de gel y digerir el proteína en el gel como se describió anteriormente (secciones 2.1 y 2.2).
Nota: También se puede realizar la digestión en solución, sin embargo, generalmente requiere pasos de separación adicional (por ejemplo, cromatografía por exclusión de tamaño de los péptidos digeridos). -
Realizar espectrometría de masas acoplada a cromatografía de líquidos como se describe anteriormente (sección 2.3). Como péptidos reticulados son generalmente poco abundante, aplicar las siguientes variaciones para el análisis de espectrometría de masa para aumentar la profundidad analítica de la muestra reticulada.
- Utilizar degradados más largo durante la separación de cromatografía de líquidos (p. ej., 90 min en vez de 65 minutos, vea arriba).
- Excluir los péptidos doblemente cargados de fragmentación del HCD.
Nota: Péptidos doblemente cargadas son péptidos intra-cruz-ligado generalmente ("péptidos de lazo" o "tipo 1" enlaces cruzados). - Al usar diferencialmente etiquetado reactivos Cross-linking, utilice la opción "cosecha máxima" durante el análisis, es decir, fragmentación del HCD se desencadena por la presencia de pares de pico de diferencia total definida en los espectros de masas.
Nota: Opción "Cosecha máxima" podría no estar disponible en cada espectrómetro de masas.
- Uso pLink software18 para identificación de reticulado di-péptidos. Usar bases de datos minimizadas para identificación. Parámetros de búsqueda típicos son: instrumento de espectros, HCD; enzimas, tripsina; máximo. sitios de escote perdidas, 3; modificaciones variables, oxidación (metionina) y carbamidomethylation (cisteína); vinculante, BS3; longitud mín. péptido, 4; máximo. longitud del péptido, 100; masa de péptido de min, Da 400; máximo. masa del péptido, Da 10.000; FDR, 1%.
Nota: Cuando utiliza diferencialmente con la etiqueta cross-linkers, el aumento total causado por el vinculador debe configurarse. También hay otros software utilizado para identificación de reticulación, por ejemplo, xQuest17, MassMatrix19o XlinkX15. - Evaluar los resultados de la búsqueda de la base de datos por la calidad de los espectros de fragmentación. Aceptables espectros de enlaces cruzados deben mostrar serie ion de ambos péptidos (al menos 4 iones adyacentes) en una razonable relación de señal a ruido.
Nota: Cuando utilizar diferencialmente la etiqueta reactivos Cross-linking, pares de picos en espectros de MS se pueden utilizar como un control adicional de calidad. - Si es necesario, visualizar los resultados del cross-linking en redes de interacción de proteínas utilizando herramientas de software (por ejemplo, XVis, XiNET). Uso barra parcelas o circular parcelas para la visualización de las interacciones entre proteínas.
Nota: Ambas herramientas de software están disponibles en un servidor web. Siga las instrucciones detalladas en los respectivos sitios de Internet (https://xvis.genzentrum.lmu.de/ y http://crosslinkviewer.org/).
Resultados
El análisis estructural de las proteínas y los complejos forman es fundamental para la comprensión de su función. Espectrometría de masas contribuye considerablemente a la investigación estructural en que se puede aplicar a casi cualquier complejo de interés independientemente del tamaño o heterogeneidad de la muestra. Nos ejemplifican el protocolo mediante el uso de dos complejos de la proteína bien caracterizadas; en primer lugar, la hetero-dodecamer RvB1/B2 de Chloracidobacterium C. y segundo, la CPS de hetero-octámerico complejo de e. coli.
En primer lugar, se identificaron los componentes de proteína de los dos complejos. Para ello, las proteínas se separaron por SDS-PAGE (figura 2) y bandas de gel se cortaron del gel. Después de la digestión de las proteínas en gel-, la mezcla de péptidos se analizaron por espectrometría de masas acoplada a cromatografía de líquidos y masas peptídicas y fragmento fueron sometidas a la búsqueda de la base de datos. Después de este flujo de trabajo, identificamos todas las subunidades de proteína de los dos complejos con alta confianza, es decir, se observó un alto número de péptidos con puntaje péptido razonable rendimiento cobertura alta secuencia de subunidades de proteína todos (tabla 1 ).
Luego analizamos la intacta RvB1/B2 complejo por espectrometría de masas nativa (Figura 3A). El espectro de masas reveló dos especies, una en aproximadamente 8.000 m/z y otra en aproximadamente 11.000-12.000 m/z. Las masas calculadas para estas especies corresponden al hexámero (RvB1)3(RvB2)3 anillo (aproximadamente 310 kDa) y dodecameric doble anillo (RvB1)6(RvB2)6 (aproximadamente 620 kDa). Ambas series de pico muestra dos poblaciones; Estos proceden de una mezcla de sus etiquetados y sin etiquetar RvB2 subunidades de los complejos. Una estructura de cristal para el RvB1/B2 complejo previamente obtuvo36 y muestra la disposición de doble anillo (figura 3B). El espectro de masas nativo confirma, por tanto, la estequiometría del dodecamer intacto y además revela un complejo estable de sub. Además, se identifican las poblaciones coexistentes.
Para identificar sitios de interacción de proteínas en el complejo RvB1/B2, químicamente reticulado complejo purificado con BS3 vinculante. Primero titula la cantidad de BS3 durante la reacción de reticulación para determinar la concentración óptima. BS3 es específica de amina y covalentemente cadenas de enlaces lisina laterales así como el termini N de proteínas. La reacción de entrecruzamiento fue seguida por SDS-PAGE (figura 2A). El complejo no-cruz-ligado demostró RvB1 y RvB2 subunidades. BS3 de agregar a la mezcla de reacción causó el acoplamiento covalente de las proteínas dando lugar a bandas de proteínas con peso molecular mayor. El gel de la SDS muestra que cantidades cada vez mayores de BS3 mayores cantidades de especies reticuladas mientras que subunidades de la proteína no-cruz-ligado se reducen. Luego cortar las bandas de proteínas desde el gel y seguido el protocolo estipulado anteriormente para identificar los sitios de interacción de la proteína. Un espectro de ejemplo de un di-péptido reticulado se muestra (figura 3). El espectro muestra serie de iones y de ambos péptidos confirmando esta interacción de la proteína. En total, se obtuvieron 14 las interacciones entre proteínas, incluyendo cuatro enlaces cruzados entre las subunidades RvB1 y RvB2 y dos enlaces cruzados entre dos copias de RvB2 (tabla 2). Los resultados de BS3 Cross-linking se visualizan en una red de interacción (figura 3D), mostrando las interacciones intra moleculares como las interacciones entre las subunidades diferentes. Enlaces cruzados intra moleculares sugieren que las subunidades RvB1 y RvB2 doblan de manera que N y C terminal dominios están en proximidad cercana. Tenga en cuenta que no pueden distinguirse interacciones intra moleculares de interacciones inter moleculares de la subunidad de la misma en este caso. También se observaron entre moleculares enlaces cruzados entre las dos subunidades. De estos dos enlaces cruzados inter moleculares entre RvB1 y RvB2 podrían visualizarse en la estructura de validar el enfoque Cross-linking. Los otros entre moleculares enlaces cruzados se encuentran en bucles flexibles que no están incluidos en la estructura cristalina. También identificamos dos enlaces cruzados en RvB2 que contiene el mismo secuencias de péptidos. Estos enlaces cruzados inequívoca pueden ser clasificados como la molecular como deben proceder de dos copias de la misma proteína (figura 3D). Nuestros experimentos Cross-linking revelan sitios de interacción de la proteína dentro del complejo sino también dentro de las subunidades de proteína proporciona penetraciones en su arreglo estructural que también se podría confirmar por la estructura cristalina (figura 3B).
El segundo complejo de proteínas que estudiamos fue CPS. El espectro de masas nativo (Figura 4A) reveló tres complejos de proteínas entre 6.000 y 12.000 m/z. El complejo más grande de 640 kDa corresponde a la hetero-octámero intacto. Los complejos más pequeños representan dos complejos secundarios; el dímero de las pequeñas y grandes subunidades CPS (160 kDa) y un hetero-tetrámero que contiene dos copias de cada subunidad (320 kDa). Estos complejos sub entregan primera penetraciones en la Asamblea de la proteína; es decir, las subunidades grandes y pequeñas están en contacto directo (según lo revelado por el dimer del hetero) y el tetrámero podría ser un producto de dos dímeros. Para obtener más información sobre el arreglo estructural en el CPS intacto complejo, realizamos la espectrometría total en tándem (MS/MS) de la hetero-octámero y hetero-tetrámero. En ambos casos, la subunidad pequeña disociada el precursor lo que sugiere que la subunidad pequeña está situada en la periferia de la Asamblea (Figura 4B). De hecho, la subunidad pequeña es periférica en la estructura (figura 4) de cristal disponibles44.
Reticulación química con el BS3 vinculante también se realizó. Usar cantidades cada vez mayores, el acoplamiento covalente de las subunidades de la CPS fue realzado. Después de la digestión de las proteínas y el análisis de los péptidos como se describe anteriormente, muchas de las interacciones de proteínas en la subunidad grande y una reticulación en la subunidad pequeña se obtuvieron (tabla 2). Además, similar a la RvB1/B2 complejo, encontramos dos enlaces cruzados inter moleculares entre dos copias de la subunidad grande del CPS. Estos enlaces cruzados Coloque las dos subunidades grandes uno frente al otro en sus lados C-terminal. Combinación estructural espectrometría de masas y Modelado computacional35, en un estudio anterior, se identificaron tres interacciones adicionales en la subunidad grande que probablemente originan desde la interfaz de dos copias de la subunidad grande validado por la estructura cristalina y el modelo obtenido (figura 4 y tabla 2). Estas interacciones permiten el arreglo de la base de CPS complejo que consiste en cuatro subunidades grandes. Sin embargo, no entre la subunidad enlaces cruzados entre las pequeñas y las subunidades grandes se observaron. Mediante la inspección de la estructura de cristal disponible (figura 4), es evidente que la superficie de interacción entre la base tetramérica del complejo, que consiste en la subunidad grande y las subunidades pequeñas periféricas es muy pequeña, que podría explicar la ausencia de las interacciones entre subunidades. Esto es confirmado por espectrometría de masas nativa que demostró que la subunidad pequeña se disocia fácilmente de los complejos intactos probablemente debido a una interfaz de enlace pequeña. Sin embargo, las interacciones de la proteína en el CPS complejo combinado de reticulación química y espectrometría de masas nativa permiten deducir su arreglo estructural (figura 4).
Tomados en conjunto, la combinación de espectrometría de masas nativa y reticulación química junto con la identificación de espectrometría de masa de péptidos reticulados, permite la reconstitución del arreglo estructural de ambos complejos ejemplo. Mientras que la reticulación química reveló el arreglo de las subunidades de la proteína, por ejemplo las interacciones entre RvB1 y RvB2 o dentro de la base tetramérica de CPS, espectrometría de masas nativa entregado stoichiometries proteínas de los complejos intactos y Subcomplejos de mando común. En el caso de CPS, para que no las interacciones inter moleculares entre las dos subunidades se podían observar por reticulación química, espectrometría de masas nativa sugiere que cada subunidad grande interacciona con una subunidad pequeña (figura 4). Espectrometría de masas tándem propuso la localización periférica de la subunidad pequeña en el complejo y una pequeña interfaz entre ambas subunidades.
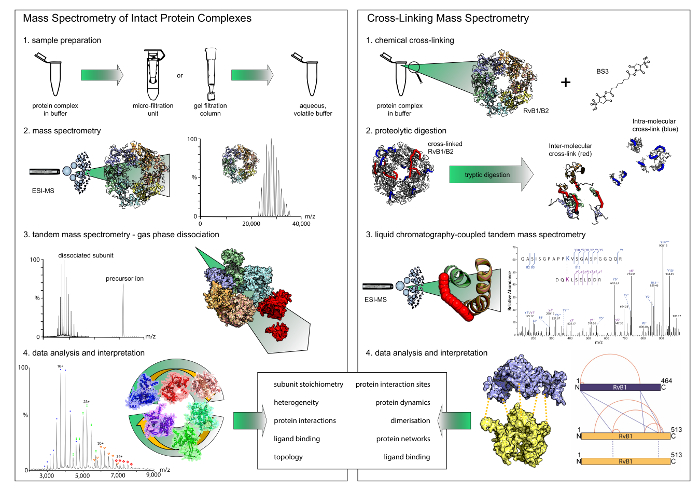
Figura 1: flujo de trabajo de espectrometría de masas nativa y cross-linking. Ambas técnicas ofrecen resultados complementarios. Mientras que la espectrometría de masas nativa revela stoichiometries y módulos de interacción, Cross-linking proporciona penetraciones en los sitios de interacción de la proteína dentro de los complejos. Tenga en cuenta que la reticulación química sólo revela las interacciones binarias. (A) el primer paso en espectrometría de masas nativa es cambio de buffer a un búfer volátil y acuoso mediante filtros o columnas de filtración de gel. Espectrometría de masas de los complejos de proteína intacta luego revela su estequiometría. En experimentos de espectrometría de masas tándem, subunidades periféricas son disociados. (B) para reticulación química, el complejo de la proteína se incuba con un reactivo de reticulación. El reticulado proteínas son digeridas luego en péptidos que posteriormente son analizados por espectrometría de masas acoplada a cromatografía de líquidos. Haga clic aquí para ver una versión más grande de esta figura.

Figura 2: SDS-PAGE de reticulado RvB1/B2 (A) y CPS (B) complejos. (A) 2.5 μm RvB1/B2 fueron cargados por carril del gel. La concentración de BS3 es variada. No-cruz-ligado RvB1/B2 muestra las subunidades de dos proteína de aproximadamente 50 kDa. Además de BS3 causaron acoplamiento covalente de las subunidades de proteína dando lugar a bandas de proteínas con peso molecular mayor. La cantidad de especies reticuladas aumenta con mayores concentraciones de BS3. Óptimas condiciones de cross-linking son resaltado (rojo). (B) 10 μm CPS fueron cargados por carril del gel. El grande (90 kDa) y pequeño (40 kDa) subunidades de la CPS se obtienen. Además de BS3 causaron acoplamiento covalente de las subunidades de proteína dando lugar a bandas de proteínas con peso molecular mayor. Óptimas condiciones de cross-linking son resaltado (rojo). Haga clic aquí para ver una versión más grande de esta figura.

Figura 3: espectrometría de masas nativa y reticulación química de RvB1/B2 complejo. (A) el espectro de masas nativo revela dos especies de RvB1/B2; del dodecamer intacto (es decir, (RvB1)6(RvB2)6) aproximadamente 11.000 a 12.000 m/z y el hexámero anillo (RvB1)3(RvB2)3 en aproximadamente 8.000 m/z. Ambas especies muestran dos poblaciones resultantes RvB2 su etiquetados y sin etiquetar. El espectro ha sido modificado desde35. (B) el cristal estructura de RvB1/B2 se muestra (ID de PDB 4WVY). Alternancia de RvB1 y RvB2 subunidades forman dos anillos hexamérica. (C) espectro de fragmentación de un reticulado di-péptido. El N-terminal de RvB1 fue reticulado con K23 de RvB1 serie de iones y se obtuvieron para ambos péptidos (rojo y cian). (D) Intra y inter protein interacciones en el complejo RvB1/B2. Intra-Cruz-enlaces se muestran en rojo, en azul se muestran inter-cross-links. El inserto muestra dos enlaces cruzados inter moleculares entre las subunidades RvB1 y RvB2 que podrían visualizarse en la estructura cristalina (verde, insertar). Interacciones que originan dos copias RvB2 se muestran como líneas de puntos azules. Haga clic aquí para ver una versión más grande de esta figura.

Figura 4: espectrometría de masas nativa y reticulación química de CPS. (A) el espectro de masas nativo de CPS muestra tres complejos. El dimer del hetero (160 kDa), hetero-tetrámero (320 kDa) y hetero-octámero (640 kDa). El espectro ha sido modificado desde35. (B) spectrometry total en tándem de la tetramérica y octámerico CPS complejo reveló la disociación de la subunidad pequeña del CPS. (C) el cristal estructura de CPS se muestra (ID de PDB 1BXR). Las subunidades grandes forman una base tetramérica y las subunidades pequeñas se encuentran en la periferia del complejo. Enlaces cruzados inter moleculares entre dos copias de la subunidad grande se muestran (verde). (D) interacción de las subunidades grandes y pequeñas de la CPS. Espectrometría de masas nativa reveló Subcomplejos mando y sugiere una localización periférica de la subunidad pequeña. Enlaces químicos cruzados indican arreglos en la base tetramérica de CPS. Haga clic aquí para ver una versión más grande de esta figura.
Tabla 1: resultados de la búsqueda de la base de datos. Se identificaron las proteínas por espectrometría de masas acoplada a cromatografía de líquidos y la búsqueda de la base de datos. Los nombres de la proteína de adhesión número, descripción como proteína se dan masa. El puntaje de la proteína, número de espectros observados por proteína y el número de secuencias de péptidos observados se enumeran. Los cinco péptidos con puntuaciones más altas de péptidos de mascota se enumeran para cada subunidad de la proteína. Haga clic aquí para descargar este archivo.
Tabla 2: enlaces cruzados observaron en RvB1/B2 y CPS. Las subunidades de los complejos y los residuos reticulados se dan. El tipo de reticulación (intra - o inter-moleculares) fue revelado de secuencias de péptidos traslapados o un anterior estudio35. Haga clic aquí para descargar este archivo.
Discusión
Protocolos se proporcionan para análisis estructural basada en espectrometría de masa de complejos multi-subunidades de la proteína. Las dos técnicas, descritas en el protocolo, en su mayoría ofrecen resultados complementarios y son adecuadas para ganar penetraciones en los arreglos estructurales en proteínas (-ligando) complejos que son difíciles de estudiar por técnicas estructurales convencionales. Espectrometría de masas nativa proporciona penetraciones en los stoichiometries de proteína así como las interacciones entre proteínas analizando Subcomplejos de mando y módulos de interacción estable. Cross-linking, por otro lado, aporta información sobre sitios de contacto directos. Dependiendo de la vinculante utilizado, cierta flexibilidad puede o debe incluirse en el análisis.
Los protocolos proporcionados son en general fácil de realizar y no requiere mucho tiempo. El conjunto del Protocolo puede ser ejecutado dentro de una semana y se puede aplicar a casi todos los complejos de la proteína, aunque una cierta cantidad de la proteína compleja se requiere para el análisis de éxito. Preparación de la muestra es sencilla y no requiere específicamente complejos de la proteína purificada. Sin embargo, una trampa común es la contaminación de la muestra durante la preparación de muestras para identificación de proteínas basada en espectrometría de masa. Estas contaminaciones en la mayoría de los casos incluyen queratinas que originan polvo, piel o cabello. Por lo tanto, adicional como uso de guantes y batas de laboratorio, filtración acuosas almacenadores intermediarios y el uso de solventes de alta pureza deben tenerse cuidado durante la preparación de muestras para identificación de proteínas basada en espectrometría de masa. Otras proteínas contaminantes como acompañantes generalmente se introducen durante la purificación de la proteína, por ejemplo, cuando se utiliza etiquetas de afinidad. En estos casos, purificación de proteínas debe mejorarse, por ejemplo mediante el aumento de pasos de lavado. En cualquier caso, la contaminación de la proteína en la muestra se pueden identificar fácilmente durante la búsqueda de la base de datos omitiendo el filtro de la taxonomía (es decir, buscar contra las proteínas de todas las especies). Si sólo se observan unos péptidos (es decir, una cobertura baja en proteínas podría obtenerse), aunque muestra suficiente está disponible, puede ser necesario utilizar una proteinasa diferentes durante la digestión. En general la tripsina produce un número suficiente de péptidos; sin embargo, en algunos casos como proteínas de membrana o membrana dominios de proteínas, se reduce el número de sitios de división tríptica y otras enzimas dirigidas a hidrofóbicos aminoácidos son una mejor opción.
En términos de instrumentación, un instrumento especialmente modificado se requiere para espectrometría de masas nativa que mantiene interacciones no-covalentes durante la transferencia en la fase de gas. Se han introducido varios tipos de instrumentos, incluyendo instrumentos de Q-ToF y orbitrap. Mientras que modificado Q-ToF espectrómetros de masas están comercialmente disponibles para espectrometría de masas nativa desde hace varios años, estos últimos fueron introducidos recientemente y en la mayoría de los casos requieren modificación especializada45. Sin embargo, la aplicación de instrumentos de alta resolución permite estudiar la Unión de ligandos múltiples y su cuantificación46,47 y es prometedor para futuras aplicaciones.
Para identificar reticulados di-péptidos mediante espectrometría de masas acoplada a cromatografía de líquidos, se pueden aplicar procedimientos estándar con pocas modificaciones. Sin embargo, la búsqueda de la base de datos es el factor limitante como software especializado puede tratar raramente con grandes bases de datos y reducidos las bases de datos que contienen las subunidades de proteínas de los complejos son necesarios. Estudios recientes utilizan masa espectrometría escindibles cross-linkers dirigida a las interacciones de proteínas en célula entera lisados48,49. El uso de químicos cross-linkers que fragmento sobre todo en experimentos de espectrometría de masas tándem produce péptidos lineales (modificados por la vinculante), que pueden ser identificados por mayor fragmentación y búsqueda de la base de datos de péptidos lineales y esto reduce buscar el tiempo y el espacio de búsqueda computacional. Sin embargo, para realizar estos experimentos, un analizador de masas de trampa iónica o un espectrómetro de masas híbrido con una trampa de iones es necesario. En general, como falsos positivos son un tema importante, espectrometría de masas de péptidos reticulados es a menudo validado manualmente por la calidad de sus espectros de fragmento que amplía enormemente el tiempo de análisis de datos. Desarrollo de robustos sistemas de puntuación que se pueden aplicar sin más pasos de validación, por tanto, son posibles aplicaciones futuras. Una forma para mejorar el análisis de datos y reducir el número de falsos positivos fue la introducción de cálculos de tarifa falsa del descubrimiento y su aplicación a Cross-linking de conjuntos de datos50.
En general, las técnicas aquí descritas pueden complementarse con otras técnicas de espectrometría de masas (p. ej., etiquetado covalentes) para aumentar la salida del análisis. Otras modificaciones y mejoras de los protocolos pueden ser implementados fácilmente. Como tal comparativa Cross-linking34 revela cambios conformacionales en la Asamblea de la proteína. Más avances en espectrometría de masas nativa hoy en día permiten el análisis de membrana proteínas51,52 y sus interacciones con los lípidos28,52,53,54 . Novedades de espectrómetros de masas de alta resolución para espectrometría de masas nativa han extendido la aplicación y atascamiento del ligand, por ejemplo, Unión de lípidos a proteínas de la membrana, ahora pueden ser incluidos en el análisis45, 46. en combinación con métodos de Modelado computacional, estas técnicas pueden ofrecer modelos estructurales de diferentes resolución55. Si no las estructuras cristalinas están disponibles para las subunidades complejas o solo intactas, espectrometría de masas puede entregar primera penetraciones en las interacciones de la proteína y la topología del complejo desconocido. Dependiendo de las técnicas utilizadas y los resultados obtenidos, se pueden obtener modelos de baja resolución del complejo desconocido56,57,58. Si se dispone de las estructuras cristalinas o modelos de la homología, la información estructural espectrometría de masas puede producir incluso materno modelos59.
En comparación con otras técnicas estructurales, espectrometría de masas tiene la ventaja de que requiere cantidades de muestra baja, se puede tratar con muestras heterogéneas y es aplicable a los complejos de la proteína de tamaño ilimitado. Además, la espectrometría de masas permite la investigación de sistemas de dinámica de proteínas. Las diferentes poblaciones de la proteína o complejo de proteínas que existen en solución generalmente se analizan juntos y por lo tanto, a diferencia con otras técnicas estructurales que requieren la selección de determinadas poblaciones, conformaciones todos se mantienen durante Análisis y son evaluable en un experimento. Enfoques cuantitativos de cross-linking fueron recientemente introducido34,60,61 y son prometedores para futuras aplicaciones, describiendo los cambios conformacionales en condiciones diferentes.
Divulgaciones
Los autores no tienen nada que revelar.
Agradecimientos
Agradecemos a nuestros colegas para discusiones útiles. También agradecemos a Ilme Schlichting y Peter Karl Hopfner para dar complejos de la proteína. Reconocemos que la financiación del Ministerio Federal de educación e investigación (BMBF, ZIK programa, 03Z22HN22), los europeos fondos de Desarrollo Regional (EFRE, ZS/2016/04/78115) y el MLU Halle-Wittenberg a C.S. y financiado por el Wellcome Trust (109854/658 Z/15/Z) a A.P.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Químicos, Reactivos, Consumibles | |||
| 2-[4-(2-hidroxietil)piperazina-1-il]etanosulfónico (HEPES) | Sigma Aldrich | Tampón | H4034 |
| Ácido acético | Sigma Aldrich | 695092 | pH |
| Acetonitrilo Optima LC/MS | Fisher Chemicals | A955-1 | disolvente |
| Amicon Ultra centrífugo dispositivos (diferentes MWCO) | Millipore | es decir | , UFC500396 tampón de intercambio, concentración |
| Solución de acetato de amonio | Sigma Aldrich | A2706 | MS nativo |
| Bicarbonato de amonio | Sigma Aldrich | 9830 | digestión en gel |
| Solución de amonio | Sigma Aldrich | 9859 | pH |
| Bis(Sulfosuccinimidyl)suberate-d0 (BS3-d0) | Thermo Scientific | 21590 | reticulante |
| Bis(sulfosuccinimidil)suberado-d4 (BS3-d4) | Thermo Scientific | 21595 | reticulante |
| Yoduro de cesio | Sigma Aldrich | calibración | 203033 |
| Cloruro de calcio | Sigma Aldrich | C5670 | digestión en gel |
| Capilares (1,0 OD y veces; 0,78 ID y veces; 100 L mm) | Harvard Apparatus | 30-0038 | EM nativo |
| Suberato de disuccinimidilo (DSS) | Thermo Scientific | 21655 | reticulante |
| DL-Ditiothreitol | Sigma Aldrich | D5545 | digestión en gel |
| DMSO (dimetilsulfóxido) | Sigma Aldrich | D8418 | disolvente |
| Etanol | Fisher Chemicals | BP2818 | |
| disolvente Ácido fórmico Optima LC/MS | Fisher Chemicals | A117-50 | suplemento solvente |
| Instant Blue Coomassie solución de tinción | expedeon | ISB1L | solución de tinción para electroforesis en gel |
| Invitrogen NuPAGE 4-12% Geles Bis-Tris (1 mm, 10 pocillos) | Life Technologies | NP0323BOX | electroforesis en gel |
| Yodoacetamida | Sigma Aldrich | I1149 | Digestión en gel |
| Alcohol isopropílico, grado HPLC | Fisher Chemicals | P750717 | disolvente |
| Metanol | Fisher Chemicals | A456-212 | disolvente |
| Micro BioSpin 6 columnas | BioRad | 732-6222 | tampón |
| de intercambio NuPAGE Antioxidante | invitrogen | NP0005 | tampón de ejecución, electroforesis en gel |
| Tampón de muestra NuPAGE LDS (4 &veces;) | invitrogen | NP0007 | tampón de carga de muestras (no reductor) para electroforesis en gel |
| NuPAGE MES SDS Running buffer | life technologies | NP0001 | electroforesis en gel |
| NuPAGE MOPS SDS Running buffer | life technologies | NP0001 | electroforesis en gel |
| NuPAGE Agente reductor de muestras (10 ×) | invitrogen | NP0004 | agente reductor para electroforesis en gel |
| PBS - solución salina tamponada con fosfato | Tampón | Sigma Aldrich | P4417 |
| SeeBlue Plus2 Marcador de proteína estándar preteñido | invitrogen | LC5925 | Marcador de proteínas para electroforesis en gel |
| Acetato de sodio | Sigma Aldrich | S2889 | precipitación de etanol |
| Tris (hidroximetilo)aminometano (Tris) | Sigma Aldrich | tampón | 252859 |
| Tripsina | Sigma Aldrich | TRYPSEQ-RO (11418475001) | digestión en gel |
| Dispositivos centrífugos Vivaspin (diferentes MWCO) | Sartorius | es decir, VS0101 | intercambio de tampón, concentración |
| Agua para HPLC | Sigma Aldrich | 270733-2.5L-M | solvente |
| Nombre | Company | Número de catálogo | Comments |
| Instruments | |||
| Centrífuga Heraeus Fresco 21, centrífuga de sobremesa | Thermo Scientific | 75002425 | |
| Flaming / Marrón Extractor de micropipetas Modelo P-1000 | Sutter Instruments | P-1000 | |
| Cámara de electroforesis de gel, Xcell SureLock | MiniCell, Invitrogen | EI0001 | |
| Gold Coater Quorum, Q150R, S | Quorum Technologies, Ltd. | Q150RS | |
| Agitador de gel horizontal Rotamax 120 T | Heidolph Instruments | 544-41200-00 | |
| Q-TOF Espectrómetro de masas Ultima, actualización de alta masa MS Vision Waters | (micromasa) | columna | |
| poro) | Thermo Scientific | 164570 | |
| precolumna C18 de fase reversa (C18, 150 mm de diámetro interior, 2 cm, 5 mm de tamaño de poro) | Bisturí Thermo Scientific | 164213 | |
| Fisher Scientifc | 10463989 | ||
| centrífuga | de vacío Thermo Scientific | SPD121DP-230 | |
| Thermomixer C | Pinzas Eppendorf | 5382000015 | |
| AA | Sigma Aldrich | Z680184-1EA | |
| Limpiador ultrasónico USC-TH, baño de sonicación | VWR | 142-0084 | |
| Sistema UltiMate Dionex 3000 nano-LC, acoplado al espectrómetro de masas híbrido Q-Exactive plus (fuente nano-ESI) | Thermo Scientific | 0726030+ | |
| Name | Company | Número de catálogo | Comments |
| Software, Herramientas de software, Búsqueda en bases de datos | |||
| Mascot | www.matrixscience.com | ||
| Massign | http://massign.chem.ox.ac.uk | ||
| MassLynx | Micromass | ||
| MassMatrix | Xu, H. J Proteome Res. 9 (2010) | ||
| MaxQuant | Cox, J. Nat. Biotechn. 26 (2008) | ||
| pLink | Yang, B. Nat Methods 9 (2012) | ||
| Herramienta de conversión pXtract | http://pfind.ict.ac.cn/downloads.html | ||
| UniDec | Marty, M.T. Anal. Chem. 87 (2015) | ||
| XCalibur | Thermo Scientific | ||
| XiNET | http://crosslinkviewer.org | ||
| XLinkX | Liu, F. Curr Op Struct Biol 35 (2015) | ||
| xQuest | Rinner, O. Nat Methods 5 (2008) | ||
| Xvis | https://xvis.genzentrum.lmu.de |
Referencias
- Campbell, I. D. Timeline: the march of structural biology. Nat Rev Mol Cell Biol. 3 (5), 377-381 (2002).
- Liko, I., Allison, T. M., Hopper, J. T., Robinson, C. V. Mass spectrometry guided structural biology. Curr Opin Struct Biol. 40, 136-144 (2016).
- Robinson, C. V. From molecular chaperones to membrane motors: through the lens of a mass spectrometrist. Biochem Soc Trans. 45 (1), 251-260 (2017).
- Lossl, P., van de Waterbeemd, M., Heck, A. J. The diverse and expanding role of mass spectrometry in structural and molecular biology. EMBO J. 35 (24), 2634-2657 (2016).
- Wang, L., Chance, M. R. Protein Footprinting Comes of Age: Mass Spectrometry for Biophysical Structure Assessment. Mol Cell Proteomics. 16 (5), 706-716 (2017).
- Steen, H., Mann, M. The ABC's (and XYZ's) of peptide sequencing. Nat Rev Mol Cell Biol. 5 (9), 699-711 (2004).
- Olsen, J. V., Mann, M. Status of large-scale analysis of post-translational modifications by mass spectrometry. Mol Cell Proteomics. 12 (12), 3444-3452 (2013).
- Schmidt, C., Robinson, C. V. Dynamic protein ligand interactions--insights from MS. FEBS J. 281 (8), 1950-1964 (2014).
- Marcsisin, S. R., Engen, J. R. Hydrogen exchange mass spectrometry: what is it and what can it tell us? Anal Bioanal Chem. 397 (3), 967-972 (2010).
- Zhang, Z., Smith, D. L. Determination of amide hydrogen exchange by mass spectrometry: a new tool for protein structure elucidation. Protein Sci. 2 (4), 522-531 (1993).
- Leitner, A., Lindner, W. Current chemical tagging strategies for proteome analysis by mass spectrometry. J Chromatogr B Analyt Technol Biomed Life Sci. 813 (1-2), 1-26 (2004).
- Leitner, A., Lindner, W. Chemistry meets proteomics: the use of chemical tagging reactions for MS-based proteomics. Proteomics. 6 (20), 5418-5434 (2006).
- Kiselar, J. G., Chance, M. R. Future directions of structural mass spectrometry using hydroxyl radical footprinting. J Mass Spectrom. 45 (12), 1373-1382 (2010).
- Xu, G., Chance, M. R. Hydroxyl radical-mediated modification of proteins as probes for structural proteomics. Chem Rev. 107 (8), 3514-3543 (2007).
- Liu, F., Heck, A. J. Interrogating the architecture of protein assemblies and protein interaction networks by cross-linking mass spectrometry. Curr Opin Struct Biol. 35, 100-108 (2015).
- Rappsilber, J. The beginning of a beautiful friendship: cross-linking/mass spectrometry and modelling of proteins and multi-protein complexes. J Struct Biol. 173 (3), 530-540 (2011).
- Rinner, O., et al. Identification of cross-linked peptides from large sequence databases. Nat Methods. 5 (4), 315-318 (2008).
- Yang, B., et al. Identification of cross-linked peptides from complex samples. Nat Methods. 9 (9), 904-906 (2012).
- Xu, H., Hsu, P. H., Zhang, L., Tsai, M. D., Freitas, M. A. Database search algorithm for identification of intact cross-links in proteins and peptides using tandem mass spectrometry. J Proteome Res. 9 (7), 3384-3393 (2010).
- Leitner, A., Faini, M., Stengel, F., Aebersold, R. Crosslinking and Mass Spectrometry: An Integrated Technology to Understand the Structure and Function of Molecular Machines. Trends Biochem Sci. 41 (1), 20-32 (2016).
- Heck, A. J. Native mass spectrometry: a bridge between interactomics and structural biology. Nat Methods. 5 (11), 927-933 (2008).
- Sharon, M., Robinson, C. V. The role of mass spectrometry in structure elucidation of dynamic protein complexes. Annu Rev Biochem. 76, 167-193 (2007).
- Goth, M., Pagel, K. Ion mobility-mass spectrometry as a tool to investigate protein-ligand interactions. Anal Bioanal Chem. , (2017).
- Uetrecht, C., Rose, R. J., van Duijn, E., Lorenzen, K., Heck, A. J. Ion mobility mass spectrometry of proteins and protein assemblies. Chem Soc Rev. 39 (5), 1633-1655 (2010).
- Hernandez, H., Robinson, C. V. Determining the stoichiometry and interactions of macromolecular assemblies from mass spectrometry. Nat Protoc. 2 (3), 715-726 (2007).
- Sobott, F., Hernandez, H., McCammon, M. G., Tito, M. A., Robinson, C. V. A tandem mass spectrometer for improved transmission and analysis of large macromolecular assemblies. Anal Chem. 74 (6), 1402-1407 (2002).
- Rostom, A. A., et al. Detection and selective dissociation of intact ribosomes in a mass spectrometer. Proc Natl Acad Sci U S A. 97 (10), 5185-5190 (2000).
- Zhou, M., et al. Mass spectrometry of intact V-type ATPases reveals bound lipids and the effects of nucleotide binding. Science. 334 (6054), 380-385 (2011).
- Uetrecht, C., et al. High-resolution mass spectrometry of viral assemblies: molecular composition and stability of dimorphic hepatitis B virus capsids. Proc Natl Acad Sci U S A. 105 (27), 9216-9220 (2008).
- Morgner, N., et al. Hsp70 forms antiparallel dimers stabilized by post-translational modifications to position clients for transfer to Hsp90. Cell Rep. 11 (5), 759-769 (2015).
- Schmidt, C., Beilsten-Edmands, V., Robinson, C. V. The joining of the Hsp90 and Hsp70 chaperone cycles yields transient interactions and stable intermediates: insights from mass spectrometry. Oncotarget. 6 (21), 18276-18281 (2015).
- Schmidt, C., Beilsten-Edmands, V., Mohammed, S., Robinson, C. V. Acetylation and phosphorylation control both local and global stability of the chloroplast F1 ATP synthase. Sci Rep. 7, 44068(2017).
- Schmidt, C., et al. Comparative cross-linking and mass spectrometry of an intact F-type ATPase suggest a role for phosphorylation. Nat Commun. 4, 1985(2013).
- Schmidt, C., Robinson, C. V. A comparative cross-linking strategy to probe conformational changes in protein complexes. Nat Protoc. 9 (9), 2224-2236 (2014).
- Schmidt, C., et al. Surface Accessibility and Dynamics of Macromolecular Assemblies Probed by Covalent Labeling Mass Spectrometry and Integrative Modeling. Anal Chem. 89 (3), 1459-1468 (2017).
- Lakomek, K., Stoehr, G., Tosi, A., Schmailzl, M., Hopfner, K. P. Structural basis for dodecameric assembly states and conformational plasticity of the full-length AAA+ ATPases Rvb1 · Rvb2. Structure. 23 (3), 483-495 (2015).
- Mareya, S. M., Raushel, F. M. A molecular wedge for triggering the amidotransferase activity of carbamoyl phosphate synthetase. Biochemistry. 33 (10), 2945-2950 (1994).
- Shevchenko, A., Wilm, M., Vorm, O., Mann, M. Mass spectrometric sequencing of proteins silver-stained polyacrylamide gels. Anal Chem. 68 (5), 850-858 (1996).
- Olsen, J. V., et al. Parts per million mass accuracy on an Orbitrap mass spectrometer via lock mass injection into a C-trap. Mol Cell Proteomics. 4 (12), 2010-2021 (2005).
- Cox, J., Mann, M. MaxQuant enables high peptide identification rates, individualized p.p.b.-range mass accuracies and proteome-wide protein quantification. Nat Biotechnol. 26 (12), 1367-1372 (2008).
- Kirshenbaum, N., Michaelevski, I., Sharon, M. Analyzing large protein complexes by structural mass spectrometry. J Vis Exp. (40), (2010).
- Morgner, N., Robinson, C. V. Massign: an assignment strategy for maximizing information from the mass spectra of heterogeneous protein assemblies. Anal Chem. 84 (6), 2939-2948 (2012).
- Marty, M. T., et al. Bayesian deconvolution of mass and ion mobility spectra: from binary interactions to polydisperse ensembles. Anal Chem. 87 (8), 4370-4376 (2015).
- Thoden, J. B., Wesenberg, G., Raushel, F. M., Holden, H. M. Carbamoyl phosphate synthetase: closure of the B-domain as a result of nucleotide binding. Biochemistry. 38 (8), 2347-2357 (1999).
- Rose, R. J., Damoc, E., Denisov, E., Makarov, A., Heck, A. J. High-sensitivity Orbitrap mass analysis of intact macromolecular assemblies. Nat Methods. 9 (11), 1084-1086 (2012).
- Gault, J., et al. High-resolution mass spectrometry of small molecules bound to membrane proteins. Nat Methods. 13 (4), 333-336 (2016).
- Mehmood, S., et al. Mass spectrometry captures off-target drug binding and provides mechanistic insights into the human metalloprotease ZMPSTE24. Nat Chem. 8 (12), 1152-1158 (2016).
- Kaake, R. M., et al. A new in vivo cross-linking mass spectrometry platform to define protein-protein interactions in living cells. Mol Cell Proteomics. 13 (12), 3533-3543 (2014).
- Liu, F., Rijkers, D. T., Post, H., Heck, A. J. Proteome-wide profiling of protein assemblies by cross-linking mass spectrometry. Nat Methods. 12 (12), 1179-1184 (2015).
- Walzthoeni, T., et al. False discovery rate estimation for cross-linked peptides identified by mass spectrometry. Nat Methods. 9 (9), 901-903 (2012).
- Barrera, N. P., Di Bartolo, N., Booth, P. J., Robinson, C. V. Micelles protect membrane complexes from solution to vacuum. Science. 321 (5886), 243-246 (2008).
- Barrera, N. P., et al. Mass spectrometry of membrane transporters reveals subunit stoichiometry and interactions. Nat Methods. 6 (8), 585-587 (2009).
- Laganowsky, A., et al. Membrane proteins bind lipids selectively to modulate their structure and function. Nature. 510 (7503), 172-175 (2014).
- Marcoux, J., et al. Mass spectrometry reveals synergistic effects of nucleotides, lipids, and drugs binding to a multidrug resistance efflux pump. Proc Natl Acad Sci U S A. 110 (24), 9704-9709 (2013).
- Politis, A., Schmidt, C. Structural characterisation of medically relevant protein assemblies by integrating mass spectrometry with computational modelling. J Proteomics. , (2017).
- Hall, Z., Politis, A., Robinson, C. V. Structural modeling of heteromeric protein complexes from disassembly pathways and ion mobility-mass spectrometry. Structure. 20 (9), 1596-1609 (2012).
- Pukala, T. L., et al. Subunit architecture of multiprotein assemblies determined using restraints from gas-phase measurements. Structure. 17 (9), 1235-1243 (2009).
- Politis, A., et al. Topological models of heteromeric protein assemblies from mass spectrometry: application to the yeast eIF3:eIF5 complex. Chem Biol. 22 (1), 117-128 (2015).
- Politis, A., et al. A mass spectrometry-based hybrid method for structural modeling of protein complexes. Nat Methods. 11 (4), 403-406 (2014).
- Fischer, L., Chen, Z. A., Rappsilber, J. Quantitative cross-linking/mass spectrometry using isotope-labelled cross-linkers. J Proteomics. 88, 120-128 (2013).
- Yu, C., et al. Developing a Multiplexed Quantitative Cross-Linking Mass Spectrometry Platform for Comparative Structural Analysis of Protein Complexes. Anal Chem. 88 (20), 10301-10308 (2016).
Reimpresiones y permisos
