Aquí presentamos dos protocolos ultrarrápidos para la reconstitución de proteínas de membrana en proteoliposomes fusogénicas y fusión de tales proteoliposomes con bicapas de lípidos de destino para la entrega de detergente libre de estas proteínas de membrana a la bicapa postfusion. La combinación de estos enfoques permite a Asamblea rápida y fácilmente controlado de los sistemas de membranas de varios componentes complejos.
Artículo de método
Libre de detergente ultra rápida reconstitución de proteínas de membrana en bicapas lipídicas soportadas utilizando fusogénicas complementarios cargados de Proteoliposomes.
En este artículo
Resumen
Resumen
Detergentes son indispensables para la entrega de proteínas de membrana en vesículas de unilaminar pequeña de 30-100 nm, mientras que las bicapas de lípidos más complejos y más grande modelo son menos compatibles con los detergentes.
Aquí, describimos una estrategia para pasar por esta limitación fundamental utilizando fusogénicas teniendo una proteína de membrana de interés liposomas con carga opuesta. Fusión de estas vesículas se produce dentro de 5 min en un tampón de baja fuerza iónica. Liposomas cargados positivamente fusogénicas pueden utilizarse como vectores de transporte simple para la entrega de detergente libre de proteínas de membrana en biomimética destino bicapas lipídicas soportadas, que se cargan negativamente. También mostramos cómo reconstituir las proteínas de membrana en proteoliposomes fusogénicas con un protocolo rápido de 30 minutos.
La combinación de estos dos enfoques, demostrar un montaje rápido de una cadena de transporte de electrones que consiste en dos proteínas de la membrana de e. coli, un protón primario bomba bo3-oxidasa y F1Fo ATP sintasa, en las membranas de vesículas de diferentes tamaños, que van desde 0.1 a > 10 micras, así como la producción de ATP por esta cadena.
Introducción
Funcionalización de bicapas lipídicas artificiales con proteínas de la membrana es un paso fundamental en el montaje de sistemas modelo de membrana. El modelo más simple, proteoliposomes (PL), consiste en pequeñas (30-200 nm de diámetro) unilaminar vesículas (SUV, también llamados liposomas), con las proteínas integraron en sus membranas. PL se forman tradicionalmente en dos pasos1. Preformadas, primera SUV se mezclan con una proteína de membrana de interés y un detergente a una concentración por encima de su concentración micelar crítica (CMC). En segundo lugar, se elimina el detergente con varias diálisis, "bio-bolas" o gel técnicas filtración, dejando la proteína en la membrana. Este último enfoque es mucho más rápido (~ 30 min1) y por lo tanto es preferible para la reconstitución de proteínas de membrana frágil y sensible, mientras que los dos primeros enfoques están limitados por la velocidad de extracción detergente, que lleva muchas horas y puede provocar un pérdida sustancial de la actividad y pérdida de la integridad estructural de las proteínas. Funcionalización de grandes vesículas (propiedades grandes vesículas, LUV, hasta 1 μm de diámetro) por ello es más difícil, como vesícula de tamaño se reduce después de la eliminación del detergente y no es posible que las vesículas unilaminar gigante (GUV, > 1 μm), como son desestabilizado por detergentes (pero véase Johnson et al. 2 lento 2D-cristalización de proteínas de membrana en bicapas de grandes). Enfoques alternativos de GUV membrana funcionalización3,4,5 existen pero son laboriosos, lentos y necesitan algo de detergente en concentraciones por debajo de la CMC. Más frágiles o complejo lipídico modelos (por ejemplo, gotas hidrogel bicapas6 y 3D tejidos artificiales gota interfaz bicapa base imprimible7) no pueden tolerar detergentes. Rápidamente nuevas aplicaciones de biología sintética8,9,10 críticamente depende de funcionalización de estas estructuras complejas de la membrana. Por lo tanto, un método fácil y robusto que permite una entrega rápida y suave de proteínas de membrana en las bicapas frágil destino es muy solicitado en el campo.
Alternativa, método de la entrega de proteína libre de detergente es fusión de la vesícula, donde se unen las membranas de las vesículas interactuando en la bicapa postfusion intacta, mientras que su contenido acuoso intravesicular se mezcla, sin ser liberado en el externo medio ambiente. Fusión de la vesícula está habilitada y ya sea por los cambios conformacionales dentro de agentes fusogénicas complementarios (11,12 y péptidos proteínas13 alguna especialmente modificado ADN14) situados en el contacto con bicapas o Coulombic interacciones entre bicapas de lípidos forman de lípidos catiónicos y aniónicos complementariamente cargado15,16, o bicapas catiónicos y proteínas cargadas negativamente17.
El enfoque anterior requiere la presencia de agentes fusogénica en las interacción las membranas antes de la fusión, es relativamente lento (~ 30 min para llegar a medio-máximo de12,de fusión18), pero se puede aplicar a natural y artificial membranas.
Una ventaja del enfoque usando fusogénicas lípidos (figura 1) es que permite mucho más rápida fusión de la membrana (~ 1 min para llegar a máximo de la mitad y 5-10 minutos para terminar la reacción). Además, el grado de fusión puede ser controlado por i) una fácil formular contenido relativo de lípidos cargados en bicapas fusogénica y ii) iónico y, en general, osmótica fuerza del medio de reacción (sales en por encima de 50 mM y, por ejemplo, sacarosa15 aparecen para detener la fusión), o una combinación de ambos. Para iniciar la fusión, vesículas fusogénicas opuesto cargado se mezclan en un medio de fuerza iónica baja (típicamente sal de 10-20 mM) para 5-10 minutos. Una desventaja relativa del método es que los lípidos catiónicos pueden ejercer un efecto negativo sobre la funcionalidad de las proteínas de membrana en proteoliposomes catiónico antes de la fusión, especialmente en la baja fuerza iónica, pero este efecto es reversible y mitigadas por una natural composición lipídica de la membrana post-fusion y su vuelta al medio de fuerza iónica normal.
Protocolo
1. preparación de fusogénicas SUV y LUV
-
Preparación de mezcla de lípidos fusogénicas
- Preparar soluciones de lípidos fluorescentes, aniónicos, catiónicos y neutros en cloroformo en 25-50 mg/mL (por ejemplo, neutral DOPC (1,2-dioleoil-sn-glicero-3-fosfocolina), catiónico etílico-PC (1,2- dimyristoleoyl-sn-glycero-3-ethylphosphocholine), POPA aniónico (1-palmitoyl-2-oleoyl-sn-glycero-3-phosphate) y fluorescente del colesterilo-Bodipy-FL12, respectivamente) por pesar cantidades adecuadas de lípidos seco y disolver en 100% Cloroformo (¡atención! Ello bajo una campana de humos) o diluir las reservas comercialmente disponibles cloroformo de lípidos con cloroformo.
Nota: Ambos extractos lípidos naturales y lípidos sintéticos puros se pueden utilizar y demuestran resultados similares. - Mezcla 2.5 mg una catiónica y 2,5 mg de un lípido neutral en la acción del cloroformo (1.1.1) en un frasco de vidrio.
Nota: Este paso da 5 mg de mezcla de lípidos catiónicos en cloroformo, que contiene la fracción de peso del 50% de los lípidos catiónicos. Cuando es necesario, Añadir 0,5% fracción de peso de un lípidos fluorescentes a la mezcla. - Mezcla de 1 mg de aniónicos y 4 mg de lípidos neutros en las poblaciones de cloroformo (1.1.1) en un frasco de vidrio. Esto da 5 mg de mezcla de lípidos aniónicos que contenga fracción de peso de 20% de lípidos aniónicos.
- Evaporar el cloroformo bajo corriente de nitrógeno para formar una fina capa de lípido seco.
- Retire el cloroformo residual bajo vacío durante 10 minutos.
Nota: Tradicionalmente, este paso toma mucho más tiempo (1-12 h), pero se encontró que un tratamiento más largo no proporciona ninguna mejora evidente en el acoplamiento propiedades de SUV. - Hidratar la película lipídica seco agregando 0,5 mL de buffer A (100 mM KCl, 1 mM MgCl2, MOPS de 50 mM, pH 7,4) a cada frasco y dejándolas a temperatura ambiente durante 30 min y luego vórtice hasta la película lipídica está completamente separada de la superficie del vidrio y b ecomes una suspensión lipídica homogénea. Esto debe tomar de 20 a 40 s.
- Preparar soluciones de lípidos fluorescentes, aniónicos, catiónicos y neutros en cloroformo en 25-50 mg/mL (por ejemplo, neutral DOPC (1,2-dioleoil-sn-glicero-3-fosfocolina), catiónico etílico-PC (1,2- dimyristoleoyl-sn-glycero-3-ethylphosphocholine), POPA aniónico (1-palmitoyl-2-oleoyl-sn-glycero-3-phosphate) y fluorescente del colesterilo-Bodipy-FL12, respectivamente) por pesar cantidades adecuadas de lípidos seco y disolver en 100% Cloroformo (¡atención! Ello bajo una campana de humos) o diluir las reservas comercialmente disponibles cloroformo de lípidos con cloroformo.
-
Formación de SUV y LUV por extrusión
- Montar un sistema de extrusión (véase la Tabla de materiales) con dos jeringas de 1 mL utilizando un filtro de policarbonato con uno de los siguientes tamaños de poro: 100 o 200 nm a forma de SUV y 400 o 800 nm para formar LUV.
- Transferir la suspensión lipídica en una jeringa.
- Saca la suspensión haciéndola pasar a través del filtro 21 veces, como se muestra en otra parte18,19.
Nota: Un número impar de pasos es necesario para minimizar la transferencia en la solución de vesículas de lípidos grandes grupos pegado a la cara de filtro hacia la suspensión original de lípidos. - Solución de vesícula de transferencia en tubos de microcentrífuga de 1,5 mL.
2. formación de fusogénicas GUV por método de emulsión invertida
Nota: Este procedimiento se ilustra en la figura 2.
-
Preparación de una solución de lípidos en aceite
- Mezclar un stock de cloroformo (ver paso 1.1.1) de un lípido neutro (2 mg) y un lípido aniónico (0,5 mg) con 1 mL de hexadecano en tubo de microcentrífuga de 1,5 mL.
- Evaporar el cloroformo de la mezcla bajo constante mezcla y calentamiento a 80 ° C durante 30 minutos manteniendo el tubo abierto. Cierre el tubo y deje enfriar a temperatura ambiente.
-
Formación de una monocapa de lípidos en la interfase lípido-en-aceite/acuosa buffer
- Lugar 200 μL de la solución de lípidos en aceite encima de 0,5 mL de tampón B (20 mM KCl, 0.1 mM de MgCl2, pH de MOPS 10 mM 7,4) en un tubo de centrífuga de 1.5 mL. Tenga en cuenta la forma convexa de la frontera de separación de fase debido a la falta de coincidencia de tensión superficial entre el aceite y el buffer acuoso (figura 2A).
- Espere hasta que se aplana la frontera de separación de fase, que es indicativo de la formación de monocapa de lípidos en él. Esto por lo general toma 30-60 min a temperatura ambiente.
-
Preparación de una emulsión agua en aceite
- Preparar una solución de un polisacárido soluble en agua no iónico en solución tampón B, con una densidad superior a la densidad del agua (por ejemplo, 15% Ficoll-400 (w/v), con densidad de 1,05 g/mL)
Nota: Opcionalmente, uno puede Agregar tintes fluorescentes solubles en agua en el buffer para mejor visualización del GUV y cualquier otro contenido acuoso deseada de la 2.fino. - Transferir 0,5 μl de la mezcla anterior a un tubo de centrífuga de 1,5 mL separadas con 100 μl de la solución de lípidos en el aceite de 2.1.2.
- Someter a ultrasonidos (a 44 kHz a 14 W) la mezcla durante 30 s en un baño ultrasónico. Entonces, vigorosamente vortex durante 45 min formar una emulsión agua en aceite, donde cada gota será revestido por una monocapa de lípidos (figura 2B).
- Preparar una solución de un polisacárido soluble en agua no iónico en solución tampón B, con una densidad superior a la densidad del agua (por ejemplo, 15% Ficoll-400 (w/v), con densidad de 1,05 g/mL)
-
Conversión de la emulsión agua en aceite en GUV
- Colocar la emulsión resultante encima de la interfaz lípido-en-aceite/acuosa y centrifugar inmediatamente el tubo en una centrífuga de mesa a 10.000 x g durante 2 min. El pellet resultante de GUV debe ser claramente visible (figura 2).
- Enfriar el tubo a 4 ° C en un refrigerador para solidificar la mezcla lipídica de aceite (Figura 2D, hexadecano se solidifica por debajo de 18 ° C), retire con cuidado el aceite congelado y luego retirar la fase acuosa.
Nota: Para facilitar el aceite fue utilizado extracción congelación un alambre doblado en forma de un ancla. - Resuspender el precipitado GUV en 50 μl de buffer fresco B, transfiéralo a un tubo nuevo y examine bajo el microscopio de fluorescencia utilizando un objetivo de inmersión de aceite X 100 (Figura 2E).
3. fusión de la vesícula con cobalto calceína método de monitoreo
-
Preparación de una columna de gel filtración gravedad.
- Tomar aproximadamente 10 g de una resina de gel filtración (e.g. extrafina G-50 sephadex) en 100 mL de agua desionizada y dejar que se hinchen durante la noche.
- Paquete de 3 mL de la resina en una columna de flujo de gravedad de plástico desechables, lavar con agua ultrapura y equilibrar con buffer C (100 mM KCl, 10 mM MOPS, pH 7.4) a temperatura ambiente.
-
Preparación de SUV+ o SUV0 cargado con cobalto calceína.
- Preparar una solución que contiene calceína de 1 mM, 1 mM CoCl2, 98 mM NaCl, 10 mM MOPS, luego llevar el pH a 7,4.
Nota: La esencia del método es que calceína fluorescente libre forma un complejo no fluorescente con Co2 +. Se convierte en fluorescente sobre adición de EDTA, que tiene una mayor afinidad por Co2 +, desplaza calceína del complejo calceína cobalto (Figura 3A). - Añadir 500 μl de esta solución a una película seca de lípidos catiónicos o neutros, preparada como indicado en 1.1.
- Preparar 100 nm SUV por extrusión como se describe en 1.2.
- Pellets extruido SUV a 1.000.000 x g por 20 min en una ultracentrífuga de sobremesa y resuspender en 1 mL de tampón C. Repetir de peletizado y resuspensión tres veces; utilizar 0,6 mL de tampón C para la resuspensión pasada.
Nota: Estos pasos eliminar la mayor parte de lo externo calceína de cobalto. - Quitar el restante cobalto-calceína externo pasando SUV a través de una columna de flujo por gravedad desechable cargada con la resina de gel filtración equilibrada con tampón C como se describe para paso 3.1.2.
Nota: Típicamente desechar el primer mililitro volumen de fluir-por y recoger el segundo mililitro, que contiene cobalto-calceína externo libre SUV.
- Preparar una solución que contiene calceína de 1 mM, 1 mM CoCl2, 98 mM NaCl, 10 mM MOPS, luego llevar el pH a 7,4.
-
Preparación de SUV– con EDTA
- Preparar la solución de 10 mM, EDTA, 80 mM NaCl, 10 mM MOPS, pH 7,4.
- Añadir 500 μl de esta solución a una película seca de lípidos aniónicos, preparada como indicado en 1.1.
- Preparar SUV– por extrusión como se describe en 1.2.
- De pellets y resuspender SUV– como se describe en 3.2.4.
- Eliminar el EDTA restantes pasando SUV– a través de la columna de gel filtración como se indica en 3.2.5.
-
Preparación de SUV para la fusión
- Diluir SUV0,+de SUV y SUV– con buffer D (MOPS 1 mM, pH 7.4) suplementado con 0.2 mM CoCl2 y la concentración de KCl. uso 5 μl de cada tipo de SUV por 1 mL de tampón de D.
- Incubar la mezcla por al menos 1 h.
Nota: Este paso minimizará el nivel de fluorescencia de fondo mediante el bloqueo de calceína que es superficie-limita a SUV+.
-
Fusión de la vesícula
- Iniciar la reacción de fusión mezclando 1 mL de SUV+ o SUV0 con 1 mL de SUV− (diluido en buffer D como se describió anteriormente) en un Fluorímetro 2 mL cubeta y monitor aumento de fluorescencia de calceína con 480 excitación nm y 510 nm emisiones (Figura 3B).
- Espere hasta que la reacción de terminación.
- Añadir una mezcla de detergente Triton X-100 y EDTA (concentración final de 0.05% y 7 mM, respectivamente) para liberar calceína de vesículas y obtener la señal de fluorescencia máxima.
- Determinar el grado de fusión que se define como el porcentaje de la señal de fluorescencia máxima después de la adición de detergente como se muestra en la figura 3.
4. rápida reconstitución de proteínas de membrana en fusogénicas Proteoliposomes
Nota: Este procedimiento se ilustra en la Figura 4A.
- Preparar una columna de flujo de gravedad con la resina de gel filtración como se describe en 3.1 y equilibrar con el tampón A temperatura ambiente.
Nota: Todas las manipulaciones más deben hacerse estrictamente en ≤ 4 º C, a menos que se indique lo contrario, para minimizar la pérdida de actividad de la proteína. - Ajustar la concentración de la proteína purificada de la membrana a 0,7 mg/mL diluir con el mismo tampón de extracción utilizado para el aislamiento de la proteína.
- Mezcla 140 μl de la proteína con 300 μL de SUV preformado, 160 μl tampón A y 60 μL de cholate del 10% en tampón A; Esto le da 1:30 proteínas: relación de peso de lípidos en un volumen final de 660 μl.
- Agitar suavemente la mezcla en una plataforma oscilante durante 15 minutos.
Nota: Los siguientes pasos pueden hacerse a temperatura ambiente. - Pasar la mezcla a través de la resina de gel filtración y recoger fracciones turbios que contiene proteoliposomes.
- Proteoliposomes con una ultracentrífuga de sobremesa a 400.000 x g durante 15 min de la pelotilla.
- Deseche el sobrenadante que contiene proteína no reconstituido y resuspender el precipitado en 1 mL de tampón fresco A.
- Determinar el contenido de proteína en PL y el sobrenadante utilizando el método de negro Amido20.
- Determinar el rendimiento de la reconstitución, que es típicamente alrededor 50-70%.
Nota: Pasos 4.6-4.8 podrán sustituirse opcionalmente por pasar solución de PL a través de 1 mL de resina de Ni-NTA embalado en una columna de gravedad desechables y lavados con Buffer A descrito en 3.1.2. Tal paso se separará proteína no reconstituido, que preferentemente estará obligada a la resina, del PL, más del que será en el flujo a través.
5. funcionales pruebas de actividad de la proteína en Proteoliposomes
Nota: Ambas proteínas utilizadas en este estudio son bombas de protones de gran alcance, que la bomba H+ en proteoliposomes en adición de los sustratos (coenzima Q1 bo3-oxidasa y ATP para F1Fo, respectivamente), por lo tanto construcción un gradiente del protón a través de la membrana (ΔpH). En caso de reconstitución Co éxito por fusión, puede observarse como una disminución de la fluorescencia de una sonda de pH-sensible ACMA (9-Amino-6-Chloro-2-Methoxyacridine)12,15, que se utiliza rutinariamente para tales tareas (tal acidificación Figura 4B -C). Actividad específica de sustrato además de las proteínas (coenzima Q1 oxidación por bo3-oxidasa22 y a la hidrólisis de ATP por F1Fo23,24) pueden controlarse espectrofotométricamente utilizando diversos métodos. Aquí, se demuestra actividad de hidrólisis de ATP de F1Fo PL usando un ATP regeneración de ensayo (figura 4), donde dos enzimas (piruvato kinasa (PK) y lactato deshidrogenasa (LDH) mantienen una concentración constante de ATP como sigue. PK recicla ATP mediante la conversión de ADP producida por F1Fo en ATP a expensas de su sustrato fosfoenolpiruvato (PEP). Piruvato, que es un producto de esta reacción, se convierte en lactato por LDH a expensas de NADH, la oxidación de los cuales puede ser monitoreada como disminución de la densidad óptica a 340 nm.
-
Preparación de productos químicos
- Preparar 1 mM stock ACMA en etanol.
- Preparar un stock de 1 mM de nigericin (o cualquier otro uncoupler) en etanol.
- Preparar acciones de coenzima Q1 de 25 mM en etanol y stock DTT de 1 M en tampón A.
- Preparar un stock de 100 mM ATP en Buffer A y ajustar su pH a 7.4.
- Preparar las reservas de ATP regenerar los componentes del sistema en tampón A: PEP de 100 mM, 1 mM NADH y soluciones LDH de PK a una concentración de ~ 500-1.000 unidades/mL.
-
Coenzima Q1 impulsada por oxidación protón bombeo por bo3-oxidasa PL
- Añadir 20 μl de PL a una cubeta de Fluorímetro con 2 mL de tampón A en presencia de 0.5 μm ACMA y esperar señal estable con 430 de nm de excitación y emisión de nm 515.
- Añadir 40 μm coenzima Q1 a la cubeta.
- Iniciar el bombeo de protones mediante la adición de 2 mM DTT a PL (Figura 4B).
Nota: TDT reduce oxidado coenzima Q1 y lo hace disponible a bo3-oxidasa. - Disipar ΔpH formado añadiendo uncoupler μm 2 (por ejemplo nigericin). Señal de fluorescencia de ACMA debe volver rápidamente al nivel casi original.
Nota: no debe haber ningún amortiguamiento ACMA sobre adición del sustrato, si el uncoupler está presente en la mezcla de reacción inicialmente.
-
Protón de impulsado por la hidrólisis del ATP bombeo por F1FoPL
- Agregar 40 μl de PL a una cubeta de Fluorímetro descrito en 5.2.
- Iniciar el bombeo de protones mediante la adición de 0,2 mM ATP a PL (figura 4).
- Disipar ΔpH como se describe en 5.2.4.
-
Hidrólisis de ATP por F1FoPL y su estimulación por el uncoupler
- Agregar 40 μl de PL a una cubeta de espectrofotómetro con 2 mL tampón A, que contiene ATP de 1 mM, 0,2 mM NADH, PEP, de 2 mM y 15 μl de PK y LDH.
- Seguir la reacción midiendo la disminución de absorbancia del NADH a 340 nm. 3-4 min más tarde, añadir 2 uncoupler μm a la cubeta a la contrapresión de ΔpH en la hidrólisis de ATP. Inmediatamente debe aumentar la velocidad de reacción.
Nota: PL pasado a través de resina de Ni-NTA descrito en 4.10 demostrará el estímulo más fuerte por el uncoupler (figura 4, rojas traza), mientras que el efluente será apenas estimulada (trazo azul).
6. prueba de influencia de medio lipídico y fuerza iónica sobre la funcionalidad de proteínas de membrana en fusogénicas Proteoliposomes
- Evaluar el bombeo de protones por 40 μl de PL+, PL– y PL0 ensayo amortiguamiento ACMA en 2 mL buffer suplementado con 1 mM de MgCl2 y 20 (figura 5, Panel A) o 100 mM KCl (Panel B) como se indica en 5.2 o 5.3 (figura 5 D trazas de rojo, negros y azules).
- Fusible de 40 μl de PL+ con el mismo volumen de LUV– en 2 mL de buffer D complementado con 20 mM KCl y prueba de amortiguamiento (trazo verde) ACMA.
- Ejecutar experimentos de control de paso 2 mezclando, por ejemplo, PL y SUV de la misma carga (trazo en gris).
Nota: Bombeo de protones debe ser mejorada por postfusion PL.
7. entrega de proteínas de membrana en la LUV y GUV por fusogénicas Proteoliposomes
- Fusible de 50 μl de PL+ con 50 μl de 800 nm LUV– en 1 mL de tampón D suplementada con 1 mM de MgCl2y 20 mM KCl durante 5 minutos.
- De la pelotilla de las vesículas a 6.000 xg durante 5 min y deseche el sobrenadante PL contiene+. Resuspender el precipitado en 1 mL de tampón D complementado con 1 mM de MgCl2 y 100 mM KCl y repita la granulación y resuspender dos veces más.
- Ejecute el ACMA apagando el ensayo como se indica en 5.2 ó 5.4.
- Ejecutar experimentos de control, como en los pasos 1-3, usando combinaciones de complementarias vesículas cargadas de alta sal (200 mM KCl), las vesículas no fusogénicas y vanas LUV– sin PL+.
Nota: Bombeo de protones por postfusion LUV debe detectarse únicamente cuando las vesículas complementariamente cargadas fueron utilizadas como se muestra en la figura 6.
8. montaje de la cadena de transporte de electrones de los componentes individuales en las membranas de la LUV y GUV y producción de ATP por esta cadena.
Nota: Un esquema de este procedimiento se ilustra en la Figura 7A. ATP producido en este experimento será registrado por el sistema de luciferin-luciferasa, donde la conversión de ATP sintetizado en pirofosfato y AMP por luciferase es seguida por una emisión de luz registrada en un luminómetro. Se recomienda utilizar un luminómetro de tubo único, en lugar de los luminómetros de microplacas menos sensible.
- Μl de la mezcla 3 bo3-oxidasa PL+ y 5 μl de F1Fo PL+ forman como se describe en la sección 4.
- Fusionarlos con 3 μl de LUV o GUV– (formado como se describe en la sección 2) en 800 μl de buffer D complementado con 20 mM KCl y 1 mM de MgCl2 durante 5 minutos.
- Utilizando las poblaciones de alta concentración, añadir KCl y fregonas a concentración final de 100 mM y 50 mM para las membranas postfusion.
Nota: En el caso de la fusión LUV, este paso evitará que su hinchazón debido a una compensación osmótica entre la externa (tampón A) y concentración de sales de intravesicular (buffer D).- Opcionalmente, las membranas postfusion de pellets como se indica en 7.2 separar SUV+y resuspender el precipitado en 800 μl de buffer A.
- Preparar 200 μL de una luciferin-luciferasa-ADP cócteles que contienen ADP 400 μm, 50 luciferin μm y 2,5 μg luciferasa en tampón A
- Añadir el cóctel a la mezcla de postfusion de Step8.3.
- Añadir 40 μm de oxidado coenzima Q1y desencadenar la energización de las membranas postfusion por bo3-oxidasa mediante la adición de 2 mM DTT. Espere 1 minuto.
- Iniciar la síntesis de ATP mediante la adición de fosfato de potasio 5 mM (KP, pH 7,4) a vesículas energizadas y detectar la producción de ATP con un luminómetro (figura 7B). Ejecutar la reacción durante 3 minutos.
Nota: Procede de la reacción de síntesis de ATP por 5-7 min hasta el agotamiento de oxígeno consumido por bo3-oxidasa y luciferasa. - Añadir ATP de referencia estándar (0,5 nmol ATP) a la mezcla de reacción doble. Medida de ATP producido.
- Obtener la cantidad de ATP producido en la reacción dividiendo la señal de reacción de síntesis de ATP por la señal estándar de referencia de ATP. Ajustar este valor a la cantidad total de F1Fo utilizado en la reacción y por último expresar la tasa de síntesis de ATP en μmol ATP / (mg F1Fo* min).
Resultados
El uso de fusogénicas complementarios cargados de proteoliposomes para la entrega rápida libre de detergente de proteínas de membrana en membranas de bicapa de destino incluye tres pasos (figura 1): A, formación de fusogénicas SUV de mezclas de lípidos con alto contenido de lípidos cargados; Estos SUV opcionalmente puede llevar una carga intravesicular; Bconversión de fusogénicas SUV en PL utilizando nuestra reconstitución de proteínas de membrana rápido; Cfusión de fusogénicas PL con bicapas de destino en un medio de baja en sal, seguido por la adición de sal alta para detener la reacción de fusión. En el caso de grandes vesículas (D), es una estrategia preferible ofrecer proteína de la membrana a la bicapa aniónica blanco, que proporciona un mejor ambiente de lípidos para la actividad de proteínas de membrana (más discutido en el texto).
Se destaca el protocolo de formación GUV con método de emulsión invertida en detalle en la figura 2. Preferimos utilizar hexadecano en la mezcla de lípidos y aceite debido a su relativamente alta temperatura de congelación (° C 18), que permite retiro fácil del aceite solidificado después de GUV granulación.
Figura 3 muestra la fusión de la vesícula mediante método de cobalto-calceína-EDTA. Fusión se ve sólo cuando complementarias vesículas cargadas se utilizan buffers de sal baja, mientras que altas concentraciones de sal (> 50 mM14) o el uso de vesículas fusogénicas no demostrar ninguna fusión.
Este protocolo rápido de la reconstitución de proteínas de membrana en fusogénicas SUV se ilustra en la Figura 4A. Mediante este protocolo, se demuestra rápido reconstitución de protón primario bomba bo3-oxidasa y F1Fo ATP sintasa en PL y la evaluación de su actividad específica en estas membranas. Es importante mencionar que el rendimiento de la reconstitución de proteínas no depende de la carga de un lípido usado15 y es aproximadamente el 50-75%25,12, y que después de la reconstitución en PL, la proteína puede guardarse durante al menos tres días, incluso a temperatura ambiente sin pérdida evidente de la actividad de la proteína. Este procedimiento proporciona también orientación unidireccional de la sintasa de ATP, donde más del 95% de ella tiene su parte hidrofílica F1 orientado hacia afuera15,26.
Figura 5 muestra que el protón bombeo actividad de F1Fo (Panel A) y bo3-oxidasa (Panel B) en los lípidos catiónicos es reducida y sensibles a baja fuerza iónica, en comparación con el entorno de lípidos aniónicos y neutral, pero Este efecto se mitiga en las membranas de postfusion después de la fusión de PL+ con aniónico LUV–.
Figura 6 muestra la entrega de la F1Fo ATP sintasa en las membranas de las vesículas grandes. En este experimento, PL+ y 800 nm LUV– fueron fundidos en 20 mM KCl por 5 min y el producto de reacción se peleteado para quitar PL cuya+, se resuspendió y se ensayaron para el bombeo de protones. Experimentos de control demostraron que no hay bombeo de protones cuando LUV0 en lugar de LUV– se utilizaron en la reacción de la fusión (trazo negro), o vacío LUV– solo fueron ensayada (trazo azul).
Montaje rápido de un funcionamiento cadena transporte de electrones en las membranas de vesículas grandes mediante fusogénicas PL se muestra en la figura 7. Usamos F1Fo SUV+ y bo3 SUV+ para la fusión con 800 nm LUV-y demostró la producción de ATP por esta cadena en las vesículas postfusion añadiendo secuencialmente coenzima Q1 y TDT para energizar membranas y luego agregando fosfato para síntesis de ATP por F1Fo.
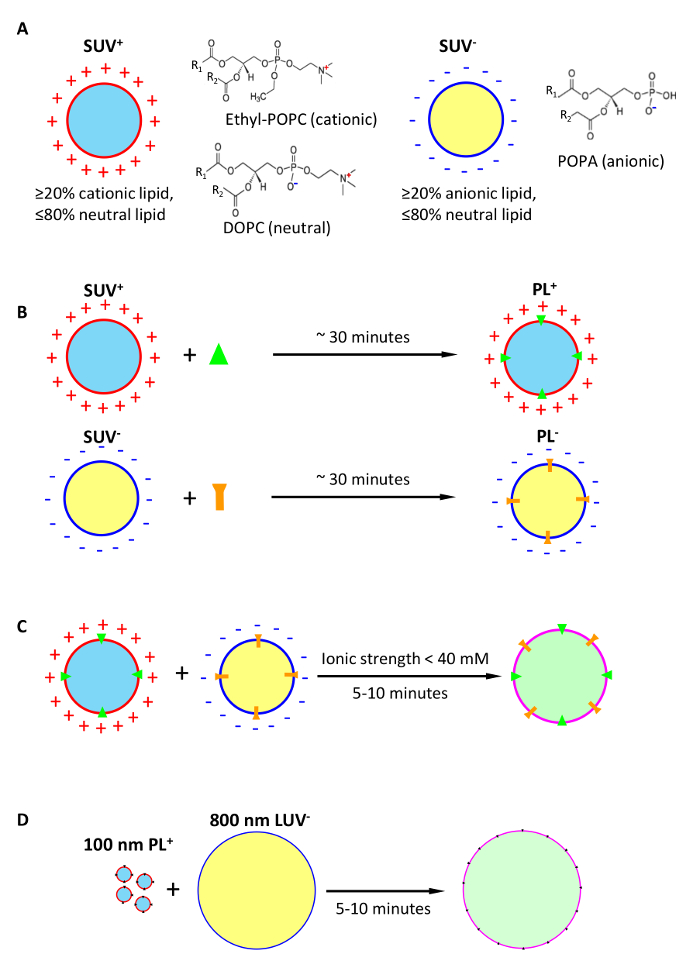
Figura 1: concepto de ultrarrápida entrega detergente libre de proteínas de membrana en bicapas de lípidos objetivo a través de la fusión de vesículas unilaminar formada de lípidos cargados complementarios. (A) formación de catiónicos y aniónicos fusogénicas unilaminar pequeña vesículas (+de SUV, SUV–) opcionalmente cargado con cargas intravesicular. (B) conversión de fusogénicas SUV en fusogénicas proteoliposomes (PL) por reconstitución de proteínas de membrana. (C) libre de detergente entrega de proteínas de membrana en membranas postfusion con la estrategia preferible de fusogénicas PL. (D) para la entrega de proteínas de membrana en membranas de vesículas grandes, ilustradas por la fusión entre 100 nm PL+ y 800 nm LUV–. Haga clic aquí para ver una versión más grande de esta figura.
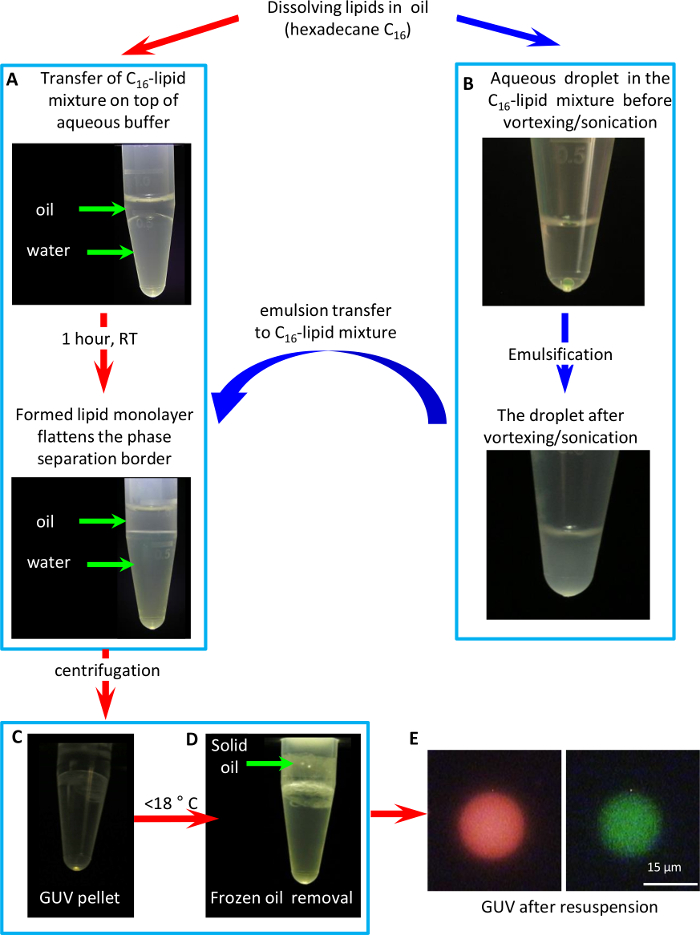
Figura 2: Protocolo de formación GUV con un método de emulsión invertida. (A) formación de una monocapa de lípidos en la frontera entre la mezcla de aceite de lípidos y agua. (B) formación de una emulsión (agua en aceite) invertida. (C) GUV formación pasando la emulsión a través de la frontera de agua y aceite mediante centrifugación. (D) enfriamiento del tubo abajo < 18 ° C a solidificar y quitar el aceite. (E) A imagen de microscopia fluorescente de un GUV con lípidos fluorescentes (1% peso fracción del colesterilo-Bodipy-FL12) en su membrana (verde) y un fluoróforo polar (1 mM sulforodamina 101) en el lumen de la vesícula (rojo). Haga clic aquí para ver una versión más grande de esta figura.
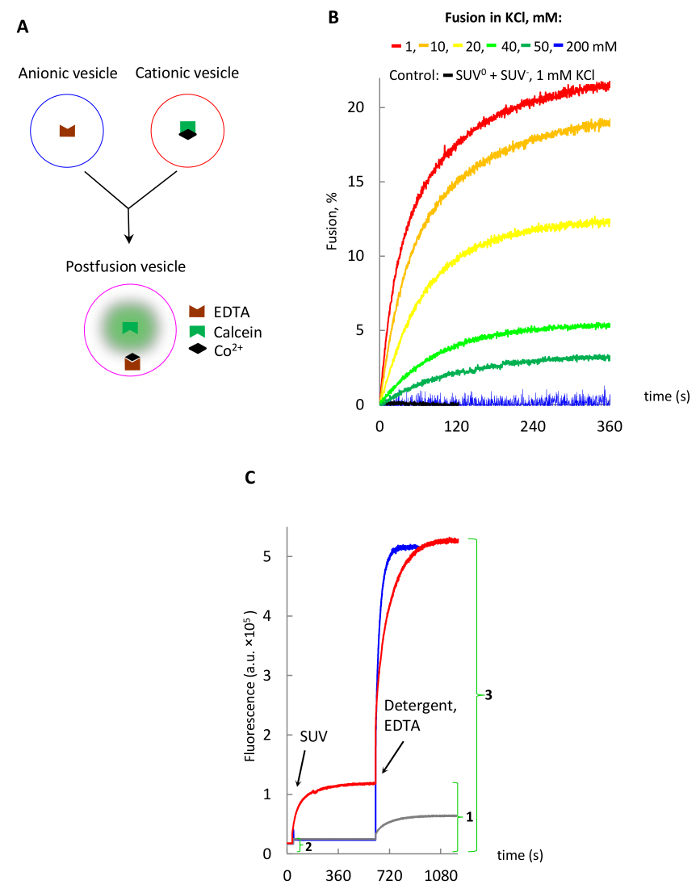
Figura 3: fusión de las vesículas de lípidos estudiados con el método de cobalto-calceína-EDTA. (A) diagrama esquemático del método, donde calceína libre se lanza de un complejo cobalto-calceína no fluorescente con EDTA. (B) fusión de SUV en diferentes concentraciones de KCl. (C) liberación de la calceína intravesicular por adición de EDTA y Triton X-100 detergente a las vesículas postfusion que se muestra en B como se describe en el texto. El grado de fusión (%) para el rastro rojo se calcula dividiendo la señal de fusión máxima corrección de fondo (1 - 2) por la señal máxima corrección de fondo tras el lanzamiento de calceína encapsulado (3-2) y multiplicando por 100. Haga clic aquí para ver una versión más grande de esta figura.
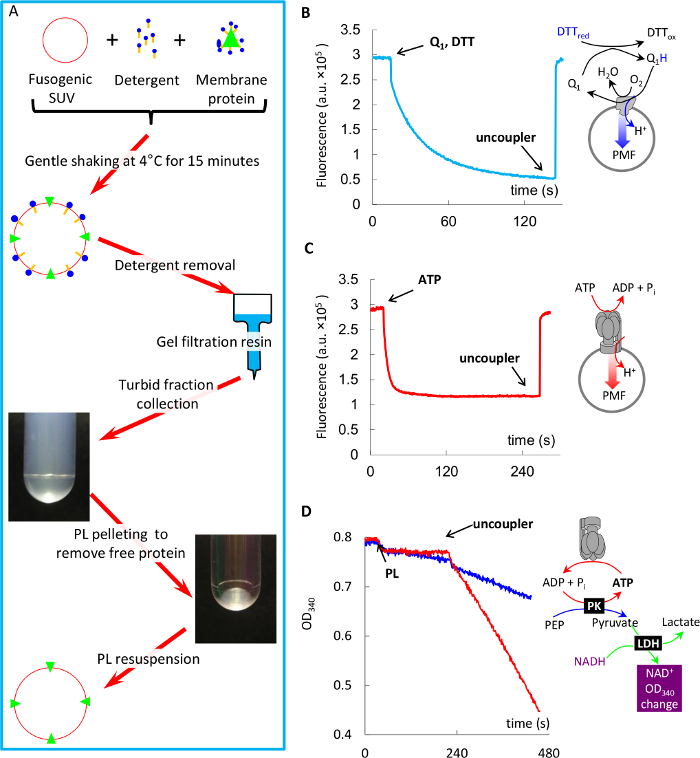
Figura 4: Reconstitución ultrarrápida de bo3-oxidasa y F1Fo en proteoliposomes fusogénicas y las mediciones de actividad de la proteína en tales proteoliposomes. (A) esquema del Protocolo de reconstitución. (B) coenzima Q1 oxidación impulsado por bombeo de protones por bo3-oxidasa en PL medido con ACMA Temple (explicado en el texto). (C) ATP conducido hidrólisis protón bombeo por F1Fo en PL medido con ACMA Temple (explicado en el texto). (D) ATP hidrólisis por F1Fo en PL medidos con sistema de regeneración de ATP (explicado en el texto) y su estimulación por el uncoupler. Haga clic aquí para ver una versión más grande de esta figura.
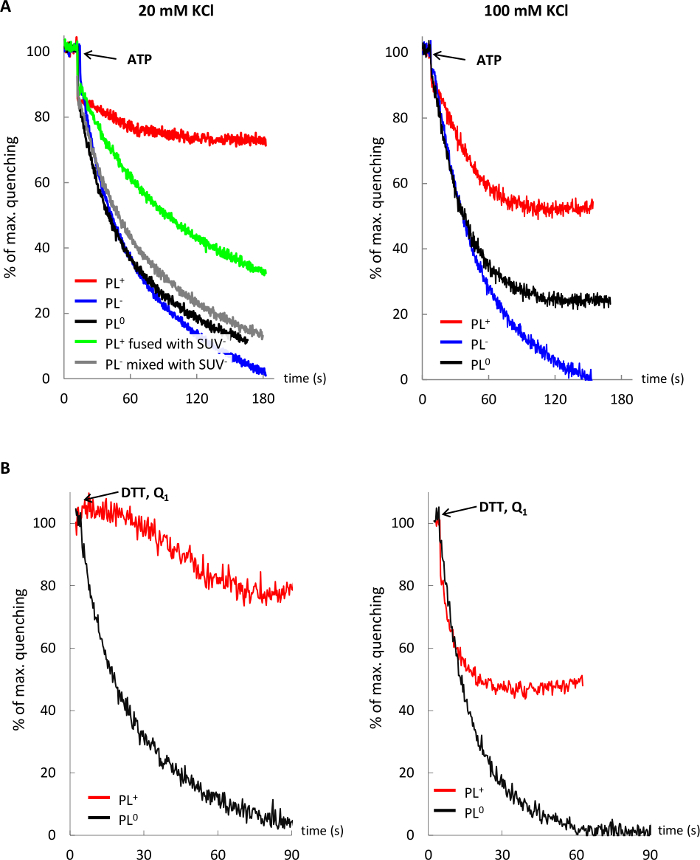
Figura 5: influencia del ambiente lipídico y fuerza iónica sobre la actividad de proteínas de membrana. Protón bombeo por F1Fo (A) y bo3-oxidasa (B) catiónico PL (trazo rojo), PL aniónico (trazo azul), PL neutro (trazo negro) y PL catiónico fusionado con aniónico LUV (trazo verde) de 20 y 100 mM (rastro) KCl. Control gris) no muestran ningún cambio en protón bombeo por F1Fo PL– en mezcla con SUV–. Haga clic aquí para ver una versión más grande de esta figura.
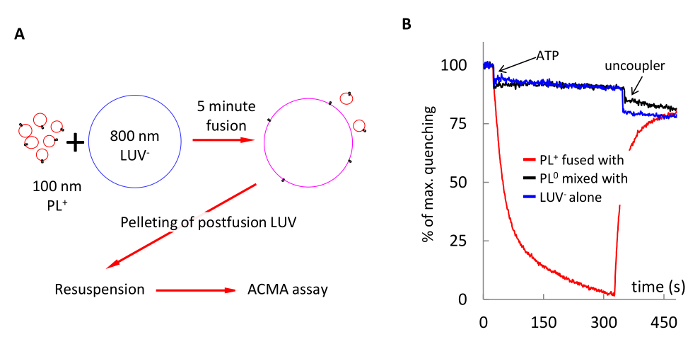
Figura 6: Entrega de la F1Fo ATP sintasa en las membranas de 800 nm LUV– vía fusión con PL+. (A) esquema del experimento: PL+ y 800 nm LUV– fueron fundidos en 1 mM MOPS (pH 7.4), 1 mM MgCl2, 20 mM, KCl 5 min, peleteado para quitar cuya PL y serán suspendidas en el mismo buffer. (B) protón bombeo por la LUV postfusion (trazo rojo). Experimentos de control no demostraron ACMA apagando cuando PL0 se mezclaron con LUV– (trazo negro), o vacío LUV– solo fueron ensayada (trazo azul). Haga clic aquí para ver una versión más grande de esta figura.
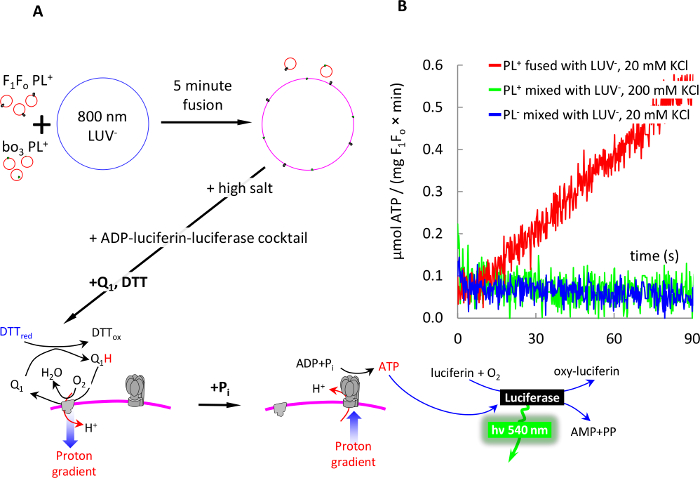
Figura 7: 5 min el montaje sin detergente de una cadena de transporte de electrones en las membranas de 800 nm LUV– vía fusión con PL+. (A) esquema del experimento: 100 nm F1Fo PL+ y 100 nm bo3-oxidasa PL+ fueron fundidos con LUV-, como se describe en la figura 6. Fusión se detuvo por adición de KCl y fregonas a 100 y 50 mM respectivamente. Las membranas se mezclaron con cóctel de ADP-luciferin-luciferasa y energizadas por la adición de TDT y Q1, como se describe en el texto. Producción de ATP fue iniciada por la adición de fosfato de 1 mM (P) y monitoreados en tiempo real con sistema de luciferin luciferasa como se describe en el texto. (B) ATP Síntesis de vesículas postfusion (trazo rojo). Experimentos de control no demostrados producción de ATP cuando la PL+ se mezclaron con LUV– en alto sal (gris) o PL0 se mezclaron con LUV– (negro). Tasa de síntesis de ATP se calculó como se explica en el texto (pasos 8.8 8.9). Haga clic aquí para ver una versión más grande de esta figura.
Discusión
A continuación algunas cuestiones deben considerarse para el éxito de este enfoque experimental:
Elección de carga de lípidos para bicapas de proteoliposomes y blanco: Los lípidos catiónicos no se encuentran en la naturaleza, mientras que los lípidos aniónicos son abundantes en las membranas biológicas, alcanzando, por ejemplo, ~ 25, 35 y 20% en la membrana interna de Escherichia coli, membrana del plasma de la levadura S. cerevisiaey las membranas mitocondriales internas de muchas especies, respectivamente27,28,29. Sería razonable esperar que la funcionalidad de las proteínas de membrana en PL+ puede verse afectada por la fuerza de una carga positiva de la bicapa, que a su vez dependen de un contenido relativo de lípidos catiónicos en la bicapa y externos iónico fuerza. Por lo tanto, es importante abordar experimentalmente hasta qué punto funcionalidad de proteínas de membrana de interés dependerá de la carga del medio ambiente de lípidos catiónicos. Aquí, mostramos que tanto F1Fo ATP sintasa y bo3-oxidasa son sensibles al entorno de lípidos catiónicos, pero hemos conseguido modular y neutralizar este efecto primero colocando las proteínas en PL+ y entrega de los mismos en aniónicos bicapas de aceptar y luego aumentando la fuerza iónica del medio de reacción después de la fusión se acaba.
Elección de un lípido catiónico particular: Más lípidos catiónicos disponibles comercialmente son triacylglyceride no; por lo tanto, debe probarse un lípido candidato potencial para la compatibilidad con las proteínas de membrana de interés. Anteriormente encontramos15 que la ATP Sintetasa utilizada en este estudio mostraron que su mejor desempeño en PL+ formado de etilo-PC, que cuenta con la mayor similitud estructural a los lípidos naturales triacylglyceride, mientras de DOTAP (triacylglyceride no lípido) PL+ esta proteína era menos activa.
Ensayos de fusión de vesícula: Fusión de la vesícula true (cuando el contenido líquido intravesicular de la mezcla) debe ser distinguido de Estados intermedios de hemi-fusion, cuando las vesículas se adhieren uno al otro sin mezclar su contenido acuoso, pero mezclan fácilmente el contenido de su externo o ambos lípidos foliolos de30. En caso de mezclas de lípidos subóptima o ciertas condiciones, las vesículas también demuestran pronunciadas fugas de contenido líquido en fusión31. Concentraciones mínimas de lípidos cargados en mezclas fusogénicas que verdadera fusión necesitan ser encontrado experimentalmente para cada especie de lípidos, pero en general, se encuentra que las membranas con menos del 10% cargado lípidos son prestados no fusogénicas 32.
Mientras se forma fusogénicas SUV en presencia de iones de multi-valent, es importante no mezclar componentes opuesto cargados, ya que puede causar aglutinación inmediata y agregación de lípidos por estos iones. Por ejemplo, mientras se preparaba el SUV para el método de cobalto-calceína-EDTA, es importante evitar la mezcla de una mezcla de lípidos catiónicos con EDTA para prevenir la obstrucción del filtro de policarbonato por componentes agrupados.
También es importante mencionar que el método de cobalto-calceína-EDTA, siendo muy sensible y conveniente para el control de la fusión en tiempo real, puede subestimar todavía el grado de fusión debido a 1) self-amortiguamiento de la fluorescencia de calceína libre dentro postfusion las vesículas, que se espera que alcance 1 mM, mientras que el umbral de auto enfriamiento se divulga para ser alrededor 20 μm33y 2) superficie-limita cobalto-calceína, que sigue siendo límite a SUV+ incluso después de pasar por la resina de gel filtración y colores de vesículas a un color naranja brillante, mientras que los SUV0 tienen un color naranja pálido. También tenga en cuenta que liberación de lo consolidado calceína de cobalto sobre adición de detergente Triton X-100 en presencia de EDTA genera señales mucho más fuertes para SUV+ (figura 3, rastro rojo) que SUV0 (trazo en gris).
Perspectivas: esperamos que los enfoques fast descritos aquí mucho pueden facilitar y acelerar el montaje de membranas complejas para las necesidades de las nuevas aplicaciones de la biología sintética. Nuestro protocolo de reconstitución de la proteína de membrana toma sólo media hora para la reconstitución de proteínas de membrana grande frágiles conocidos por ser sensibles a las técnicas de reconstitución basado en diálisis largas, mientras que este enfoque fusogénicas toma solamente 5-10 minutos para entregar tales proteínas en bicapas de lípidos grandes. Aquí, demostramos las ventajas de estos enfoques mediante la manipulación de e. coli F1Fo ATP sintasa, que es un ejemplo de una proteína frágil. Se hace 23 de subunidades y se conoce fácilmente perder su integridad si se exponen a condiciones subóptimas (por ejemplo, calor) durante y después de solubilización, pero se utiliza en estos procedimientos, la proteína muestra reproducible alta actividad en el bombeo de protones.
Divulgaciones
Los autores no tienen nada que revelar.
Agradecimientos
Autores están agradecidos a Robert Gennis en Universidad de Illinois y Christoph von Ballmoos desde Universidad de Berna por un plásmido y un esfuerzo para expresar bo3-oxidasa. El proyecto fue apoyado por el BBSRC conceder BB/L01985X/1 a las R.I. y R.B.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Lípido neutro DOPC | Lípidos Avanti | 850375 | |
| Lípido aniónico POPA | Lípidos Avanti | 840857 | |
| Lípido catiónico E-PC | Lípidos Avanti | 890704 | |
| Colesteril-Bodipy-FL12 | Thermofisher | C3927MP | |
| Sephadex G-50, Super Fine | Sigma | G5050 | |
| Ficoll 400, Tipo 400-DL | Sigma | F8016 | |
| ACMA | Sigma | A5806 | |
| Nigericina | Sigma | N7143 | |
| ATP | Sigma | A26209 | |
| Q1 | Sigma | C7956 | |
| DTT | Sigma | D0632 | |
| PEP | Sigma | 860077 | |
| NADH | Sigma | N8129 | |
| PK | Sigma | P9136-1KU | |
| LDH | Sigma | L1254-1KU | |
| Luciferina | Sigma | L6882 | |
| Luciferasa | Sigma/Roche | 10411523001 | |
| Calcein | Insight Biotechnology | sc-202090 | |
| CoCl2 | Sigma | C8661 | |
| EDTA | Sigma | E6758 | |
| Sulforhodamina 101 | Sigma | S7635 | |
| Sistema de extrusión | Extrusora | ||
| Avanti Luminómetro monotubo, modelo Sirius L | Titertek Berthold | ||
| Filtro de policarbonato, D19 mm | Sigma, Whatman NucleporeMembranas grabadas en pista | WHA800309, WHA800284 | 100 o 200 nm para formar SUV, y 400 o 800 nm para LUV |
| Name | Company | Número de catálogo | >Comments |
| >Buffers utilizados en el papel | |||
| Buffer A | 100 mM KCl, 50 mM MOPS pH 7.4, 1 mM MgCl2 | ||
| Buffer B | 20 mM KCl, 10 mM MOPS pH 7,4, 0,1 mM MgCl2 | ||
| tampón C | 100 mM KCl, 10 mM MOPS pH 7,4 | ||
| Tampón D | 1 mM MOPS pH 7,4 Varias concentraciones de KCl |
Referencias
- Rigaud, J. L., Levy, D. Reconstitution of membrane proteins into liposomes. Liposomes, Pt B. 372, 65-86 (2003).
- Johnson, M., et al. Two-dimensional crystallization of membrane proteins by reconstitution through dialysis. Methods Mol Biol. 955 (31-58), 31(2013).
- Dezi, M., et al. Detergent-mediated incorporation of transmembrane proteins in giant unilamellar vesicles with controlled physiological contents. Proc Nat Acad Sci U S A. 110 (18), 7276-7281 (2013).
- Girard, P., et al. A new method for the reconstitution of membrane proteins into giant unilamellar vesicles. Biophys J. 87 (1), 419-429 (2004).
- Angelova, M., et al. Preparation of Giant Vesicles by External Ac Electric-Fields - Kinetics and Applications. Trends in Colloid and Interface Science Vi. 89, 127-131 (1992).
- Leptihn, S., et al. Constructing droplet interface bilayers from the contact of aqueous droplets in oil. Nature Protocols. 8 (6), 1048-1057 (2013).
- Villar, G., Graham, A. D., Bayley, H. A Tissue-Like Printed Material. Science. 340 (6128), 48-52 (2013).
- Khalil, A. S., Collins, J. J. Synthetic biology: applications come of age. Nat Rev Genet. 11 (5), 367-379 (2010).
- Smith, M. T., Wilding, K. M., Hunt, J. M., Bennett, A. M., Bundy, B. C. The emerging age of cell-free synthetic biology. FEBS Lett. 588 (17), 2755-2761 (2014).
- Church, G., et al. Realizing the potential of synthetic biology. Nat Rev Mol Cell Biol. 15 (4), 289-294 (2014).
- Gao, Y., et al. Single reconstituted neuronal SNARE complexes zipper in three distinct stages. Science. 337 (6100), 1340-1343 (2012).
- Nordlund, G., Brzezinski, P., von Ballmoos, C. SNARE-fusion mediated insertion of membrane proteins into native and artificial membranes. Nat Commun. 5, 4303(2014).
- Decout, A., et al. Enhanced efficiency of a targeted fusogenic peptide. Biochimica Et Biophysica Acta-Biomembranes. 1372 (1), 102-116 (1998).
- Chan, Y. H., van Lengerich, B., Boxer, S. G. Effects of linker sequences on vesicle fusion mediated by lipid-anchored DNA oligonucleotides. Proc Natl Acad Sci U S A. 106 (4), 979-984 (2009).
- Ishmukhametov, R. R., Russell, A. N., Berry, R. M. A modular platform for one-step assembly of multi-component membrane systems by fusion of charged proteoliposomes. Nat Commun. 7, 13025(2016).
- Biner, O., et al. Delivery of membrane proteins into small and giant unilamellar vesicles by charge-mediated fusion. FEBS Lett. 590 (14), 2051-2062 (2016).
- Bian, T., et al. Direct detection of SERCA calcium transport and small-molecule inhibition in giant unilamellar vesicles. Biochem Biophys Res Commun. 481 (3-4), 206-211 (2016).
- Schuette, C. G., et al. Determinants of liposome fusion mediated by synaptic SNARE proteins. Proc Natl Acad Sci U S A. 101 (9), 2858-2863 (2004).
- Spencer, A. C., Torre, P., Mansy, S. S. The encapsulation of cell-free transcription and translation machinery in vesicles for the construction of cellular mimics. J Vis Exp. (80), e51304(2013).
- Verchere, A., et al. In vitro investigation of the MexAB efflux pump from Pseudomonas aeruginosa. J Vis Exp. (84), e50894(2014).
- Kaplan, R. S., Pedersen, P. L. Determination of Microgram Quantities of Protein in the Presence of Milligram Levels of Lipid with Amido Black B-10. Analytical Biochemistry. 150 (1), 97-104 (1985).
- Rumbley, J., et al. One-step purification of histidine-tagged cytochrome bo3 from Escherichia coli and demonstration that associated quinone is not required for the structural integrity of the oxidase. Biochim Biophys Acta. 1340 (1), 131-142 (1997).
- Taussky, H. H., Shorr, E. A Microcolorimetric Method for the Determination of Inorganic Phosphorus. Journal of Biological Chemistry. 202 (2), 675-685 (1953).
- Galkin, M. A., Ishmukhametov, R. R., Vik, S. B. A functionally inactive, cold-stabilized form of the Escherichia coli F1Fo ATP synthase. Biochimica Et Biophysica Acta-Bioenergetics. 1757 (3), 206-214 (2006).
- Ishmukhametov, R. R., Galkin, M. A., Vik, S. B. Ultrafast purification and reconstitution of His-tagged cysteine-less Escherichia coli F1Fo ATP synthase. Biochim Biophys Acta. 1706 (1-2), 110-116 (2005).
- Wiedenmann, A., Dimroth, P., von Ballmoos, C. Deltapsi and DeltapH are equivalent driving forces for proton transport through isolated F(0) complexes of ATP synthases. Biochim Biophys Acta. 1777 (10), 1301-1310 (2008).
- Morein, S., et al. Wild-type Escherichia coli cells regulate the membrane lipid composition in a "window" between gel and non-lamellar structures. J Biol Chem. 271 (12), 6801-6809 (1996).
- Zinser, E., et al. Phospholipid synthesis and lipid composition of subcellular membranes in the unicellular eukaryote Saccharomyces cerevisiae. J Bacteriol. 173 (6), 2026-2034 (1991).
- Daum, G., Vance, J. E. Import of lipids into mitochondria. Prog Lipid Res. 36 (2-3), 103-130 (1997).
- Pantazatos, D. P., MacDonald, R. C. Directly observed membrane fusion between oppositely charged phospholipid bilayers. J Membr Biol. 170 (1), 27-38 (1999).
- Pantazatos, D. P., Pantazatos, S. P., MacDonald, R. C. Bilayer mixing, fusion, and lysis following the interaction of populations of cationic and anionic phospholipid bilayer vesicles. J Membr Biol. 194 (2), 129-139 (2003).
- Sunami, T., et al. Detection of association and fusion of giant vesicles using a fluorescence-activated cell sorter. Langmuir. 26 (19), 15098-15103 (2010).
- Memoli, A., et al. Effects of surfactants on the spectral behaviour of calcein (II): a method of evaluation. J Pharm Biomed Anal. 19 (3-4), 627-632 (1999).
Reimpresiones y permisos
