Este manuscrito describe el uso de reporteros fluorógenos genéticamente codificados en una aplicación de imágenes de células vivas para el examen de estrés oxidativo inducido por xenobióticos. Este enfoque experimental ofrece inigualable resolución espaciotemporal, la sensibilidad y especificidad evitando muchas de las deficiencias de los métodos convencionales usados para la detección de estrés oxidativo toxicológica.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de método
Enfoques de evaluación de estrés oxidativo toxicológico mediante sensores codificados genéticamente fluorógenos la proyección de imagen
En este artículo
Resumen
Resumen
Mientras que el estrés oxidativo es un mecanismo toxicológico comúnmente citado, los métodos convencionales de estudio sufren una serie de deficiencias, incluyendo la destrucción de la muestra, introducción de posibles artefactos y la falta de especificidad para el reactivo especies implicadas. Por lo tanto, es una necesidad actual en el campo de la toxicología de métodos no destructivos, sensibles y específicos que puede ser utilizado para observar y cuantificar las perturbaciones redox intracelular, más comúnmente contempladas como estrés oxidativo. Aquí, presentamos un método para el uso de dos sensores fluorógenos codificado genéticamente, roGFP2 y HyPer, para ser utilizado en estudios de imágenes de células vivas para observar respuesta oxidativa inducida por xenobióticos. roGFP2 se equilibra con el potencial redox glutatión (GSHde E), mientras que el HyPer detecta directamente el peróxido de hidrógeno (H2O2). Ambos sensores pueden ser expresadas en varios tipos de células mediante transfección o transducción y pueden ser dirigidas a compartimentos celulares específicos. Lo más importante, microscopía de células vivas usando estos sensores ofrece alta resolución espacial y temporal que no es posible usando métodos convencionales. Cambios en la intensidad de fluorescencia controlados a 510 nm sirve como lectura para ambos sensores codificados genéticamente fluorógenos cuando excitados secuencialmente por 404 nm y 488 nm luz. Esta propiedad hace que ambos radiométrica de los sensores, eliminando artefactos comunes de microscopia y corregir las diferencias en la expresión del sensor entre las células. Esta metodología se puede aplicar en una variedad de plataformas fluorométrica capaces de emocionantes y que recoge las emisiones en las longitudes de onda prescritas, lo que es conveniente para el uso con sistemas de proyección de imagen confocales y microscopía de amplio campo convencional placa lectores. Ambos sensores fluorógenos genéticamente codificados se han utilizado en una variedad de tipos de células y estudios toxicológicos para monitorear celulares EGSH y H2O2 generación en tiempo real. Se describe aquí es un método estandarizado que es ampliamente adaptable fluorométrica plataformas para la aplicación de roGFP2 y HyPer en la evaluación toxicológica de células vivas de estrés oxidativo y tipos de la célula.
Introducción
Sin embargo, el término "estrés oxidativo" es citado con frecuencia como un mecanismo en toxicología, rara vez es este término se describe específicamente. El estrés oxidativo puede referirse a varios procesos intracelulares, incluyendo generación de especies reactivas del oxígeno, daño causado por los radicales libres, la oxidación de moléculas antioxidantes, y las cascadas de incluso la activación de la señalización específica. Una amplia gama de contaminantes ambientales1,2 y3,de agentes farmacéuticos4 se han documentado para inducir estrés oxidativo por cualquier acción directa del compuesto xenobiótico sí mismo5 ,6 o secundariamente por la producción de especies oxidantes como parte de una respuesta celular7,8,9,10. Por lo tanto es de gran interés en toxicología precisa observar y caracterizar los procesos oxidativos que conducen a resultados adversos. Los métodos convencionales de medición de estrés oxidativo incluyen identificación de biomoléculas oxidado11,12,13,14,15 o antioxidantes16 ,17,18,19,20, o la medición directa de las especies reactivas se21,22,23, 24. Sin embargo, estos métodos requieren típicamente trastornos celulares, que a menudo consume la muestra, elimina la resolución espacial y potencialmente introduce artefactos25. El desarrollo de métodos más sensibles y específicos para la detección de especies antioxidantes y marcadores de estrés oxidativo es ampliamente aplicable a la investigación de los efectos adversos de la exposición xenobiótico.
Microscopía de células vivas usando una nueva generación de sensores codificados genéticamente fluorógenos ha surgido como una poderosa herramienta para monitorear el estado redox intracelular de las células vivas. Estos sensores se expresan normalmente usando un vector bajo el control de un promotor viral que se introduce a través de metodologías de la transfección o transducción. Eficiencia alta expresión no es necesaria, ya que las células que expresan el sensor fluorescente pueden ser fácilmente identificadas visualmente. Para la evaluación toxicológica, se observan las células que expresan estos sensores utilizando microscopía de fluorescencia están expuestos a los compuestos xenobióticos en tiempo real. Este diseño experimental permite mediciones repetidas en la misma célula, permitiendo que la base establecida de cada célula actuar como su propio control. La alta resolución temporal que brinda imágenes de células vivas es muy adecuada para la detección de eventos oxidativos, especialmente los que son modestos en magnitud o transitorio en naturaleza. Además de ser sensible y específico para sus moléculas blanco, la fluorescencia de algunos de estos sensores puede ser excitada con dos longitudes de onda de la luz. Este fenómeno permite la emisión fluorescente a expresarse como un cociente, que permite el discernimiento de los cambios de señal asociados con respuestas de auténtico sensor de ésos causados por artefactos tales como variaciones en la expresión de sensor, espesor de célula, lámpara intensidad, fotoblanqueo y la sensibilidad de la fluorescencia detector26. Otra ventaja del uso de sensores fluorógenos es que puede orientarse a compartimentos celulares específicos, creando un nivel de resolución espacial que es incomparable por métodos convencionales25,26,27.
Una gran familia de sensores codificados genéticamente basados en proteína fluorescente verde (GFP) se han desarrollado y caracterizado al informe sobre una amplia variedad de marcadores fisiológicos, incluyendo el pH, temperatura, concentraciones de calcio y la relación ATP/ADP25 ,28,29,30,31. Entre ellas, son sensores del potencial redox de glutatión (GSHde E) y peróxido de hidrógeno (H2O2). Mientras que estos sensores fueron desarrollados para aplicaciones en fisiología y biología redox, también han sido adaptados para el estudio de estrés oxidativo inducido por xenobióticos. Específicamente, el protocolo descrito aquí describe el uso de la roGFP2 de sensor EGSH y el H2O2 sensor HyPer.
roGFP2 informa sobre el potencial redox intracelular glutation reducido y oxidado (GSH/GSSG) a través de un relé de redox que implican reductasas (Grx) y glutatión peroxidasa (GPx) y glutatión reductasa (GR) (figura 1)25, 32 , 33. glutatión es la molécula predominante antioxidante celular y está presente principalmente en su forma reducida (GSH) en concentración milimolar en el citosol25,34. Mientras EGSH se ha ligado no a un resultado funcional, se reconoce como un importante indicador del estado oxidativo intracelular34. Un aumento relativamente pequeño en la concentración de GSSG se traduce en un aumento en EGSH que es detectable por roGFP2. Igualmente importante, seguimiento de EGSH usando roGFP2 durante exposiciones xenobióticos puede potencialmente revelar mucho sobre el mecanismo de acción en varios puntos en el relé de redox y desviación de caminos asociados, tales como el fosfato de pentosa (figura 1 )35. El segundo sensor aquí, HyPer, es un intracelular H2O2 punta de prueba derivada de la inserción de proteína fluorescente amarilla (YFP) en el dominio regulador de bacteriana H2O2-transcripción sensible factor de OxyR136. Aunque se ha previamente considerado un dañino oxígeno reactivo intermedio, H2O2 se está reconociendo cada vez más como una importante molécula de señalización intracelular bajo condiciones fisiológicas37, 38, lo que sugiere que existen funciones no reconocidas para H2O2 en toxicología, así. Por ejemplo, exceso H2O2 inducida por una exposición xenobiótico podría ser un precursor de la desregulación en la señalización celular o un cambio en la bioenergética.
Ambos sensores fluorógenos genéticamente codificados se han expresado en varias líneas celulares establecidas, incluyendo la línea celular de carcinoma epidérmico humano A431 y la línea de células epiteliales bronquiales humanas BEAS-2B, para observar los cambios en EGSH y H2 O2 en respuesta a una variedad de riesgos toxicológicos. Estos incluyen gases contaminantes (ozono35), componentes solubles de partículas (1,2 naftoquinona39,40 y zinc41) y nanopartículas de níquel (datos no publicados). Estos estudios representan sólo un pequeño subconjunto de las posibles aplicaciones de estos dos sensores. Teóricamente, cualquier tipo de célula que es capaz de recibir y expresar el ADN de estos sensores a través de técnicas de biología molecular convencionales puede ser utilizado para evaluar los efectos de los xenobióticos sospechadas de alterar el estado oxidativo celular. Hasta la fecha, uno o más de estos sensores se ha expresado en diversos procariotas y eucariotas, incluyendo varios mamíferos, planta, bacterias y levadura celular tipos25,26,36,42. La lectura EGSH y H2O2 sensores es un cambio en la intensidad de fluorescencia emitida a 510 nm en la excitación con luz nm 488 y 404. Este método es ampliamente adaptable plataformas fluorométrico, incluyendo varios tipos de microscopía (confocal y campo amplio) y los lectores de la placa. El método aquí presentado permite observación sensible y específica de intracelular deGSH de E y H2O2 sistemas toxicológicos in vitro .
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Protocolo
1. preparación de las células
Nota: Este procedimiento describe la transducción lentivirales de una línea celular inmortalizada (BEAS-2B; ATCC, Manassas, VA) para expresar el reportero deseado (roGFP2 o HyPer). Pueden utilizarse otras líneas/tipos de células o métodos de transferencia de genes, incluyendo transfección, como resultado un nivel de expresión del periodista adecuada para visualizar un número suficiente de células expresando su sensor por campo de visión (típicamente 5-10 células). Si utiliza métodos de transfección, el procedimiento debe realizarse en el plato que en última instancia, se utilizará el método de análisis (por ejemplo, transfectar las células en el mismo recipiente que se presentará al microscopio). Los pasos que se describen a continuación proporcionan detalles para la preparación de transducciones de la célula a realizar en una placa de cultivo celular 6-bien. Si este formato no es un tamaño adecuado para la aplicación deseada, otros recipientes pueden ser sustituidos.
- Cultivar células hasta aproximadamente 40-60% de confluencia en medios de crecimiento normal.
Nota: Este estudio utilizó la línea de células epiteliales bronquiales humanas, BEAS-2B, crecida en medio de crecimiento de queratinocitos (KGM). - Justo antes de transducción, sustituir los medios de crecimiento en las células con 500 μl de medio libre de suero que contiene la cantidad apropiada de virus, calculado por la fórmula:
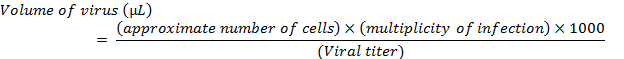
- Para la transducción de las células BEAS-2B, utilizar medio basal de queratinocitos sin suero (KBM) para reemplazar los medios de crecimiento KGM durante incubaciones virales.
Nota: El cálculo anterior es para una sola transducción de un pozo de células en un formato 6-bien. Si es necesario, realizar transducciones de varios pozos pueden realizarse mediante el ajuste de la fórmula con una multiplicación por el número de pozos a ser transduced. Para transducciones lentivirales, utilizar una multiplicidad de infección (MOI) entre 5 y 20. Para transducciones adenoviral, utilice un MOI entre 100 y 500.
- Para la transducción de las células BEAS-2B, utilizar medio basal de queratinocitos sin suero (KBM) para reemplazar los medios de crecimiento KGM durante incubaciones virales.
- Incubar las células con la mezcla de virus a 37 ° C durante 4 h, redistribución de las partículas virales en el plato de cada 30 a 60 minutos con una breve oscilación o movimiento de remolino.
- Añada 1 mL de medio de crecimiento completa al plato e incubar a 37 ° C para un adicional 4-16 h.
- Quite todos los medios y reemplácelo con medios de crecimiento completa fresca.
- Continuar a crecer y las células de paso, ampliar según sea necesario.
Nota: Celdas deberían comenzar expresar sensiblemente el sensor dentro de las 12-48 h. Si un vector lentivirales fue utilizado para la transducción de señales, expresión estable del sensor deseado debe continuar a través de pasajes. - Para evaluaciones basadas en microscopía, células de semilla en vidrio fondo platos de microscopio y crecen hasta confluencia deseada (≥70 - 80%) antes de la proyección de imagen.
Nota: Densidad de siembra dependerá del tamaño del plato, tasa de crecimiento de la línea celular que se utiliza y el tiempo de la evaluación después de siembra. Por ejemplo, la semilla 300.000 células BEAS-2B en una placa de 35 mm a aproximadamente 70-80% de confluencia después de 1 día de crecimiento.
2. microscopía montaje
Nota: El protocolo descrito a continuación se realiza usando un microscopio confocal equipado con líneas láser a 404 y 488 nm. Otros medios de hacer evaluaciones fluorométrica de los sensores descritos dentro de este protocolo en su excitaciones/emisión prescrito también deben generar datos viables. Lo importante, ajustes de equipo pueden variar grandemente dependiendo del tipo, edad y condición del instrumento siendo utilizado; así, los valores del instrumento mencionados pueden no ser específicos para el equipo utilizado en otros laboratorios.
- Realizar todos los análisis proyección de imagen usando controles ambientales para mantener una temperatura adecuada (por ejemplo, 37 ° C), humedad (típicamente > 95% de humedad relativa), o gas de concentración (por ejemplo, 5% CO2) adecuado para las células a lo largo de la duración del experimento.
- Si utiliza valores altos de humedad relativa, mantener las superficies que pueden entrar en contacto con la atmósfera humidificada (e.g., el objetivo de microscopio) o ligeramente por encima de la temperatura a la que la humedad se genera con el fin de evitar la condensación. Esto puede lograrse con el uso de un calentador objetivo o cinta y un control adecuado del calentador de la calefacción.
- Encender todos los componentes del microscopio y configurar todo el equipo necesario para la excitación secuencial a 488 y 404 nm con emisión a 510 nm. Asegúrese de que todos los componentes de la configuración óptica se establecen adecuadamente para la adquisición en tiempo real.
- Configurar una cámara ambiental de etapa superior para mantener la temperatura constante a 37 ° C, atmósfera de 5% CO2 , y > 95% de humedad. Antes de iniciar la adquisición de la imagen, equilibrar la cámara durante al menos 10 minutos después de la configuración inicial de todos los controles ambientales.
Nota: Las condiciones ambientales se pueden eliminar o ajustar en función de la longitud del experimento, tipo celular y la exposición se utiliza. - Coloque el plato de las células (paso 1.7) en la parte superior de la etapa dentro de la cámara ambiental.
- Con el objetivo deseado, encontrar el plano focal de células mediante el ocular y la luz blanca y asegúrese de morfología normal.
Nota: Un 1.4 NA 60 X violeta-corregida, objetivo inmerso en aceite es de uso general, que permita la identificación de compartimientos intracelulares mientras que maximiza la resolución óptica del sistema confocal. - Controlar la expresión de fluorescencia de las células en el campo de visión. Hacerlo mientras visualizas las células bajo iluminación de fluorescencia de campo amplio con un sistema de filtro apropiado, como el isotiocianato de fluoresceína (FITC). En este punto, utilizando iluminación de todo el campo mientras mira por el ocular es más conveniente porque es más fácil mover el plato para seleccionar un campo de estudio de las células. En general, elegir un campo de visión que contiene por lo menos 5 a 10 células que están expresando el sensor, como se indica por la fluorescencia verde.
- Por otra parte, realizar esta evaluación confocally con láser de excitación a una longitud de onda que es más compatible con el sensor se expresa (488 nm por lo general funciona mejor).
Nota: Debido a sus propiedades intrínsecas y fluorescentes, será más difícil de visualizar células expresando HyPer que ésos roGFP2 expresando con cualquiera FITC o a 488 nm. Sin embargo, todavía debería ser posible ver las células débiles.
- Por otra parte, realizar esta evaluación confocally con láser de excitación a una longitud de onda que es más compatible con el sensor se expresa (488 nm por lo general funciona mejor).
- Una vez se encuentra un campo de visión deseado, cierre el compartimiento ambiental.
Nota: Utilice la función de mantener la atención, a menudo disponible en los stands de microscopio avanzado, para facilitar el mantenimiento de un plano focal estable durante todo el estudio. - Configurar los parámetros de adquisición para asegurar una óptima evaluación del sensor de interés durante el período de exposición deseado. A continuación se presentan recomendaciones y estrategias para la proyección de imagen confocal de las respuestas del sensor:
- Ajustar la potencia del láser de excitación de 488 nm y emisión a 510 nm. Elegir un nivel de potencia del láser que permite la visualización de las células y mantener este constante entre muestras o platos repetidos.
Nota: Para este estudio, 12% y 1.5% energía fueron utilizados para el 404 y 488 nm láser líneas, respectivamente. - Utilice los controles de confocales del software de adquisición para asegurar que el plano focal seleccionado ha sido optimizado para la intensidad de emisión de fluorescencia máxima en el centro de las células (eje z) escaneando a 488 nm y ajustar el plano z. Esto se hace más fácil mediante el uso de un entorno de alta ganancia mientras buscaba por el plano z que produce en las células más sobreexpuestas. Una vez encontrado el plano focal adecuado, devolver la ganancia a una posición más óptima para la fluorescencia del reportero se utiliza sin oversaturating los píxeles que se observa.
Nota: La configuración de láser y ganancia que es apropiada para la búsqueda y observación de las células durante la experimentación es totalmente dependiente del sistema confocal se utiliza. En general, una vez que las células se han encontrado en el campo de visión, se recomienda que una cantidad mínima de energía del laser se utiliza (normalmente ≤20%), como la exploración excesiva de las células utilizando luz láser de alta potencia puede inducir oxidativos cambios detectables por el sensor. - Utilizar la ganancia para afinar la fluorescencia basal. Con roGFP2, establecer la línea de fondo cerca del límite superior (≈ 90% relativa de intensidad) del instrumento sin sobresaturación, como estas células pierden 510 fluorescencia nm inducida por 488 excitación nm cuando EGSH aumenta. Por el contrario, debe ser la intensidad de fluorescencia con excitación nm 488 baja (≈ 10% relativo de intensidad) en la línea de base para HyPer expresando las células, como estas células ganará intensidad de fluorescencia de 510 nm cuando se detecta el H2O2 .
- Repita los pasos 2.9.2 y 2.9.3 con excitación a 404 nm y emisión a 510 nm. Valores de ganancia para la longitud de onda de excitación nm 404 son frente a los que se utilizan con 488 excitación nm para cada sensor (es decir, fluorescencia basal baja (≈ 10% relativo de intensidad) a 404 nm para roGFP2, fluorescencia basal alta (≈ 90% relativa de intensidad) para el H2 Sensor de O2 ).
Nota: en general, la fluorescencia (emisión de 510) 404 excitación nm será considerablemente menor que con 488 excitación nm en células expresando roGFP2 y HyPer, como el 404 pico nm es una relativamente menor excitación máxima para ambos sensores.
- Ajustar la potencia del láser de excitación de 488 nm y emisión a 510 nm. Elegir un nivel de potencia del láser que permite la visualización de las células y mantener este constante entre muestras o platos repetidos.
3. adquisición de datos
- Configurar el software de adquisición para excitar secuencialmente las dos longitudes de onda de excitación (primer 488 nm y luego 404 nm) y recoger las emisiones para ambos a 510 nm en un intervalo de tiempo predeterminado a lo largo de la longitud deseada del experimento (por ejemplo, captura de imágenes cada 60 s de 60 minutos).
- También puede adquirir imágenes manualmente antes y después de las exposiciones si el calendario aproximado de los cambios en EGSH o H2O2 es conocido por los xenobióticos están probando. Sin embargo, esto puede llevar a la pérdida de resolución temporal.
- Para la evaluación en tiempo real de parámetros experimentales, elija al menos 5-10 células expresando por el sensor en el campo y establecer como regiones de interés ("ROIs") para controlar sus cambios de fluorescencia durante el experimento.
Nota: Este paso es opcional y puede realizarse después de la experiencia si la observación directa en tiempo real es indeseable o limitaciones de software prevenir que el monitoreo continuo. Dependiendo de la población de la célula, la selección del sensor expresando células como ROIs podría representar una gama de niveles de expresión a través de las células.- Para estos estudios, añadir las sustancias tóxicas ambiental 9,10-phenanthrenequinone (9, 10-PQ) o peróxido de hidrógeno (H2O2) después de un período inicial de 5 minutos.
- Preparar todos los reactivos para su uso posterior en el presente Protocolo. 9,10-PQ en dimetil sulfóxido (DMSO) a una concentración de 15 mM de disolver y diluir en células basales medios para producir una solución de trabajo de 250 μm. Además, preparar una solución de trabajo de peróxido de hidrógeno en el agua que dará una concentración final de 1mM a inyección.
- Una vez que se han definido los parámetros experimentales, comienza la adquisición del curso de tiempo. Establecer un período inicial de por lo menos 5 minutos (o 5 puntos de datos) antes de iniciar la exposición xenobióticos.
- Exponer las células a la sustancia tóxica investigado usando métodos convencionales para dosificación en vitro . Preparación de compuestos solubles en agua o en otro disolvente apropiado e inyectar directamente en los medios de comunicación.
- En caso de los solventes orgánicos (etanol o dimetil sulfóxido), mantener la concentración de solvente final en o por debajo de 0.1%. Verificar que el disolvente no produce un efecto sobre la producción de2 EGSH o H2O con un control del vehículo en un plato separado de las células.
- Para compuestos con menor solubilidad, agregue un paso mezcla usando una micropipeta en el protocolo después de la inyección. Bomba de exposiciones gaseosas directamente en la cámara ambiental mediante la mezcla de gas portador adecuado.
- Monitorear los cambios en la fluorescencia durante el período de exposición. Realizar las inyecciones posteriores según sea necesario. Tenga mucho cuidado de no cambiar el plato durante las inyecciones, para que las mismas células son seguidas durante todo el tiempo entero mientras que la reflejada en el mismo plano focal.
- Al final del experimento, exponer las células a los controles adecuados. Para ambos sensores codificados genéticamente fluorógenos, añadir concentraciones específicas de compuestos conocidos para oxidar y reducir estos sensores en una acentuada manifestación de su sensibilidad radiométrica. H2O2 y Ditiotreitol (DTT) sirven como controles apropiados para oxidar y reducir ambos sensores. Por lo general, una concentración final de 100-1.000 μm H2O2, seguido de 1-5 mM Ditiotreitol (DTT), le permite oxidar y reducir estos sensores.
- Para estos estudios, utilice 1 mM H2O2 seguido de 5 mM TDT para determinar la respuesta máxima del sensor.
- Espere al menos 5 minutos para permitir que el sensor responder y luego inyectar un agente reductor, como el TDT, para reducir al senor y volver a un nivel de fluorescencia en o cerca de su línea de base establecida.
Nota: El uso de controles en este paso es crucial para la normalización y debe realizarse al final de cada experimento para determinar el rango dinámico del sensor en cada célula. Para roGFP2, aldrithiol también se puede añadir al final del experimento. Aldrithiol puentea el relé de roGFP2 redox para oxidar directamente el sensor. Esto es útil para evaluar la función del sensor después de la exposición xenobiótico.
4. Análisis de datos
- Si aún no se ha establecido, dibujar ROIs alrededor de las células para su análisis. Utilizar el software apropiado para medir la intensidad de fluorescencia de cada ROI en cada longitud de onda en el transcurso del tiempo. Asegúrese de que las células no se mueve o la placa no cambio durante la ejecución.
Nota: El establecimiento de ROIs se logra más fácilmente dibujando una región cerrada que sigue el patrón de expresión fluorescente de cada célula. Para ayudar aún más en este proceso, una imagen de luz (o brightfield) transmisión de las células dentro del campo de visión establecido puede superponerse en la imagen fluorescente en los esfuerzos para definir los límites de la celda. Sin embargo, el uso de una imagen de luz transmitida requiere al usuario capturar un canal adicional (conjunto de imágenes) en el curso del experimento. Alternativamente, algunos fabricantes incorporan algoritmos en su software de imagen que utilizan parámetros específicos tales como umbrales de intensidad para establecer ROIs en un método más cuantitativo y menos subjetivo. - Exportar los datos a software de análisis deseado (por ejemplo, electrónica hoja de cálculo).
- Calcular la respuesta del sensor radiométrica de cada retorno de la inversión en cada momento mediante las fórmulas:
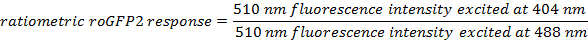
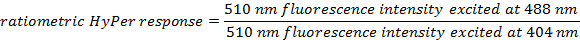
- Para cada punto del tiempo, un promedio de los valores proporcionales calculadas de los ROIs.
- Calcular el valor de la línea de base, que servirá para normalizar los datos, promediando los valores previamente calculados radiométrica (paso 4.4) percibidos antes de la adición de los xenobióticos (por ejemplo, los primeros puntos cinco veces).
- Normalizar los valores proporcionales de paso 4.4 dividiendo cada valor por el valor de referencia calculado en 4,5. Relaciones normalizadas se centran alrededor de un valor de 1 en base, mientras que aumenta en EGSH o H2O2 inyecciones siguientes hará que la relación aumentar. Evaluaciones de xenobióticos que inducen cambios oxidativos tienden a producir valores en un rango de 3 - 6 veces el valor basal.
- Para ayudar en la comparación de las respuestas dentro y a través de experimentos, expresar los datos normalizados como porcentaje de la respuesta máxima del sensor mediante la definición de la respuesta al oxidante de control (por ejemplo, 1 mM H2O2) como el 100%.
Nota: Si expresión de datos como un porcentaje de la respuesta máxima del sensor, es importante garantizar que la misma concentración de los oxidantes de control se utiliza constantemente a través de experimentos. Todos los datos derivados de análisis de imágenes de células vivas es susceptible de análisis estadístico convencional de pares y grupo a ser elegidos a la discreción del investigador.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Resultados
El uso de roGFP2 y HyPer en la detección de cambios en EGSH e intracelular H2O2 ha sido bien descrito previamente25,36,42,43 y se demuestra aquí. Imágenes confocales de células que expresan roGFP2 en la línea de base y la siguiente adición de H2O2 y TDT se muestran en la figura 2
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
El uso de roGFP2 y HyPer en la detección de cambios en el intracelular EGSH y H2O2, respectivamente, ha sido bien descrito en anteriores estudios fisiológicos y toxicológicas 25,35,36 ,39,40,41,42,43. El protocolo descrito ...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
La investigación descrita en este artículo ha sido revisada por el nacional de salud y laboratorios de investigación de efectos ambientales, Agencia de protección ambiental y aprobado para su publicación. El contenido de este artículo no debe ser interpretado para representar la política de la agencia, ni mención de nombres comerciales o productos comerciales constituye respaldo o recomendación para su uso.
Agradecimientos
Los autores desean agradecer a Katelyn Lavrich por asistencia con diseño experimental y edición del manuscrito.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Plásmido roGFP2 | Universidad de Oregón | N/A | Generosa donación de S.J. Remington |
| HyPer Plásmido | Evrogen | FP941 | |
| Peróxido de hidrógeno | Sigma Aldrich | H1009 | |
| Dithiothreitol | Sigma Aldrich | 10708984001 | |
| 9,10-Fenantrenequinona | Sigma Aldrich | 156507 | |
| Negro Platos de pared con fondo de vidrio | Ted Pella | 14029-20 | |
| Línea celular BEAS-2B | Colección de cultivo tipo americano | CRL-9609 | |
| Queratinocito Medio basal | Lonza | 192151 | |
| Medio de crecimiento de queratinocitos BulletKit | Lonza | 192060 | |
| Excel | Microsoft Office Suite | N/A | |
| NIS-Elements AR Software de imagen | Nikon | N/A | |
| Nikon C1si Sistema de imagen confocal | Nikon | N/A |
Referencias
- Cross, C. E., et al. Environmental oxidant pollutant effects on biologic systems: a focus on micronutrient antioxidant-oxidant interactions. Am J Respir Crit Care Med. 166, 44-50 (2002).
- Kobzik, L. Environmental particulate-mediated cytokine production in lung epithelial cells (A549): role of preexisting inflammation and oxidant stress. J Toxicol Environ Health. 55, 31-44 (1998).
- Jaeschke, H., McGill, M. R., Ramachandran, A. Oxidant stress, mitochondria, and cell death mechanisms in drug-induced liver injury: lessons learned from acetaminophen hepatotoxicity. Drug Metab Reviews. 44, 88-106 (2012).
- Wolf, M. B., Baynes, J. W. The anti-cancer drug, doxorubicin, causes oxidant stress-induced endothelial dysfunction. Biochim Biophys Acta. 1760, 267-271 (2006).
- Kumagai, Y., Shinkai, Y., Miura, T., Cho, A. K. The chemical biology of naphthoquinones and its environmental implications. Annu Rev Pharmacol Toxicol. 52, 221-247 (2012).
- Pham, H. T., Maccarone, A. T., Campbell, J. L., Mitchell, T. W., Blanksby, S. J. Ozone-induced dissociation of conjugated lipids reveals significant reaction rate enhancements and characteristic odd-electron product ions. J Am Soc Mass Spectrom. 24, 286-296 (2013).
- Abdel-Malek, Z. A., Kadekaro, A. L., Swope, V. B. Stepping up melanocytes to the challenge of UV exposure. Pigment Cell Melanoma Res. 23, 171-186 (2010).
- Berisha, H., Pakbaz, H., Absood, A., Foda, H., Said, S. Nitric oxide mediates oxidant tissue injury caused by paraquat and xanthine oxidase. Ann N Y Acad Sci. 723, 422-425 (1994).
- Gao, X., et al. Mitochondrial dysfunction may explain the cardiomyopathy of chronic iron overload. Free Radic Bio Med. 49, 401-407 (2010).
- Shukla, A., et al. Asbestos induces mitochondrial DNA damage and dysfunction linked to the development of apoptosis. Am J Physiol Lung Cell Mol Physiol. 285, 1018-1025 (2003).
- Charles, R., Jayawardhana, T., Eaton, P. Gel-based methods in redox proteomics. Biochim Biophys Acta. 1840, 830-837 (2014).
- Thornalley, P. J., Rabbani, N. Detection of oxidized and glycated proteins in clinical samples using mass spectrometry-a user's perspective. Biochim Biophys Acta. 1840, 818-829 (2014).
- Arato, S., Ito, H., Miyashita, K., Hayakawa, K., Itabashi, Y. A facile method for the detection of aldehydes in oxidized lipids using solid-phase microextraction fiber and gas chromatograph equipped with a septum-free injector. J Oleo Sci. 58, 17-22 (2009).
- Collins, A. R. Measuring oxidative damage to DNA and its repair with the comet assay. Biochim Biophys Acta. 1840, 794-800 (2014).
- Churg, A., Keeling, B., Gilks, B., Porter, S., Olive, P. Rat mesothelial and tracheal epithelial cells show equal DNA sensitivity to hydrogen peroxide-induced oxidant injury. Am J Physiol Lung Cell Mol Physiol. 268, 832-838 (1995).
- Fraga, C. G., Oteiza, P. I., Galleano, M. In vitro measurements and interpretation of total antioxidant capacity. Biochim Biophys Acta. 1840, 931-934 (2014).
- Niki, E., Noguchi, N. Evaluation of antioxidant capacity: what capacity is being measured by which method. IUBMB Life. 50, 323-329 (2000).
- Pharikal, K., Das, P., Dey, C., Dasgupta, S. Tissue ascorbate as a metabolic marker in cadmium toxicity. Int J Vitam Nut Res. 58, 306-311 (1987).
- Tabata, M., Totani, M., Murachi, T. A chemiluminometric method for NADPH and NADH using a two-enzyme bioreactor and its application to the determination of magnesium in serum. Biomed Chrom. 4, 123-127 (1990).
- Ballatori, N., et al. Glutathione dysregulation and the etiology and progression of human diseases. Biol Chem. 390, 191-214 (2009).
- Nauseef, W. M. Detection of superoxide anion and hydrogen peroxide production by cellular NADPH oxidases. Biochim Biophys Acta. 1840, 757-767 (2014).
- Hawkins, C. L., Davies, M. J. Detection and characterisation of radicals in biological materials using EPR methodology. Biochim Biophys Acta. 1840, 708-721 (2014).
- Kettle, A. J., et al. Measuring chlorine bleach in biology and medicine. Biochim Biophys Acta. 1840, 781-793 (2014).
- Carballal, S., Bartesaghi, S., Radi, R. Kinetic and mechanistic considerations to assess the biological fate of peroxynitrite. Biochim Biophys Acta. 1840, 768-780 (2014).
- Meyer, A. J., Dick, T. P. Fluorescent protein-based redox probes. Antioxid Redox Signal. 13, 621-650 (2010).
- Dooley, C. T., et al. Imaging dynamic redox changes in mammalian cells with green fluorescent protein indicators. J Biol Chem. 279, 22284-22293 (2004).
- Malinouski, M., Zhou, Y., Belousov, V. V., Hatfield, D. L., Gladyshev, V. N. Hydrogen peroxide probes directed to different cellular compartments. PloS One. 6, 14564(2011).
- Guzman, J. N., et al. Oxidant stress evoked by pacemaking in dopaminergic neurons is attenuated by DJ-1. Nature. 468, 696-700 (2010).
- Breckwoldt, M. O., et al. Multiparametric optical analysis of mitochondrial redox signals during neuronal physiology and pathology in vivo. Nat Med. 20, 555-560 (2014).
- Wolf, A. M., Nishimaki, K., Kamimura, N., Ohta, S. Real-time monitoring of oxidative stress in live mouse skin. J Invest Dermatol. 134, 1701-1709 (2014).
- Mishina, N. M., et al. Does cellular hydrogen peroxide diffuse or act locally. Antioxid Redox Signal. , (2011).
- Gutscher, M., et al. Real-time imaging of the intracellular glutathione redox potential. Nat Methods. 5, 553-559 (2008).
- Lohman, J. R., Remington, S. J. Development of a family of redox-sensitive green fluorescent protein indicators for use in relatively oxidizing subcellular environments. Biochem. 47, 8678-8688 (2008).
- Schafer, F. Q., Buettner, G. R. Redox environment of the cell as viewed through the redox state of the glutathione disulfide/glutathione couple. Free Radic Bio Med. 30, 1191-1212 (2001).
- Gibbs-Flournoy, E. A., Simmons, S. O., Bromberg, P. A., Dick, T. P., Samet, J. M. Monitoring intracellular redox changes in ozone-exposed airway epithelial cells. Environ Health Perspect. 121, 312(2013).
- Belousov, V. V., et al. Genetically encoded fluorescent indicator for intracellular hydrogen peroxide. Nat Methods. 3, 281-286 (2006).
- Wood, Z. A., Poole, L. B., Karplus, P. A. Peroxiredoxin evolution and the regulation of hydrogen peroxide signaling. Science. 300, 650-653 (2003).
- Sies, H. Role of Metabolic H2O2 Generation REDOX SIGNALING AND OXIDATIVE STRESS. J Biol Chem. 289, 8735-8741 (2014).
- Cheng, W. -Y., et al. Linking oxidative events to inflammatory and adaptive gene expression induced by exposure to an organic particulate matter component. Environ Health Perspect. 120, 267(2012).
- Cheng, W. -Y., et al. An integrated imaging approach to the study of oxidative stress generation by mitochondrial dysfunction in living cells. Environ Health Perspect. , 902-908 (2010).
- Wages, P. A., et al. Role of H 2 O 2 in the oxidative effects of zinc exposure in human airway epithelial cells. Redox Biol. 3, 47-55 (2014).
- Morgan, B., Sobotta, M. C., Dick, T. P. Measuring E GSH and H2O2 with roGFP2-based redox probes. Free Radic Bio Med. 51, 1943-1951 (2011).
- Schwarzländer, M., Dick, T. P., Meyer, A. J., Morgan, B. Dissecting redox biology using fluorescent protein sensors. Antiox Redox Signal. 24, 680-712 (2016).
- Wang, L., Atkinson, R., Arey, J. Formation of 9, 10-phenanthrenequinone by atmospheric gas-phase reactions of phenanthrene. Atmos Environ. 41, 2025-2035 (2007).
- Tantama, M., Hung, Y. P., Yellen, G. Imaging intracellular pH in live cells with a genetically encoded red fluorescent protein sensor. J Am Chem Soc. 133, 10034-10037 (2011).
- Matlashov, M. E., et al. Fluorescent ratiometric pH indicator SypHer2: applications in neuroscience and regenerative biology. Biochim Biophys Acta. 1850, 2318-2328 (2015).
- Hou, J. -T., et al. A highly selective water-soluble optical probe for endogenous peroxynitrite. Chem Commun. 50, 9947-9950 (2014).
- Kojima, H., et al. Detection and imaging of nitric oxide with novel fluorescent indicators: diaminofluoresceins. Anal Chem. 70, 2446-2453 (1998).
- Gabe, Y., Ueno, T., Urano, Y., Kojima, H., Nagano, T. Tunable design strategy for fluorescence probes based on 4-substituted BODIPY chromophore: improvement of highly sensitive fluorescence probe for nitric oxide. Anal Bioanal Chem. 386, 621-626 (2006).
- Garner, A. L., et al. Specific fluorogenic probes for ozone in biological and atmospheric samples. Nat Chem. 1, 316-321 (2009).
- Cheng, W. -Y., Larson, J. M., Samet, J. M. Monitoring intracellular oxidative events using dynamic spectral unmixing microscopy. Methods. 66, 345-352 (2014).
- Wages, P. A., Cheng, W. -Y., Gibbs-Flournoy, E., Samet, J. M. Live-cell imaging approaches for the investigation of xenobiotic-induced oxidant stress. Biochim Biophys Acta. 1860, 2802-2815 (2016).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Reimpresiones y permisos
