Aquí se presenta un protocolo para determinar el número de trompas y depredadores de insectos piratas minúsculos en cultivos a lo largo de múltiples fechas en experimentos de campo. También se ilustra cómo determinar la eficacia de las tácticas de gestión contra los thrips y evaluar los beneficios de la depredación por errores piratas minúsculos.
Artículo de método
Muestreo para la estimación de las especies de Frankliniella, los depredadores de las flores y los depredadores de especies de Orius en experimentos de campo
En este artículo
Resumen
Resumen
La flor occidental se thrips, Frankliniella occidentalis (Pergande), es una plaga polífaga que se ha extendido por todo el mundo. El uso extensivo de insecticidas en los intentos de controlar sus poblaciones elimina a los enemigos naturales y la competencia de las especies de frompas de flores, aumentando así sus poblaciones. Una situación insostenible se desarrolla con poblaciones de plagas resistentes concomitantes, brotes secundarios de plagas y degradación ambiental. La gestión integrada de plagas utiliza el conocimiento de las relaciones de plagas y enemigos naturales para implementar tácticas respetuosas con el medio ambiente y sostenibles. Los insectos piratas minuto son los depredadores mundiales más importantes de los thrips. Pueden suprimir y en última instancia controlar los trompas de flores de la especie Frankliniella. Las muestras de flores tomadas al menos una vez por semana son necesarias para entender la dinámica de las presas de los depredadores. Aquí se muestra el muestreo de las flores de las hortalizas y plantas de compañía para estimar las densidades de los trompas individuales y las especies de insectos piratas minúsculos. Los datos representativos ilustran cómo se utiliza el protocolo para determinar la eficacia de las tácticas de gestión a lo largo del tiempo y cómo evaluar los beneficios de la depredación por errores piratas minúsculos. El protocolo de muestreo es igualmente adaptable a los trompas de muestreo y a los insectos piratas minúsculos en otros huéspedes de especies vegetales.
Introducción
La flor occidental se thrips, Frankliniella occidentalis (Pergande), fue una de las primeras grandes plagas que se extendió por todo el mundo como resultado del globalismo y el comercio internacional de productos agrícolas. Los daños económicos se derivan directamente de la alimentación y la oviposición e indirectamente a través de la transmisión de virus patógenos de las plantas. Las poblaciones invasoras ya eran en gran medida resistentes a la mayoría de las clases de insecticidas, y los intentos de controlar las poblaciones con insecticidas sólo han aumentado el daño al eliminar a los enemigos naturales importantes y a las especies competidoras. Este enfoque de control ha desestabilizado los programas de gestión y ha dado lugar a poblaciones de plagas resistentes, brotes secundarios de plagas y degradación ambiental1.
Los programas integrados de manejo de plagas se han desarrollado a partir del conocimiento de las relaciones contra plagas y enemigos naturales y los efectos de las tácticas de gestión en estas relaciones. Durante mucho tiempo se ha creído que las características poblacionales de la rápida colonización y el crecimiento superan las capacidades de los enemigos naturales para regular los oportunistas trompas de flores occidentales; es decir, hasta que se demostró que la depredación de las poblaciones naturales de Orius insidiosus (Say)no sólo resultó en la supresión de las poblaciones de flores occidentales, sino también en una disminución de las poblaciones hacia la extinción 2. Además, la flor occidental es principalmente habitante de flores, en la que compite por polen y otros recursos florales con brotes de flores polífagas nativas.
En la mayor parte del este de los Estados Unidos, el principal competidor nativo es Frankliniella tritici (Fitch), mientras que en el sur de Florida la principal especie competidora es Frankliniella bispinosa (Morgan)3. El western flower thrips sufre fuerte resistencia biótica en Florida de las especies nativas de depredadores y especies de thrips de flores competidoras; sin embargo, es la especie dominante en hábitats perturbados por insecticidas y otras tácticas que excluyen los thrips de la competencia y los enemigos naturales. Por lo tanto, un componente central de los exitosos programas integrados de manejo de plagas para la fructia es el aumento de la depredación y la competencia3,4. Estos programas han sido desarrollados a partir del conocimiento de la dinámica de depredadores y presas y la eficacia de diversas tácticas para manejar los thrips y aumentar la resistencia biótica. Aquí, se muestra la metodología utilizada para estimar las densidades de los trompos individuales y las especies de insectos piratas minúsculos en las flores de frutas vegetales y plantas de compañía en Florida. Los datos se utilizan para determinar la eficacia de las tácticas de gestión y evaluar los beneficios de la depredación por errores piratas minúsculos.
Diseño del protocolo de muestreo de trompas de flores: información de fondo
Cuando la flor occidental se escapa como una plaga importanteen la década de 1980 5, fue necesario desarrollar procedimientos para determinar con precisión, eficiencia y precisión el número de especies individuales de talgotes en estudios de campo. Los procedimientos descritos aquí se han desarrollado a partir de los conocimientos adquiridos en numerosos estudios realizados para entender la biología y el manejo de los trompas de flores. Ejemplos de estos estudios incluyen el trabajo de Funderburk et al.2, Hansen et al.6, Salguero Navas et al.7, Sutherland et al.8, y Tyler-Julian et al.9. Las concentraciones de especies de Frankliniella y los insectos piratas minúsculos en las flores se basan de forma conductual y no es un artefacto de aplicaciones de insecticidas o muestreo6. Las estimaciones de las poblaciones en flores sobre otras partes de las plantas generalmente son suficientes para entender la dinámica local de los depredadores y presas de un huésped de la planta y evaluar los beneficios de los programas de control biológico basados en las proporciones de depredador a presa. Sin embargo, la metodología desarrollada para las flores puede adaptarse al muestreo de otras partes de la planta. La unidad de muestra habitual es una o más flores. El número de muestras necesarias para alcanzar el nivel deseado de precisión es una función de densidad de población y número de flores en la unidad de muestra.
Las especies de Frankliniella tienden a ser una distribución agregada en las flores, y las poblaciones generalmente se concentran en las flores del dosel superior de la planta7. Para la mayoría de los estudios, las flores se seleccionan aleatoriamente de la mitad superior de la planta. Las técnicas relativas para eliminar los goteos de las flores, incluyendo el lavado de líquidos, el desalojamiento mecánico o la desecación, son inexactas e imprecisas8. Por esta razón, se utiliza una técnica de conteo directo y estimación absoluta. Los tallos son pequeños organismos de unos 2 mm en Iength, y la microscopía generalmente es necesaria para determinar con precisión la especie. Las flores que constituyen una unidad de muestra se colocan en un vial de 70% de alcohol. Una vez recogidas las muestras, los viales de cada parcela se devuelven al laboratorio para la extracción de los trompas y errores piratas minúsculos y la determinación precisa del sexo, las especies y la etapa de cada uno. Los experimentos consisten en parcelas de campo replicadas que se utilizan para evaluar la eficacia de los tratamientos para suprimir los trompas y los beneficios de la depredación por errores piratas minúsculos. Las muestras de flores se toman al menos semanalmente durante el período de floración del huésped de la planta. Los diseños experimentales de bloques completos aleatorios son útiles para eliminar de las diferencias de error experimentales en thrips y densidades de errores piratas minúsculos entre bloques. Los arreglos de tratamiento de subparcelas son útiles para reducir los efectos intergráficos de las tácticas de gestión que afectan al movimientodelos talgotes 9.
Procesamiento y análisis de muestras florales: información de fondo
Antes de la década de 1990, las claves de las especies de thrips fueron desarrolladas para su uso por especialistas taxonómicos, que colocaron trompas para su identificación en diapositivas de microscopio utilizando uno de varios medios de montaje. Los investigadores que estudiaban la biología y el manejo de los thrips no eran especialistas taxonómicos, y no hubo participación de especialistas taxonómicos en los estudios. Típicamente, los tallos en las muestras de estos estudios se agruparon en los niveles de género, familia, suborden o orden de clasificación. Después de la propagación de los trompas de las flores occidentales, hubo 1) proliferación rápida de la investigación sobre la biología y el manejo de los thrips y 2) el reconocimiento por parte de los investigadores de la necesidad de identificar especies de talgotes y desarrollar un sistema eficiente para el procesamiento de muestras.
En estudios a mediados de la década de 1990 que involucraron la biología de la población de thrips, los trompas adultos de las muestras fueron colocados en diapositivas de microscopio e identificados a especies por el especialista taxonómico R. J. Beshear (por ejemplo, Salguero Navas et al.7). Las larvas sólo fueron identificadas para el género debido a la falta de claves de identificación larvales disponibles en ese momento. El montaje de la corredera fue costoso y laborioso, y se desarrolló un sistema más eficiente2. En estudios posteriores, los tallos en las muestras fueron extraídos de las flores en un plato de Petri que contiene 70% de alcohol, y los machos y hembras en la placa Petri fueron identificados a especies bajo estereoscopia. La mayor parte de nuestra investigación involucra especies de Frankliniella. Los adultos de estas especies fueron separados a especies bajo el estereoscopio utilizando diferencias en su chaetotaxy en la superficie dorsal del pronoto, cabeza, y antenas10,11,12.
Se ha adquirido experiencia adicional en taxonomía de thrips para reconocer e identificar otros géneros y especies de thrips en las muestras. Hay numerosas especies de Orius en todo el mundo que son importantes depredadores de los thrips. Dos especies, O. insidiosus y O. pumilio (Campeón), son simpátricas en gran parte de Florida13. Los adultos de estas especies están separados por características de color del segmento antenaso basal, fémora de la pata trasera y cuneus en el ala. Las especies y los géneros de Thrips difieren en su biología y comportamiento; por lo tanto, los datos de cada uno se analizan normalmente por separado. Debido a que las poblaciones de thrips en las flores tienen un patrón agregado de distribución, los datos necesitan transformación para estabilizar las varianzas entre los tratamientos. Las medias de tratamiento se comparan utilizando el análisis de la varianza según corresponda parael diseño experimental, y los datos se analizan para cada fecha individual y/o para los datos agrupados durante la fecha 2,9. El análisis de los efectos en fechas individuales es importante cuando las diferencias de tratamiento varían con respecto a la fecha. La proporción del total de talgotes (adultos y larvas) por minuto de insecto pirata (adultos y ninfas) se utiliza para evaluar la eficacia del control biológico con insectos piratas minúsculos en estudios de campo de Florida suprimiendo las poblaciones de thrips en una proporción de aproximadamente un depredador para cada 180 thrips2,9.
Protocolo
1. Experimento de campo para determinar los efectos del mantillo reflectante UV, caolín y plantas de compañía en las trompas de flores y su minúsculo depredador de insectos piratas
- Establecer un experimento de campo con un arreglo de tratamiento de parcela dividida en un diseño experimental de bloque completo aleatorizado con tipo de mantillo como tratamientos de parcela sin talar, caolín y sin caolín como tratamientos de subtrama, y plantas complementarias y sin plantas complementarias como plantas de compañía como tratamientos de subsubtrama (Figura1A,B)9,14.
- Bloques de diseño de tomates o pimienta de al menos 6 m de ancho y 72 m de largo.
- Aleatoriamente se encuentra en cada bloque parcelas enteras de mantillo negro y reflectante UV, con cada parcela entera que consta de seis camas de mantillo elevadas de al menos 36 m de largo.
- Plantar una fila lineal de tomates cada 45 cm o dos filas lineales de pimientos cada 30 cm en las cuatro camas internas de cada parcela entera.
- Tratamiento con caolín
- Divida aleatoriamente toda la parcela en subtramas iguales de caolín o sin tratamientos de caolín.
- Aplicar caolín una o dos veces por semana a una velocidad de 7,0 kg/ha a las plantas de tomate o pimienta en las subtramas asignadas para recibir tratamiento con caolín.
- Plantas de compañía
- Divida aleatoriamente cada subtrama en subtramas iguales de plantas de compañía o tratamientos de plantas no acompañantes.
- Plantar dos filas lineales de Bidens alba (L.) cada 30 cm o una fila lineal de Helianthus annuus L. cada 30 cm en los dos lechos exteriores de cada tratamiento de sub-subtrama con plantas de compañía.
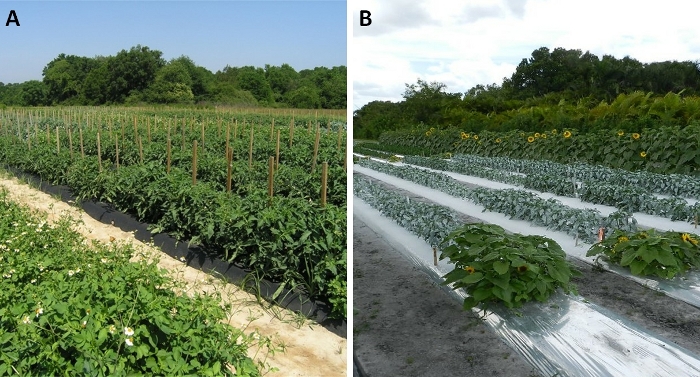
Figura 1: Ejemplo de estudio de campo experimental.
(A) Diseño de bloque completo aleatorio para evaluar los efectos separados e interactivos de las plantas de compañía, mantillo y efectos de caolín en trompas de flores y errores piratas minúsculos. (B) Bidens alba (L.) evaluado como especie vegetal complementaria con tomate como cultivo9. Helianthus annuus L. evaluado como una especie vegetal complementaria con pimienta como el cultivo14. Haga clic aquí para ver una versión más grande de esta figura.
2. Protocolo de muestreo de trompas de flores
- Prepare viales de muestra de 50 ml antes de ir a las parcelas experimentales.
- Coloque una etiqueta con el mantillo, el caolín y el tratamiento de la planta complementaria, el número de bloque y la fecha de la muestra en el exterior y en el interior de cada vial.
- Poner exactamente 30 ml de 70% de alcohol en cada vial de 50 ml.
- Coloque los viales en una bandeja.
- Lleve las bandejas al sitio de campo experimental.
- Pruebe las flores para los trompas y los insectos piratas minúsculos.
- Asigne aleatoriamente las plantas de tomate o pimienta que se muestrearán en cada subtrama.
- Muestra entre media mañana y media tarde.
- Tome las muestras de la mitad superior de la planta.
- Retire la tapa del vial. Con una maquinilla de afeitar o tijeras de filo afilado, retire cuidadosamente la flor de la planta. Coloque rápidamente la flor en el vial preetiquetado apropiado. Empuje la flor en el alcohol del vial (Figura 2). Vuelva a colocar la tapa.
- Recoger 10 flores por muestra. Asegúrese de que cada vial esté herméticamente sellado y, a continuación, agite cada vial para asegurarse de que las flores están dentro del alcohol.
- Devuelva las bandejas con muestras al laboratorio para su almacenamiento. Para garantizar que las muestras no se deterioren antes del procesamiento, mantenga las muestras frías y secas. Refrigere, si es posible, especialmente para muestras que no se procesan rápidamente.
- Repita el muestreo de cada subtrama al menos semanalmente durante el período de floración del cultivo.
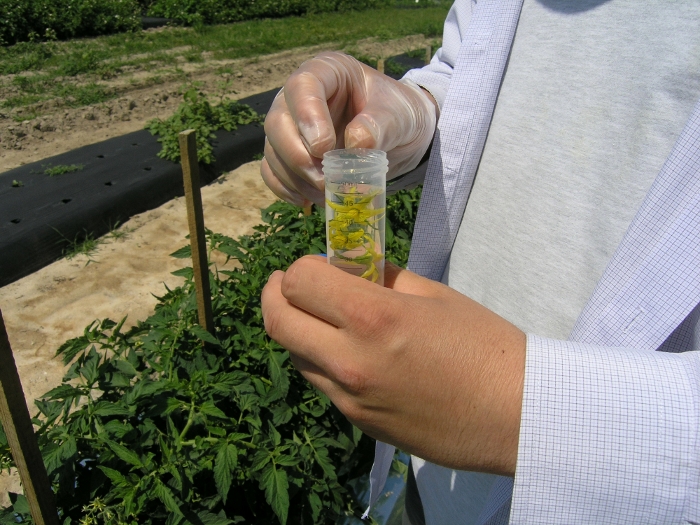
Figura 2: Técnica de eliminación de muestras.
Una muestra de 10 flores de tomate que se recogen de una parcela sub-sub en el experimento push-pull de tomate9. Haga clic aquí para ver una versión más grande de esta figura.
3. Procesamiento de muestras en el laboratorio
- Extrae los trompas y los bichos piratas minúsculos de las flores de cada muestra.
- Retire la muestra del refrigerador y de la bandeja sin alterar el contenido.
- Retire la tapa del vial y extraiga cuidadosamente con una pipeta cualquier exceso de alcohol por encima de las flores.
- Vuelva a sellar el vial y agitar para desalojar los trompas y los insectos piratas minúsculos en las flores.
- Abra el vial y vierta el contenido en un plato de Petri. Enjuague el interior del vial con un 70% de alcohol y vierta el contenido en la placa Petri. Asegúrese de que todos los trompas y errores piratas minúsculos en el vial se enjuagen en el plato Petri.
- Disecciona cada flor con fórceps y enjuaga con 70% de alcohol para asegurar que todos los goteos y los insectos piratas minúsculos se hayan desalojado. Retire y deseche las partes de las flores de la placa Petri (Figura3).
- Transfiera la placa Petri a la plataforma de un estereoscopio con aumento de 40x-150x.
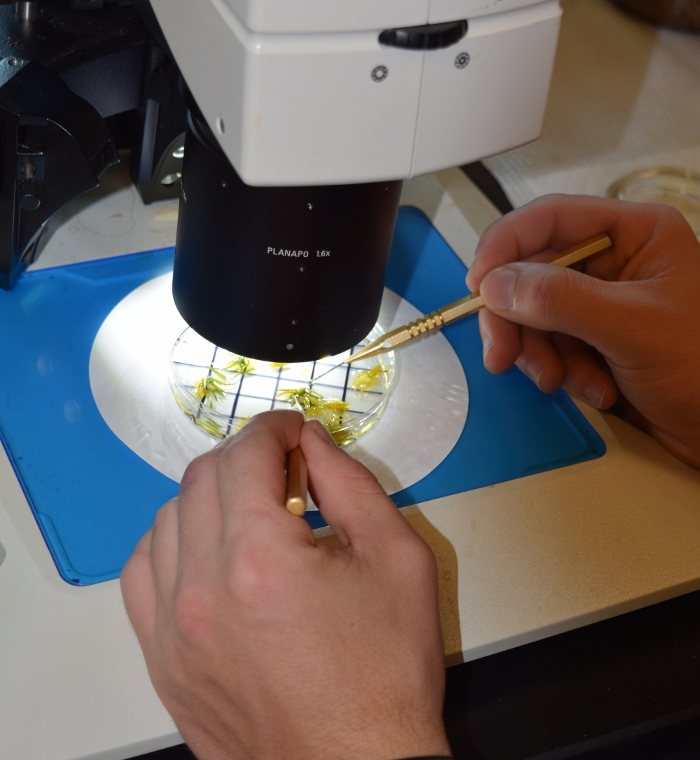
Figura 3: Extracción de trompas y errores piratas minúsculos de las flores.
Una muestra de 10 flores de tomate vertidas en un plato de Petri para su procesamiento para determinar el número de trompas y errores piratas minúsculos. Haga clic aquí para ver una versión más grande de esta figura.
- Identificar y contar los tallos de la flor en las muestras.
- Identificar y contar en cada cuadrícula el número de machos adultos y hembras de cada especie de flor thrips especies y el número de larvas de especies de Frankliniella.
- Identificar las especies adultas de thrips de flores en Florida a partir de las setas en el pronoto, cabeza y segundo segmento antenal10,11,12.
- Separar a los adultos de F. bispinosa de los adultos de F. tritici y F. occidentalis por la robustez adicional de las dos setas en el margen dorsal anterior del segundo segmento antenal (Figura4).
- Separar el adulto F. occidentalis de los de F. bispinosa y F. tritici por las longitudes casi iguales de las setas principales marginales anteriores y anteriores en el pronoto y por el cuarto postocular más largo en la cabeza ( Figura 4).
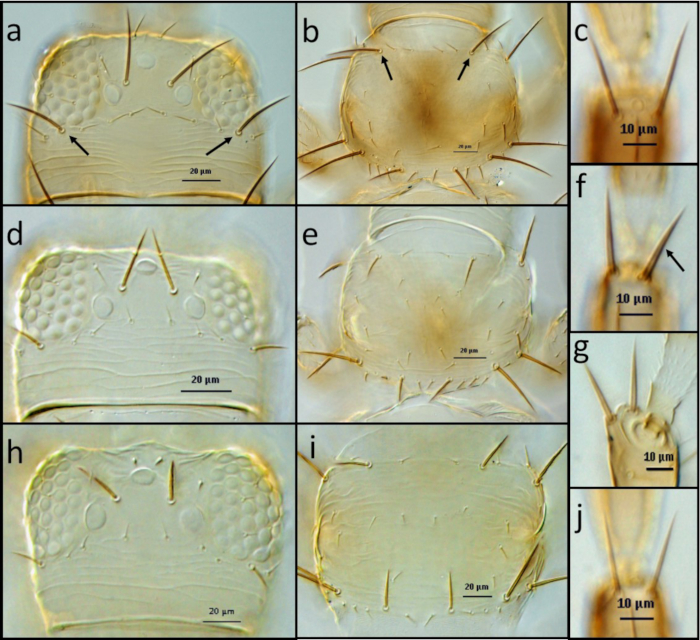
Figura 4: Ejemplos de caracteres morfológicos para identificar los thrips.
(A,B,C) F occidentalis: cabeza (A), las flechas indican setae postocular par IV; pronotum (B), las flechas indican par de setas anteromarginales largas; setas dorsales distales del segmento de antena II (B). (D,E,F,G) . F. bispinosa: cabeza (D); pronoto (E); Setas dorsales distales del segmento II de la antena (F,G), la flecha indica setae stout (F), vista lateral de setas de estout (G). (H,I,J). F. tritici: cabeza (H); pronoto (I); setas dorsales distales del segmento de antena II (J). Haga clic aquí para ver una versión más grande de esta figura.
- Identifique y cuente los errores piratas minúsmsos en las muestras de Florida.
- Identificar y contar en cada cuadrícula el número de adultos O. insidiosus y O. pumilio y el número de ninfómicos orius especie13,15.
- Identificar al o. insidiosus adulto por los segmentos de antena basal marrón, por el fémur que tiene marcas oscuras, y por el cuneus que es de color marrón oscuro.
- Identifique al adulto O. pumilio por los segmentos de antena basal amarillo, el femora amarillo o de color paja, y por el cuneus con pajita pálida o color marrón claro.
- Agregue los números de cada cuadrícula para determinar el número total de machos adultos y hembras de cada especie de trillos de flores, el número de larvas de especies de Frankliniella, el número de insectos piratas de minutos adultos de cada especie, y el número de ninfas piratas minúsculas en la muestra.
- Seleccione vales representativos de trompas de flores y adultos de insectos piratas minúsculos de las muestras. Etiqueta por fecha, anfitrión de la planta, ubicación y colector. Curapara su conservación a largo plazo.
- Transfiera los datos de cada muestra a una hoja de cálculo que incluya la fecha, el tratamiento y la replicación de la muestra.
- Cree un archivo de datos que contenga los datos de cada ejemplo. Incluya la ubicación experimental, el diseño experimental y las cantidades y fechas de cada práctica cultural utilizada para establecer y mantener el experimento.
- Mantenga y administre el archivo de datos con la copia de seguridad adecuada para el acceso a largo plazo.
Resultados
Los datos recogidos en el estudio por Tyler-Julian et al.9 se pueden utilizar para demostrar los efectos separados y combinados de los factores de empuje (es decir, aplicación de mantillo reflectante ultravioleta y caolín) y factor de tracción (es decir, la aguja española de la planta complementaria, B . alba) sobre la dinámica poblacional de F. occidentalis machos y hembras adultas en flores de tomate (Figura1A). Los tratamientos de mantillo de plástico agrícola en el experimento se utilizaron para formar el lecho del sistema de mantillo de plástico de lecho elevado que es típico del sistema de producción utilizado para cultivar verduras de alto valor en Florida. El mecanismo del mantillo reflectante ultravioleta en el control de plagas es una disuasión visual que interrumpe la búsqueda del huésped por los thrips adultos. La aplicación de caolín en las plantas de tomate también refleja suficiente luz ultravioleta para disuadir a los adultos. Por lo tanto, en el experimento se empleó un diseño de bloque completo aleatorizado de parcela dividida para reducir la interferencia entre trazas en el movimiento de los trompas resultante de las propiedades reflectantes ultravioletas de los tratamientos de mantillo y caolín, con mantillo tratamiento (reflectante ultravioleta frente a mantillo negro convencional) como toda la parcela, tratamiento de caolín (aplicación de caolín dos veces por semana frente a no caolin) como la subparcela, y tratamiento vegetal complementario (plantas de compañía frente a ningún compañero) como sub-subtrama. El tamaño de la subtrama era de seis camas por 9 m, con los cuatro lechos interiores de cada subtrama que consistían en una fila lineal de tomate con un espacio de 45 cm entre plantas, para un total de 80 plantas por subtrama. Se plantaron dos hileras de aguja española en cada uno de los dos lechos externos en las subtramas con la planta complementaria con un espacio de 30 cm dentro y entre filas para un total de 128 plantas complementarias por subtrama.
Se recogieron dos muestras de 10 flores de tomate en cada subtrama en cada una de las 13 fechas de 2011 durante el período de floración del cultivo de tomate, y se determinó el número de machos y hembras adultos F. occidentalis en cada muestra (Figura5). Los efectos del mantillo, el caolín y la planta complementaria en cada género se analizaron utilizando el análisis de la varianza para un diseño de bloque completo aleatorizado para una disposición de tratamiento de parcela dividida para los datos a través de la fecha de la muestra utilizando un modelo mixto (ver Tyler-Julian et al. 9 para una descripción completa del análisis de la varianza y los resultados). Los principales efectos del mantillo, el caolín y la planta complementaria fueron significativos para los trompas de flores occidentales machos (p < 0.01, 0.001 y 0.001, respectivamente), mientras que los efectos interactivos del mantillo X kaolin, la planta de compañero de mantillo X, el caolín X planta complementaria, y mantillo X kaolin X interacciones de plantas complementarias no fueron significativas (p > 0.05). Estos resultados mostraron que cada uno de los principales efectos redujo el número de machos adultos F. occidentalis,y que los efectos de cada táctica eran aditivos cuando se combinaban entre sí.
El efecto principal del mantillo fue significativo para la hembra F. occidentalis (p < 0.01), mientras que los efectos principales del caolín y las plantas complementarias no fueron significativos para la hembra F. occidentalis (p > 0.05). Por lo tanto, el mantillo reflectante ultravioleta redujo la hembra F. occidentalis en las flores de tomate, pero el caolín y la planta acompañante no. Sin embargo, la interacción del mantillo X kaolin fue significativa (p < 0.05) mostrando que los efectos combinados del mantillo reflectante ultravioleta y el caolín redujeron la hembra F. occidentalis más que cualquier táctica sola, mientras que el caolín se aplicaba a tomate en mantillo negro no redujo el número femenino de F. occidentalis. Los efectos interactivos de la planta de compañero de mantillo X, la planta de compañía de caolín X y las interacciones de la planta de compañía de kaolin X para f. occidentalis hembra no fueron significativos (p > 0.05).
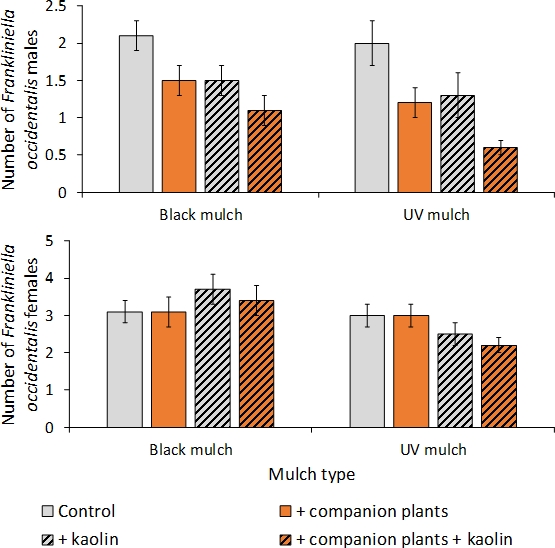
Figura 5: Ejemplo de análisis de datos a partir de la fecha de la muestra.
El número medio por cada 10 flores de tomate (SEM) de F. occidentalis macho y hembra adultos en mantillo, caolín y tratamientos de plantas complementarias para datos de muestra agrupados a lo largo de 13 fechas en 2011 en un experimento push-pull llevado a cabo en el condado de Gadsden, Florida. Esta cifra ha sido modificada de Tyler-Julian et al.9
La interacción de la fecha de muestra del mantillo X fue significativa en el experimento de 2011 para adultos F. occidentalis masculinos y femeninos (p < 0.01 y 0.001, respectivamente)9. Esto reveló que el mantillo reflectante ultravioleta redujo los números de las flores en algunas fechas de muestra, pero no todas. Por lo tanto, se realizaron análisis adicionales para evaluar los efectos del mantillo en fechas de muestra individuales. La interacción mostró que el mantillo reflectante ultravioleta fue eficaz en la reducción de los números de trompas de flores a principios de la temporada, pero no hubo importancia en las fechas de muestra individuales durante la temporada media o tardía (Figura6).
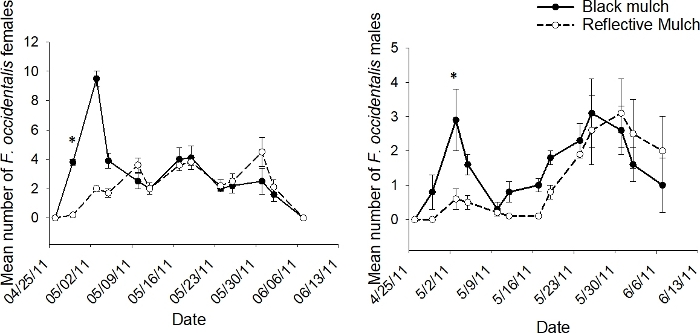
Figura 6: Ejemplo de dinámica poblacional para el tratamiento de parcelas enteras.
El número medio (+SEM) por 10 flores de tomate (n 18 muestras) de macho adulto y hembra F. occidentalis en cada fecha de muestra de 2011 en todo el tratamiento de la parcela de muleta reflectante negro y ultravioleta para los datos agrupados a través de caolín y planta de compañía tratamientos en los experimentos push-pull realizados en el condado de Gadsden, Florida (*indica significancia más allá del nivel de significancia del 95% de acuerdo con el análisis de la varianza realizada para fechas de muestra individuales; d.f. 1, 2). Esta cifra ha sido modificada de Tyler-Julian et al.9. Haga clic aquí para ver una versión más grande de esta figura.
La interacción de la fecha de muestra de caolín X no fue significativa en 2011 para F. occidentalis (p > 0,05)9. Como se ha mostrado anteriormente, los análisis de datos agrupados a lo largo de la fecha de la muestra revelaron que el caolín no afectó significativamente al número femenino de F. occidentalis, mientras que el número masculino de F. occidentalis se redujo significativamente. La falta de una interacción significativa de la fecha de muestra de caolín X en los análisis de datos agrupados a lo largo de la fecha de la muestra sugirió que los resultados de cada género fueron coherentes a lo largo de la fecha de la muestra (Figura7).
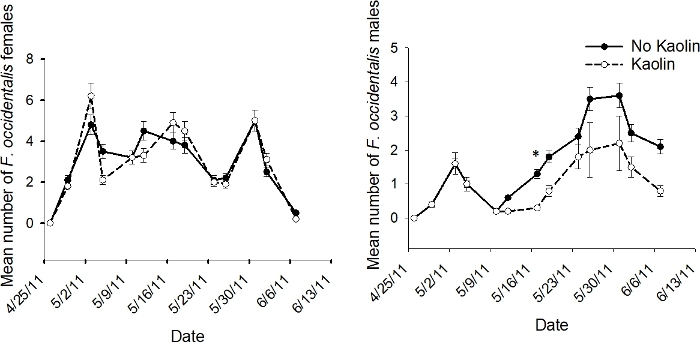
Figura 7: Ejemplo de dinámica poblacional para el tratamiento de la subtrama.
El número medio (+SEM) por cada 10 flores de tomate (n 12 muestras) de F. occidentalis macho y hembra adultos en cada fecha de muestra de 2011 en el tratamiento de la subtrama de caolín y no hay caolín para los datos agrupados a través de tratamientos de plantas complementarias en el push-pull experimentos realizados en el Condado de Gadsden, Florida (*indica significancia más allá del nivel de significancia del 95% de acuerdo con el análisis de la varianza realizada para fechas de muestra individuales; d.f. 1, 4). Esta cifra ha sido modificada de Tyler-Julian et al.9. Haga clic aquí para ver una versión más grande de esta figura.
La interacción de la fecha de muestra de la planta complementaria X fue significativa en 2011 para F. occidentalis macho (p< 0,05), pero no para F. occidentalis (p > 0,05) 9. Los análisis realizados para evaluar los efectos de la planta complementaria en fechas de muestra individuales revelaron que las plantas de compañía redujeron los números adultos de F. occidentalis en fechas de muestra de finales de temporada, pero nunca en fechas de muestra de temporada temprana o media (Figura8 ).
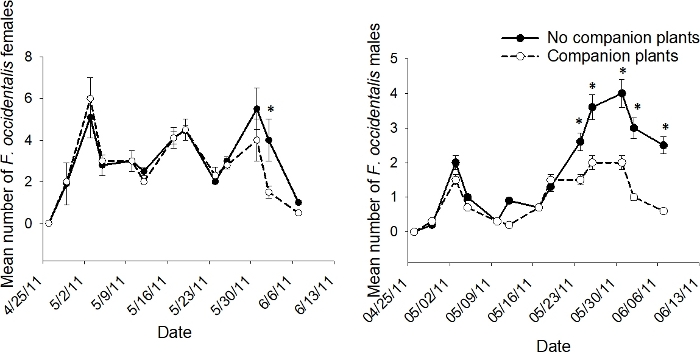
Figura 8: Ejemplo de dinámica poblacional para el tratamiento de subtramas.
El número medio (+SEM) por 10 flores de tomate (n 6 muestras) de macho adulto y hembra F. occidentalis en cada fecha de muestra de 2011 en el tratamiento de subsubtrama de la planta de compañía y ninguna planta de compañía en los experimentos push-pull llevados a cabo en Gadsden Condado de Florida (*indica significancia más allá del nivel de significancia del 95% de acuerdo con el análisis de la varianza realizada para fechas de muestra individuales; d.f. n.o 1, 8). Esta cifra ha sido modificada de Tyler-Julian et al.9. Haga clic aquí para ver una versión más grande de esta figura.
Los datos recogidos de las flores de la planta complementaria en el estudio de Tyler-Julian et al.14 se pueden utilizar para demostrar la relación dinámica entre los insectos piratas minúsculos y sus talgotes presa en las flores (Figura1B). Al igual que en el estudio Tyler-Julian et al. 9, los objetivos eran determinar los efectos separados y combinados de los factores de empuje (es decir, la aplicación de mantillo reflectante ultravioleta y caolín) y un factor de tracción (es decir, la planta complementaria), en la población dinámica de las especies de Frankliniella machos adultos y hembras en flores de cultivo. En el estudio Tyler-Julian et al.14, la especie predominante de thrips de flores fue F. bispinosa en la planta complementaria H. annuus y en el cultivo de pimienta (>99% del total de thrips en las flores). Los thrips colonizaron rápidamente los girasoles y las flores de pimienta, y sus números fueron mayores poco después de que comenzó la floración (Figura9). Las poblaciones de thrips disminuyeron con el tiempo a medida que aumentaba el número de errores piratas minúsculos. La relación depredador-presa ilustraba la capacidad del depredador para suprimir las poblaciones de trillos con casi la extinción de las poblaciones de thrips que ocurren en proporciones de >1 depredador por 40 thrips.
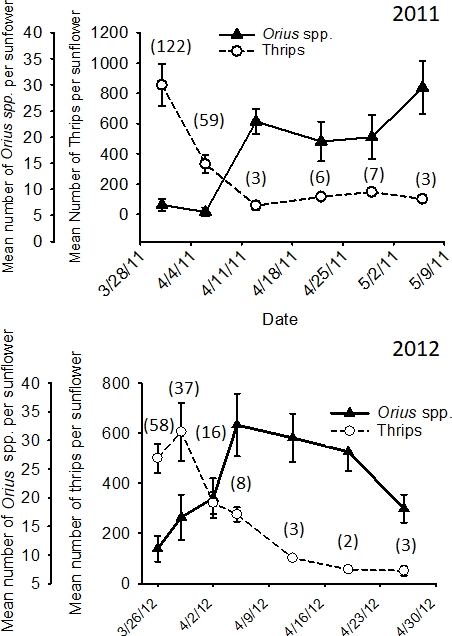
Figura 9: Ejemplo de evaluación de los beneficios de la depredación.
Número medio(+ SEM) de trompas totales (adultos y larvas) y orius spp. total (adultos y ninfas) por cabeza de flor de Helianthus annuus en experimentos realizados en 2011 y 2012 en el condado de Palm Beach, Florida (el número de presas de thrips totales por depredador en cada fecha mostrada entre paréntesis). Esta cifra ha sido adaptada de los datos reportados en Tyler-Julian et al.14 con permiso de Oxford University Press.
Discusión
Los protocolos de muestreo con los niveles deseados de precisión para estimar las densidades de población de los tallos de flores se desarrollaron para los cultivos de Florida a lo largo de más de tres décadas de investigación de campo. Se realizaron estudios para comprender aspectos importantes de la biología de los trompas de flores que afectan las estimaciones de la población. Por ejemplo, se realizaron estudios para comprender los efectos en las estimaciones de la hora del día al tomar muestras16,la ubicación de la muestra dentro del campo16,la ubicación de la muestra en plantas individuales6,16, patrones de agregación enflores 7, y color de la flor17. Se encontró que estos factores influyen en las estimaciones de la población; por lo tanto, las decisiones de dónde, cuándo y cómo son de vital importancia al diseñar el protocolo de muestreo en futuros estudios de investigación.
Los adultos y ninfas piratas minuto son muy antéfios, y el depredador se agrega con su presa de una manera dependiente de la densidad al preferir las mismas flores también preferidas por los thrips17. También explotan las señales de las presas o de las plantas dañadas por las presas en la localización de tallos. Los adultos se mueven rápidamente entre las flores, un comportamiento que mejora su capacidad para rastrear las poblaciones locales de las presas de los thrips en el espacio y el tiempo18. Por lo tanto, los protocolos de muestreo desarrollados para estimar las poblaciones de thrips deben utilizarse en estudios futuros al estimar poblaciones de insectos piratas minúsculos. Los insectos piratas minuto son depredadores eficientes de los adultos y larvas de diferentes especies de Frankliniella flores thrips19. El número del depredador en relación con el número de presas de trillos totales proporciona la mejor estimación de la capacidad de los insectos piratas minúsculos para suprimir y controlar las poblaciones mixtas de thrips en las flores. Esto debe tenerse en cuenta al analizar los datos en estudios futuros.
Los adultos de la especie Frankliniella colonizan rápidamente los cultivos anfitriones unavez que comienza la floración, y el rápido crecimiento de la población sigue en ausencia de mortalidad por enemigos naturales 2,18,19. En un buen anfitrión de plantas para depredadores y thrips presas como girasol, el número de thrips son mayores poco después de la iniciación de la flor, seguido por la disminución en las poblaciones como los insectos piratas minuto aumentan (Figura9). Las poblaciones de insectos piratas minúsculos permanecen a pesar de que los trompas están casi extintos. Para entender completamente esta relación dinámica depredador-presa, es necesario tomar muestras con frecuencia durante todo el período de floración del cultivo. Lo mismo es cierto cuando se investiga la eficacia de otros tipos de tácticas, ya que pueden ser eficaces en algunas fechas y no en otros. Una o dos veces por semana se empleó un muestreo semanal durante todo el período de floración para evaluar los efectos de múltiples tácticas en el sistema push-pull bajo investigación en Tyler-Julian et al.9,14.
Frankliniella es el segundo género más grande de la familia Thripidae, y hay una gran cantidad de literatura que describe las etapas de la vida adulta20. Un complejo de especies habita flores que es específica de diferentes especies anfitrionas de plantas y ubicaciones geográficas. Por lo tanto, la identificación experta de muestras preparadas para diapositivas a partir de un subconjunto de los muestreos iniciales es fundamental. Luego, en cualquier huésped de la planta y ubicación geográfica, se pueden elegir caracteres taxonómicos únicos de los adultos de cada especie para que la especie pueda ser determinada en estudios futuros sin pasar al laborioso y costoso procedimiento de colocar cada una en el microscopio diapositivas para su visualización bajo un microscopio compuesto. Simplemente se pueden ver e identificar bajo un estereoscopio. (En algunas situaciones inusuales, los caracteres morfológicos que separan dos especies son tan similares que no se pueden separar bajo el estereoscopio.) Los métodos descritos aquí para las especies de tallas de flores comunes en la mayoría de los cultivos en Florida deben adaptarse y utilizarse en otros lugares geográficos al procesar el gran número de muestras necesarias en estudios de campo para determinar la eficacia de las tácticas de gestión y para evaluar los beneficios de la depredación por errores piratas minúss.
Divulgaciones
Los autores no tienen nada que revelar.
Agradecimientos
El apoyo fue proporcionado por Specialty Crop Block Grants del Departamento de Agricultura y Servicios al Consumidor de Florida Números 01856 y 024049. El apoyo adicional provino de acuerdos de cooperación entre el USDA-ARS y la Universidad de Florida Numbers 58-6618-2-096 y 58-6618-4-035. Agradecemos a los estudiantes anteriores, posdoctorados y colaboradores que han contribuido de muchas maneras a nuestra investigación para entender los factores que afectan la dinámica poblacional de los tallos de flores.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Alcohol | : Cualquier fuente | : 70% etanol o isopropilo | |
| Tubo de centrífuga | Fisher Scientific Co. | 06-443-18 | Tapa plana y pinzas en bandeja |
| Fisher Scientific Co. | 08-885 | Arcilla | |
| caolín | Novasource | Surround WP | 95% caolín |
| Pipeta Pasteur | Fisher Scientific Co. | 13-678-6A | 5 ¾ placa de Petri desechable |
| de pulgadas Fisher Scientific Co. | FB0875711A | Con cuadrícula | |
| Sondas/buscadores | Fisher Scientific Co. | 08-995 | Bisturí de extremo doblado de 6 pulgadas |
| Fisher | Scientific Co. | 14-840-00 | Excel international |
| Microscopio estereoscópico | Leica Microsystems | Serie M | 40X y superior |
| Acolchado reflectante UV | Intergro | Metalizado |
Referencias
- Morse, J. G., Hoddle, M. S. Invasion biology of thrips. Annual Review of Entomology. 51, 67-89 (2006).
- Funderburk, J., Stavisky, J., Olson, S. Predation of Frankliniella occidentalis (Thysanoptera: Thripidae) in field peppers by Orius insidiosus (Hemiptera: Anthocoridae). Environmental Entomology. 29, 376-382 (2000).
- Funderburk, J., Frantz, G., Mellinger, C., Tyler-Julian, K., Srivastava, M. Biotic resistance limits the invasiveness of the western flower thrips, Frankliniella occidentalis (Thysanoptera: Thripidae), in Florida. Insect Science. 23, 175-182 (2016).
- Demirozer, O., Tyler-Julian, K., Funderburk, J., Leppla, N., Reitz, S. Frankliniella occidentalis (Pergande) integrated pest management programs for fruiting vegetables in Florida. Pest Management Science. 68, 1537-1545 (2012).
- Kirk, W. D. J., Terry, L. I. The spread of the western flower thrips Frankliniella occidentalis (Pergande). Agricultural and Forest Entomology. 5, 301-310 (2003).
- Hansen, E. A., et al. Within-plant distribution of Frankliniella species (Thysanoptera: Thripidae) and Orius insidiosus (Heteroptera: Anthocoridae) in field pepper. Environmental Entomology. 32, 1035-1044 (2003).
- Salguero Navas, V. E., Funderburk, J. E., Mack, T. P., Beshear, R. J., Olson, S. M. Aggregation indices and sample size curves for binomial sampling of flower-inhabiting Frankliniella species (Thysanoptera: Thripidae) on tomato. Journal of Economic Entomology. 87, 1622-1626 (1994).
- Sutherland, A. M., Parrella, M. P. Accuracy, precision, and economic efficiency for three methods of thrips (Thysanoptera: Thripidae) population density assessment. Journal of Economic Entomology. 104, 1323-1328 (2011).
- Tyler-Julian, K., Funderburk, J., Srivastava, M., Olson, S., Adkins, S. Evaluation of a push-pull system for the management of Frankliniella species (Thysanoptera: Thripidae) in tomato. Insects. 9, 187(2018).
- Arthurs, S. P., Kok-Yokomi, M. L., Smith, H. Florida flower thrips (suggested common name) Frankliniella bispinosa Morgan (Insecta: Thysanoptera: Thripidae). University of Florida, IFAS, EDIS Document EENY639. , (2018).
- Cluever, J. D., Smith, H. A., Funderburk, J. E., Frantz, G. Western flower thrips (Frankliniella occidentalis [Pergande). University of Florida, IFAS, EDIS Document ENY883. , (2018).
- Sprague, D., Funderburk, J., Lucky, A. Flower thrips, Frankliniella tritici (Fitch). University of Florida, IFAS, EDIS Document EENY720. , (2018).
- Herring, J. L. The genus Orius of the Western Hemisphere (Hemiptera: Anthocoridae). Annals of the Entomological Society of America. 59, 1093-1109 (1966).
- Tyler-Julian, K., Funderburk, J., Frantz, G., Mellinger, C. Evaluation of a push-pull strategy for the management of Frankliniella bispinosa (Thysanoptera: Thripidae) in bell pepper. Environmental Entomology. 43, 1364-1378 (2014).
- Shapiro, J. P., Shirk, P. D., Kelley, K., Lewis, T. M., Horton, D. R. Identity of two sympatric species of Orius (Hemiptera: Heteroptera: Anthocoridae). Journal of Insect Science. 10, 189(2010).
- Salguero Navas, V. E., Funderburk, J. E., Beshear, R. J., Olson, S. M., Mack, T. P. Seasonal patterns of Frankliniella spp. (Thysanoptera: Thripidae) in tomato flowers. Journal of Economic Entomology. 84, 1818-1822 (1991).
- Funderburk, C., et al. Population dynamics of Frankliniella bispinosa (Thysanoptera: Thripidae) and the predator Orius insidiosus (Hemiptera: Anthocoridae) as influenced by flower color of Lagerstroemia (Lythraceae). Environmental Entomology. 44, 668-679 (2015).
- Ramachandran, S., Funderburk, J. E., Stavisky, J., Olson, S. Population abundance and movement of Frankiliniella thrips and Orius insidiosus in field pepper. Agricultural and Forest Entomology. 3, 129-137 (2001).
- Baez, I., Reitz, S., Funderburk, J. Predation by Orius insidiosus (Heteroptera: Anthocoridae) on life stages and species of Frankliniella flower thrips (Thysanoptera: Thripidae) in pepper flowers. Environmental Entomology. 33, 662-670 (2004).
- Nakahara, S. Annotated list of the Frankliniella species of the world (Thysanoptera: Thripidae). Contributions on Entomology, International. 2, 355-389 (1997).
Reimpresiones y permisos
