Presentamos un novedoso dispositivo para medir las tasas de consumo de oxígeno (OCR) en cultivos epiteliales de pigmento de retina (EPR). El dispositivo puede medir el OCR durante semanas seguidas en RPE cultivado en placas de cultivo celular estándar con medios estándar mientras las placas están en una incubadora de cultivo celular estándar.
Artículo de método
Monitorización a largo plazo de las tasas de consumo de oxígeno en cultivos epiteliales de pigmento retiniano altamente diferenciados y polarizados
* These authors contributed equally
En este artículo
Resumen
Resumen
El metabolismo mitocondrial es fundamental para el funcionamiento normal del epitelio pigmentario de la retina (EPR), una monocapa de células de la retina importante para la supervivencia de los fotorreceptores. La disfunción mitocondrial del EPR es una característica distintiva de la degeneración macular asociada a la edad (DMAE), la principal causa de ceguera irreversible en el mundo desarrollado, y de la vitreorretinopatía proliferativa (RVP), una complicación cegadora de los desprendimientos de retina. Las condiciones degenerativas del EPR han sido bien modeladas por sistemas de cultivo de EPR que están altamente diferenciados y polarizados para imitar el EPR in vivo . Sin embargo, el monitoreo de las tasas de consumo de oxígeno (OCR), un indicador de la función mitocondrial, ha sido difícil en dichos sistemas de cultivo porque las condiciones que promueven la polarización y diferenciación ideal del RPE no permiten mediciones fáciles de OCR.
Aquí, presentamos un sistema novedoso, Resipher, para monitorear OCR durante semanas a la vez en cultivos de EPR bien diferenciados mientras se mantiene el EPR en sustratos de crecimiento óptimos y medios de cultivo fisiológicos en una incubadora de cultivo celular estándar. Este sistema calcula el OCR midiendo el gradiente de concentración de oxígeno presente en los medios por encima de las células. Discutimos las ventajas de este sistema sobre otros métodos para detectar OCR y cómo configurar el sistema para medir OCR en cultivos de RPE. Cubrimos consejos y trucos clave para usar el sistema, precaución sobre la interpretación de los datos y pautas para solucionar problemas de resultados inesperados.
También proporcionamos una calculadora en línea para extrapolar el nivel de hipoxia, normoxia o hiperoxia que experimentan los cultivos de RPE en función del gradiente de oxígeno en los medios por encima de las células detectadas por el sistema. Finalmente, revisamos dos aplicaciones del sistema, midiendo el estado metabólico de las células EPR en un modelo de PVR y entendiendo cómo el EPR se adapta metabólicamente a la hipoxia. Anticipamos que el uso de este sistema en cultivos de EPR altamente polarizados y diferenciados mejorará nuestra comprensión del metabolismo mitocondrial del EPR, tanto en estados fisiológicos como de enfermedad.
Introducción
El epitelio pigmentario de la retina (EPR) es una monocapa de células epiteliales funcionalmente postmitóticas altamente polarizadas que forman una barrera entre los fotorreceptores sensibles a la luz en la retina y su circulación sanguínea, un lecho capilar denominado coriocapilar. Al igual que el papel de las neuronas de soporte de la glía, el EPR lleva a cabo innumerables funciones para apoyar a los fotorreceptores, incluida la fagocitosis de los segmentos externos de los fotorreceptores, el transporte de nutrientes y el apoyo metabólico de los fotorreceptores, y la secreción de factores de crecimiento esenciales, todos críticos para mantener la función visual.
La degeneración del EPR subyace a varios trastornos degenerativos comunes de la visión. En la degeneración macular asociada a la edad (DMAE), una de las causas más comunes de pérdida de visión incurable en el mundo, el EPR muere y, por lo tanto, los fotorreceptores suprayacentes sufren una degeneración secundaria. En la vitreorretinopatía proliferativa (PVR), el EPR, en cambio, sale de su estado postmitótico normalmente inactivo, proliferando y desdiferenciándose en un estado mesenquimal (la llamada transición epitelial a mesenquimal [EMT]) con alteraciones en su metabolismo. La desdiferenciación del EPR provoca una pérdida del apoyo del EPR a los fotorreceptores, al tiempo que desencadena un estado más fibrótico. Esto da lugar tanto a la degeneración de los fotorreceptores como a la cicatrización inducida por el EPR, que desencadenan la pérdida de la visión 1,2.
Una parte importante del apoyo del EPR a los fotorreceptores es metabólica, y la desregulación metabólica es un factor crítico en numerosas enfermedades de la retina, incluidas la DMAE y la RVP. El EPR sirve como barrera reguladora entre los fotorreceptores y su fuente de oxígeno y nutrientes, la coriocapilar. Por lo tanto, lo que el EPR elige metabolizar frente a lo que el EPR elige pasar de la coriocapilar a los fotorreceptores gobierna en gran medida el metabolismo y la supervivencia de los fotorreceptores. Numerosos estudios han demostrado que el EPR depende en gran medida del metabolismo mitocondrial para su salud normal, y que los fotorreceptores dependen en gran medida de la glucólisis3. Esto ha introducido el concepto de estados metabólicos complementarios y entrelazados entre los fotorreceptores y el EPR. Específicamente, el EPR reduce su metabolismo de los sustratos metabólicos fotorreceptores preferidos y, en su lugar, utiliza los subproductos del metabolismo de los fotorreceptores combinados con los metabolitos que los fotorreceptores no consumen. En enfermedades como la RVP y la DMAE, la evidencia sugiere fuertemente que el EPR se vuelve más glucolítico y menos dependiente del metabolismo mitocondrial; este cambio hacia la glucólisis RPE puede privar a los fotorreceptores de los metabolitos que necesitan, desencadenando la degeneración 4,5,6. Dado lo interdependientes que son el metabolismo del EPR y los fotorreceptores y el grado de alteración del metabolismo que subyace a la enfermedad de la retina, existe un gran interés en modelar y manipular el metabolismo del EPR con fines terapéuticos.
Si bien el estudio del metabolismo mitocondrial del EPR in vivo es ideal, muchos aspectos del metabolismo mitocondrial del EPR solo se pueden investigar prácticamente en un sistema de cultivo in vitro. En las últimas décadas se han realizado avances significativos hacia los cultivos de EPR de alta fidelidad, hasta el punto de que los cultivos de EPR más cuidadosamente preparados se utilizan ahora para la terapia de reemplazo celular en ensayos clínicos en humanos7. Para mantener estos cultivos de alta fidelidad, el EPR debe cultivarse en sustratos particulares en medios particulares durante meses antes de la experimentación. Con estas condiciones, los cultivos de EPR se diferencian y polarizan al máximo, aproximándose al EPR in vivo. Desafortunadamente, actualmente no hay ningún equipo disponible que pueda medir el metabolismo mitocondrial específicamente a partir del RPE in vivo. Si bien la monitorización del oxígeno de la red capilar de la retina se ha logrado in vivo utilizando oximetría de resonancia paramagnética electrónica (EPR)8, esto no es posible para el análisis de RPE. Las diferencias entre el metabolismo del EPR in vivo e in vitro no están bien descritas, pero se ha demostrado que los cultivos de EPR tienen una alta actividad mitocondrial, similar al EPR in vivo 3,9, lo que sugiere que se puede obtener información significativa sobre el metabolismo mitocondrial del EPR utilizando cultivos de EPR de alta fidelidad.
Dado que todo metabolismo mitocondrial conduce al consumo de oxígeno, la medición de las tasas de consumo de oxígeno (OCR) del EPR es un indicador fiel del metabolismo mitocondrial. La medición del OCR en cultivos de EPR ha sido difícil, ya que las condiciones que promueven la máxima polarización y diferenciación del EPR a menudo impiden mediciones precisas de OCR a largo plazo con las técnicas disponibles actualmente, como el analizador de caballitos de mar. En este documento de métodos, se presenta un dispositivo novedoso, denominado Resipher (en lo sucesivo denominado "el sistema"), que permite la medición continua de OCR durante semanas en RPE cultivado en condiciones que promueven al máximo la polarización y la diferenciación. La facilidad con la que este sistema puede medir el OCR en condiciones de cultivo de RPE que promueven al máximo la diferenciación y polarización del RPE es única entre los dispositivos de medición de OCR existentes.
Este documento proporciona consejos y trucos para usar el sistema con cultivos RPE, seguido de una demostración de dos aplicaciones particulares. En primer lugar, la EMT RPE, que imita la PVR, se desencadena por la exposición al factor de crecimiento transformante beta (TGFβ)1,10,11,12. El sistema se utiliza para monitorizar cómo evoluciona el metabolismo del RPE durante el proceso de EMT. En segundo lugar, se explora el papel de la hipoxia en el metabolismo del EPR utilizando este sistema. La hipoxia es un contribuyente importante a la patogénesis de la DMAE, ya que la coriocapilar se adelgaza con la edad13,14. La combinación de este sistema con cámaras de hipoxia permite modelar el metabolismo mitocondrial alterado del EPR con la sutil hipoxia que acompaña al envejecimiento. Por último, se presenta una calculadora en línea que utiliza datos de Resipher para permitir determinar si los cultivos de EPR se encuentran en condiciones hipóxicas, normóxicas o hiperóxicas. Esta información es fundamental para sacar conclusiones sobre el metabolismo del EPR a partir de estudios de cultivo in vitro de EPR.
Protocolo
Para conocer los protocolos para establecer cultivos primarios humanos o iPSC-RPE, consulte las siguientes referencias 15,16,17,18. La adquisición y el uso de tejido humano para estos protocolos fueron revisados y autorizados por la Junta de Revisión Institucional (HUM00105486) de la Universidad de Michigan.
1. Aplicación general del sistema a la cultura RPE
- Placa de células madre pluripotentes inducidas humanas (iPSC) derivadas de RPE o células RPE humanas primarias en placas de 96 pocillos compatibles con el sistema.
- Suponiendo que ya existen cultivos maduros cultivados en placas de cultivo celular de 24 pocillos, lave las células con solución salina tamponada con fosfato (PBS) una vez y luego agregue 500 μL de tripsina-EDTA al 0,25% (Tabla de materiales). Incubar durante 10-40 min en una incubadora de cultivo celular, revisando cada 5-10 min hasta que las celdas estén redondeadas y casi listas para desprenderse.
- Pipetear suavemente los medios sobre las células para separarlas del plástico del cultivo celular, seguido de una transferencia a 3 veces el volumen de los medios de cultivo celular (1.500 μL por 24 pocillos), girando en una centrífuga a 250 × g durante 5 minutos a temperatura ambiente.
NOTA: La receta para los medios de cultivo celular RPE se detalla en la Tabla 1 y está disponibleen las referencias publicadas anteriormente 9,15,16,17,18. - Resuspender las células en medios de cultivo celular EPR con un 15% de suero fetal bovino (FBS) y contar las células con un hemocitómetro.
- Siembre 74.000 células por cada pocillo de una placa de 96 pocillos (generalmente 225-300 × 105 células/cm2), después de recubrir con sustratos de recubrimiento de matriz extracelular altamente especializados (Tabla de Materiales) siguiendo las instrucciones del fabricante.
NOTA: Celdas de siembra solo en una placa compatible con Resipher (Tabla de Materiales) y solo en pocillos correspondientes a la matriz de sondas en la tapa de detección (columnas 3, 4, 9 y 10 para la tapa de 32 canales; ver Tabla de Materiales). La tapa de detección del sistema está disponible con sensores de 4, 32 o 96 canales (consulte las ubicaciones de los sensores en la Figura 1A-D), y una gama de placas de cultivo celular estándar son compatibles. - Dado que los pozos de borde son propensos a la evaporación, lo que afecta drásticamente la disponibilidad de oxígeno y, por lo tanto, las lecturas de OCR, evite sembrar celdas en todos los pozos de borde (filas A y H de una placa de 96 pocillos). Además, agregue 200 μL de agua estéril en cada uno de los pocillos vacíos de la placa de 96 pocillos para reducir los efectos de evaporación.
- Mantenga el plato sobre una superficie de mesa estable durante 10 minutos para permitir que las células se asienten; luego devuélvalo a la incubadora. Cambie el medio después de 24-72 h, reemplazándolo por un medio de cultivo RPE estándar con 5% de FBS. Cultivo durante al menos 4 semanas, cambiando de medio 2 veces por semana.
NOTA: Las células están listas para la experimentación cuando están pigmentadas, empedradas y muy compactas (Figura 1E).
- Configuración y adquisición de datos con el sistema
- Coloque la tapa de detección en una placa receptora vacía de 96 pocillos y luego vuelva a colocarla en la incubadora de cultivos celulares. Alinee y monte el dispositivo en la tapa de detección y conéctelo al Hub a través del cable USB provisto. Esto crea un "sándwich" Resipher (Figura 2A).
- Ve a la aplicación del sitio web de Lucid lab (https://lab.lucidsci.com/) y haz clic en el botón Nuevo experimento en la esquina superior derecha para crear un nuevo experimento.
- Nombra el título del experimento e ingresa cualquier nota experimental relevante para el estudio en particular (por ejemplo, el número de pasaje de la iPSC-RPE que se está utilizando).
- Crear condiciones de pozo y grupos de tratamiento. Por ejemplo, si prueba los efectos de diferentes concentraciones séricas en los medios en OCR, seleccione Suero en el nombre del grupo y, a continuación, introduzca las concentraciones séricas de los medios que se utilizarán, agregando más valores de porcentaje sérico haciendo clic en el botón + . Asigne qué pocillos recibirán un porcentaje de suero en particular y seleccione un patrón de color para esos pocillos. Agregue más grupos (por ejemplo, una variable experimental diferente para probar) según sea necesario haciendo clic en el botón Agregar grupo .
- Defina la configuración de la placa y seleccione el dispositivo y el estilo de placa correspondientes. Haga clic en el botón Agregar placa y elija Dispositivo; Seleccione el tipo de placa. Seleccione el tratamiento y haga clic en el pozo correspondiente.
- Haga clic en el botón Iniciar ahora para iniciar el experimento. Compruebe que el indicador del sitio web y el LED del Hub estén en verde fijo.
- Deje que el sistema funcione durante 15-60 minutos para garantizar que cada sensor esté correctamente calibrado y detecte con precisión el oxígeno atmosférico, que debe estar en una concentración de ~ 200 μM en una incubadora de cultivo celular completamente humidificada con 5% de CO2 (Figura 2Bi).
NOTA: Si alguno de los sensores está más de un 20% desviado del promedio de los otros sensores en una configuración estándar de incubadora de cultivo celular, considere excluir ese pozo en el análisis de datos, ya que el sensor está defectuoso (Figura 2Bii).
NOTA: Si todos los sensores están más de un 20% desviados del promedio de los otros sensores y del O2 atmosférico esperado reportado como 200 μM en una configuración estándar de incubadora de cultivo celular, la tapa de detección se ha utilizado demasiadas veces; reemplácelo con una nueva tapa de detección (Figura 2Biii).
NOTA: Obtener las lecturas deO2 en el aire antes de comenzar un experimento mejora significativamente la resolución de problemas posteriores. Si un pozo en particular aparece como un valor atípico después de realizar un experimento y ese pozo tenía un sensor que estaba descalibrado, el problema puede estar en el sensor, no en la réplica biológica. - Retire el dispositivo de la tapa de detección (pero no desconecte el cable USB del dispositivo). Coloque el dispositivo boca abajo en la incubadora para permitir que el motor del dispositivo se reinicie. No vuelva a utilizar el dispositivo hasta que todos los sonidos del motor se hayan detenido (aproximadamente 20-30 s).
NOTA: Es importante mantener el dispositivo conectado al hub a través del cable USB en todo momento durante un experimento, incluso cuando el dispositivo está fuera de la tapa de detección. Esto permite que el dispositivo monitoree e informe continuamente sobre el entorno de la incubadora de cultivos celulares. - Vuelva a colocar la placa con la tapa de detección en la cubierta de cultivo celular, junto con una placa de 96 pocillos que contenga los cultivos de EPR. Cambie los medios de la placa con cultivos de RPE con el mismo medio y el mismo volumen para todos los pocillos para obtener valores de OCR de referencia para cada pocillo. Asegúrese de llenar todos los pozos sin RPE con agua estéril para ayudar a prevenir la evaporación.
NOTA: En general, recomendamos 60-100 μL de medio de cultivo RPE por 96 pocillos, basándonos en datos que demuestran que los volúmenes de medio más bajos conducen a un rápido agotamiento de nutrientes, pero los volúmenes de medio más altos conducen a hipoxia inadvertida9. - Transfiera la tapa de detección a la placa que contiene cultivos celulares y la tapa estándar (no Resipher) de la placa que contiene cultivos celulares a la placa receptora vacía de 96 pocillos para mantener la esterilidad de la tapa estándar, que será necesaria en varios puntos durante la experimentación.
- Vuelva a colocar la placa con cultivos celulares y la tapa de detección en la incubadora de cultivos celulares. Una vez más, alinee y monte el dispositivo en la tapa de detección y conéctelo al Hub a través del cable USB provisto (ensamblando el "sándwich"). Compruebe que los indicadores de la interfaz del sitio web y del Hub estén todos en verde fijo.
NOTA: Los datos de concentración deO2 aparecerán de inmediato, mientras que los datos de OCR solo aparecerán después de que se hayan recopilado suficientes datos deO2 , aproximadamente 1 h. - Deje que el dispositivo mida el OCR en cada pocillo durante al menos 12-24 h para capturar un OCR de referencia.
NOTA: El OCR de referencia variará en función de muchos factores, incluido el tipo de medio que se aplique a las células. En la Figura 2C, los medios de cultivo RPE estándar con diferentes cantidades de FBS (0%, 5%, 15%) tienen valores de OCR ligeramente diferentes. Además, los cultivos con más FBS pueden mantener la actividad mitocondrial durante más tiempo después de aplicar medios a las células antes de que el OCR disminuya debido al agotamiento de los metabolitos mitocondriales (lado derecho de la curva). - Una vez que se obtiene un OCR de referencia, repita los pasos 1.2.8-1.2.12, pero cambie el medio en la placa con cultivos de RPE a las condiciones experimentales de cada uno (por lo general, ± un medicamento o una comparación de diferentes condiciones de medio).
NOTA: Los cambios de medios de rutina también se pueden manejar de la misma manera. Cada vez que se abre la incubadora de cultivo celular, se espera una interrupción significativa en las lecturas de OCR, ya que dependen de la temperatura, la humedad, las concentraciones deCO2 y otros factores que se interrumpen temporalmente con la apertura de la puerta de la incubadora. Durante cualquier extracción del dispositivo de la tapa de detección, no es necesario pausar el experimento en línea. Después de abrir la puerta de la incubadora de cultivo celular o cambiar el medio en la placa que se está sondeando, generalmente tomará de 2 a 4 horas restablecer el gradiente de oxígeno y comenzar a medir un OCR preciso. - Una vez obtenidos los datos, se resta el OCR de referencia para cada pocillo del OCR después de aplicar la condición experimental, para determinar el OCR Delta desencadenado por el tratamiento.
- Una vez finalizado el experimento, esterilice y reutilice la tapa de detección (que se puede reutilizar de 3 a 5 veces, aunque el rendimiento se degrada con el uso repetido). Para esterilizar la tapa de detección, sumerja toda la tapa en etanol al 70% durante 10 minutos en una campana de cultivo celular, luego retírela de la inmersión y descanse en el gabinete con la sonda hacia arriba (evite tocar las delicadas puntas de la sonda), y deje que el etanol y el agua se evaporen por completo antes de colocar la tapa de detección en una nueva placa receptora de 96 pocillos.
- Tome imágenes de campo claro para normalizar los valores de OCR al número de celda.
NOTA: La acumulación de melanina en el EPR facilita la normalización del OCR basado en un simple recuento del número de células en cultivos vivos utilizando un microscopio de campo claro.- Retire el dispositivo y colóquelo boca abajo, como en el paso 1.2.8. En la cubierta de cultivo celular, cambie la tapa de detección de la placa de cultivo RPE por una tapa estándar de 96 pocillos.
- Usando un microscopio invertido estándar, tome imágenes de campo claro de cada pocillo.
NOTA: Mantenga las imágenes del área uno consistentes entre los pocillos (ubicación relativa en el pozo y aumento del objetivo). - En la cubierta de cultivo celular, reemplace la tapa estándar de 96 pocillos en la placa de cultivo RPE con la tapa de detección y vuelva a colocarla en la incubadora para un monitoreo adicional.
- Cuente el número de celda en cada pocillo con ImageJ u otro software.
- Normalizar el OCR al número de células en los diferentes grupos experimentales. El sistema informa el OCR en unidades de fmol∙(mm2)-1∙s-1-el consumo por unidad de área de sección transversal. Por lo tanto, para normalizar el OCR por celda, divida el OCR por el recuento de células pormm 2 (en lugar del recuento de células por pocillo). De manera equivalente, multiplique el OCR reportado por el sistema por el área de la sección transversal del pozo (alrededor de 31mm2 para una placa estándar de 96 pocillos) para obtener OCR en unidades de fmol∙s-1∙pozo-1.
- Controles para la determinación de los parámetros bioenergéticos del EPR.
NOTA: Para garantizar que el sistema y los cultivos de RPE respondan a las manipulaciones mitocondriales de manera predecible, se pueden probar ciertas moléculas pequeñas bien establecidas para dirigirse a pasos particulares de la fosforilación oxidativa mitocondrial. Estas pruebas son análogas a los pasos realizados en una prueba de esfuerzo mitocondrial utilizando el Seahorse Analyzer10 y proporcionan un perfil bioenergético para cultivos de EPR.- Cultive células de EPR en 65 μL de medio de cultivo de EPR estándar con 5% de FBS y mida el OCR durante 24 h para establecer una línea de base.
- Aspire el medio de cultivo y agregue 65 μL de medio de cultivo RPE estándar con 5% de FBS y con desacoplantes mitocondriales (3 μM de cianuro de carbonilo-p-trifluorometoxifenilhidrazona [FCCP] o 500 nM Bam15, Tabla de Materiales). Incubar durante la noche.
NOTA: Los desacopladores mitocondriales deberían aumentar significativamente el OCR. Asegúrese de que el OCR aumentado no esté en o cerca del OCR máximo teórico limitado por difusión de aproximadamente 275 fmol∙(mm2)-1∙s-1 para 65 μL de medio en condiciones de cultivo estándar. El OCR máximo para los diferentes volúmenes de medios de uso común está disponible en la sección Discusión. - Después de la incubación durante la noche, aspire el medio con desacopladores mitocondriales y reemplácelo con 65 μL de medio de cultivo RPE estándar con FBS al 5%. Observe la placa durante otras 24 h para determinar la recuperación de RPE OCR después de la retirada de los fármacos.
- Calcular los efectos de los desacopladores sobre el OCR restando el OCR obtenido después del tratamiento del OCR obtenido antes del tratamiento (Figura 3).
NOTA: El aumento de la OCR con la adición de desacopladores mitocondriales significa la reserva de capacidad respiratoria mitocondrial de la célula19. - Para medir otros parámetros mitocondriales típicamente capturados durante la prueba de esfuerzo mitocondrial con un analizador de caballitos de mar, realice los mismos pasos anteriores con los siguientes compuestos (Figura 4).
- Utilice oligomicina a 1 μM para evaluar la respiración ligada a ATP.
- Use antimicina A y rotenona a 1 μM para evaluar cualquier respiración no mitocondrial.
NOTA: El FCCP, la oligomicina, la antimicina A y la rotenona pueden ser tóxicos para el EPR. Si inducen una muerte celular significativa, entonces las mediciones de OCR no serán precisas. Por lo tanto, las mediciones de OCR deben obtenerse solo en un momento en el que no haya una muerte celular evidente, generalmente dentro de las primeras horas después de la adición de los fármacos (Figura 4).
2. Medición de los cambios en el metabolismo mitocondrial en EPR sometidos a EMT
- Siga el mismo protocolo que se describe en la sección 1.2.
- Para inducir EMT después de obtener mediciones de OCR de referencia, agregue TGF-β2 (10 ng/mL) a los cultivos de RPE y controle el OCR durante 3 semanas. Refresque los medios con TGFβ2 nuevo cada 2-3 días (Figura 5).
- Al menos 2 veces por semana, obtenga imágenes de campo claro como en la sección 1.3 para asegurarse de que el recuento de células no cambie. Si el recuento cambia, normalice los valores de OCR al número de celda de cada pocillo.
NOTA: El mismo protocolo se puede utilizar para otros inductores de EMT para monitorear los cambios de OCR a largo plazo durante todo el período de cultivo mientras las células están en la incubadora.
3. Medición de los cambios en el metabolismo mitocondrial en el EPR hipóxico
NOTA: La aplicación del sistema en condiciones hipóxicas, normóxicas o hiperóxicas es la misma que en la sección 1.2, excepto por mantener el "sándwich" en una cámara de hipoxia (Tabla de Materiales) colocada en una incubadora de cultivo celular estándar.
- Taladre un orificio en la tapa de la cámara de hipoxia para montar el cable USB tipo c y séllelo con silicona o masilla (Figura 6A).
- Ensamble la tapa de detección con la placa de cultivo celular en la campana y transfiéralas a la cámara de hipoxia.
- Coloque el "sándwich" (placa, tapa de detección, dispositivo) en la cámara de hipoxia. También coloque en la cámara de hipoxia una placa de Petri con agua estéril para ayudar a mantener la humedad. Por último, coloque un sensor portátil deO2 en la cámara de hipoxia (Tabla de Materiales). La configuración se muestra en la Figura 6A.
- Selle la cámara y conéctela a un cilindro de gas con una concentración hipóxica deO2 y una concentración estándar de cultivo celular de CO2 (por ejemplo, 1% deO2 y 5% de CO2).
- Intercambie lentamente el aire en la cámara de hipoxia con el aire 1% O2/5% CO2 en el cilindro hasta que el sensor de oxígeno muestre la concentración deO2 deseada, generalmente entre 1% y 10%.
NOTA: El sensor portátil deO2 requiere tiempo para equilibrarse, por lo que el gas del cilindro debe agregarse lentamente a la cámara de hipoxia. - Cierre las válvulas de entrada y salida de la cámara de hipoxia y transfiera toda la cámara a la incubadora.
- Configure e inicie el experimento como se indica en la sección 1.2.
NOTA: El preequilibrio de los medios en la cámara de hipoxia antes de agregarlos a las células puede disminuir el tiempo que tarda la monocapa celular en experimentar una verdadera hipoxia (Figura 6B).
4. Cálculo de la concentración deO2 en la monocapa de RPE para determinar si las células están en condiciones hipóxicas, normóxicas o hiperóxicas
NOTA: El sistema mide la concentración deO2 entre aproximadamente 1 a 1,5 mm por encima del fondo del pocillo de forma predeterminada, suponiendo que se utiliza una placa estándar con la tapa de detección recomendada correspondiente para el cultivo monocapa (consulte https://lucidsci.com/docs/LucidScientific_Sensing_Lid_Selection_Guide.pdf). Si bien la concentración de O2 en la monocapa celular no se mide directamente, los datos del sistema se pueden utilizar para estimar la concentración de O2 a nivel del EPR. Específicamente, sabiendo que existe un gradiente de oxígeno entre la parte superior de la columna de medios, donde O2 está disponible, y la parte inferior de la columna de medios, donde se consumeO2 , las Leyes de Difusión de Fick se pueden combinar con la tasa de OCR medida para extrapolar los niveles de O2 en la monocapa celular. Una calculadora para esta estimación se proporciona en línea: https://lucidsci.com/notes?entry=oxygen_diffusion (y en forma de un cuaderno interactivo de código abierto en https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture, el código fuente de esta calculadora se puede encontrar en https://github.com/lucidsci/oxygen-diffusion-calculator).
- Una vez que haya accedido a la calculadora, ingrese el volumen del medio en microlitros (por ejemplo, 100 μL).
- Introduzca la concentración de oxígeno saturado en la interfaz aire-líquido (la parte superior de la columna de medios por encima de las células). Este valor es de ~185 μM a presión atmosférica estándar con 5% deO2 y 95% de humedad.
NOTA: Esto también se puede determinar a partir de mediciones de O2 mediante sondas del sistema en pozos de solo medios (sin celdas en el fondo del pozo). - En la entrada Flux, introduzca el Flux/OCR informado por el sistema.
- Sobre la base de estos valores, se calcula la concentración de oxígeno en estado estacionario a cada altura en la columna de medios y se muestra en el gráfico (Figura 7). El eje x de la parcela es la altura en mm sobre el fondo del pozo. El eje Y es la concentración de O2 calculada a esa altura (en μM).
- La concentración de O2 en el fondo del pocillo (donde están las celdas) se informa en la línea debajo de la parcela.
NOTA: En general, se estima que el RPE in vivo tiene una concentración deO2 del 4-9%. Cada 10 μM deO2 en condiciones atmosféricas normales corresponde aproximadamente a un 1% deO2. Por lo tanto, la normoxia a nivel de las células es de aproximadamente 40-90 μM deO2. Cuanto más alta sea la columna de medios, menor será el O2 al nivel de la monocapa RPE9. Por lo tanto, si las células parecen estar en condiciones hipóxicas, se puede reducir el volumen del medio. Si las células parecen estar en condiciones hiperóxicas, se puede aumentar el volumen del medio.
Resultados
La configuración del "sándwich" para el experimento Resipher se muestra en la Figura 2A. Las tapas de detección con 32 sondas correspondientes a las columnas 3, 4, 9 y 10 de la placa de 96 pocillos se encuentran entre la placa de la celda y el dispositivo. Después de conectarse al Hub, el dispositivo activa los motores para mover la tapa de detección hacia arriba y hacia abajo, midiendo la concentración de O2 en la columna de medios a un rango de alturas por encima de la monocapa de la celda (generalmente 1-1,5 mm). Por lo tanto, el gradiente de O2 se mide continuamente registrando las concentraciones de O2 a estas diversas alturas por encima de la monocapa. A partir de las mediciones de gradiente y la aplicación de las Leyes de Difusión de Fick, el dispositivo calcula automáticamente el flujo de oxígeno desde arriba del rango de altura de la sonda hasta debajo de él, que es la tasa de consumo de oxígeno (OCR) de la monocapa celular. La tapa de detección detecta O2 independientemente de si un pozo está vacío (solo aire), lleno de medios pero sin celdas (solo medios) o si tiene medios que superponen a una monocapa de celdas (medios + celdas). Como control de calidad para determinar el funcionamiento de los sensores de la tapa de detección, primero se puede colocar la tapa sobre una placa vacía (solo de aire) de 96 pocillos. Si cada sensor de cada pocillo está funcionando, elO2 reportado debe ser consistente entre sí y cercano a 200 μM, que está cerca del O2 esperado en la atmósfera en condiciones estándar de incubadora de cultivos celulares. La Figura 2Bi muestra las lecturas deO2 de ocho sondas en el aire atmosférico (informadas como la concentración en μM, ya que la conversión de unidades predeterminada supone que las sondas están en líquido a 37 °C). Estas lecturas son ajustadas (±5%) y cercanas a 200 μM, lo que implica que los ocho sensores funcionan bien. En la Figura 2Bii, se utiliza la misma tapa de detección que en la Figura 2Bi , pero se despliega un dispositivo diferente. Aquí, se seleccionan dos sensores de dispositivo defectuosos en función de curvas atípicas (en rojo). Esto sugiere que el dispositivo es problemático y necesita ser reemplazado (o los pocillos correspondientes a sensores defectuosos deben dejarse fuera del experimento). En la Figura 2Biii, se utiliza el mismo dispositivo que la Figura 2Bi , pero se emplean dos tapas de detección diferentes. La tapa 1 (lado izquierdo) tiene una alta variabilidad entre las sondas, lo que sugiere que el material de detección de la tapa está degradado, generalmente porque la tapa se ha utilizado demasiadas veces. Lid2 (lado derecho) es nuevo, mostrando lecturas que son ajustadas y agrupadas alrededor de 200 μM. Usando el sistema, se puede analizar el efecto de la suplementación sérica en los medios sobre el metabolismo mitocondrial del EPR. Como se observa en la Figura 2C, el aumento de los niveles de suplementación sérica desencadenó niveles sutilmente más altos de RPE OCR. Es importante destacar que una mayor suplementación sérica también permitió que el metabolismo mitocondrial se mantuviera durante un período más largo. Incluso sin ninguna suplementación sérica, la OCR se mantiene durante aproximadamente 90 h antes de que el agotamiento de los sustratos metabólicos mitocondriales desencadene una caída en la OCR. Por lo tanto, los cambios de medio con 100 μL por pocillo de 96 pocillos cada 3,5 días (dos veces por semana) son suficientes, incluso con medios sin suero, para evitar el agotamiento de nutrientes en cultivos de EPR maduros, altamente diferenciados y polarizados.
Las tasas de OCR pueden variar significativamente de un pocillo a otro, incluso en cultivos en los que todos los pocillos parecen tener el mismo número de células y morfología. Por lo tanto, para aislar si los aumentos en el OCR son atribuibles a una condición experimental o simplemente a las diferencias de referencia en el OCR entre pozos, es necesaria la normalización. El primer paso en la normalización es garantizar que los recuentos de células entre pocillos sean consistentes, como se describe en la sección 1.3 del protocolo. Si los recuentos de células varían entre pocillos, el OCR del pocillo debe normalizarse al número de células. En general, para cultivos de EPR altamente maduros y polarizados, los recuentos de células entre pocillos son notablemente consistentes9. Incluso en tales escenarios, el OCR de referencia entre pozos puede variar, como se muestra en la Figura 3A. En este caso, el OCR basal, antes de cualquier tratamiento, varía hasta en 100 fmol/mm2/seg entre pocillos. Al medir el OCR antes del tratamiento, se puede determinar el OCR Delta desencadenado por el tratamiento experimental y aislarlo de cualquier diferencia en el OCR de referencia entre los pocillos. En este caso, los tratamientos están comparando dos desacopladores mitocondriales (FCCP vs. BAM15) con el control del vehículo. Una vez que se utiliza el OCR basal para la normalización, los efectos del tratamiento específicos para los desacopladores frente al control se vuelven evidentes (compare la Figura 3B con la Figura 3C). En general, los experimentos que pueden alterar el OCR deben dividirse en al menos dos fases: OCR inicial para establecer un OCR de referencia y una fase de tratamiento para determinar el OCR Delta.
Para confirmar que los cultivos de RPE responden de la manera esperada a la manipulación mitocondrial y establecer un perfil bioenergético para RPE, se pueden emplear con el sistema las herramientas clásicas de moléculas pequeñas utilizadas en la prueba de esfuerzo mitocondrial en el analizador de caballitos de mar de Agilent. En primer lugar, la capacidad mitocondrial ociosa puede medirse utilizando un desacoplador mitocondrial19. En cultivos de EPR, el desacoplador mitocondrial BAM15 muestra un aumento mucho más robusto y sostenido de OCR en comparación con FCCP (Figura 3C,D), sin inducir toxicidad. Utilizando el sistema se pueden calcular otros parámetros disponibles en la prueba de esfuerzo mitocondrial del analizador Seahorse, incluida la respiración basal, la respiración vinculada al ATP, la fuga de protones y la capacidad respiratoria no mitocondrial. Mientras que el analizador Seahorse se basa en puertos de inyección para administrar secuencialmente toxinas que inhiben complejos específicos de fosforilación oxidativa para inferir los parámetros anteriores, Resipher no tiene esta capacidad. Sin embargo, cada toxina mitocondrial se puede agregar a pocillos separados, y se pueden calcular diferentes parámetros respiratorios basados en el cambio de pliegue sobre los pocillos tratados con vehículo. En la Figura 4A, se comparan las diferencias en la OCR entre los pocillos tratados con el desacoplador mitocondrial BAM15, el inhibidor de la ATP sintasa oligomicina, los inhibidores de los complejos I y III antimicina/rotenona y el control de vehículos (DMSO). Dado que estas toxinas pueden inducir la muerte celular durante períodos de tiempo más largos y la muerte celular afectará al OCR, las lecturas del OCR se tomaron después de solo unas horas de tratamiento. La Figura 4B muestra las diferencias en OCR entre el vehículo y los pozos tratados con cada molécula pequeña mitocondrialmente activa en forma de gráfico de barras, extrapoladas de los últimos puntos de tiempo en la Figura 4A. Los valores de OCR de la Figura 4B se pueden utilizar para calcular los parámetros bioenergéticos para el cultivo de RPE, como se ve en la Figura 4C. Cada valor codificado por colores en el perfil bioenergético de la Figura 4C proviene del mismo valor codificado por colores de la Figura 4B. Por lo tanto, parámetros como la respiración ligada a ATP, la fuga de protones, la capacidad respiratoria mitocondrial máxima y la capacidad respiratoria no mitocondrial se pueden estimar utilizando el sistema OCR. En la Figura 4D se muestra un resumen del modo de acción de cada molécula pequeña mitocondrialmente activa.
Una vez demostrado el protocolo de este sistema en cultivos de EPR y experimentos de control para determinar los perfiles bioenergéticos de EPR, se pueden explorar las aplicaciones experimentales del sistema a la biología y patología del EPR. En la vitreorretinopatía proliferativa (RVP), una afección que ocurre después de un desprendimiento de retina o un traumatismo ocular, el EPR experimenta una transformación dramática conocida como transición epitelial a mesenquimal (EMT) por la cual el EPR, altamente regular y similar a un adoquín, pierde sus adherencias célula-célula y se transdiferencia en células mesenquimales en forma de huso que son contráctiles y móviles 1,2. Esto desencadena fuerzas contráctiles tangenciales en la retina que pueden inducir el desprendimiento de retina. Los inductores clásicos de EMT en el EPR incluyen el factor de crecimiento transformante beta (TGFβ) y el factor de necrosis tumoral alfa (TNFα)10,11,12. De las tres isoformas de TGFβ en mamíferos, TGFβ2 es el inductor más prominente y potente de EMT en la retina1, causando una elongación celular distintiva de las células RPE característicamente hexagonales y un aumento de la expresión de marcadores mesenquimales. La respuesta de EMT inducida por TGFβ2 en el EPR se acompaña de una supresión de la respiración mitocondrial y un posterior aumento de la capacidad glucolítica, como se demostró previamente utilizando un Seahorse XFe9610. Si bien el Seahorse proporciona perfiles bioenergéticos en tiempo real, no permite el monitoreo de OCR a largo plazo. Así, en la primera aplicación del sistema OCR en este estudio (Figura 5), se realizó un seguimiento de la respiración mitocondrial durante tres semanas mientras la EMT era inducida con TGFβ2 en el EPR, lo que permitió modelar in vitro la reprogramación metabólica que se produce durante la RVP. A diferencia del análisis de un solo punto de tiempo de RPE EMT utilizando un analizador de caballito de mar, el estado metabólico de RPE sometido a EMT se puede rastrear durante varias semanas. Es evidente que la exposición repetida del EPR al TGFβ2 provoca un declive progresivo continuo del metabolismo mitocondrial. Los datos anteriores utilizando el analizador Seahorse XF indicaron que el TGFβ2 redujo significativamente la capacidad respiratoria máxima a las 24 h y a las 72 h, pero no afectó a los niveles basales de OCR10. El OCR basal inalterado con TGFβ2 hasta 72 h es corroborado por el sistema de OCR utilizado en este estudio (Figura 5). Sin embargo, los datos a largo plazo del sistema de OCR en este estudio revelan que después de 5 días de exposición al TGFβ2, los niveles basales de OCR comienzan a disminuir, con una caída en el OCR basal que se hace más evidente a los 20 días. Estos hallazgos ponen de manifiesto los cambios a largo plazo en el OCR basal que no se capturaron con los puntos de tiempo anteriores de Seahorse.
En una segunda aplicación, el sistema se puede utilizar para monitorear el metabolismo mitocondrial del EPR en condiciones hipóxicas. Dado que la DMAE está relacionada con el adelgazamiento de la coriocapilar y la hipoxia13,20, la comprensión de los ajustes del EPR a la hipoxia subtóxica debería proporcionar información sobre la patogénesis de la DMAE. Para someter los cultivos de EPR a hipoxia controlada mientras se monitorea el metabolismo mitocondrial, el sistema se puede colocar en una cámara de hipoxia que, a su vez, se coloca en una incubadora de cultivos celulares. Para facilitar esta configuración, se perfora un pequeño orificio en la tapa de una cámara de hipoxia, lo que permite que el cable USB del sistema llegue al interior de la cámara de hipoxia. El orificio se sella con masilla o silicona (Figura 6A). Se puede colocar un sensor portátil deO2 en la cámara de hipoxia para monitorear los niveles de O2 atmosférico y garantizar que el sello de la cámara de hipoxia permanezca intacto. Con esta configuración, se puede determinar la tasa de equilibrio entre la concentración de O2 atmosférico y la concentración de O2 del medio. En la Figura 6B, los medios equilibrados con O2 atmosférico se colocan en pocillos individuales en una placa de 96 pocillos, sin ninguna celda, y se introducen en una cámara de hipoxia que contiene solo 5% deO2 (~50 μM O2). Con el tiempo, los medios de cada pozo se equilibran con la nueva concentración atmosférica. Cuanto mayor sea la altura de la columna de medios (más volumen), más tiempo llevará el equilibrio. Con 65 μL de medio en un pocillo de una placa de 96 pocillos, el equilibrio con elO2 atmosférico tarda aproximadamente 5 h. Sin embargo, el tiempo de equilibrio tarda más de 10 h cuando el volumen del medio es de 100-200 μL. Estos resultados subrayan la importancia de preequilibrar los medios con la concentración deseada deO2 atmosférico antes de aplicar los medios a las células durante un experimento de hipoxia.
Para los experimentos de hipoxia, es importante asegurarse de que los niveles deO2 en la cámara de hipoxia permanezcan estables. Mantener uno de los pocillos de borde en la placa de 96 pocillos libre de celdas o medios permitirá que uno de los sensores de la tapa de detección monitoree continuamente el O2 atmosférico. En la Figura 6C, este monitoreo con un solo pozo expuesto al aire demuestra que la cámara de hipoxia tiene una fuga lenta, de modo que a las 30 h, las células están cerca de las concentraciones de O2 atmosférico. Como control final para los experimentos de hipoxia, es importante determinar si la solubilidad delO2 difiere entre los medios "frescos" y los "acondicionados". Si la solubilidad difiere entre el medio colocado inicialmente en las células y el medio que ha estado en las células durante una cantidad significativa de tiempo, entonces el gradiente de O2 en la columna de medios por encima de las células diferirá a medida que el medio "condicione" con el tiempo sobre las células. Esto, a su vez, afecta al cálculo del OCR. En la Figura 6D, una placa de 96 pocillos con pocillos vacíos ("aire"), pocillos sin celdas pero con medios frescos ("medios nuevos") y pocillos sin celdas pero con medios previamente incubados sobre cultivos de EPR durante 48 h ("medios acondicionados") se colocó primero en O2 atmosférico para permitir un equilibrio completo. A continuación, la placa se colocó en una cámara de hipoxia a aproximadamente 3-4% deO2 (30-40 μM) y se dejó equilibrar. Finalmente, la placa volvió a las concentraciones de O2 atmosférico. Las curvas de concentración deØ2 para los medios nuevos y los medios acondicionados son idénticas, lo que demuestra que la solubilidad delO2 entre los medios nuevos y los acondicionados es idéntica, lo que confirma que los cambios en la composición del medio a lo largo del tiempo a medida que se consumen nutrientes y se secretan subproductos en el medio no alteran significativamente la solubilidad deO2 y, por lo tanto, no afectan inadvertidamente al OCR.
Dado que la altura de la columna de medios por encima de las células afecta drásticamente a la disponibilidad de O2 en la monocapa9 del EPR, es importante determinar si un volumen de medio en particular induce hipoxia, normoxia o hiperoxia en la monocapa del EPR. Utilizando las mediciones del sistema, combinadas con una calculadora en línea (https://lucidsci.com/notes?entry=oxygen_diffusion (y en forma de un cuaderno interactivo de código abierto en https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture) - código fuente de esta calculadora en https://github.com/lucidsci/oxygen-diffusion-calculator), se puede estimar la concentración de oxígeno en la monocapa RPE. En la figura 7 se muestra una captura de pantalla de la calculadora interactiva. El EPR in vivo suele tener una concentración deO2 del 4-9%, lo que se traduce en una concentración molar deO2 de ~40-90 μM.
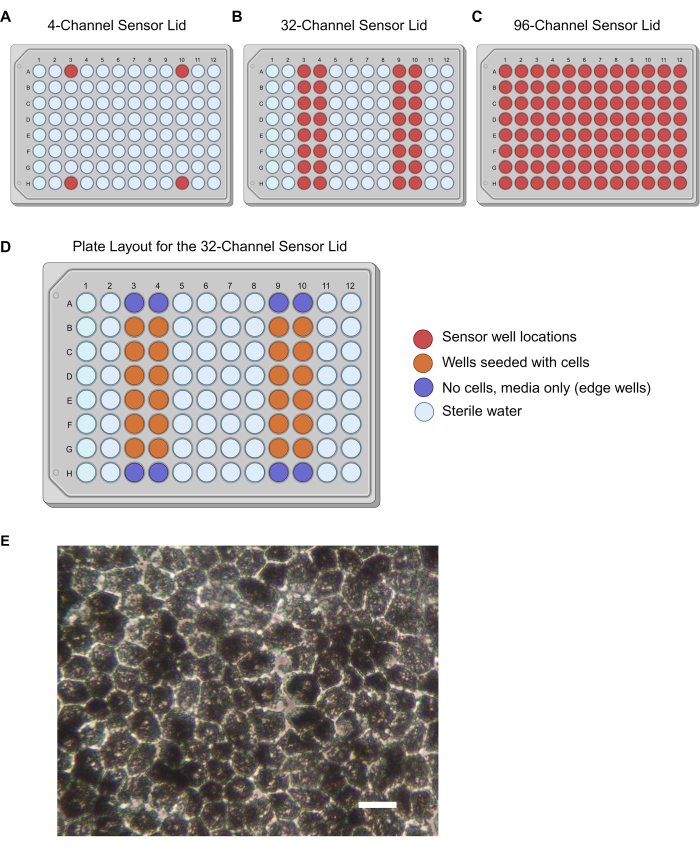
Figura 1: Ubicación de los sensores en diferentes tapas de detección, disposición de la placa para la tapa de detección de 32 canales y morfología del RPE. Pocillos que corresponden a la ubicación de los sensores en las diferentes tapas de detección para las opciones de tapa (A) de 4 canales, (B) de 32 canales y (C) de 96 canales. (D) Diseño de placa recomendado para la tapa del sensor de 32 canales. Debido a los efectos de borde, las células no deben sembrarse en los pocillos de borde y, en su lugar, los medios deben colocarse en estos cuatro pocillos (púrpura). Las células se siembran en pozos de naranjas. Los pozos restantes deben llenarse con agua estéril (azul) para evitar los efectos de la evaporación. (E) Cultivo de EPR maduro con células hexagonales, muy compactas y pigmentadas. Barra de escala = 20 μm. Abreviaturas: EPR = epitelio pigmentario de la retina. Haga clic aquí para ver una versión más grande de esta figura.

Figura 2: Configuración del sistema Resipher "sándwich" y control de calidad. (A) La tapa de detección reemplaza una tapa de placa estándar de 96 pocillos y tiene sus sondas insertadas en los pocillos correspondientes. El dispositivo en negro se asienta firmemente en la tapa de detección a través de imanes. Las imágenes del lado izquierdo de la figura muestran el dispositivo y la tapa de detección en su orientación correcta. Sin embargo, para las fotografías del lado derecho, el dispositivo y la tapa de detección se han girado hacia sus lados para mostrar mejor su perfil inferior. (B) Control de calidad para las tapas de detección y el Dispositivo. (i,ii) La misma tapa de detección se coloca en una placa receptora vacía de 96 pocillos (solo aire), y dos dispositivos diferentes se colocan secuencialmente en la parte superior de la tapa de detección. (i) El primer dispositivo muestra datos de ocho sondas con baja variabilidad y lecturas deO2 ~200 μM, esperadas para O2 atmosférico. (ii) El segundo dispositivo muestra datos de ocho sondas en las que dos sondas leen de manera anómala (puntos rojos). (iii) Se utilizó un dispositivo con una placa vacía de 96 pocillos (solo de aire) pero con dos tapas de detección diferentes probadas secuencialmente. Se trazaron los datos de 16 sondas, demostrando una amplia variabilidad para Lid1 (lado izquierdo) y una baja variabilidad para Lid2 (lado derecho). (C) Se monitorizaron gráficos de OCR de cultivos de EPR en medios de 100 μL con diferentes cantidades de suero durante 120 h. Las células de EPR en medios libres de suero (magenta) tienen un OCR más bajo, con una caída del OCR antes que los medios con mayores cantidades de suero. Abreviaturas: OCR = tasa de consumo de oxígeno; EPR = epitelio pigmentario de la retina. Haga clic aquí para ver una versión más grande de esta figura.
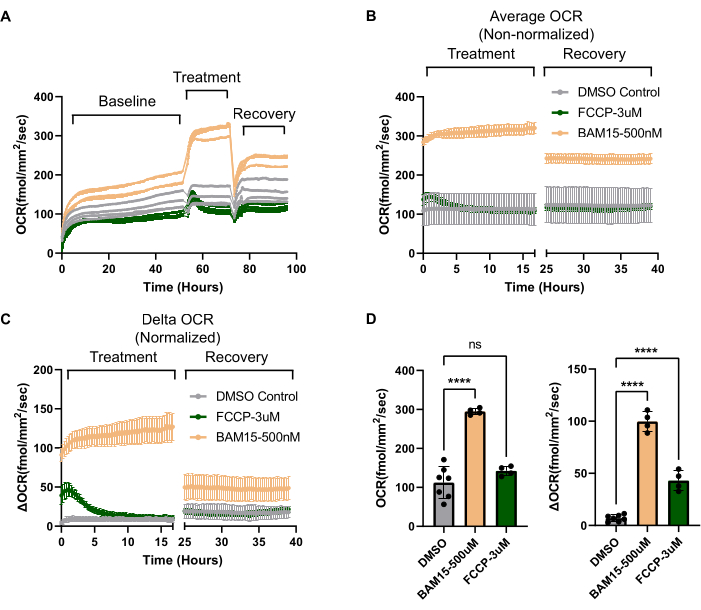
Figura 3: Efectos a largo plazo de los desacopladores mitocondriales demostrados de manera única con el sistema OCR. (A) Datos brutos de OCR a lo largo del tiempo (horas) destacando el OCR inicial (establecido durante 50 h), la fase de tratamiento (~ 20 h después de la adición de medicamentos) y la fase de recuperación (~ 20 h después del lavado del medicamento). El EPR se trató con dos desacopladores mitocondriales diferentes, FCCP (3 μM, N = 4) o BAM15 (500 nM, N = 4) y se comparó con el control de vehículos DMSO (0,6%, N = 7). Cada traza representa un solo pozo. (B) OCR promedio de todos los pozos para cada condición en (A) trazada para las fases de tratamiento y recuperación. Sin normalización (el eje Y es el OCR absoluto), es difícil ver la magnitud del efecto del tratamiento con FCCP. (C) Cuando cada rastro de OCR se resta de su OCR antes del tratamiento, se puede calcular un OCR Delta (trazado en el eje Y). Esto permite aislar los efectos del tratamiento en el OCR, a pesar de la variabilidad en el OCR de referencia entre los pocillos. Con el OCR Delta, el efecto del FCCP se hace evidente. También se hace evidente lo efímero que es el efecto del FCCP en el desacoplamiento mitocondrial, en comparación con el BAM15. Finalmente, se hace evidente que, en comparación con el FCCP, la exposición a BAM15, incluso después de que el medicamento se lava, crea un nuevo estado "adaptado" de OCR más alto sostenido. (D) Los gráficos de (B) y (C) se muestran en forma de gráfico de barras, lo que permite la comparación directa entre datos no normalizados (gráfico de la izquierda, de (B)) y normalizados (Delta OCR, gráfico de la derecha, de (C)). Abreviaturas: OCR = tasa de consumo de oxígeno; EPR = epitelio pigmentario de la retina; FCCP = cianuro de carbonilo-p-trifluorometoxifenilhidrazona; DMSO = dimetilsulfóxido. Haga clic aquí para ver una versión más grande de esta figura.

Figura 4: Utilizando el sistema OCR para calcular los parámetros de la bioenergética mitocondrial. (A) Utilizando las mismas moléculas pequeñas que forman parte de la prueba de esfuerzo mitocondrial del analizador Seahorse, se representa el OCR durante las primeras 2,5 h de la fase de tratamiento para cultivos de EPR. (Gráfico de la izquierda) El inhibidor de la ATP-sintasa oligomicina (N = 3), los inhibidores del complejo I y III antimicina A/rotenona (N = 7), o vehículo, DMSO 0,4% (N = 4). (Gráfico de la derecha) El desacoplador mitocondrial BAM15 (N = 4) o el DMSO del vehículo 0,6% (N = 4). (B) Promedio de los tres puntos de tiempo finales para cada grupo de tratamiento (recuadros rojos en (A)). (C) Representación de un perfil bioenergético simulado de la prueba de estrés mitocondrial del analizador de caballitos de mar basado en datos de Resipher. Los puntos de datos codificados por colores en el gráfico simulado corresponden a los gráficos de barras codificados por colores en (B). Todos los parámetros respiratorios se pueden calcular utilizando los datos de Resipher y seleccionar moléculas pequeñas. (D) Diagrama del modo de acción de los reactivos utilizados en la Figura 3 y la Figura 4. Abreviaturas: OCR = tasa de consumo de oxígeno; EPR = epitelio pigmentario de la retina; DMSO = dimetilsulfóxido; AA = Antimicina A; Podredumbre = Rotenona. Haga clic aquí para ver una versión más grande de esta figura.

Figura 5: Monitorización OCR a largo plazo del EPR en transición epitelial a mesenquimal estimulado por TGFβ2. Los cultivos primarios de EPR humano maduro se trataron con 10 ng/mL de TGFβ2 o control de vehículo cada 2-3 días. (A) Las mediciones de OCR en tiempo real se monitorearon durante 3 semanas con (B) Cuantificación de Delta OCR a lo largo del tiempo (Día 19-Día 6). N = 6-7 pozos por condición, prueba t no apareada, * P < 0,05. Abreviaturas: OCR = tasa de consumo de oxígeno; EPR = epitelio pigmentario de la retina; TGFβ2 = factor de crecimiento transformante beta-2. Haga clic aquí para ver una versión más grande de esta figura.
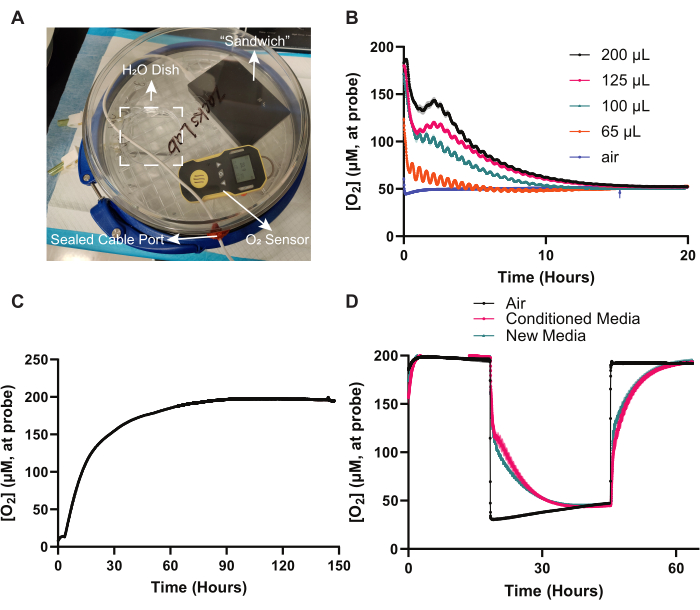
Figura 6: Monitorización de la respuesta mitocondrial del EPR a la hipoxia. (A) El "sándwich" del sistema OCR se ensambló en una cámara de hipoxia y el cable USB se conectó al Hub a través de un orificio perforado en la tapa y sellado con grasa de silicona o masilla. También en la cámara de hipoxia hay una placa de Petri con agua estéril para mantener la humedad y un sensor deO2 portátil. Todo el sistema se dejó en una incubadora de cultivo celular después de que la atmósfera de la cámara de hipoxia se reemplazara con una concentración deO2 más baja. (B) Los medios tardan en equilibrarse a concentraciones deO2 por encima de la interfaz aire-líquido. Se añadieron diferentes volúmenes de medios RPE equilibrados con el O2 atmosférico en pozos vacíos (sin celdas) de una placa de 96 pocillos. A continuación, la cámara de hipoxia se ajustó al 5% (50 μM) deO2. La concentración de O2 en los medios de cada pozo se monitoreó durante 20 h. Los pozos con volúmenes de medios más altos se equilibraron al 5% deO2 más lentamente que los volúmenes de medios más bajos. N = 8. (C) El sistema se puede utilizar para detectar fugas de aire en la cámara de hipoxia. La cámara de hipoxia se configuró con 1% deO2 y la tapa de detección se colocó sobre pozos vacíos (solo aire). Los puertos de entrada y salida de la cámara de hipoxia se dejaron abiertos, y la atmósfera de la cámara de hipoxia se reequilibró a niveles de O2 atmosférico durante ~ 90 h. (D) Los nuevos medios y sobrenadantes ("medios condicionados") tienen una solubilidad de O2 similar. Esto elimina la preocupación de la solubilidad diferencial de O2 en los medios, ya que su composición cambia durante el cultivo, lo que afectaría la consistencia de las lecturas de OCR con el tiempo. El mismo volumen (100 μL) de medio fresco ("medio nuevo") o medio incubado durante 48 h sobre células ("medio acondicionado") se añadió a los pocillos de una placa sin células. El sistema OCR "sándwich" se sometió inicialmente a niveles deO2 atmosférico, luego se transfirió a la cámara de hipoxia (3-5% deO2 o 30-50 μM), y luego se transfirió nuevamente a niveles deO2 atmosférico. Los niveles de O2 en el aire se monitorearon mediante sondas en pozos vacíos (solo de aire). El cambio en la concentración deO2 durante cada transición entre los dos tipos de medios es idéntico, lo que demuestra que la solubilidad deO2 entre los dos tipos de medios es idéntica. N = 6. Abreviaturas: OCR = tasa de consumo de oxígeno; EPR = epitelio pigmentario de la retina. Haga clic aquí para ver una versión más grande de esta figura.

Figura 7: Concentraciones de O2 en la monocapa de RPE determinadas con una calculadora en línea. Captura de pantalla de la calculadora en línea (https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture). Consulte el texto para obtener detalles de cómo se puede usar la calculadora para determinar la cantidad de oxígeno disponible en la monocapa RPE. Abreviaturas: EPR = epitelio pigmentario de la retina. Haga clic aquí para ver una versión más grande de esta figura.

Figura 8: Experimentos de solución de problemas: evaporación, células poco saludables y fluctuaciones excesivas de OCR. (A) Evaporación excesiva. Cuando haya una irregularidad en el rastreo de OCR de un pozo, comience haciendo clic en la pestaña Entorno en la interfaz en línea del sistema (izquierda). Aquí se pueden controlar la humedad, la temperatura y la presión atmosférica. La apertura de la incubadora de cultivos celulares interrumpirá temporalmente la humedad (ver 2 h y 28 h en el trazo). Sin embargo, a partir de las 30 h, la traza de humedad disminuye constantemente con el tiempo, incluso sin abrir la puerta. Esto sugiere que la bandeja de agua de la incubadora de cultivos celulares está seca. Cualquier alteración de la humedad o la temperatura alterará las lecturas del OCR. (Derecha) La baja humedad exacerba la evaporación. En la traza de la derecha, un pozo que experimenta una rápida evaporación muestra diferencias progresivamente más pequeñas en la concentración de O2 entre la parte superior e inferior de la excursión de la sonda del sensor (de 1 mm a 1,5 mm por encima de la monocapa RPE). Esto sugiere que la punta de la sonda está cerca de la interfaz aire-medio. Cuando la concentración de O2 se lee como "líneas planas" a un valor cercano a las concentraciones conocidas de O2 atmosférico (~ 200 μM), esto sugiere que la punta de la sonda está completamente fuera de la columna de medios y solo toma muestras de aire. Las lecturas de OCR ya no son válidas y dichos pozos necesitan un cambio inmediato de medio. (B) Células enfermas. El trazado de la traza deO2 y OCR de cada pocillo individual permite la identificación de un pozo atípico, generalmente causado por la falta de salud de las células. Aquí, el pozo designado por el trazo azul no es saludable. N = 6 pozos. (C) Aperturas de puertas de incubadoras y cambio de medios. Los cambios en la humedad atmosférica, la temperatura, la presión y el CO2 durante la apertura de las puertas de la incubadora, junto con cualquier cambio en el medio, interrumpen temporalmente el gradiente de equilibrio deO2 establecido en el pozo, causando picos aberrantes deO2 y OCR temprano y tarde en estos gráficos. N = 6 pozos. Abreviaturas: OCR = tasa de consumo de oxígeno. Haga clic aquí para ver una versión más grande de esta figura.

Figura 9: Experimentos de solución de problemas: volumen de medios y normalización. (A) El volumen de los medios limita el OCR máximo posible. Dado que los volúmenes de medios más altos conducen a una menor disponibilidad de O2 en la monocapa de RPE, cada volumen de medio en un solo pocillo de una placa de 96 pocillos tiene un OCR máximo. Por encima de este OCR, elO2 a nivel de las células es esencialmente 0% (anóxico). Por lo tanto, si uno está cerca del OCR teórico máximo para un volumen de medios dado, es útil reducir el volumen del medio, de modo que no se observe un "efecto techo" de OCR en el transcurso del experimento. Se muestra el OCR teórico máximo que se puede lograr en cada volumen de medio (en una placa estándar de 96 pocillos). Todos los valores se calcularon utilizando la calculadora en línea que se discute en la sección 4 del protocolo y se muestra en la Figura 7. (B) Normalización apropiada. Para experimentos en los que uno está interesado en el efecto de una variable en la capacidad de otra variable para inducir el metabolismo mitocondrial, una configuración experimental de OCR Delta-Delta es ideal. En la configuración de (B), se prueba la capacidad de dos medios diferentes para promover la β-oxidación del palmitato. Si se produce una β-oxidación del ácido graso, debería haber un aumento significativo del OCR mitocondrial. Algunos medios pueden promover la β-oxidación del palmitato mejor que otros. En el lado izquierdo del gráfico de OCR, se introducen dos medios diferentes (Medios 1 frente a Medios 2) en pozos paralelos de cultivos de RPE. Se obtiene el OCR basal. A continuación, se añade palmitato a la mitad de los pocillos que contienen cada tipo de medio. Esto crea cuatro condiciones: Media 1 - palmitato, Media 1 + palmitato, Media 2 - palmitato, Media 2 + palmitato. Se registra la respuesta de OCR a cada una de estas nuevas condiciones de medios. A continuación, los valores de OCR después de los tratamientos experimentales (promedio del cuadro discontinuo rojo en la fase de tratamiento) se restan de los valores de OCR de referencia antes del tratamiento (promedio del cuadro discontinuo rojo en la fase de referencia), creando gráficos de barras de OCR Delta (abajo a la izquierda). Por último, la capacidad de Media 1 frente a Media 2 para promover la β-oxidación se determina en un gráfico de barras OCR Delta-Delta (abajo a la derecha). Aquí, se calcula la diferencia entre "Delta OCR de Media 1 + palmitato" y "Delta OCR de Media 1 - palmitato" y se compara con la diferencia entre "Delta OCR de Media 2 + palmitato" y "Delta OCR de Media 2 - palmitato". Este tipo de configuración experimental y normalización aísla los efectos de Media 1 frente a Media 2 en la promoción de la β-oxidación; la estructura general de esta normalización es aplicable a cualquier experimento en el que se mida el efecto de una variable sobre la capacidad de otra variable para alterar el OCR. Abreviaturas: OCR = tasa de consumo de oxígeno; EPR = epitelio pigmentario de la retina. Haga clic aquí para ver una versión más grande de esta figura.
Tabla 1: La receta para los medios de cultivo celular RPE. Haga clic aquí para descargar esta tabla.
Discusión
El metabolismo mitocondrial del EPR desempeña un papel fundamental en la patogénesis de las enfermedades comunes de la retina que causan ceguera, como la DMAE y la RVP. El modelado del metabolismo mitocondrial del EPR in vitro permite aislar su estado metabólico del de los tejidos circundantes, además de someter al tejido a diferentes agresiones que simulan la enfermedad de forma controlada. Este modelado in vitro del metabolismo mitocondrial del EPR se ha visto facilitado por el advenimiento de cultivos primarios humanos de alta fidelidad y de iPSC-EPR que alcanzan el estado de diferenciación y la polaridad adecuados necesarios para aproximarse estrechamente al EPR in vivo. Si bien el monitoreo de la tasa de consumo de oxígeno (OCR) en tales cultivos es un método ideal para monitorear el metabolismo mitocondrial, la configuración para el monitoreo de OCR a menudo impide el crecimiento de cultivos en las condiciones necesarias para un EPR altamente polarizado y completamente diferenciado. Aquí, describimos Resipher como un sistema novedoso para monitorear el metabolismo mitocondrial de RPE a través de la evaluación a largo plazo en tiempo real de OCR en cultivos de RPE altamente diferenciados y polarizados.
Se han utilizado otros métodos para monitorizar el OCR en el RPE. El analizador Seahorse XF está diseñado para monitorizar el OCR durante cortos periodos de tiempo con manipulaciones agudas de la función mitocondrial. Sin embargo, los ensayos de caballito de mar requieren que las células se cultiven en placas personalizadas, que no son propicias para soportar una alta polaridad y diferenciación de RPE21. Calton, Vollrath y sus colegas adaptaron el Seahorse para la evaluación de cultivos de EPR altamente diferenciados cultivados en soportes microporosos cortando la membrana microporosa en pedazos y colocándolos en la placa del caballito de mar, pero este método solo funciona para el monitoreo a corto plazo y en el punto final de los cultivos, ya que las células no tienen acceso al CO2 Durante el ensayo, el ensayo solo se puede realizar en condiciones no estériles, y el corte del soporte microporoso inducirá la muerte y la disfunción de la parte del borde del soporte microporoso con el tiempo22. El Barofuse es un sistema de perfusión sin bomba en el que se pueden cargar en el sistema de perfusión tiras de EPR cultivadas en soportes microporosos, lo que permite monitorizar el OCR en tiempo real23. De manera similar a la configuración modificada para el caballito de mar por Calton, Vollrath y sus colegas, las principales limitaciones de la evaluación del EPR con Barofuse son la necesidad de cortar los soportes microporosos y la naturaleza a corto plazo del punto final del ensayo. El Oxygraph también está diseñado para cambios cinéticos rápidos en OCR en respuesta a manipulaciones metabólicas24. No se ha utilizado para cultivos de EPR y sufriría las mismas limitaciones para evaluar cultivos de EPR altamente polarizados y diferenciados que el caballito de mar y el Barofuse.
A diferencia de estos otros métodos, el sistema de OCR descrito aquí permite la monitorización del OCR mientras el RPE se cultiva en placas/sustratos de cultivo celular estándar en condiciones estándar con medios de RPE estándar en una incubadora de CO2 de cultivo celular estándar, lo que proporciona un sondeo fácil y conveniente de cultivos de RPE altamente diferenciados y polarizados. Además de generar datos sobre los cambios de OCR en tiempo real por parte del sistema, esas mismas celdas se pueden utilizar para ensayos adicionales al final del período de monitoreo de OCR. Esto permite experimentos muy flexibles en los que el efecto de una intervención sobre el OCR se prueba repetidamente durante un período de semanas (por ejemplo, la inducción de RPE EMT en la Figura 5) o en los que se puede probar la recuperación a largo plazo de una intervención (por ejemplo, la recuperación del desacoplamiento mitocondrial en la Figura 3) o en los que se pueden monitorizar los cambios metabólicos en cascada en respuesta a una intervención inicial (por ejemplo, los efectos del suero en el OCR una vez que se agotan los nutrientes del medio en la Figura 2). El sistema de OCR en este documento es particularmente conveniente para medir el OCR en cultivos de RPE altamente polarizados y diferenciados. Tales cultivos son funcionalmente postmitóticos, con empaquetamiento apretado y pigmentación pesada. Esto significa que cada pocillocontiene números de celda casi idénticos, lo que evita la necesidad de normalizar el OCR con el número de celda para la mayoría de los experimentos. Incluso cuando se requiere la normalización al número de células, la fuerte pigmentación del EPR y los bordes celulares bien demarcados permiten que la normalización ocurra con un recuento de células simple no invasivo basado en imágenes de campo claro. Para los experimentos que involucran RPE indiferenciado y proliferación de RPE, como los experimentos de EMT en la Figura 5, se hace necesario normalizar el OCR por pocillo al número de células para saber qué es el OCR "por célula".
Fuera del campo de la retina, el sistema se ha empleado para estudiar la respiración celular y la actividad metabólica en varios tipos de células, incluidas las células de los islotes pancreáticos25, el músculo esquelético26, el cáncer de ovario27, los cardiomiocitos28 e incluso organismos completos, como C. elegans29. El monitoreo en tiempo real y a largo plazo de OCR utilizando el sistema de OCR descrito aquí reveló información clave sobre los cambios bioenergéticos y la disfunción mitocondrial en estos diversos modelos de enfermedades.
El sistema Resipher tiene limitaciones. El método para determinar el OCR es fundamentalmente diferente al analizador Seahorse, BaroFuse u Oxygraph. Requiere el establecimiento de un gradiente de O2 para calcular el OCR, y el gradiente puede tardar horas en establecerse. Por lo tanto, los experimentos cinéticos rápidos, posibles en los otros sistemas, no son posibles con este sistema. Además, a diferencia de los otros sistemas, Resipher no tiene ningún puerto de inyección para la entrega rápida de moléculas pequeñas o la recolección de metabolitos. En su lugar, se debe retirar la tapa de detección en una campana de cultivo celular, y se deben introducir fármacos o sustituir los medios, junto con la recogida manual de los metabolitos que se van a analizar.
Para establecer y solucionar problemas de un experimento mediante el sistema de OCR descrito en este documento, se recomienda lo siguiente. En primer lugar, minimice la evaporación. Recordemos que el gradiente de O2 en la columna de medios por encima de la monocapa RPE depende en gran medida de la altura de la columna9, y el sistema calcula el OCR en función del gradiente de O2 . Por lo tanto, si hay una marcada disminución de la columna de medios durante el experimento debido a la evaporación, el gradiente de O2 cambiará, afectando las lecturas de OCR. Mantener llena la bandeja de agua de la incubadora es fundamental, pero también se sugiere que el agua se coloque en todos los pozos no utilizados de la placa de 96 pocillos. Además, los pozos en el borde de la placa tienen tasas de evaporación más altas, por lo que estos pozos se dejan vacíos de células en los experimentos típicos presentados anteriormente. El sensor de humedad del sistema OCR puede ayudar a controlar la humedad de la incubadora. En la Figura 8A, la caída de la humedad durante el experimento sugiere que la bandeja de agua de la incubadora está vacía. A medida que la evaporación se acelera en el pozo, las lecturas de concentración de O2 para el pozo aumentarán más y eventualmente se "mantendrán estables" a la concentración de O2 atmosférico (~ 200 μM) (Figura 8A).
En segundo lugar, confirme que el "sándwich" del sistema OCR esté ensamblado correctamente. Los puntos de contacto metálicos en la parte inferior del dispositivo y la parte superior de la tapa de detección deben estar limpios, sin residuos que impidan el contacto completo. El dispositivo y la tapa de detección deben colocarse completamente al ras y alineados uniformemente en la placa de 96 pocillos sin ninguna inclinación. El cable USB que conecta el dispositivo al hub no debe estar en tensión, lo que puede resultar en un par del "sándwich" y una restricción del movimiento adecuado del dispositivo.
En tercer lugar, asegúrese de que el dispositivo y los sensores de la tapa de detección estén calibrados. En la Figura 2B se detalla cómo comprobar rápidamente el correcto funcionamiento del sensor al comienzo de cada experimento. En cuarto lugar, asegúrese de que un pozo en particular no muestre un OCR atípico antes de la manipulación experimental. Después de asegurarse de que los sensores funcionen, determinar los valores de OCR de referencia para todos los pocillos con celdas puede ayudar a determinar si ciertos pocillos contienen celdas enfermas. La Figura 8B muestra varios pozos que se someten a una evaluación de OCR de referencia, en la que el pozo de color azul muestra claramente una OCR más baja (y, por lo tanto, una alta concentración deO2 ). Este pozo es un caso atípico y debe excluirse de la manipulación experimental.
Quinto, minimice las manipulaciones ambientales durante las lecturas activas de OCR. El gradiente deO2 es muy sensible a los cambios de temperatura, humedad, niveles deCO2 de la incubadora y presión atmosférica. La apertura de la puerta de la incubadora afecta significativamente a estos factores, causando interrupciones temporales en las lecturas de OCR hasta que el gradiente deO2 de la columna de medios vuelve al equilibrio (Figura 8C). Los parámetros que afectan al OCR se pueden monitorear en la interfaz en línea del sistema en la pestaña "Entorno" (Figura 8A).
En sexto lugar, determine el volumen de medios óptimo para el experimento. Si bien un volumen insuficiente del medio puede crear artefactos debido a la evaporación excesiva (consulte la primera medida de solución de problemas anterior) o al agotamiento prematuro de los nutrientes en el medio, el volumen excesivo del medio limita la disponibilidad de O2 para la monocapa del RPE, lo que desencadena la hipoxia9. La Figura 7 es una captura de pantalla de la calculadora en línea disponible para determinar el efecto del volumen del medio en la concentración deO2 en la monocapa RPE. El OCR máximo posible para un volumen de medios determinado se muestra en la Figura 9A. Si la tasa de OCR para un experimento dado utilizando un volumen dado se aproxima a la tasa mostrada en la Figura 9A, entonces la concentración de O2 en la monocapa RPE se acerca a la anoxia (0%) y se necesita un volumen de medio más bajo. En general, los experimentos que involucran procesos mitocondrialmente intensivos en el cultivo de EPR deben tener volúmenes de medios no mayores de 75 μL por 96 pocillos.
Séptimo, realizar una normalización adecuada para aislar los efectos de una intervención experimental en el OCR. Dado que los diferentes pozos pueden tener un OCR de referencia diferente, es fundamental obtener lecturas de OCR de referencia para cada pocillo antes de una intervención experimental. Reste el OCR de referencia del OCR después de la intervención experimental para obtener el "OCR Delta", que demuestra el efecto de la intervención experimental en el OCR. El método para obtener el "OCR Delta" se muestra en la Figura 3 y la Figura 9B. Si uno está interesado en los efectos de una intervención experimental sobre la capacidad de otra intervención experimental para inducir OCR, se necesita un paso de normalización adicional, el "OCR Delta-Delta". Este ejemplo se ilustra en la Figura 9B, donde la capacidad del palmitato (una intervención experimental) para inducir un aumento del OCR (mediante la inducción de la β-oxidación) depende del tipo de medio para el cultivo del EPR (una segunda intervención experimental).
Por último, minimice el riesgo de contaminación. El sistema monitorea el OCR mediante la introducción de un sensor de oxígeno en el medio por encima de las células. Esto aumenta el riesgo de infección. Las caídas inesperadas en el OCR durante el experimento o un OCR inesperadamente bajo al comienzo del experimento podrían ser signos de una infección. Las placas deben ser monitoreadas activamente para detectar infecciones bajo un microscopio de cultivo celular. La contaminación cruzada entre placas de 96 pocillos podría ocurrir si se reutiliza una tapa de detección. Para minimizar dicha contaminación cruzada, se debe sumergir toda la tapa en etanol al 70% durante 20 minutos para la descontaminación después de realizar un experimento, antes de volver a utilizar la tapa de detección en un nuevo experimento (ver sección 1.2.15 del protocolo).
En conclusión, se presenta un protocolo para la monitorización a largo plazo en tiempo real del metabolismo mitocondrial en cultivos de EPR de alta fidelidad mediante la evaluación del OCR utilizando un sistema novedoso llamado Resipher. Se puede utilizar para numerosas aplicaciones en cultivos de EPR altamente polarizados y diferenciados, en particular, sondeando las propiedades metabólicas fisiológicas del EPR aislado, así como el metabolismo alterado del EPR en modelos in vitro de enfermedad de la retina, incluidos AMD y PVR.
Divulgaciones
Richard A. Bryan y Kin Lo son empleados de Lucid Scientific, que fabrica el sistema Resipher.
Agradecimientos
Agradecemos a los Dres. Daniel Hass y Jim Hurley por la idea de probar la solubilidad delO2 en medios nuevos frente a medios condicionados como control. Agradecemos a la Dra. Magali Saint-Geniez por su aporte editorial sobre el manuscrito. Agradecemos a Scott Szalay de Instrument and Electronic Services Core, Kellogg Eye Center, por adaptar la cámara de hipoxia con el cable USB Resipher. No se utilizaron fondos federales para la investigación de HFT. El Núcleo de Servicios Electrónicos cuenta con el apoyo de la EY007003 P30 del Instituto Nacional del Ojo. Este trabajo cuenta con el apoyo de una subvención departamental sin restricciones de Investigación para Prevenir la Ceguera (RPB). J.M.L.M. cuenta con el apoyo de la Iniciativa James Grosfeld para la Degeneración Macular Relacionada con la Edad Seca, la Fundación E. Matilda Ziegler para Ciegos, una subvención del banco de ojos Eversight, una subvención K08EY033420 del Instituto Nacional del Ojo y el apoyo de Dee y Dickson Brown, así como de la Fundación David y Lisa Drews Discovering Hope. D.Y.S. cuenta con el apoyo del Programa Scientia de la UNSW. L.A.K. cuenta con el apoyo del Premio Iraty, Monte J. Wallace, Michel Plantevin, una beca R01EY027739 del Instituto Nacional del Ojo y el VR220059 de Actividad de Adquisición de Investigación Médica del Ejército del Departamento de Defensa.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| 0.25% Tripsina-EDTA | Gibco | #25-200-056 | |
| 3,3',5-triyodo-L-tironina sal sódica | Sigma | T5516 | |
| 32 canales Tapa Resipher | Lucid Scientific | NS32-101A para Falcon | |
| Antimicina A de streptomyces sp. | Sigma | A8674-25MG | Inhibidor del Complejo III de la cadena de transporte de electrones |
| BAM15 | Sigma | SML1760-5MG | Agente de desacoplamiento para aumentar la respiración mitocondrial |
| DMSO, grado de cultivo celular | Sigma-aldrich | D4540-100ML | Vehículo para la reconstitución de fármacos mitocondriales |
| Sustratos de recubrimiento de matriz extracelular: Synthemax II-SC | Corning | #3535 | Matriz extracelular para hfRPE |
| Sustratos de recubrimiento de matriz extracelular: Vitronectina | Gibco | A14700 | Matriz extracelular para iPSC-RPE |
| FCCP | Sigma | C2920-10MG | Agente de desacoplamiento para aumentar la respiración mitocondrial |
| Suero fetal bovino (Bio-Techne S11550H) | Bio-Techne | S11550H | |
| Hidrocortisona-Ciclodextrina | Sigma | H0396 | |
| Cámara de hipoxia | Embrient Inc. | MIC-101 | |
| N1 Suplemento de medios | Sigma | N6530 | |
| Solución de aminoácidos no esenciales | Gibco | 11140050 | |
| sensor de O2 | Tecnología Sensit o Detectores forenses | P100 o FD-90A-O2 | |
| Penicilina-estreptomicina | Gibco | 15140-122 | |
| TGF humano recombinante y beta; 2 | Peprotech | 100-35B | Factor de crecimiento transformante beta-2 para inducir la transición epitelio-mesenquimal |
| Rotenona | Sigma | R8875-1G | Inhibidor del complejo I de la cadena de transporte de electrones |
| Placa compatible | Corning | #353072 | |
| Taurina | Sigma | T8691 | |
| α MEM (Modificación Alfa de los Medios de Eagle) | Corning | 15-012-CV |
Referencias
- Shu, D. Y., Butcher, E., Saint-Geniez, M. EMT and EndMT: emerging roles in age-related macular degeneration. Int J Mol Sci. 21 (12), 4271(2020).
- Shu, D. Y., Lovicu, F. J. Myofibroblast transdifferentiation: the dark force in ocular wound healing and fibrosis. Prog Retin Eye Res. 60, 44-65 (2017).
- Hurley, J. B. Retina metabolism and metabolism in the pigmented epithelium: a busy intersection. Annu Rev Vis Sci. 7, 665-692 (2021).
- Wu, W., et al. Deficient RPE mitochondria energetics leads to subretinal fibrosis in age-related macular degeneration. Invest Ophthalmol Vis Sci. 64 (8), 2420(2023).
- Hansman, D. S., et al. Metabolic reprogramming of the retinal pigment epithelium by cytokines associated with age-related macular degeneration. Biosci Rep. 44 (4), BSR20231904BSR20231904(2024).
- Li, K. X., et al. Modulation of pyruvate kinase M2 activity as a therapy in a primary RPE cell culture model of proliferative vitreoretinopathy. Invest Ophthalmol Vis Sci. 62 (8), 2213(2021).
- Gupta, S., et al. Progress in stem cells-based replacement therapy for retinal pigment epithelium: in vitro differentiation to in vivo delivery. Stem Cells Transl Med. 12 (8), 536-552 (2023).
- Wilson, D. F., et al. Oxygen distribution and vascular injury in the mouse eye measured by phosphorescence-lifetime imaging. Appl Opt. 44 (25), 5239-5248 (2005).
- Hass, D. T., et al. Medium depth influences O2 availability and metabolism in human RPE cultures. Invest Ophthalmol Vis Sci. 64 (14), 4(2023).
- Shu, D. Y., Butcher, E. R., Saint-Geniez, M. Suppression of PGC-1α drives metabolic dysfunction in TGFβ2-Induced EMT of retinal pigment epithelial cells. Int J Mol Sci. 22 (9), 4701(2021).
- Shu, D. Y., et al. Dimethyl fumarate blocks tumor necrosis factor-alpha-driven inflammation and metabolic rewiring in the retinal pigment epithelium. Front Mol Neurosci. 15, 896786(2022).
- Ng, P. Q., Saint-Geniez, M., Kim, L. A., Shu, D. Y. Divergent metabolomic signatures of TGFβ2 and TNFα in the induction of retinal epithelial-mesenchymal transition. Metabolites. 13 (2), 213(2023).
- Kar, D., et al. Choriocapillaris impairment is associated with delayed rod-mediated dark adaptation in age-related macular degeneration. Invest Ophthalmol Vis Sci. 64 (12), 41(2023).
- Curcio, C. A., Kar, D., Owsley, C., Sloan, K. R., Ach, T. Age-related macular degeneration, a mathematically tractable disease. Invest Ophthalmol Vis Sci. 65 (3), 4(2024).
- Maminishkis, A., et al. Confluent monolayers of cultured human fetal retinal pigment epithelium exhibit morphology and physiology of native tissue. Invest Ophthalmol Vis Sci. 47 (8), 3612-3624 (2006).
- Maminishkis, A., Miller, S. S. Experimental models for study of retinal pigment epithelial physiology and pathophysiology. J Vis Exp: JoVE. (45), e2032(2010).
- Zhang, Q., et al. A platform for assessing outer segment fate in primary human fetal RPE cultures. Exp Eye Res. 178, 212-222 (2019).
- Sharma, R., Bose, D., Montford, J., Ortolan, D., Bharti, K. Triphasic developmentally guided protocol to generate retinal pigment epithelium from induced pluripotent stem cells. STAR Protoc. 3 (3), 101582(2022).
- Marchetti, P., Fovez, Q., Germain, N., Khamari, R., Kluza, J. Mitochondrial spare respiratory capacity: Mechanisms, regulation, and significance in non-transformed and cancer cells. FASEB J. 34 (10), 13106-13124 (2020).
- Rosenfeld, P. J., Trivizki, O., Gregori, G., Wang, R. K. An update on the hemodynamic model of age-related macular degeneration. Am J Ophthalmol. 235, 291-299 (2022).
- Fitch, T. C., et al. Real-time analysis of bioenergetics in primary human retinal pigment epithelial cells using high-resolution respirometry. J Vis Exp: JoVE. (192), (2023).
- Calton, M. A., Beaulieu, M. O., Benchorin, G., Vollrath, D. Method for measuring extracellular flux from intact polarized epithelial monolayers. Mol Vis. 24, 425-433 (2018).
- Grumbine, M. K., et al. Maintaining and assessing various tissue and cell types of the eye using a novel pumpless fluidics system. J Vis Exp: JoVE. (197), (2023).
- Mu, C., Shearer, J. Protocol for measuring respiratory function of mitochondria in frozen colon tissue from rats. STAR Protoc. 4 (4), 102560(2023).
- Rocha, D. S., Manucci, A. C., Bruni-Cardoso, A., Kowaltowski, A. J., Vilas-Boas, E. A. A practical and robust method to evaluate metabolic fluxes in primary pancreatic islets. Mol Metab. 83, 101922(2024).
- Kanaan, M. N., et al. Cystine/glutamate antiporter xCT controls skeletal muscle glutathione redox, bioenergetics and differentiation. Redox Biol. 73, 103213(2024).
- da Veiga Moreira, J., et al. Methylene blue metabolic therapy restrains in vivo ovarian tumor growth. Cancers. 16 (2), 355(2024).
- McNally, L. A., Altamimi, T. R., Fulghum, K., Hill, B. G. Considerations for using isolated cell systems to understand cardiac metabolism and biology. J Mol Cell Cardiol. 153, 26-41 (2021).
- Misare, K. R., et al. The consequences of tetraploidy on Caenorhabditis elegans physiology and sensitivity to chemotherapeutics. Sci Rep. 13 (1), 18125(2023).
Reimpresiones y permisos
