En este trabajo se presenta un protocolo para trasplantar células con alta resolución espacial y temporal en embriones y larvas de pez cebra en cualquier etapa entre al menos 1 y 7 días después de la fertilización.
Artículo de método
Trasplante celular de alta resolución en embriones y larvas de pez cebra
En este artículo
Resumen
Resumen
El desarrollo y la regeneración se producen mediante un proceso de interacciones celulares dinámicas espacio-temporales codificadas genéticamente. El uso del trasplante de células entre animales para rastrear el destino de las células e inducir desajustes en las propiedades genéticas, espaciales o temporales de las células del donante y del huésped es un medio poderoso para examinar la naturaleza de estas interacciones. Organismos como los pollitos y los anfibios han hecho contribuciones cruciales a nuestra comprensión del desarrollo y la regeneración, respectivamente, en gran parte debido a su susceptibilidad al trasplante. El poder de estos modelos, sin embargo, se ha visto limitado por la baja trazabilidad genética. Del mismo modo, los principales organismos modelo genéticos tienen menor susceptibilidad al trasplante.
El pez cebra es un modelo genético importante para el desarrollo y la regeneración, y aunque el trasplante de células es común en el pez cebra, generalmente se limita a la transferencia de células indiferenciadas en las primeras etapas de desarrollo de la blástula y la gástrula. En este artículo, presentamos un método simple y robusto que extiende la ventana de trasplante de pez cebra a cualquier etapa embrionaria o larvaria entre al menos 1 y 7 días después de la fertilización. La precisión de este enfoque permite el trasplante de tan solo una célula con una resolución espacial y temporal casi perfecta tanto en animales donantes como huéspedes. Si bien destacamos aquí el trasplante de neuronas embrionarias y larvales para el estudio del desarrollo y la regeneración nerviosa, respectivamente, este enfoque es aplicable a una amplia gama de tipos de células progenitoras y diferenciadas y preguntas de investigación.
Introducción
El trasplante de células tiene una larga historia como técnica fundamental en la biología del desarrollo. A principiosdel siglo XX, los enfoques que utilizaban manipulaciones físicas para perturbar el proceso de desarrollo, incluido el trasplante, transformaron la embriología de una ciencia observacional en una experimental 1,2. En un experimento histórico, Hans Spemann y Hilde Mangold trasplantaron ectópicamente el labio dorsal de blastoporo de un embrión de salamandra al lado opuesto de un embrión huésped, induciendo el tejido cercano a formar un eje corporal secundario3. Este experimento demostró que las células podían inducir a otras células a adoptar ciertos destinos y, posteriormente, el trasplante se desarrolló como un método poderoso para interrogar preguntas críticas en biología del desarrollo con respecto a la competencia y la determinación del destino celular, el linaje celular, la capacidad inductiva, la plasticidad y la potencia de las células madre 1,4,5.
Los avances científicos más recientes han ampliado el poder del enfoque de trasplante. En 1969, el descubrimiento de Nicole Le Douarin de que la tinción nucleolar podía distinguir las especies de origen en las quimeras de los polluelos de codorniz permitió el seguimiento de las células trasplantadas y su progenie6. Este concepto fue posteriormente potenciado por el advenimiento de los marcadores fluorescentes transgénicos y las técnicas avanzadas de imagen5, y ha sido aprovechado para rastrear el destino de las células 6,7, identificar las células madre y su potencia 8,9 y rastrear los movimientos celulares durante el desarrollo del cerebro10. Además, el auge de la genética molecular facilitó el trasplante entre huéspedes y donantes de genotipos distintos, lo que permitió una disección precisa de las funciones autónomas y no autónomas de los factores de desarrollo11.
El trasplante también ha hecho contribuciones importantes al estudio de la regeneración, particularmente en organismos con fuertes capacidades regenerativas como las planarias y el ajolote, al dilucidar las identidades celulares y las interacciones que regulan el crecimiento y el patrón de los tejidos en regeneración. Los estudios de trasplante han revelado los principios de la potencia12, el patrón espacial13,14, las contribuciones de tejidos específicos15,16 y el papel de la memoria celular12,17 en la regeneración.
El pez cebra es un modelo de vertebrado líder para el estudio del desarrollo y la regeneración, incluso en el sistema nervioso, debido a sus programas genéticos conservados, alta manejabilidad genética, fertilización externa, gran tamaño de nidada y claridad óptica 18,19,20. El pez cebra también es muy susceptible al trasplante en las primeras etapas de desarrollo. El enfoque más destacado es el trasplante de células de un embrión donante marcado a un embrión huésped en la etapa de blástula o gástrula para generar animales en mosaico. Las células trasplantadas durante la etapa de blástula se dispersarán y dispersarán a medida que comienza la epibolía, produciendo un mosaico de células y tejidos marcados a lo largo del embrión21. Los trasplantes de gástrula permiten seleccionar las células trasplantadas de acuerdo con un mapa de destino aproximado a medida que se forma el escudo y se pueden determinar los ejes A-P y D-V21. Los mosaicos resultantes han sido valiosos para determinar si los genes actúan de forma autónoma de las células, probar el compromiso celular y mapear el movimiento de los tejidos y la migración celular a lo largo del desarrollo 5,11. El pez cebra mosaico se puede generar de varias maneras, incluida la electroporación22, la recombinación23 y la transgénesis F024 y la mutagénesis25, pero el trasplante proporciona la mayor manipulabilidad y precisión en el espacio, el tiempo y el número y los tipos de células. El estado actual del trasplante de pez cebra se limita en gran medida a las células progenitoras en etapas tempranas, con algunas excepciones que incluyen el trasplante de neuronas motoras espinales26,27, células ganglionares de la retina28,29 y células de la cresta neural en las primeras 10-30 h después de la fertilización (hpf)30, y de células hematopoyéticas y tumorales en peces cebra adultos 5,31. La expansión de los métodos de trasplante a una amplia gama de edades, etapas de diferenciación y tipos de células mejoraría en gran medida el poder de este enfoque para proporcionar información sobre los procesos de desarrollo y regeneración.
Aquí, demostramos una técnica flexible y robusta para el trasplante de células de alta resolución efectiva en embriones y larvas de pez cebra hasta al menos 7 días después de la fertilización. Los peces transgénicos huéspedes y donantes que expresan proteínas fluorescentes en los tejidos diana pueden utilizarse para extraer células individuales y trasplantarlas con una resolución espacial y temporal casi perfecta. La claridad óptica de los embriones y larvas de pez cebra permite obtener imágenes de las células trasplantadas en vivo a medida que el animal huésped se desarrolla o se regenera. Este enfoque se ha utilizado previamente para examinar cómo la dinámica de señalización espacio-temporal influye en la identidad neuronal y la guía de los axones en el embrión32, y para examinar la lógica por la cual los factores intrínsecos y extrínsecos promueven la guía de los axones durante la regeneración en las larvasde peces 33. Si bien nos centramos aquí en el trasplante de neuronas diferenciadas, nuestro método es ampliamente aplicable tanto a tipos de células indiferenciadas como diferenciadas en muchas etapas y tejidos para abordar cuestiones de desarrollo y regeneración.
Protocolo
Todos los aspectos de este procedimiento relacionados con el trabajo con peces cebra vivos han sido aprobados por el Comité Institucional de Cuidado y Uso de Animales de la Universidad de Minnesota (IACUC) y se realizan de acuerdo con las pautas de IACUC.
1. Configuración inicial única del aparato de trasplante (Figura 1)
- Ensamble el microscopio para trasplantes según las instrucciones del fabricante.
NOTA: Este protocolo utiliza un microscopio de fluorescencia vertical con un objetivo de inmersión en agua de 40x. - Ensamble los micromanipuladores gruesos y finos y móntelos en el lado derecho del microscopio de acuerdo con las instrucciones del fabricante.
NOTA: Debido a que es importante que la platina no se mueva en la dimensión Z en relación con la aguja, utilizamos un microscopio de platina fija con los micromanipuladores montados en la base del microscopio. Si no se dispone de un microscopio de platina fija, el micromanipulador puede montarse en la platina. - Conecte el soporte de microelectrodo al mango del electrodo y móntelo en el micromanipulador.
- Conecte un lado de la llave de paso de tres vías a la bomba de microjeringa. Conecte el otro lado de la llave de paso al tubo de polietileno mediante el adaptador de cromatografía.
- Conecte el lado opuesto del tubo de polietileno al soporte de microelectrodos mediante el adaptador de cromatografía.
- Llene la jeringa del depósito de 10 ml con aceite mineral ligero y móntela en la parte superior de la llave de paso.
- Llene la bomba de microjeringa y el tubo (la línea hidráulica) con aceite mineral del depósito, asegurándose de eliminar todas las burbujas de aire.
NOTA: Una vez que el aparato esté configurado, solo requerirá un mantenimiento ocasional de la línea hidráulica. La jeringa del depósito se puede quitar y volver a llenar con aceite mineral según sea necesario.
2. Prepara empujadores de embriones.
- Corta un trozo de hilo de pescar de 2 cm e insértalo parcialmente en el extremo estrecho de la punta de una pipeta P1000, dejando ~1,5 cm expuesto. Asegure el hilo de pescar con una pequeña gota de superpegamento y déjelo secar.
3. Preparar soluciones.
- Para preparar agarosa de bajo punto de fusión al 1% disuelta en medios embrionarios (LMA), disuelva la agarosa en medios embrionarios hirviendo34. Prepare alícuotas de 1-2 ml en tubos de ensayo de fondo redondo y almacene a 4 °C.
- Prepare la solución de Ringer con penicilina-estreptomicina y tricaína (RPT) combinando los siguientes ingredientes hasta concentraciones finales de 116 mM de NaCl, 2,9 mM de KCl, 1,8 mM de CaCl2, 5 mM de HEPES pH 7,2, 50 unidades/mL de penicilina y 50ug/mL de estreptomicina, agitando hasta que se disuelva y pasando por un filtro de vacío. Almacene a temperatura ambiente. Añadir tricaína inmediatamente antes de usar hasta una concentración del 0,02%.
4. Preparar a los animales donantes y huéspedes para el trasplante.
- Criar animales hospedadores y donantes de los genotipos apropiados, y con células de interés marcadas con fluorescencia, hasta la edad deseada.
NOTA: Para estos trasplantes, utilizamos animales donantes Tg(isl1:EGFPCAAX)fh474 32 y Tg(isl1:mRFP)fh1 35 y neuronas trasplantadas de núcleo motor vago del donante al huésped a 3dpf. - Prepare los portaobjetos de trasplante aplicando un contorno rectangular de esmalte de uñas transparente a cada portaobjetos de vidrio (Figura 2A). El esmalte de uñas crea una barrera hidrofóbica para retener el RPT agregado en el paso 4.8. Deje que se seque completamente antes de usar.
NOTA: Las diapositivas se pueden preparar con anticipación y almacenar indefinidamente. - Derrita una alícuota de LMA colocando un tubo de LMA en un vaso de precipitados de 50 ml que contenga 40 ml de agua y cocinando en el microondas durante 1 minuto al 50% de potencia o hasta que se derrita. Mantenga el LMA a 40 °C en un calentador de baño seco.
- Decorionar a los animales huéspedes y donantes con fórceps (si corresponde) y anestesiarlos colocándolos en pequeñas placas de Petri llenas de RPT a temperatura ambiente. Espere 5 minutos para que los animales estén completamente anestesiados antes de continuar.
- Montaje individual de animales donantes y huéspedes: Con la pipeta Pasteur y la bomba de pipeta, transfiera los animales de RPT a LMA, luego transfiera a los animales en pequeñas gotas de LMA a portaobjetos dentro del contorno del esmalte de uñas. Minimice la cantidad de RPT transferido a la LMA para que la LMA no se diluya. Antes de que el LMA se solidifique, use un empujador de embriones para orientar a los animales, asegurándose de que cada animal esté montado con el sitio de inserción de la aguja previsto hacia la derecha, y que todos los animales estén alineados verticalmente (Figura 2B); Deje que la agarosa se asiente por completo (~ 5 min) antes de continuar.
NOTA: Debido a que se pueden tomar muchas células de cada animal donante, es más eficiente montar de 2 a 4 animales huéspedes con un donante en cada portaobjetos. - Con un bisturí, corte una rodaja vertical recta a través de todas las gotas de agarosa justo a la derecha de los animales montados (Figura 2C). Retire la agarosa suelta del portaobjetos con toallitas de laboratorio.
- Con un bisturí, corte gajos de la agarosa para exponer el sitio de inserción de la aguja (Figura 2C). Retire la agarosa suelta del portaobjetos con toallitas de laboratorio.
- Aplique RPT al portaobjetos hasta que las gotas de agarosa estén completamente sumergidas (Figura 2D).
- Monte el portaobjetos preparado en el microscopio de trasplante. Enfoca al animal donante bajo el objetivo 40x. Para hacer esto, baje el objetivo hasta que rompa la superficie del medio, luego eleve el objetivo al plano focal deseado.
NOTA: El contacto líquido con el objetivo debe mantenerse hasta que se complete el trasplante (Figura 3C). - Enfocar las células del donante marcadas con fluorescencia de interés; Luego, mueva la etapa hacia la izquierda en preparación para ubicar la aguja de trasplante.
NOTA: En este punto, no ajuste el microscopio en los ejes Y o Z, para asegurarse de que puede volver a encontrar fácilmente al animal donante en la sección 5.
5. Prepare la aguja de trasplante.
- Inserte una micropipeta en el extractor de micropipetas y tire de una aguja de microinyección.
NOTA: La forma de la aguja debe ser similar a la utilizada para las inyecciones de embriones de pez cebra en etapa de 1 célula o el pinzamiento del parche. Utilizamos un extractor de micropipetas con el siguiente programa: PRESIÓN = 500, CALOR = rampa + 80, TRACCIÓN = 90, VELOCIDAD = 70, TIEMPO = 250 (consulte la Tabla de materiales), aunque es probable que sea necesario determinar empíricamente los ajustes correctos para cada extractor. - Alinee la punta de la aguja con las divisiones del micrómetro de la etapa bajo un endoscopio de disección. Usando el micrómetro como guía de medición, use un par de pinzas afiladas para romper la aguja a un tamaño de orificio que sea ligeramente mayor que el diámetro de las células de interés (Figura 3A). Asegúrese de que la rotura esté lo más limpia posible, ya que los bordes irregulares pueden contribuir a la obstrucción de la aguja. NOTA: Para las neuronas motoras vagas (5-7 μm de diámetro), las agujas deben romperse hasta un diámetro interior de 10 μm, que corresponde a un diámetro exterior de 20 μm. Si es necesario, el tamaño, la forma y/o el ángulo de la punta de la aguja se pueden refinar con un microforge o un microgrinder36.
- Con una jeringa de 50 ml llena de aceite mineral ligero y equipada con un llenador de pipetas, llene completamente la aguja con aceite mineral (Figura 3B). Asegúrese de que no haya burbujas de aire. Deje la aguja llena a un lado hasta que esté lista para el montaje.
NOTA: Para asegurarse de que no haya burbujas de aire, inserte el relleno de pipeta completamente en la aguja y libere aceite mientras saca lentamente el relleno de la aguja. - En el aparato de trasplante, gire la llave de paso de tres vías de modo que su brazo largo mire hacia la bomba de microjeringa y presione el émbolo de la jeringa del depósito para eliminar todas las burbujas de aire de la línea hidráulica. Mantenga una ligera presión sobre el émbolo (para evitar el reflujo de aire en la línea) y gire la llave de paso de tres vías de modo que su brazo largo mire hacia la jeringa del depósito.
- Inserte la aguja en el soporte, teniendo cuidado de no introducir burbujas de aire. Ajuste el ángulo de la aguja de modo que mire directamente hacia la izquierda en un ángulo de 10-15° con respecto a la horizontal (Figura 3C).
- Utilice los micromanipuladores gruesos y finos para maniobrar la punta de la aguja bajo el objetivo del microscopio y enfocarla (Figura 3D).
NOTA: El posicionamiento aproximado de la aguja en los planos X e Y se puede realizar observando directamente el área debajo del objetivo mientras maniobra la aguja, ya que la aguja reflejará el haz de luz transmitido cuando se coloque debajo del objetivo. A continuación, se pueden utilizar los oculares de microscopio para un posicionamiento preciso. No ajuste la posición ni el enfoque de la platina del microscopio durante este paso. Utilice los micromanipuladores para colocar la punta de la aguja en la posición focal existente. - Si el líquido fluye hacia adentro o hacia afuera de la punta de la aguja, ajuste la presión con la bomba de jeringa hasta que se observe un menisco estable entre el aceite mineral y la solución de Ringer (Figura 3D).
NOTA: Si queda una burbuja de aceite en la punta de la aguja después de la estabilización, se puede eliminar utilizando el ajuste del plano X en el micromanipulador grueso para mover la aguja hacia la derecha hasta que su punta se haya retirado del RPT, luego nuevamente a la izquierda hasta que se reposicione debajo del objetivo.
6. Trasplante
NOTA: Todos los movimientos de la aguja deben realizarse utilizando el micromanipulador fino para esta sección.
- Mueva la platina hacia la derecha hasta que el animal donante vuelva a estar a la vista, teniendo cuidado de evitar la penetración accidental con la aguja.
- Vuelva a centrar y concéntrese en las células que se van a trasplantar y alinee la aguja con las células que se encuentran justo fuera del animal (Figura 4A).
NOTA: Es posible que deba cambiar entre campo claro y fluorescencia con frecuencia para garantizar una alineación adecuada. El uso de un filtro de densidad neutra puede ayudar a visualizar ambos simultáneamente. - Inserte la aguja en el animal donante.
NOTA: Los movimientos repetidos hacia adentro y hacia afuera con la aguja pueden ayudar a penetrar la piel. - Vuelva a estabilizar inmediatamente el menisco oleoso en la punta de la aguja con la bomba de microjeringa, como se describe en el paso 5.7.
- Coloque la punta de la aguja contra las células de interés y aplique una succión suave con la bomba de microjeringa (Figura 4B).
NOTA: Los movimientos suaves hacia adentro y hacia afuera durante la succión pueden ayudar a aflojar las células. - Cuando se haya extraído un número adecuado de células, retire la aguja del donante y vuelva a estabilizar inmediatamente el menisco oleoso en la punta de la aguja con la bomba de microjeringa.
- Teniendo cuidado de evitar el contacto de los animales o la agarosa con la aguja, vuelva a colocar el escenario para que quede a la vista el primer animal huésped.
- Centre y concéntrese en el área en la que se colocarán las células y alinee la aguja con esta región justo fuera del animal (Figura 4C).
- Inserte la aguja en el animal huésped e inmediatamente vuelva a estabilizar el menisco oleoso en la punta de la aguja con la bomba de microjeringa.
- Coloque la punta de la aguja en el sitio de deposición y aplique una presión suave con la bomba de microjeringa hasta que se libere el número correcto de células donantes de la aguja (Figura 4D).
NOTA: Si las células del donante y del huésped están marcadas con fluoróforos diferentes, un filtro multibanda para permitir la visualización simultánea puede ser muy útil en esta etapa. - Retire la aguja del huésped y vuelva a estabilizar inmediatamente el menisco oleoso en la punta de la aguja con la bomba de microjeringa.
- Repita los pasos 6.7-6.11 para todos los hosts restantes.
7. Recuperación del animal huésped
- Eleve el objetivo 40x y use el micromanipulador grueso para maniobrar la aguja de regreso a la posición de carga.
NOTA: La aguja se puede reutilizar para varios portaobjetos. - Retire el portaobjetos del microscopio de trasplante y colóquelo bajo un microscopio de disección.
- Desmonte a los animales huéspedes retirándolos con cuidado de la caída LMA con pinzas. Con una pipeta Pasteur de vidrio, transfiera los animales huéspedes a un plato con solución fresca de Ringer con penicilina/estreptomicina. Asegúrese de que los animales se recuperen de la anestesia y manténgalos en una incubadora de embriones hasta que estén listos para tomar imágenes. Sacrificar a los animales donantes de acuerdo con los protocolos aprobados.
NOTA: Nuestro método para la eutanasia consiste en sumergir a los animales en un baño de hielo durante al menos 1 hora, seguido de una inmersión en 500 mg/L de hipoclorito de sodio.
Resultados
Los resultados de los experimentos de trasplante se observan directamente mediante la visualización de células donantes marcadas con fluorescencia en animales huéspedes en los momentos apropiados después del trasplante utilizando un microscopio de fluorescencia. Aquí, trasplantamos neuronas vagas anteriores individuales a 3 dpf. A continuación, se incubaron los animales huéspedes durante 12 o 48 h, se anestesiaron, se montaron en LMA en un cubreobjetos de vidrio y se obtuvieron imágenes con un microscopio confocal (Figura 5). A las 12 h post-trasplante (hpt), observamos una neurona donante trasplantada con éxito (Figura 5A). Podemos confirmar la correcta posición de la célula, ya que se encuentra entre las neuronas vagas del huésped en la región anterior del núcleo motor del vago del huésped; la célula también parece intacta y sana, como lo indica la extensión de varias protuberancias cortas de neuritas (Figura 5A). A los 2 días después del trasplante (dpt), podemos confirmar de nuevo que una sola neurona ha sido trasplantada con éxito a la posición correcta del núcleo del huésped (Figura 5B). En este punto, observamos que la neurona ha extendido un nuevo axón hasta el 4º arco faríngeo (Figura 5B). La observación directa también revela cuándo el procedimiento ha fracasado. En este ejemplo, observamos un huésped de 2 dpt en el que no hay ninguna neurona donante; más bien, es evidente una pequeña mancha verde, probablemente un fragmento de una neurona donante que murió después del trasplante (Figura 5C). Aunque las tasas de éxito del trasplante variarán en función de la experiencia del usuario y del número y tipo de células trasplantadas, experimentamos una tasa de éxito (definida como la presencia de una neurona superviviente que ha extendido un axón en el huésped a 2-3 dpt) del 66% (n = 453 trasplantes) para los trasplantes de neuronas motoras vagas realizados a 3-4 dpf33.
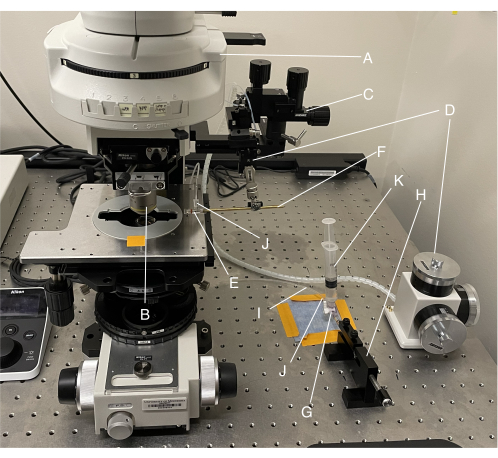
Figura 1: Descripción general del aparato de trasplante. (A) Microscopio de fluorescencia vertical; (B) Objetivo de inmersión en agua 40x; (C) micromanipulador grueso; (D) micromanipulador fino; (E) soporte de microelectrodos; (F) mango del electrodo; (G) llave de paso de tres vías; (H) bomba de microjeringa; (I) tubería de polietileno; (J) adaptadores de cromatografía; (K) Jeringa de depósito de 10 mL. Haga clic aquí para ver una versión más grande de esta figura.
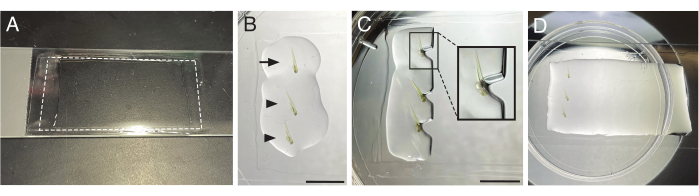
Figura 2: Montaje de animales para trasplante. (A) Un portaobjetos de vidrio esmerilado de 3 pulgadas x 1 pulgada con esmalte de uñas transparente aplicado en un contorno rectangular (línea discontinua). (B) Animales donantes (flecha) y hospedadores (punta de flecha) montados en gotas de agarosa, alineados verticalmente con el sitio objetivo del trasplante (cerebro posterior) orientados hacia la derecha. (C) Agarosa con el borde derecho y las cuñas recortadas para exponer el sitio objetivo del trasplante. Recuadro: zoom de la región en caja. (D) Portaobjetos de trasplante inundados con solución de Ringer con penicilina-estreptomicina y tricaína. Barras de escala = 5 mm. Haga clic aquí para ver una versión más grande de esta figura.
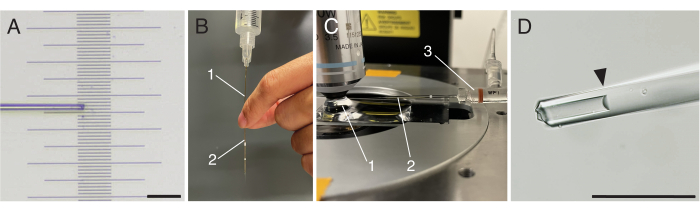
Figura 3: Preparación de la aguja de trasplante. (A) Aguja de trasplante rota sobre un micrómetro de etapa. (B) Relleno de pipeta (1) insertado en la aguja de trasplante (2) para llenar la aguja con aceite mineral. (C) Portaobjetos de trasplante preparados y aguja en su lugar en el microscopio de trasplante. 1: Menisco de agua entre el objetivo de inmersión de 40x y el portaobjetos inundado 2: Aguja de trasplante 3: Soporte de microelectrodos. (D) Punta de una aguja de trasplante rota con menisco oleoso estable (punta de flecha) vista a través del microscopio de trasplante con un aumento de 40x. Barras de escala = 100 μm Haga clic aquí para ver una versión más grande de esta figura.
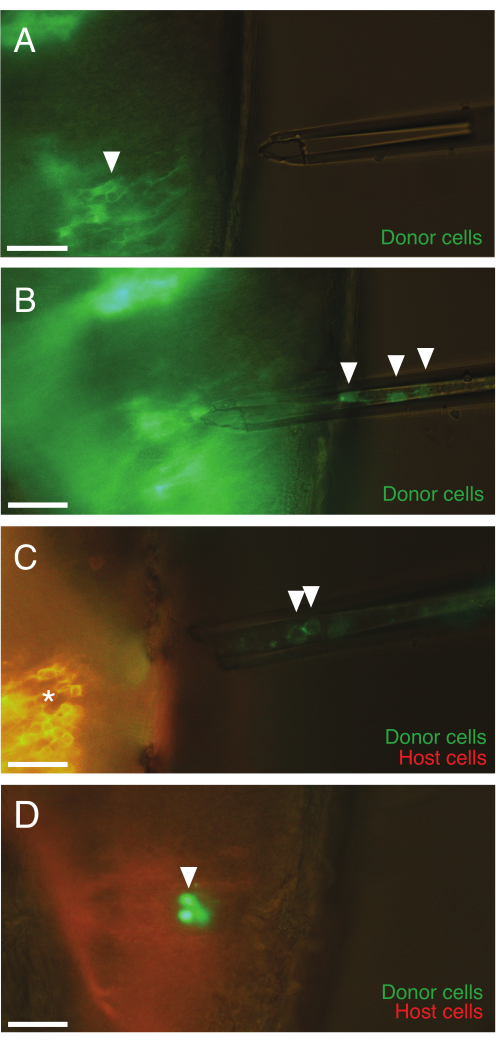
Figura 4: El proceso de trasplante bajo el microscopio. (A) Aguja colocada fuera del animal donante, dirigida a las neuronas motoras del vago (verde, punta de flecha). (B) Aguja colocada dentro del animal donante después de tomar las neuronas del donante marcadas con fluorescencia (puntas de flecha). (C) Aguja que contiene varias neuronas donantes (puntas de flecha) colocadas fuera del animal huésped, dirigida a las neuronas motoras del huésped anterior (rojo, asterisco). (D) Animal huésped después del trasplante con aguja retirada. Un grupo de neuronas donantes trasplantadas que expresan GFP (punta de flecha) han sido expulsadas al huésped. Barras de escala = 30 μm Haga clic aquí para ver una versión más grande de esta figura.
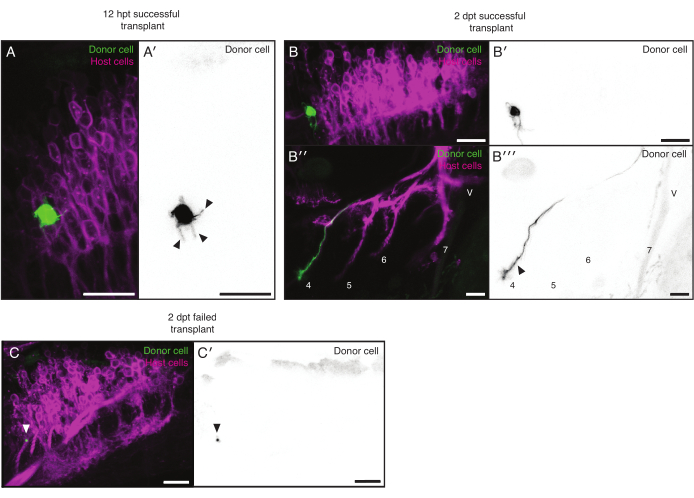
Figura 5: Resultados representativos. (A,B) Trasplantes exitosos. (A) La región anterior del núcleo motor vago de un huésped de 12 hpt (magenta) que contiene una neurona donante (verde, negro en A'). La neurona donante ha extendido varias neuritas (flechas en A'). (B) El núcleo motor vago (B-B') y las ramas del axón faríngeo (B''-B''', ramas del axón marcadas) de un huésped de 2 dpt (magenta) que contiene una neurona donante (verde, negro en B', B'''). La neurona donante ha extendido un nuevo axón a la rama 4 (puntas de flecha). Las figuras 5A,B representan diferentes animales. (C) Trasplante fallido. El núcleo motor vago de un huésped de 2 dpt (magenta). No hay neurona donante; más bien, hay una pequeña mancha (verde, negra en C'), que probablemente representa un fragmento de una neurona donante muerta (punta de flecha). Barras de escala = 20 μm. Abreviaturas: dpt = días después del trasplante; HPT = horas después del trasplante. Haga clic aquí para ver una versión más grande de esta figura.
Discusión
Durante más de un siglo, la biología del desarrollo y la regeneración se ha basado en experimentos de trasplante para examinar los principios de la señalización celular y la determinación del destino celular. El modelo del pez cebra ya representa una poderosa fusión de enfoques genéticos y de trasplante. El trasplante en las etapas de blástula y gástrula para generar animales en mosaico es común, pero limitado en cuanto a los tipos de preguntas que puede abordar. El trasplante en etapas tardías es raro, aunque se han descrito métodos para trasplantar neuronas motoras espinales embrionarias y células ganglionares de la retina a 16-18 hpf y 30-33 hpf, respectivamente 26,27,28. Inspirándose en estos esfuerzos previos, este trabajo mejora aún más el poder del trasplante de pez cebra al describir un enfoque que es aplicable a las etapas embrionarias y larvarias tardías, abriendo la puerta para su uso en estudios de regeneración, y que integra enfoques transgénicos fluorescentes modernos para mejorar el etiquetado, la transferencia y el seguimiento a largo plazo de las células.
Este protocolo presenta nuevas oportunidades para trasplantar células de muchas etapas de diferenciación y edades diferentes, incluso en el contexto regenerativo. Por ejemplo, el trasplante de neuronas diferenciadas se ha utilizado para examinar cómo la dinámica de señalización afecta la identidad neuronal al cambiar los contextos espaciales y temporales en los que se desarrollan las neuronas32; examinar el momento de la determinación neuronal26; como medio para dañar los axones y rastrear su recrecimiento con una resolución de una sola célula33; examinar el papel autónomo de la célula de un receptor durante la regeneración de axones a través de trasplantes de mutante a salvaje33; y examinar el papel de la memoria diana en la guía regenerativa de los axones33. Si bien hasta ahora nos hemos centrado en el trasplante neuronal, no conocemos ninguna característica de las neuronas que las haga especialmente adecuadas para este enfoque; Más bien, creemos que este enfoque es aplicable a muchos tipos de células. Esperamos y esperamos que los investigadores encuentren formas creativas de examinar la dinámica del desarrollo y la regeneración en muchos contextos utilizando esta técnica.
Las consideraciones críticas en este protocolo incluyen la selección de las etiquetas de las células, la idoneidad de las células para el trasplante y la accesibilidad de los tejidos. Es importante contar con una etiqueta fluorescente brillante, estable y permanente para las células del donante para facilitar tanto el trasplante como el seguimiento posterior. Se pueden utilizar tanto colorantes inyectados como transgenes, aunque los transgenes pueden ser más permanentes y más específicos de las células de interés. La resistencia al fotoblanqueo también prolonga el tiempo que se puede tardar en realizar el trasplante. Las células del donante deben ser lo suficientemente laxas y tener la forma adecuada para ser introducidas en la aguja desde el tejido circundante/matriz extracelular sin daños excesivos. Las modificaciones para diferentes tipos de celdas incluyen el ajuste del tamaño del orificio de la aguja, que debe ser ligeramente mayor que el diámetro de la celda de interés; orientar correctamente al animal durante el montaje para facilitar el acceso a las celdas de interés; y optimizar el nivel de succión o interrupción física requerida para aflojar y levantar las células. A medida que el animal envejece, ciertos tejidos pueden volverse visual y/o físicamente inaccesibles, aunque no tenemos conocimiento de ningún límite de edad específico. Por ejemplo, es probable que el cráneo acabe limitando el acceso a las neuronas. Las modificaciones pueden incluir el uso de animales no pigmentados para visualizar más fácilmente los tejidos internos, o la realización de pequeñas incisiones preliminares, ajustes al grosor del tubo microcapilar o la forma de la aguja estirada para facilitar la entrada de la aguja.
Las limitaciones de este protocolo incluyen que las células de ciertos tipos y edades no son susceptibles de trasplante, como se describió anteriormente, y la dificultad de mantener las estructuras a nivel de tejido durante el trasplante. Debido a que este procedimiento requiere que las células individuales se disocien de su entorno durante la extracción, se perderán las interacciones célula-célula y las estructuras de orden superior. El sistema inmune innato, que se vuelve funcional durante la embriogénesis, puede responder al daño tisular o a la presencia de células muertas y desechos en el sitio del trasplante, lo que podría afectar la supervivencia de las células del donante37,38. En etapas posteriores, las células del donante también pueden ser rechazadas por el sistema inmune adaptativo, que se vuelve funcional a las3-6 semanas después de la fertilización 39,40. Este problema puede evitarse mediante el trasplante a huéspedes que carecen de inmunidad adaptativa o innata 41,42,43,44.
Las posibles dificultades con el protocolo que pueden requerir la solución de problemas incluyen las siguientes: En primer lugar, el material dentro de la aguja debe moverse de manera suave y sensible durante la succión y la presión. Es probable que el movimiento saltarín e inconsistente sea causado por la presencia de burbujas de aire en la línea hidráulica o una obstrucción parcial en la aguja; Por lo tanto, se debe tener cuidado para eliminar todas las burbujas de aire de la aguja y la línea hidráulica durante la configuración. Si se encuentran burbujas de aire, regrese la aguja a la posición de carga con el micromanipulador grueso, retire la aguja del soporte y enjuague la aguja y la línea con aceite mineral antes de volver a ensamblar. La obstrucción de la aguja se puede mitigar evitando las roturas irregulares de la aguja. Las obstrucciones a veces se pueden resolver expulsando aceite mineral de la punta de la aguja para empujar la obstrucción o retrayendo completamente y luego volviendo a insertar la aguja en el RPT; de lo contrario, se debe usar una aguja nueva. En segundo lugar, puede haber dificultad para aflojar las células durante la extracción. Romper la punta de la aguja en ángulo para obtener una forma biselada, mover la aguja hacia adelante y hacia atrás durante la succión y ajustar la fuerza de succión puede ayudar a aflojar las células para que se desprendan del tejido. También se puede utilizar un micromolinillo para preparar agujas biseladas con un tamaño de apertura específico y un ángulo36. Por último, puede haber daño a las células durante la extracción. Las células gravemente dañadas pueden perder su forma definida y aparecer como pequeños fragmentos o manchas fluorescentes amorfas en la aguja de inyección. El fracaso de las células para sobrevivir después del trasplante también puede ser una indicación de daño y puede ser fácilmente analizado por la ausencia de células marcadas con fluorescencia en el huésped. La solución de problemas para el daño repetido de la celda podría incluir aumentar el tamaño del orificio de la aguja y limitar la cantidad de succión aplicada para reducir la fuerza de corte. Una aguja parcialmente obstruida también puede aumentar las fuerzas de cizallamiento, lo que provoca daños.
Divulgaciones
Los autores no tienen conflictos de intereses que revelar.
Agradecimientos
Agradecemos a Cecilia Moens por capacitarse en trasplante de pez cebra; Marc Tye por su excelente cuidado de los peces; y a Emma Carlson por sus comentarios sobre el manuscrito. Este trabajo fue apoyado por la subvención de los NIH NS121595 a A.J.I.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| 10 mL "jeringa de depósito" | Fisher Scientific | 14-955-459 | |
| 150 mL filtro de vacío desechable, .2 y micro; m, PES | Corning 431153 | ||
| bloque calefactor de 20 x 12 mm | Corning | 480122 | |
| llave de paso de 3 vías | Braun Medical Inc. | ||
| 3 x 1 Corredera de vidrio esmerilado | VWR | 48312-004 | |
| 40x Objetivo de inmersión en agua | Nikon MRD07420 | ||
| Cloruro de calcio dihidratado | Sigma-Aldrich | C3306 | |
| Manipulador grueso | Narishige | MN-4 | |
| Bomba de microjeringa personalizada | Universidad de Oregón | N/A | Fabricado por el taller mecánico de la Universidad de Oregón (tsa.uoregon@gmail.com). A continuación se enumera una alternativa disponible en el mercado. |
| Dumont #5 Pinzas | Fine Science Tools | 1129500 | |
| Eclipse FN1 "Microscopio de trasplante" | Nikon | N/A | |
| mango de electrodo | World Precision Instruments | 5444 | |
| Pluma Cuchilla quirúrgica estéril, #11 | VWR | 21899-530 | |
| Micromanipulador fino, tres ejes Hidráulico de aceite | Narishige | MMO-203 | |
| HEPES pH 7.2 | Sigma-Aldrich | H3375-100G | |
| Alta Precisión #3 Estilo Mango de Bisturí | Fisher Scientific | 12-000-163 | |
| Kimble Pipeta Pasteur Desechable de Borosilicato, Punta Ancha, 5.75 en | DWK Life Sciences | 63A53WT | |
| KIMBLE Adaptador de Cromatografía | DWK Life Sciences | 420408-0000 | |
| Kimwipes | Kimberly-Clark Professional | 34120 | |
| Aceite Mineral Ligero | Sigma-Aldrich | M3516-1L | |
| LSE Calentador digital de baño seco, 1 bloque, 120 V | Corning | 6875SB | |
| Bomba de microjeringa manual | World Precision Instruments | MMP | Alternativa comercial a la bomba de microjeringa personalizada |
| Soporte de microelectrodo | World Precision Instruments | MPH310 | |
| MicroFil Relleno de pipetas | World Precision Instruments | MF28G67-5 | |
| Esmalte de uñas | Electron MIcroscopy Sciences | 72180 | |
| Agua sin nucleasas | VWR | 82007-334 | |
| P-97 Extractor de micropipetas de tipo flameado/marrón | Sutter Instruments | P-97 | |
| Penicilina-estreptomicina | Sigma-Aldrich | p4458-100ML | 5.000 unidades de penicilina y 5 mg de estreptomicina/mL |
| bomba de pipeta 10 mL | Bel-Art | 37898-0000 | |
| Cloruro de potasio | Sigma-Aldrich | P3911 | |
| Professional Super Glue | Loctite | LOC1365882 | |
| Tubos de ensayo de | poliestireno de fondo redondoFalcon | 352054 | |
| Cloruro de sodio | Sigma-Aldrich | S9888 | |
| Micrómetro de etapa | Meiji Techno America | MA285 | |
| Jeringas sin aguja, 50 mL | BD Medical | 309635 | |
| Tricaína Metanosulfonato | Syndel USA | SYNCMGAUS03 | |
| Trilene XL Hilo de pescar | Berkley | XLFS6-15 | |
| Tubo de polietileno Nº 205 | BD Medical | 427445 | |
| UltraPure Low Melting Point Agarose | Invitrogen 16520050 | ||
| Micropipetas calibradas Wiretrol II | Drummond 50002010 |
Referencias
- Solini, G. E., Dong, C., Saha, M. Embryonic transplantation experiments: Past, present, and future. Trends Dev Biol. 10, 13-30 (2017).
- Gilbert, S. F. A Conceptual History of Modern Embryology. , Springer. New York, NY. (1991).
- Spemann, H., Mangold, H. Induction of embryonic primordia by implantation of organizers from a different species. 1923. Int J Dev Biol. 45 (1), 13-38 (2001).
- Kretzschmar, K., Watt, F. M. Lineage Tracing. Cell. 148 (1), 33-45 (2012).
- Gansner, J. M., Dang, M., Ammerman, M., Zon, L. I. Chapter 22 - Transplantation in zebrafish. Methods in Cell Biol. 138, 629-647 (2017).
- Le Douarin, N. Details of the interphase nucleus in Japanese quail (Coturnix coturnix japonica). Bull Biol Fr Belg. 103 (3), 435-452 (1969).
- Ho, R. K. Cell movements and cell fate during zebrafish gastrulation. Dev Suppl. , 65-73 (1992).
- Le Douarin, N. M. Developmental patterning deciphered in avian chimeras. Development, Growth & Differentiation. 50, S11-S28 (2008).
- Wagner, D. E., Wang, I. E., Reddien, P. W. Clonogenic neoblasts are pluripotent adult stem cells that underlie planarian regeneration. Science. 332 (6031), 811-816 (2011).
- Balaban, E., Teillet, M. A., Le Douarin, N. Application of the quail-chick chimera system to the study of brain development and behavior. Science. 241 (4871), 1339-1342 (1988).
- Carmany-Rampey, A., Moens, C. B. Modern mosaic analysis in the zebrafish. Methods. 39 (3), 228-238 (2006).
- Kragl, M., et al. Cells keep a memory of their tissue origin during axolotl limb regeneration. Nature. 460 (7251), 60-65 (2009).
- Rojo-Laguna, J. I., Garcia-Cabot, S., Saló, E. Tissue transplantation in planarians: A useful tool for molecular analysis of pattern formation. Semin Cell Dev Biol. 87, 116-124 (2019).
- Tanaka, E. M. The molecular and cellular choreography of appendage regeneration. Cell. 165 (7), 1598-1608 (2016).
- Hu, Y., et al. Muscles are barely required for the patterning and cell dynamics in axolotl limb regeneration. Front Genet. 13, 1036641(2022).
- Wells, K. M., Kelley, K., Baumel, M., Vieira, W. A., McCusker, C. D. Neural control of growth and size in the axolotl limb regenerate. Elife. 10, e68584(2021).
- Otsuki, L., Tanaka, E. M. Positional memory in vertebrate regeneration: a century's insights from the salamander limb. Cold Spring Harb Perspect Biol. 14 (6), e040899(2022).
- de Abreu, M. S., et al. Zebrafish as a model of neurodevelopmental disorders. Neuroscience. 445, 3-11 (2020).
- Alper, S. R., Dorsky, R. I. Unique advantages of zebrafish larvae as a model for spinal cord regeneration. Front Mol Neurosci. 15, 983336(2022).
- Blader, P., Strähle, U. Zebrafish developmental genetics and central nervous system development. Hum Mol Genet. 9 (6), 945-951 (2000).
- Kemp, H. A., Carmany-Rampey, A., Moens, C. Generating chimeric zebrafish embryos by transplantation. J Vis Exp. (29), e1394(2009).
- Boulanger-Weill, J., et al. Functional interactions between newborn and mature neurons leading to integration into established neuronal circuits. Curr Biol. 27 (12), 1707-1720 (2017).
- Dong, J., Stuart, G. W. Transgene manipulation in zebrafish by using recombinases. Methods Cell Biol. 77, 363-379 (2004).
- Kawakami, K., Shima, A., Kawakami, N. Identification of a functional transposase of the Tol2 element, an Ac-like element from the Japanese medaka fish, and its transposition in the zebrafish germ lineage. Proc Natl Acad Sci U S A. 97 (21), 11403-11408 (2000).
- Hwang, W. Y., et al. Efficient genome editing in zebrafish using a CRISPR-Cas system. Nat Biotechnol. 31 (3), 227-229 (2013).
- Elsen, J. S. Determination of primary motoneuron identity in developing zebrafish embryos. Science. 252 (5005), 569-572 (1991).
- Elsen, J. Chapter 5 - Cellular methods: detailed procedure for transplanting single cells. The Zebrafish Book. , (2000).
- Poulain, F. E., Gaynes, J. A., Stacher Hörndli, C., Law, M. -Y., Chien, C. -B. Analyzing retinal axon guidance in zebrafish. Methods Cell Biol. 100, 3-26 (2010).
- Masai, I., et al. N-cadherin mediates retinal lamination, maintenance of forebrain compartments and patterning of retinal neurites. Development. 130 (11), 2479-2494 (2003).
- Raible, D. W., Elsen, J. S. Regulative interactions in zebrafish neural crest. Development. 122 (2), 501-507 (1996).
- White, R. M., et al. Transparent adult zebrafish as a tool for in vivo transplantation analysis. Cell Stem Cell. 2 (2), 183-189 (2008).
- Barsh, G. R., Isabella, A. J., Moens, C. B. Vagus motor neuron topographic map determined by parallel mechanisms of hox5 expression and time of axon initiation. Curr Biol. 27 (24), 3812-3825 (2017).
- Isabella, A. J., Stonick, J. A., Dubrulle, J., Moens, C. B. Intrinsic positional memory guides target-specific axon regeneration in the zebrafish vagus nerve. Development. 148 (18), 199706(2021).
- Westerfield, M. Chapter 1: General methods for zebrafish care. The Zebrafish Book. , (2000).
- Grant, P. K., Moens, C. B. The neuroepithelial basement membrane serves as a boundary and a substrate for neuron migration in the zebrafish hindbrain. Neural Dev. 5 (1), 9(2010).
- Konantz, J., Antos, C. L. Reverse genetic morpholino approach using cardiac ventricular injection to transfect multiple difficult-to-target tissues in the zebrafish larva. J Vis Exp. (88), e51595(2014).
- Novoa, B., Figueras, A. Zebrafish: model for the study of inflammation and the innate immune response to infectious diseases. Adv Exp Med Biol. 946, 253-275 (2012).
- Speirs, Z. C., et al. What can we learn about fish neutrophil and macrophage response to immune challenge from studies in zebrafish. Fish Shellfish Immunol. 148, 109490(2024).
- Trede, N. S., Langenau, D. M., Traver, D., Look, A. T., Zon, L. I. The use of zebrafish to understand immunity. Immunity. 20 (4), 367-379 (2004).
- Lam, S. H., Chua, H. L., Gong, Z., Lam, T. J., Sin, Y. M. Development and maturation of the immune system in zebrafish, Danio rerio: a gene expression profiling, in situ hybridization and immunological study. Dev Comp Immunol. 28 (1), 9-28 (2004).
- Wienholds, E., Schulte-Merker, S., Walderich, B., Plasterk, R. H. A. Target-selected inactivation of the zebrafish rag1 gene. Science. 297 (5578), 99-102 (2002).
- Petrie-Hanson, L., Hohn, C., Hanson, L. Characterization of rag1 mutant zebrafish leukocytes. BMC Immunol. 10, 8(2009).
- Roh-Johnson, M., et al. Macrophage-dependent cytoplasmic transfer during melanoma invasion in vivo. Dev Cell. 43 (5), 549-562 (2017).
- Bukrinsky, A., Griffin, K. J. P., Zhao, Y., Lin, S., Banerjee, U. Essential role of spi-1-like (spi-1l) in zebrafish myeloid cell differentiation. Blood. 113 (9), 2038-2046 (2009).
Reimpresiones y permisos
