Este protocolo detalla la preparación de medios limitados en Zn2+, vasos de crecimiento y cultivos de semillas para producir ribosomas limitados en Zn2+ en micobacterias. Las trazas de Zn2+ conducen al crecimiento limitante de Zn2+ y describimos las características morfogénicas utilizadas como bioindicadores para verificar la limitación de Zn2+ in vitro en la bacteria modelo, Mycobacterium smegmatis, y el patógeno humano M. tuberculosis.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de método
Uso de Mycobacterium smegmatis como bioindicador de condiciones de crecimiento limitadas por zinc en micobacterias
* These authors contributed equally
En este artículo
Resumen
Resumen
Muchas bacterias construyen ribosomas alternativos en condiciones de crecimiento limitantes de Zn2+ reemplazando las proteínas ribosómicas de unión a Zn2+ con parálogos independientes de Zn2+. Definir un sistema para estudiar estos ribosomas alternativos ha resultado difícil porque la contaminación por Zn2+ en el laboratorio es común. Para abordar este problema, a veces se agregan agentes quelantes a los medios de crecimiento, pero este enfoque complica la respuesta biológica a la limitación gradual de Zn2+ y se asocia con la hibernación de los ribosomas. Aquí, se describen instrucciones detalladas para preparar medios y sembrar cultivos para el crecimiento limitado por Zn2+ sin agregar quelantes. Siguiendo este método, la bacteria modelo, Mycobacterium smegmatis, se somete a una morfogénesis, que depende de ribosomas alternativos. Debido a que la morfogénesis es tratable y solo ocurre en condiciones limitantes de Zn2+, M. smegmatis se puede usar como bioindicador para verificar las condiciones de crecimiento biológicamente relevantes. Se describen tres fenotipos de bioindicadores (densidad celular, longitud celular y fluorescencia de la coenzima F420) que indican la limitación de Zn2+ en el tipo salvaje, y se describen los cambios en estos bioindicadores para un mutante de deleción que no puede construir ribosomas alternativos. Dado que la contaminación por trazas de Zn2+ es difícil de controlar para cada lote de medios, y la cuantificación precisa de Zn2+ en cada preparación de medios es demasiado onerosa, seguir este fenotipo bioindicador es una forma accesible de validar la preparación de medios de crecimiento limitados en Zn2+. Para ayudar a identificar las condiciones adecuadas para el crecimiento limitante de Zn2+ y la producción alternativa de ribosomas, se perfilaron los cambios en los fenotipos de los bioindicadores para las preparaciones contaminadas con Zn2+ o severamente empobrecidas con Zn2+ de medios limitados en Zn2+. Se presentan más detalles para lograr el crecimiento limitante de Zn2+ y la producción alternativa de ribosomas en M. tuberculosis, junto con el fenotipo bioindicador asociado. En general, las instrucciones detalladas y los fenotipos de bioindicadores descritos aquí ayudarán a estandarizar la producción de ribosomas alternativos traduccionalmente activos en micobacterias.
Introducción
El ion zinc (Zn2+) es un micronutriente esencial y un componente estándar de los medios microbiológicos. Sin embargo, muchas bacterias soportan la limitación de Zn2+ en el medio ambiente, ya que las condiciones limitantes de Zn2+ están muy extendidas; soil1, marine2, y los nichos dentro del host3 suelen estar limitados por Zn2+. Como tal, la mayoría de las bacterias han desarrollado mecanismos para superar la limitación de Zn2+ y preservar la función celular4. Los sistemas involucrados en el mantenimiento de la homeostasis del Zn2+ están bajo un estricto control transcripcional5 y están involucrados en la eliminación de Zn2+ utilizando sistemas de importación de Zn2+ de alta afinidad, movilizando las reservas celulares de Zn2+ y reemplazando ciertas proteínas de unión a Zn2+ con parámetros alternativos independientes de Zn2+6. Un ejemplo de esto último son los parálogos de proteínas ribosómicas (RPs) independientes de Zn2+, que son una característica común de los regulones sensibles al Zn2+ en bacterias4. Estos RP independientes de Zn2+ altamente divergentes se distinguen de sus parálogos de unión a Zn2+ por la interrupción del motivo CXXC de unión a Zn2+7. Más de la mitad de los genomas procariotas secuenciados contienen al menos un par de RPs duplicados donde, en muchos de ellos, un RP se une a Zn2+, mientras que su parálogo no8. Mientras que la notación C+/C- (que indica la presencia/ausencia del motivo de unión Zn2+ rico en cisteína) se usa comúnmente en referencia a estos pares de RP parálogos7, los RP independientes de Zn2+ también se han descrito como versiones alternativas (Alt) de los parámetros RP primarios (Prim), de unión a Zn2+, ya que los AltRP sirven como RP alternativos para la biogénesis del ribosoma en el Zn2+-condición limitada en algunas bacterias y es una palabra clave con mejor capacidad de búsqueda9,10,11.
Debido a que la expresión de AltRP está estrictamente regulada por Zn2+, es lógico suponer que la expresión de AltRP ofrece redundancia funcional a las proteínas ribosómicas dependientes de Zn2+ frente a la limitación de Zn2+. De hecho, esta característica de las AltRPs se ha demostrado para la bacteria modelo del suelo Bacillus subtilis, donde el crecimiento se rescata durante la limitación de Zn2+ mediante la liberación de la superficie PrimRP L31 y su sustitución por la AltRP L31 L3112,13. Sin embargo, algunos AltRPs son paralógicos a los PrimRPs centrales, por ejemplo, S14, lo que significa que su incorporación es necesaria durante la biogénesis del ribosoma12,13. La reconstrucción del ribosoma con AltRPs es un programa comprometido y que requiere mucha energía. Si bien estos AltRPs centrales pueden servir para liberar Zn2+ del ribosoma, también es posible que algunos AltRPs hayan desarrollado una función adicional en el entorno limitado por Zn2+. Esto se ve respaldado por la observación de que los AltRP son divergentes de sus PrimRP parálogos; la homología de la secuencia de los genes AltRP suele ser mayor entre los homólogos de diferentes especies que con la secuencia del gen PrimRP de unión a Zn2+ dentro de la misma especie7,10. Debido a que los genes que codifican AltRPs altamente divergentes están bajo control transcripcional dependiente de Zn2+, se eliminan de la presión selectiva ejercida sobre los superoperones ribosómicos estrechamente regulados y altamente conservados14. La presión selectiva desacoplada sobre la información genética que codifica la maquinaria ribosómica y los AltRPs expone a estos RPs a trayectorias evolutivas diferentes a las de los PrimRPs homólogos y podría permitir la evolución específica del linaje del mismo AltRP en diferentes bacterias10,15. La existencia generalizada de AltRPs en bacterias y la regulación genética desacoplada de estos RPs únicos plantea una pregunta interesante sobre si la incorporación de AltRPs en los ribosomas bacterianos confiere una propiedad especial a los ribosomas que contienen AltRP (Alt-ribosomas).
Las micobacterias son un grupo ideal de bacterias para investigar las propiedades mecánicas de los ribosomas alternativos. En primer lugar, las micobacterias poseen un operón altRP altamente conservado que contiene cuatro genes que codifican AltRPs: S14-2, S18-2, L28-2 y L33-28,9. Las AltRP micobacterianas son significativamente diferentes de sus parámetros PrimRP; en los cuatro pares PrimRP/AltRP, un gen AltRP dado es más similar en todas las especies micobacterianas que en el gen PrimRP en la misma especie10. La evolución específica del linaje de las AltRPs también es evidente dentro de las micobacterias, como lo demuestran las AltRPs S18-2 y L28-2 en Mycobacterium tuberculosis y M. bovis, que contienen secuencias únicas en el extremo C-terminal que no están presentes en otras micobacterias10. En segundo lugar, este grupo de bacterias altamente relacionadas contiene miembros patógenos y no patógenos que residen en diversos entornos, desde el suelo (por ejemplo, M. smegmatis) hasta una miríada de huéspedes: humanos (por ejemplo, M. tuberculosis), bovinos (por ejemplo, M. bovis), acuáticos (por ejemplo, M. marinum) y aviares (por ejemplo, M. avium), por nombrar algunos. La naturaleza altamente conservada del operón altRP en micobacterias, la evolución específica del linaje de genes específicos de AltRP y los entornos muy diferentes en los que existen los miembros de este grupo brindan una oportunidad única para analizar la evolución conservada y específica del linaje de la función de AltRP y las propiedades mecanicistas de los ribosomas Alt. A pesar de la abundancia de AltRPs en los genomas procariotas, el papel de los AltRPs y los ribosomas Alt se ha investigado solo en unas pocas bacterias9,10,11,12,13,16,17,18,19. El establecimiento de un sistema estandarizado con métricas específicas para validar las condiciones de crecimiento limitantes de Zn2+ en micobacterias mejoraría los resultados experimentales y avanzaría en la comprensión de los ribosomas Alt en el campo de la investigación de ribosomas.
Zn2+ es un micronutriente; por lo tanto, las trazas de contaminación del Zn2+ en los productos químicos y el agua contribuyen a la biodisponibilidad del Zn2+, incluso cuando se omite en la preparación del medio. Las trazas de Zn2+ presentes en el agua o en los productos químicos pueden variar drásticamente de un laboratorio a otro, lo que afecta al resultado del crecimiento limitante de Zn2+. Cuantificar empíricamente el [Zn2+] en cada preparación independiente de medios es demasiado oneroso para la mayoría de los laboratorios que realizan ensayos de crecimiento de rutina, pero un mecanismo para eliminar la posibilidad de contaminación por Zn2+ en los medios de crecimiento sería intrínsecamente valioso. Con este fin, aquí se presenta un método detallado para preparar un medio limitado por Zn2+ (ZLM) químicamente definido, vasos de crecimiento y cultivos de semillas para el crecimiento limitante de Zn2+ y la producción de ribosoma Alt en M. smegmatis y M. tuberculosis. Las características morfogénicas clave (densidad celular medida por OD600, longitud celular y fluorescencia de la coenzima F420) después del crecimiento en ZLM se utilizan para verificar que se logró la limitación de Zn2+. La coenzimaF 420 es un cofactor de deazaflavina que tiene un papel importante en el catabolismo y la defensa contra el estrés oxidativo en metanógenos y micobacterias20,21. Es importante destacar que las micobacterias son autofluorescentes cuando se excitan a 420 nm debido a la abundancia de este cofactor22. El enlace molecular entre [Zn2+] y la fluorescencia de F420 permanece sin resolver, pero seguir la fluorescencia de F420 en cultivos es un bioindicador manejable y confiable.
En M. smegmatis, los fenotipos del bioindicador ocurren en las bacterias de tipo salvaje, pero un mutante de deleción que carece del operón altRP no experimenta el mismo programa morfogénico y puede usarse como un bioindicador diferencial10. Aunque M. tuberculosis no sigue el mismo programa morfogénico que M. smegmatis durante la limitación de Zn2+, M. tuberculosis tiene una respuesta robusta y global al ZnLimitación de 2+ y un fenotipo de bioindicador clave siguiendo este método23. Por lo tanto, el sistema definido aquí permite que los ribosomas Prim- y Alt- se generen en las mismas condiciones de crecimiento (es decir, limitación de Zn2+), lo que facilita la disección mecanicista de la función del ribosoma Alt y su papel en la configuración de la fisiología bacteriana. Este método de crecimiento se utilizó para resolver la estructura de los ribosomas alternativos activos y demostrar su actividad traslacional en M. smegmatis24 de tipo silvestre. Apoyando aún más que este método de crecimiento y fenotipo bioindicador destaca la funcionalidad biológica de AltRPs durante la limitación de Zn2+, la expresión de AltRP es necesaria para la morfogénesis dependiente de Zn2+ y tiene un profundo efecto en el transcriptoma y proteoma de M. smegmatis10,25. El mismo método, con pequeñas modificaciones en la cantidad de inóculo y el tiempo de incubación, se utiliza para generar cultivos limitados con Zn2+ de M. tuberculosis9,23. Aquí, se detallan los protocolos y fenotipos bioindicadores para lograr el crecimiento limitante de Zn2+ tanto en M. smegmatis como en M. tuberculosis, con un enfoque en M. smegmatis, ya que esta bacteria es más sensible a la contaminación por Zn2+ en los medios y es más ampliamente accesible que el patógeno de crecimiento lento.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Protocolo
NOTA: Las cepas utilizadas en este estudio son M. smegmatis silvestre mc2155 (donación del Dr. Robert Husson, Boston Children's Hospital) y la cepa mutante ΔaltRP (procedente del laboratorio Prisic10). Se pueden cultivar en un laboratorio de nivel de bioseguridad 1 (BSL1) o en uno de nivel 2 (BSL2), dependiendo de las regulaciones locales de bioseguridad y de los recursos disponibles. Aquí, el protocolo se describe para un laboratorio BSL2. Si se realiza en un laboratorio BSL1, una técnica aséptica con mechero Bunsen puede sustituir a la cabina de seguridad biológica. Además, los investigadores que deseen incluir otras cepas o condiciones deberán calcular el volumen de medio necesario en función del número total de cultivos analizados. Manipule la cepa patógena M. tuberculosis H37Rv (Mtb-H37Rv; donación del Dr. Robert Husson, Boston Children's Hospital) en un laboratorio BSL3 utilizando un respirador (por ejemplo, PAPR o N95). No reutilice matraces al cultivar micobacterias altamente virulentas, como Mtb-H37Rv. La cepa auxótrofa M. tuberculosis mc26206 (Mtb-Aux) está atenuada y puede manipularse en un laboratorio BSL2 (donación del Dr. William R. Jacobs Jr., Albert Einstein College of Medicine).
1. Preparación de los matraces
NOTA: Las condiciones de crecimiento limitantes en Zn2+ se logran en matraces Erlenmeyer de policarbonato reutilizables (autoclavables) de 250 mL. No utilice matraces de vidrio para el crecimiento limitante en Zn2+, o investigue y compare procedimientos rigurosos de lavado ácido con los resultados presentados en este protocolo19. Los matraces nuevos son adecuados para lograr condiciones de crecimiento limitantes en Zn2+, pero nunca mezcle matraces nuevos y usados en un mismo experimento. Deseche los matraces que muestren signos de debilidad (generalmente en las costuras) o que se hayan utilizado más de aproximadamente 20 veces. Revise regularmente los filtros de las tapas en busca de degradación y deseche aquellos que estén comprometidos. Si están presentes, deseche las tapas roscadas que cubren los filtros en la parte superior de las tapas. Este método describe las precauciones tomadas para limpiar los matraces y prepararlos para su reutilización.
- Etiquete permanentemente los matraces para que el mismo conjunto se utilice únicamente en condiciones de limitación de Zn2+. Etiquete otro conjunto de matraces para el crecimiento con Zn2+ abundante. Es útil usar colores diferentes para evitar mezclar los matraces.
- Nunca permita que los residuos de cultivo se sequen dentro de los matraces. Agregue agua inmediatamente a los matraces después de decantar el cultivo (por ejemplo, 100 mL). Si al final del crecimiento no se cosecha el cultivo, deseche todo el contenido vertiendo el cultivo completo en un recipiente para desecho líquido con una concentración final de lejía del 10%, después de registrar los fenotipos del bioindicador según se describe en este protocolo.
- Someta los matraces a autoclave en ciclo para líquidos (al menos 121 °C a 15 psi) durante 20 minutos, con el agua dentro y las tapas puestas.
- Después de la autoclave, lave los matraces con un detergente no iónico y de baja formación de espuma, y frótelos bien usando un cepillo suave. Asigne un cepillo que se utilice exclusivamente para lavar los matraces empleados en el crecimiento con limitación de Zn2+. Asegúrese de que los matraces estén limpios, sin residuos ni partículas. No frote ni use jabón en las tapas; enjuáguelas suavemente con agua desionizada.
- Enjuague bien los matraces con agua del grifo, seguido de tres enjuagues con agua desionizada (tipo II o III) y al menos un enjuague adicional con agua ultrapura (tipo I) (18,2 MΩ-cm a 25 °C y ≤ 5 ppb de carbono orgánico total).
- Coloque los matraces verticalmente boca abajo para que no se acumule agua en el fondo. No utilice estantes de secado de laboratorio montados en la pared, ya que sostienen los matraces en ángulo y permiten que se forme una pequeña acumulación de agua. Los estantes comunes para vajilla son suficientes. Deje que los matraces y las tapas se sequen completamente.
- Una vez secos, enrosque las tapas a los matraces y cúbralas con papel de aluminio. Fije una tira de cinta indicadora de autoclave al papel de aluminio para indicar el estado estéril y proteger los filtros de las tapas del polvo.
- Someta los matraces limpios a autoclave (al menos 121 °C a 15 psi) durante 20 minutos, seguido de un vacío posterior al ciclo para secar la carga (si el autoclave cuenta con esta función). Almacene los matraces secos y protegidos del polvo.
2. Preparación del medio limitado en Zn2+ (ZLM)
NOTA: Utilice únicamente vasos de plástico, cilindros graduados y cualquier otro material para preparar los medios. Designe un conjunto de material de laboratorio que se utilice exclusivamente para la preparación de medios con baja concentración de Zn2+. Enjuague todo el material de laboratorio minuciosamente con agua ultrapura (tipo I) antes y después de su uso. Utilice productos químicos de alta pureza y compre a los mismos proveedores, si es posible.
- Prepare el medio de Sauton limitado en Zn2+ sin sales adicionales de Zn2+26 mezclando los siguientes productos químicos con ~950 mL de agua ultrapura en un vaso de plástico de 1 L con una barra de agitación:
0.5 g de KH2PO4 (0.05%; PM: 136.09)
0.5 g de MgSO4 x 7H2O (0.05%; PM: 246.48)
2 g de ácido cítrico, anhidro (0.2%; PM: 192.12)
4 g de L-asparagina, 99% (0.4%; PM: 132.12)
60 mL de glicerol (6%)
189 µL de citrato férrico amónico 1 M (0.005%; PM: 265)- Agregue el glicerol utilizando una pipeta serológica plástica desechable de 50 mL. Enjuague bien la pipeta aspirando y expulsando aproximadamente 10 veces en el medio hasta que no quede glicerol residual en su interior.
NOTA: El glicerol es altamente viscoso y difícil de medir. Alternativamente, el glicerol también puede vertirse en un cilindro graduado y enjuagarse varias veces con unos 30 mL de agua ultrapura, que luego se añaden al medio. Si se sigue este procedimiento, comience con un volumen menor (~600 mL) para que el volumen final no supere ~950 mL tras añadir el glicerol y los enjuagues del cilindro graduado al medio.
- Agregue el glicerol utilizando una pipeta serológica plástica desechable de 50 mL. Enjuague bien la pipeta aspirando y expulsando aproximadamente 10 veces en el medio hasta que no quede glicerol residual en su interior.
- Lleve el volumen del medio a aproximadamente 950 mL y mezcle bien. La L-asparagina tarda unos minutos en disolverse; espere hasta que no queden partículas blancas antes de continuar.
NOTA: La solución de citrato férrico amónico confiere al medio un color amarillo claro. - Prepare 15 mL de solución fresca de NaOH (~10% p/v) con agua ultrapura en un recipiente de plástico (por ejemplo, un tubo cónico de 15 mL).
- Enjuague cuidadosamente un pH-metro con agua ultrapura antes de usarlo e introduzca únicamente la ampolla del pH-metro en el medio. Mantenga el pH-metro en el medio con agitación suave mientras ajusta el pH. Utilizando una pipeta plástica desechable, agregue la solución de NaOH recién preparada hasta alcanzar un pH final de 7.4.
NOTA: El pH inicial del medio es altamente ácido. Se requiere un gran volumen de solución de NaOH para elevar el pH hasta el rango neutro. Añada inicialmente 4-6 mL de la solución de NaOH; una vez que el pH alcance aproximadamente 6.5, agregue la solución de NaOH gota a gota. No sobrepase el pH objetivo de 7.4. Si esto ocurre, no intente reajustar con HCl u otros ácidos; deseche el medio. Es recomendable destinar un pH-metro exclusivamente para la preparación del medio limitado en Zn (ZLM) y no utilizarlo para medir el pH de otros medios o tampones que puedan contaminar la sonda. - Transfiera el medio a un cilindro graduado y complete hasta un volumen final de 1 L con agua ultrapura. Esterilice por filtración a través de un matraz de filtro desechable de 0.2 µm.
- Añada asépticamente 2.5 mL de solución de Tween-80 al 20%, esterilizada por filtración (concentración final 0.05%). Almacene a 4 °C protegido de la luz durante hasta 6 meses.
Crecimiento limitado por Zn2+ en M. smegmatis
NOTA: Debido a la variación entre lotes en la cantidad de Zn2+ presente en el ZLM, es fundamental utilizar el mismo lote de medio o varios medios que se hayan mezclado bien juntos para todos los cultivos en un experimento. Además de los medios necesarios para establecer los cultivos, se necesitan aproximadamente 100 mL adicionales para lavar y normalizar los cultivos semilla.
- Realice todos los pasos en una cabina de seguridad biológica. Prepare los cultivos semilla 18 h antes de iniciar un experimento de crecimiento. No utilice cultivos semilla sobrepoblados ni con agregados. Un cultivo semilla por cepa es suficiente.
- Añada asépticamente 5 mL de medio 7H9-ADC (caldo Middlebrook 7H9 con 0,05 % de Tween 80 y enriquecimiento ADC al 10 % [concentración final: albúmina sérica bovina al 0,5 %, dextrosa al 0,2 %, NaCl al 0,085 % y catalasa opcional al 0,0003 %]) a un tubo de biorreactor de 50 mL.
- Añada asépticamente 10 µL de células de stock glicerinado descongeladas (preparadas según26) directamente al medio. Coloque la tapa en el tubo.
- Coloque los tubos firmemente en un incubador con agitación a aproximadamente 45° de inclinación, de modo que el líquido alcance la mitad del tubo durante la agitación.
- Incube los tubos a 37 °C con agitación a 120 rpm durante aproximadamente 18 h.
- Revise los cultivos semilla nocturnos para asegurarse de que el cultivo esté uniformemente turbio y no presente agregados significativos. La densidad óptica a 600 nm (OD600) del cultivo nocturno debe ser idealmente de aproximadamente 0,5-0,8.
- Forme el pellet de los cultivos nocturnos en los tubos de biorreactor, utilizados para el crecimiento nocturno, mediante centrifugación a 3.000 x g durante 5 min a temperatura ambiente.
- Decante o aspire el sobrenadante y resuspenda en 5 mL de ZLM. Repita los pasos de centrifugación y resuspensión 2 veces, para un total de tres lavados.
- Durante los pasos de centrifugación, llene una cubeta hasta el desbordamiento con etanol al 70 % para esterilizarla. Deje reposar la cubeta llena en la cabina de seguridad biológica durante 10 min y enjuáguela bien 3 veces con ZLM utilizando una pipeta.
NOTA: El proceso de normalización celular requiere tiempo y práctica para realizarse eficientemente. Al normalizar las células directamente en la cubeta esterilizada con etanol, el proceso se acelera considerablemente. - Prepare suficientes cubetas según el número de cepas incluidas en el estudio; por ejemplo, este protocolo requiere dos cubetas esterilizadas, una para el tipo salvaje y otra para el mutante ΔaltRP.
- Durante los pasos de centrifugación, llene una cubeta hasta el desbordamiento con etanol al 70 % para esterilizarla. Deje reposar la cubeta llena en la cabina de seguridad biológica durante 10 min y enjuáguela bien 3 veces con ZLM utilizando una pipeta.
- Después de tres lavados con ZLM, resuspenda cada pellet celular en 2 mL de ZLM.
- Realice el blanco en un espectrofotómetro con 600 µL de ZLM en una cubeta. La cubeta no necesita estar esterilizada. Resérvela y úsela para hacer el blanco en el espectrofotómetro antes de normalizar cada cultivo (es decir, cada cepa).
- Trabajando con una cepa a la vez, transfiera 600 µL de células lavadas del paso 3.5 a una cubeta esterilizada preparada en el paso 3.4.1 y mida la OD600 inicial. Si la OD600 es superior a 1, continúe con el paso 3.8. Si la OD600 es inferior a 1, siga los subpasos 3.7.1 y 3.7.2.
- Si la lectura inicial de OD600 del paso 3.7 es inferior a 1, recoja todo el cultivo dentro de la cubeta, devuélvalo al resto de células semilla lavadas en el tubo de centrífuga y centrifugue nuevamente el cultivo como en el paso 3.3. Resuspenda el cultivo en un volumen menor que el usado en el paso 3.5 (por ejemplo, 1 mL) para lograr una mayor densidad celular y repita el paso 3.7.
- Si la OD600 después del paso 3.7.1 sigue siendo inferior a 1, el cultivo no es lo suficientemente denso; reinicie el procedimiento desde el paso 3.1. Incube los cultivos por más tiempo o aumente la cantidad de inóculo para preparar los cultivos nocturnos, de modo que la densidad final del cultivo nocturno sea aproximadamente OD600 = 0,5-0,8, como se describe en el paso 3.2.
- Calcule el volumen de ZLM que debe añadirse a los 600 µL de células lavadas en la cubeta para obtener una OD600 de 1 utilizando la siguiente ecuación y la OD600 medida en el paso 3.7:
Volumen de ZLM (μL) = (OD600 inicial - 1) × 600 μL - Añada el volumen de ZLM calculado en el paso 3.8 a la cubeta preparada en el paso 3.7, mezcle bien pipeteando de 5 a 10 veces y vuelva a medir la OD600.
- Ajuste la OD600 dentro del 5 % de OD600 = 1 siguiendo los subpasos indicados a continuación. Utilice dos pipetas, una de las cuales (tamaño P1000) esté dedicada exclusivamente a mezclar el cultivo, para evitar usar demasiadas puntas en cada ajuste.
- Si la OD600 es superior a 1, añada ZLM gota a gota (~50 µL cada vez), mezcle bien aspirando y expulsando 5-10 veces y mida la OD600. Repita este proceso según sea necesario hasta que el cultivo esté dentro del 5 % de OD600 = 1.
- Si la OD600 cae por debajo de 1 durante la normalización, añada más células lavadas (~20 µL al inicio) del paso 3.5, mezcle bien aspirando y expulsando de 5 a 10 veces y mida la OD600. Repita este proceso según sea necesario (o añada más ZLM como se describe en el paso 3.10.1 si la OD600 supera 1) hasta que el cultivo esté dentro del 5 % de OD600 = 1.
- Asegúrese de que el volumen en la cubeta no exceda ~1,5 mL durante la normalización celular para evitar derrames en el espectrofotómetro. Si es necesario, retire cultivo de la cubeta al diluir. También asegúrese de que el volumen de cultivo en la cubeta esté por encima del mínimo requerido para medir con precisión la OD600 en el espectrofotómetro. La mayoría de los espectrofotómetros requieren al menos 600 µL.
- Repita los pasos de normalización celular (3.6 - 3.10) para todas las cepas y condiciones incluidas en el estudio.
- Prepare el número total de matraces necesarios para un experimento añadiendo asépticamente 50 mL de ZLM a matraces Erlenmeyer plásticos de 250 mL preparados como se describe en el paso 1.
- Inocule los matraces añadiendo asépticamente 50 µL del cultivo normalizado con OD600 = 1 directamente desde la cubeta, para obtener una OD600 final de 0,001 (dilución 1:1000 del inóculo normalizado).
- Para cultivos que crecen sin limitación de Zn2+ (es decir, medio repleto de Zn2+, ZRM), añada 30 µL de ZnSO4 estéril 10 mM (preparado fresco a partir de una solución stock estéril 1 M) directamente a los matraces de cultivo, para una concentración final de 6 µM de ZnSO4.
- Incube los matraces a 37 °C con agitación a 100 rpm durante 3 días hasta la fase estacionaria (el día 0 es el día de la inoculación).
- Cada día de crecimiento, utilice un lector de microplacas con monocromador o con filtros para medir las siguientes métricas de crecimiento usando 200 µL de cultivo en una microplaca de 96 pocillos con fondo plano. Realice las lecturas inmediatamente después de dispensar las células para evitar que se sedimenten.
NOTA: No es necesario precalentar el lector de microplacas, ya que los valores absolutos de fluorescencia no son tan informativos como las razones y los escaneos de fluorescencia, y el pequeño volumen medido se equilibra rápidamente a la temperatura ambiente durante la preparación de la placa. La fluorescencia puede medirse desde la parte superior o inferior de la placa si hay condensación en la tapa, aunque los valores de intensidad de fluorescencia son generalmente más bajos cuando se leen desde la parte inferior.- Densidad celular (es decir, OD600): Para informar la OD600 obtenida de un lector de microplacas, genere una curva estándar para convertir la lectura del camino óptico de la microplaca usando un volumen fijo (por ejemplo, 200 µL) al camino óptico estándar de 1 cm.
- Fluorescencia del cofactor F420 (ex 420 nm/em 475 nm): Para lectores de microplacas con filtros, use el conjunto de filtros más cercano (por ejemplo, ex 430 nm/em 488 nm) y microplacas negras de 96 pocillos.
- Mida la fluorescencia de fondo a 375 nm (ex 375 nm/em 475 nm).
- Si utiliza un monocromador, genere un escaneo de intensidad de fluorescencia desde ex 230 - 440 nm en pasos de 5 nm y emisión fija a 475 nm.
- Si utiliza un monocromador, calcule el porcentaje de intensidad de fluorescencia a 375 nm respecto a 420 nm usando la ecuación:
F375/420 (%) = (F375/F420) x 100
4. Grabación y medición de la longitud celular
- En el día 3, visualice y registre la longitud de las células. Limpie un portaobjetos y un cubreobjetos con una toallita sin pelusa. Pipetee una gota de 10 µL de cultivo sobre el portaobjetos y coloque el cubreobjetos directamente encima del cultivo. Presione suavemente el cubreobjetos para que el cultivo se extienda y ocupe casi toda el área debajo del cubreobjetos. Prepare los portaobjetos y visualice inmediatamente para evitar que se sequen.
NOTA: Si el cultivo no se extiende fácilmente, los residuos impiden un buen contacto y el movimiento del agua dificultará enfocar las células. Prepare un nuevo portaobjetos. - Utilizando un microscopio compuesto (o de contraste de interferencia diferencial, DIC, véase más abajo) con objetivos de inmersión en aceite de 100x y oculares de 10x (aumento total de 1000x) y un accesorio de cámara, visualice el portaobjetos preparado.
NOTA: Las células son mucho más fáciles de observar con el contraste proporcionado por la microscopía de contraste de interferencia diferencial (DIC)10. Utilice este tipo de microscopio para obtener imágenes de alta calidad, si es posible. Para análisis rutinarios y verificación del estado de crecimiento limitado por Zn2+, un microscopio compuesto de luz estándar es suficiente. - Tome fotografías de áreas del portaobjetos que contengan múltiples células enfocadas, en plano (es decir, que se vea toda la longitud de la célula) y que no estén en movimiento. Registre suficientes imágenes en diferentes áreas del portaobjetos (o en varios portaobjetos del mismo cultivo) para que se midan al menos 100 células.
- Utilizando el mismo microscopio y objetivo, capture una imagen de un portaobjetos de calibración.
- En Fiji27, use la herramienta de línea recta para trazar una línea a lo largo de la longitud del portaobjetos de calibración. Seleccione Analyze > Set scale y complete la distancia conocida y la unidad de la barra de escala. Seleccione Global para aplicar la escala a todas las imágenes y mediciones futuras.
- Abra una fotografía del microscopio. Use la herramienta de línea recta para trazar una línea a lo largo de la longitud de una célula y presione la tecla M del teclado para medir la célula. Mida al menos 100 células de cada cultivo.
- Copie los datos de longitud generados en la ventana emergente de Fiji en un software de hoja de cálculo o guárdelos como un archivo de valores separados por comas (.csv) para su análisis estadístico.
5. Modificaciones para cultivar M. tuberculosis (Mtb) limitado en Zn2+
NOTA: A diferencia de Mtb-H37Rv, Mtb-Aux no puede sintetizar L-leucina ni D-pantotenato, y estos suplementos se añaden al medio28. La suplementación para Mtb-Aux no afecta la limitación de Zn2+, y ambas cepas muestran fenotipos similares en ZLM23. Este protocolo es una modificación del protocolo publicado previamente23, siendo la principal diferencia que los cultivos se incuban durante 8 días en lugar de 10 para reducir la formación de agregados y permitir el enriquecimiento de células individuales, lo cual es necesario para aplicaciones posteriores como las infecciones de macrófagos. Para otras diferencias menores, consulte la publicación original23. El método de inoculación difiere del de M. smegmatis debido al inóculo mucho mayor necesario para iniciar el crecimiento de M. tuberculosis.
- Para Mtb-Aux, proporcione una suplementación adicional de 50 µg/mL de L-leucina y 48 µg/mL de D-pantotenato en todos los medios. Esterilice por filtración soluciones stock 1000x de 50 mg/mL de L-leucina y 48 mg/mL de D-pantotenato de calcio con un filtro de 0,2 µm y añádalas a los medios esterilizados.
- Añada asépticamente 1 mL de células en stock de glicerol descongeladas a 4 mL de 7H9-ADC en un tubo redondo de 14 mL con tapa de rosca (para Mtb-Aux) o en un tubo de biorreactor de 50 mL (para Mtb-H37Rv).
- Incube a 37 °C sin agitación hasta que el cultivo alcance una DO600 ~1. Esto tomará aproximadamente 1 semana. Aere el cultivo una vez al día abriendo el tubo en una cabina de seguridad biológica y pipeteando varias veces para mezclar el cultivo.
- Inocule 1 mL del cultivo estático en 50 mL de 7H9-ADC en un matraz plástico ventilado de 250 mL. Un cultivo de 50 mL en 7H9-ADC es suficiente para réplicas biológicas triplicadas por cepa y condición (es decir, tipo salvaje en ZLM y ZRM). Tenga cuidado de evitar grandes agregados (es decir, grandes grupos de células) dejando reposar el cultivo durante 5-10 min antes de la inoculación, permitiendo que los agregados sedimenten al fondo del tubo, y tomando el cultivo desde la parte superior.
NOTA: La inoculación con grandes agregados produce cultivos grumosos, lo que afecta la normalización y la reproducibilidad del cultivo. - Incube a 37 °C con agitación a 100 rpm hasta que el cultivo alcance una DO600 de 0,5-0,8 (fase logarítmica media). Esto tomará de 3 a 5 días.
- Transfiera el cultivo a un tubo cónico de 50 mL y pelete las células mediante centrifugación a 3.000 x g durante 10 min a temperatura ambiente. Descarte el sobrenadante aspirando 40 mL con una pipeta serológica y eliminando el sobrenadante restante con una micropipeta P1000.
NOTA: Este paso es crítico para reducir la retención de Zn2+ procedente del medio 7H9-ADC. - Resuspenda el precipitado en 5 mL de ZLM y complete el volumen total del cultivo a 50 mL en el tubo cónico con ZLM.
- Repita la centrifugación a 3.000 x g durante 10 min a temperatura ambiente para pellear las células. Descarte el sobrenadante. Resuspenda el precipitado celular hasta un volumen final de 50 mL según se describe en el paso 5.7.
- Mida la DO600 de las células semilla lavadas y calcule el volumen necesario para obtener una DO600 inicial de 0,05 (Mtb-H37Rv) o 0,08 (Mtb-Aux) en 50 mL utilizando la siguiente ecuación:
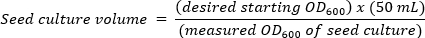
NOTA: El crecimiento de Mtb-Aux con una DO600 inicial de 0,05 es inconsistente; por lo tanto, se utiliza una DO600 más alta de 0,08 para lograr un crecimiento constante. - Aliquote el volumen del cultivo semilla calculado en el paso 5.9 en un tubo cónico nuevo de 50 mL y complete el volumen hasta 50 mL con ZLM. Vierta el cultivo lavado y normalizado desde el tubo cónico en matraces Erlenmeyer plásticos preparados según se describe en el paso 1. Repita utilizando el mismo tubo cónico para todas las réplicas biológicas de cada cepa y condición.
- Para cultivos crecidos sin limitación de Zn2+ (es decir, medios repletos de Zn2+, ZRM), añada 30 µL de ZnSO4 estéril 10 mM directamente a los matraces de cultivo para alcanzar una concentración final de 6 µM de ZnSO4.
- Incube los matraces de cultivo a 37 °C con agitación a 100 rpm durante 8 días. Mida la DO600 y la fluorescencia F420 durante todo el crecimiento según se describe en el paso 3. Descarte los cultivos si presentan grumos durante los primeros días de crecimiento (es decir, el cultivo no parece turbio y hay grumos distribuidos en todo el cultivo).
NOTA: Idealmente, los cultivos deben ser mayormente planctónicos (es decir, libres de grandes grumos visibles a simple vista) durante los primeros días de crecimiento. Los cultivos de Mtb, especialmente los de ZLM, se vuelven progresivamente más grumosos a medida que avanzan, y es esperable que aparezcan grumos flotando en la superficie del medio en forma de escamas durante la fase logarítmica tardía23.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Resultados
Fenotipos bioindicadores de M. smegmatis
tipo silvestre M. smegmatis cultivos crecidos en ZLM que alcanzan Zn2+-limitación del crecimiento presentan tres fenotipos bioindicadores principales cuando se comparan con células cultivadas bajo condiciones de Zn2+-condiciones de saciedad: [1] disminución de la DO600, [2] células alargadas y [3] disminución del pico de fluorescencia a 420 nm. El mutante que carece de AltRPs (ΔaltRP)...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
Una contribución importante a la brecha de conocimiento sobre los fundamentos mecanicistas de los ribosomas alternativos es la dificultad para lograr condiciones limitantes de Zn2+ in vitro. La contaminación por trazas de Zn2+ en el entorno de laboratorio es común; por lo tanto, lograr condiciones de crecimiento reproducibles limitadas por Zn2+ es un desafío. La contaminación por Zn2+ puede originarse en varias fuentes, aunque la fuente más importante y común de contam...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
Los autores no tienen conflictos de intereses.
Agradecimientos
Este estudio fue financiado por la Fundación Nacional de Ciencias (NSF) CAREER Award 1844854, el Premio a la Innovación de la Asociación Americana del Pulmón IA-937538, y el Instituto Nacional de Salud (NIH) NIAID R21 AI109293 a S.P. La dirección actual de Allexa D. Burger es el Centro de Investigación de Biociencias del Pacífico, Universidad de Hawái en Mānoa, Honolulu, Hawái, Estados Unidos.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Sistemas de filtración al vacío de 1000 mL, línea estándar | VWR | 10040-440 | |
| Matraces agitadores Erlenmeyer de 125 mL | Greiner Bio-One | 679501 | |
| Tubos de cultivo de 14 mL, plástico, con tapones de doble posición | VWR | 60818-725 | |
| Matraces agitadores Erlenmeyer de 250 ml | Greiner Bio-One | ||
| 40X-1000X Lab Compuesto biológico binocular Microscopio | Omax | M82EZ | |
| 50 mL Tubos de biorreacción, estériles | VWR | 76211-286 | |
| Tubos de centrífuga de alto rendimiento de 50 mL con tapones de bandera | VWR | 89039-656 | |
| Alcojet Detergente en polvo de baja espuma | Alconox | 1404 | |
| Citrato de hierro (III) amonical, marrón | Thermo Scientific | AAA1119930 | MW: 265 g/mol, para una solución de 1M añadir 1,325 g a 5 mL de agua ultrapura; almacenar protegido de la luz a 4 C |
| Albúmina sérica bovina | Thermo Scientific | J10857-A1 | |
| D-pantotenato de calcio | Thermo Scientific | AC243300050 | |
| Catalasa | Sigma-Aldrich | C1345-10G | |
| Ácido cítrico anhidro, cristalino | Fisher Scientific | BP339-500 | |
| Dextrosa anhidra | Fisher Scientific | D14-500 | |
| Difco Middlebrook 7H9 Caldo | BD Diagnostics | 271310 | |
| DiluPhotometer OD600 para la determinación de la densidad celular y los ensayos de Bradford | Implen | OD600-10 | |
| GENios FL Lector de microplacas | Tecan | Descatalogado | |
| Glicerol | Fisher Scientific | G33-4 | |
| Infinite M200 PRO Lector de microplacas | multimodo Tecan | LGE140213-20BL | |
| L-Asparagina | Thermo Scientific AAB2147336 | ||
| L-Leucina | Thermo Scientific | A1231122 | |
| Cámara CCD Macrofire SP | Optronics | Para usar con el microscopio Olympus | |
| Sulfato de magnesio heptahidratado | VWR | 97062-134 | |
| Sistema de purificación de agua Milli-Q Direct 8 | Millipore | C85358 | |
| Moticam X3 | Motic | Descontinuado, reemplazado por Moticam X5 Plus; para uso con microscopio compuesto | |
| Ácido oleico | Thermo Scientific | 031997-14 | |
| Olympus BX51 microscopio vertical | Olympus | Descatalogado, reemplazado por BX53M | |
| Fosfato de potasio, monobásico | Fisher Scientific | BP362-500 | |
| Cubetas de plástico desechables semimicro de dos caras | VWR | 97000-590 | |
| Cloruro de sodio, cristal | VWR | VW1494-01 | |
| Hidróxido de sodio | Fisher Scientific | S318-500 | |
| Tween 80 | MP Biomedicals | 103170 | |
| Sulfuro de zinc heptahidratado, cristalino/ACS | MP Biomedicals | 219145290 |
Referencias
- Alloway, B. Soil factors associated with zinc deficiency in crops and humans. Environ Geochem Health. 31 (5), 537-548 (2009).
- Middag, R., de Baar, H. J. W., Bruland, K. W. The relationships between dissolved zinc and major nutrients phosphate and silicate along the GEOTRACES GA02 transect in the west Atlantic ocean. Global Biogeochem Cycles. 33 (1), 63-84 (2019).
- Corbin, B. D., et al. Metal chelation and inhibition of bacterial growth in tissue abscesses. Science. 319 (5865), 962-965 (2008).
- Panina, E. M., Mironov, A. A., Gelfand, M. S. Comparative genomics of bacterial zinc regulons: Enhanced ion transport, pathogenesis, and rearrangement of ribosomal proteins. Proc Natl Acad Sci. 100 (17), 9912-9917 (2003).
- Outten, C. E., O’Halloran, T. V. Femtomolar sensitivity of metalloregulatory proteins controlling zinc homeostasis. Science. 292 (5526), 2488-2492 (2001).
- Merchant, S. S., Helmann, J. D. Elemental economy: microbial strategies for optimizing growth in the face of nutrient limitation. Adv Micro Physiol. 60, 91-210 (2012).
- Makarova, K. S., Ponomarev, V. A., Koonin, E. V. Two C or not two C: recurrent disruption of Zn-ribbons, gene duplication, lineage-specific gene loss, and horizontal gene transfer in evolution of bacterial ribosomal proteins. Genom Biol. 2 (9), RESEARCH 0033(2001).
- Yutin, N., Puigbò, P., Koonin, E. V., Wolf, Y. I. Phylogenomics of prokaryotic ribosomal proteins. PLoS One. 7 (5), e36972(2012).
- Prisic, S., et al. Zinc regulates a switch between primary and alternative S18 ribosomal proteins in Mycobacterium tuberculosis. Mol Microbiol. 97 (2), 263-280 (2015).
- Dow, A., Prisic, S. Alternative ribosomal proteins are required for growth and morphogenesis of Mycobacterium smegmatis under zinc limiting conditions. PLoS One. 13 (4), e0196300(2018).
- Chen, Y. X., et al. Selective translation by alternative bacterial ribosomes. Proc Natl Acad Sci. 117 (32), 19487-19496 (2020).
- Natori, Y., et al. A fail-safe system for the ribosome under zinc-limiting conditions in Bacillus subtilis. Mol Microbiol. 63 (1), 294-307 (2007).
- Gabriel, S. E., Helmann, J. D. Contributions of Zur-controlled ribosomal proteins to growth under zinc starvation conditions. J Bacteriol. 191 (19), 6116-6122 (2009).
- Wolf, Y. I., Rogozin, I. B., Kondrashov, A. S., Koonin, E. V. Genome alignment, evolution of prokaryotic genome organization, and prediction of gene function using genomic context. Genom Res. 11 (3), 356-372 (2001).
- Akanuma, G., et al. Evolution of ribosomal protein S14 demonstrated by the reconstruction of chimeric ribosomes in Bacillus subtilis. J Bacteriol. 203 (10), e00599(2021).
- Owen, G. A., Pascoe, B., Kallifidas, D., Paget, M. S. B. Zinc-responsive regulation of alternative ribosomal protein genes in Streptomyces coelicolor involves Zur and σR. J Bacteriol. 189 (11), 4078-4086 (2007).
- Li, Y., et al. Zinc depletion induces ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 115 (32), 8191-8196 (2018).
- Li, Y., Corro, J. H., Palmer, C. D., Ojha, A. K. Progression from remodeling to hibernation of ribosomes in zinc-starved mycobacteria. Proc Natl Acad Sci. 117 (32), 19528-19537 (2020).
- Graham, A. I., et al. Severe zinc depletion of Escherichia coli. J Biol Chem. 284 (27), 18377-18389 (2009).
- Greening, C., et al. Physiology, biochemistry, and applications of F420- and Fo-dependent redox reactions. Microbiol Mol Biol Rev. 80 (2), 451-493 (2016).
- Gurumurthy, M., et al. A novel F 420 -dependent anti-oxidant mechanism protects Mycobacterium tuberculosis against oxidative stress and bactericidal agents. Mol Microbiol. 87 (4), 744-755 (2013).
- Patino, S., et al. Autofluorescence of mycobacteria as a tool for detection of Mycobacterium tuberculosis. J Clin Microbiol. 46 (10), 3296-3302 (2008).
- Dow, A., et al. Zinc limitation triggers anticipatory adaptations in Mycobacterium tuberculosis. PLoS Pathogens. 17 (5), e1009570(2021).
- Tobiasson, V., Dow, A., Prisic, S., Amunts, A. Zinc depletion does not necessarily induce ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 116 (7), 2395-2397 (2019).
- Dow, A., Burger, A., Marcantonio, E., Prisic, S. Multi-omics profiling specifies involvement of alternative ribosomal proteins in response to zinc limitation in Mycobacterium smegmatis. Front Microbiol. 13, 811774(2022).
- Singh, A. K., Reyrat, J. Laboratory maintenance of Mycobacterium smegmatis. Curr Protoc Microbiol. Chapter 10, Unit10C.1(2009).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Meth. 9 (7), 676-682 (2012).
- Sampson, S. L., et al. Protection elicited by a double Leucine and Pantothenate auxotroph of Mycobacterium tuberculosis in Guinea pigs. Infect Immunity. 72 (5), 3031-3037 (2004).
- Cheeseman, P., Toms-Wood, A., Wolfe, R. S. Isolation and properties of a fluorescent compound factor420, from Methanobacterium strain M.o.H. J Bacteriol. 112 (1), 527-531 (1972).
- Wayne, L. G., Hayes, L. G. An in vitro model for sequential study of shiftdown of Mycobacterium tuberculosis through two stages of nonreplicating persistence. Infect Immunity. 64 (6), 2062-2069 (1996).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Reimpresiones y permisos
