Este artículo cubre los procedimientos para inducir respuestas al estrés utilizando el estrés de restricción física en ratones y ratas. Se discuten las consideraciones adicionales que deben observarse al seleccionar y usar el estrés de restricción en modelos de roedores.
Artículo de método
Restricción para inducir estrés en ratones y ratas
En este artículo
Resumen
Resumen
En todas las especies animales, la exposición a condiciones estresantes induce respuestas al estrés. Un método para estudiar los efectos del estrés utilizando modelos de roedores es el procedimiento de estrés de restricción. El estrés por restricción se ha utilizado durante décadas para investigar los cambios en la fisiología, la genética, la neurobiología, la inmunología y otros sistemas afectados por el estrés. Debido a la facilidad de realizar el procedimiento, el bajo costo y las numerosas modificaciones a escala para la intensidad y la duración de la exposición al estrés, una vasta literatura de estudios ha utilizado el estrés de restricción en ratones y ratas. A modo de ejemplo, este estudio presenta datos publicados anteriormente que muestran el impacto del estrés de restricción en ratones transgénicos sobre los niveles plasmáticos de corticosterona y la liberación de norepinefrina inducida optogenéticamente. El estrés agudo de restricción aumentó los niveles plasmáticos de corticosterona, sin embargo, este efecto se atenuó en los ratones después de repetir el estrés de restricción. Sin embargo, la liberación estimulada de norepinefrina en el núcleo del lecho de la estría terminal solo aumentó en el grupo de estrés de restricción repetida. Estos datos ponen de relieve consideraciones importantes sobre los parámetros de restricción en las medidas dependientes. También se incluyen descripciones adicionales del estrés de restricción en ratas para comparar. Finalmente, se discute la influencia de los parámetros de la restricción (e.g., agudo vs. crónico) y las características de los sujetos animales (cepa, sexo, edad).
Introducción
Debido a la experiencia universal del estrés, las investigaciones sobre los mecanismos de las respuestas alteradas después de la exposición al estrés han sido un área constante de investigación durantevarias décadas. Estas investigaciones han comenzado a analizar los aspectos del estrés que pueden ser beneficiosos para aumentar la adaptabilidad y la capacidad de respuesta a los factores estresantes agudos de las experiencias de estrés que inducen alteraciones desadaptativas de las funciones fisiológicas y conductuales, a menudo como resultado de la exposición prolongada a factores estresantes repetidos y/o impredecibles. Muchas de estas respuestas a los factores estresantes afectan la función cerebral, el eje hipotálamo-hipófisis-suprarrenal (HPA), las ramas simpática y parasimpática del sistema nervioso autónomo y el sistema inmunológico. La exposición a factores estresantes inicia el aumento de la liberación del factor liberador de corticotropina (CRF) para aumentar la hormona adrenocorticotrópica (ACTH) y las hormonas glucocorticoides, como el cortisol en primates y muchos otros mamíferos y la corticosterona en roedores. Además, la epinefrina y la norepinefrina se liberan en toda la periferia y el cerebro como parte de la respuesta del sistema nervioso simpático3. Estas señales químicas interactúan con una serie de sistemas fisiológicos, como la función inmunitaria, el metabolismo, la reproducción y la reactividad neuronal4.
Las experiencias estresantes se asocian con una gran cantidad de afecciones, que incluyen aumentos en la ansiedad y la depresión, alteraciones en el aprendizaje y la memoria, deficiencias en la toma de decisiones y la función ejecutiva, y susceptibilidad al trastorno por uso de sustancias, entre otras. Cada uno de estos efectos depende tanto de los parámetros del factor estresante como de las características del individuo que experimenta el estrés4. La naturaleza del factor estresante, ya sea agudo o crónico y controlable o impredecible, altera sustancialmente los resultados observados. Estos aspectos del estrés parecen ser consistentes entre las experiencias humanas y los modelos animales. Por lo tanto, para modelar el estrés en estudios con animales, se debe considerar cuidadosamente la selección de los parámetros de exposición al estrés que sean apropiados para la especie, el sexo y la condición.
Aunque hay una serie de factores estresantes disponibles para estudios con roedores (incluyendo factores estresantes psicosociales como el estrés de aislamiento social o la derrota social, factores estresantes farmacológicos como la administración de cortisol o yohimbina, factores estresantes físicos como el choque de pies y la restricción, y factores estresantes multimodales que combinan o alternan entre condiciones), el enfoque de este manuscrito se centrará en el uso del estrés de restricción en ratones y ratas. El estrés de restricción puede elegirse sobre otros factores estresantes porque es fácil de realizar, económico, ajustable a varios tamaños de roedores, escalable tanto a períodos agudos como a largo plazo, y rara vez resulta en un daño adverso para el sujeto5. Aunque este manuscrito se centra en los cambios duraderos inducidos por la exposición al estrés por restricción, algunos estudios utilizan la restricción en roedores para examinar los mecanismos y comportamientos que ocurren durante la restricción, incluidas las conductas de afrontamiento activas involucradas en escapar del factor estresante 6,7,8,9. El objetivo de este manuscrito es proporcionar consideraciones metodológicas para evaluar el impacto del estrés de restricción en ratones o ratas.
Protocolo
Los experimentos y protocolos han sido aprobados por el Comité Institucional de Cuidado y Uso de Animales (IACUC) de la Universidad de Carolina del Norte en Chapel Hill (ratones) y la Universidad de Fairfield (ratas) y siguen las directrices de los NIH10.
1. Estrés de sujeción en ratones
NOTA: Los ratones ofrecen una serie de ventajas cuando se estudian los efectos del estrés en la fisiología y los sistemas neuronales. Con la prevalencia de líneas de ratones transgénicos, las investigaciones mecanicistas sobre las interacciones entre los genes y las exposiciones al estrés son fácilmente factibles. Ya sea que se utilicen ratones transgénicos o de tipo salvaje, se recomienda tener en cuenta la cepa de fondo. Además, debido a su tamaño y vivienda social, los ratones ofrecen una ventaja en la utilización del espacio sobre otras especies.
- Restricción Exposición al estrés
- Asigne aleatoriamente a los ratones a grupos de control de jaula en casa, estrés de restricción agudo o estrés de restricción crónica.
- Determine la duración de la exposición al estrés. En el caso de los factores estresantes agudos, utilice una sola sesión de 5 minutos hasta 12 horas confinado en el aparato de sujeción. En el caso de los factores estresantes crónicos, asegúrese de que la sesión coincida con la duración del factor estresante agudo, pero que se repita diariamente durante un período de 3 días y un máximo de 21 días.
NOTA: Debido a que los ratones no tendrán acceso a comida y agua mientras estén en las condiciones de restricción, considere si los animales de control de jaulas caseras también deben carecer de acceso a comida y agua. - Modifique los tubos cónicos de 50 mL para agregar orificios de ventilación.
- Use un taladro eléctrico con una broca de 1/8" para espaciar uniformemente los orificios alrededor de cada tubo cónico para garantizar el flujo de aire en todas las áreas del tubo.
- Coloque estos orificios para permitir que el mouse acceda al aire, independientemente de la dirección en la que esté orientado el mouse en el tubo. Asegúrese de que no queden bordes afilados después de la modificación.
NOTA: Estos tubos cónicos modificados deberían ser efectivos para la mayoría de los ratones adultos (~ 20-40 g), pero es posible que no restrinjan a los ratones pequeños/jóvenes ni a las cepas más grandes.
- En una sala de pruebas, separada del alojamiento de animales y de las pruebas de comportamiento, coloque al animal asignado a la restricción en el tubo cónico modificado con la tapa adjunta para confinar al ratón en el tubo durante la longitud designada de sujeción.
NOTA: Los detalles del diseño de la sala de pruebas pueden variar según el espacio disponible en la instalación; La sala puede incluir campanas extractoras y otros equipos de laboratorio y/o mesas/bancos de laboratorio o ser una sala de procedimientos vacía. Sin embargo, independientemente de la configuración de la sala, el entorno de la sala de contención debe permanecer constante durante las exposiciones repetidas a la contención para evitar alteraciones inducidas por el contexto en las respuestas al estrés11. - Coloque el tubo de sujeción horizontalmente sobre una superficie plana. Si es necesario, asegure el tubo con cinta de laboratorio o con un depósito de pipeta/reactivo para que no ruede con el ratón dentro.
NOTA: En condiciones de estrés, los ratones producen vocalizaciones ultrasónicas. Considerar si el diseño del estudio requiere aislamiento acústico de otros sujetos restringidos12. La corticosterona y otros marcadores de las respuestas al estrés siguen los ritmos circadianos. Como tal, se deben tener en cuenta las condiciones de iluminación y el tiempo de estrés. En todos los grupos de estrés, la restricción debe ocurrir en un momento constante del día, preferiblemente al principio del ciclo de luz 13,14,15. Para el estudio que se presenta aquí, los ratones fueron inmovilizados durante aproximadamente 3 horas después de encender las luces. - Monitoree a cada animal durante el estrés de sujeción al menos cada 20 minutos. Determine visualmente si el animal muestra respuestas inusuales (respiración lenta, falta de movimiento). Si se observa, retire al ratón del tubo de sujeción, póngase en contacto con un veterinario y excluya al ratón del estudio.
- Regrese el ratón a la jaula de inicio y bríndele acceso a la comida y al agua.
2. Estrés de restricción en ratas
NOTA: Como roedores más grandes, las ratas tienen ventajas a tener en cuenta al investigar los efectos del estrés. Al igual que los ratones, las ratas tienen varias cepas con respuestas diferenciales a la exposición al estrés16,17. Además, el aumento del tamaño de las ratas hace que las ratas sean más fáciles de usar con ciertas medidas de comportamiento, por ejemplo, la autoadministración de medicamentos.
- Restricción Exposición al estrés
- Asigne aleatoriamente a la rata a los grupos de control de jaula doméstica, estrés de restricción agudo o estrés de restricción crónica.
- Determine la duración de la exposición al estrés. En el caso de los factores estresantes agudos, utilice una sola sesión de 5 minutos hasta 12 horas confinado en el aparato de sujeción. En el caso de los factores estresantes crónicos, asegúrese de que la sesión coincida con la duración del factor estresante agudo, pero que se repita diariamente durante un período de 3 días y un máximo de 21 días.
NOTA: Debido a que las ratas no tendrán acceso a comida y agua mientras estén en la condición de restricción, considere si los animales de control de jaulas caseras también deben carecer de acceso a comida y agua. - Para un tubo de sujeción disponible en el mercado, siga los pasos que se describen a continuación.
NOTA: Hay tubos de sujeción disponibles en el mercado para ratas. Estos dispositivos tienen una variedad de diseños, que incluyen alambre de metal, contenedores y tubos de plástico/plexiglás con opciones de fondo redondeado y plano. Cada opción es fácil de usar.- Inserte la rata en el dispositivo, luego agregue un enchufe ajustado al tamaño del sujeto y bloquéelo en su lugar. Cuando se coloque en el tubo de sujeción, asegúrese de que la rata esté bien confinada para evitar que gire la cabeza hacia la cola, pero que pueda respirar fácilmente.
NOTA: Estos dispositivos están diseñados para sujetar a las ratas y no necesitan modificación para la respiración. En este estudio se utiliza el sistema de retención de venas de cola (Tabla de Materiales), que incluye ventosas en una plataforma debajo del tubo para asegurar el dispositivo. Un beneficio adicional de este dispositivo es que se puede acceder a la cola fuera del dispositivo para controlar al sujeto durante la inserción y la extracción del tubo o la extracción de sangre de la vena de la cola durante la inmovilización.
- Inserte la rata en el dispositivo, luego agregue un enchufe ajustado al tamaño del sujeto y bloquéelo en su lugar. Cuando se coloque en el tubo de sujeción, asegúrese de que la rata esté bien confinada para evitar que gire la cabeza hacia la cola, pero que pueda respirar fácilmente.
- En una sala de pruebas separada del alojamiento de animales y las pruebas de comportamiento, coloque las ánimas asignadas a la restricción en el tubo de restricción durante la longitud designada de sujeción. Coloque el tubo de sujeción horizontalmente sobre una superficie plana.
NOTA: En condiciones de estrés, las ratas también producen vocalizaciones ultrasónicas. Considere si el diseño del estudio requiere un aislamiento acústico de otros sujetos restringidos. - Monitoree a cada animal durante el estrés de sujeción al menos cada 20 minutos. Determine visualmente si el animal muestra respuestas inusuales (respiración lenta, falta de movimiento). Si se observa, retire a la rata del tubo de sujeción, comuníquese con un veterinario y excluya a la rata del estudio.
- Regrese la rata a la jaula de la casa y bríndele acceso a comida y agua.
3. Evaluaciones del estrés
- Medición de la activación de HPA
- Si es apropiado, después de la exposición al estrés de restricción o la remoción de la jaula doméstica, decapitar rápidamente a los sujetos para recolectar la sangre del tronco en tubos heparinizados.
- Aísle el plasma mediante centrifugación y almacene las muestras de plasma a -80 °C. Analice la corticosterona en sangre con un kit de ensayo de inmunoabsorción ligado a enzimas (ELISA).
NOTA: Aunque la corticosterona se utiliza a menudo como una lectura de la gravedad de la exposición al estrés, especialmente el estrés agudo, los niveles de corticosterona no siempre se correlacionancon los cambios de comportamiento inducidos por el estrés. Además, la respuesta del eje HPA que regula la liberación de corticosterona se habitúa a la exposición repetida al mismo factor estresante18. Alternativamente, la hormona adrenocorticotrófica (ACTH) puede ser una medida más fiable de la intensidad de un factor estresante agudo4. Permanece elevado durante aproximadamente una hora después del cese de la exposición al factor estresante, pero el estrés severo y prolongado (aproximadamente > 2 h) puede fatigar su producción.
- Efectos conductuales
- Si corresponde, después de la exposición al estrés de restricción o la retirada de la jaula doméstica, evalúe el rendimiento conductual del roedor con la tarea conductual adecuada.
NOTA: Se puede encontrar más información sobre los efectos de la restricción en varios modelos de comportamiento en la sección de discusión.
- Si corresponde, después de la exposición al estrés de restricción o la retirada de la jaula doméstica, evalúe el rendimiento conductual del roedor con la tarea conductual adecuada.
- Neurobiología
- Alternativamente o adicionalmente, evalúe la función neurobiológica después de la restricción, la exposición al estrés o el control. Una amplia gama de ensayos puede investigar los efectos de la tensión de restricción en los circuitos celulares, sinápticos y celulares. Dependiendo del ensayo, implante un dispositivo de medición in vivo o extraiga tejido cerebral para realizar el análisis seleccionado.
NOTA: Los efectos del estrés en los cambios específicos del tipo de célula en la síntesis de proteínas y las modificaciones epigenéticas han sido revisados minuciosamente por McEweny sus colegas. Estas modificaciones genéticas y proteicas inducen plasticidad para alterar las conexiones sinápticas y los circuitos. Para llevar a cabo estos estudios, se recolecta tejido cerebral después de la exposición al estrés y se realizan análisis genómicos, proteómicos, de fisiología ex vivo y otros. Alternativamente, evalúe los cambios neurobiológicos a través de mediciones in vivo como la microdiálisis, la voltamperometría cíclica de barrido rápido (FSCV), la fotometría de fibra y otras. Estos enfoques registran la liberación neuroquímica y la activación neuronal, tanto después de la exposición al estrés de restricción 2,19 como ahora durante la restricción 8,9,20. La caja de herramientas para evaluar los mecanismos neurobiológicos que subyacen a los efectos del estrés de restricción se está expandiendo rápidamente, lo que permite nuevos conocimientos sobre las complejidades del estrés.
- Alternativamente o adicionalmente, evalúe la función neurobiológica después de la restricción, la exposición al estrés o el control. Una amplia gama de ensayos puede investigar los efectos de la tensión de restricción en los circuitos celulares, sinápticos y celulares. Dependiendo del ensayo, implante un dispositivo de medición in vivo o extraiga tejido cerebral para realizar el análisis seleccionado.
Resultados
En un estudio previamente publicado21, se utilizaron los procedimientos de estrés de restricción descritos en este manuscrito para evaluar el impacto del estrés de restricción en la regulación del cortisol y la norepinefrina, cayendo dentro de las amplias posibilidades de cambios en la neurobiología inducidos por el estrés mencionados en el protocolo 3.3. En este estudio, se utilizó el protocolo descrito anteriormente para la contención de ratones. En el manuscrito referenciado se pueden encontrar detalles adicionales que están más allá del alcance del enfoque de restricción de este artículo, por ejemplo, la justificación de la región cerebral, los parámetros de estimulación optogenética o FSCV.
Utilizamos ratones transgénicos machos y hembra (DBH:Cre+/-::Ai32+/-) que expresan canalrodopsina de forma selectiva en neuronas noradrenérgicos y medimos la liberación estimulada de norepinefrina en el núcleo del lecho de la estría terminal (BNST) con FSCV21 ex vivo. Los ratones fueron inmovilizados como se describe en el protocolo 1 de forma aguda (2 h) y crónica (2 h/día durante 5 días) o control en jaulas domiciliarias. Después de la exposición, se extrajo sangre de algunos sujetos para el análisis de corticosterona, como se describe en el protocolo 3.1. Inmediatamente después del estrés agudo de restricción, los ratones mostraron niveles elevados de corticosterona, pero la respuesta se atenuó después del estrés repetido (ver Figura 1). Se utilizaron ratones adicionales para evaluar el impacto del estrés de restricción en la liberación de norepinefrina. 24 horas después de la exposición final al estrés, el tejido cerebral se recolectó rápidamente y se cortó para registrar la liberación de norepinefrina en el BNST. Curiosamente, la restricción aguda no afectó a la liberación estimulada de norepinefrina, pero la exposición repetida al estrés provocó un aumento significativo en la liberación estimulada de norepinefrina en todos los parámetros de estimulación (véase la Figura 2). Estos resultados convergen con investigaciones previas sobre el impacto del estrés de retención en la liberación de norepinefrina en ratas utilizando los enfoques descritos en el protocolo 217,22.

Figura 1: Corticosterona en el plasma de controles en jaulas domiciliarias (naïve) y después de un estrés de sujeción agudo (único) y crónico (repetido). Después de una sola sesión de 2 horas de estrés agudo de restricción, los niveles plasmáticos de corticosterona se elevaron en comparación con los sujetos de estrés ingenuo y repetidos. Los resultados se expresan como media ± SEM. N = 5-6 ratones por grupo. **p < 0,05, ***p < 0,005. Esta figura ha sido modificada con permiso de Schmidt et al.21. Haga clic aquí para ver una versión más grande de esta figura.
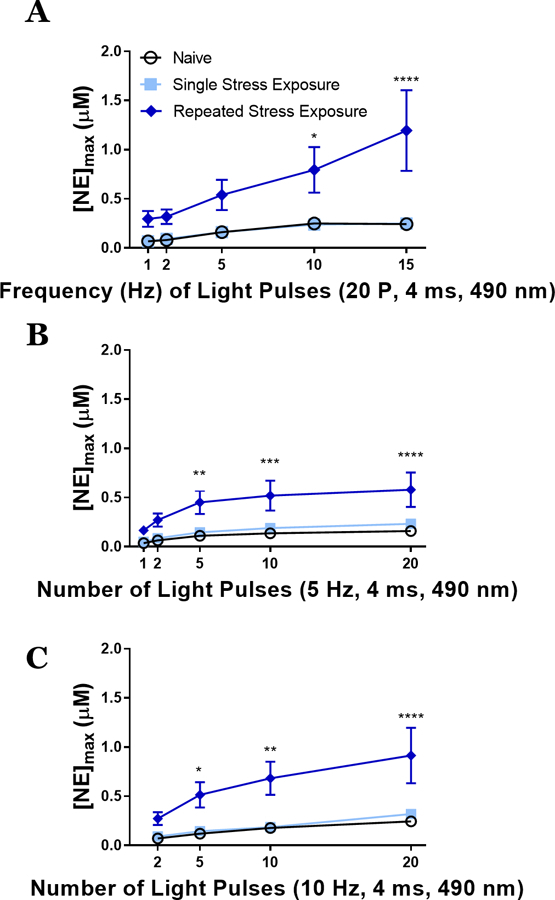
Figura 2: La liberación de norepinefrina estimulada optogenéticamente aumenta después del estrés de restricción crónico (repetido). Al día siguiente de la exposición final al estrés, se realizó una voltamperometría cíclica de barrido rápido ex vivo para medir la liberación de norepinefrina estimulada optogenéticamente en el núcleo del lecho de la estría terminal de ratones. (A) Las variaciones de frecuencia (Hz) de 20 pulsos (20 P) de estimulaciones liberaron más norepinefrina en el grupo de estrés repetido. (B, C) Las variaciones en el número de pulsos (2-20) a una frecuencia de estimulación de 5 Hz (B) o 10 Hz (C) indicaron una mayor liberación de norepinefrina en el grupo de estrés repetido. Medios ± SEM; n = 5−6 ratones/grupo que proporcionan 7−8 cortes/grupo. *p < 0,05, **p < 0,05, ***p < 0,005 y ****p < 0,0001. Esta figura ha sido modificada con permiso de Schmidt et al.21. Haga clic aquí para ver una versión más grande de esta figura.
Discusión
Para investigar los efectos del estrés en las funciones fisiológicas, neurobiológicas y conductuales en modelos de roedores, se deben utilizar las condiciones que producen estrés para los roedores. Entre estas consideraciones se encuentran las condiciones que producen respuestas de estrés en el sujeto. La restricción es un procedimiento validado para producir respuestas fisiológicas y conductuales en roedores que coinciden con los efectos del estrés en los humanos. Utilizando una metodología similar a este protocolo, la restricción se ha utilizado para evaluar una serie de respuestas moleculares, celulares, endocrinas y fisiológicas relacionadas con modelos de trastornos psiquiátricos, incluyendo ansiedad, depresión, dolor y trastorno por uso de sustancias 1,19. Aquí, los datos de un estudio publicado se presentan como un ejemplo de restricción en roedores, pero los efectos de la restricción se extienden más allá de este ejemplo en particular a una amplia gama de medidas dependientes. La restricción puede seleccionarse para su uso como factor estresante porque es fácil de realizar en ratones y ratas, barata de establecer y adaptable para inducir varios niveles de respuestas al estrés dependiendo de los parámetros utilizados.
En comparación con otros enfoques que inducen estrés, la restricción tiene algunas limitaciones a considerar durante el diseño del estudio 4,23. En particular, el estrés de restricción no siempre induce cambios de comportamiento observados con otros factores estresantes físicos, como el choque intermitente del pie24. Estas inconsistencias pueden ser el resultado de la ventaja de la restricción de que puede ocurrir en una variedad de entornos, mientras que el choque del pie se limita más a una cámara de prueba equipada con pisos de rejilla de choque. Los contextos de estrés influyen en gran medida en los efectos resultantes11. Además, el confinamiento dentro de un tubo o dispositivo de sujeción tradicional es una desventaja porque limita el acceso al sujeto durante la restricción. Se han desarrollado nuevos dispositivos de sujeción, por ejemplo, "REcording Signal TRansients ACCessible IN a Tube (RESTRAINT)", para superar esta limitación y permitir el anclaje para la recopilación de datos neurobiológicos durante las sesiones de sujeción 8,9,20. Otro enfoque para abordar este obstáculo utiliza el estrés de inmovilización como una técnica similar a la contención: a menudo, la inmovilización y la restricción se utilizan como sinónimos, pero con diferencias importantes25. El estrés de inmovilización implica asegurar los brazos, las piernas y la cabeza de un animal a una superficie, mientras que la restricción implica la colocación dentro de un dispositivo restrictivo. Como tal, el estrés de inmovilización restringe el movimiento al tiempo que proporciona acceso al sujeto para la recolección de sangre, líquido cefalorraquídeo, respuestas pupilares u otros efectos fisiológicos que pueden ser de interés para la investigación del estrés. Los factores estresantes adicionales que se han utilizado para inducir estrés en roedores incluyen el estrés ambiental por frío, la administración de agentes farmacológicos como la corticosterona o la yohimbina, las experiencias etológicamente relevantes de derrota social o exposición a olores de depredadores, y el estrés multimodal como el estrés crónico impredecible (CUS). Estas modalidades alternativas de estrés se seleccionan para su uso debido a sus ventajas en el modelado de aspectos específicos del estrés. Por ejemplo, a pesar de que la restricción es un aspecto de los modelos de CUS en ratones y ratas26, los efectos del CUS pueden ser distintos de los producidos por una exposición equivalente al estrés crónico de restricción27,28. La previsibilidad de la restricción repetida reduce la respuesta a futuros episodios de restricción, lo que limita la efectividad del estrés de restricción homotípico. Como alternativa, el CUS y otros modelos de estrés heterotípicos rotan los estresores o contextos para minimizar la habituación11,18. Estos modelos de estrés impredecibles pueden modelar mejor aspectos de las condiciones psiquiátricas humanas para encapsular completamente la pérdida de control y la expectativa. Otra desventaja de la restricción que otras modalidades de estrés abordan mejor es la contribución social a la susceptibilidad al estrés y la amortiguación del estrés 29,30,31. Los roedores y los humanos son animales sociales con relaciones y jerarquías conespecíficas. Aunque el estrés de restricción no incorpora la socialización, los estresores psicosociales, como el estrés de derrota social, proporcionan un estresor etológicamente relevante para los roedores 32,33,34.
Dentro del uso del estrés de restricción, la intensidad y repetición de la administración es un parámetro que podría ser manipulado5. Para crear una tensión de restricción más robusta, el diseño del estudio puede requerir un período de tiempo más largo en el dispositivo de restricción. Tan solo 5 min o tan largo como 12 h son parámetros posibles para sesiones de contención agudas o prolongadas, respectivamente35,36. Una vez que se determina la duración de la exposición a la restricción, la repetición del factor estresante también puede ser un factor en la inducción de varios niveles de estrés35,37. Hay que tener en cuenta que el estrés de sujeción repetido no significa necesariamente un aumento de los efectos observados. La restricción repetida a menudo el estrés habitúa o reduce las respuestas al estrés18. En los datos presentados aquí, observamos una habituación con la respuesta de corticosterona al estrés de restricción repetido, mientras que, al mismo tiempo, medimos diferencias en la liberación estimulada de norepinefrina solo en el grupo de exposición al estrés repetido. Por lo tanto, los efectos de la restricción repetida deben ser cuidadosamente investigados antes de determinar los efectos de habituación35.
Además, se deben considerar las consecuencias de las condiciones de la vivienda utilizadas en los estudios que utilizan el estrés de restricción. La interacción con congéneres estresados impacta las respuestas al estrés en roedores 30,38,39. Por lo tanto, para mantener respuestas consistentes en todos los grupos experimentales, los sujetos deben ser alojados individualmente o alojados como un grupo con todos los compañeros de jaula que experimentan la misma condición de estrés37. Críticamente, un inconveniente de este enfoque de aislamiento social de todos los sujetos es que la vivienda de aislamiento social también es un factor de estrés 40,41. Sin embargo, independientemente de las condiciones de la vivienda, la exposición al estrés debe ocurrir de forma aislada, si es posible, para evitar que la amortiguación social del estrés afecte las mediciones de los resultados30. Junto con estas condiciones de la vivienda, se debe considerar el momento de la exposición al estrés en relación con los ciclos de luz ambiental14,15. Como señalan algunos estudios37, los niveles de corticosteroides siguen los ritmos circadianos, por lo que la administración de factores estresantes en diferentes momentos del ciclo de luz puede producir efectos inconsistentes. Por lo tanto, es esencial establecer y mantener una hora de inicio uniforme para la restricción. Por ejemplo, un artículo que examina los efectos del estrés del ejercicio en el control circadiano de la corticosterona muestra que en los ratones de control la corticosterona alcanza su punto máximo al final del ciclo de luz, pero en los ratones estresados, la corticosterona permanece elevada sin un pico estable13. A la luz de estos hallazgos, se recomienda estresar a los roedores al principio del ciclo de luz para producir los mayores efectos.
Más allá de los parámetros de las condiciones de restricción, también ha sido importante tener en cuenta las características del sujeto animal en los estudios que utilizan estresores de restricción. Por ejemplo, numerosos estudios informaron diferencias de sexo utilizando el estrés de restricción 12,35,37,42,43,44. Es digno de investigación comprender los mecanismos que subyacen a estas diferencias y podría conducir a mejores resultados para tratamientos equitativos cuando las personas experimentan estrés. Tal vez las mujeres y los hombres experimentan y procesan los factores estresantes de manera diferente, lo que conduce al aumento de la ansiedad y la depresiónen las mujeres. Por ejemplo, el estrés de restricción disminuye el rendimiento de aprendizaje en los hombres, pero aumenta el rendimiento de aprendizaje en las mujeres45. Históricamente, los estudios de estrés de sujeción en roedores han limitado sus sujetos a los machos, pero en el futuro deberíamos diseñar experimentos que incluyan a ambos sexos. Otra característica del sujeto a tener en cuenta al diseñar experimentos que utilizan estresores de restricción (y otros) en especies de ratón o rata es la cepa 46,47,48,49,50,51. Los efectos de la deformación se han observado en varios paradigmas, y algunas deformaciones muestran respuestas exacerbadas al estrés de restricción. Por último, se debe tener en cuenta la edad del sujeto cuando se utiliza el estrés de restricción. Desde la exposición prenatal al estrés mediante la inmovilización de una madre embarazada hasta la contención en poblaciones de edad avanzada, el estrés por restricción se puede adaptar a cualquier momento temporal. Se han mostrado diferencias en la respuesta al estrés a lo largo de la vida 45,52,53,54,55,56. Además de requerir diferentes dispositivos de restricción para adaptarse a los cambios en el tamaño corporal a medida que se envejece, se deben considerar las experiencias de estrés relacionadas con la edad al usar factores estresantes de restricción.
La selección de la medición de resultado adecuada, ya sea una tarea conductual descrita en 3.2 o una variable neurobiológica descrita en 3.3, requiere consideración. Por un lado, se ha demostrado que la exposición aguda y leve al estrés mejora el rendimiento en algunas tareas de aprendizaje, pero la exposición al estrés intenso o crónico perjudica el rendimiento en las tareas de aprendizaje y memoria57. Se cree que estos cambios en el rendimiento cognitivo están regulados por la desregulación de los circuitos entre la corteza prefrontal, la amígdala y el hipocampo. Sin embargo, los efectos del estrés de restricción sobre la flexibilidad cognitiva son más mixtos, con hallazgos inconsistentes que dificultan una imagen clara de cómo los diversos parámetros de restricción alteran el aprendizaje de reversión o el cambio de conjunto58. Con respecto a los efectos conductuales de las drogas, se ha demostrado que el estrés por restricción, al igual que otros factores estresantes, aumenta los comportamientos relacionados con el trastorno por uso de sustancias en varias clases de drogas59. Sin embargo, estos efectos son algo selectivos en el sentido de que no se ha informado que el estrés de restricción impulse la búsqueda de drogas en los modelos de condicionamiento operante de recaída, pero sí aumenta el aprendizaje asociativo de los efectos de las drogas medido por tareas de preferencia de lugar condicionado, incluida la reinstalación60. Se cree que esta discrepancia ocurre porque los dispositivos de restricción crean un contexto separado del de las cámaras de condicionamiento operante, mientras que el estrés del choque del pie puede ocurrir en el entorno operante. Para superar esta limitación, el emparejamiento de la exposición al estrés con señales que se pueden presentar durante las sesiones de autoadministración operante ha demostrado aumentos inducidos por el estrés en el consumo y la búsqueda de drogas61. Los efectos de la restricción crónica en las conductas relacionadas con las drogas están menos bien caracterizados. Considerando modelos de trastornos afectivos como la ansiedad y la depresión, tanto en humanos como en modelos animales, la exposición al estrés aumenta las medidas de ansiedad. En roedores, las evaluaciones del estrés de restricción de la ansiedad incluyen respuestas de tigmotaxis en el aparato de campo abierto medidas mediante el seguimiento de la respuesta locomotora del animal a lo largo de las paredes de la arena en comparación con el centro. Los animales que exhiben comportamientos similares a la ansiedad después de la restricción pasarán más tiempo cerca de los lados y tendrán menos cruces centrales. Otro enfoque para medir la ansiedad es el laberinto elevado plus. Esta tarea utiliza un aparato en forma de cruz elevado aproximadamente 3 pies sobre el suelo. Dos brazos del aparato incluyen barreras de pared; Dos brazos tienen los lados abiertos. Los animales que exhiben comportamientos similares a la ansiedad pasarán más tiempo en los brazos cerrados que en los brazos abiertos62,63. Los comportamientos similares a la depresión se evalúan a través de la tarea de natación forzada en la que los roedores se colocan en un cilindro de agua y se miden las respuestas de lucha en comparación con las respuestas de flotación64. Se ha cuestionado si el cese de la lucha por escapar representa realmente un comportamiento similar a ladepresión, sin embargo, la tarea ha demostrado ser útil como pantalla para los medicamentos antidepresivos. Los comportamientos similares a la depresión también pueden evaluarse a través de reducciones inducidas por el estrés en la preferencia por la sacarosa66. Estos cambios en el consumo de líquido dulce se toman como una evaluación de los aspectos de anhedonia de la depresión clínica.
En resumen, la restricción en ratones y ratas es un procedimiento validado para producir respuestas al estrés y la ansiedad en estudios de fisiología, genética, inmunología y neurociencia. En comparación con otros enfoques que inducen estrés, la restricción es económica, fácil de realizar, útil para modelar aspectos de los trastornos humanos, como la ansiedad, la depresión, el trastorno por uso de sustancias y el trastorno de estrés postraumático, y se puede adaptar con una amplia gama de parámetros. Por estas razones, el estrés de restricción sigue siendo un método útil para determinar el impacto del estrés en roedores.
Divulgaciones
No hay conflictos de intereses que denunciar.
Agradecimientos
Agradezco los comentarios editoriales proporcionados por Holly Rahurahu y Sam Shaffer.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| 50 mL Tubo cónico con tapón de rosca de uso general | Globe Scientific | 6288 | |
| Cuenca de pipeta desechable | Fisher Scientific | 13-681-500 | |
| Kit ELISA para ensayos de corticosterona | Arbor | K014-H | |
| Tubo de restricción de venas | de cola Braintree Scientific | RTV |
Referencias
- McEwen, B. S., et al. Mechanisms of stress in the brain. Nat Neurosci. 18 (10), 1353-1363 (2015).
- Snyder, A. E., Silberman, Y. Corticotropin releasing factor and norepinephrine related circuitry changes in the bed nucleus of the stria terminalis in stress and alcohol and substance use disorders. Neuropharmacology. 201, 108814(2021).
- Morilak, D. A., et al. Role of brain norepinephrine in the behavioral response to stress. Prog Neuropsychopharmacol Biol Psychiatry. 29 (8), 1214-1224 (2005).
- Bali, A., Jaggi, A. S. Preclinical experimental stress studies: protocols, assessment and comparison. Eur J Pharmacol. 746, 282-292 (2015).
- Buynitsky, T., Mostofsky, D. I. Restraint stress in biobehavioral research: Recent developments. Neurosci Biobehavior Rev. 33 (7), 1089-1098 (2009).
- Grissom, N., Kerr, W., Bhatnagar, S. Struggling behavior during restraint is regulated by stress experience. Behav Brain Res. 191 (2), 219-226 (2008).
- Patel, S., Roelke, C. T., Rademacher, D. J., Hillard, C. J. Inhibition of restraint stress-induced neural and behavioural activation by endogenous cannabinoid signalling. Eur J Neurosci. 21 (4), 1057-1069 (2005).
- Luchsinger, J. R., et al. Delineation of an insula-BNST circuit engaged by struggling behavior that regulates avoidance in mice. Nat Commun. 12 (1), 3561(2021).
- Joffe, M. E., et al. Acute restraint stress redirects prefrontal cortex circuit function through mGlu5 receptor plasticity on somatostatin-expressing interneurons. Neuron. 110 (6), 1068-1083.e5 (2022).
- National Research Council (US) Committee for the Update of the Guide for the Care and Use of Laboratory Animals. Guide for the Care and Use of Laboratory Animals. , National Academies Press. Washington, DC. (2011).
- Grissom, N., Iyer, V., Vining, C., Bhatnagar, S. The physical context of previous stress exposure modifies hypothalamic-pituitary-adrenal responses to a subsequent homotypic stress. Horm Behav. 51 (1), 95-103 (2007).
- Fetterly, T. L., et al. α2A-Adrenergic receptor activation decreases parabrachial nucleus excitatory drive onto BNST CRF neurons and reduces their activity in vivo. J Neurosci. 39 (3), 472-484 (2019).
- Barriga, C., Martín, M. I., Tabla, R., Ortega, E., Rodríguez, A. B. Circadian rhythm of melatonin, corticosterone and phagocytosis: effect of stress. J Pineal Res. 30 (3), 180-187 (2001).
- Rybkin, I. I., Zhou, Y., Volaufova, J., Smagin, G. N., Ryan, D. H., Harris, R. B. S. Effect of restraint stress on food intake and body weight is determined by time of day. Am J Physiol. 273 (5), R1612-R1622 (1997).
- Bartlang, M. S., et al. Time matters: pathological effects of repeated psychosocial stress during the active, but not inactive, phase of male mice. J Endocrinol. 215 (3), 425-437 (2012).
- McElligott, Z. A., et al. Noradrenergic synaptic function in the bed nucleus of the stria terminalis varies in animal models of anxiety and addiction. Neuropsychopharmacology. 38 (9), 1665-1673 (2013).
- Pardon, M. -C., et al. Stress reactivity of the brain noradrenergic system in three rat strains differing in their neuroendocrine and behavioral responses to stress: implications for susceptibility to stress-related neuropsychiatric disorders. Neuroscience. 115 (1), 229-242 (2002).
- Grissom, N., Bhatnagar, S. Habituation to repeated stress: Get used to it. Neurobiol Learn Mem. 92 (2), 215-224 (2009).
- Ma, M., Chang, X., Wu, H. Animal models of stress and stress-related neurocircuits: A comprehensive review. Stress Brain. 1 (2), 108-127 (2021).
- Williford, K. M., et al. BNST PKCδ neurons are activated by specific aversive conditions to promote anxiety-like behavior. Neuropsychopharmacology. 48 (7), 1031-1041 (2023).
- Schmidt, K. T., et al. Stress-induced alterations of norepinephrine release in the bed nucleus of the stria terminalis of mice. ACS Chem Neurosci. 10 (4), 1908-1914 (2019).
- Cecchi, M., Khoshbouei, H., Javors, M., Morilak, D. A. Modulatory effects of norepinephrine in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuroscience. 112 (1), 13-21 (2002).
- López-Moraga, A., Beckers, T., Luyten, L. The effects of stress on avoidance in rodents: An unresolved matter. Front Behav Neurosci. 16, 983026(2022).
- Mantsch, J. R., Baker, D. A., Funk, D., Lê, A. D., Shaham, Y. Stress-induced reinstatement of drug seeking: 20 years of progress. Neuropsychopharmacology. 41 (1), 335-356 (2016).
- Molina, P., Andero, R., Armario, A. Restraint or immobilization: A comparison of methodologies for restricting free movement in rodents and their potential impact on physiology and behavior. Neurosci Biobehav Rev. 151, 105224(2023).
- Burstein, O., Doron, R. The unpredictable chronic mild stress protocol for inducing anhedonia in mice. J Vis Exp. (140), e58184(2018).
- Haile, C. N., GrandPre, T., Kosten, T. A. Chronic unpredictable stress, but not chronic predictable stress, enhances the sensitivity to the behavioral effects of cocaine in rats. Psychopharmacology. 154 (2), 213-220 (2001).
- Marin, M. T., Cruz, F. C., Planeta, C. S. Chronic restraint or variable stresses differently affect the behavior, corticosterone secretion and body weight in rats. Physiol Behav. 90 (1), 29-35 (2007).
- Kikusui, T., Winslow, J. T., Mori, Y. Social buffering: relief from stress and anxiety. Philos Trans R Soc Lond B Biol Sci. 361 (1476), 2215-2228 (2006).
- Watanabe, S. Social factors modulate restraint stress induced hyperthermia in mice. Brain Res. 1624, 134-139 (2015).
- DeVries, A. C., Glasper, E. R., Detillion, C. E. Social modulation of stress responses. Physiol Behav. 79 (3), 399-407 (2003).
- Martinez, M., Calvo-Torrent, A., Pico-Alfonso, M. A. Social defeat and subordination as models of social stress in laboratory rodents: A review. Aggr Behav. 24 (4), 241-256 (1998).
- Golden, S. A., Covington, H. E., Berton, O., Russo, S. J. A standardized protocol for repeated social defeat stress in mice. Nat Protoc. 6 (8), 1183-1191 (2011).
- Koolhaas, J. M., De Boer, S. F., Buwalda, B., Meerlo, P. Social stress models in rodents: Towards enhanced validity. Neurobiol Stress. 6, 104-112 (2017).
- Albonetti, M. E., Farabollini, F. Behavioural responses to single and repeated restraint in male and female rats. Behav Processes. 28 (1-2), 97-109 (1992).
- Glaser, R., Kiecolt-Glaser, J. K. Stress-induced immune dysfunction: implications for health. Nat Rev Immunol. 5 (3), 243-251 (2005).
- Olave, F. A., et al. Chronic restraint stress produces sex-specific behavioral and molecular outcomes in the dorsal and ventral rat hippocampus. Neurobiol Stress. 17, 100440(2022).
- Zalaquett, C., Thiessen, D. The effects of odors from stressed mice on conspecific behavior. Physiol Behav. 50 (1), 221-227 (1991).
- Sterley, T. -L., et al. Social transmission and buffering of synaptic changes after stress. Nat Neurosci. 21 (3), 393-403 (2018).
- Bartolomucci, A., et al. Individual housing induces altered immuno-endocrine responses to psychological stress in male mice. Psychoneuroendocrinology. 28 (4), 540-558 (2003).
- Krohn, T., Sørensen, D., Ottesen, J., Hansen, A. The effects of individual housing on mice and rats: a review. Anim Welf. 15 (4), 343-352 (2006).
- Chadda, R., Devaud, L. L. Differential effects of mild repeated restraint stress on behaviors and GABAA receptors in male and female rats. Pharmacol Biochem Behav. 81 (4), 854-863 (2005).
- Perrot-Sinal, T. S., Gregus, A., Boudreau, D., Kalynchuk, L. E. Sex and repeated restraint stress interact to affect cat odor-induced defensive behavior in adult rats. Brain Res. 1027 (1-2), 161-172 (2004).
- Ter Horst, G. J., Wichmann, R., Gerrits, M., Westenbroek, C., Lin, Y. Sex differences in stress responses: Focus on ovarian hormones. Physiol Behav. 97 (2), 239-249 (2009).
- Bowman, R. E. Stress-induced changes in spatial memory are sexually differentiated and vary across the lifespan. J Neuroendocrinol. 17 (8), 526-535 (2005).
- Beery, A. K., Holmes, M. M., Lee, W., Curley, J. P. Stress in groups: Lessons from non-traditional rodent species and housing models. Neurosci Biobehav Rev. 113, 354-372 (2020).
- Armario, A., et al. Differential hypothalamic-pituitary-adrenal response to stress among rat strains: Methodological considerations and relevance for neuropsychiatric research. Curr Neuropharmacol. 21 (9), 1906-1923 (2023).
- O'Mahony, C. M., Clarke, G., Gibney, S., Dinan, T. G., Cryan, J. F. Strain differences in the neurochemical response to chronic restraint stress in the rat: Relevance to depression. Pharmacol Biochem Behav. 97 (4), 690-699 (2011).
- O'Mahony, C. M., Sweeney, F. F., Daly, E., Dinan, T. G., Cryan, J. F. Restraint stress-induced brain activation patterns in two strains of mice differing in their anxiety behaviour. Behav Brain Res. 213 (2), 148-154 (2010).
- Mozhui, K., et al. Strain differences in stress responsivity are associated with divergent amygdala gene expression and glutamate-mediated neuronal excitability. J Neurosci. 30 (15), 5357-5367 (2010).
- Fox, M. E., Studebaker, R. I., Swofford, N. J., Wightman, R. M. Stress and drug dependence differentially modulate norepinephrine signaling in animals with varied HPA axis function. Neuropsychopharmacology. 40 (7), 1752-1761 (2015).
- Novais, A., Monteiro, S., Roque, S., Correia-Neves, M., Sousa, N. How age, sex and genotype shape the stress response. Neurobiol Stress. 6, 44-56 (2017).
- McEwen, B. S., Morrison, J. H. The brain on stress: Vulnerability and plasticity of the prefrontal cortex over the life course. Neuron. 79 (1), 16-29 (2013).
- Sadler, A. M., Bailey, S. J. Repeated daily restraint stress induces adaptive behavioural changes in both adult and juvenile mice. Physiol Behavi. 167, 313-323 (2016).
- Doremus-Fitzwater, T. L., Varlinskaya, E. I., Spear, L. P. Social and non-social anxiety in adolescent and adult rats after repeated restraint. Physiol Behav. 97 (3-4), 484-494 (2009).
- Brown, G. R., Spencer, K. A. Steroid hormones, stress and the adolescent brain: A comparative perspective. Neuroscience. 249, 115-128 (2013).
- Arnsten, A. F. T. Stress signalling pathways that impair prefrontal cortex structure and function. Nat Rev Neurosci. 10 (6), 410-422 (2009).
- Hurtubise, J. L., Howland, J. G. Effects of stress on behavioral flexibility in rodents. Neuroscience. 345, 176-192 (2017).
- Giovanniello, J., Bravo-Rivera, C., Rosenkranz, A., Matthew Lattal, K. Stress, associative learning, and decision-making. Neurobiol Learn Mem. 204, 107812(2023).
- Sinha, R., Shaham, Y., Heilig, M. Translational and reverse translational research on the role of stress in drug craving and relapse. Psychopharmacology. 218 (1), 69-82 (2011).
- Carter, J. S., et al. Long-term impact of acute restraint stress on heroin self-administration, reinstatement, and stress reactivity. Psychopharmacology. 237 (6), 1709-1721 (2020).
- Cecchi, M., Khoshbouei, H., Morilak, D. A. Modulatory effects of norepinephrine, acting on alpha 1 receptors in the central nucleus of the amygdala, on behavioral and neuroendocrine responses to acute immobilization stress. Neuropharmacology. 43 (7), 1139-1147 (2002).
- Khoshbouei, H., Cecchi, M., Morilak, D. A. Modulatory effects of galanin in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuropsychopharmacology. 27 (1), 25-34 (2002).
- Yankelevitch-Yahav, R., Franko, M., Huly, A., Doron, R. The forced swim test as a model of depressive-like behavior. J Vis Experiments. (97), e52587(2015).
- Molendijk, M. L., De Kloet, E. R. Immobility in the forced swim test is adaptive and does not reflect depression. Psychoneuroendocrinology. 62, 389-391 (2015).
- Mao, Y., Xu, Y., Yuan, X. Validity of chronic restraint stress for modeling anhedonic-like behavior in rodents: a systematic review and meta-analysis. J Int Med Res. 50 (2), 03000605221075816(2022).
Reimpresiones y permisos
