El estreñimiento es una característica prodrómica común de la enfermedad de Parkinson (EP), que a menudo se manifiesta años antes del diagnóstico. Este estudio validó un método propuesto para medir el estreñimiento en Drosophila melanogaster, y se confirmaron déficits en diferentes modelos de moscas de EP monogénica.
Artículo de método
Defectos de tránsito intestinal en modelos de Drosophila de enfermedad de Parkinson monogénica mediante un ensayo de estreñimiento
En este artículo
Resumen
Resumen
La enfermedad de Parkinson (EP) es un trastorno motor neurodegenerativo común y suele ir acompañado de varios síntomas no motores. Entre estos últimos, los problemas gastrointestinales, incluido el estreñimiento, suelen surgir años antes de la manifestación de las dificultades de locomoción y antes de que se establezca un diagnóstico de EP. Un estudio reciente propuso un método para medir el estreñimiento en un modelo de mosca PD que expresa alfa-sinucleína humana de tipo salvaje. En este estudio, examinamos la viabilidad de este método y probamos si otros modelos genéticos de EP de mosca también provocan estreñimiento. Se utilizaron líneas de mosca disponibles para medir el nivel de estreñimiento en modelos de EP autosómicos dominantes y recesivos, incluidas tres líneas de Drosophila mutantes mutantes de Drosophila que expresan alfa-sinucleína humana y moscas con deficiencia de Pink1 y Parkin. Estas moscas y sus correspondientes controles se colocaron en alimentos de color azul un día antes del experimento para inducir manchas fecales azules. El día del experimento, estas moscas fueron transferidas a harina de maíz estándar. Se registró y calculó el porcentaje de manchas fecales azules con respecto al total de manchas fecales cada 90 min. Los diferentes modelos de moscas PD muestran una expulsión más lenta o incompleta de los alimentos de color azul en comparación con sus respectivas moscas control. Por lo tanto, se validó un método propuesto anteriormente para medir el estreñimiento y se aplicó a varios modelos de moscas de diferentes formas de EP genética.
Introducción
La enfermedad de Parkinson (EP) es un trastorno neurodegenerativo caracterizado principalmente por una disfunción motora, incluidos los signos diagnósticos cardinales de bradicinesia, rigidez y temblor. Aunque la EP es más conocida por sus signos motores, los síntomas no motores son comunes, como depresión, dolor, trastornos del sueño y estreñimiento 1,2. A menudo, estos síntomas no motores surgen temprano en el curso de la enfermedad y pueden preceder a los síntomas motores por varios años3. El reconocimiento de estas características no motoras en la etapa inicial de la enfermedad puede ser fundamental en el diagnóstico temprano de la EP, lo que podría facilitar una intervención y un manejo más oportunos de la enfermedad.
El estreñimiento y las alteraciones de la motilidad intestinal son síntomas no motores comúnmente reportados en la EP y a menudo están presentes mucho antes del inicio de los síntomas motores 3,4. Además, su gravedad y frecuencia aumentan tras la progresión de la EP5. No obstante, nuestra comprensión de los patrones y mecanismos del estreñimiento sigue siendo limitada. Por lo tanto, la identificación temprana del estreñimiento relacionado con la EP podría ayudar a diagnosticar la EP en una etapa en la que las intervenciones terapéuticas pueden ser más efectivas para retrasar la progresión de la enfermedad. A pesar de su importancia, la comprensión de los mecanismos subyacentes que impulsan el estreñimiento en la EP sigue siendo limitada, en parte debido a la falta de modelos y diseños experimentales adecuados. Los avances recientes en el estudio del estreñimiento en Drosophila melanogaster utilizando la sobreexpresión de alfa-sinucleína humana de tipo salvaje proporcionan una herramienta valiosa para investigar los mecanismos subyacentes a este síntoma no motor temprano6.
El SNCA, que codifica la alfa-sinucleína, representa la primera causa identificada de la EP7. Tanto la multiplicación de genes (duplicación y triplicación) como las mutaciones puntuales en SNCA conducen a la herencia autosómica dominante de PD8. Cabe destacar que el estreñimiento afecta hasta al 90% de los pacientes portadores de mutaciones SNCA 5. Además, se han identificado varios otros genes que causan la enfermedad de Parkinson cuando están mutados, incluido el VPS35, que también causa formas autosómicas dominantes de la enfermedad de Parkinson8. Otros genes, como PINK1 y Parkin, causan EP autosómica recesiva cuando están mutados9. Los síntomas no motores también ocurren en estas otras formas genéticas de EP; Sin embargo, los datos reportados son escasos y, por lo tanto, dificultan la conclusión o investigación de los mecanismos subyacentes10,11.
Se han creado varios modelos animales para la EP, incluido el de Drosophila melanogaster12. Aunque Drosophila no contiene el gen SNCA , la sobreexpresión de las formas salvajes y mutantes del gen induce fenotipos parkinsonianos, incluyendo síntomas motores13. Además, las moscas mutantes vps35, pink1 y parkin unidas a PD son modelos bien establecidos para estudiar el efecto de los respectivos genes mutantes en relación con PD12. Además, la capacidad de medir el estreñimiento en diferentes modelos de EP de Drosophila , incluidas las formas dominantes y recesivas, permite un análisis más profundo de la disfunción gastrointestinal y, por lo tanto, una mejor comprensión de las vías involucradas en el estreñimiento relacionado con la EP.
Aquí, se evaluó y validó la factibilidad del método recientemente propuesto para medir el estreñimiento6 utilizando diferentes modelos genéticos de EP. Al ampliar la aplicación de este método a otros modelos genéticos de EP y realizar ajustes, confirmamos la viabilidad de este método como ensayo general para medir el estreñimiento o la motilidad intestinal alterada y respaldamos la posibilidad de realizar cribados de modificadores para obtener información sobre los mecanismos moleculares que subyacen al estreñimiento de la EP.
Protocolo
En este ensayo se utilizaron moscas macho de diez días de edad. Para la sobreexpresión de SNCA, se utilizó el controlador ubicuo DaughterlessGal4 .
Moscas utilizadas en este ensayo:
w1118;; SNCA p.A53T/DaGal4 y su control w1118;; SNCA p.A53T
w1118;; SNCA p.A30P/DaGal4 y su control w1118;; SNCA p.A30P
w1118;; SNCA p.V15A/DaGal4 y su control w1118;; SNCA p.V15A
w1118;; Vps35D650N/DaGal4 y su control w1118;; vps35D650N
w rosa1B9;; y su control w rosa1RV;;
w1118;; parqueD1/D21 y su control w1118;; parqueRV
SNCA p.A53T, SNCA p.A30P, w*;; P(EP)parque1, w*;; se obtuvieron comercialmente los parquesΔ21, Vps35D650N y DaGal4 (véase la Tabla de Materiales). Los mutantes nulos w pink1B9 y los controles (w pink1RV) fueron amablemente proporcionados por Jeehye Park y Jongkyeong Chung (Instituto Avanzado de Ciencia y Tecnología de Corea)14. Las moscas SNCA p.V15A fueron creadas previamente15. Los reactivos y el equipo utilizado en este estudio se enumeran en la Tabla de Materiales.
1. Preparación de la comida azul
- Prepare harina de maíz estándar fresca media y manténgala tibia y líquida.
NOTA: Se puede usar un medio para moscas prepreparado, pero es necesario calentarlo para que el medio se vuelva líquido. La harina de maíz estándar consta de 50 g de harina de maíz, 7 g de levadura, 7 g de agar, 13,5 g de dextrosa, 10 mL de etanol (100%), 1,1 g de Methol-4-hidroxibenzoato, 55 g de melaza y 4,8 mL de ácido propiónico por 1 L de medio para moscas. - Mezcle el colorante alimentario azul con agua destilada en una proporción de 1:1 (v/v).
- Agregue la mezcla de alimentos azules al medio de harina de maíz estándar para saturarlo con el alimento azul y obtener un color azul uniforme.
NOTA: En este estudio se utilizó una proporción de 1:100. - Dispense el alimento azul en viales grandes de alimentos con una pipeta Pasteur para cubrir el fondo y déjelos secar al aire para que se solidifiquen.
- Haga la misma cantidad de viales de alimentos con un medio estándar de harina de maíz.
- Cubra los viales de alimentos con una toalla de papel delgada mientras se seca para evitar la acumulación de humedad y contaminación.
2. Preparación del ensayo
- Coloque un papel Whatman húmedo en viales de comida vacíos.
NOTA: Asegúrese de remojar el papel Whatman para que se pegue al fondo cuando las moscas se transfieran a los viales con el medio azul. - Añadir 15-20 moscas a cada vial y dejarlas durante 1 h.
NOTA: La anestesia de moscas permitió la selección de moscas con el genotipo correcto. Posteriormente, las moscas se introdujeron en un frasco con un cepillo y se envejecieron durante diez días. La transferencia de las moscas se realiza volteándolas con cuidado de un vial a otro y usando tapones para evitar que las moscas se escapen. - Transfiera las moscas a los viales que contienen el medio azul y déjelas toda la noche en una incubadora a 25 °C.
3. Realización del ensayo de estreñimiento
- A la mañana siguiente, transfiera las moscas a los viales con medio estándar de harina de maíz y vuelva a colocarlas en la incubadora durante 90 minutos.
NOTA: Se puede comprobar si el vientre de todas las moscas en los viales es azul colocándolas bajo un microscopio. - Después de 90 minutos, cuente el número de puntos opacos azules e incoloros, márquelos con un marcador de color, anótelos y vuelva a colocar las moscas en la incubadora (Figura 1).
NOTA: Marcar los puntos ya contados evita el conteo repetido. Además, se ignoraron los puntos en la comida o en el tapón del vial. - Repita el paso 4.2 cuatro veces más con las mismas moscas para obtener un curso temporal de los puntos fecales. Cada vez, se usó un marcador de diferente color para evitar el conteo repetido de rondas anteriores.
4. Análisis
- Calcule los porcentajes de puntos azules con respecto al número total de puntos (puntos azules y opacos) para cada punto de tiempo.
- Trazó los datos en un gráfico utilizando el porcentaje de puntos azules en los diferentes puntos de tiempo, y a través del análisis de "área bajo la curva" en GraphPad, se calculó y trazó el área bajo la curva.
- Analice los datos en GraphPad Prism para realizar una prueba t desapareada con la corrección16 de Welch.
NOTA: Se incluyó la corrección de Welch ya que no se pudieron probar desviaciones estándar iguales en todas las poblaciones.
Resultados
Se realizaron ajustes menores a un método presentado anteriormente para medir el estreñimiento en moscas7 y para probar la función intestinal en diferentes modelos genéticos de moscas relacionadas con la EP. La incubación nocturna de las moscas en el medio de color azul dio como resultado vientres de moscas que parecían azules (Figura 2) y materia fecal que dejaba manchas azules en el frasco de alimento para moscas (Figura 2). Con el tiempo, los vientres azules volvieron a los vientres normales de color amarillento (Figura 2). Además, las manchas fecales azules disminuyeron, y se observaron manchas amarillas y opacas en aumento (Figura 2). Esta transición de manchas azules a amarillas da una idea del nivel de motilidad intestinal o estreñimiento. La transición fue completa en las moscas control después de 7 h 30 min, mientras que en las moscas relacionadas con la EP, esta eliminación del medio de color azul ocurrió a un ritmo más lento (Figura 2).
Anteriormente, se describió un aclaramiento tardío del medio azul en moscas de 10 días de edad que expresaban alfa-sinucleína7 de tipo salvaje, lo que sugiere un nivel de estreñimiento o un aclaramiento tardío debido a las alteraciones en la motilidad intestinal presentes en estas moscas en comparación con las moscas de control. Además de las duplicaciones o triplicaciones de SNCA, se han identificado varias variantes patógenas con cambio de sentido en el SNCA relacionadas con la EP, y probamos tres variantes patógenas comunes con cambio de sentido en el SNCA. La expresión de la alfa-sinucleína mutante (p.A30P, p.A53T y p.V15A) resultó en un aclaramiento incompleto del medio azul dentro de las 7 h 30 min, lo que sugiere la presencia de estreñimiento en estas moscas en comparación con las moscas de control (Figura 3).
La alfa-sinucleína está relacionada con las formas autosómicas dominantes de la EP. Curiosamente, la expresión de la alfa-sinucleína reduce los niveles de la proteína VPS3517. VPS35 es una subunidad del retrómero y, cuando muta, causa PD 9,18,19. Se observó un aumento del estreñimiento en las moscas mutantes que expresan vps35 en comparación con las moscas de control (Figura 4).
Las moscas deficientes para Pink1 y Parkin muestran un aclaramiento tardío del azul medio; sin embargo, después de 7 h 30 min, ya no se detectaron manchas fecales azules en estas moscas mutantes (Figura 5).
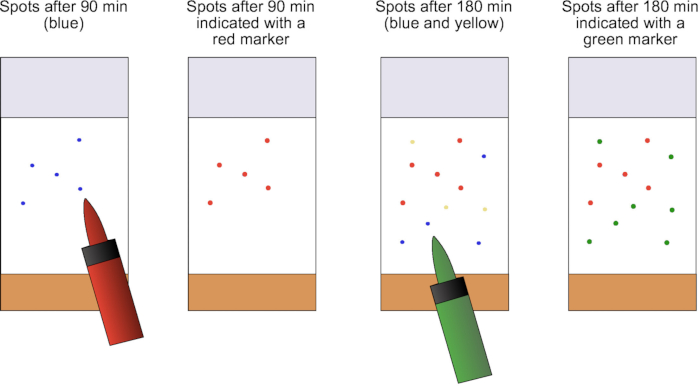
Figura 1: Representación esquemática del proceso de conteo con marcadores de colores. A los 90 min, se contaron las manchas fecales y se indicaron con un rotulador de color para evitar que se volvieran a contar en la siguiente ronda. Se utilizó otro color para indicar las manchas fecales adicionales durante la siguiente ronda de conteo. Haga clic aquí para ver una versión más grande de esta figura.
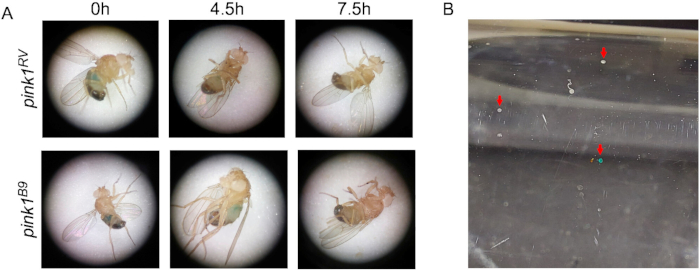
Figura 2: El azul medio da como resultado el vientre azul y las manchas fecales azules. (A) Las imágenes de los vientres de las moscas de control (rosa1RV) y rosas1-mutantes en los puntos de tiempo 0 h, 4 h 30 min y 7 h 30 min muestran el desvanecimiento del color azul. (B) Las manchas fecales opacas azules y amarillas en el vial de alimento para moscas se indican con flechas rojas. Haga clic aquí para ver una versión más grande de esta figura.
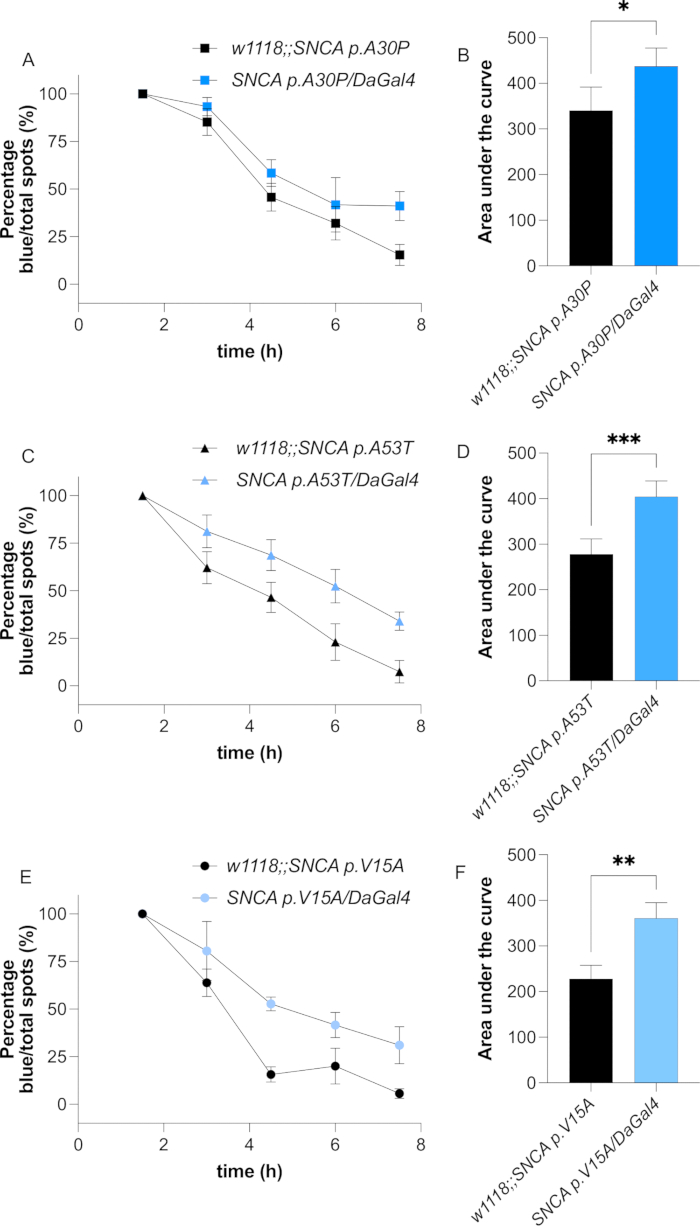
Figura 3: La expresión de la alfa-sinucleína mutante da lugar a estreñimiento. Porcentaje de manchas fecales azules a lo largo del tiempo en moscas que sobreexpresan SNCA p.A30P (A), SNCA p.A53T (C) y SNCA p.V15A (E), y sus respectivos controles. Se presenta el área asociada bajo la curva (B,D,F). Los datos son la media y la desviación estándar. n ≥ 3 viales con 15-20 moscas por vial. Se realizó la prueba T de Welch; *: p < 0,05; **: p < 0,01; : p < 0,001. Haga clic aquí para ver una versión más grande de esta figura.
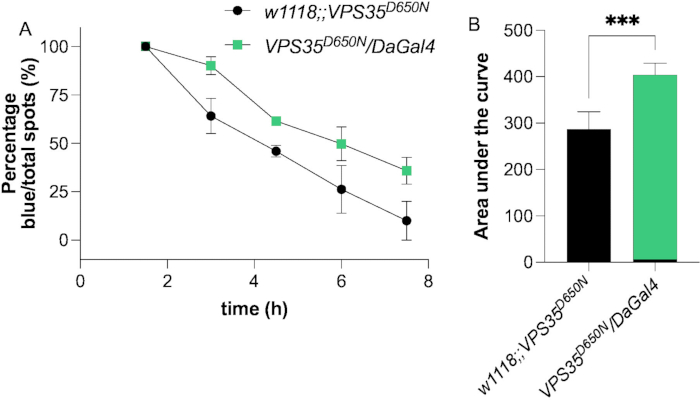
Figura 4: La expresión del mutante vps35 da lugar a estreñimiento. (A) Porcentaje de manchas fecales azules a lo largo del tiempo en moscas que sobreexpresan el mutante vps35D650N ligado a PD y su control. (B) Se presenta el área bajo la curva. Los datos son la media y la desviación estándar. n = 3 viales con 15-20 moscas por vial. Se realizó la prueba T de Welch; : p < 0,001. Haga clic aquí para ver una versión más grande de esta figura.
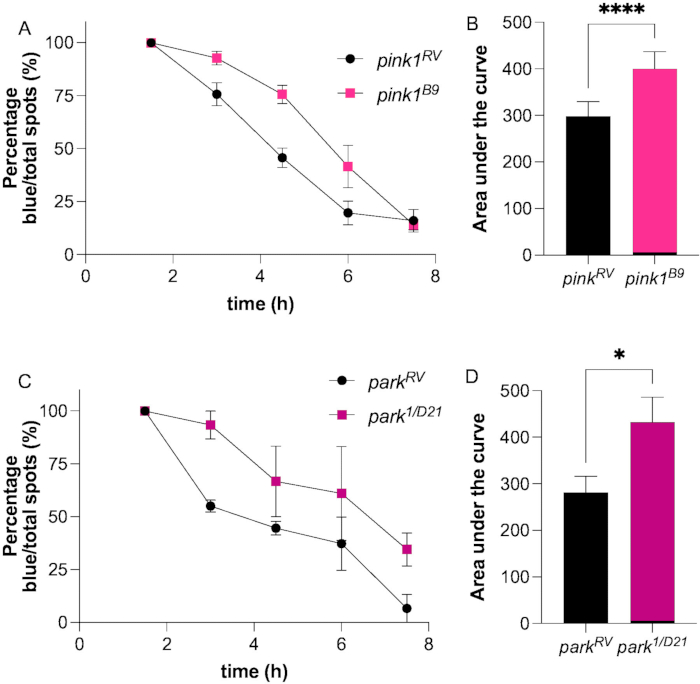
Figura 5: La deficiencia de Pink1 y Parkin induce un retraso en el aclaramiento fecal.Porcentaje de manchas fecales azules a lo largo del tiempo en moscas Pink1- (A) y Parkin-deficientes (C) y sus respectivas moscas control. Se presenta el área asociada bajo la curva (B,D). Los datos son la media con la desviación estándar. n ≥ 3 viales con 15-20 moscas por vial. Se realizó la prueba T de Welch; *: p < 0,05; : p < 0,0001. Haga clic aquí para ver una versión más grande de esta figura.
Discusión
Recientemente, se propuso un método para medir el estreñimiento en Drosophila melanogaster . Con la aplicación de este método, se observó estreñimiento o alteración de la motilidad intestinal en moscas que expresaban alfa-sinucleína7 de tipo salvaje. Este método fue validado con varias alteraciones, y se identificó estreñimiento en todos los modelos genéticos de EP ensayados.
En comparación con la descripción original del método, se incorporaron varios cambios para aumentar la factibilidad y robustez. Para evitar alteraciones en la saturación del medio azul, se preparó un lote de medio azul y se dividió en el número requerido de viales de alimentos. Además, antes de agregar las moscas al medio azul, se les privó brevemente de alimento, solo les proporcionaron acceso al agua. Este paso se agregó para estimular la absorción del medio azul. Sin este paso adicional, no todas las moscas mostraron un vientre azul claro, un punto de partida crítico para obtener resultados representativos. Por último, varios modelos de mosca PD muestran un nivel de sensibilidad a la explosión 13,14,20. Por lo tanto, las moscas no se transfirieron durante cada paso del conteo para evitar cualquier influencia de esta sensibilidad en la producción fecal. Sin embargo, se utilizaron marcadores de diferentes colores para indicar las manchas y evitar el doble conteo.
De manera similar a la descripción original, también se observó que las moscas defecan con menos frecuencia por la tarde. Sin embargo, como este es el caso tanto para las moscas de control como para las mutantes, esto no condujo a anomalías en el registro de las manchas. Además, tener suficientes manchas fecales para contar en cada punto de tiempo es clave para obtener resultados sólidos. Por lo tanto, se recomienda un mínimo de quince moscas por vial7.
En el manuscrito original, se observó estreñimiento en moscas de 10 días de edad, pero no en moscas de 1 día. Por lo tanto, en este ensayo, el ensayo de estreñimiento se realizó en moscas de diez días de edad, y se observó estreñimiento o alteración de la motilidad intestinal en todos los modelos de mosca PD probados. Estudios de locomoción anteriores revelaron que el estreñimiento precede a la disfunción motora en las moscas que expresan alfa-sinucleína, y que las deficiencias de vuelo solo se hacen evidentes a las tres semanas de edad de16 años. Esta secuencia temporal de síntomas refleja la progresión observada en los pacientes con EP, donde los problemas gastrointestinales a menudo se manifiestan antes que los déficits motores. A diferencia de los modelos de alfa-sinucleína, las moscas pink1 o parkin-mutant presentan deficiencias desde el primer día después de la eclosión21. Por lo tanto, investigar si los defectos de tránsito intestinal se manifiestan en este momento temprano proporcionaría información valiosa sobre la progresión de los síntomas no motores en estos modelos genéticos. Por lo tanto, se deben realizar experimentos más profundos para comprender mejor la biología subyacente.
El ensayo descrito aquí facilita la evaluación cuantitativa de los fenotipos de motilidad gastrointestinal y estreñimiento, pero no puede evaluar parámetros como la consistencia fecal, el contenido, la coloración o la morfología. Previamente, se midió la excreción fecal, en la que se evaluó el color y la morfología utilizando metodologías establecidas en modelos de Drosophila 22,23,24. Sin embargo, este ensayo requiere equipo especializado (por ejemplo, escáneres de transparencia) y software analítico dedicado, lo que introduce consideraciones técnicas y de recursos distintas en comparación con el protocolo descrito aquí. Sin embargo, este ensayo muestra defectos gastrointestinales en moscas deficientes en Pink122,23.
Las disfunciones gastrointestinales se reconocen como manifestaciones comórbidas en múltiples trastornos neurológicos y neurodegenerativos, incluido el trastorno del espectro autista, la enfermedad de Alzheimer y la esclerosis múltiple 25,26,27,28, para los cuales Drosophila melanogaster sirve como un organismo modelo manejable para investigar los fundamentos mecanicistas. El marco metodológico establecido para el estudio de la motilidad intestinal y el estreñimiento en Drosophila es extrapolable a estas enfermedades.
En conclusión, este estudio confirmó un método factible y robusto presentado anteriormente para medir el estreñimiento en moscas. Este ensayo muestra que el estreñimiento está presente en múltiples modelos genéticos de Drosophila PD que son particularmente adecuados para estudiar el estreñimiento, ya que ofrecen la oportunidad de estudiar moscas en riesgo definidas genéticamente antes de que aparezca la manifestación de las características motoras. Además, se pueden evaluar otros modelos de enfermedad en Drosophila que manifiestan irregularidades en la motilidad intestinal, así como el cribado de fármacos.
Divulgaciones
C. K se ha desempeñado como consultor para Centogene, Takeda, Biogen y la Fundación Lundbeck, ha recibido honorarios de oradores de Bial y fondos de investigación de DFG, MJFF y ASAP.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Bacto Agar | Becton, Dickinson and company | 214010 | |
| Tapones Ceapran | Greiner Bio-One | 330070 | |
| Harina de maíz | Dr. Oetker GmbH | ||
| Dextrosa | Sigma-Aldrich | D9434-1KG | |
| Contenedor de Drosophila | Greiner Bio-One | 217101 | |
| Etanol (100%) | J.T. Baker | BAK8025 2500 | |
| Filterpapier Celulosa, Whatman (Grado 3) | Sigma-Aldrich | WHA1003185 | |
| GraphPad Prisma | GraphPad | ||
| Metil-4-hidroxibenzoaat | Sigma-Aldrich | H5501-100G | |
| Melaza | Rapunzel Naturkost GmbH | ||
| marcador de color permanenet | Stadtler | 11-348 | |
| Ácido propiónico | Thermo Fisher Scientific Inc. | ||
| Royal Blue Azul color glaseado real Wilton | Lebensmittelfarben | ||
| Microscopio estereoscópico | Nikon | ||
| Yeast | Algist Bruggeman | 1278 | |
| Drosophila stocks | |||
| DaGal4 | Bloomington Stock Center | 95282 | |
| park< sup>D1/D21 | Parque Jeehye y Jongkyeong Chung | ||
| parkRV | Parque Jeehye y Jongkyeong Chung | ||
| SNCA p.A53T | Centro de Almacenamiento de Bloomington | 8148 | |
| SNCA p.A30P | Centro de Almacenamiento de Bloomington | 8147 | |
| SNCA p.V15A | previamente creado en el laboratorio | ||
| Vps35D650N | Bloomington Stock Center | 91646 | |
| w rosa1B9 | Parque Jeehye y Jongkyeong Chung | ||
| w pink1RV | Jeehye Park y Jongkyeong Chung | ||
| w1118 | Centro de Stock de Bloomington | 3605 |
Referencias
- Fanciulli, A., et al. Diagnosis and treatment of autonomic failure, pain and sleep disturbances in Parkinson's disease: Guideline "Parkinson's disease" of the German Society of Neurology. J Neurol. 272 (1), 1-32 (2025).
- Kasten, M., Marras, C., Klein, C. Nonmotor signs in genetic forms of Parkinson's disease. Int Rev Neurobiol. 133, 129-178 (2017).
- Bloem, B. R., Okun, M. S., Klein, C. Parkinson's disease. Lancet. 397 (10291), 2284-2303 (2021).
- Higinbotham, A. S., Kilbane, C. W. The gastrointestinal tract and Parkinson's disease. Front Cell Infect Microbiol. 13, 1158986(2023).
- Yuan, X. Y., Chen, Y. S., Liu, Z. Relationship among Parkinson's disease, constipation, microbes, and microbiological therapy. World J Gastroenterol. 30 (3), 225-237 (2024).
- Sodders, M. J., Shen, M., Olsen, A. L. Measuring constipation in a Drosophila model of Parkinson's disease. J Vis Exp. (199), e65966(2023).
- Spillantini, M. G., et al. Alpha-synuclein in Lewy bodies. Nature. 388 (6645), 839-840 (1997).
- Trinh, J., et al. Genotype-phenotype relations for the Parkinson's disease genes SNCA, LRRK2, VPS35: MDSGene systematic review. Mov Disord. 33 (12), 1857-1870 (2018).
- Kasten, M., et al. Genotype-phenotype relations for the Parkinson's disease genes Parkin, PINK1, DJ1: MDSGene systematic review. Mov Disord. 33 (5), 733-741 (2018).
- Deutschländer, A., Ross, O. A., Wszolek, Z. K. VPS35-related Parkinson disease. GeneReviews. , https://www.ncbi.nlm.nih.gov/books/NBK447258/ (2023).
- Wasner, K., Grünewald, A., Klein, C. Parkin-linked Parkinson's disease: From clinical insights to pathogenic mechanisms and novel therapeutic approaches. Neurosci Res. 159, 34-39 (2020).
- Vos, M., Klein, C. The importance of Drosophila melanogaster research to uncover cellular pathways underlying Parkinson's disease. Cells. 10 (3), 579(2021).
- Feany, M. B., Bender, W. W. A Drosophila model of Parkinson's disease. Nature. 404 (6776), 394-398 (2000).
- Park, J., et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 441 (7097), 1157-1161 (2006).
- Diaw, S. H., et al. Characterization of the pathogenic α-synuclein variant V15A in Parkinson's disease. NPJ Parkinsons Dis. 9 (1), 148(2023).
- Ruxton, G. D. The unequal variance t-test is an underused alternative to Student's t-test and the Mann-Whitney U test. Behav Ecol. 17 (4), 688-690 (2006).
- Lin, G., et al. Phospholipase PLA2G6, a Parkinsonism-associated gene, affects Vps26 and Vps35, retromer function, and ceramide levels, similar to α-synuclein gain. Cell Metab. 28 (4), 605-618.e6 (2018).
- Mandik, F., Vos, M. Neurodegenerative disorders: Spotlight on sphingolipids. Int J Mol Sci. 5 (21), ijms222111998(2021).
- Vos, M., Klein, C., Hicks, A. A. Role of ceramides and sphingolipids in Parkinson's disease. J Mol Biol. 435 (12), 168000(2023).
- Clark, I. E., et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 441 (7097), 1162-1166 (2006).
- Vos, M., et al. Vitamin K2 is a mitochondrial electron carrier that rescues pink1 deficiency. Science. 336, 1306-1310 (2012).
- Fedele, G., et al. Suppression of intestinal dysfunction in a Drosophila model of Parkinson's disease is neuroprotective. Nat Aging. 2 (4), 317-331 (2022).
- Popovic, R., et al. Blocking dPerk in the intestine suppresses neurodegeneration in a Drosophila model of Parkinson's disease. Cell Death Dis. 14 (3), 1-9 (2023).
- Wayland, M. T., et al. Spotting the differences: Probing host/microbiota interactions with a dedicated software tool for the analysis of faecal outputs in Drosophila. J Insect Physiol. 69, 126-135 (2014).
- Heston, M. B., et al. Gut inflammation associated with age and Alzheimer's disease pathology: A human cohort study. Sci Rep. 13 (1), 1-12 (2023).
- Levinthal, D. J., et al. Adding to the burden: Gastrointestinal symptoms and syndromes in multiple sclerosis. Mult Scler Int. 2013, 319201(2013).
- Sorboni, S. G., et al. A comprehensive review on the role of the gut microbiome in human neurological disorders. Clin Microbiol Rev. 35 (1), e0033820(2022).
- Salim, S., et al. The gut-microbiota-brain axis in autism: What Drosophila models can offer. J Neurodev Disord. 13 (1), 37(2021).
Reimpresiones y permisos
Este artículo ha sido publicado
Video próximamente