Este artículo presenta un modelo de cocultivo de células de teca y granulosa bovina. Este método tiene el potencial de servir como una base confiable para análisis centrados en el estudio de la comunicación paracrina y el transporte de sustrato entre las células somáticas dentro del folículo.
Artículo de método
Un sistema de cocultivo modificado para comprender las interacciones de las células de la granulosa y la teca en el ovario bovino
En este artículo
Resumen
Resumen
Un cocultivo confiable de células de granulosa (GC) y teca (TC) tiene el potencial de facilitar una comprensión más completa de las interacciones, las vías de señalización y el intercambio de sustrato entre ambos compartimentos celulares en el folículo ovárico bovino. Utilizando insertos de cultivo celular disponibles comercialmente, se estableció un modelo de cocultivo reproducible de GC y CT bovinos. Se observó que las células primarias de teca y granulosa requieren mucho más tiempo para unirse a la membrana del inserto en comparación con las líneas celulares. Inicialmente, los CT se sembraron en la membrana del inserto invertido, con un tubo truncado que servía como recipiente de inoculación para evitar fugas de medio. Después de un período de incubación de 72 h, el inserto se invirtió, lo que permitió que los GC se cultivaran en el lado opuesto de la membrana. Este cocultivo se sometió a 6 días adicionales de incubación a 37 °C y 5% de CO2, con intercambio de medios cada dos días. La expresión de genes marcadores indicó patrones específicos del tipo de célula, siendo CYP17A1 muy abundante en los CT y no expresado en los GC. Por el contrario, CYP19A1 mostraron niveles altos en los GC y solo niveles bajos en los CT. El análisis hormonal apoyó la presencia de un sistema de cocultivo fisiológico, como lo demuestra la síntesis de estradiol. Este modelo de cocultivo modificado respalda estudios reproducibles de señalización paracrina y transporte de sustrato entre las células somáticas del folículo.
Introducción
Durante la foliculogénesis, un aumento de la hormona luteinizante (LH) desencadena una cascada de cambios fisiológicos en el ovario, lo que finalmente conduce a la liberación de un ovocito maduro durante la ovulación 1,2. Este proceso está estrechamente regulado por las células somáticas foliculares, que proporcionan un apoyo esencial para la maduración de los ovocitos y aseguran una función ovulatoria adecuada3. El folículo está compuesto por dos tipos de células somáticas esteroidogénicas, una capa interna de células de la granulosa (GC) y una capa externa de células tecas (CT). Entre estos, los GC experimentan los cambios morfológicos y funcionales más pronunciados después del aumento de LH, destacando su papel crítico en la orquestación de las etapas finales del desarrollo folicular4. En consecuencia, los GC son de considerable interés en el análisis de factores que podrían influir en la foliculogénesis, la ovulación y la luteinización.
Previamente se estableció un modelo de cultivo celular de GC bovinos que imitan un estado activo de estradiol 5,6,7,8,9,10,11. Este modelo de cultivo sin suero permite un análisis fiable de la fisiología de GC y posibles análisis de efectores en las vías de señalización, la regulación génica y la síntesis hormonal 12,13,14. Sin embargo, la estructura del folículo es mucho más compleja, como lo destaca la hipótesis de 2-células-2-gonadotropina15. Esto subraya la dependencia y la naturaleza interconectada de los tipos de células en el contexto de la síntesis de esteroides compartimentada entre las dos capas.
Varios estudios han descrito modelos de cultivo de CT que son similares a los sistemas de monocultivo de GC previamente establecidos 16,17,18. Sin embargo, se informó un sistema de cocultivo de células de teca y granulosa porcina, en el que ambas poblaciones celulares se cultivan en una sola placa en una proporción de 4:1 de GC a CT 19,20,21. En este modelo, se pudo demostrar que existe un sistema funcional e interacción entre las células de la granulosa y la teca, revelando una mayor cantidad de estradiol en el sistema de cocultivo que en el monocultivo. Sin embargo, debe tenerse en cuenta que este modelo no puede analizar adecuadamente la interacción y el intercambio de sustratos entre las células de la granulosa y la teca, ya que ambos tipos de células pueden verse afectados de manera diferente. Por lo tanto, el análisis de los niveles moleculares de GC y CT independientemente entre sí es casi imposible sin un procedimiento de clasificación elaborado, que a su vez podría afectar la fisiología celular. Además, es importante considerar que este modelo puede no replicar con precisión la situación anterior al aumento de LH, cuando los GC y los CT están separados por una membrana basal3. En el bovino, se propuso un sistema de cultivo celular basado en membranas, en el que ambos tipos de células se cultivan a ambos lados de una membrana de colágeno, reflejando así la situación in vivo con mayor precisión 22,23,24,25,26.
Adaptando el concepto inicial de un sistema basado en membranas, este método tenía como objetivo establecer un modelo de cocultivo para GC y CT bovinos con insertos de cultivo celular para permitir futuros estudios de señalización paracrina entre ambos compartimentos celulares. El método presentado utiliza insertos de cultivo celular colgantes disponibles comercialmente en lugar de un sistema de membrana personalizado, lo que ofrece ventajas como una mayor reproducibilidad, calidad estandarizada y estabilidad mejorada del producto. Este enfoque garantiza la coherencia entre los experimentos, lo que lo convierte en una herramienta valiosa para los investigadores que estudian las interacciones de las células foliculares. El procedimiento de cultivo incluye una siembra inicial de 1,7-1,8 x 10⁵ células de la teca en la parte inferior del inserto, seguida de aproximadamente 1,0 x 10⁵ células de la granulosa en la superficie superior después de la inversión y una preincubación de 72 h. Los cultivos se mantienen en un medio definido en condiciones estándar (37 °C, 5% de CO2) con medios intercambiados cada dos días. Para permitir el intercambio paracrino entre compartimentos, se utilizaron insertos de cultivo celular de 0,4 μm hechos de poliéster, como tereftalato de polietileno (PET) (disponible comercialmente). Las membranas de este tamaño de poro permiten la difusión de macromoléculas solubles, como hormonas, factores de crecimiento y proteínas, al tiempo que evitan la migración celular27,28.
Al permitir la separación espacial mientras se mantiene la comunicación paracrina, este sistema de cocultivo proporciona un entorno fisiológicamente relevante para investigar las interacciones de las células de la granulosa y la teca, las vías de señalización y el intercambio de sustratos. El modelo es particularmente adecuado para estudios que requieren condiciones controladas, como la regulación hormonal, el análisis de expresión génica o las pruebas de drogas. Los investigadores interesados en la dinámica folicular, la fisiología reproductiva o los trastornos ováricos pueden encontrar este método aplicable a sus estudios. Además, el uso de insertos estandarizados permite una fácil adaptación a diferentes necesidades experimentales, incluidas modificaciones en la duración del cultivo, los tipos de células o las condiciones de tratamiento.
Protocolo
Los ovarios bovinos se obtuvieron de un matadero comercial local. En esta configuración experimental, la preparación de los ovarios se realiza dentro de las 2 h posteriores a la recepción. La recogida de subproductos del matadero no requiere aprobación ética según la legislación alemana.
NOTA: El aislamiento y la criopreservación de GC bovinos ya se han descrito y mostrado en un informe de método anterior6 y se pueden realizar en consecuencia.
1. Preparación de reactivos y configuración para la disección del folículo ovárico
- Prepare 1x PBS (pH 7,4) suplementado con 100 UI de penicilina, 0,1 mg/ml de estreptomicina y 0,5 μg/ml de anfotericina para el transporte de ovarios. La solución se puede almacenar a 4 °C hasta por 4 semanas.
- Prepare la solución de digestión que contiene 10 veces el tampón de sal de Hanks suplementado con 25 mM de HEPES, 100 UI de penicilina, 0,1 mg/ml de estreptomicina y 0,5 μg/ml de anfotericina. La solución de digestión se puede almacenar a 4 °C durante 2-3 semanas.
- Llene 1 ml de solución de digestión en tubos de 1,5 ml por cada folículo disecado planificado y precaliente la solución a 37 °C.
- Agregue 10 μL de colagenasa NB8 para lograr una concentración del 0,1% de la solución de digestión poco antes de la preparación.
- Prepare los siguientes platos para los procedimientos de preparación, aislamiento y lavado.
- Platos de vidrio con un diámetro mínimo de 3 cm para colocar los ovarios para disección.
- Una placa de 6 pocillos con 1 ml 1x PBS (complementado con antibióticos) para el lavado.
- Un plato de 12 pocillos con aproximadamente 10 μL de solución de digestión.
- Para la crioconservación, prepare una solución de congelación que consista en un 80% de suero fetal de ternera (FCS) y un 20% de DMSO.
NOTA: La concentración final de DMSO para criopreservación será del 10%.
2. Disección de folículos con posterior digestión de células de teca bovina
- Realice los procedimientos de digestión celular, así como el trabajo de cultivo celular bajo un banco de flujo laminar.
- Lave los ovarios 2-3 veces en 1 PBS (complementado con antibióticos, consulte el paso 1.1) para eliminar la sangre y otros residuos de la superficie. Coloque los ovarios en un vaso, llénelo con 1x PBS para que los ovarios queden cubiertos y deseche la solución después. Repita este paso 3-4 veces hasta que los ovarios estén limpios.
- Coloque un ovario en un plato de vidrio y seleccione folículos de 5-11 mm, medidos con una regla, para la disección.
- Aspire el líquido folicular con una jeringa de 3 ml y una aguja de 18 G perforando un folículo seleccionado. Deseche el líquido folicular.
- Corta el folículo con unas tijeras, comenzando en el punto donde se insertó la aguja durante la aspiración. Use un par de binoculares para un corte preciso.
- Use pinzas en el borde cortante del folículo para agarrar la capa más interna, la teca interna.
- Trate de despegar la teca interna del lado interno de la pared del folículo abierto.
NOTA: Dependiendo de la edad o la etapa del folículo, la capa de células de la teca se puede despegar más fácilmente, lo que da como resultado una capa de teca intacta.
- Coloque la capa de células de teca en un recipiente lleno de 1x PBS (complementado con antibióticos, consulte el paso 1.1.) para eliminar las células de la granulosa restantes.
- Raspe suavemente las células de la granulosa del lado interno de la membrana con un bisturí. Las células deben desprenderse fácilmente en grandes grupos.
- Coloque la capa de células de teca en un plato nuevo lleno de 1x PBS para lavarla.
- Enjuague cuidadosamente la membrana girando en el PBS fresco 1x para eliminar las células sueltas.
NOTA: A partir del siguiente paso, trabaje debajo de la caja de flujo laminar.
- Transfiera la teca interna a la solución de digestión preparada de la placa de 12 pocillos (consulte los pasos 1.2 y 1.3.3) y córtela en trozos pequeños, presumiblemente de 1 a 3 mm, con un bisturí.
NOTA: Se recomienda digerir las células de la teca de diferentes folículos de forma independiente para evitar la obstrucción de tejidos de diferentes orígenes. - Transfiera los fragmentos de teca a un tubo de reacción preparado de 1,5 ml (consulte los pasos 1.2.1 y 1.2.2). Incubar la teca en una incubadora termoagitadora a 800 rpm a 37 °C durante 45-50 min.
- Después de agitar durante 30 min, comience a agitar los tubos de reacción durante 3-5 s y vuelva a colocarlos en la incubadora de agitación.
- Repita este paso 3-4 veces en el tiempo de incubación restante.
- Después de la incubación, vuelva a suspender las células digeridas con una pipeta.
- Elimine el tejido no digerido por filtración con el colador celular de 100 μm colocado en un tubo de 50 ml, y proceda inmediatamente con el recuento y la criopreservación de las células para eliminar los medios de digestión.
3. Recuento y crioconservación de CT
- Para contar el número de células viables, prepare un tubo con 1,5 μL de una solución azul de tripano al 0,25%. Las células vivas permanecerán sin teñir, mientras que las células muertas aparecerán azules debido al acceso del azul de tripano a través de barreras celulares rotas.
- Agregue 15 μL de la suspensión celular digerida a la solución azul de tripano y mezcle suavemente.
- Coloque 10 μL de la mezcla en ambas cámaras de un hemocitómetro. Cuente el número de células vivas (= incoloras) en un cuadrado grande por cámara.
- Determine el número de células vivas con la media de ambos cuadrados de cámara siguiendo las pautas estándar. Tenga en cuenta que la proporción de células vivas puede diferir entre los ovarios.
- Congele las porciones no digeridas de la suspensión de células teca (consulte el paso 2.9) para una comparación prevista como control no cultivado y para realizar una evaluación de la posible contaminación cruzada con GC (como se muestra en la Figura 2).
- Transfiera el tejido no digerido de cada teca interna diseccionada que permanece en el colador celular de 100 μm (consulte el paso 2.10) a un tubo marcado.
- Congele el tubo en nitrógeno líquido antes de almacenarlo a -80 °C.
- Realizar la criopreservación de las células tecas aisladas para facilitar una mejor planificación de los cultivos celulares, con especial atención al número de células necesarias.
- Centrifugar la suspensión celular digerida a 500 x g durante 5 min a temperatura ambiente (en promedio 20 °C). Deseche el sobrenadante.
- Disuelva cuidadosamente el gránulo celular en 1 ml de FCS al 100%. Agregue 1 ml de medio de congelación (consulte el paso 1.4) a la solución celular. La concentración final de DMSO para criopreservación es del 10%. Transfiera la mezcla a los viales criogénicos especificados de 2 ml.
- Coloque los viales en un dispositivo más frío para una disminución controlada de la temperatura. En esta configuración, se utilizó un recipiente de congelación específico, que garantiza una velocidad de congelación de -1 °C/min cuando se coloca durante al menos 4 h a -80 °C. Posteriormente, los viales se pueden almacenar en sistemas de almacenamiento de nitrógeno líquido.
4. Preparaciones para el trabajo de cultivo celular
- Corte la tapa de un tubo de reacción de 1,5 ml. Luego, corte el tubo de reacción aproximadamente a 1 cm de la abertura con la ayuda de un bisturí (preferiblemente calentado) o un cortador de manguera adecuado. Después, esterilizar en autoclave los tubos y tapas cortados. Los párpados pueden ser necesarios para procedimientos posteriores del cultivo celular (ver paso 5.5).
NOTA: Asegúrese de que los tubos de 1,5 ml encajen firmemente en el inserto elegido. - Asegúrese de recubrir los insertos con colágeno R al 0,02 % para la unión de GC y TC en el cultivo.
NOTA: Realice el procedimiento de recubrimiento bajo una campana de flujo laminar estéril.- Use agua purificada (apta para cultivo celular) para preparar una solución de colágeno R al 0,02%. Prepare 80 μL de esta solución para cada inserto de cultivo celular necesario.
- Coloque el inserto boca abajo en la tapa de una placa de 24 pocillos. Agregue suavemente 40 μL de solución de colágeno R a la membrana del inserto, asegurándose de que permanezca en su lugar. Deje secar la solución de colágeno R durante 4-5 h bajo la campana de flujo laminar.
- Gire el inserto y cuélguelo en los pocillos de la placa de 24 pocillos para cubrir el segundo lado nuevamente con 40 μL de solución de colágeno R. Deje que la solución se seque nuevamente durante 4-5 h.
- Irradie los insertos con luz ultravioleta durante 10-15 minutos para disminuir la contaminación.
- Los insertos deben almacenarse dentro de la placa de 24 pocillos (preferiblemente en la bolsa de entrega estéril) y en un refrigerador a 4 ° C y se pueden usar hasta 4 semanas.
- Preparar los medios 8,10 de la siguiente manera:
NOTA: Realice el procedimiento de preparación de medios bajo una campana de flujo laminar estéril.- Complemente el medio esencial α-minimial (α-MEM) con 2 mM de L-glutamina, 0,084% de bicarbonato de sodio, 0,1% de BSA, 20 mM de HEPES, 4 ng/mL de selenito de sodio, 5 μg/mL de transferrina, 10 ng/mL de insulina y 1 mM de aminoácidos no esenciales.
NOTA: Para garantizar la consistencia, se recomienda preparar suficiente medio para todo el experimento con anticipación. El medio preparado se puede almacenar a 4 °C. Para la configuración descrita, utilice 750 μL por pocillo de cultivo celular. - Además, agregue 100 UI de penicilina, 0,1 mg/ml de estreptomicina y 0,5 μg/ml de anfotericina a los medios preparados.
- Precaliente el medio a 37 °C en un baño de agua.
NOTA: Después del precalentamiento de los medios, los antibióticos son estables durante aproximadamente 48 h. Por lo tanto, alícuota solo la cantidad deseada de medios para el calentamiento. - Además, complemente el α-MEM con 20 ng/mL de hormona estimulante del folículo (FSH), 50 ng/mL de R3 IGF-1 y 2 μM de androstenediona para un entorno celular fisiológico 7,8,10,11.
NOTA: Agregue estos componentes poco antes del inicio del intercambio cultural o de medios. Para evitar una actividad comprometida, es imperativo evitar ciclos repetidos de congelación-descongelación de las soluciones madre FSH e IGF-1.
- Complemente el medio esencial α-minimial (α-MEM) con 2 mM de L-glutamina, 0,084% de bicarbonato de sodio, 0,1% de BSA, 20 mM de HEPES, 4 ng/mL de selenito de sodio, 5 μg/mL de transferrina, 10 ng/mL de insulina y 1 mM de aminoácidos no esenciales.
5. Co-cultura de CT y GC
- Preparar la cámara de inoculación para el cultivo de células tecas (Figura 1A).
- Coloque el inserto recubierto boca abajo en una placa más grande (por ejemplo, una placa de 12 pocillos).
- Coloque el tubo cortado y esterilizado en autoclave en un inserto invertido (consulte el paso 4.1). Asegúrese de que el tubo esté firmemente asentado en el inserto para evitar fugas de medios.
- Descongele las células teca criopreservadas rápidamente en un baño de agua a 37 °C durante 3-5 min y transfiera la suspensión celular inmediatamente después de la descongelación al medio precalentado.
- Centrifugar la suspensión de células teca a 500 x g durante 3 min a temperatura ambiente (en promedio 20 °C) y desechar el sobrenadante. Agregue el α-MEM suplementado y vuelva a suspender cuidadosamente las celdas.
- Semilla 1,7-1,8 x 10⁵ células por inserto en la cámara de inoculación en un volumen final de 200 μL de medio. Incluya al menos tres réplicas técnicas por condición.
- Para cerrar la placa de cultivo celular con una tapa, puede ser necesario aumentar la distancia entre la placa y la tapa cuando se utiliza la cámara de inoculación.
- Utilice los tapones cortados y esterilizados en autoclave de los tubos de reacción de 1,5 ml (consulte el paso 4.1) y colóquelos en cada esquina de las placas de cultivo celular. Las tapas actuarán como soportes para levantar ligeramente la tapa de la placa, proporcionando suficiente espacio para la cámara de inoculación mientras cubren adecuadamente la placa de cultivo.
- Cierre la placa de pocillos con cuidado, asegurándose de que permanezca estable y no toque la membrana o la cámara.
- Transfiera suavemente la placa a una incubadora de cultivo celular humidificada.
- Incubar las células de la teca durante 3 días a 37 °C con un 5% de CO2 para permitir la adhesión celular a la membrana.
- Gire el inserto después de 3 días de cultivo para prepararlo para la siembra con GC (Figura 1B).
- Prepare una placa de 24 pocillos y llénela con 500 μL de medios en cada uno de los pocillos deseados.
- Con una pipeta, retire todos los medios de la cámara de inoculación. Retire con cuidado la cámara de inoculación del inserto con unas pinzas.
- Coloque el inserto con las células teca adjuntas en la placa de 24 pocillos preparada, asegurándose de que los TC miren hacia abajo (consulte la Figura 1B para obtener más detalles).
- Para sembrar células de granulosa a partir de la crioconservación, realice los pasos 5.2 y 5.3.
- Siembre aproximadamente 1,0 x 10⁵ células por inserto en un volumen final de 250 μL de medios que se colocan dentro del inserto.
- Posteriormente, incubar el cocultivo a 37 °C con 5% deCO2 durante seis días más.
- Realice un intercambio de medios cada 48 h después de la siembra de GC cuando solo se reemplacen dos tercios de los medios de cultivo. Esto debería reducir el estrés del procedimiento y ayudar a adaptarse a los medios recién agregados.
6. Análisis posterior de células cultivadas de teca y granulosa
- Realice una evaluación morfológica de las células de teca y granulosa en todo el cultivo celular con un microscopio de contraste de fase para monitorear la unión y propagación de ambos tipos de células (ver Figura 3).
- Para el análisis de hormonas esteroides, recoger el medio y congelar a -20 °C. Utilice un método apropiado para analizar las concentraciones de las hormonas esteroides deseadas (p. ej., en este flujo de trabajo, el estradiol se analizó a través de RIA 5,29).
NOTA: Un análisis de hormonas esteroides ayuda a evaluar el estado fisiológico del cultivo7. - Para analizar la expresión génica, primero aísle el ARN con una técnica adecuada (por ejemplo, procedimientos de kit).
NOTA: Tenga en cuenta que durante el procedimiento de aislamiento, ambos tipos de células se preparan de forma independiente entre sí.- Disociar las células de ambos lados de la membrana con un reactivo apropiado (p. ej., tripsina o acutasa). Coloque el medio de disociación tanto en el inserto (por ejemplo, 200 μL de accutasa) como en los pocillos de la placa (por ejemplo, 500 μL de accutasa) de modo que la membrana esté completamente rodeada por el medio de disociación.
- Recoja las células de la granulosa del inserto, mientras que las células de teca desprendidas se pueden recolectar del pocillo. Transfiera cada tipo de célula a un tubo de 1,5 ml.
- Centrifugar las células a 500 x g durante 3 min y desechar el sobrenadante.
- Lisar las células, realizar el aislamiento de ARN y luego medir la concentración de ARN.
NOTA: El protocolo se puede detener después de la lisis de las células para la mayoría de los procedimientos de aislamiento, de modo que las muestras se puedan almacenar a -20 ° C a corto plazo. Para un almacenamiento más prolongado, las células lisadas se pueden almacenar a -80 °C. - Posteriormente, sintetizar ADNc para medir la abundancia de transcripciones de interés mediante qPCR. La síntesis de ADNc utiliza 100 ng de ARN con hexámeros aleatorios y cebadores oligo-dT. Para qPCR, se utilizaron cebadores específicos de genes como se describió anteriormente 5,30. En resumen, las condiciones del ciclo fueron las siguientes: preincubación a 95 °C durante 5 min, desnaturalización de 40 ciclos a 95 °C durante 20 s, recocido a 60 °C durante 15 s, extensión a 72 °C durante 15 s y adquisición fluorescente de un solo punto durante 10 s. Se coamplificó un estándar externo de cinco concentraciones diferentes (5x10-12- 5x10-16 g de ADN/reacción). Para la normalización de la abundancia de transcripciones, se calculó la media geométrica de RPLP0 y TBP.
- Para eliminar la posible contaminación cruzada, evalúe la pureza de las preparaciones celulares de teca y granulosa analizando la expresión génica de los marcadores específicos de células CYP17A1 y CYP19A1 de las preparaciones celulares recién aisladas de CT y GC (Figura 2).
NOTA: Una evaluación estadística debe incluir un mínimo de tres réplicas de diferentes cultivos celulares. En esta configuración experimental, se realizó una prueba t o ANOVA de una vía después de verificar la normalidad y la varianza.
Resultados
Aunque los CT y GC se aislaron utilizando técnicas de separación mecánica bien establecidas basadas en la compartimentación folicular, se evaluó la expresión de genes específicos del tipo de célula CYP17A1 y CYP19A1 para eliminar el riesgo de contaminación cruzada. CYP17A1 se expresó exclusivamente en CT recién aislados, mientras que CYP19A1 se expresó predominantemente en GC recién aislados (Figura 2).
El sistema de cocultivo permite la compartimentación de células de teca y granulosa bovinas en lados opuestos de un inserto de membrana, imitando así la organización espacial in vivo. Después de tres días en cultivo, los CT exhibieron una morfología aplanada y alargada a medida que se extendían por la superficie de la membrana del inserto recubierta de colágeno, lo que indica una unión exitosa (Figura 3A). Cuando se cultivaron solos durante todo el período de 9 días, los CT continuaron proliferando y alcanzaron la confluencia el día 9 (Figura 3B). Por el contrario, los GC cultivados solos durante 6 días en la membrana de inserción recubierta de colágeno desarrollaron un fenotipo similar a los fibroblastos, que es característico de los GC in vitro (Figura 3C). Además, como se describió anteriormente, los GC tendían a formar grupos, una característica típica de estas células en cultivo 5,7,31,32. En el sistema de cocultivo, no se observaron diferencias morfológicas aparentes ni en los CT ni en los GC en comparación con sus respectivos monocultivos emparejados en el tiempo (Figura 3D), lo que indica que el entorno basado en insertos mantiene un comportamiento celular normal. Sin embargo, debido a limitaciones técnicas, la evaluación microscópica del cocultivo sigue siendo un desafío, particularmente para distinguir y evaluar la morfología de CT independientemente de las otras células. Para superar estas limitaciones, actualmente se está abordando un protocolo optimizado para la fijación celular de acuerdo con la exploración de estrategias alternativas para la identificación celular en ausencia de anticuerpos específicos de células para inmunotinción.
La funcionalidad del sistema de cocultivo se evaluó mediante el análisis de la producción de hormonas y la expresión de genes marcadores clave para CT y GC33,34, confirmando las funciones esteroidogénicas específicas del tipo de célula. Una comparación entre el monocultivo de GC y el modelo de cocultivo reveló niveles similares de estradiol (E2) producidos in vitro. Sin embargo, como se esperaba, el monocultivo de TC produjo solo cantidades insignificantes de E2, lo que es consistente con la hipótesis de 2-células-2-gonadotropina (Figura 4A)15, que establece que las células de la teca carecen de la capacidad de sintetizar E2 de forma independiente.
Para evaluar aún más la relevancia fisiológica de las condiciones de cultivo, se examinó la expresión de genes marcadores clave33 . De acuerdo con la hipótesis de 2-células-2-gonadotropina, CYP19A1 se expresó predominantemente en GC, mientras que CYP17A1 se detectó principalmente en CT, un patrón observado tanto en condiciones de monocultivo como de cocultivo (Figura 4B, C). En particular, la abundancia de transcripción de CYP19A1 fue mayor en los GC dentro del sistema de cocultivo en comparación con el monocultivo de GC, a pesar de que no se observaron diferencias en las concentraciones de estradiol.
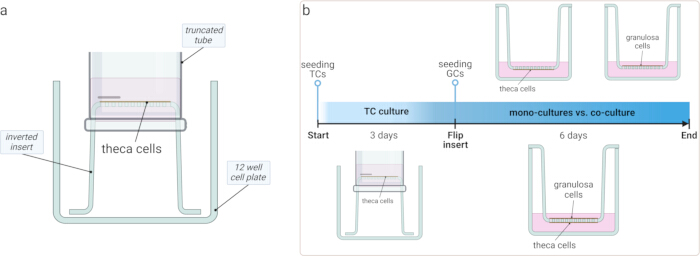
Figura 1: Representación esquemática de la configuración del cultivo celular. (A) Un diagrama que ilustra la cámara de inoculación hecha a medida, que utiliza un tubo truncado en el inserto invertido para evitar fugas de medios durante el período de cultivo inicial. (B) Cronología del procedimiento experimental: Los TC se cultivaron en el inserto invertido durante tres días para permitir la adhesión. Se volteó el inserto y se sembraron GC en el lado opuesto, seguido de seis días adicionales de cultivo. El estudio comparó los CT y GC cultivados por separado con el sistema de cocultivo TC-GC. Haga clic aquí para ver una versión más grande de esta figura.
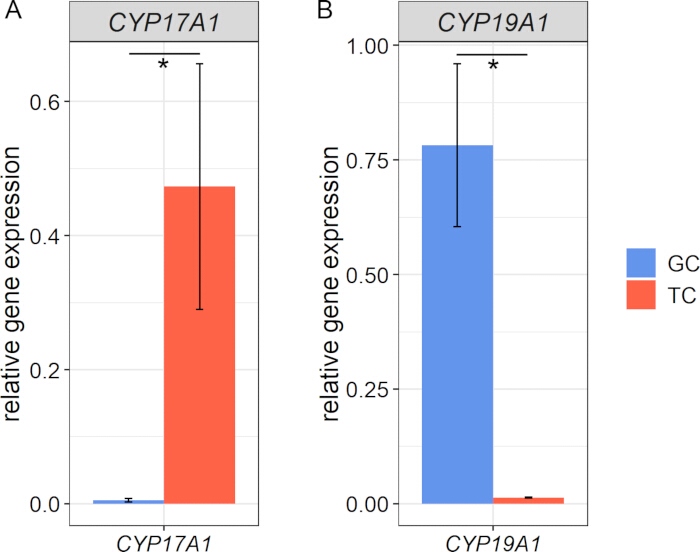
Figura 2: Expresión génica de marcadores específicos del tipo de célula en células de la granulosa y la teca recién aisladas. (A) CYP17A1 se expresó exclusivamente en CT, mientras que (B) CYP19A1 se detectó predominantemente en GC, lo que confirma la especificidad y la pureza inicial de las poblaciones celulares aisladas antes del cultivo. Los datos se presentan como expresión relativa normalizada a la media geométrica de los genes de referencia RPLP0 y TBP. Se muestran las medias y el error estándar de las medias, se probaron los datos para determinar la normalidad y la varianza, los asteriscos indican diferencias significativas (n = 3, prueba t). Haga clic aquí para ver una versión más grande de esta figura.
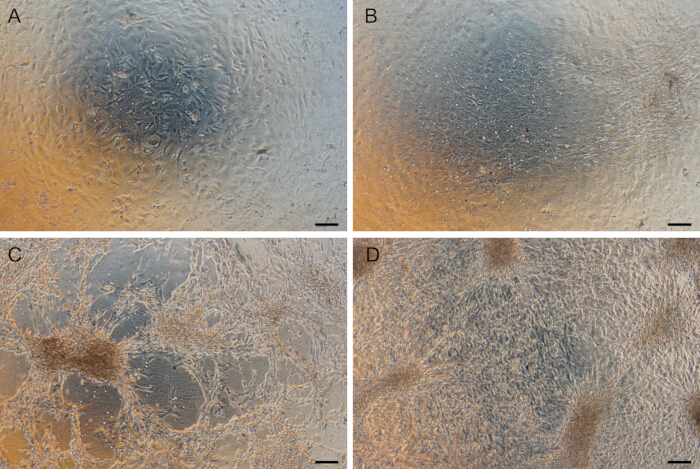
Figura 3: Morfología de las células de teca y granulosa en cultivo. (A) Los CT cultivados durante 3 días se unieron a la membrana del inserto recubierta de colágeno. (B) Los CT crecieron hasta la confluencia después de todo el período de 9 días en el monocultivo. (C) Los GC muestran el fenotipo típico similar a un fibroblasto después de 6 días en cultivo. (D) El cocultivo de CT y GC no muestra diferencias morfológicas aparentes en comparación con los respectivos monocultivos emparejados en el tiempo. Esta imagen se tomó después de 6 días de cultivo de GC y 9 días de cultivo de TC (en el punto final del experimento de cocultivo). Barras de escala 100 μm. Haga clic aquí para ver una versión más grande de esta figura.
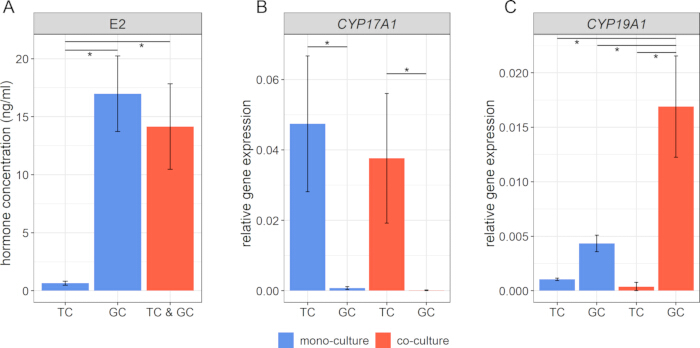
Figura 4: Análisis de marcadores funcionales en el sistema de cocultivo. (A) Las concentraciones hormonales de estradiol (E2) confirman la funcionalidad fisiológica del sistema de cultivo celular. (B, C) El análisis de la expresión génica del marcador TC CYP17A1 y el marcador GC CYP19A1 demuestra la identidad y el estado funcional de ambas poblaciones celulares. Se utilizó la media geométrica de los genes de referencia RPLP0 y TBP para calcular la expresión relativa. Se muestran las medias y el error estándar de las medias, se probaron los datos para determinar la normalidad y la varianza, los asteriscos indican diferencias significativas (n = 3, ANOVA de una vía). Haga clic aquí para ver una versión más grande de esta figura.
Discusión
El requisito previo para realizar este modelo de cocultivo es un aislamiento bien realizado de ambos tipos de células para evitar cualquier contaminación cruzada. La pureza de ambas preparaciones celulares se evaluó mediante la expresión génica del marcador específico de TC CYP17A1 y el marcador específico de GC CYP19A1. Como se mostró anteriormente, la técnica de aislamiento de GC y CT no mostró contaminación cruzada relevante30.
Este modelo de cocultivo permite el cultivo simultáneo de células de teca y granulosa en lados opuestos de una membrana, imitando su organización espacial dentro del folículo y apoyando el estado fisiológico de ambas poblaciones celulares3. La validez del modelo se ve reforzada por su perfil de producción hormonal y patrones de expresión génica que se alinean con la hipótesis de 2-células-2-gonadotropina15. Como era de esperar, los bajos niveles de estradiol en el monocultivo de TC confirman que las células de la teca por sí solas no pueden sintetizar estradiol, lo que respalda el conocimiento establecido de la esteroidogénesis folicular35. A pesar de la mayor expresión de CYP19A1 en GC cocultivados, los niveles de estradiol se mantuvieron comparables al monocultivo de GC, lo que sugiere la influencia de mecanismos reguladores como la disponibilidad de sustrato, la inhibición por retroalimentación o las diferencias en la actividad enzimática. Se justifica una mayor exploración de las vías de señalización y los mecanismos subyacentes, como tema para futuros estudios. Sin embargo, el establecimiento de un sistema de cocultivo funcional de CT y GC bovinos es imperativo, como se proporciona en este estudio. El presente estudio se centró en la producción de estradiol y los niveles de expresión de ARNm de CYP17A1 y CYP19A1 como indicadores clave de la funcionalidad del modelo de cocultivo. Ambos representan marcadores sensibles de la función de las células de la granulosa y la teca 4,8,36 y están directamente alineados con la hipótesis de 2-células-2-gonadotropina15. Si bien se reconoció la importancia de la expresión de proteínas, la falta de anticuerpos confiables impidió su evaluación precisa; por lo tanto, un análisis exhaustivo de los niveles de proteínas estaba fuera del alcance de esta investigación inicial.
En general, este modelo es un desarrollo posterior del modelo tradicional de cultivo 2D, que imita en parte la estructura del folículo ovárico3. Los resultados apoyan un estado fisiológico de ambos compartimentos celulares revelado por la expresión de marcadores sensibles para la fisiología de GC y CT.
Una ventaja sobre los modelos tradicionales de cultivo 2D es facilitar las interacciones paracrinas entre las células de la teca y la granulosa mientras se mantiene su separación espacial, imitando mejor la estructura folicular in vivo. Por el contrario, los sistemas de cocultivo en plato, donde los CT y los GC se mezclan en un solo pozo, carecen de esta organización estructural. Los estudios que utilizan tales sistemas han aplicado comúnmente una relación GC: TC de 4: 1 19,20,21, pero este enfoque no refleja la compartimentación encontrada in vivo y, por lo tanto, podría no ser factible para analizar el intercambio de sustratos. Además, las alteraciones encontradas a nivel celular no se pueden detectar fácilmente, cuando esta mezcla de GC-TC tiene que clasificarse de manera compleja.
Los modelos tridimensionales de cocultivo para células de granulosa y teca siguen siendo escasos, pero los primeros intentos han mostrado resultados prometedores. El grupo de Kotsuji 22,23,24,37 describió previamente la interacción de las células de la granulosa y la teca en cultivo utilizando una membrana de colágeno como separador físico. Sin embargo, este sistema se basaba en una membrana de colágeno hecha a medida, lo que dificultaba la reproducibilidad y la estandarización. Por el contrario, el modelo de cocultivo presentado se beneficia de los insertos de cultivo colgantes disponibles comercialmente, que mejoran la reproducibilidad, la estandarización y la calidad del producto, lo que garantiza una aplicabilidad más amplia en todos los laboratorios. Aunque el modelo presentado en este documento resultó en una mayor producción de estradiol que los modelos anteriores, la comparación de estos modelos es difícil, ya que carece de unidad de suplementos de cultivo celular, especialmente las concentraciones utilizadas26 o el uso adicional de IGF-1 22,23,24,37.
Uno de los pasos más cruciales del procedimiento es el cultivo de CT dentro de la cámara de inoculación. Asegurarse de que la cámara esté bien colocada en el inserto invertido es esencial para evitar fugas de medios, que de otro modo podrían comprometer la fijación y la supervivencia del TC. Por lo tanto, se recomienda presionar firmemente la cámara de inoculación sobre el inserto invertido con la ayuda de unas pinzas e inspeccionar visualmente la ubicación de la cámara de inoculación. Además, retirar la cámara de inoculación y voltear el inserto después de tres días requiere precisión técnica. Puede ser necesario un poco de entrenamiento de habilidades para realizar este paso sin interrumpir y / o dañar las células adheridas. Otra consideración importante es la densidad de siembra de los GC. Una densidad celular más alta que exceda los niveles óptimos de 1,0 x 10⁵ células por inserto puede conducir a la diferenciación de los GC, lo que podría afectar la producción esteroidogénica. Además, el método de criopreservación presentado produjo una viabilidad después de la descongelación del 80-90% para ambos tipos de células.
Aunque el modelo descrito ofrece un sistema fisiológico y reproducible para estudiar las interacciones de las células de la granulosa y la teca, se deben considerar algunas limitaciones. El método también es adaptable a otras especies; sin embargo, las diferencias específicas de la especie pueden requerir la optimización de los parámetros de cultivo celular, como las densidades celulares, el momento o la composición del medio. La escalabilidad de este modelo se limita a la disponibilidad de los insertos de cultivo celular, pero podría ser suficiente para la mayoría de los estudios de efectores. Finalmente, este modelo de cocultivo es un paso más hacia la imitación de la situación in vivo del folículo, pero aún carece de toda la complejidad del folículo ovárico.
En conclusión, el modelo presentado se puede modificar fácilmente para adaptarse a diferentes necesidades experimentales, como extender el período de cultivo, ajustar el número o la proporción de células o incorporar factores adicionales. Con un mayor desarrollo, este sistema representa una herramienta valiosa para estudiar la función folicular, la esteroidogénesis y la señalización celular entre ambos compartimentos celulares. Además, tiene potencial para aplicaciones en toxicología reproductiva, proporcionando una plataforma controlada para evaluar el impacto de diferentes compuestos en las células foliculares.
Divulgaciones
Todos los autores declaran no tener conflictos de intereses.
Agradecimientos
Nos gustaría expresar nuestro agradecimiento a Veronica Schreiter, Maren Anders y Olivier Seidel por su excelente asistencia técnica. Además, nos gustaría agradecer al matadero comercial "DANISH CROWN Teterower Fleisch GmbH" (Alemania), de quien obtuvimos los ovarios para este estudio.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| 10x Solución salina equilibrada de Hank's HBSS (w Mg/Ca, rojo de fenol) | Bio& Vender | BS. L201-10 | disolver en agua ultrapura; ajustar el pH a 7,4 de la solución de digestión (HBSS y HEPES) y realizar una filtración estéril antes de su uso |
| Aguja de 18 G, 40 mm, diámetro 1,2 mm | Roth | 281T.1 | aguja desechable, atajo |
| Jeringa de 3 ml (Omnifix Luer) | Roth | LY22.1 | |
| accutasa | Merck | Referencia A6964 | sucursal de la empresa: Sigma-Aldrich |
| anfotericina B (250 µ g/ml) | Bio& Vender | BS. AB17.01050 | |
| androstenediona | Merck | 46033 | utilizamos una solución madre de 10 mM, diluida en etanol al 100 %; sucursal de la empresa: Supelco |
| prismáticos Carl Zeiss Technival2 | Carl Zeiss Jena | no aplicable | se utiliza junto con la luz incidente Schott KL 1600 LED |
| BSA (5%) | Merck | Referencia A3311 | sucursal de la empresa: Sigma-Aldrich |
| colador celular (100 µ m tamaño de poro) | Sarstedt | 83.3945.100 | Ajuste a tubos de centrifugación de 50 ml |
| colágeno R (0,2 %) | Serva | 47254 | |
| Colagenasa NB8 (10%) | Nordmark | S1745601 | |
| Contenedor de congelación de células CoolCell LX | Merck | CLS432002 | producto de Corning |
| viales de crioconservación (2 ml) | TPP Fausto | TPP89020 | |
| plato de cultivo, 12 pocillos, fondo plano | TPP Fausto | TPP92112 | |
| plato de cultivo, 24 pocillos, fondo plano | TPP Fausto | TPP92424 | |
| plato de cultivo, 6 pocillos, fondo plano | TPP Fausto | TPP92006 | |
| DMSO | Roth | 4720.1 | |
| DPBS sin Ca2+, Mg2+ | Bio& Vender | BS. L182-10 | disolver en agua ultrapura y esterilizar en autoclave antes de usar |
| estradiol, 17b-[2,4,6,7-3H] | Hartmann Analytik | ART1555 | |
| suero fetal de ternera (FBS Superior stabil) | Bio& Vender | FBS. S0615 | |
| FSH (~7,000 UI/mg; de hipófisis humana) | Merck | F4021 | Preferimos usar una solución madre de 2 µ g/ml, diluidos en NaCl al 0,9 %; sucursal de la empresa: Sigma-Aldrich |
| insertos de cultivo celular colgantes (0,4 µ m tamaño de poro) | celdaQART | 9320412 | Al ordenar, tenga en cuenta las diferentes propiedades de los insertos; preferimos una membrana PET transparente para la microscopía de contraste de fase |
| HEPES (1 M) | Roth | 9105.2 | ajustar el pH a 7,4 de la solución de digestión (HBSS y HEPES) y realizar una filtración estéril antes de su uso |
| Holotransferrina (ganado) | Merck | T1283 | disolver en agua estéril; sucursal de la empresa: Sigma-Aldrich |
| Mini kit de ARN innuPREP 2.0 | IST innuscreen | 845-KS-2040250 | |
| insulina (10 mg/ml; del páncreas bovino) | Merck | I0516 | disolver en 1x PBS; sucursal de la empresa: Sigma-Aldrich |
| L-glutamina (200 mM) | Bio& Vender | BS. K0283 | |
| LR3-IGF-1 | Merck | I1146 | Utilizamos una solución madre de 200 µ g/ml, disueltos en 10 mM de HCl y 1x PBS con 1 mg/ml de BSA; sucursal de la empresa: Sigma-Aldrich |
| Espectrofotómetro NanoDrop 1000 | ThermoScientific | no aplicable | Medición de la concentración de ARN |
| NEA (100x) | Bio& Vender | BS. K0293 | |
| penicilina/estreptomicina (10,000 UI/10 mg/ml) | Bio& Vender | BS. A2213 | |
| agua purificada, apta para cultivo celular | Merck | W3500 | sucursal de la empresa: Sigma-Aldrich |
| Kit de síntesis de ADNc SensiFAST | Bioline | BIO-65054 | suministrado a través del socio de distribución BioCat |
| bicarbonato de sodio (7,5%) | Bio& Vender | BS. L1713 | |
| selenito de sodio | Merck | S9133 | disolver en agua estéril; sucursal de la empresa: Sigma-Aldrich |
| termoagitador TS-100C | Fischer Scientific | 12357627 | se utiliza junto con el bloque HC18 (Cat.-No. 12337627) |
| &alfa;-MEM | Bio& Vender | BS. F0915 |
Referencias
- Adams, G. P., Jaiswal, R., Singh, J., Malhi, P. Progress in understanding ovarian follicular dynamics in cattle. Theriogenology. 69 (1), 72-80 (2008).
- Forde, N., et al. Oestrous cycles in Bos taurus cattle. Anim Reprod Sci. 124 (3-4), 163-169 (2011).
- Hennet, M. L., Combelles, C. M. The antral follicle: A microenvironment for oocyte differentiation. Int J Dev Biol. 56 (10-12), 819-831 (2012).
- Christenson, L. K., et al. Research resource: Preovulatory LH surge effects on follicular theca and granulosa transcriptomes. Mol Endocrinol. 27 (7), 1153-1171 (2013).
- Baufeld, A., Vanselow, J. Increasing cell plating density mimics an early post-LH stage in cultured bovine granulosa cells. Cell Tissue Res. 354, 869-880 (2013).
- Baufeld, A., Vanselow, J. A Tissue culture model of estrogen-producing primary bovine granulosa cells. J Vis Exp. (139), e58208(2018).
- Gutierrez, C. G., Campbell, B. K., Webb, R. Development of a long-term bovine granulosa cell culture system: Induction and maintenance of estradiol production, response to follicle- stimulating hormone, and morphological characteristics. Biol Reprod. 56 (3), 608-616 (1997).
- Hamel, M., Vanselow, J., Nicola, E. S., Price, C. A. Androstenedione increases cytochrome P450 aromatase messenger ribonucleic acid transcripts in non-luteinizing bovine granulosa cells. Mol Reprod Dev. 70, 175-183 (2005).
- Chandrasekher, Y. A., Fortune, J. E. Effects of oxytocin on steroidogenesis by bovine theca and granulosa cells. Endocrinology. 127 (2), 926-933 (1990).
- Silva, J. M., Price, C. A. Effect of follicle-stimulating hormone on steroid secretion and messenger ribonucleic acids encoding cytochromes P450 aromatase and cholesterol side-chain cleavage in bovine granulosa cells in vitro. Biol Reprod. 62 (1), 186-191 (2000).
- Gong, J. G., McBride, D., Bramley, T. A., Webb, R. Effects of recombinant bovine somatotrophin, insulin-like growth factor-I and insulin on bovine granulosa cell steroidogenesis in vitro. J Endocrinol. 143 (1), 157-164 (1994).
- Baufeld, A., Koczan, D., Vanselow, J. L-lactate induces specific genome-wide alterations of gene expression in cultured bovine granulosa cells. BMC Genomics. 20 (1), 273(2019).
- Baddela, V. S., Sharma, A., Plinski, C., Vanselow, J. Palmitic acid protects granulosa cells from oleic acid induced steatosis and rescues progesterone production via cAMP dependent mechanism. Biochim Biophys Acta Mol Cell Biol Lipids. 1867 (8), 159159(2022).
- Sharma, A., et al. Elevated free fatty acids affect bovine granulosa cell function: a molecular cue for compromised reproduction during negative energy balance. Endocr Connect. 8 (5), 493-505 (2019).
- Hillier, S. G., Whitelaw, P. F., Smyth, C. D. Follicular oestrogen synthesis - The two-cell, two- gonadotrophin model revisited. Mol Cell Endocrinol. 100, 51-54 (1994).
- Campen, K. A., Lavallee, M., Combelles, C. M. H. The impact of bisphenol S on bovine granulosa and theca cells. Reprod Domest Anim. 53 (2), 450-457 (2018).
- Glister, C., Richards, S. L., Knight, P. G. Bone morphogenetic proteins (BMP) -4, -6, and -7 potently suppress basal and luteinizing hormone-induced androgen production by bovine theca interna cells in primary culture: could ovarian hyperandrogenic dysfunction be caused by a defect in thecal BMP signaling. Endocrinology. 146 (4), 1883-1892 (2005).
- Wrathall, J. H., Knight, P. G. Effects of inhibin-related peptides and oestradiol on androstenedione and progesterone secretion by bovine theca cells in vitro. J Endocrinol. 145 (3), 491-500 (1995).
- Shores, E. M., Picton, H. M., Hunter, M. G. Differential regulation of pig theca cell steroidogenesis by LH, insulin-like growth factor I and granulosa cells in serum-free culture. J Reprod Fertil. 118 (2), 211-219 (2000).
- Gregoraszczuk, E. L., Ptak, A., Karniewska, M., Ropstad, E. Action of defined mixtures of PCBs, p,p'-DDT and its metabolite p,p'-DDE, on co-culture of porcine theca and granulosa cells: steroid secretion, cell proliferation and apoptosis. Reprod Toxicol. 26 (2), 170-174 (2008).
- Rak, A., Drwal, E., Wróbel, A., Gregoraszczuk, E. Resistin is a survival factor for porcine ovarian follicular cells. Reproduction. 150 (4), 343-355 (2015).
- Kotsuji, F., Tominaga, T. The role of granulosa and theca cell interactions in ovarian structure and function. Microsc Res Tech. 27 (2), 97-107 (1994).
- Orisaka, M., et al. Effects of ovarian theca cells on granulosa cell differentiation during gonadotropin-independent follicular growth in cattle. Mol Reprod Dev. 73 (6), 737-744 (2006).
- Tajima, K., et al. Role of granulosa and theca cell interactions in ovarian follicular maturation. Microsc Res Tech. 69 (6), 450-458 (2006).
- Tajima, K., et al. Effects of ovarian theca cells on apoptosis and proliferation of granulosa cells: changes during bovine follicular maturation. Biol Reprod. 66 (6), 1635-1639 (2002).
- Allegrucci, C., Hunter, M. G., Webb, R., Luck, M. R. Interaction of bovine granulosa and theca cells in a novel serum-free co-culture system. Reproduction. 126 (4), 527-538 (2003).
- Santaguida, S., et al. Side by side comparison between dynamic versus static models of blood-brain barrier in vitro: A permeability study. Brain Res. 1109 (1), 1-13 (2006).
- Pardridge, W. M. The Isolated Brain Microvessel: A Versatile Experimental Model of the Blood-Brain Barrier. Front Physiol. 11, 398(2020).
- Schneider, F., Brüssow, K. P. Effects of a preovulatory administered depot gonadotrophin-releasing hormone agonist on reproductive hormone levels and pregnancy outcome in gilts. Reprod Fertil Dev. 18 (8), 857-866 (2006).
- Nimz, M., Spitschak, M., Schneider, F., Fürbass, R., Vanselow, J. Down-regulation of genes encoding steroidogenic enzymes and hormone receptors in late preovulatory follicles of the cow coincides with an accumulation of intrafollicular steroids. Domest Anim Endocrinol. 37, 45-54 (2009).
- Amsterdam, A., May, J. V., Schomberg, D. W. Synergistic effect of insulin and follicle-stimulating hormone on biochemical and morphological differentiation of porcine granulosa cells in vitro. Biol Reprod. 39 (2), 379-390 (1988).
- Monga, R., Sharma, I., Datta, T. K., Singh, D. Characterization of serum-free buffalo granulosa cell culture and analysis of genes involved in terminal differentiation from FSH- to LH-responsive phenotype. Domest Anim Endocrinol. 41 (4), 195-206 (2011).
- Bao, B., Garverick, H. A. Expression of steroidogenic enzyme and gonadotropin receptor genes in bovine follicles during ovarian follicular waves: A review. J Anim Sci. 76 (7), 1903-1921 (1998).
- Bao, B., et al. Changes in messenger ribonucleic acid encoding luteinizing hormone receptor, cytochrome P450 side chain cleavage, and aromatase are associated with recruitment and selection of bovine ovarian follicles. Biol Reprod. 56 (5), 1158-1168 (1997).
- Orisaka, M., Tajima, K., Tsang, B. K., Kotsuji, F. Oocyte-granulosa-theca cell interactions during preantral follicular development. J. Ovarian. Res. 2 (1), 9(2009).
- Gilbert, I., Robert, C., Dieleman, S., Blondin, P., Sirard, M. A. Transcriptional effect of the LH surge in bovine granulosa cells during the peri-ovulation period. Reproduction. 141 (2), 193-205 (2011).
- Kotsuji, F., Kamitani, N., Goto, K., Tominaga, T. Bovine theca and granulosa cell interactions modulate their growth, morphology, and function. Biol Reprod. 43 (5), 726-732 (1990).
Reimpresiones y permisos
