La amplificación in vitro estable de las células germinales primordiales (PGCLC), un modelo sustituto derivado de células madre pluripotentes de las células germinales primordiales embrionarias, se ha enfrentado a desafíos técnicos. Este protocolo apoya la expansión a largo plazo de los PGCLC en una condición in vitro sin suero o células de la capa alimentadora.
Artículo de método
Cultivo a largo plazo de células similares a células germinales primordiales humanas
En este artículo
Resumen
Resumen
Las células germinales primordiales (PGC) son precursoras comunes de todas las células de la línea germinal masculinas y femeninas. Las PGC surgen en embriones de mamíferos periimplantacionales y se convierten en precursores de células germinales específicas de género tras la diferenciación sexual del anlage gonadal. El modelo in vitro comúnmente conocido como células similares a PGC (PGCLC), generado a partir de células madre pluripotentes humanas, es un sustituto útil de las PGC embrionarias humanas, que brinda una oportunidad única para explorar la gametogénesis humana in vitro. El protocolo presentado aquí apoya la expansión in vitro a largo plazo de los PGCLC humanos. Los PGCLC recién aislados se mantienen inicialmente en una capa alimentadora de STO y luego se expanden en una condición libre de alimentador en el extracto de la membrana basal. Los PGCLC de cultivo a largo plazo (LTC-PGCLC) pueden enriquecerse con clasificación celular activada por fluorescencia (FACS) como células CD38 positivas y se amplifican fácilmente a decenas de millones de células como cultivo monótono puro, sin alimentador y sin suero sin limitaciones aparentes como la senescencia. Es prácticamente factible obtener una población pura de más de 1 millón de PGCLC humanos a partir de unos pocos miles de PGCLC recién aislados. El cultivo celular humano LTC-PGCLC es un modelo in vitro útil y conveniente para estudiar la biología y diferenciación de las células germinales humanas en las células de la línea germinal aguas abajo.
Introducción
Las células germinales primordiales (PGC) son los precursores más tempranos de todas las células de la línea germinal. Las PGC humanas emergen del epiblasto posterior, presumiblemente células precursoras amnióticas no comprometidas, en embriones de gastrulación temprana después de la implantación a las 2-3 semanas de gestación 1,2,3,4,5,6,7. Para la especificación de PGC humanas y de ratón, las vías de señalización activadas por las proteínas morfogenéticas óseas (BMP) y WNT3 juegan un papel crítico 3,6. Mientras que la inducción de tres factores de transcripción, BLIMP1, PRDM14 y TFAP2C, es necesaria para la especificación de PGC de ratón, en la especificación de PGC humana, el papel de PRDM14 disminuye. SOX17, que es prescindible para la especificación de PGC en ratones pero indispensable para la especificación de PGC en humanos, es inducido por la señalización de BMP de una manera que depende exclusivamente de EOMES o de EOMES y TBXT 7,8,9. Las PGC humanas migran desde el epiblasto posterior hacia el anlagen gonadal en las crestas genitales a través del mesenterio dorsal a las 5-6 semanas de gestación 10,11,12,13,14,15,16. La migración humana de PGC puede ser impulsada por la quimiotaxis, aunque espera confirmación experimental. Los perfiles transcriptómicos de las PGC humanas migratorias no son idénticos a los de las PGC de ratón en la misma etapa17,18. Por ejemplo, las PGC humanas expresan DAZL incluso antes de su asentamiento en el anlagógeno gonadal, mientras que las PGC de ratón expresan DAZL solo después de su asentamiento gonadal9. Tras el inicio de la diferenciación específica por sexo de las células somáticas gonadales, las PGC también se diferencian a prospermatogonia (también conocidas como gonocitos) u oogonía.
Dado que el acceso a las PGC embrionarias humanas es extremadamente difícil debido a las barreras técnicas y éticas, el uso de células similares a las PGC (PGCLC) derivadas de células madre pluripotentes se está volviendo cada vez más popular3. Los PGCLC de ratón se asemejan a la etapa posterior a la migración de los PGC, caracterizados por una desmetilación avanzada del ADN genómico global (ADNg), y son capaces de generar espermatozoides y ovocitos competentes para la fertilización 19,20,21. Por el contrario, los PGCLC humanos se asemejan a las etapas anteriores de los PGC embrionarios con una desmetilación global limitada del ADNg 7,22,23,24. Se está acumulando evidencia de que los PGCLC humanos, a pesar de su estado relativamente inmaduro, son capaces de diferenciarse in vitro a etapas más avanzadas de células germinales que se asemejan a la oogonia25,26 o prospermatogonia27.
Desde que Irie et al. publicaron la primera generación de PGCLC a partir de células madre pluripotentes humanas en 20157, varios laboratorios han publicado varios protocolos para la producción de PGCLC en humanos. Los primeros protocolos estándar implican la formación de agregados celulares pluripotentes, que a menudo se denominan cuerpos embrioides 7,22,24,26,28,29. Los PGCLC humanos se pueden producir utilizando varios protocolos basados en agregados que comparten perfiles transcriptómicos comparables, todos los cuales expresan fuertemente genes clave del marcador PGC como PRDM1, SOX17, TFAP2C, POU5F1 y NANOS3, mientras que la expresión del marcador de pluripotencia SOX2 o el marcador PGC de etapa tardía DDX4 se suprime comúnmente24. También se han informado intentos exitosos de producir PGCLC humanos a partir de cultivos celulares monocapa para mejorar la escalabilidad y la conveniencia30. Aunque el rendimiento de PGCLC es relativamente pequeño, la producción exitosa de PGCLC humanos a partir de modelos in vitro derivados de células madre pluripotentes de los embriones en etapa de gastrulación contribuye significativamente a la elucidación de los mecanismos de especificación de la línea germinal y el desarrollo de PGC en etapa temprana 31,32,33,34,35,36.
Aunque el rendimiento y la calidad de los PGCLC humanos producidos utilizando diversos métodos de cultivo celular han mejorado, la dificultad técnica en la expansión del cultivo celular de los PGCLC humanos plantea un obstáculo significativo para su aplicación para experimentos que requieren grandes cantidades de poblaciones celulares homogéneas, como el cribado químico o genético, así como la producción de etapas avanzadas de células de la línea germinal26. Gell et al. informaron el mantenimiento de PGCLC humanos durante un máximo de 21 días en alimentadores STO en un medio basado en FR10 que contiene factor de células madre (SCF) y 2,5% de suero fetal de ternero (FCS); sin embargo, los PGCLC tendían a divergir de la identidad similar a PGC a otros tipos de células que pueden no ser relevantes para el desarrollo de células de la línea germinal37. Murase et al. eliminaron repetidamente estas células no deseadas del cultivo mediante FACS en cada paso y demostraron que los PGCLC humanos son capaces de mantener su potencial de proliferación a largo plazo in vitro38. Más tarde, Murase et al. informaron una amplificación exitosa de PGCLC humanos en un medio que contiene 2,5% de FCS39, pero su método requiere las células de la capa alimentadora m220-5, que son subclones resistentes a MMC de las células embrionarias de ratón m220 que expresan la forma unida a la membrana de SCF de ratón a partir de un vector exógeno40. A día de hoy, las células m220-5 aún no se han depositado en un repositorio de acceso público. Por lo tanto, sigue siendo un gran desafío expandir el cultivo humano de PGCLC in vitro a un gran número de células homogéneas, manteniendo sus características similares a las de PGC en una condición simple que no requiere un recurso celular alimentador no estándar y está libre de reactivos de origen animal, cuya eficiencia puede variar entre diferentes lotes.
Para superar el obstáculo técnico anterior, se ha desarrollado un método que permite la expansión in vitro a largo plazo de los PGCLC humanos como una población celular homogénea, manteniendo las características similares a las de PGC en una condición libre de suero o células de la capa alimentadora41. Debido a que los PGCLC humanos expresan telomerasa, estas células se amplifican a una velocidad constante sin signos de senescencia o desviación de otros tipos de células durante al menos 150 días. Los PGCLC de cultivo a largo plazo (LTC-PGCLC) mantienen sus características transcriptómicas similares a las de PGC humanas, aunque su ADNg global se desmetila modestamente en pasajes repetidos. Las LTC-PGCL se convierten fácilmente en células similares a células germinales embrionarias pluripotentes (EGCLC), restaurando el transcriptoma similar a iPSC y el metiloma de ADNg, aunque se pierde la restricción alélica impresa de la expresión de ARN H19. Los LTC-PGCLC también son capaces de diferenciarse en células que expresan DAZL que se asemejan a la prospermatogonia en el cultivo de organoides xenobióticos xrTestis27. Por lo tanto, el modelo humano LTC-PGCLC representa un nuevo tipo de recurso de cultivo celular relevante para la pluripotencia y mantenido de manera estable que conserva permanentemente las características biológicas de los PGCLC y se expande fácilmente in vitro como una línea celular estable.
Este artículo describe el método de adaptación de la población pura de PGCLC humanos recién aislada y enriquecida con FACS a un cultivo de mantenimiento a largo plazo sin suero a través del soporte temporal de las células de la capa alimentadora STO estándar y luego en una condición libre de alimentador en el extracto de membrana basal (BME). Este método apoya la expansión in vitro de PGCLC humanos producidos utilizando el protocolo dependiente del cuerpo embrioide, como se describió previamente 24,41,42 o reportado por Sasaki et al 22, y el método de cultivo monocapa reportado por Overeem et al30. Cuando se aplica a PGCLC humanos preparados como se describe41, una población inicial de 10,000 células se puede expandir a casi 1 x 10⁹ células en 1.5 a 2 meses con una población de 4 a 4.5 días duplicando el tiempo41. También se espera la aplicabilidad de este método a los PGCLC humanos producidos por otros métodos.
Protocolo
1. Preparación de medios de cultivo celular
- Prepare los medios como se describe en la Tabla 1, la Tabla 2, la Tabla 3 y la Tabla 4. Almacene las alícuotas de estos medios congeladas.
- Prepare el medio basal de PGCLC como se describe en la Tabla 1. Hacer alícuotas de 40 ml y almacenar a -20 °C durante 6 meses. Prepare el medio STO 1 como se describe en la Tabla 2. Almacenar 50 mL de alícuotas en tubos de centrífuga de 50 mL a 4 °C durante 1 mes.
- Prepare el medio STO 2 como se describe en la Tabla 3. Úselo inmediatamente. Preparar el medio de almacenamiento de células STO tratadas con mitomicina-C (MMC-STO) como se describe en la Tabla 4. Almacenar 10 mL de alícuotas a -20 °C durante 6 meses.
PRECAUCIÓN: Como el dimetilsulfóxido se considera peligroso (líquido combustible), debe mantenerse alejado del calor, las chispas, las llamas abiertas o las superficies calientes. Siga el protocolo regulatorio local para su eliminación.
2. Preparación de células STO tratadas con MMC
NOTA: El tratamiento MMC de las células STO inactiva su actividad de proliferación sin dañar significativamente su viabilidad. Las células MMC-STO se utilizan como células de la capa alimentadora durante el cultivo inicial de PGCLC humanos (paso 4), así como la fuente del medio acondicionado libre de células (paso 3).
- Cultive células STO en medio STO 1 en cuatro placas P15 hasta cerca de la confluencia. Cambie el medio STO de 1 a 23 ml / plato. Agregue 23 μL/plato de 10 mg/mL de MMC de concentración directamente al medio hasta una concentración final de 10 μg/mL.
- Agitar bien e incubar a 37 °C en una incubadora deCO2 durante 4 h.
PRECAUCIÓN: La MMC es fatal si se ingiere una gran cantidad y se sospecha que es un carcinógeno. El manejo y la eliminación de este compuesto deben seguir los protocolos reglamentarios locales. - Lave las células con 20 ml / plato de PBS de Dulbecco (sin Ca / Mg) 2 veces a temperatura ambiente.
- Disociar las células con 4 mL/plato de TrypLE Express en una incubadora deCO2 durante 2 min. Suspenda las células en una suspensión unicelular mediante un pipeteo suave.
- Transfiera dos placas de suspensión celular (8 ml) a un tubo de centrífuga de 50 ml que contenga 30 ml de medio STO helado-1. Repita para los otros dos platos para hacer dos tubos de suspensión celular de 38 ml.
- Cuente las células en presencia de azul de tripano al 0,2% para evaluar la viabilidad celular utilizando un hemocitómetro o un contador de células automatizado.
- Centrifugar celdas a 300 x g durante 5 min a 4 °C. Deseche el sobrenadante. Vuelva a suspender los gránulos celulares en un medio de almacenamiento de celdas congeladas heladas a 5 x 10⁶ celdas/ml.
- Prepare 1 mL de alícuotas de células STO tratadas con MMC en los viales criogénicos. Congele las células lentamente en una caja de espuma de poliestireno o en un dispositivo de congelación lenta y guárdelas a -80 °C durante un máximo de 12 meses.
3. Preparación del medio acondicionado por STO (S-CM)
NOTA: El medio acondicionado libre de células de las células MMC-STO (preparado en el paso 2) apoya la supervivencia y proliferación de PGCLC humanos mientras reprime su desviación a las células que pierden características similares a las de PGC.
- Día 1: Descongele las células STO tratadas con MMC de caldos congelados e inocule 5 x 10⁶ células en una placa P10 recubierta de gelatina con 10 ml / plato STO-medio 2. El tamaño típico de un lote consta de 4 a 8 platos P10. Incube las células a 37 °C en una incubadora deCO2 durante la noche.
- Para cubrir bien con gelatina, agregue 1 ml / pocillo de gelatina al 0.1% e incube a temperatura ambiente durante al menos 20 min. Aspire el exceso de solución de gelatina y deje los pocillos abiertos en el gabinete de bioseguridad hasta que se sequen. Almacene los utensilios de plástico recubiertos de gelatina a temperatura ambiente durante 2 semanas o a 4 °C durante 3 meses.
- Descongele las alícuotas del medio basal de PGCLC a 4 °C durante la noche.
NOTA: No se recomienda descongelar este medio más rápidamente a una temperatura más alta. No almacene el medio basal de PGCLC a 4 °C durante más de 1 semana. - Día 2: Retire y deseche el STO-medium 2. Lave las células con DPBS tibio (~ 10 ml / plato) seguido de un lavado con medio basal de PGCLC tibio (2 ml / plato). Agregue el medio basal de PGCLC tibio (12 ml / plato) e incube las células a 37 ° C en una incubadora de CO2 durante la noche.
- Día 3: Recoger todo el medio acondicionado en un tubo de centrífuga de 50 ml. Repita el medio basal de PGCLC (12 ml / placa) y la incubación para la recolección del medio acondicionado al día siguiente del mismo cultivo celular STO. Centrifugar el medio acondicionado recogido a 300 x g durante 5 min a 4 °C. Hacer alícuotas de 10 ml del sobrenadante (S-CM) en tubos de centrífuga de 15 ml. No tome los últimos 3 ml del medio que quedan en el fondo de los tubos de 50 ml para evitar la contaminación de las células MMC-STO en S-CM. Almacene las alícuotas a -80 °C hasta por 6 meses.
- Día 4: Coseche S-CM repitiendo el paso 3.4 todos los días hasta que el cultivo monocapa MMC-STO se deteriore después de 5-6 días de cultivo en medio basal PGCLC. Deje de cosechar cuando se desprendan el 25% o más de las células del plato.
4. Adaptación de los CPCP humanos a la cultura a largo plazo
- Cultive PGCLC humanos recién aislados en la capa alimentadora MMC-STO. Preparar CPCP humanos utilizando un método previamente publicado (Mitsunaga et al.24; Kobayashi et al.41). También se han publicado protocolos detallados de inducción de PGCLC en humanos42,43.
- Después de la amplificación inicial durante un máximo de 28 días, mantenga los PGCLC como LTC-PGCLC en el BME como un cultivo sin alimentador. A lo largo de estos dos pasos del cultivo de PGCLC, use el medio condicionado por STO (S-CM, preparado en el paso 3) con suplementos de SCF pero sin incluir FCS. El inhibidor de ROCK es necesario solo inmediatamente después de pasar.
NOTA: Como BME, se utilizó Matrigel de grado ESC en nuestro laboratorio. Otros productos comerciales no apoyaron la expansión a largo plazo de LTC-hPGCLC. - Día 1: Inocular las células de la capa alimentadora de STO tratadas con MMC en placas de 6 pocillos recubiertas de gelatina a 8 x 10⁴ células/cm2 con 3 ml/pocillo STO-medio 2. Incubar la capa de alimentación a 37 °C en una incubadora deCO2 durante la noche.
- Día 2: Deseche el medio STO del cultivo y lave las células con MEM tibio de Dulbecco (sin suero), 3 ml / pocillo. Agregue 3 ml/pocillo de S-CM recién suplementado con 0,1 mM de 2-mercaptoetanol, 50 μg/ml de ácido ascórbico, 100 ng/ml de SCF recombinante humano y 10 μM de Y-27632. Inocular de 500 a 2,000 PGCLC humanos recién aislados en la capa de alimentación STO en cada pozo. Incube las células a 37 °C en una incubadora deCO2 durante la noche.
NOTA: La presencia de suero, incluso en bajas concentraciones, tiende a causar la aparición de tipos no deseados de células de PGCLC humanos41. El crecimiento de los PGCLC humanos depende estrictamente de SCF41. Y-27632 apoya la supervivencia de PGCLC humanos unicelulares en el momento de la inoculación, pero no es necesario durante el cultivo de mantenimiento. Agregue 2-mercaptoetanol, ácido ascórbico, SCF e Y-27632 recién al medio. En un experimento típico, los PGCLC se inoculan en todos los pocillos de una placa de 6 pocillos. Si se dispone de un mayor número de PGCLC como material de partida, es aceptable una densidad más alta de hasta 10,000 PGCLC por pocillo. - Día 3: Reemplace la mitad del medio (1,5 ml / pocillo) con S-CM tibio recién suplementado con 0,1 mM de 2-mercaptoetanol, 50 μg / ml de ácido ascórbico, 100 ng / ml de SCF recombinante humano pero sin Y-27632. No moleste a los PGCLC, que pueden desprenderse de la capa de alimentación por un fuerte flujo de medio.
- Días 5 - 28: Repita el paso 4.5 cada dos días. Como los PGCLC generalmente proliferan a los 4,5 días de duplicación de la población en el tiempo41, pequeños grupos de PGCLC emergen en el día 6-7 o más tarde (Figura 1A-D). Los grupos se harán más evidentes para el día 14-15 (Figura 1E, F). Si aparecen tipos no deseados de grupos celulares con características morfológicas anómalas que se desvían de los PGCLC correctos, deseche los pocillos que contengan dichos grupos o intente eliminar las células anómalas utilizando la técnica de adhesión diferencial descrita más adelante en el paso 4.9.
- Cuando los PGCLC se expanden para formar grupos que cubren más del 20% del área de cultivo (~Día 28), disociar las células utilizando la solución de desprendimiento celular (CDS). Retire S-CM de los pocillos del cultivo de PGCLC y agregue CDS precalentado a 1 ml / pocillo sin lavar las células. Incube las células a 37 °C en una incubadora de CO2 durante 5 min hasta que los PGCLC se desprendan de los pocillos.
NOTA: Se recomienda la accutasa como CDS para la disociación leve. No precaliente el CDS a 37 °C durante más de 5 min. El desprendimiento de PGCLC se puede facilitar mediante un pipeteo suave, pero no es necesario disociar completamente los PGCLC en una suspensión de una sola célula. Pequeños agregados de PGCLC pueden aumentar la viabilidad. Si surgen tipos de células no deseadas y crecen rápidamente, ajuste el tiempo de incubación en CDS durante el desprendimiento celular para la recolección selectiva de PGCLC, que tienden a desprenderse antes que las células alimentadoras y la mayoría de los tipos de células no deseadas. Si la aparición persistente de tipos de células no deseadas perturba la expansión de los PGCLC, intente eliminar las células no deseadas utilizando su adhesión más rápida a los pocillos recubiertos de gelatina como se describe en el paso 4.9. Dado que el enriquecimiento de los CPCP por los FACS tiende a perder una parte significativa de los CPCP vivos, reduzca el tamaño del área de la capa de alimentación en consecuencia. - Para detener el desprendimiento celular por CDS, diluir la suspensión celular con 10 veces el volumen de PGCLC Basal Medium tibio y centrifugar a 300 x g durante 5 min a 4 °C. Tenga en cuenta que la actividad enzimática de algunos CDS, como la accutasa, no es suprimida por los inhibidores del suero o la tripsina. Deseche el sobrenadante y vuelva a suspender las células en 3 ml de S-CM caliente recién suplementado con 0,1 mM de 2-mercaptoetanol, 50 μg/ml de ácido ascórbico, 100 ng/ml de SCF recombinante humano y 10 μM de Y-27632.
- Inocular la suspensión celular en pocillos de placas de 6 pocillos recubiertos con gelatina al 0,1% e incubar a 37 °C en una incubadora deCO2 durante 30 min para eliminar las células MMC-STO (y los tipos de células no deseadas), que se adhieren rápidamente a los pocillos recubiertos de gelatina.
NOTA: Se recomienda inspeccionar las células mediante microscopía de contraste de fase a los 20 min de incubación, así como a los 30 min para evaluar la adhesión de las células alimentadoras. Puede ser necesario alargar el tiempo de incubación hasta 45 min. El uso de FACS o MACS para eliminar las células alimentadoras generalmente no es necesario ya que las células STO tratadas con MMC no pueden proliferar y deteriorarse en la S-CM. - Transfiera PGCLC agotados de tipos anómalos de células a pocillos recubiertos de matriz de membrana basal para iniciar el cultivo a largo plazo sin alimentadores de PGCLC humanos. Para un solo pocillo en una placa de 6 pocillos, se recomienda la inoculación de 1 x 10⁵ PGCLC viables.
NOTA: Por lo general, es necesario agrupar hPGCLC de hasta 6 pocillos para recolectar 1 x 10⁵ PGCLC viables (tinción de azul de tripano negativa) y sembrarlos en un solo pocillo para aumentar la densidad celular del inóculo. Si el número de PGCLC cosechados no alcanza 1 x 10⁵, use un tamaño de pocillo más pequeño, como una placa de 12 o 24 pocillos para obtener una densidad de PGCLC relativamente alta. En el momento del primer subcultivo, la mayoría de las células de la capa alimentadora de MMC-STO están deterioradas y no sobreviven al procedimiento de paso. Un pequeño número de células MMC-STO viables se eliminan eficazmente mediante la técnica de adhesión diferencial. Incluso si algunas células MMC-STO están contaminadas en pocillos recubiertos de BME, desaparecerán del cultivo durante el paso múltiple. - Los PGCLC humanos crecen como una población celular altamente dispersa sin signos significativos de contacto físico directo entre células individuales (Figura 1). Si emergen grupos de células que muestran interacciones intercelulares estrechas (Figura 2A), pase el cultivo utilizando la técnica descrita en el paso 4.7. El paso de una vez a la semana (1:4) suele ser suficiente.
NOTA: El enriquecimiento FACS de PGCLC humanos suele ser innecesario. Sin embargo, si las células anómalas no deseadas no se pueden eliminar de manera efectiva después de la técnica de adhesión diferencial repetida descrita en el paso 4.11, unos pocos ciclos de enriquecimiento con FACS de PGCLC humanos como células CD38 positivas42,43 facilitan el establecimiento de una población pura de LTC-hPGCLC. En la Figura 3 se muestran ejemplos de células anómalas derivadas de PGCLC que crecen en placas recubiertas de BME en ausencia de una capa alimentadora. Es importante mantener una densidad relativamente alta de cultivo celular de PGCLC para reducir el riesgo de inducir tipos de células no deseadas.- Preparar platos recubiertos de BME como se describió anteriormente42,43. Descongele el BME en hielo en un refrigerador o en una cámara frigorífica durante la noche. No descongele BME congelado a temperatura ambiente ni use un baño de agua tibia.
- Alícuota BME (~200 μL; el volumen de una alícuota es determinado por el fabricante para cada lote e indicado en la etiqueta del vial) en tubos de centrífuga estériles y preenfriados de baja unión o tubos de criopreservación celular en hielo. Es importante mantener el BME helado durante la dispensación para evitar la solidificación. Almacenar las alícuotas a -80 °C.
- Diluir una alícuota de BME con 25 ml de DMEM/F12 helado y extender a tres placas de 10 cm (~8 ml/placa) o cuatro placas de 6 pocillos (total 24 pocillos, 1 ml por pocillo). Incube los platos a temperatura ambiente durante al menos 1 h. Después del recubrimiento, los platos se pueden sellar con una película transparente y almacenar a temperatura ambiente hasta por 1 semana.
- Aspire el medio de los platos inmediatamente antes de usarlo. No es necesario lavar los platos recubiertos.
- Mantener una densidad relativamente alta de cultivo de LTC-PGCLC en el BME para suprimir la aparición de tipos de células no deseadas. Se recomienda el paso de PGCLC cuando las células alcanzan más del 25% de confluencia. La mitad del medio (1,5 ml/pocillo) debe cambiarse por S-CM caliente recién suplementado con 0,1 mM de 2-mercaptoetanol, 50 μg/ml de ácido ascórbico y 100 ng/ml de SCF recombinante humano.
NOTA: La inoculación de PGCLC a una densidad más baja aumenta el riesgo de producir células no deseadas. Dado que el tiempo de duplicación de la población de PGCLC humanos es de aproximadamente 4,5 días41, el paso semanal de rutina suele ser adecuado para mantener el cultivo a largo plazo. La inclusión del inhibidor de ROCK (Y-27632) es necesaria solo después de pasar el paso para mejorar la viabilidad del PGCLC. - No moleste a los PGCLC, que pueden desprenderse de la capa de alimentación por un fuerte flujo de medio.
NOTA: Debido a que los PGCLC humanos expresan telomerasa, proliferan sin signos aparentes de senescencia, como el acortamiento de los telómeros o la expresión de la β-galactosidasa asociada a la senescencia41. - Cuando los PGCLC humanos obtuvieron una proliferación estable sin generar cantidades significativas de tipos de células no deseadas, examine sus características similares a las de PGC mediante el perfil de expresión de genes marcadores.
NOTA: Se recomiendan enfoques analíticos adecuados para la caracterización de cada célula individual (como inmunofluorescencia, FACS o secuenciación de ARN de una sola célula) para evaluar la posible contaminación de tipos de células no deseadas. Si los resultados de dichos análisis respaldan la naturaleza similar a la PGC de los PGCLC, se confirma el establecimiento de un cultivo LTC-hPGCLC. - Almacene los LTC-PGCLC congelados en un medio de congelación celular (1 x 10⁶ células/ml por vial criogénico). A partir de un total de 10.000 PGCLC humanos como material inicial, el rendimiento total de 1 x 10⁶ PGCLC se puede lograr en 6 semanas. Coloque una caja de papel o plástico que contenga los viales criogénicos en una caja de espuma de poliestireno herméticamente sellable. Coloque la caja sellada en un congelador a -80 ° C durante la noche para una congelación lenta. A continuación, coloque los viales en un congelador a -80 °C o en un depósito de nitrógeno líquido.
- Para iniciar el cultivo a partir de un vial de células congeladas, siga los pasos que se describen a continuación.
- Descongele las células rápidamente en un baño de agua a 37 °C con agitación manual mientras mantiene el fondo del vial en agua. Cuando el >80% del contenido esté descongelado en el vial, seque el vial con pañuelos desechables o papel de laboratorio equivalente y limpie alrededor de la tapa con un hisopo con alcohol.
- Transfiera las células a un tubo de centrífuga de 15 ml que contenga medio basal PGCLC precalentado (37 °C). Si quedan pequeñas células congeladas en el vial, recupérelas con el medio basal PGCLC mediante pipeteo.
- Centrifugar las células inmediatamente a 300 x g durante 5 min a temperatura ambiente y eliminar el sobrenadante.
- Vuelva a suspender el sedimento celular con 9 ml de S-CM precalentado recién suplementado con 0,1 mM de 2-mercaptoetanol, 50 μg/ml de ácido ascórbico, 100 ng/ml de SCF recombinante humano y 10 μM de Y-27632. Suspenda suavemente las células con puntas de pipeta de 1.000 ml.
- Inocular 3 ml/pocillo en 3 pocillos de la placa recubierta de BME para iniciar el cultivo. Agite suavemente las placas vertical y horizontalmente para una distribución uniforme de las células. Evite el movimiento circular de agitación, ya que tal movimiento moverá las células hacia el centro de los pocillos. La viabilidad de las células inmediatamente después de la recuperación de un stock congelado suele ser superior al 80%.
Resultados
Resultados representativos: los PGCLC generalmente forman grupos visibles en la capa alimentadora de MMC-STO dentro de las 2 semanas posteriores a la inoculación (Figura 1A-D). Se necesitan aproximadamente 3-4 semanas hasta que los PGCLC estén listos para el cultivo sin alimentadores. Como los PGCLC muestran una fuerte actividad citocinética, su interacción intercelular es débil cuando forman grupos en la capa alimentadora (Figura 1E, F). A menudo se observan PGCLC saliendo de los grupos (Figura 1F, puntas de flecha rojas). Sin una capa alimentadora, los LTC-PGCLC crecen como células dispersas con pocos signos de adhesión intercelular, incluso cuando la densidad celular es alta (Figura 3). Cada LTC-PGCLC mantiene la morfología original del PGCLC humano recién aislado, mostrando signos de citocinesis activa. Cuando emergen células desviadas de las características morfológicas similares a las de PGC (Figura 2), el enriquecimiento de los PGCLC mediante la técnica de adhesión diferencial repetida a menudo mejora la calidad del cultivo. Si las células anómalas persisten, el enriquecimiento ocasional con FACS de PGCLC como células positivas para CD38 puede ayudar.
Una publicación anterior ha identificado PGCLC humanos como células positivas para PRDM1, positivas para TFAP2C, pero negativas para SOX241. También expresan POU5F1, pero sus iPSC precursoras también expresan este marcador de pluripotencia41. Se recomienda encarecidamente confirmar el rendimiento a nivel de una sola célula y los perfiles de expresión de marcadores de los PGCLC humanos en expansión lo antes posible utilizando marcadores genéticamente inducibles, inmunofluorescencia, FAC o secuenciación de ARN unicelular. Sin embargo, sin tales análisis confirmatorios, el rendimiento y la calidad de los PGCLC humanos en presencia o ausencia de las células alimentadoras se pueden estimar convenientemente utilizando la microscopía de contraste de fase estándar como se muestra en la Figura 1, Figura 2 y Figura 3.
Durante el cultivo a largo plazo, los LTC-PGCLC mantienen una población celular homogénea que contiene una subpoblación que prolifera activamente, como demostraron los datos anteriores de secuenciación de ARN unicelular41. El perfil transcriptómico de los PGCLC originales se mantiene en gran medida, excepto que la expresión de los marcadores de PGCLC en etapa temprana GATA2 y GATA3 se pierde rápidamente41. El nivel global de metilación del ADN en las iPSC humanas es de aproximadamente el 73%, y disminuye a aproximadamente el 64% en las PGCLC recién producidas41. El nivel global de metilación del ADN disminuye aún más en los LTC-PGCLC a aproximadamente el 54% después de 12 semanas de expansión in vitro 41. La mayoría de las características transcriptómicas y epigenéticas de los LTC-PGCLC humanos se invierten completamente a las de las iPSC originales cuando se convierten en células germinales embrionarias pluripotentes, excepto que las marcas epigenéticas específicas de alelos en varias regiones de control de impronta se borran en los PGCLC y nunca se revierten41.
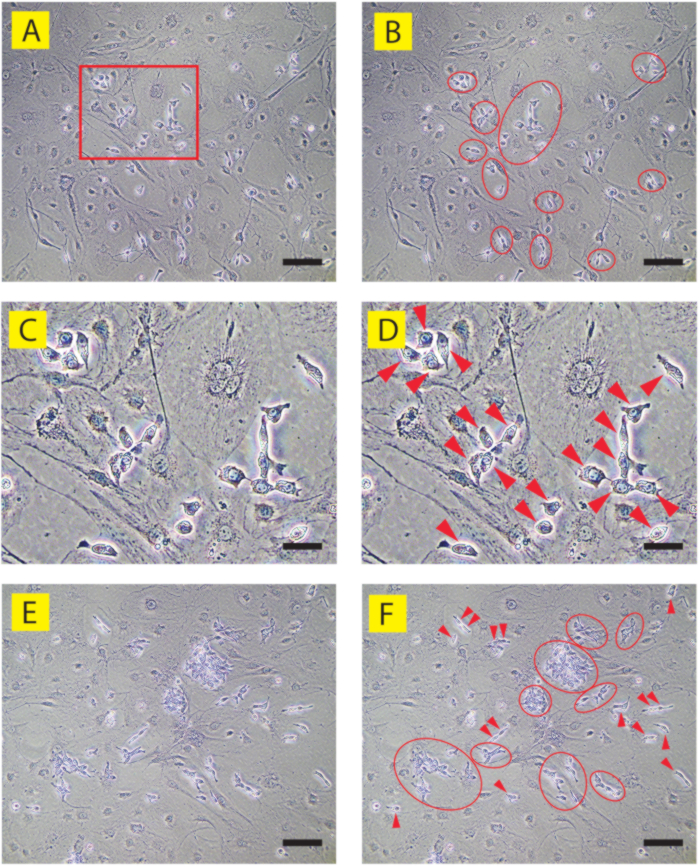
Figura 1: Imágenes de contraste de fase de PGCLC humanos correctos en la capa de alimentación STO (clon humano de iPSC 9A13). (A, C, E) están anotados en (B, D, F), respectivamente. (A-D) Día 6 cultura. Una parte de (A) que se muestra en un rectángulo rojo se agranda en (C, D). La mayoría de los PGCLC se observan como células dispersas que a menudo forman grupos sueltos (óvalos rojos). Los PGCLC individuales (puntas de flecha rojas) no forman contacto cercano entre sí y se identifican fácilmente bajo microscopía de contraste de fase como células que sobresalen de las células alimentadoras de STO en deterioro, planas y ampliamente extendidas. (E, F) Día 15 cultura. Múltiples grupos de PGCLC se identifican fácilmente (óvalos rojos), mientras que el contacto intercelular aún es débil. Algunos PGCLC se encuentran fuera de los grupos, a menudo como duplets (puntas de flecha rojas), lo que refleja su proliferación activa mientras migran aleatoriamente sobre y entre la capa alimentadora altamente deteriorada. Barras de escala = 50 μm (A, B, E, F) o 15 μm (C, D). Haga clic aquí para ver una versión más grande de esta figura.
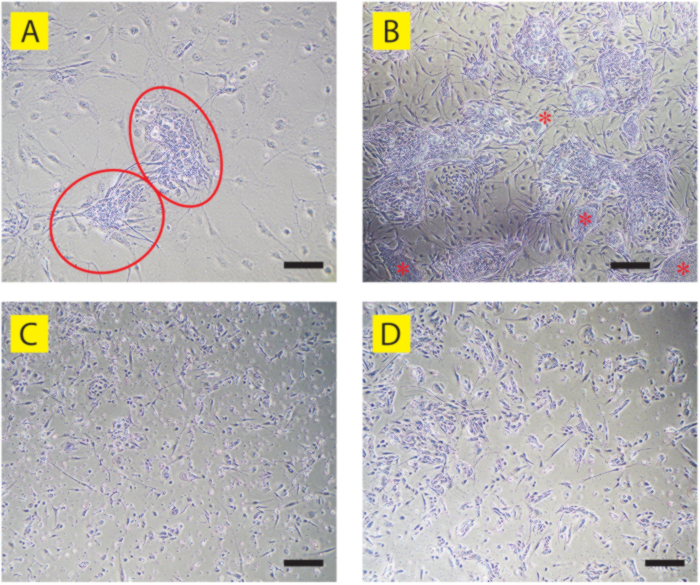
Figura 2: Imágenes de contraste de fase de PGCLC humanos que se desvían de las características similares a las de PGC. (A) Dos grupos anómalos de PGCLC (óvalos rojos) aparecieron en el cultivo del día 9 de PGCLC 9A13 en la capa alimentadora de STO. A diferencia de los grupos de PGCLC correctos (ver Figura 1A-D), las células muestran un fuerte contacto intercelular que oscurece los límites de cada célula individual. (B) Cultura del día 18 de la cultura humana de PGCLC que se muestra en (A). Se observan múltiples grupos anómalos de PGCLC, algunos de los cuales muestran colonias densas que se asemejan a las iPSC humanas precursoras (asteriscos rojos). Tenga en cuenta que la mayoría de las células alargadas similares a fibroblastos que se encuentran entre los grupos también son células anómalas derivadas de PGCLC, mientras que la mayoría de las células alimentadoras de STO están deterioradas y desprendidas. (C) LTC-hPGCLC (clon humano de iPSC B6) que muestran muerte celular masiva y morfologías anómalas en placas recubiertas de BME y sin alimentador. (D) LTC-hPGCLC que se desvían en gran medida a células con morfologías anómalas en placas recubiertas de BME y sin alimentadores (clon humano de iPSC T548). Compare estos LTC-hPGCLC anómalos con los LTC-hPGCLC correctos que se muestran en la Figura 3B. Barras de escala = 50 μm (A, B) o 100 μm (C, D). Haga clic aquí para ver una versión más grande de esta figura.
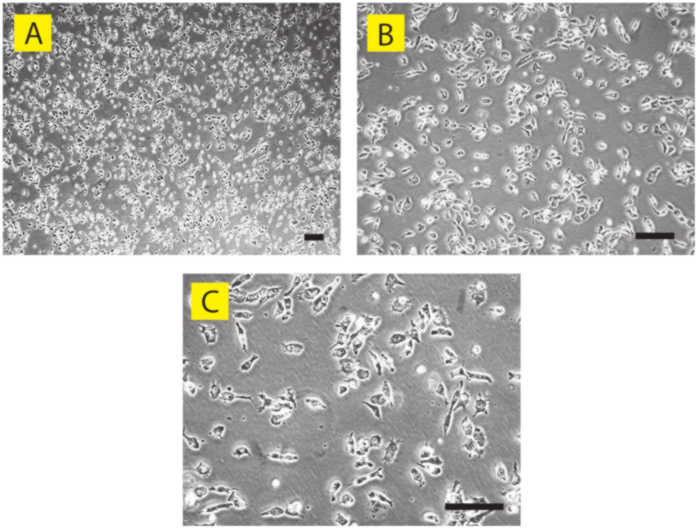
Figura 3: Imágenes de contraste de fase de PGCLC humanos correctos como cultivo sin alimentador (clon humano de iPSC A4). El cultivo sin alimentador del día 56 de LTC-PGCLC en placas recubiertas de BME se muestra en (A) aumentos bajos, (B) medios y (C) altos. Aunque la densidad celular es relativamente alta, cada PGCLC individual no forma contactos intercelulares cercanos, excepto las células que han completado recientemente la división celular. Debido a la citocinesis activa, algunos PGCLC muestran una morfología alargada mientras que otros tienen forma redonda. Barras de escala = 50 μm. Haga clic aquí para ver una versión más grande de esta figura.
| PGCLC Medio basal | |
| Ingredientes | Volumen |
| MEM de Glasgow | 500 ml |
| Reemplazo de suero Knockout (KSR) | 75 ml |
| MEM NEAA (100X) | 6 ml |
| Piruvato de sodio (100X) | 6 ml |
| Penicilina-estreptomicina (100X) | 6 ml |
Tabla 1: Medio basal de PGCLC. Composición del medio basal PGCLC (593 mL).
| STO medio 1 | |
| Ingredientes | Volumene |
| MEM de Dulbecco | 445 ml |
| Suero fetal para terneros | 50 ml |
| Penicilina-estreptomicina (100X) | 5 ml |
Tabla 2: Medio SAO 1. Composición del medio STO 1 (500 mL).
| STO medio 2 | |
| Ingredientes | Volumen |
| MEM de Dulbecco | 47 ml |
| Suero fetal para terneros | 2,5 ml |
| Penicilina-estreptomicina (100X) | 0,5 ml |
| FGF2 (200 μg/ml) | 2,5 μl |
Tabla 3: Medio SAO 2. Composición del medio STO 2, que se complementa con FGF2 para aumentar el crecimiento de las células STO (50 ml).
| Medio de almacenamiento MMC-STO | |
| Ingredientes | Volumen |
| MEM de Dulbecco | 42,5 ml |
| Suero fetal para terneros | 5 ml |
| Dimetilsulfóxido | 2,5 ml |
Tabla 4: Medio de almacenamiento MMC-STO. Composición del medio de almacenamiento MMC-STO, que se utiliza para preparar existencias congeladas de células alimentadoras de STO tratadas con MMC (50 ml).
Discusión
El método de mantenimiento de PGCLC humano descrito en este artículo es relativamente simple sin requerir dispositivos específicos o materiales no estándar. Los métodos publicados anteriormente para el mantenimiento de PGCLC en humanos requieren una clasificación frecuente de FACS debido a la desviación significativa de las células del estado similar al PGCLC38. Estos métodos también requieren una línea celular de capa alimentadora no estándar (m220-5), que no está fácilmente disponible a través de repositorios de acceso público e internacional39,40. La inclusión de FCS en sus medios introduce incertidumbre debido a la dependencia del rendimiento de un lote específico del suero. Por el contrario, el método presentado actualmente obtiene fácilmente muchos millones de PGCLC humanos, que pueden almacenarse congelados manteniendo una alta viabilidad (> 90%), sin necesidad de suero u otros reactivos de origen animal. El protocolo requiere la línea celular estándar de la capa alimentadora STO, que está comúnmente disponible en muchos repositorios públicos. El método proporciona un nivel de conveniencia sin precedentes para manejar PGCLC humanos como si fueran líneas celulares convencionales. El suministro ilimitado de PGCLC humanos logrado con este método ampliará el alcance de las aplicaciones de PGCLC humanos en áreas tales como producciones experimentales de células germinales y / o gametos humanos, evaluaciones de trastornos de células germinales humanas como infertilidad (incluidos intentos de gametogénesis in vitro) o tumores de células germinales, y evaluaciones toxicológicas de posibles tóxicos de células germinales.
El método excluye FCS en el S-CM para minimizar la aparición de tipos no deseados de células de PGCLC humanos41. Varios clones de iPSC tendían a producir tipos de células no deseados durante la etapa dependiente del alimentador o posteriormente, y algunos de ellos tuvieron que pasar por dos o tres rondas de purificación FACS de PGCLC. Sin embargo, una vez que el cultivo LTC-PGCLC se establece con más del 50% de confluencia, la necesidad de purificación de FACS generalmente disminuye. El crecimiento de los CPCP humanos in vitro depende estrictamente de la presencia de SCF41. Si la tasa de crecimiento de los LTC-PGCLC disminuye, se recomienda probar diferentes lotes o reactivos SCF de los fabricantes. Debido a que los PGCLC humanos expresan telomerasa, no experimentan senescencia durante la expansión in vitro a largo plazo 41. Se ha utilizado con éxito para establecer LTC-PGCLC derivados de iPSC humanas masculinas y femeninas con diversos orígenes étnicos41. Ejemplos de aplicación exitosa del método presentado actualmente incluyen los clones humanos masculinos A4 y A5 (recién nacido caucásico), PGP1 (adulto caucásico) y 9A13 (adulto japonés), y los clones femeninos de iPSC ATCC-BXS0116 (caucásico) y ATCC-BXS0115 / ACS-1029 (hispano). La aplicabilidad general de este método y los marcadores de predicción deben establecerse en estudios futuros.
La necesidad de la purificación ocasional de FACS de PGCLC humanos depende del clon precursor de iPSC. Mientras que algunos clones de iPSC nunca requirieron enriquecimiento de FACS después del aislamiento inicial de PGCLC como células CD38 positivas, algunos PGCLC tuvieron que enriquecerse como células CD38 positivas hasta tres veces por FACS durante la fase dependiente del alimentador. Los PGCLC enriquecidos con FACS se inocularon en alimentadores MMC-STO recién preparados. Por lo general, no se requiere enriquecimiento de FACS en cada paso una vez que los PGCLC comienzan la amplificación estable en el BME sin el alimentador.
Actualmente no se dispone de datos detallados sobre la proporción de células que mantienen las características similares a las de PGC frente a las células que se desvían a tipos de células no deseadas para el clon individual de iPSC en cada paso. En general, el cultivo de LTC-hPGCLC se estabiliza después de 2-4 semanas de cultivo con pasaje repetido. Cuando los PGCLC humanos tienden a generar tipos de células no deseadas, el método de adhesión diferencial puede enriquecer eficazmente los PGCLC, ya que la mayoría de las células no deseadas tienden a adherirse a la placa de cultivo con más fuerza que los PGCLC. Si los intentos repetidos de adhesión diferencial no ayudan al enriquecimiento de PGCLC, el enriquecimiento FACS de PGCLC humanos como células CD38 positivas a menudo elimina las células no deseadas y, a partir de entonces, el LTC-hPGCLC puro se puede mantener utilizando solo el método de adhesión diferencial. Establecer un cultivo a largo plazo de PGCLC humanos generados utilizando el método 2-D descrito por Overeem et al. a veces ha sido un desafío. Sin embargo, los mismos PGCLC humanos que ganaron resistencia a la apoptosis a través de la eliminación CRISPR de genes proapoptóticos se expandieron fácilmente a LTC-hPGCLC. Los detalles de la compatibilidad de este método con cada iPSC y PGCLC humanos individuales deben examinarse en estudios futuros.
Mientras que las células de la capa alimentadora de STO tratadas con MMC inicialmente apoyan la supervivencia y la proliferación de PGCLC humanos recién aislados, los PGCLC de rápida proliferación se expanden in vitro sin una capa alimentadora siempre que estén respaldados por el medio condicionado por STO y el recubrimiento BME de las placas. El beneficio único del método presentado actualmente sobre otros enfoques es la capacidad de establecer LTC-hPGCLC como un cultivo libre de alimentadores. Las células de la capa alimentadora de MMC-STO muestran signos iniciales de deterioro en el medio S-CM después de 5-6 días de cultivo. Para el día 6-7 (Figura 1A-D), la capa alimentadora muestra un daño modesto, que se hace más evidente para el día 14-15 (Figura 1E, F). En ausencia de las células alimentadoras, la tasa de supervivencia de los PGCLC humanos recién aislados suele ser baja, aparentemente debido a su escasa eficiencia para adherirse al fondo de las placas de cultivo celular. Se especula que las proteínas de la matriz extracelular depositadas por las células MMC-STO facilitan la adhesión y la supervivencia de los PGCLC incluso después de que las células MMC-STO se deterioren. Una vez que el número de PGCLC humanos se vuelve lo suficientemente grande como para formar grupos visibles en el día 14-15, la matriz extracelular depositada por los propios PGCLC puede ser suficiente para apoyar su supervivencia y proliferación. Apoyando esta suposición, la inoculación de PGCLC humanos recién aislados a una alta densidad (por ejemplo, 100,000 células en un pocillo de una placa de 12 pocillos) a pocillos recubiertos de BME sin alimentador a menudo inicia una expansión exitosa del cultivo LTC-hPGCLC. Por otro lado, el uso del medio condicionado MMC-STO es absolutamente necesario en todo el cultivo humano de PGCLC, lo que enfatiza la importancia del acondicionamiento continuo por parte de las células MMC-STO.
Es importante mantener una densidad relativamente alta de cultivo de LTC-PGCLC en BME para suprimir la aparición de tipos de células no deseadas. Se recomienda pasar los PGCLC con más del 25% de confluencia. La inoculación de PGCLC a una densidad más baja aumenta el riesgo de producir células no deseadas. Dado que el tiempo de duplicación de la población de PGCLC humanos es de aproximadamente 4,5 días41, el paso semanal de rutina suele ser adecuado para mantener el cultivo a largo plazo. Si una gran parte de los PGCLC se desvían de sus características similares a las de PGC, y si la técnica de adhesión diferencial o FACS es insuficiente para eliminar las células no deseadas, considere la inoculación de la capa alimentadora de MMC-STO a pocillos recubiertos de BME en lugar de recubrimiento de gelatina y/o el cultivo alargado de células MMC-STO hasta 3 o 4 días antes de la inoculación de PGCLC.
Las características morfológicas y de expresión de marcadores entre los tipos de células no deseadas varían significativamente, aunque se pueden identificar fácilmente bajo la microscopía de contraste de fase estándar (Figura 2). Las células que muestran características de crecimiento agregadas o apariencia aplanada se desvían de las características similares a PGC. La expresión de los marcadores PGC estándar como PRDM1 o TFAP2C suele disminuir en estas células no deseadas, aunque actualmente no se dispone de criterios claros para distinguir la población de células no deseadas de la población de células convincentemente similares a PGC, lo que puede confirmarse mediante tinción de inmunofluorescencia, FACS o secuenciación de ARN unicelular. A día de hoy, se desconocen las identidades o la relevancia de los tipos de células no PGC que surgen durante la expansión de los LTC-hPGCLC.
Aunque el método presentado en este artículo utiliza las celdas de la capa alimentadora STO, las celdas SNL 76/7 también se pueden usar para la producción del medio acondicionado y la capa alimentadora. Algunos cultivos de PGCLC pudieron adaptarse al cultivo a largo plazo sin pasar por el cultivo dependiente del alimentador, especialmente cuando se inició el cultivo con un gran tamaño de inóculo (>100.000 células). Por otro lado, establecer un cultivo LTC-PGCLC puede ser un desafío cuando el tamaño inicial es inferior a 10,000 células. Aunque los componentes clave del medio condicionado por STO se han descrito previamente, aún no se han identificado componentes que apoyen la expansión de PGCLC a largo plazo44.
Divulgaciones
Los autores no tienen conflictos de intereses que divulgar.
Agradecimientos
Este trabajo fue apoyado por subvenciones de los NIH R01ES035401, R21ES034468, R21HD110839, R21DA059789 y R21CA290650 a TS. TS también recibió una subvención 63299 de la Fundación John Templeton (PI, John McCarrey, Universidad de Texas, San Antonio). Una parte del estudio presentado también fue apoyada por el Fondo James Patrick Stowe (IP, Philip Saylor, Hospital General de Massachusetts).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| placas de cultivo celular de 6 pocillos | Corning | 3506 | |
| Accutasa | Tecnologías celulares innovadoras | AT104 | Almacenar a -20 &grados; C durante 6 meses. |
| Placas de plástico de 10 cm tratadas con cultivo celular (placas P10) | Corning | 353003 | |
| Placas de plástico de 15 cm tratadas con cultivo celular (placas P15) | Corning | 353025 | |
| Vial criogénico | Millipore-Sigma | CLS431417 | |
| CryoStor CS10 | Tecnologías STEMCELL | 7930 | Almacenar a 4 °C. |
| Dimetilsulfóxido | Fisher Scientific | BP231-1 | Almacenar a temperatura ambiente. Grado de cultivo celular. |
| Dulbecco; s Solución salina tamponada con fosfato (libre de Ca/Mg) (DPBS) | Gibco | 14190144 | Almacenar a temperatura ambiente. Grado de cultivo celular. |
| Medio Esencial Mínimo de Dulbecco (MEM de Dulbecco) | Corning | 10-013-CM | Almacenar a 4 °C. nUtilizar medio que contenga 4,5 g/L de glucosa, 1X L-glutamina y 1X piruvato de sodio. |
| Suero fetal para terneros | Suero CPS | FBS-500 | Almacenar a -20 &grados; C durante 12 meses. |
| Gelatina | Tecnologías STEMCELL | 7903 | 0,1% en agua. Estéril. |
| Medio esencial Miminum de Glasgow (MEM de Glasgow) | Gibco | 11710-035 | Almacenar a 4 °C. |
| Factor de crecimiento de fibroblastos recombinante humano 2 (FGF2) | PeproTech | 100-18B | Almacenar a -80 ° C durante 3 meses. |
| Factor de células madre recombinantes humanas (SCF) | PeproTech | 300-07 | Reconstituir en agua siguiendo las instrucciones del fabricante. Almacenar a -80 ° C durante 3 meses. |
| Reemplazo de suero Knockoutq | Gibco | 10828-028 | Almacenar a -20 &grados; C durante 6 meses. |
| Matrigel (células madre embrionarias humanas calificadas) | Corning | 354277 | |
| Medio esencial mínimo Aminoácidos no esenciales (MEM NEAA) | Gibco | 11140-050 | Almacenar a 4 °C. |
| Mitomicina-C (10 mM en agua) | Millipore-Sigma | M5353 | Disuelva la mitomicina-C (MMC) en agua y filtre estéril (tamaño de poro de 0,22 mM). Almacenar 100 mL de alícuotas a -20 ° C durante 6 meses. Para descongelar MMC congelado, descongele los cristales púrpuras en un baño de agua caliente (>60 ° C) a una solución de color púrpura oscuro. |
| Penicilina-estreptomicina (100X) | Gibco | 15140-122 | Almacenar a 4 °C. |
| Tubos de plástico para centrífuga (15 ml) | Corning | 352196 | |
| Tubos de centrífuga de plástico (50 ml) | Corning | 352070 | |
| Piruvato de sodio (100X) | Gibco | 11360-070 | Almacenar a 4 °C. |
| Fibroblastos embrionarios de ratón STO | ATCC | CRL-1503 | |
| Azul de tripano (0,4%) | Fisher Scientific | T10282 | Almacenar a temperatura ambiente. |
| TrypLE Express | Gibco | 12604-013 | Almacenar a temperatura ambiente. |
| Y-27632 (10 mM en agua) | Tocris | 1254 | Disuelva Y-27362, que es un inhibidor de ROCK, en agua a 10 mM y filtro estéril (tamaño de poro de 0,22 mM). Almacenar 100 mL de alícuotas a -20 ° C durante 6 meses. |
Referencias
- Lee, S. M., Smela, M. P., Surani, M. A. The role of KLF4 in human primordial germ cell development. Open Biol. 15 (1), 240214(2025).
- Castillo-Venzor, A., et al. Origin and segregation of the human germline. Life Sci Alliance. 6 (8), e202201706(2023).
- Saitou, M. Mammalian germ cell development: From mechanism to in vitro reconstitution. Stem Cell Rep. 16 (4), 669-680 (2021).
- Boroviak, T., et al. Single cell transcriptome analysis of human, marmoset and mouse embryos reveals common and divergent features of preimplantation development. Development. 145 (21), dec167833(2018).
- Kobayashi, T., et al. Principles of early human development and germ cell program from conserved model systems. Nature. 546 (7658), 416-420 (2017).
- Tang, W. W., Kobayashi, T., Irie, N., Dietmann, S., Surani, M. A. Specification and epigenetic programming of the human germ line. Nat Rev Genet. 17 (10), 585-600 (2016).
- Irie, N., et al. Sox17 is a critical specifier of human primordial germ cell fate. Cell. 160 (1-2), 253-268 (2015).
- Kojima, Y., et al. Evolutionarily distinctive transcriptional and signaling programs drive human germ cell lineage specification from pluripotent stem cells. Cell Stem Cell. 21 (4), 517-532.e5 (2017).
- Alves-Lopes, J. P., et al. Specification of human germ cell fate with enhanced progression capability supported by hindgut organoids. Cell Rep. 42 (1), 111907(2023).
- Chitnis, M. S., Gao, X., Marlena, J., Holle, A. W. The mechanical journey of primordial germ cells. Am J Physiol Cell Physiol. 327 (6), C1532-C1545 (2024).
- Barton, L. J., Roa-De La Cruz, L., Lehmann, R., Lin, B. The journey of a generation: Advances and promises in the study of primordial germ cell migration. Development. 151 (7), dev201102(2024).
- Grimaldi, C., Raz, E. Germ cell migration-evolutionary issues and current understanding. Semin Cell Dev Biol. 100, 152-159 (2020).
- Hen, G., Sela-Donenfeld, D. "A narrow bridge home": The dorsal mesentery in primordial germ cell migration. Semin Cell Dev Biol. 92, 97-104 (2019).
- Cantu, A. V., Laird, D. J. A pilgrim's progress: Seeking meaning in primordial germ cell migration. Stem Cell Res. 24, 181-187 (2017).
- Molyneaux, K. A., et al. The chemokine SDF1/CXCL12 and its receptor CXCR4 regulate mouse germ cell migration and survival. Development. 130 (18), 4279-4286 (2003).
- Sasaki, K., et al. The germ cell fate of cynomolgus monkeys is specified in the nascent amnion. Dev Cell. 39 (2), 169-185 (2016).
- Li, L., et al. Single-cell RNA-seq analysis maps development of human germline cells and gonadal niche interactions. Cell Stem Cell. 20 (6), 891-892 (2017).
- Gomes Fernandes, M., Bialecka, M., Salvatori, D. C. F., Chuva De Sousa Lopes, S. M. Characterization of migratory primordial germ cells in the aorta-gonad-mesonephros of a 4.5-week-old human embryo: A toolbox to evaluate in vitro early gametogenesis. Mol Hum Reprod. 24 (5), 233-243 (2018).
- Hayashi, K., et al. Offspring from oocytes derived from in vitro primordial germ cell-like cells in mice. Science. 338 (6109), 971-975 (2012).
- Ishikura, Y., et al. In vitro reconstitution of the whole male germ-cell development from mouse pluripotent stem cells. Cell Stem Cell. 28 (12), 2167-2179.e9 (2021).
- Miyoshi, N., et al. Erasure of DNA methylation, genomic imprints, and epimutations in a primordial germ-cell model derived from mouse pluripotent stem cells. Proc Natl Acad Sci U S A. 113 (34), 9545-9550 (2016).
- Sasaki, K., et al. Robust in vitro induction of human germ cell fate from pluripotent stem cells. Cell Stem Cell. 17 (2), 178-194 (2015).
- Tang, W. W., et al. A unique gene regulatory network resets the human germline epigenome for development. Cell. 161 (6), 1453-1467 (2015).
- Mitsunaga, S., et al. Relevance of ipsc-derived human pgc-like cells at the surface of embryoid bodies to prechemotaxis migrating pgcs. Proc Natl Acad Sci U S A. 114 (46), E9913-E9922 (2017).
- Yamashiro, C., et al. Generation of human oogonia from induced pluripotent stem cells in vitro. Science. 362 (6412), 356-360 (2018).
- Pierson Smela, M., et al. Rapid human oogonia-like cell specification via transcription factor-directed differentiation. EMBO Rep. 26 (4), 1114-1143 (2025).
- Hwang, Y. S., et al. Reconstitution of prospermatogonial specification in vitro from human induced pluripotent stem cells. Nat Commun. 11 (1), 5656(2020).
- Von Meyenn, F., et al. Comparative principles of DNA methylation reprogramming during human and mouse in vitro primordial germ cell specification. Dev Cell. 39 (1), 104-115 (2016).
- Alves-Lopes, J. P., Wong, F. C. K., Surani, M. A. Human primordial germ cell-like cells specified from resetting precursors develop in human hindgut organoids. Nat Protoc. 19 (4), 1149-1182 (2024).
- Overeem, A. W., et al. Efficient and scalable generation of primordial germ cells in 2d culture using basement membrane extract overlay. Cell Rep Methods. 3 (6), 100488(2023).
- Esfahani, S. N., et al. Derivation of human primordial germ cell-like cells in an embryonic-like culture. Nat Commun. 15 (1), 167(2024).
- Neupane, J., et al. The emergence of human primordial germ cell-like cells in stem cell-derived gastruloids. Sci Adv. 11 (13), eado1350(2025).
- Rodriguez-Polo, I., Moris, N. Using embryo models to understand the development and progression of embryonic lineages: A focus on primordial germ cell development. Cells Tissues Organs. 213 (6), 503-522 (2024).
- Chen, D., et al. Human primordial germ cells are specified from lineage-primed progenitors. Cell Rep. 29 (13), 4568-4582.e5 (2019).
- Zheng, Y., et al. Controlled modelling of human epiblast and amnion development using stem cells. Nature. 573 (7774), 421-425 (2019).
- Zheng, Y., et al. Single-cell analysis of embryoids reveals lineage diversification roadmaps of early human development. Cell Stem Cell. 29 (9), 1402-1419.e8 (2022).
- Gell, J. J., et al. An extended culture system that supports human primordial germ cell-like cell survival and initiation of DNA methylation erasure. Stem Cell Reports. 14 (3), 433-446 (2020).
- Murase, Y., et al. Long-term expansion with germline potential of human primordial germ cell-like cells in vitro. EMBO J. 39 (21), e104929(2020).
- Murase, Y., et al. In vitro reconstitution of epigenetic reprogramming in the human germ line. Nature. 631 (8019), 170-178 (2024).
- Ishikura, Y., Ohta, H., Nagano, M., Saitou, M. Optimized protocol to derive germline stem-cell-like cells from mouse pluripotent stem cells. STAR Protoc. 3 (3), 101544(2022).
- Kobayashi, M., et al. Expanding homogeneous culture of human primordial germ cell-like cells maintaining germline features without serum or feeder layers. Stem Cell Rep. 17 (3), 507-521 (2022).
- Mitsunaga, S., Shioda, K., Isselbacher, K. J., Hanna, J. H., Shioda, T. Generation of human primordial germ cell-like cells at the surface of embryoid bodies from primed-pluripotency induced pluripotent stem cells. J Vis Exp. (143), e58297(2019).
- Mitsunaga, S., Shioda, K., Hanna, J. H., Isselbacher, K. J., Shioda, T. Production and analysis of human primordial germ cell-like cells. Methods Mol Biol. 2195, 125-145 (2021).
- Talbot, N. C., Sparks, W. O., Powell, A. M., Kahl, S., Caperna, T. J. Quantitative and semiquantitative immunoassay of growth factors and cytokines in the conditioned medium of STO and CF-1 mouse feeder cells. In Vitro Cell Dev Biol Anim. 48 (1), 1-11 (2012).
Reimpresiones y permisos
Este artículo ha sido publicado
Video próximamente