Aquí describimos un protocolo in vitro para modelar el daño por hipoxia/reoxigenación en las células epiteliales tubulares proximales, altamente metabólicas. Este modelo está diseñado para inducir daños inducidos por estrés metabólico, que pueden medirse mediante la expresión de marcadores de daño proximal de los túbulos y la evaluación de la función respiratoria mitocondrial.
Artículo de método
Modelado de la hipoxia/lesión por reoxigenación en células epiteliales tubulares proximales
En este artículo
Resumen
Resumen
El trasplante de riñón representa aproximadamente entre el 60% y el 65% de todos los órganos sólidos trasplantados. La mayoría de los riñones donados se obtienen de personas fallecidas, lo que requiere una prolongada conservación en frío, lo cual es conocido por contribuir a malos resultados en los trasplantes. A pesar de las estrategias actuales de preservación, la lesión por isquemia-reperfusión (IRI) sigue siendo una consecuencia inevitable de la interrupción transitoria del flujo sanguíneo, lo que conduce a la privación de oxígeno y nutrientes. Dentro del nefrón, las células epiteliales tubulares proximales (PTECs) del segmento S3 son particularmente susceptibles a la IRI debido a su alta demanda metabólica y dependencia de la fosforilación oxidativa mitocondrial. A nivel molecular, la IRI altera el metabolismo mitocondrial y reduce la producción de ATP, comprometiendo los requerimientos energéticos de las células epiteliales tubulares proximales (PTECs) y promoviendo la apoptosis y la necrosis. Para investigar estos mecanismos y evaluar posibles estrategias terapéuticas, son esenciales modelos in vitro robustos y reproducibles de IRI renal que recapitulen con precisión la vulnerabilidad metabólica de los PTECs. Aquí describimos un protocolo para la inducción y evaluación de lesiones por hipoxia/reoxigenación (H/R) en PTECs murinos inmortalizados (IM-PTECs). El protocolo incluye información detallada sobre la composición del medio y las condiciones de cultivo necesarias para mantener estas células, seguida de la inducción de la lesión H/R mediante fases controladas de hipoxia y reoxigenación que imitan estrechamente los eventos de isquemia y reperfusión en los riñones trasplantados. Este modelo proporciona una plataforma valiosa para evaluar los efectos de diferentes intervenciones sobre las células epiteliales renales expuestas a lesiones H/R. El impacto de estos tratamientos puede evaluarse mediante el análisis de la expresión de marcadores asociados al daño por PT, así como mediante la evaluación de la función respiratoria mitocondrial. En conjunto, estas lecturas ofrecen perspectivas mecanicistas sobre la eficacia de compuestos y los procesos de recuperación celular, apoyando el desarrollo de terapias dirigidas para la IRI renal.
Introducción
Según el Observatorio Global de Donación y Trasplante, el trasplante de riñón representa aproximadamente entre el 60% y el 65% de todos los trasplantes de órganos sólidos en todo el mundo, siendo el número de procedimientos realizados en 2023 casi tres veces mayor que el de los trasplantes de hígado, siendo este último el segundo tipo más común. En el 61% de los trasplantes de riñón realizados ese año, el órgano se originó en donantesfallecidos 1, lo que implica un periodo de conservación más largo en comparación con los trasplantes de donantes vivos, donde el tiempo de espera es significativamente máscorto 2. Durante este periodo de preservación, los riñones suelen preservarse mediante almacenamiento en frío estático para ralentizar el metabolismo celular, lo que reduce la demanda de oxígeno y energía y, por tanto, limita la lesiónisquémica 3. Sin embargo, el almacenamiento en frío estático proporciona solo protección parcial, ya que no puede sostener completamente el metabolismo celular ni la entrega de osígeno, lo que conduce a una disfunción metabólica progresiva durante lapreservación 4,5. Por otro lado, la preservación normotérmica ex vivo ha surgido como una estrategia viable para mantener el órgano a una temperatura cercana a la fisiología, apoyando así el metabolismo celular y la oxigenación, y en consecuencia reduciendo la lesión isquemia-reperfusión (IRI)6.
Sin embargo, durante el trasplante de riñón, la lesión renal aguda (AK) debida a IRI es una consecuencia inevitable. La IRI resulta de la interrupción del flujo sanguíneo a través del órgano, lo que provoca un desequilibrio entre la oferta y la demanda de oxígeno ynutrientes 7. Este proceso tiene un impacto directo en la función del riñón trasplantado y aumenta el riesgo de rechazo agudo y reducción de la función del injertoa largo plazo 8,9.
Los PTECs—especialmente abundantes en la corteza renal—son especialmente vulnerables a la IRI. Estas células constituyen aproximadamente el 60%-70% del epitelio tubular y son responsables de la reabsorción de la mayor parte del filtrado glomerular, incluyendo agua, iones, glucosa yaminoácidos 10. Su alta actividad metabólica está respaldada por una extensa red mitocondrial para satisfacer las demandas de transporte dependientes deATP 11. En consecuencia, son extremadamente sensibles a alteraciones metabólicas, como la privación de ogen y la disfunción mitocondrial, ambas características centrales deIRI 12.
Durante la IRI, la privación de oxígeno interrumpe la fosforilación oxidativa mitocondrial, lo que provoca agotamiento de ATP y una función de reabsorcióndeteriorada 13,14. Esto inicia un cambio metabólico de la oxidación de ácidos grasos (FAO) a la glucólisis anaeróbia y la activación de la vía de la pentosa fosfato, que, aunque temporalmente protectora, es insuficiente para satisfacer plenamente las demandas energéticas y redox de estascélulas. Si la supresión de la FAO persiste durante la fase de reparación, la acumulación delípidos 16 y la lipotoxicidadse producen 17, dañando aún más las células y afectando su capacidadregenerativa 18. Este estado metabólico desadaptativo puede finalmente provocar atrofia tubular, fibrosis intersticial y progresión hacia enfermedad renalcrónica.
Este deterioro metabólico, provocado por una FAO defectuosa, dificulta la capacidad de satisfacer las altas demandas energéticas del túbulorenal 17,19. La consiguiente depleción de ATP y la acumulación de lípidos promueven la disfunción mitocondrial y la generación de especies reactivas de oxígeno, que activan la señalización proinflamatoria y la infiltraciónleucocitaria 20,21,22. La inflamación persistente y la lesión oxidativa desestabilizan la integridad mitocondrial, amplificando la insuficiencia energética y provocando finalmente la muerte celular apoptóticay necrótica 23,24. Durante esta fase de lesión aguda, biomarcadores específicos como la Molécula de Lesión Renal 1 (KIM-1) y la Lipocalina Asociada a Neutrófilos Gelatinasa (NGAL) se regulan al alza, sirviendo como indicadores sensibles del daño tubular proximal y de laAKI temprana 25.
Tras una lesión aguda, los mecanismos de reparación desadaptativos favorecen una deposición excesiva de la matriz extracelular, una característica distintiva de la fibrosisrenal 26. Entre los componentes de la matriz extracelular, el colágeno, especialmente el colágeno tipo I (codificado por el gen Col1a1), se acumula en el espacio intersticial, contribuyendo a la atrofia tubular y a la pérdida del parénquimafuncional 27. Esta remodelación fibrótica está impulsada en gran medida por la senescencia tubular y la transición parcial de epitelio a mesenquim (pEMT) en células epiteliales tubulares, lo que finalmente conduce a un deterioro funcionalrenal 28,29,30. El inicio de la PEM renal y la fibrosis favorece la progresión de la IAC a la enfermedad renal crónica (ERC), culminando en una pérdida irreversible de la función renal y una supervivencia comprometida delinjerto 31,32.
En este protocolo, describimos un modelo in vitro de lesión H/R utilizando células epiteliales tubulares proximales (IM-PTECs) inmortalizadas por SV40 de ratón, sometidas a condiciones H/R controladas. La mayoría de los estudios preclínicos sobre IRI renal se han basado tradicionalmente en modelos animales, que reproducen las complejas respuestas vasculares e inmunitarias del riñón pero conllevan mayores costes, preocupaciones éticas y una variabilidad biológica considerablemente mayor33,34. Estas limitaciones han ralentizado el desarrollo de sistemas complementarios basados en células válidos para estudios mecanicistas detallados y de alto rendimiento. Este montaje experimental permite la simulación reproducible de la privación y restauración de oxígeno, imitando características clave de la IRI observadas en riñones trasplantados. El modelo sirve como una herramienta valiosa para estudiar los mecanismos celulares y moleculares subyacentes a la lesión tubular, la expresión de biomarcadores y las respuestas fibróticas en un entorno controlado. Además, proporciona una plataforma relevante para el cribado y evaluación de posibles estrategias terapéuticas destinadas a prevenir o mitigar el daño isquémico y mejorar los resultados tras el trasplante.
Protocolo
Las células utilizadas en este protocolo no fueron aisladas dentro del contexto de este estudio. Anteriormente habían sido aislados y puestos a disposición por otrosinvestigadores 35. Por lo tanto, no se realizó nueva experimentación con animales y no se requirió aprobación ética para el presente trabajo.
1. Cultura IM-PTEC
- Prepara el medio L3 como se describe en la Tabla 1.
- Descongela un vial de IM-PTECs. Cultivar aproximadamente 1 x 10⁶ células a 33 °C en una incubadora humidificada bajo condiciones estándar (5% de CO2, Oatmosférico 2) hasta una confluencia del 80% (normalmente alcanzada tras 3 días).
NOTA: Los IM-PTEC están aislados de ratones Immorto. Para un protocolo detallado sobre el aislamiento de IM-PTECs, consulte el35. - Subcultivo de células dos veces por semana con una proporción de división aproximada de 1:10. Para el pasaje, desprende la monocapa adherente usando tripsina-EDTA al 0,05% durante 2-3 minutos a 33 °C, neutraliza con medio de crecimiento completo y vuelve a sembrar en frascos de cultivo frescos.
| Componente | Concentración en Cantidad/Medios Finales |
| DMEM/F12 | 500 mL |
| Suero fetal para el ternero (FCS) | 10% |
| Penicilina | 10.000 U/mL |
| Estreptomicina | 10.000 μg/mL |
| L-glutamina | 0,02 μM |
| Insulina | 5 μg/mL |
| Transferrin | 5 μg/mL |
| Selenita de sodio | 5 μg/mL |
| Triyodotironina | 40 pg/mL |
| Hidrocortisona | 36 ng/mL |
| Factor de crecimiento epidérmico | 20 ng/mL |
| Interferón γ (IFN-γ) | 10 ng/mL |
Tabla 1: Composición de medios L3.
2. Cultura restrictiva de los IM-PTEC
- Subcultivar como se describe en el paso 1.3 y transferir toda la suspensión celular de un matraz T-25 de IM-PTEC a un matraz T-75 que contenga aproximadamente 10 mL de medio L3 sin interferón-γ (IFN-γ). Cultivo a 37 °C bajo condiciones estándar hasta el 80% de confluencia (normalmente alcanzado tras 3 días).
- Subcultivar como se describe en el paso 1.3 y transferir toda la suspensión celular de un matraz T-75 a dos matrazas T-175 que contienen aproximadamente 20 mL de medio L3 sin IFN-γ. Cultivo a 37 °C bajo condiciones estándar hasta el 80% de confluencia (normalmente alcanzado tras 3 días).
- Placar IM-PTECs para experimentos separando células de cultivos confluentes usando tripsina-EDTA al 0,05%, resuspendiéndolas en medio completo y sembrando a la densidad deseada (aproximadamente 1 x 10⁵). Utilizar placas de 6 pozos para el análisis de expresión de marcadores moleculares, o microplacas de cultivo celular de 96 pozos adecuadas para estudios de respiración mitocondrial.
NOTA: Para otros experimentos, utilice un formato de cultivo adecuado.- Al colocar las células en una microplaca de cultivo celular de 96 pozos para estudios de respiración mitocondrial, deja vacíos los cuatro pozos en las esquinas para usarlos como corrección de fondo. Deja la microplaca durante 1 hora a temperatura ambiente antes de colocarla en la incubadora para que las células se asienten.
3. Procedimiento de hipoxia/reoxigenación (Figura 1)
- Refresca los IM-PTEC retirando medios de cultivo y añadiendo medio L3 fresco sin IFN-γ (0,1 mL/pozo para placas de 96 pozos o 2 mL/pozo para placas de 6 pozos). Coloque las células en una incubadora de hipoxia al 1% deO2, 5% deCO2, a 37 °C durante 48 horas.
- Retira las células del incubador de hipoxia y refrescalas con medio L3 sin IFN-γ. Coloque las células en una incubadora de cultivos celulares en condiciones estándar deO2 y 5% deCO2 a 37 °C durante 24 horas.
NOTA: Las condiciones hipóxicas pueden lograrse utilizando una incubadora de hipóxia o una cámara modular de hipóxia conectada a un suministro de gas controlado.
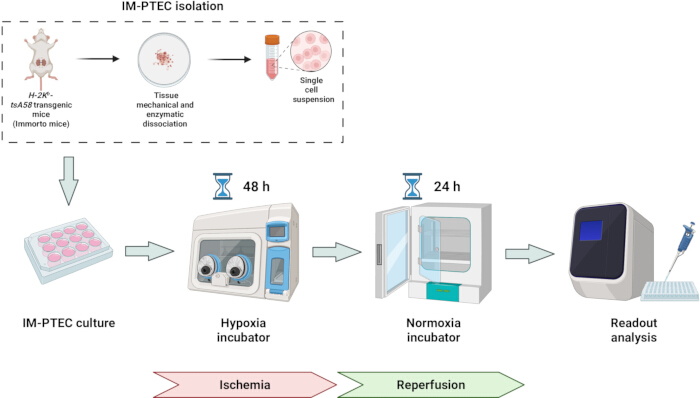
Figura 1: Representación esquemática del modelo H/R in vitro en células epiteliales tubulares proximales inmortalizadas (IM-PTECs). Los IM-PTEC derivados de ratones transgénicos H-2Kb-tsA58 (Immorto) fueron cultivados bajo condiciones normóxicas, expuestos a hipoxia (1%O2, 48 h) y posteriormente reoxigenados (condiciones estándar deO2, 24 h), para análisis de lectura. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
4. Análisis de la expresión de marcadores moleculares
- Aislamiento de ARN
- Añadir 800 μL de reactivo de aislamiento de ARN a cada pozo de una placa de 6 pozos. Incuba durante 5 minutos a temperatura ambiente. Transfiere las muestras a tubos microcentrífugas libres de ARN de 1,5 mL.
- Añade 200 μL de cloroformo y mezcla bien durante 15 segundos pipeteando. Incuba a temperatura ambiente durante 2-3 minutos.
- Centrifugar a 12.000 x g a 4 °C durante 12 minutos. Transfiere la fase superior acuosa a un tubo microcentrífuga de 1,5 mL libre de ARN.
- Añade 500 μL de isopropanol. Incuba a temperatura ambiente durante 10 minutos. Centrifuga a 12.000 x g a 4 °C durante 10 minutos.
- Descarta el sobrenadante y lava la bolítula con 1 mL de etanol al 70%. Centrifuga a 5.000 x g a 4 °C durante 5 minutos. Descarta el sobrenadante.
- Seca el pellet al aire. Disuelva el pellet en 12 μL de agua libre de ARNasa.
- Calienta la muestra a 56 °C durante 15 minutos. Mide la concentración de ARN en un espectrofotómetro UV-Vis de microvolumen.
NOTA: Mantener siempre las muestras en hielo entre pasos de incubación para evitar la degradación del ARN.
- Transcripción inversa
- Sobre hielo, añade los siguientes componentes de reacción a un tubo de microcentrífuga de 0,2 mL libre de ARN: 10 μL de Master Mix (2x), 2 μL de Enzyme Mix, 1-5 μg de ARN y hasta 20 μL deH2Olibre de nucleasas.
- Mezcla suavemente y incuba a 25 °C durante 10 minutos, seguido de la incubación a 50-55 °C durante 10 minutos.
- Inactiva la reacción calentando a 85 °C durante 5 minutos y enfría sobre hielo. Diluye el ADNc a 1:5 o 1:10.
- PCR cuantitativa en tiempo real (RT-qPCR)
- Prepara los conjuntos de cebadores mezclándolos a una concentración final de 10 μM (Tabla 2).
- Para cada gen a medir, preparar una mezcla qPCR en tiempo real (RT) que contenga los siguientes reactivos por pozo: 5 μL de mezcla maestra RT-qPCR; 0,4 μL de cebador frontal de 10 μM, 0,4 μL de cebador inverso de 10 μM y 2,2 μL de H2O libre de nucleasas.
- Añade 8 μL de la mezcla RT-qPCR a cada pozo de una placa PCR de 384 pozos. Añade 2 μL de muestra de ADNc a cada pozo, dejando una gota en el borde del pozo.
- Después de añadir todas las muestras, golpea suavemente la placa hasta que todas las gotas caigan en los pozos. Sella la placa firmemente con su membrana. Gira la placa PCR de 384 pozos.
- Mide en un sistema RT qPCR con el siguiente programa: 98 °C durante 30 s, 40 ciclos de 98 °C durante 10 s seguidos de 60 °C durante 30 s, y una curva de fusión a 95 °C.
| Gen | Secuencias de cebadores |
| Kim-1 | F: 5' - TGGTTGCCTTCCGTCTCTCT |
| R: 5' - TCAGCTCGGGAATGCACAA | |
| Ngal | F: 5' - ATGTCACCTCCATCCTGGTCAG |
| R: 5' - GCCACTTGCACATTGTAGCTCTG | |
| Acta2 | F: 5' - GCCATCTTTCATTGGGATGGA |
| R: 5' - CCCCTGACAGGACGTTGTTA | |
| Col1a1 | F: 1,57 m - CCTCAGGGTATTGCTGGACAAC |
| R: 5' - CAGAAGGACCTTTTTTTTGCCAGG |
Tabla 2: Secuencias de cebadores usadas para RT-qPCR.
5. Evaluación de la función respiratoria mitocondrial
- El día antes del ensayo
- Enciende el analizador de tasa de consumo de oxígeno (OCR)/tasa de acidificación extracelular (ECAR) y deja que se caliente al menos 5 horas antes del experimento.
- Hidrata un cartucho sensor a 37 °C en una incubadora sin CO2 durante la noche.
- Día del ensayo
- Preparar el medio de ensayo para una microplaca de cultivo celular de 96 pozos que contiene: 33,4 mL de medio DMEM pH 7,4; 0,875 mL de glucosa 1 M (concentración final 25 mM); 0,35 mL de piruvato 100 mM (concentración final 1 mM); y 0,35 mL de Glutamina 200 mM (concentración final 2 mM).
- Prepara soluciones inhibidoras según la Tabla 3.
- Retira el cartucho sensor ensamblado de la incubadora. Carga 25 μL de cada inhibidor en su puerto correspondiente usando una pipeta multicanal y una guía de carga.
- Retirar el medio de cultivo celular de la microplaca de cultivo celular. Añade 175 μL de medio de ensayo precalentado (37 °C) a cada pozo usando una pipeta multicanal.
- Coloca la microplaca de cultivo celular en una incubadora noCO2 a 37 °C durante 45-60 minutos antes del ensayo.
- Coloca la placa de calibración junto con el cartucho sensor cargado en el analizador OCR/ECAR para la calibración.
- Coloque la microplaca de cultivo celular en el instrumento para la medición.
- Después de la prueba, guarda la microplaca de cultivo celular para cuantificar la proteína total y normalizar los datos.
| [Cartucho] (μM) | [Medio de ensayo] (μM) | Puerto A | Puerto B | Puerto C | |
| Oligomicina | 12 | 1.5 | 8,4 μL | ||
| FCCP | 9 | 1 | 6,3 μL | ||
| Antimicina A | 25 | 2.5 | 17,5 μL | ||
| Rotenona | 12.5 | 1.25 | 8,75 μL | ||
| Medio de ensayo | 3,5 mL | 3,5 mL |
Tabla 3: Soluciones inhibidoras para la evaluación de la respiración mitocondrial.
Resultados
Primero se realizó una validación temporal para determinar las condiciones óptimas de hipoxia/reoxigenación (H/R) para reproducir lesiones isquémicas en los IM-PTECs. La activación de la caspasa-3, característica distintiva de la lesión por isquemia-reperfusión renal tanto in vivo como in vitro, se utilizó como indicador de la fidelidad del modelo36,37. Encontramos que 48 horas de hipoxia seguidas de 24 horas de reoxigenación produjeron el mayor aumento en la actividad de la caspasa-3. La viabilidad celular, evaluada por el ensayo MTT, se mantuvo comparable a la de los controles normóxicos bajo estas condiciones, lo que indica que, aunque se inició la señalización apoptótica, las células seguían siendo viables para pruebas farmacológicas posteriores (Figura suplementaria 1). Este protocolo validado se utilizó después para inducir lesiones H/R mediante hipoxia controlada/reoxigenación de IM-PTECs.
Tras el insulto isquémico, se realizó RT-qPCR para determinar la expresión de varios marcadores de daño renal (Figura 2). La RT-qPCR mostró que, en el contexto de la IRI, la expresión de Kim-138,39 y Ngal40,41, marcadores conocidos de la lesión renal aguda, aumentó significativamente. Además, también aumentó la expresión de Acta242,43 y Col1a1 44,45,46, marcadores de la pEMT/fibrosis renal. Además de ser un marcador renal de pEMT/fibrosis, la expresión de Col1a1 puede correlacionarse con la gravedad47 de la ERC. /p>
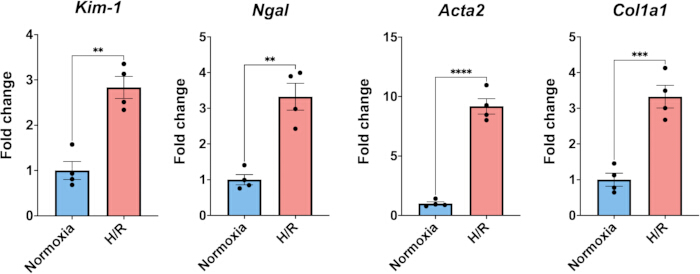
Figura 2: Expresión molecular de marcadores de lesión renal bajo normoxia o hipoxia/reoxigenación (H/R). Tras la H/R, la expresión de los marcadores moleculares de lesión renal Kim-1, Ngal, Acta2 y Col1a1 aumenta significativamente en los IM-PTECs. Los datos se presentan como media ± error estándar de la media (MEB) de cuatro réplicas biológicas por condición. La significación estadística se evaluó utilizando un test t de Student de dos colas sin pareja. Los niveles de significación se indican de la siguiente manera: p < 0,05 (*), p < 0,01 (**), p < 0,001 (***) y p < 0,0001 (****). Por favor, haz clic aquí para ver una versión ampliada de esta figura.
También se realizaron estudios de respiración mitocondrial para determinar la capacidad respiratoria mitocondrial tras la H/R (Figura 3). Mediante la medición de la Tasa de Consumo de Ogénigeno (OCR), determinamos que, tras el desafío isquémico, todos los parámetros de respiración mitocondrial (respiración basal, producción de ATP, fuga de protones, respiración máxima y capacidad sobrante) se redujeron, lo que apunta a un metabolismo mitocondrial obstaculizado.
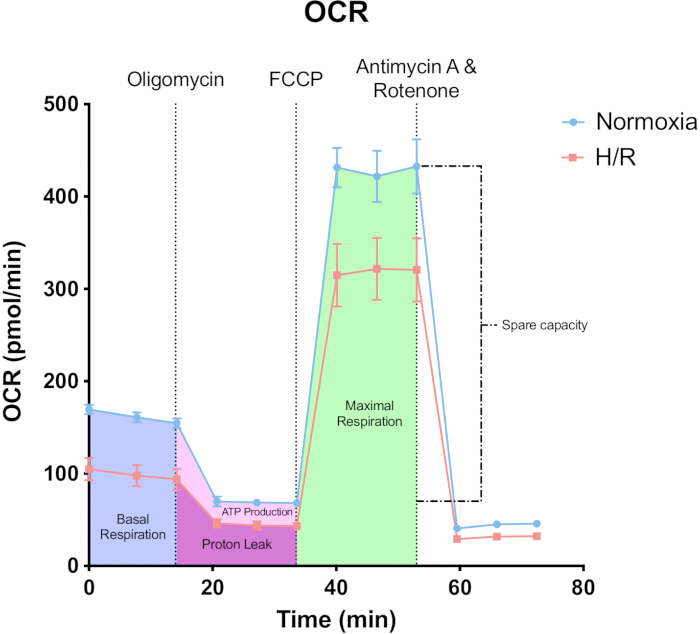
Figura 3: OCR (tasa de consumo de ogénio) en IM-PTEC bajo condiciones normóxicas o hipóxicas. Tras hipoxia/reoxigenación (H/R), LOS IM-PTEC muestran una función respiratoria mitocondrial reducida. La respiración mitocondrial se evaluó añadiendo secuencialmente inhibidores de la cadena de transporte de electrones: oligomicina, FCCP (cianuro de carbonilo-p-trifluorometoxifenilhidrazona), antimicina A y rotenona. Los datos se presentan como media ± error estándar de la media (MEB) de cuatro réplicas biológicas por condición. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
Estos resultados confirman que el protocolo H/R induce eficazmente alteraciones moleculares y metabólicas consistentes con lesión renal isquémica en IM-PTEC48,49. Por tanto, este protocolo proporciona un marco útil para reproducir condiciones similares a la isquemia renal y la reperfusión in vitro.
Figura suplementaria 1. Viabilidad celular y actividad de la caspasa-3 bajo condiciones de normoxia e hipoxia/reoxigenación (H/R). (A) Viabilidad celular. La viabilidad celular se evaluó mediante el ensayo MTT tras la exposición a normoxia o hipoxia/reoxigenación (H/R). Los resultados se expresan como viabilidad relativa (%) normalizada a controles normóxicos. (B) Caspasa cortada-3. La actividad de la caspasa-3 dividida (proteína nmol/min/mg) se cuantificó en células sometidas a diferentes duraciones de normoxia (N), hipoxia (H) y reperfusión (R). Los datos se presentan como media ± SEM, y cada punto representa una réplica biológica individual. Por favor, haz clic aquí para descargar esta figura.
Discusión
La mayoría de los datos preclínicos sobre la IAA inducida por IRI renal se generan a través de modelos in vivo 50,51,52,53, debido a la falta de modelos in vitro establecidos. Esto, sumado a la limitada disponibilidad de líneas celulares epiteliales tubulares proximales murinas inmortalizadas bien caracterizadas, limita la investigación in vitro, haciendo del desarrollo de este protocolo un activo valioso. Este método proporciona una plataforma más accesible y reproducible para estudiar los mecanismos de lesión renal H/R bajo condiciones controladas, al tiempo que reduce la necesidad de uso animal.
Además, este protocolo utiliza predominantemente equipos estándar de laboratorio, facilitando su implementación sin necesidad de instrumentos especializados y costosos. La única excepción es la necesidad de un incubador de hipoxia, que normalmente está disponible en laboratorios de investigación oncológica para recrear microambientes tumoraleshipóxicos 54,55,56. Esta accesibilidad favorece una adopción más amplia y promueve la reproducibilidad entre diferentes laboratorios.
Una consideración crítica en este protocolo es la correcta cultura de los IM-PTECs. Las células deben cultivarse a 33 °C y suplementarse con IFN-γ para evitar la regulación a la baja de la actividad de SV40. Antes de los procedimientos experimentales, los IM-PTEC se desplazan a condiciones restrictivas durante 7 días antes de comenzar los experimentos. El cultivo restrictivo se logra aumentando la temperatura a 37 °C y eliminando interferón-gamma (IFN-γ) del medio durante una semana, lo que disminuye la expresión del antígeno T grande SV40, una proteína viral codificada por el Virus Simio 40, utilizada para inmortalizar las células 35,57 que causan la pérdida de su estatus de inmortalización y promueven un fenotipo58 más diferenciado y fisiológicamente relevante. Cabe destacar que los IM-PTEC pueden desarrollar vacuolas citoplasmáticas prominentes tras varios días en cultivo; Si se produce vacuo, se debe omitir la hidroxicortisona del medio de cultivo para prevenir o revertir este cambio.
Aunque el uso de PTECs inmortalizados ofrece la ventaja de estabilidad y facilidad de mantenimiento, los investigadores también pueden considerar el uso de células epiteliales tubulares proximales primarias para aumentar su relevancia fisiológica. Sin embargo, los PTEC primarios de ratón presentan una mayor variabilidad entredonantes (59,60) y tienen una capacidad proliferativalimitada (61,62), lo que los hace menos adecuados para experimentos de alto rendimiento o a largo plazo. Su uso puede ser más apropiado para estudios de validación o al estudiar respuestas derivadas de pacientes específicos
Este protocolo proporciona una plataforma valiosa para investigar los mecanismos moleculares subyacentes a la lesión H/R, identificar y evaluar posibles enfoques terapéuticos, y explorar respuestas celulares como la inflamación, el estrés oxidativo y las vías de muerte celular en un entornocontrolado 63,64.
No obstante, una limitación importante de este modelo es que no reproduce ciertas características de isquemia observadas en trasplantes renales, como la hipotermia y la privación de nutrientes durante la almacenamiento en frío. Estas condiciones influyen notablemente en el metabolismo celular y en los patrones de lesiones, y su ausencia puede restringir la traducción de los hallazgos al entornoclínico 65,66.
En conclusión, este modelo H/R in vitro en IM-PTEC proporciona un enfoque reproducible, accesible y éticamente favorable para estudiar la lesión por isquemia-reperfusión renal bajo condiciones controladas. Aunque no recapitula completamente la complejidad de la isquemia in vivo , representa una valiosa herramienta complementaria para dilucidar mecanismos celulares, evaluar candidatos terapéuticos y reducir la dependencia de la experimentación con animales en la investigación renal.
Divulgaciones
Los autores declaran que no tienen conflictos de interés en esta obra que revelar
Agradecimientos
Mariano Marín-Blazquez pertenece al "Programa de Doctorado en Ciencias de la Salud" de la Universidad Católica de Murcia (UCAM). El trabajo en el grupo Ruben Rabadan-Ros y Ruben Zapata-Pérez cuenta con el apoyo de una beca del Ministerio de Ciencia, Innovación y Universidades - Proyectos de Generación de Conocimiento 2023 (PID2023-147560OA-I00). Rubén Rabadán-Ros cuenta con el apoyo de una beca de la Fundación Séneca - Agencia de Ciencia y Tecnología de la Región de Murcia (22524/JLI/24, Ayudas a Proyectos para la Generación de Nuevo Liderazgo Científico Jóvenes Líderes en Investigación 2024). AT cuenta con apoyo financiero gracias a una subvención conjunta NWO-FAPESP sobre Envejecimiento Saludable ejecutada por Zonmw (nº 457002002) y una subvención para Talento Junior de Nierstichting.
Los autores agradecen sinceramente a la Universidad de Murcia (UM) y a la Universidad Católica de Murcia (UCAM) por proporcionar acceso a sus instalaciones donde se grabaron grabaciones de vídeo.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Placa qPCR de 384 pocillos | Biosistemas Aplicados | 4309849 | |
| Centrifugadora | Ortoalresa | Biocen22R | |
| Cloroformo | VWR | 0757-500ML | |
| DMEM/F12 | Gibco | 21331020 | |
| Factor de crecimiento epidérmico | Sigma-Aldrich | E9644 | |
| Etanol | PanReac AppliChem | 141086.1214 | |
| FCS | Biowest | S181B-500 | |
| Bloque calefactor | Eppendorf | Termomezclador C | |
| Hidrocortisona | Sigma-Aldrich | H0135 | |
| Incubadora de hipoxia | Memmert | ICO 50med | |
| IFN-γ | ProspecBIo | CYT-358 | |
| Incubadora | Memmert | ICO 105 | |
| Isopropanol | VWR | 0918-1L | |
| ITSe | Gibco | 41400045 | |
| L-glutamina | Gibco | 25030081 | |
| Pipeta multicanal | Eppendorf | 3125000052 | |
| Incubadora no <> COsub<> | |||
| Cebadores de PCR | Genómica Eurofins | ||
| Penicilina - Estreptomicina | Gibco | 15140-122 | |
| Mezcla maestra qPCR | NZYTech | MB22303 | |
| Sistema qPCR en tiempo real | Biosistemas Aplicados | QuantStudio 5 | |
| Mezcla maestra de transcripción inversa | NZYTech | MB12502 | Contiene mezcla enzimática |
| Agua libre de ARN | HyClone | SH3053802 | |
| Kit de prueba de estrés Mito para la célula XF Seahorse | Agilent | 103015-100 | Contiene oligomicina, FCCP, antimicina A y rotenona |
| Seahorse XF DMEM medio | Agilent | 103575-100 | |
| Seahorse XF Glucosa | Agilent | 03577-100 | |
| Seahorse XF Glutamina | Agilent | 103579-100 | |
| Seahorse XF Piruvato | Agilent | 103578-100 | |
| Analizador Seahorse XFe96 | Agilent | S7800BR | |
| Seahorse XFe96 FluxPak | Agilent | 103792-100 | Contiene microplaca de cultivo celular XFe96 y cartucho sensor XFe96 |
| Ciclador térmico | BIO-RAD | Ciclador térmico T100 | |
| Triiodotironina | Sigma-Aldrich | T5516 | |
| Trizol | Invitrogen | 15596026 | |
| Espectrofotómetro UV-Vis | DeNovix | DS-11 |
Referencias
- Use of the data/quoting data. GODT. , Global Observatory on Donation and Transplantation. https://www.transplant-observatory.org/uses-of-dataquoting-data (2016).
- van de Laar, S. C., Lafranca, J. A., Minnee, R. C., Papalois, V., Dor, F. J. M. F. The Impact of Cold Ischaemia Time on Outcomes of Living Donor Kidney Transplantation: A Systematic Review and Meta-Analysis. J Clin Med. 11 (6), 1620(2022).
- Tingle, S. J., et al. Machine perfusion preservation versus static cold storage for deceased donor kidney transplantation. Cochrane Database Syst Rev. 3 (3), CD011671(2019).
- Jing, L., Yao, L., Zhao, M., Peng, L., Liu, M. Organ preservation: from the past to the future. Acta Pharmacol Sin. 39 (5), 845-857 (2018).
- Smith, T. B., Nicholson, M. L., Hosgood, S. A. Advances in Hypothermic and Normothermic Perfusion in Kidney Transplantation. Transplantology. 2 (4), 460-477 (2021).
- Montagud-Marrahi, E., et al. Ex vivo normothermic preservation of a kidney graft from uncontrolled donation after circulatory death over 73 hours. Front Bioeng Biotechnol. 11, 1330043(2023).
- Malek, M., Nematbakhsh, M. Renal ischemia/reperfusion injury; from pathophysiology to treatment. J Renal Inj Prev. 4 (2), 20-27 (2015).
- Ditonno, P., et al. Effects of ischemia-reperfusion injury in kidney transplantation: risk factors and early and long-term outcomes in a single center. Transplant Proc. 45 (7), 2641-2644 (2013).
- Salvadori, M., Rosso, G., Bertoni, E. Update on ischemia-reperfusion injury in kidney transplantation: Pathogenesis and treatment. World J Transplant. 5 (2), 52-67 (2015).
- Park, J., et al. Single-cell transcriptomics of the mouse kidney reveals potential cellular targets of kidney disease. Science. 360 (6390), 758-763 (2018).
- Curthoys, N. P., Moe, O. W. Proximal Tubule Function and Response to Acidosis. Clin J Am Soc Nephrol. 9 (9), 1627-1638 (2014).
- Bhargava, P., Schnellmann, R. G. Mitochondrial energetics in the kidney. Nat Rev Nephrol. 13 (10), 629-646 (2017).
- Erpicum, P., Rowart, P., Defraigne, J. O., Krzesinski, J. M., Jouret, F. What we need to know about lipid-associated injury in case of renal ischemia-reperfusion. Am J Physiol Renal Physiol. 315 (6), F1714-F1719 (2018).
- Vasko, R. Peroxisomes and Kidney Injury. Antioxid Redox Signal. 25 (4), 217-231 (2016).
- Lan, R., et al. Mitochondrial Pathology and Glycolytic Shift during Proximal Tubule Atrophy after Ischemic AKI. J Am Soc Nephrol. 27 (11), 3356-3367 (2016).
- Lipke, K., Kubis-Kubiak, A., Piwowar, A. Molecular Mechanism of Lipotoxicity as an Interesting Aspect in the Development of Pathological States-Current View of Knowledge. Cells. 11 (5), 844(2022).
- Jang, H. S., Noh, M. R., Kim, J., Padanilam, B. J. Defective Mitochondrial Fatty Acid Oxidation and Lipotoxicity in Kidney Diseases. Front. Med. 7, 65(2020).
- Rinaldi, A., et al. Impaired fatty acid metabolism perpetuates lipotoxicity along the transition to chronic kidney injury. JCI Insight. 7 (18), e161783(2022).
- Kang, H. M., et al. Defective fatty acid oxidation in renal tubular epithelial cells has a key role in kidney fibrosis development. Nat Med. 21 (1), 37-46 (2015).
- Chen, Y., et al. Mitochondrial metabolism and targeted treatment strategies in ischemic-induced acute kidney injury. Cell Death Discov. 10 (1), 69(2024).
- Bhatia, D., Capili, A., Choi, M. E. Mitochondrial dysfunction in kidney injury, inflammation, and disease: potential therapeutic approaches. Kidney Res Clin Pract. 39 (3), 244-258 (2020).
- Zhao, L., et al. Energy metabolic reprogramming regulates programmed cell death of renal tubular epithelial cells and might serve as a new therapeutic target for acute kidney injury. Front Cell Dev Biol. 11, 1276217(2023).
- Fontecha-Barriuso, M., et al. Tubular Mitochondrial Dysfunction, Oxidative Stress, and Progression of Chronic Kidney Disease. Antioxidants. 11 (7), 1356(2022).
- Wang, H., Zhang, S., Guo, J. Lipotoxic Proximal Tubular Injury: A Primary Event in Diabetic Kidney Disease. Front Med (Lausanne). 8, 751529(2021).
- Bhosale, S. J., Kulkarni, A. P. Biomarkers in Acute Kidney Injury. Indian J Crit Care Med. 24 (Suppl 3), S90-S93 (2020).
- van der Rijt, S., Leemans, J. C., Florquin, S., Houtkooper, R. H., Tammaro, A. Immunometabolic rewiring of tubular epithelial cells in kidney disease. Nat Rev Nephrol. 18 (9), 588-603 (2022).
- Liu, Y. Cellular and molecular mechanisms of renal fibrosis. Nat Rev Nephrol. 7 (12), 684-696 (2011).
- Lovisa, S., et al. Epithelial-to-mesenchymal transition induces cell cycle arrest and parenchymal damage in renal fibrosis. Nat Med. 21 (9), 998-1009 (2015).
- Luo, C., et al. Wnt9a Promotes Renal Fibrosis by Accelerating Cellular Senescence in Tubular Epithelial Cells. J Am Soc Nephrol. 29 (4), 1238-1256 (2018).
- Mylonas, K. J., et al. Cellular senescence inhibits renal regeneration after injury in mice, with senolytic treatment promoting repair. Sci Transl Med. 13 (594), eabb0203(2021).
- Mimura, I., Nangaku, M. The suffocating kidney: tubulointerstitial hypoxia in end-stage renal disease. Nat Rev Nephrol. 6 (11), 667-678 (2010).
- Fine, L. G., Norman, J. T. Chronic hypoxia as a mechanism of progression of chronic kidney diseases: from hypothesis to novel therapeutics. Kidney International. 74 (7), 867-872 (2008).
- Lerink, L. J. S., et al. Preclinical models versus clinical renal ischemia reperfusion injury: A systematic review based on metabolic signatures. American Journal of Transplantation. 22 (2), 344-370 (2022).
- Harwood, R., et al. Murine models of renal ischemia reperfusion injury: An opportunity for refinement using noninvasive monitoring methods. Physiol Rep. 10 (5), e15211(2022).
- Leemans, J. C., et al. Renal-associated TLR2 mediates ischemia/reperfusion injury in the kidney. J Clin Invest. 115 (10), 2894-2903 (2005).
- Havasi, A., Borkan, S. C. Apoptosis and acute kidney injury. Kidney Int. 80 (1), 29-40 (2011).
- Wang, X., Wang, W., Wang, J. Z., Yang, C., Liang, C. -Z. Effect of apigenin on apoptosis induced by renal ischemia/reperfusion injury in vivo and in vitro. Ren Fail. 40 (1), 498-505 (2018).
- Bonventre, J. V. Kidney injury molecule-1: a translational journey. Trans Am Clin Climatol Assoc. 125, discussion 299 293-299 (2014).
- Ichimura, T., et al. Kidney injury molecule-1 (KIM-1), a putative epithelial cell adhesion molecule containing a novel immunoglobulin domain, is up-regulated in renal cells after injury. J Biol Chem. 273 (7), 4135-4142 (1998).
- Clerico, A., Galli, C., Fortunato, A., Ronco, C. Neutrophil gelatinase-associated lipocalin (NGAL) as biomarker of acute kidney injury: a review of the laboratory characteristics and clinical evidences. Clin Chem Lab Med. 50 (9), 1505-1517 (2012).
- Xu, C., Lin, S., Mao, L., Li, Z. Neutrophil gelatinase-associated lipocalin as predictor of acute kidney injury requiring renal replacement therapy: A systematic review and meta-analysis. Front Med (Lausanne). 9, 859318(2022).
- Huang, R., Fu, P., Ma, L. Kidney fibrosis: from mechanisms to therapeutic medicines. Sig Transduct Target Ther. 8 (1), 1-20 (2023).
- Schreibing, F., Anslinger, T. M., Kramann, R. Fibrosis in Pathology of Heart and Kidney: From Deep RNA-Sequencing to Novel Molecular Targets. Circ Res. 132 (8), 1013-1033 (2023).
- Wang, Q., et al. CircCSPP1 Functions as a ceRNA to Promote Colorectal Carcinoma Cell EMT and Liver Metastasis by Upregulating COL1A1. Front Oncol. 10, 850(2020).
- Zhu, X., Luo, X., Jiang, S., Wang, H. Bone Morphogenetic Protein 1 Targeting COL1A1 and COL1A2 to Regulate the Epithelial-Mesenchymal Transition Process of Colon Cancer SW620 Cells. J Nanosci Nanotechnol. 20 (3), 1366-1374 (2020).
- Salimian, N., Peymani, M., Ghaedi, K., Hashemi, M., Rahimi, E. Collagen 1A1 (COL1A1) and Collagen11A1(COL11A1) as diagnostic biomarkers in Breast, colorectal and gastric cancers. Gene. 892, 147867(2024).
- Mavrogeorgis, E., et al. Collagen-Derived Peptides in CKD: A Link to Fibrosis. Toxins. 14 (1), 10(2022).
- Kurian, G. A., Pemaih, B. Standardization of in vitro Cell-based Model for Renal Ischemia and Reperfusion Injury. Indian J Pharm Sci. 76 (4), 348-353 (2014).
- Strazdauskas, A., et al. In Vitro Hypoxia/Reoxygenation Induces Mitochondrial Cardiolipin Remodeling in Human Kidney Cells. Int J Mol Sci. 25 (11), 6223(2024).
- Wang, H. J., Varner, A., AbouShwareb, T., Atala, A., Yoo, J. J. Ischemia/reperfusion-induced renal failure in rats as a model for evaluating cell therapies. Ren Fail. 34 (10), 1324-1332 (2012).
- Greite, R., et al. Renal ischemia-reperfusion injury causes hypertension and renal perfusion impairment in the CD1 mice which promotes progressive renal fibrosis. Am J Physiol Renal Physiol. 314 (5), F881-F892 (2018).
- Skrypnyk, N. I., Harris, R. C., de Caestecker, M. P. Ischemia-reperfusion Model of Acute Kidney Injury and Post Injury Fibrosis in Mice. J Vis Exp. (78), e50495(2013).
- Le Clef, N., Verhulst, A., D'Haese, P. C., Vervaet, B. A. Unilateral Renal Ischemia-Reperfusion as a Robust Model for Acute to Chronic Kidney Injury in Mice. PLoS One. 11 (3), e0152153(2016).
- Ma, R., He, X., Wang, H., Jia, W., Zeng, X. Hypoxic microenvironment promotes proliferation and invasion of non-small cell lung cancer A549 Cells through Wnt/β-catenin signaling pathway. Biomed Res. 29 (2), 268-273 (2018).
- Metsälä, O., et al. Transportable system enabling multiple irradiation studies under simultaneous hypoxia in vitro. Radiat Oncol. 13, 220(2018).
- Nushtaeva, A. A., et al. Establishment of primary human breast cancer cell lines using "pulsed hypoxia" method and development of metastatic tumor model in immunodeficient mice. Cancer Cell Int. 19 (1), 46(2019).
- Stokman, G., et al. Stem Cell Factor Expression after Renal Ischemia Promotes Tubular Epithelial Survival. PLoS One. 5 (12), e14386(2010).
- Stokman, G., et al. Epac-Rap signaling reduces cellular stress and ischemia-induced kidney failure. J Am Soc Nephrol. 22 (5), 859-872 (2011).
- Bejoy, J., Qian, E. S., Woodard, L. E. Tissue Culture Models of AKI: From Tubule Cells to Human Kidney Organoids. J Am Soc Nephrol. 33 (3), 487-501 (2022).
- Li, Y., et al. An in vitro method for the prediction of renal proximal tubular toxicity in humans. Toxicol Res. 2 (5), 352-365 (2013).
- Wilmer, M. J., et al. Novel conditionally immortalized human proximal tubule cell line expressing functional influx and efflux transporters. Cell Tissue Res. 339 (2), 449-457 (2010).
- Terryn, S., et al. A primary culture of mouse proximal tubular cells, established on collagen-coated membranes. Am J Physiol Renal Physiol. 293 (2), F476-F485 (2007).
- Zapata-Pérez, R., et al. Reduced nicotinamide mononucleotide is a new and potent NAD+ precursor in mammalian cells and mice. FASEB J. 35 (4), e21456(2021).
- Tammaro, A., et al. HDAC1/2 inhibitor therapy improves multiple organ systems in aged mice. iScience. 27 (1), 108681(2024).
- Verstraeten, L., Den abt, R., Ghesquière, B., Jochmans, I. Current Insights into the Metabolome during Hypothermic Kidney Perfusion-A Scoping Review. J Clin Med. 12 (11), 3613(2023).
- Turkmen, K., et al. Apoptosis and Autophagy in Cold Preservation Ischemia. Transplantation. 91 (11), 1192(2011).
Reimpresiones y permisos
