Este estudio presenta un protocolo para evaluar los efectos de la curcumina en el comportamiento celular del retinoblastoma a través de la modulación de la vía Wnt/β-catenina y la expresión de miR-22.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de investigación
Regulación mediada por miR-22 de la señalización de Wnt/β-catenina por curcumina en retinoblastoma
* These authors contributed equally
En este artículo
Resumen
Resumen
El retinoblastoma (RB) es un tumor maligno intraocular común que afecta a bebés y niños, pero su etiología y patogénesis precisas aún no se comprenden por completo. La curcumina, un polifenol bioactivo, inhibe la progresión tumoral a través de la modulación mediada por microARN de la cascada de señalización Wnt / β-catenina. Este estudio tuvo como objetivo aclarar cómo la curcumina media sus efectos antitumorales en RB investigando su regulación de la expresión de miRNA-22 (miR-22) y explorando los mecanismos moleculares subyacentes. Dos modelos validados de retinoblastoma (SO-RB50/WERI-Rb-1) se trataron con curcumina a concentraciones variables. Para delinear la regulación de miR-22 de la señalización de Wnt / β-catenina, las células diana se transdujeron con un lentivirus imitador de miR-22 o un lentivirus de control no funcional. Se establecieron modelos tumorales de xenoinjerto en ratones utilizando células RB humanas para observar los efectos in vivo de la curcumina sobre el tamaño del tumor, la expresión de miR-22 y los niveles de proteína Wnt / β-catenina. La proliferación celular, la invasión y la apoptosis se evaluaron mediante el ensayo de tinción dual CCK-8, Transwell y Annexin V-APC-PI, respectivamente. Los niveles de miR-22 se cuantificaron mediante RT-PCR, y los perfiles de expresión de Wnt1 y β-catenina se determinaron mediante análisis de Western blot. El tratamiento con curcumina resultó en una disminución de la proliferación e invasividad en las células RB, al tiempo que mejoró la apoptosis y elevó la expresión de miR-22. La inhibición de miR-22 disminuyó los efectos de la curcumina sobre la vía de señalización Wnt / β-catenina. En estudios de xenoinjertos, la curcumina redujo significativamente el tamaño del tumor y mejoró la expresión de miR-22 dentro de los tumores, suprimiendo eficazmente la señalización de Wnt / β-catenina. Estos hallazgos demuestran que la curcumina inhibe la proliferación e invasividad de las células RB al tiempo que promueve la apoptosis, mediada principalmente por la regulación positiva de miR-22 y la posterior inhibición de la vía Wnt / β-catenina.
Introducción
El retinoblastoma (RB), una neoplasia maligna pediátrica con alta agresividad que surge en los tejidos de la retina, representa una amenaza sustancial para la salud, especialmente para los niños menores de cinco años. Las mutaciones genéticas, particularmente las que afectan al gen RB1, están estrechamente asociadas con el desarrollo de esta enfermedad1. Teniendo en cuenta la prevalencia significativa de retinoblastoma (RB) entre bebés y niños, junto con el hecho de que se informan aproximadamente 9000 casos nuevos anualmente, predominantemente en países de bajos ingresos y en desarrollo, es imperativo una comprensión integral de los mecanismos de la enfermedad para desarrollar estrategias terapéuticas efectivas y mejorar los resultados de los pacientes2. A lo largo de los años, la investigación sobre RB se ha centrado principalmente en las alteraciones genómicas, específicamente en la expresión de miRNA3. Ciertamente, miR-34a y miR-22 han surgido como actores vitales en la tumorigénesis de RB 4,5. Entre estos miRNAs, miR-22 ha demostrado su participación en la tumorigénesis en diferentes cánceres 6,7,8, influyendo en la proliferación, invasión y migración 6,9. Además, investigaciones anteriores han indicado una expresión reducida de miR-22 en líneas celulares RB de ratón y humanos, lo que destaca aún más su papel potencial en esta enfermedad10.
La curcumina, uno de los principales curcuminoides bioactivos en los rizomas de Curcuma longa, ha sido un ingrediente fundamental en la medicina tradicional y en las cocinas asiáticas11. Su rico perfil farmacológico, que abarca efectos antitumorales, antimicrobianos, antiinflamatorios, antioxidantes y neuroprotectores, ha atraído una atención significativa en la investigación biomédica 12,13,14. Numerosos estudios han explorado su papel antitumoral en RB, destacando su influencia en diferentes vías de señalización, incluidas NF-κB15, JAK / STAT16 y MRP117. En comparación con estas vías estudiadas anteriormente, el eje curcumina-miR-22/Wnt/β-catenina puede ofrecer un enfoque más específico y específico, mejorando potencialmente la eficacia terapéutica y reduciendo los efectos fuera del objetivo.
Estudios previos han sugerido que la curcumina logra efectos antitumorales mediante la modulación del eje de la vía de señalización TET1 / Wnt / β-catenina en células de carcinoma hepatocelular18 y cáncer de colon19. Sin embargo, aún se desconoce si la curcumina puede suprimir la progresión tumoral en las células RB al afectar la vía de señalización Wnt / β-catenina. Estudios recientes han reportado disminución de la expresión de miR-22 en células de retinoblastoma y carcinoma oral de células escamosas relacionado con alteraciones en la actividad de la vía de señalización Wnt/β-catenina20,21. Teniendo en cuenta la aplicabilidad práctica, la curcumina exhibe una actividad antitumoral efectiva dentro de un rango de concentración definido (10-40 μM in vitro)15,22 y puede administrarse in vivo con propiedades farmacocinéticas manejables, lo que facilita la investigación traslacional. Por lo tanto, este estudio tiene como objetivo establecer un modelo RB para investigar si la curcumina aumenta los niveles de miR-22 y, posteriormente, disminuye la actividad de señalización de Wnt / β-catenina, proporcionando una estrategia terapéutica potencialmente más eficiente y clínicamente relevante en comparación con los enfoques convencionales de modulación NF-κB, JAK / STAT o MRP1.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Protocolo
Todos los procedimientos que involucran animales fueron revisados y aprobados por el Comité de Ética y Bienestar Animal (AEWC) del Hospital Oftalmológico de Tianjin (Aprobación No. NKYY-DWLL-2023-054). Los reactivos y el equipo utilizado se enumeran en la Tabla de Materiales.
1. Cultivo celular
Las células de las líneas de retinoblastoma humano WERI-Rb-1 y SO-RB50 se cultivaron en medio Eagle modificado de Dulbecco con alto contenido de glucosa suplementado con 10% de suero fetal bovino y 1% de penicilina-estreptomicina. Las células se sembraron a una densidad adecuada en matraces de cultivo y se mantuvieron a 37 °C en una atmósfera humidificada que contenía %CO2. El medio se reemplazó cada 2-3 días y las células se pasaron al 70%-80% de confluencia utilizando tripsinización estándar.
2. Experimentos con animales
Se utilizaron un total de 48 ratones desnudos Balb/c libres de patógenos específicos (4 semanas de edad, 16-18 g). Los animales fueron alojados en jaulas estériles, ventiladas individualmente, bajo flujo de aire laminar con condiciones ambientales controladas de 26-28 °C y 40%-60% de humedad relativa. El alimento, el agua y la ropa de cama se esterilizaron antes de su uso. A los ratones se les permitió el libre acceso a alimentos y agua y se aclimataron durante una semana antes de los experimentos.
3. Agrupación y tratamiento de animales
Para la inoculación tumoral se utilizaron células WERI-Rb-1 y SO-RB50 transfectadas de manera estable con un imitador de miR-22 o una secuencia de control negativo. Las células en fase de crecimiento logarítmico se recolectaron, se resuspendieron en solución salina estéril tamponada con fosfato y se ajustaron a una densidad de 5 × 10⁷ células/ml. A cada ratón se le inyectó por vía subcutánea 0,1 ml de la suspensión en la extremidad anterior derecha. Los ratones se dividieron aleatoriamente en seis grupos (n = 6 por grupo): grupo modelo, grupo de curcumina, grupo mímico miR-22, grupo mímico miR-22 + grupo de curcumina, grupo control negativo miR-22 y grupo control negativo miR-22 + curcumina. En los grupos que recibieron curcumina, a los ratones se les administraron inyecciones intraperitoneales de 15 mg / kg de curcumina una vez al día comenzando inmediatamente después de la inoculación de células tumorales. Los grupos restantes recibieron volúmenes iguales de DMSO que control de vehículos.
4. Medición del peso y volumen del tumor
La tasa de captación tumoral fue de aproximadamente 80-90% en ratones desnudos xenoinjertados. El tamaño del tumor se midió semanalmente con un calibrador digital, con el diámetro más largo registrado como largo (L) y el diámetro más corto registrado como ancho (W). El volumen tumoral se calculó mediante la fórmula V = (L × W2)/2. Los ratones fueron monitoreados regularmente para determinar el crecimiento tumoral y el estado de salud, y se aplicaron criterios de valoración humanos si los tumores excedían los 1.500 mm3 o si los animales mostraban signos de angustia o pérdida de peso. Al final de la semana 4, los ratones fueron sacrificados por inhalación de CO2 seguida de luxación cervical para asegurar la muerte. Los tumores se diseccionaron y pesaron inmediatamente después de la extirpación.
5. Transfección de microARN
Para la transfección se utilizaron oligonucleótidos sintéticos, incluidos el imitador de miR-22, el control negativo, el anti-miR-22 (modificado con 20-metoxi), el control negativo anti-miR, los siRNA específicos de Wnt1 y el siRNA de control. Las células con una confluencia del 70% al 80% se sembraron en placas de 6 pocillos un día antes de la transfección. La transfección se realizó utilizando un reactivo a base de lípidos de acuerdo con las instrucciones del fabricante. Para cada pocillo, los ácidos nucleicos se diluyeron en medio libre de suero y se combinaron con el reactivo de transfección en la proporción recomendada para formar complejos, que se incubaron durante 15-20 min a temperatura ambiente antes de agregarse gota a gota a las células en medio completo. El volumen final por pocillo fue de 2 mL. Después de 6 h de incubación a 37 °C con 5% de CO2, el medio se reemplazó por medio completo fresco. Las células se mantuvieron durante 48 h antes de los ensayos posteriores. La eficiencia de la transfección se evaluó mediante PCR cuantitativa en tiempo real. Se utilizaron tres siRNAs diferentes dirigidos a Wnt1 (si-Wnt1-1: 5'-CCAAGAGTCTGCAACTGGTACTCGA-3'; si-Wnt1-2: 5'-CGAGAAACGGCGTTTATCTTCGCTA-3'; si-Wnt1-3: 5'-GCTTCCTCATGAACCTTCACAACAA-3') individualmente o como una mezcla equimolar para minimizar los efectos fuera del objetivo.
6. Ensayo de recuento de células Kit-8 (CCK-8)
Las células se sembraron en placas de 96 pocillos a una densidad de 5 × 10³ células por pocillo en 100 μL de medio completo y se dejaron adherir durante la noche. Después del tratamiento con las concentraciones indicadas de curcumina durante el tiempo especificado, se agregaron 10 μL de solución de trabajo CCK-8 directamente a cada pocillo. Los pocillos que contenían medio solo servían como controles en blanco. Las placas se incubaron a 37 °C con 5% de CO2 durante 4 h, después de lo cual se midió la absorbancia a 490 nm utilizando un lector de microplacas. La viabilidad celular se calculó como:
Viabilidad (%) = 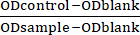 x 100
Se generaron curvas de dosis-respuesta y se determinó la concentración inhibitoria media máxima (IC50) de curcumina en consecuencia.
7. Ensayo Transwell
Para el ensayo de migración, las células se suspendieron en medio libre de suero y se sembraron en las cámaras superiores de los insertos Transwell (tamaño de poro 8 μm) a 3 × 10⁵ células en 200 μL por inserto. Las cámaras inferiores se llenaron con 600 μL de medio completo que contenía 10% de suero bovino fetal como quimioatrayente. Las placas se incubaron a 37 °C con 5% de CO2 durante 24 h. Después de la incubación, las células no migratorias en la superficie superior de la membrana se eliminaron suavemente con un hisopo de algodón estéril. Los insertos se enjuagaron dos veces con solución salina tamponada con fosfato, se fijaron en glutaraldehído al 5% a 4 °C durante 30 min, se enjuagaron nuevamente y se tiñeron con violeta cristal al 0,1% durante 30 min a temperatura ambiente. El exceso de tinte se eliminó lavándolo en PBS. Las membranas se dejaron secar al aire y las células migradas se visualizaron bajo un microscopio invertido con un aumento de 400×. Para la cuantificación, se tomaron imágenes de tres campos aleatorios por inserto y se calculó el número promedio de celdas.
8. Ensayo de anexina V-APC-PI
Las células de cada grupo se recolectaron, se lavaron dos veces con solución salina tamponada con fosfato (PBS) preenfriada y se centrifugaron a 300 × g durante 5 min a 4 °C. El sedimento se resuspendió en 300 μL de tampón de unión al 1× a una densidad de aproximadamente 1 × 10⁶ células/ml. Se agregó anexina V-APC (5 μL) y las muestras se incubaron durante 15 min a temperatura ambiente en la oscuridad. Inmediatamente antes de la citometría de flujo, se agregaron 5 μL de yoduro de propidio a 200 μL de la suspensión celular y se incubaron durante 5 min a temperatura ambiente. Las muestras se analizaron en un citómetro de flujo utilizando los canales apropiados (APC y PI), y los datos se procesaron con estrategias de compuerta estándar para distinguir las células vivas, apoptóticas tempranas, apoptóticas tardías y necróticas.
9. Perfiles qRT-PCR
El ARN total se extrajo mediante un método de fenol-cloroformo, y la concentración y pureza se determinaron mediante espectrofotometría ultravioleta. Para la transcripción inversa, se utilizó 1 μg de ARN total en una reacción de 20 μL con una mezcla maestra de transcripción inversa según el protocolo del fabricante. La PCR cuantitativa se realizó en reacciones de 20 μL que contenían 2 μL de ADNc, 10 μL de mezcla maestra SYBR Green y 0,4 μM de cada cebador. Las reacciones se ejecutaron en un sistema de PCR en tiempo real con el siguiente programa de ciclos: 95 °C durante 1 min, seguido de 40 ciclos de 95 °C durante 15 s y 63 °C durante 25 s, con adquisición de fluorescencia al final de cada ciclo. Se realizó un análisis de la curva de fusión de 55 °C a 95 °C para verificar la especificidad del producto. Cada muestra se analizó por triplicado y la expresión relativa se cuantificó mediante el método 2-ΔΔCt. U6 sirvió como gen de referencia para la cuantificación de microARN y se utilizó β-actina para la normalización del ARNm.
Las secuencias de cebadores fueron las siguientes: U6: 5'-CTCGCTTCGGCAGCACA-3' hacia adelante, 5'-AACGCTTCACGAATTTGCGT-3'; miR-22: 5'-GCCTGAAGCTGCCAGTTGA-3' hacia adelante, 5'-GTGCAGGGTCGAGGT-3'; Wnt1: 5'-CGATGGTGGGGTATTGTGAAC-3', 5'-CCGGATTTTGGCGTATCAGAC-3'; β-actin: 5'-AGTGTGACGTGGACATCCGCAAAG-3', 5'-ATCCACATCTGCTGGAAGGTGGAC-3'. Los datos de amplificación se procesaron utilizando el software del sistema. Todos los cebadores se obtuvieron de un proveedor comercial.
10. Western blot
Las proteínas se extrajeron de células o tejidos cultivados utilizando un tampón de lisis que contenía inhibidores de la proteasa, y las concentraciones de proteínas se determinaron mediante el método del ácido bicinconínico. Cantidades iguales de proteína (40 μg por carril) se separaron con SDS-PAGE al 10% a voltaje constante (80 V para el gel de apilamiento y 120 V para el gel de resolución) y se transfirieron a membranas de difluoruro de polivinilideno utilizando un sistema de transferencia húmeda a 100 V durante 90 min. Las membranas se bloquearon en leche descremada al 5 % preparada en solución salina tamponada con Tris con Tween-20 al 0,1 % (TBST) durante 1 h a temperatura ambiente. Los anticuerpos primarios contra Wnt1, β-catenina y β-actina se diluyeron 1:1000 en TBST que contenía leche descremada al 1% y se incubaron con las membranas durante la noche a 4 °C. Después de lavar tres veces con TBST (10 min cada una), las membranas se incubaron con un anticuerpo secundario conjugado con peroxidasa de rábano picante (dilución 1:5000) durante 1 h a temperatura ambiente. Después de otros tres lavados con TBST, se visualizaron bandas de proteínas utilizando un reactivo de detección de quimioluminiscencia mejorado y las señales se capturaron con un sistema de imágenes digitales. Las intensidades de banda se cuantificaron utilizando el software ImageJ.
11. Ensayo de luciferasa
Se construyó un plásmido reportero de tipo salvaje (Wnt1-WT) que contenía la 3′UTR de Wnt1 con sitios de unión miR-22 predichos y un reportero mutante (Wnt1-MUT) con sitios de unión interrumpidos. Las células de retinoblastoma humano se sembraron en placas de 24 pocillos a una densidad de 1 × 10⁵ células por pocillo y se cotransfectaron con plásmidos reporteros Wnt1-WT o Wnt1-MUT junto con un imitador de miR-22 o un control negativo utilizando un reactivo de transfección basado en lípidos. Para cada pocillo, se utilizaron 500 ng de plásmido reportero y 50 nM de miARN imitador o control. Después de 48 h de incubación a 37 °C con 5 % de CO2, las células se lisaron en 100 μL de tampón de lisis pasiva. Las actividades de luciferasa Firefly y Renilla se midieron secuencialmente utilizando un sistema de ensayo reportero de luciferasa dual de acuerdo con el protocolo del fabricante. La actividad de la luciferasa de luciérnaga se normalizó a la actividad de la luciferasa de Renilla para controlar la eficiencia de la transfección. Cada condición se probó en pocillos triplicados y se repitió en tres réplicas biológicas independientes.
12. Análisis estadístico
Todos los datos se presentan como media ± desviación estándar (DE) de al menos tres réplicas biológicas independientes. Los análisis estadísticos se realizaron utilizando software estadístico. Las comparaciones entre múltiples grupos se realizaron mediante análisis de varianza unidireccional (ANOVA) seguido de la prueba post hoc de Tukey. Un valor de p de <0,05 se consideró estadísticamente significativo.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Resultados
Efectos antiproliferativos y antiinvasivos dependientes de la dosis de la curcumina en las células de retinoblastoma humano, acompañados de la desactivación de la vía Wnt/β-catenina
Las células RB humanas se trataron con dosis variables de curcumina durante un período de 24 h. Los hallazgos revelaron una disminución dependiente de la dosis en la viabilidad celular y la invasión, junto con un aumento de la apoptosis. Específicamente, a medida que la concentración de curcumina aumentó de 10 a 50 μM, la ...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
La curcumina, un polifenol derivado de los rizomas de Curcuma longa, es conocida por sus propiedades antiinflamatorias, antiangiogénicas, antiproliferativas y antioxidantes23,24. Además, tiene propiedades antitumorales, particularmente su capacidad para inducir la apoptosis en células malignas25. Aunque investigaciones anteriores han enfatizado los efectos supresores del crecimiento de la curcumina en las ...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
Los autores no tienen conflictos de intereses que declarar.
Agradecimientos
Fundación Nacional de Ciencias Naturales de China (82271218); Fondo de Ciencias del Hospital Oftalmológico de Tianjin (Proyecto General ykyb1908).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Kit de tinción dual Annexin V-APC/PI | Solarbio | CA1020 | evaluar cuantitativamente la apoptosis en células RB mediante citometría de flujo |
| Kit de ensayo CCK-8 | Tiempo de beyo. | C0038 | Medir la absorbancia a 490 nm para evaluar la capacidad proliferativa celular |
| Incubadora de CO2 | Eppendorf | mantener condiciones óptimas de cultivo (37° C, 5% CO2 y humedad saturada) para la propagación de células RB | |
| Curcumina | Sigma | C1386 | Investigación de los efectos antitumorales de la curcumina en el retinoblastoma (RB) |
| Sustrato quimioluminiscente ECL | BIOSS | C05-07004 | visualizar bandas de proteínas en el análisis de Western blot |
| Suero fetal bovino (FBS) | VivaCell | C04001-500 C04002-500 | Cultivo celular |
| Citometría de flujo | Beckman Coulter | Galios | Analizar cuantitativamente la tasa de apoptosis de las células |
| ImageJ Software | Institutos Nacionales de Salud | Versión 6 | Análisis de banda Western blot, evaluar los niveles de expresión de proteínas |
| Microscopio invertido | Olimpo | CKX53 | observar y contar células invasoras a 400 veces; aumento en el ensayo Transwell |
| Lipofectamina 3000 | Invitrogen | L3000015 | Transfección celular |
| Lector de microplacas | Termo | K3 | Cuantificación del ensayo inmunoabsorbente ligado a enzimas (ELISA) |
| miR-22 imita al lentivirus | Biotecnología Hanheng | has-miR-22 | establecer una línea celular transfectada de forma estable para experimentos con animales |
| Sistema de PCR multiplex en tiempo real | Bio-Rad | CFX384 | realizar RT-PCR cuantitativa (qRT-PCR) para un análisis preciso de la expresión génica |
| Penicilina-Estreptomicina (PS) | Abbkine | BMC1030 | Añadido a los medios de cultivo celular para evitar la contaminación bacteriana |
| Kit de extracción de proteínas | Solarbio | BC3640-50T | Aislamiento de proteínas a partir de muestras celulares y tisulares |
| Vector psiCHECK-2 | promega | JR20110328 | construir plásmidos reporteros Wnt1-WT (tipo salvaje) y Wnt1-MUT (mutante) para investigar la interacción entre miR-22 y Wnt1 3'UTR |
| Membrana de PVDF | Merck | ISEQ00010 | transferencia de proteínas |
| Anticuerpo secundario IgG de conejo | Tecnologías de señalización celular | 14708 | Detección de Western blot mediante la unión al anticuerpo primario |
| Software estadístico SPSS | IBM | SPSS 20.0 | realizar análisis estadísticos de los datos experimentales |
| Kit SuperScript III Síntesis de primera hebra SuperMix | Invitrogen | 11752-050 | transcripción inversa de ARN en ADNc para su posterior análisis por RT-PCR |
| SYBR Premix Ex Taq II Kit | Biografía de TaKaRa | RR820A | Para que la RT-PCR detecte cuantitativamente la expresión de Wnt1, β-actina y otros genes diana |
| Reactivo TRIzol | Invitrogen | 12183-555 | Extracción de ARN de muestras celulares y de tejidos |
| Espectrofotómetro UV | Beckman | DU800 | determinar la concentración y pureza de las muestras de ARN |
| Anticuerpo Wnt1 | Abcam | AB15251 | Análisis de Western blot para detectar la expresión de la proteína Wnt1 |
| Anticuerpo β-actina | Abcam | ab8227 | utilizado como referencia interna para normalizar la carga de proteínas en el análisis de Western blot |
| Anticuerpo β-catenina | Tecnologías de señalización celular | 37447 | Análisis de Western blot para detectar la expresión de la proteína β-catenina |
Referencias
- Dimaras, H., et al. Retinoblastoma. Nat Rev Dis Primers. 1, 15021(2015).
- Pandey, A. N. Retinoblastoma: An overview. Saudi J Ophthalmol. 28 (4), 310-315 (2014).
- Rushlow, D., et al. Detection of mosaic RB1 mutations in families with retinoblastoma. Hum Mutat. 30 (5), 842-851 (2009).
- Yin, W., Gao, F., Zhang, S. MicroRNA-34a inhibits the proliferation and promotes the chemosensitivity of retinoblastoma cells by downregulating Notch1 expression. Mol Med Rep. 22 (2), 1613-1620 (2020).
- Liu, M., Wang, S. M., Jiang, Z. X., Lauren, H., Tao, L. M. Effects of miR-22 on viability, migration, invasion and apoptosis in retinoblastoma Y79 cells by targeting high-mobility group box 1. Int J Ophthalmol. 11 (10), 1600-1607 (2018).
- Guo, S., et al. miR-22 inhibits osteosarcoma cell proliferation and migration by targeting HMGB1 and inhibiting HMGB1-mediated autophagy. Tumour Biol. 35 (7), 7025-7034 (2014).
- Poliseno, L., et al. Identification of the miR-106b~25 microRNA cluster as a proto-oncogenic PTEN-targeting intron that cooperates with its host gene MCM7 in transformation. Sci Signal. 3 (117), ra29(2010).
- Zhang, J., et al. microRNA-22, downregulated in hepatocellular carcinoma and correlated with prognosis, suppresses cell proliferation and tumourigenicity. Br J Cancer. 103 (8), 1215-1220 (2010).
- Chen, H., et al. miR-22 inhibits the proliferation, motility, and invasion of human glioblastoma cells by directly targeting SIRT1. Tumour Biol. 37 (5), 6761-6768 (2016).
- Martin, J., et al. Differentially expressed miRNAs in retinoblastoma. Gene. 512 (2), 294-299 (2013).
- Hewlings, S. J., Kalman, D. S. Curcumin: A review of its effects on human health. Foods. 6 (10), 92(2017).
- He, Y., et al. Curcumin, inflammation, and chronic diseases: how are they linked. Molecules. 20 (5), 9183-9213 (2015).
- Anand, P., Sundaram, C., Jhurani, S., Kunnumakkara, A. B., Aggarwal, B. B. Curcumin and cancer: an "old-age" disease with an "age-old" solution. Cancer Lett. 267 (1), 133-164 (2008).
- Khadrawy, Y. A., Hosny, E. N., Eldein Mohamed, H. S. Assessment of the neuroprotective effect of green synthesized iron oxide nanoparticles capped with curcumin against a rat model of Parkinson's disease. Iran J Basic Med Sci. 27 (1), 81-89 (2024).
- Mu, Y. T., et al. Curcumin suppressed proliferation and migration of human retinoblastoma cells through modulating NF-κB pathway. Int Ophthalmol. 40 (10), 2435-2440 (2020).
- Li, Y., Sun, W., Han, N., Zou, Y., Yin, D. Curcumin inhibits proliferation, migration, invasion and promotes apoptosis of retinoblastoma cell lines through modulation of miR-99a and JAK/STAT pathway. BMC Cancer. 18 (1), 1230(2018).
- Sreenivasan, S., Ravichandran, S., Vetrivel, U., Krishnakumar, S. In vitro and in silico studies on inhibitory effects of curcumin on multi drug resistance associated protein (MRP1) in retinoblastoma cells. Bioinformation. 8 (1), 13-19 (2012).
- Zhu, J., Qu, J., Fan, Y., Zhang, R., Wang, X. Curcumin inhibits invasion and epithelial-mesenchymal transition in hepatocellular carcinoma cells by regulating TET1/Wnt/β-catenin signal axis. Bull Exp Biol Med. 173 (6), 770-774 (2022).
- Lu, Y., Zhang, R., Zhang, X., Zhang, B., Yao, Q. Curcumin may reverse 5-fluorouracil resistance on colonic cancer cells by regulating TET1-NKD-Wnt signal pathway to inhibit the EMT progress. Biomed Pharmacother. 129, 110381(2020).
- Sreenivasan, S., Thirumalai, K., Danda, R., Krishnakumar, S. Effect of curcumin on miRNA expression in human Y79 retinoblastoma cells. Curr Eye Res. 37 (5), 421-428 (2012).
- Yuan, S., et al. miR-22 promotes stem cell traits via activating Wnt/β-catenin signaling in cutaneous squamous cell carcinoma. Oncogene. 40 (39), 5799-5813 (2021).
- Sreenivasan, S., Thirumalai, K., Krishnakumar, S. Expression profile of genes regulated by curcumin in Y79 retinoblastoma cells. Nutr Cancer. 64 (4), 607-616 (2012).
- Park, W., Amin, A. R., Chen, Z. G., Shin, D. M. New perspectives of curcumin in cancer prevention. Cancer Prev Res (Phila). 6 (5), 387-400 (2013).
- Gupta, S. C., Patchva, S., Aggarwal, B. B. Therapeutic roles of curcumin: Lessons learned from clinical trials. AAPS J. 15 (1), 195-218 (2013).
- Reuter, S., Eifes, S., Dicato, M., Aggarwal, B. B., Diederich, M. Modulation of anti-apoptotic and survival pathways by curcumin as a strategy to induce apoptosis in cancer cells. Biochem Pharmacol. 76 (11), 1340-1351 (2008).
- Yu, X., et al. Curcumin exerts antitumor effects in retinoblastoma cells by regulating the JNK and p38 MAPK pathways. Int J Mol Med. 38 (3), 861-868 (2016).
- Sreenivasan, S., Krishnakumar, S. Synergistic effect of curcumin in combination with anticancer agents in human retinoblastoma cancer cell lines. Curr Eye Res. 40 (11), 1153-1165 (2015).
- Jiao, D. M., et al. Exploration of inhibitory mechanisms of curcumin in lung cancer metastasis using a miRNA-transcription factor-target gene network. PLoS One. 12 (2), e0172470(2017).
- Lu, Y., et al. Curcumin increases the sensitivity of Paclitaxel-resistant NSCLC cells to Paclitaxel through microRNA-30c-mediated MTA1 reduction. Tumour Biol. 39 (4), 1010428317698353(2017).
- Suresh, R., Ali, S., Ahmad, A., Philip, P. A., Sarkar, F. H. The role of cancer stem cells in recurrent and drug-resistant lung cancer. Adv Exp Med Biol. 890, 57-74 (2016).
- Yang, Z., et al. Retinoblastoma-binding protein 5 regulates H3K4 methylation modification to inhibit the proliferation of melanoma cells by inactivating the Wnt/β-catenin and epithelial-mesenchymal transition pathways. J Oncol. 2023, 5093941(2023).
- Bai, S., Shao, J., Bi, C., Li, F. β-asarone attenuates the proliferation, migration and enhances apoptosis of retinoblastoma through Wnt/β-catenin signaling pathway. Int Ophthalmol. 43 (5), 1687-1699 (2023).
- Yang, M., Li, Y., Wei, W. MicroRNA-188-5p promotes epithelial-mesenchymal transition by targeting ID4 through Wnt/β-catenin signaling in retinoblastoma. Onco Targets Ther. 12, 10251-10262 (2019).
- Shang, S., Hua, F., Hu, Z. W. The regulation of β-catenin activity and function in cancer: Therapeutic opportunities. Oncotarget. 8 (20), 33972-33989 (2017).
- Lu, Y., Wei, C., Xi, Z. Curcumin suppresses proliferation and invasion in non-small cell lung cancer by modulation of MTA1-mediated Wnt/β-catenin pathway. In Vitro Cell Dev Biol Anim. 50 (9), 840-850 (2014).
- Hao, J., et al. Curcumin suppresses colorectal tumorigenesis via the Wnt/β-catenin signaling pathway by downregulating Axin2. Oncol Lett. 21 (3), 186(2021).
- Shao, J., et al. LincROR mediates the suppressive effects of curcumin on hepatocellular carcinoma through inactivating Wnt/β-catenin signaling. Front Pharmacol. 11, 847(2020).
- Gao, M., Cui, Z., Zhao, D., Zhang, S., Cai, Q. MicroRNA-9 inhibits proliferation and progression in retinoblastoma cells by targeting PTEN. Genes Genomics. 43 (9), 1023-1033 (2021).
- Xu, L., Zhu, S., Tang, A., Liu, W. LncRNA MBLN1-AS1 inhibits the progression of retinoblastoma through targeting miR-338-5p-Wnt/β-catenin signaling pathway. Inflamm Res. 70 (2), 217-227 (2021).
- Fu, C., Wang, S., Jin, L., Zhang, M., Li, M. CircTET1 inhibits retinoblastoma progression via targeting miR-492 and miR-494-3p through Wnt/β-catenin signaling pathway. Curr Eye Res. 46 (7), 978-987 (2021).
- Bi, L. L., Han, F., Zhang, X. M., Li, Y. Y. LncRNA MT1JP acts as a tumor inhibitor via reciprocally regulating Wnt/β-catenin pathway in retinoblastoma. Eur Rev Med Pharmacol Sci. 22 (13), 4204-4214 (2018).
- Lyv, X., et al. Long noncoding RNA ZFPM2-AS1 knockdown restrains the development of retinoblastoma by modulating the MicroRNA-515/HOXA1/Wnt/β-catenin axis. Invest Ophthalmol Vis Sci. 61 (6), 41(2020).
- He, H., Qin, M. Long non-coding RNA LEF1-AS1 is involved in the progression of retinoblastoma through regulating the Wnt/β-catenin pathway. Clin Exp Pharmacol Physiol. 47 (5), 886-891 (2020).
- Yu, F., Pang, G., Zhao, G. RETRACTED: ANRIL acts as onco-lncRNA by regulation of microRNA-24/c-Myc, MEK/ERK and Wnt/β-catenin pathway in retinoblastoma. Int J Biol Macromol. 128, 583-592 (2019).
- Cruickshank, B. M., et al. LncRNA PART1 promotes proliferation and migration, is associated with cancer stem cells, and alters the miRNA landscape in triple-negative breast cancer. Cancers (Basel). 13 (11), 2644(2021).
- Rysz, J., Konecki, T., Franczyk, B., Ławiński, J., Gluba-Brzózka, A. The role of long noncoding RNA (lncRNAs) biomarkers in renal cell carcinoma. Int J Mol Sci. 24 (1), 643(2022).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.