Este protocolo describe el uso de un sistema miniaturizado de bicapa lipídica planar de Montal–Mueller con amplificación integrada para realizar grabaciones estables de un solo canal. El método se demuestra reconstituyendo un canal K2P sintético purificado para validar el rendimiento del sistema.
Artículo de método
Electrofisiología de un solo canal utilizando un sistema miniaturizado de bicapa lipídica planar Montal-Mueller para registrar un canal K2P sintético
En este artículo
Resumen
Resumen
La reconstrucción funcional de canales iónicos en bicapas lipídicas planas proporciona una estrategia para investigar la actividad del canal a nivel de molécula individual. Sin embargo, los sistemas convencionales de bicapa de Montal–Mueller generalmente requieren configuraciones experimentales voluminosas, ensamblaje manual de cámaras y volúmenes de registro relativamente grandes, lo que incrementa el consumo de reactivos y puede introducir fuentes adicionales de ruido eléctrico debido a conexiones alargadas y etapas externas de preamplificación. Aquí presentamos una plataforma de bicapa miniaturizada y lista para usar (BLMchipMM) integrada con un amplificador compacto que permite grabaciones estables de canales individuales con menor consumo de reactivos y una operación simplificada. Este protocolo describe el uso de este sistema para realizar mediciones de electrofisiología de canal individual. Mediante este sistema, reconstruimos un canal sintético K2P (ancTREK1) y lo utilizamos como proteína de prueba de principio para validar la reconstrucción y la grabación de canal individual. Las grabaciones de canal único muestran una relación corriente–voltaje en soluciones simétricas de K+ sin Mg2+, con valores de conductancia consistentes con los reportados para los canales TREK1. La reconstrucción exitosa de este canal similar a K2P demuestra la utilidad de este sistema para el análisis de canales individuales en membranas artificiales.
Introducción
La reconstrucción de canales iónicos en membranas bimoleculares lipídicas artificiales, también conocidas como membranas lipídicas negras (BLM), es una de las técnicas establecidas para realizar la caracterización electrofisiológica de canales iónicos a nivel de molécula individual1. Las ventajas de las BLM provienen de su estructura. De hecho, se crea una bicapa lipídica planar (PLB) dentro de un poro en una superficie no polar, separando dos soluciones líquidas. Así, al imitar una membrana biológica, permite registrar la actividad de los canales iónicos en condiciones altamente controladas, incluyendo la composición lipídica de la membrana y las concentraciones de electrolitos o compuestos químicos, mientras permanece accesible desde ambos lados. Esta accesibilidad también permite insertar directamente los canales iónicos, por ejemplo, a partir de una solución micelar o mediante fusión inducida por liposomas2,3.
El primer sistema de membrana artificial descrito fue creado mediante la técnica de pintado4, en la que una gota de lípidos disueltos en un disolvente orgánico no volátil se aplica sobre una pequeña abertura con un pincel. La adición de una solución acuosa a ambos lados de la abertura conduce entonces a la formación espontánea de una bicapa lipídica. Sin embargo, una desventaja importante de este método es la retención de trazas de disolvente, lo que puede afectar las propiedades de la membrana. Para reducir la cantidad de disolvente orgánico residual en las bicapas lipídicas, se desarrolló el método de plegado5, que permite la formación de membranas lipídicas bimoleculares (BLM) «libres de disolvente». En este enfoque, una solución lipídica en un disolvente volátil se extiende sobre la superficie del agua para formar dos monocapas, y al elevar gradualmente el nivel de la fase acuosa por encima de la abertura, estas monocapas lipídicas se pliegan sobre la abertura para formar una bicapa. No obstante, aunque la BLM resultante se define como libre de disolvente, la formación exitosa de la bicapa requiere un pretratamiento de la abertura con una fina capa de disolvente no volátil. El elemento fundamental necesario para estos experimentos consiste en una cámara de registro con dos compartimentos acuosos (generalmente denominados cis y trans) separados por un septo lipofílico con una pequeña abertura (de 50 a 250 µm de diámetro) (Figura 1). Se insertan electrodos de cloruro de plata/plata (Ag/AgCl) en cada compartimento. Al sumergirse en la solución electrolítica, estos electrodos establecen la conexión electroquímica entre la bicapa lipídica y el equipo de registro. Este último consiste en un amplificador de bloqueo de voltaje, que permite un control preciso del potencial transmembranal y la medición simultánea de las corrientes iónicas que atraviesan las proteínas formadoras de poros incrustadas.
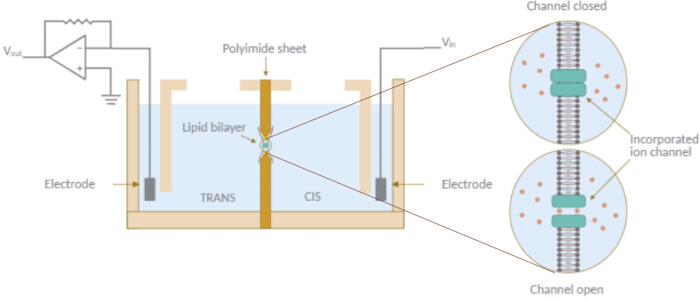
Figura 1: Esquema del montaje para electrofisiología en bicapa lipídica planar (PLB). Un esquema de los componentes esenciales necesarios para experimentos con PLB. La cámara de registro consta de dos compartimentos acuosos (cis y trans) separados por un septo lipofílico que contiene una abertura donde se forma una bicapa lipídica. Electrodos de cloruro de plata/plata (Ag/AgCl) están sumergidos en la solución electrolítica de cada compartimento. Un electrodo aplica estímulos de voltaje (por ejemplo, ondas sinusoidales, cuadradas o triangulares), mientras que el otro, conectado a tierra, se une a un convertidor de corriente a voltaje que transforma la corriente iónica en una señal de voltaje proporcional. La señal se amplifica, opcionalmente se filtra, se digitaliza y se registra para monitoreo y análisis en tiempo real. Haga clic aquí para ver una versión más grande de esta figura.
También se han establecido otros métodos para formar BLMs. Entre ellos, un enfoque común consiste en crear bicapas lipídicas suspendidas en la punta de una pipeta para registro de parches. Por consiguiente, el método de inmersión de la punta6 permite la formación de una bicapa lipídica libre de solvente suspendida en la abertura de una micropipeta de vidrio con un diámetro de ~4 µm mediante inmersiones repetidas de la punta a través de una monocapa lipídica en la interfase aire–agua, capturando así una monocapa individual durante cada paso. La técnica de registro de parches también se ha utilizado para mediciones de canales individuales en bicapas lipídicas. Por ejemplo, en el método de perforación7, se emplea una pipeta de vidrio con un diámetro entre 10 y 80 µm para sellar una membrana grande originalmente pintada sobre una abertura en una cámara de registro. Alternativamente, el método de liposoma-parche implica el uso de una vesícula preformada de tamaño nano a micro como BLM libre de solvente8,9. En particular, se han utilizado ampliamente vesículas unilamelares gigantes para grabaciones de canales individuales mediante diferentes configuraciones de registro de parches, incluyendo modos de parche unido a célula y parche exciso10,11.
También han surgido varias plataformas para la formación paralela y automatizada de múltiples bicapas. Uno de estos enfoques es la técnica de bicapa de interfaz entre gotas (DIB, por sus siglas en inglés)12, en la cual se colocan gotas acuosas en una mezcla de lípidos y disolvente. En este método, las monocapas lipídicas se ensamblan espontáneamente alrededor de las gotas, y la formación de la bicapa ocurre cuando dos gotas entran en contacto. En algunos montajes, las DIB pueden formarse sobre hidrogeles para mejorar la estabilidad de la membrana13. Un enfoque alternativo basado en la formación de DIB en la punta de una pipeta de vidrio es el método de bicapa de burbujas en contacto (CBB, por sus siglas en inglés)14, en el que se introducen burbujas acuosas en una fase oleosa mediante dos micropipetas. Como en el enfoque DIB, una bicapa lipídica se forma espontáneamente cuando dos burbujas recubiertas de lípidos entran en contacto. Otra plataforma la representan los sistemas de BLM en arreglo, que consisten en matrices de poros bien definidos a escala micro- a nanométrica dispuestos en un patrón de cuadrícula. En estos sistemas, las bicapas lipídicas suspendidas pueden formarse manualmente —mediante técnicas de pintado o plegado, o mediante la ruptura de vesículas liposomales15,16,17— o automáticamente mediante la inyección secuencial de soluciones de lípidos y tampón cuando se acoplan con estructuras de canales microfluídicos18,19.
Aunque se han desarrollado muchos métodos para formar bicapas lipídicas libres de disolvente (BLM), en este trabajo nos centramos en el método de plegado implementado dentro de una plataforma miniaturizada e integrada para investigar el comportamiento de canales individuales de proteínas de membrana incrustadas en una bicapa lipídica artificial. Los experimentos se realizaron utilizando el sistema Elements, que consta de dos componentes: el lector de nanoporos Elements (amplificador eNPR) y el BLMchipMM (Figura 2A y Figura 2B). El primero es un amplificador compacto de bajo ruido para voltaje-clamp que simplifica el espacio de trabajo al constituir una unidad completa e independiente, eliminando la necesidad de dispositivos externos adicionales. El BLMchipMM es un sistema preensamblado y miniaturizado diseñado para la técnica Montal–Mueller y sirve como interfaz experimental. Consiste en una cámara de registro transparente de polimetilmetacrilato (PMMA) integrada con una placa de circuito impreso (PCB), que incluye dos conectores diseñados para alojar hilos de Ag/AgCl que actúan como electrodos para la conexión directa al amplificador. La estructura principal de la cámara consta de un septo de poliimida sellado entre dos componentes transparentes de PMMA. El septo tiene un grosor de 50 µm, excepto en una pequeña región central (3,78 mm2), donde el grosor se reduce a 25 µm para facilitar la formación de la bicapa. En el centro de esta región más delgada, se crea una abertura cónica mediante perforación láser, lo que mejora la estabilidad mecánica de la bicapa lipídica20,21. Existen disponibles cuatro diámetros de abertura (50, 75, 100 y 140 µm), lo que permite ajustar la capacitancia de la membrana (Tabla 1). Cada componente de PMMA presenta una cavidad en forma de C con un volumen de 110 µL, formando dos compartimentos fluidos a ambos lados del septo de poliimida para contener la solución electrolítica. Dos canales fluidos inclinados están perforados en cada bloque de PMMA en lados opuestos: un canal se utiliza para insertar el electrodo de Ag/AgCl, mientras que el otro permite ajustar manualmente el nivel del tampón dentro del depósito mediante pipeteo.
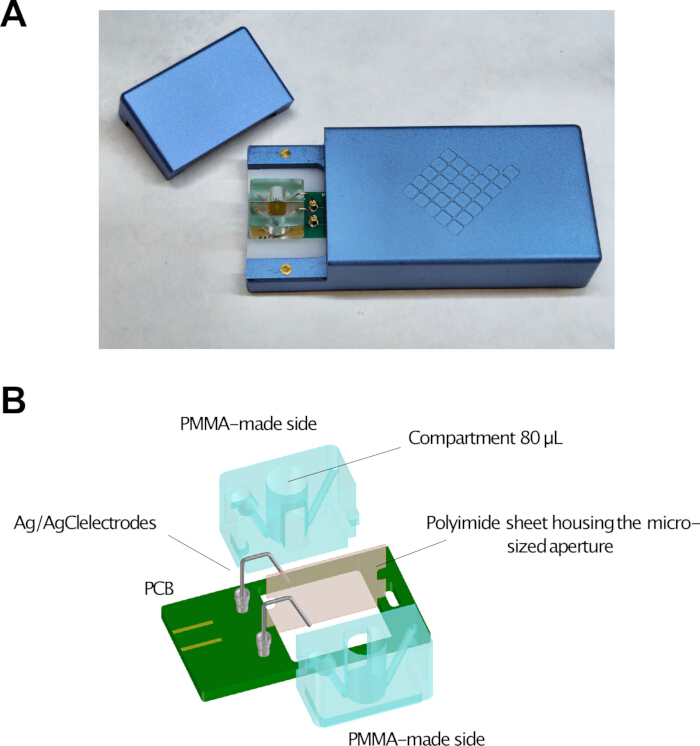
Figura 2: Sistema integrado de lector de nanoporos Elements y BLMchipMM. (A) Fotografía que muestra el BLMchipMM insertado en la ranura dedicada del amplificador lector de nanoporos Elements (eNPR). (B) Representación esquemática de los componentes del BLMchipMM, incluyendo la cámara de registro de metacrilato de polimetilo (PMMA), el septo de poliimida que contiene la abertura de tamaño micrométrico y la placa de circuito impreso (PCB) con conectores para electrodos de Ag/AgCl y una ranura para la alineación de la cámara. Haga clic aquí para ver una versión más grande de esta figura.
| Diámetro del orificio (µm) | 50 | 75 | 100 | 140 |
| Espesor del orificio (µm) | 25 | 25 | 25 | 25 |
| Capacitancia típica de la membrana (pF) | 20–40 | 40–60 | 60–90 | 90–140 |
Tabla 1: Características de los formatos de apertura disponibles del BLMchipMM. Diámetro del orificio, espesor del septo en la región de la apertura y valores típicos de capacitancia de membrana para dispositivos BLMchipMM con aperturas de 50, 75, 100 y 140 µm. Los valores de capacitancia de membrana se muestran para bicapas formadas a partir de lípidos de 1,2-diphytanoyl-sn-glycero-3-phosphocholine.
Por lo general, las cámaras de registro utilizadas en laboratorios son unidades caseras o dispositivos disponibles comercialmente. En el primer caso, la construcción del sistema implica ensamblar varios componentes y desarrollar un método confiable para crear la abertura en el septo, lo que puede limitar la accesibilidad para muchos laboratorios. Incluso cuando se utilizan dispositivos comerciales, a menudo se requiere la integración manual de múltiples componentes antes de cada experimento. En contraste, el BLMchipMM viene preensamblado y no requiere desmontaje entre experimentos para procedimientos rutinarios de limpieza. La misma unidad puede lavarse y reutilizarse en múltiples experimentos sin comprometer la calidad de la formación de la membrana, siempre que los disolventes empleados sean compatibles con los materiales del dispositivo. Esto reduce la variabilidad dependiente del usuario y minimiza el riesgo de fugas asociado con elementos de sellado manuales. El uso de electrodos externos de alambre de plata, reemplazables y susceptibles de reacondicionamiento, prolonga aún más la vida útil del sistema, especialmente bajo condiciones experimentales que aceleran el consumo del electrodo.
Además, los dispositivos caseros suelen tener volúmenes grandes de compartimentos, lo que aumenta la cantidad de componentes biológicos y químicos necesarios para los experimentos. En contraste, la miniaturización del BLMchipMM permite reducir al mínimo los volúmenes experimentales, disminuyendo así significativamente el consumo de reactivos, proteínas y otros compuestos. Esto es particularmente ventajoso al trabajar con proteínas de membrana difíciles de expresar o de bajo rendimiento, o cuando el alto costo de la síntesis de compuestos de prueba incrementa el costo total de los experimentos. Es importante destacar que el BLMchipMM permite la formación de bicapas con contenido mínimo de solvente y soporta configuraciones de membrana asimétricas, en las que cada hojuela puede estar compuesta por diferentes especies lipídicas5,22, facilitando el estudio de la función de las proteínas de membrana bajo condiciones controladas.
Tradicionalmente, las mediciones de corriente se realizan utilizando amplificadores diseñados para experimentos de patch-clamp, que a menudo requieren conexión a un digitizador separado para la adquisición de datos y el control mediante interfaces gráficas. Estos sistemas no solo son voluminosos y costosos, sino que también frecuentemente implican procedimientos de configuración poco intuitivos para usuarios no expertos. Además, debido al tamaño de la cámara de registro y al diseño de los amplificadores estándar, que normalmente carecen de blindaje integrado para proteger la entrada del cabezal frente a interferencias electrostáticas, suele ser necesario utilizar una jaula de Faraday externa. La calidad y la conexión a tierra de dicha jaula pueden afectar significativamente el rendimiento del sistema en cuanto a ruido. El BLMchipMM, cuando se utiliza con un amplificador integrado compacto, simplifica esta configuración al reducir la necesidad de componentes externos. La digitalización de la señal ocurre dentro del dispositivo, y la carcasa del sistema proporciona un blindaje que disminuye la susceptibilidad a las interferencias electromagnéticas ambientales.
Para demostrar la aplicabilidad de esta plataforma, se utilizó el canal tipo K2P ancTREK1, un miembro ancestral derivado computacionalmente de la subfamilia TREK (Figura Suplementaria 1), como proteína de prueba para validar la reconstrucción exitosa y el registro de canales individuales. Los canales K2P forman canales de fuga de potasio diméricos que regulan el potencial de membrana en reposo y la excitabilidad celular, siendo los canales TREK una subfamilia bien caracterizada.
Protocolo
Este estudio no involucró participantes humanos, materiales derivados de humanos ni sujetos animales. Por consiguiente, no se requirió aprobación ética de acuerdo con las directrices institucionales y nacionales.
1. Preparar el equipo de electrofisiología
- Calibración del instrumento
Aunque no se requiere una calibración formal porque el sistema viene configurado de fábrica, verifique el funcionamiento adecuado del sistema antes de la formación de la membrana.- Mida la resistencia de entrada en condiciones de circuito abierto (es decir, sin insertar el BLMchipMM). La resistencia medida debe ser ≥1 TΩ, lo que confirma la integridad adecuada de la entrada del amplificador.
- Verifique la respuesta del sistema utilizando una celda modelo que contenga una resistencia de 1 GΩ. La resistencia medida debe estar dentro de ±30% de 1 GΩ, lo cual es consistente con la tolerancia de la resistencia integrada.
- Mida el ruido de fondo en condiciones de circuito abierto a voltaje constante (0 mV). El ruido RMS debe ser ≤300 fA a una frecuencia de muestreo de 10 kHz y un ancho de banda de 5 kHz, lo que confirma un rendimiento del sistema de bajo ruido.
- Preparar los electrodos de Ag/AgCl
- Para el primer uso, enjuague los alambres de plata con etanol y agua doblemente destilada.
- Para alambres previamente utilizados, use papel de lija de grano extrafino para eliminar la capa antigua de Ag/AgCl de la superficie del alambre hasta que la superficie aparezca como plata brillante uniforme con un lustre metálico limpio y sin residuos visibles. Luego enjuague con etanol y agua doblemente destilada.
- Clorine la parte terminal de los alambres de plata sumergiéndolos en hipoclorito de sodio al 1%–5% (NaOCl) (Figura 3A) hasta que adquieran un color gris claro, típicamente durante 15–30 min. Monitoree los alambres clorados a lo largo del tiempo para detectar degradación durante el uso, que se manifiesta como un cambio de color, una deriva en la corriente de fondo o ambos.
NOTA: La cloración puede realizarse usando lejía doméstica común (1%–5% NaOCl).
ADVERTENCIA: No clorine los alambres a lo largo de toda su longitud. Deje sin clorinar la parte terminal que se inserta en el conector de la PCB para asegurar una conexión eléctrica adecuada.
ADVERTENCIA: Los conectores en la PCB están diseñados para alambres de plata de 0,5 mm de diámetro. Otros diámetros podrían no encajar correctamente o podrían provocar conexiones inestables.
- Ensamblar el BLMchipMM
- Inserte la parte terminal sin clorinar de los dos alambres de plata en los conectores de la PCB. Use pinzas si es necesario para posicionarlos correctamente (Figura 3B).
- Coloque los extremos clorinados de los alambres en los canales fluidicos perforados en el componente de PMMA (Figura 3C).
- Gire suavemente el BLMchipMM y colóquelo sobre la PCB ajustando el diente inferior de la cámara de grabación de PMMA en la ranura correspondiente (Figura 3D).
- Verifique la posición de los alambres y asegúrese de que lleguen hasta el final de los canales fluidicos. Si es necesario, empuje suavemente los alambres hasta que sus extremos aparezcan en la parte inferior de los compartimentos (Figura 3E).
ADVERTENCIA: Coloque los alambres lo más cerca posible del componente de PMMA. Una curvatura excesiva podría provocar contacto con la tapa del amplificador, causando un cortocircuito y saturación de la señal.
- Preparar los lípidos y la solución de registro
- Prepare 100 µL de una solución de hexadecano al 1% (v/v) en n-hexano al 100% para pretratar la abertura del septo. Almacene esta solución a −20°C durante hasta una semana.
- Resuspenda los lípidos de 1,2-difitanoil-sn-glicerol-3-fosfocolina (DPhPC) en n-pentano al 100% hasta una concentración final de 15 mg/mL. Almacene esta solución a −20°C durante hasta 24 h.
- Prepare la solución electrolítica de registro a temperatura ambiente (TA; 20°C–25°C) mezclando 3 mL de una solución stock de KCl 1 M con 150 µL de una solución stock de ácido 4-(2-hidroxietil)-1-piperazinaetanosulfónico 1 M (pH 7,4 ajustado con KOH usando un pH-metro). Añada agua doblemente destilada para llevar el volumen final a 15 mL. Almacene la solución a 4°C durante hasta una semana (Tabla 2).
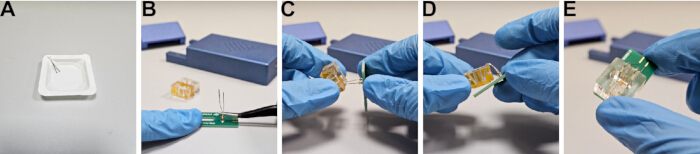
Figura 3: Ensamblaje del dispositivo BLMchipMM. (A) Cloración de los alambres de Ag mediante inmersión en lejía. (B) Inserción de los alambres de Ag en los conectores de la PCB. (C) Colocación de los alambres de Ag en los canales microfluídicos. (D) Colocación de la cámara de registro sobre la PCB. (E) Verificación de la posición correcta de los electrodos dentro de los canales fluídicos. Haga clic aquí para ver una versión más grande de esta figura.
| Reactivo | Concentración final | Volumen |
| Agua doblemente destilada | — | Añadir hasta 15 mL |
| Cloruro de potasio (KCl) (1 M) | 200 mM | 3 mL |
| HEPES pH 7.4 (KOH) (1 M) | 10 mM | 150 µL |
Tabla 2: Solución de registro de electrolitos. Composición de la solución de electrolitos utilizada para las grabaciones de PLB, que incluye concentraciones de reactivos y volúmenes de preparación. El volumen final se ajusta a 15 mL con agua doblemente destilada. La solución de registro debe filtrarse utilizando un filtro de jeringa de 0,2 µm antes de su uso.
NOTA: Filtre la solución de registro utilizando un filtro de jeringa de 0,2 µm antes de usarla. Los lípidos DPhPC pueden suministrarse como polvo seco o disueltos en cloroformo. Almacene ambas formas a −20 °C en viales de vidrio sellados bajo gas inerte para prevenir la oxidación. Permita que el polvo seco alcance el equilibrio a temperatura ambiente antes de abrirlo. Prepare soluciones frescas a partir del polvo seco y úselas dentro de las 24 h. Si utiliza stocks en cloroformo, evapore completamente el solvente bajo nitrógeno antes de la resuspensión, ya que el cloroformo residual puede desestabilizar la membrana.
2. Formar la BLP mediante el método de Montal-Mueller
Los siguientes pasos describen la formación de membranas artificiales utilizando el método de plegamiento, también conocido como la técnica de Montal–Mueller5 (Figura 4). Este enfoque implica tratar previamente la abertura del septo con una capa delgada de hexadecano al 1% (v/v) en n-hexano, depositar una solución lipídica para formar monocapas en la interfase aire–agua, y plegar las monocapas sobre la abertura mientras el nivel de la solución electrolítica se eleva secuencialmente en los compartimentos de la cámara.
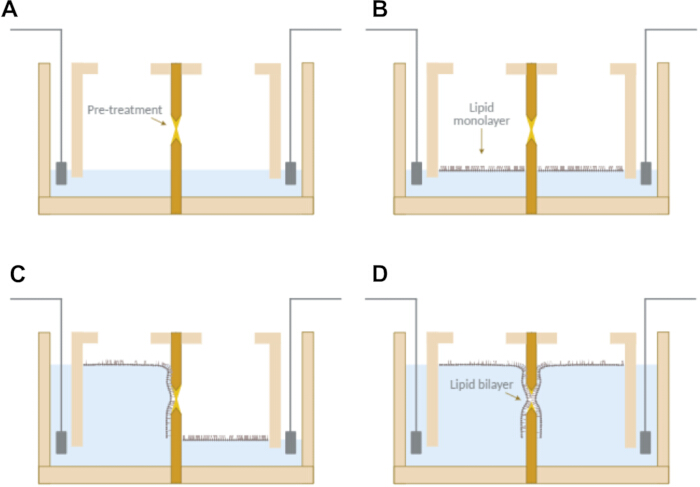
Figura 4: Formación de BLPs mediante el método de Montal–Mueller. (A) Pretratamiento de la abertura con hexadecano al 1 % en n-hexano y llenado de los compartimentos hasta el nivel de la abertura. (B) Formación de monocapas lipídicas en la interfase aire–agua. (C y D) Elevación secuencial del nivel de tampón en cada compartimento, lo que provoca el plegamiento de las monocapas y la formación de una bicapa lipídica libre de disolvente a través de la abertura. Haga clic aquí para ver una versión ampliada de esta figura.
- Formar la membrana
- Pretreatar la abertura del septo con una solución al 1% (v/v) de hexadecano en n-hexano utilizando una punta de pipeta. Aplicar aproximadamente 2 µL por lado (Figura 4A).
- Dejar que el disolvente se evapore durante 5 min a 23°C–25°C y 45%–50% de humedad relativa.
- Insertar el BLMchipMM ensamblado en el amplificador.
- Conectar el amplificador al ordenador mediante un cable USB y abrir el software de adquisición.
- Establecer el rango de corriente en 2 nA y activar la herramienta de estimación RC para monitorear la capacitancia y resistencia de la membrana.
NOTA: La configuración de la estimación RC está predeterminada, pero puede ajustarse si es necesario. - Llenar cada compartimento con 30 ± 2 µL de solución de registro hasta el margen inferior de la abertura (Figura 4A).
ADVERTENCIA: No permitir que la solución de registro moje la región que rodea la abertura. - Aplicar gota a gota 2,5 ± 0,1 µL de solución lipídica sobre la superficie de la fase acuosa en cada compartimento (Figura 4B).
- Dejar que el disolvente se evapore durante 2 min.
- Colocar una punta de pipeta en la parte inferior de un compartimento a aproximadamente 90° y añadir 80 ± 2 µL de solución de registro. Repetir para el segundo compartimento (Figura 4C y Figura 4D).
NOTA: Los tiempos de evaporación del disolvente se refieren a condiciones de 23°C–25°C, aire estático y 45%–50% de humedad relativa. - Cerrar la tapa de la jaula de Faraday y monitorear la señal de corriente. Valores de resistencia de membrana superiores a 200 GΩ indican una formación exitosa de bicapa y buena integridad de la membrana.
NOTA: La formación exitosa de la membrana se indica mediante una señal de corriente en forma de onda cuadrada que fluctúa alrededor de cero, con una amplitud proporcional a la capacitancia de la membrana (Figura 5A).
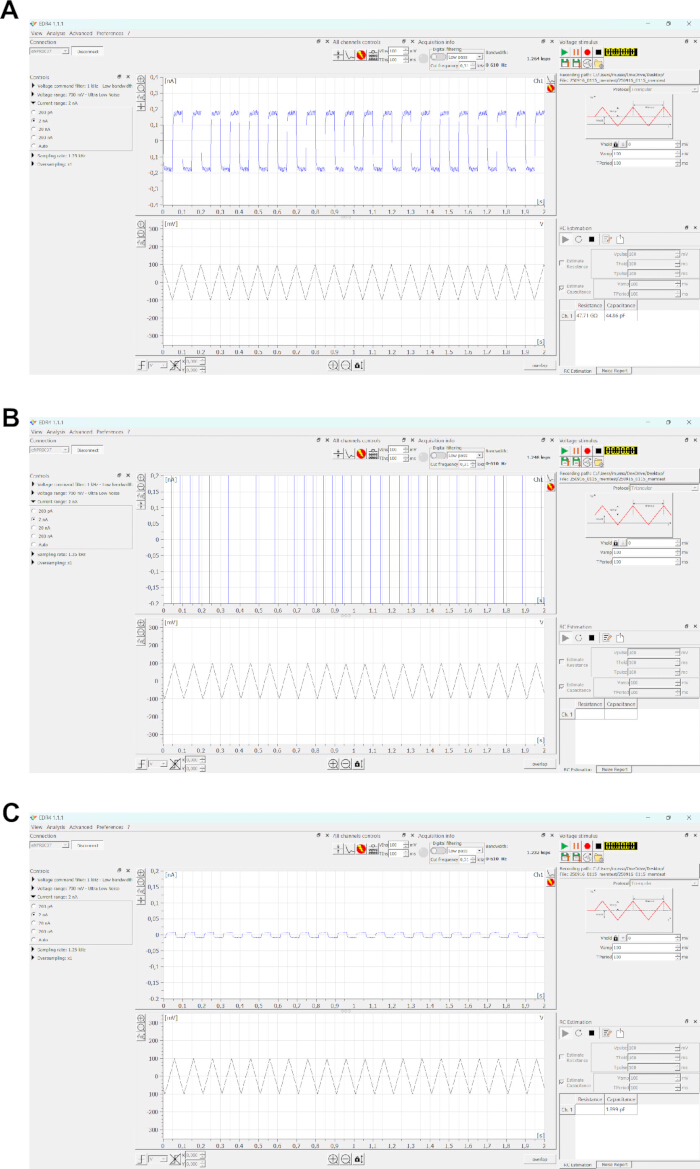
Figura 5: Monitoreo de la formación de la membrana mediante la interfaz del software de adquisición. (A) Registro representativo que muestra una formación exitosa de la membrana. Una forma de onda de voltaje triangular (100 mV de pico a pico, 10 Hz) produce una corriente capacitiva en forma de onda cuadrada proporcional a la capacitancia de la membrana (~45 pF). (B) Registro representativo que indica ausencia de formación de membrana, caracterizada por la saturación de la señal de corriente. (C) Señal capacitiva correspondiente a la capacitancia parásita cuando no se forma la bicapa, como cuando la abertura está expuesta. Haga clic aquí para ver una versión más grande de esta figura.
NOTA: Una señal que cambia entre los límites del rango de corriente indica falla de la membrana (Figura 5B).
NOTA: El ruido RMS aumenta con la capacitancia de la membrana y, por lo tanto, con el tamaño de la abertura. Los rangos típicos de ruido medidos bajo condiciones de voltaje constante (0 mV), con una frecuencia de muestreo de 5 kHz y un ancho de banda de 2.5 kHz, son: 0.48–2.00 pA (50 µm); 0.74–2.62 pA (75 µm); 1.00–3.52 pA (100 µm); y 1.59–5.27 pA (140 µm).
NOTA: Bajar y subir el nivel del tampón en un compartimento puede favorecer la formación de la membrana si los intentos iniciales fallan.
NOTA: Aplique una burbuja de aire sobre la abertura durante aproximadamente 5 s utilizando la punta de una pipeta para facilitar la formación de la bicapa, si es necesario.
NOTA: Bajar el nivel del tampón por debajo de la abertura o aplicar una burbuja de aire puede producir una señal correspondiente a la capacitancia parásita (Figura 5C). Si la salida se asemeja a la Figura 5B, es posible que el pretratamiento haya sido ineficaz. Vuelva a aplicar la solución de pretratamiento y los lípidos, o limpie el dispositivo y repita el procedimiento.
PRECAUCIÓN: Realice la compensación del desplazamiento de voltaje únicamente en ausencia de una membrana. Si hay una membrana presente, rómpala utilizando la función ZAP antes de realizar la compensación.
NOTA: Los experimentos pueden realizarse en una mesa de laboratorio estándar; sin embargo, puede utilizarse una mesa antivibratoria si es necesario.
3. Limpiar el BLMchipMM
- Retire la cámara de registro de la PCB.
- Lave ambos compartimentos y los canales fluidicos con alcohol isopropílico (IPA) al 100%.
ADVERTENCIA: No exceda 1 min de exposición al IPA.
ADVERTENCIA: No use acetona ni etanol al 100%, ya que estos solventes podrían dañar el material de sellado de la cámara.
NOTA: Verifique la compatibilidad de cualquier solvente adicional con el PMMA antes de su uso. - Enjuague abundantemente con agua doblemente destilada.
- Seque completamente la cámara de registro utilizando un flujo suave de aire comprimido hasta que no queden gotas de agua visibles.
NOTA: Inspeccione la cámara bajo una lupa iluminada para asegurarse de que no haya películas oleosas residuales. Si es necesario, repita el procedimiento de limpieza y secado.
NOTA: Asegúrese de que la cámara esté completamente limpia y seca antes de comenzar un nuevo experimento.
4. Exprese y purifique el canal iónico sintético (ancTREK1)
- Preparar el constructo de expresión
Los siguientes pasos describen estrategias de clonación, expresión heteróloga en células Freestyle-293F y purificación de la proteína ancTREK1.
Construir el vector de expresión mediante amplificación por PCR, digestión con enzimas de restricción, ligación y transformación en células competentes químicamente de Escherichia coli23,24. Expresar la secuencia ancTREK1 (Figura Suplementaria 1) utilizando un vector mamífero que contenga una etiqueta GFP en el extremo C-terminal y una etiqueta His₈, lo que permite la detección basada en fluorescencia25,26 y una purificación por afinidad en dos pasos utilizando resina de ácido nitrilotriacético con níquel (resina Ni2⁺-NTA)27,28,29, seguida de resina con nanocuerpo anti-GFP30,31,32. - Amplificar el ADN de ancTREK1 mediante PCR
- Diluir los cebadores de PCR y la plantilla de ADN hasta concentraciones finales de 10 µM y ~20 ng/µL, utilizando agua doblemente destilada y estéril.
- Descongelar todos los reactivos sobre hielo.
- Preparar una reacción de PCR de 50 µL que contenga 10 µL de tampón 5×, 2,5 µL de cada cebador 10 µM, 2 µL de plantilla de ADN, 1 µL de dNTPs 10 mM, 0,5 µL de polimerasa de ADN de alta fidelidad y agua doblemente destilada y estéril hasta completar el volumen (Tabla 3). Mezclar suavemente y centrifugar brevemente.
- Realizar la PCR utilizando las siguientes condiciones: desnaturalización inicial a 98°C durante 3 min; 30 ciclos de 98°C durante 30 s, 68°C durante 30 s y 72°C durante 30 s; extensión final a 72°C durante 3 min (Tabla 4).
- Correr el producto de PCR en un gel de agarosa al 1% (p/v) en tampón TAE 1× a 60 V durante 90 min y excavar la banda correcta.
NOTA: Purificar los productos de PCR mediante un método de extracción de gel, medir la concentración de ADN a 260 nm y almacenar los productos de PCR purificados a −20°C si es necesario.
- Realizar la digestión de restricción
- Preparar reacciones de digestión que contengan 2 µg del producto de PCR y 2 µg de ADN plasmídico en tubos separados. Añadir 5 µL de tampón 10×, 0,5 µL de enzima de restricción EcoRI y 0,5 µL de NotI, y ajustar a 50 µL con agua doblemente destilada (Tabla 5).
- Mezclar suavemente e incubar a 37°C durante 3 h.
- Inactivar las enzimas por calor a 65°C durante 20 min.
- Añadir 1 µL de fosfatasa alcalina a la digestión del vector e incubar a 37°C durante 1 h.
- Correr los productos digeridos en un gel de agarosa al 1% y extraer las bandas deseadas.
NOTA: Purificar los fragmentos de ADN mediante métodos de purificación adecuados y almacenar el ADN purificado a −20°C si es necesario.
- Realizar la ligación y transformación
- Preparar una reacción de ligación de 20 µL que contenga vector e inserto (relación molar 3:1), 2 µL de tampón 10× para ligasa y 1 µL de enzima ligasa (Tabla 6).
- Incubar a temperatura ambiente durante 1 h.
- Descongelar células competentes químicamente de E. coli sobre hielo.
- Añadir 5 µL de la mezcla de ligación a 50 µL de células e incubar sobre hielo durante 20 min.
- Aplicar choque térmico a 42°C durante 1 min, luego volver al hielo durante 2 min.
- Añadir 450 µL de medio LB e incubar a 37°C con agitación durante 1 h.
- Centrifugar a 3.000 × g durante 1 min y resuspender el precipitado en 50 µL.
- Inocular en agar selectivo e incubar durante la noche a 37°C.
NOTA: Confirmar el clonaje exitoso mediante secuenciación.
- Transfectar células HEK293F
- Siembra 250 mL de células 293F a 0,5 × 10⁶ células/mL en medio de suspensión sin suero e incubar a 37°C con 6% de CO₂.
- Preparar 250 µg de ADN en un volumen final de 3 mL de medio con suero reducido.
- Preparar 750 µg de polietilenimina (PEI) en agua a 1 mg/mL, ajustar el pH a 6,9–7,1 con NaOH, filtrar estérilmente la solución y llevar el volumen final a 3 mL con medio con suero reducido.
- Combinar las soluciones de ADN y PEI, mezclar suavemente e incubar durante 10 min a temperatura ambiente.
- Añadir la mezcla gota a gota a las células.
- Añadir butirato de sodio hasta una concentración final de 10 mM tras 4 h.
- Recoger las células tras 48 h mediante centrifugación a 500 × g durante 15 min.
- Almacenar los pellets celulares a −80°C.
- Solubilizar proteínas de membrana
- Descongelar los pellets celulares procedentes de 100 mL de cultivo de HEK293 sobre hielo.
- Resuspender el pellet celular en tampón de lisis en una relación 1:10 (p/v) (Tabla 7).
Añadir detergente hasta concentraciones finales de 1% de n-dodecil-β-D-maltósido (DDM) y 0,1% de hemisuccinato de colesterol (CHS). - Incubar con rotación a 4°C durante 2 h.
- Centrifugar a 100.000 × g durante 1 h a 4°C.
- Recoger el sobrenadante.
ADVERTENCIA: Realizar todos los pasos a 4°C utilizando tampones previamente enfriados.
- Realizar la purificación por IMAC
- Empaquetar 500 µL de resina Ni2⁺-NTA en una columna por gravedad.
- Equilibrar la resina con dos volúmenes de columna (VC) de tampón de equilibrio (Tabla 8).
- Cargar la muestra e incubar con mezcla suave a 10 rpm y 4°C durante 3 h.
- Colocar la columna verticalmente y recoger el flujo inicial por gravedad.
- Lavar la resina con 10 VC de tampón de lavado que contenga 30 mM de imidazol.
- Eluir la proteína con 10 VC de tampón de elución que contenga 300 mM de imidazol.
NOTA: Analizar las fracciones mediante SDS-PAGE (Figura 6). Guardar las fracciones de flujo inicial y lavado para análisis. Almacenar la proteína a 4°C durante la noche si es necesario.
- Realizar la purificación anti-GFP
- Empaquetar 1 mL de resina anti-GFP en una columna por gravedad.
- Equilibrar la resina con 2 VC de Tampón 1 (Tabla 9). Cargar el eluido de IMAC e incubar con mezcla suave a 10 rpm y 4°C durante 3 h.
- Colocar la columna verticalmente y recoger el flujo inicial por gravedad.
- Lavar la resina secuencialmente con 10 VC de Tampón 1, 10 VC de Tampón 2 y 10 VC de Tampón 1.
- Diluir la proteasa HRV-3C en 2 mL de Tampón 1 a una relación proteasa:proteína de 1:50.
- Añadir Tampón 1 suplementado con proteasa HRV-3C a la resina, mezclar suavemente e incubar durante la noche a 4°C en posición vertical y estática.
- Recoger la proteína escindida en la fracción de elución.
- Concentrar la muestra utilizando un concentrador centrífugo con corte de 50 kDa a 3.000 × g y 4°C hasta alcanzar un volumen final de aproximadamente 500 µL.
NOTA: Analizar las fracciones mediante SDS-PAGE (Figura 7). Resuspender periódicamente la proteína durante la concentración para prevenir la agregación. Almacenar la proteína purificada a −80°C tras congelación rápida. Aproximadamente 60 µg de proteína pueden obtenerse a partir de 100 mL de cultivo.
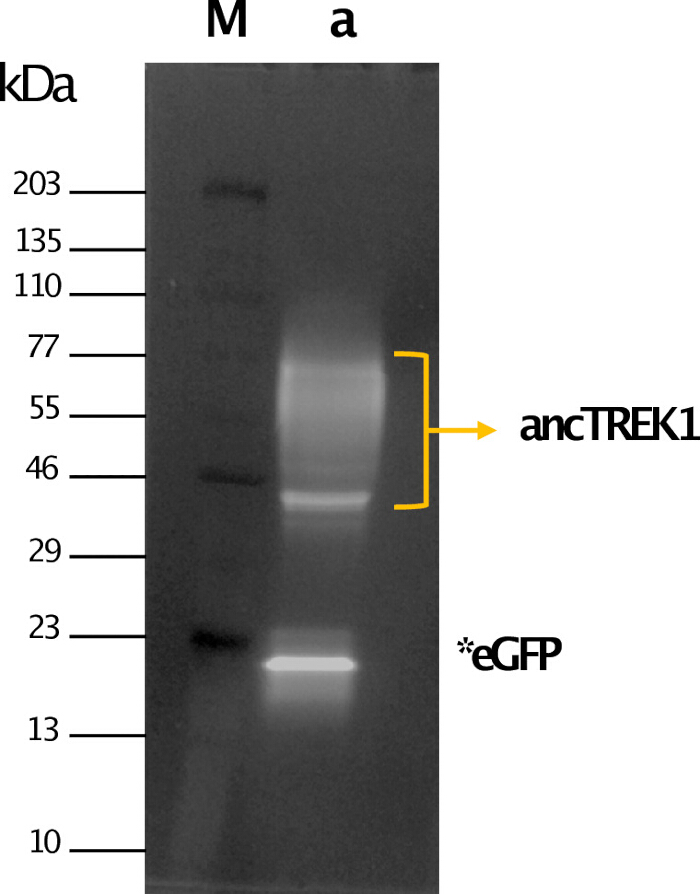
Figura 6: Purificación de ancTREK1 mediante cromatografía de afinidad por iones metálicos inmovilizados (IMAC). Análisis por electroforesis en gel de poliacrilamida con dodecilsulfato sódico (SDS-PAGE) de las fracciones de elución de IMAC con detección de fluorescencia. Carril M: marcador de peso molecular. Carril a: fracción de elución de IMAC que muestra ancTREK1 marcado con proteína verde fluorescente (GFP) (flecha amarilla). La GFP libre resultante de la autocleavage se indica (*eGFP). Haga clic aquí para ver una versión más grande de esta figura.
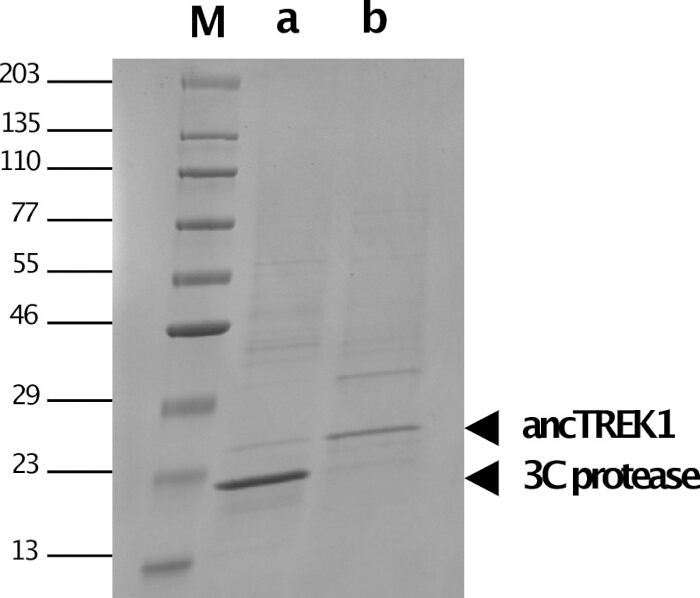
Figura 7: Purificación de ancTREK1 mediante cromatografía de afinidad con nanocuerpo anti-GFP. Análisis por SDS-PAGE de las fracciones eluidas teñidas con azul de Coomassie. Carril M: marcador de peso molecular. Carril a: fracción eluida con anti-GFP que muestra la presencia de la proteasa 3C. Carril b: ancTREK1 purificada tras concentración. Haga clic aquí para ver una versión más grande de esta figura.
| Reactivo | Volumen para una reacción de 50 µL | Concentración final |
| Agua doblemente destilada | Añadir hasta 50 µL | — |
| Tampón 5× PhusionTM GC | 10 µL | 1× |
| dNTPs (cada uno a 10 mM) | 1 µL | 200 µM cada uno |
| Primer directo (10 µM) | 2,5 µL | 0,5 µM |
| Primer inverso (10 µM) | 2,5 µL | 0,5 µM |
| ADN molde (20 ng/µL) | 2 µL | 0,8 ng/µL |
| Polimerasa PhusionTM ADN de alta fidelidad | 0,5 µL | 0,02 U/µL |
Tabla 3: Preparación de la reacción de reacción en cadena de la polimerasa (PCR) para la amplificación de ancTREK1. Composición de reactivos, volúmenes y concentraciones finales utilizados para la amplificación por PCR de la secuencia de ADN ancTREK1 utilizando un sistema de polimerasa de ADN de alta fidelidad.
| Paso | Temperatura | Tiempo | Ciclos |
| Desnaturalización inicial | 98°C | 3 min | 1 |
| Desnaturalización | 98°C | 30 s | 30 |
| Alineamiento | 68°C | 30 s | 30 |
| Extensión | 72°C | 30 s | 30 |
| Extensión final | 72°C | 3 min | 1 |
| Mantenimiento | 12°C | Mantenimiento | — |
Tabla 4: Condiciones de ciclado de PCR para la amplificación de ancTREK1. Parámetros de ciclado térmico utilizados para la amplificación de la secuencia de ADN de ancTREK1, incluyendo pasos de desnaturalización, hibridación, extensión y extensión final.
| Componente | Digestión del inserto (50 µL) | Digestión del vector y desfosforilación (50 µL) |
| ddH₂O | Hasta 50 µL | Hasta 50 µL |
| Tampón 10× ANZA Red | 5 µL | 5 µL |
| ADN | Producto de PCR ancTREK1 (2 µg) | ADN del vector pEG BacMam C-term 3C eGFP His8 (2 µg) |
| Anza™ EcoRI | 0,5 µL | 0,5 µL |
| Anza™ NotI | 0,5 µL | 0,5 µL |
| Fosfatasa alcalina Anza™ | — | 1 µL |
Tabla 5: Digestión con enzimas de restricción del inserto y del vector para la clonación de ancTREK1. Condiciones de reacción para la digestión con enzimas de restricción del producto de PCR de ancTREK1 y del vector de expresión utilizando las enzimas EcoRI y NotI. La digestión del vector incluye un paso adicional de desfosforilación utilizando fosfatasa alcalina para prevenir la auto-ligación.
| Componente | Cantidad (reacción de 20 µL) |
| ddH₂O | Hasta 20 µL |
| Tampón 10× para T4 DNA Ligasa | 2 µL |
| ADN del inserto ancTREK1 (843 pb) | 10 ng |
| ADN del vector pEG BacMam C-term 3C eGFP His8 (7673 pb) | 30 ng |
| T4 DNA Ligasa | 1 µL |
Tabla 6: Condiciones de ligación vector–inserto para la clonación de ancTREK1. Mezcla de reacción para la ligación del inserto ancTREK1 en el vector de expresión pEG BacMam en una relación molar de 1:3 utilizando la ligasa T4 de ADN.
| Componente | Concentración final | Cantidad (hasta 5 mL) |
| ddH₂O | — | Hasta 5 mL |
| KCl (1 M) | 200 mM | 1 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 100 µL |
| MgCl₂ (100 mM) | 1 mM | 50 µL |
| Inhibidor de proteasas PMSF (100 mM) | 1 mM | 50 µL |
| Inhibidor de proteasas leupeptina (1 mg/mL) | 1 µg/mL | 5 µL |
| Inhibidor de proteasas aprotinina (1 mg/mL) | 1 µg/mL | 5 µL |
| Inhibidor de proteasas pepstatina A (1 mg/mL) | 1 µg/mL | 5 µL |
| DNasa I (50 mg/mL) | 25 µg/mL | 2.5 µL |
| n-Dodecil-β-D-maltósido (DDM, 10%) | 1% | 500 µL |
| Hemisuccinato de colesterol (CHS, 2%) | 0,10% | 250 µL |
Tabla 7: Composición del tampón de lisis para la extracción de proteínas de membrana. Formulación del tampón de lisis utilizada para la solubilización de proteínas de membrana, que incluye sales, agentes tampón, inhibidores de proteasas, nucleasa y detergentes. Nota: los tampones deben prepararse recién antes de su uso.
| Tampón de equilibrio (volumen total de 10 mL) | ||
| Componente | Concentración final | Cantidad |
| ddH₂O | — | Hasta 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecil-β-D-maltósido (DDM, 10%) | 0,05% | 50 µL |
| Hemisuccinato de colesterol (CHS, 2%) | 0,01% | 50 µL |
| Tampón de lavado (volumen total de 10 mL) | ||
| Componente | Concentración final | Cantidad |
| ddH₂O | — | Hasta 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecil-β-D-maltósido (DDM, 10%) | 0,05% | 50 µL |
| Hemisuccinato de colesterol (CHS, 2%) | 0,01% | 50 µL |
| Imidazol pH 8 (5 M) | 30 mM | 60 µL |
| Tampón de elución (volumen total de 10 mL) | ||
| Componente | Concentración final | Cantidad |
| ddH₂O | — | Hasta 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecil-β-D-maltósido (DDM, 10%) | 0,05% | 50 µL |
| Hemisuccinato de colesterol (CHS, 2%) | 0,01% | 50 µL |
| Imidazol pH 8 (5 M) | 300 mM | 600 µL |
Tabla 8: Composiciones de los tampones de IMAC para la purificación de ancTREK1. Formulaciones de los tampones de equilibrio, lavado y elución utilizados para la purificación por cromatografía de afinidad por iones metálicos inmovilizados de ancTREK1. Nota: las soluciones pueden almacenarse a 4 °C durante hasta seis meses.
| Tampón 1 (volumen total de 10 mL) | ||
| Componente | Concentración final | Cantidad |
| ddH₂O | — | Hasta 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecil-β-D-maltósido (DDM, 10%) | 0,05% | 50 µL |
| Hemisuccinato de colesterol (CHS, 2%) | 0,01% | 50 µL |
| Tampón 2 (volumen total de 10 mL) | ||
| Componente | Concentración final | Cantidad |
| ddH₂O | — | Hasta 10 mL |
| KCl (1 M) | 500 mM | 5 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecil-β-D-maltósido (DDM, 10%) | 0,05% | 50 µL |
| Hemisuccinato de colesterol (CHS, 2%) | 0,01% | 50 µL |
Tabla 9: Composiciones de los tampones para cromatografía de afinidad con nanocuerpo anti-GFP. Formulaciones de los tampones utilizados para la purificación de ancTREK1 mediante cromatografía de afinidad con nanocuerpo anti-GFP. Nota: las soluciones pueden almacenarse a 4 °C durante hasta seis meses.
5. Registrar la actividad de los canales iónicos
- Evaluar la calidad de la membrana
- Cierre la tapa de la jaula de Faraday.
- Aplique una forma de onda de voltaje triangular (100 mV, 10 Hz) para evaluar la capacitancia de la membrana.
- Aplique escalones de voltaje (incrementos de ±20 mV hasta ±200 mV) para evaluar la resistencia de la membrana.
- Monitoree los valores de corriente y ruido.
NOTA: Utilice una frecuencia de muestreo de 5 kHz y un filtro pasa-bajos de 2,5 kHz, salvo que se requiera lo contrario.
- Registrar la actividad de ancTREK1
- Diluya la proteína ancTREK1 en la solución de registro hasta ~2 µg/mL.
NOTA: Durante la dilución, realice diluciones intermedias en tampón 1 según sea necesario para mantener la concentración del detergente por encima de su concentración micelar crítica (CMC) antes de la dilución final en la solución de registro. - Agregue 1 µL de la solución proteica diluida a la cámara cis cerca de la abertura del septo.
NOTA: El potencial de membrana se define como Vcis − Vtrans. La orientación del canal no se determinó directamente en este estudio; por lo tanto, las grabaciones se describen con respecto a la polaridad del voltaje aplicado, y no según la asignación de lados de la membrana. - Aplique escalones de voltaje en incrementos de ±20 mV hasta ±120 mV.
- Monitoree eventos de inserción del canal.
NOTA: La inserción del canal se indica mediante transiciones discretas de corriente entre los estados cerrado y abierto. Si no ocurre inserción, agregue más proteína o reforme la membrana. Si se insertan múltiples canales, rompa la membrana y reduzca la concentración de proteína.
- Diluya la proteína ancTREK1 en la solución de registro hasta ~2 µg/mL.
Resultados
Características corriente–voltaje (I–V) de membranas PLB
La naturaleza hidrofóbica intrínseca de las membranas bicapa las hace impermeables a especies cargadas. Sin embargo, la aplicación de un campo eléctrico externo puede inducir la formación de poros transitorios de tamaño nanométrico, afectando así la permeabilidad y la conductancia de la membrana33. Para evaluar la calidad de las bicapas artificiales formadas a partir de lípidos de 1,2-difitanoil-sn-glicerol-3-fosfocolina, se analizaron la capacitancia, la resistencia y las características corriente–voltaje de la membrana en ausencia de proteínas insertadas. Se aplicó una serie de escalones de voltaje que variaron desde ±20 hasta ±200 mV (en incrementos de ±20 mV) y se registraron las corrientes transmembrana resultantes. Los datos se muestrearon a 5 kHz y se filtraron con paso bajo a 2.5 kHz.
La capacitancia de la membrana (Cm) y la resistencia de la membrana (Rm) representan parámetros clave para evaluar la calidad de la bicapa. La PLB puede describirse mediante un circuito equivalente resistor–condensador (RC), en el cual la membrana se comporta como un condensador en paralelo con una resistencia34. El componente capacitivo refleja la capacidad de la membrana para almacenar carga, mientras que el componente resistivo refleja la permeabilidad a iones. La aplicación de una forma de onda de voltaje triangular genera una respuesta de corriente capacitiva de forma cuadrada, que es proporcional a la capacitancia de la membrana según:
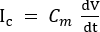 (1)
Aquí, Cm es la capacitancia de la membrana, V es el voltaje aplicado y t es el tiempo. Tras la formación de la membrana, los valores de capacitancia pueden aumentar con el tiempo debido al adelgazamiento progresivo de la bicapa35. Considerando la membrana como un capacitor de placas paralelas, la capacitancia se relaciona con el área y el grosor de la membrana según:
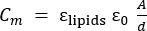 (2)
Aquí, εlipids es la constante dieléctrica del núcleo lipídico (~2), ε0 es la permitividad del espacio libre, A es el área de la membrana, y d es el grosor de la membrana36,37.
La resistencia de la membrana se determinó utilizando la ley de Ohm33:
 (3)
Aquí, V es el voltaje aplicado y Rm es la resistencia de la membrana. En ausencia de canales iónicos, la corriente de la membrana permanece cerca de 0 pA, lo que corresponde a valores de resistencia en el rango de gigaohmios (GΩ)33.
La relación I-V mostró un comportamiento lineal (óhmico) entre 0 y ±200 mV para los dispositivos BLMchipMM con aperturas de 75 y 100 µm. El ajuste lineal de los datos arrojó valores de resistencia de la membrana de 847 ± 16 GΩ (n = 6) para la apertura de 75 µm (Figura 8A, círculos) y de 980 ± 32 GΩ (n = 7) para la apertura de 100 µm (Figura 8A, cuadrados). Los valores de ruido RMS, medidos en segmentos de 3 s del trazado de corriente, fueron de 3.1 ± 2 pA (n = 7) para la apertura de 100 µm y de 2.6 ± 0.1 pA (n = 6) para la apertura de 75 µm. La estabilidad de la membrana se evaluó midiendo la resistencia a intervalos aproximados de 2 min durante una duración total de 1 h (Figura 8B). Las membranas bien formadas permanecieron estables consistentemente durante más de 1 h, lo cual es suficiente para la mayoría de los experimentos electrofisiológicos. Las membranas generalmente toleraron potenciales aplicados hasta ±200 mV sin signos de inestabilidad, mientras que la ruptura ocurrió entre ±220 y ±300 mV dependiendo de la bicapa individual. Se consideró que las membranas eran adecuadas para la inserción de proteínas cuando los valores de capacitancia oscilaron entre 40 y 60 pF para aperturas de 75 µm y entre 60 y 90 pF para aperturas de 100 µm, con valores de corriente de ≤0.5 pA a 100 mV.
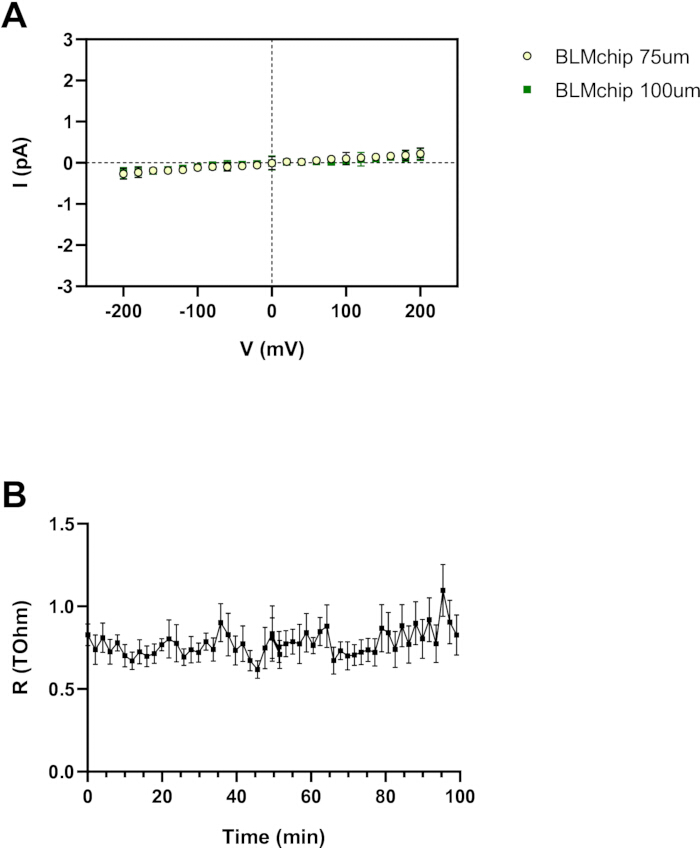
Figura 8: Caracterización eléctrica de las BLP. (A) Relaciones corriente–voltaje (I–V) de bicapas formadas en aberturas de 75 µm y 100 µm, que demuestran un comportamiento lineal (óhmico) entre ±200 mV. La regresión lineal arroja valores de resistencia de la membrana de 847 ± 16 GΩ (n = 6) y 980 ± 32 GΩ (n = 7), respectivamente. (B) Estabilidad de la membrana evaluada mediante el monitoreo de la resistencia durante 1 h a intervalos de 2 min. Las membranas permanecen estables hasta ±200 mV y se rompen a voltajes entre ±220 y ±300 mV. Los datos se presentan como media ± error estándar de la media (SEM). Haga clic aquí para ver una versión más grande de esta figura.
Caracterización inicial del comportamiento del canal individual ancTREK1
Se purificó ancTREK1 sintético y se reconstituyó en bicapas de lípidos planas (PLB), y se monitoreó la actividad de canales individuales mediante protocolos de escalones de voltaje que variaron desde −120 hasta 120 mV en incrementos de 20 mV. Los registros de canal individual (Figura 9A y Figura 9B) revelaron el comportamiento característico de parpadeo de los canales K2P38. A 80 mV, la amplitud media de la corriente fue de 13,02 ± 0,78 pA (n = 5), mientras que a −80 mV la amplitud de la corriente aumentó a −18,72 ± 0,25 pA (n = 5) (Figura 9C). La relación I–V resultante mostró corrientes de canal individual medibles tanto a potenciales positivos como negativos en condiciones simétricas libres de Mg2+ con 200 mM de potasio (Figura 9D). Dado que las amplitudes de corriente se estimaron a partir de histogramas de todos los puntos de grabaciones adquiridas a 5 kHz y filtradas de baja frecuencia a 2,5 kHz, esta relación I–V se presenta como una demostración descriptiva de principio más que como una caracterización biofísica exhaustiva.
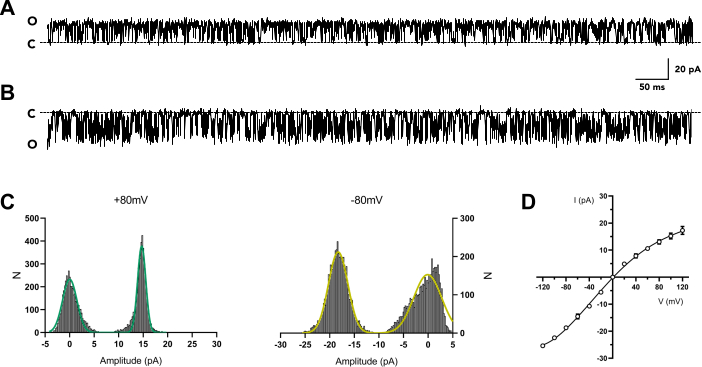
Figura 9: Actividad de canal individual de ancTREK1 sintético. (A y B) Rastros representativos de corriente de canal individual registrados a 80 mV y −80 mV, respectivamente. Las líneas punteadas indican el nivel de canal cerrado. (C) Histogramas de amplitud de todos los puntos para potenciales positivos (izquierda) y negativos (derecha). (D) Relación I–V de ancTREK1 en condiciones simétricas de 200 mM de potasio (K+) sin cationes divalentes. La curva se ajusta utilizando un polinomio de cuarto orden, y los valores de conductancia se derivan de la pendiente a ±80 mV. Haga clic aquí para ver una versión más grande de esta figura.
Aunque ancTREK1 carece de regiones N-terminal y C-terminal extendidas en comparación con los canales TREK1 de mamíferos, permaneció funcionalmente activo tras la reconstitución. A diferencia de TREK1 de mamíferos, que exhibe modos de alta y baja conductancia (132 ± 5 pS y 41 ± 5 pS a potenciales positivos, respectivamente)39, ancTREK1 mostró únicamente el modo de alta conductancia. La conductancia unitaria a potenciales positivos fue de 112,8 ± 10,8 pS (80 mV, n = 5), consistente con los valores reportados para los canales TREK (85–130 pS bajo condiciones simétricas de potasio)38,39,40,41. A potenciales negativos, la conductancia aumentó hasta 205,6 ± 2,05 pS (−80 mV, n = 5), en concordancia con el comportamiento previamente descrito para TREK139. Notablemente, ancTREK1 exhibió una probabilidad de apertura normalizada (NPo) más alta en comparación con las mediciones de TREK1 obtenidas mediante configuraciones de parche exciso42. La relación NPo–voltaje mostró una actividad del canal incrementada a potenciales positivos, alcanzando 0,78 ± 0,02 (n = 5) a 80 mV. En contraste, la NPo disminuyó a potenciales negativos, con valores de 0,53 ± 0,04 a −80 mV y 0,28 ± 0,03 a −120 mV (Figura 10).
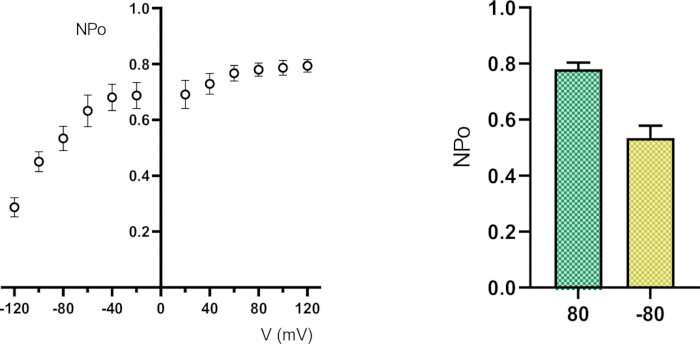
Figura 10: Análisis de la dependencia del voltaje en la actividad de canales individuales de ancTREK1. Probabilidad de apertura normalizada (NPo) en función del potencial de membrana (izquierda) y comparación de NPo a 80 mV y −80 mV (derecha), que muestra un aumento en la apertura del canal a potenciales positivos. Haga clic aquí para ver una versión más grande de esta figura.
Figura suplementaria 1. Secuencia de aminoácidos del canal de potasio sintético ancestral de dos dominios de poro (K2P) (ancTREK1). La secuencia completa de aminoácidos de ancTREK1 utilizada para las grabaciones electrofisiológicas. La secuencia fue reconstruida mediante inferencia de secuencia ancestral a partir de un conjunto de datos curado de miembros de la familia TREK/TRAAK, incluyendo secuencias ortólogas obtenidas de las bases de datos UniProt y NCBI, filtradas por motivos de poro conservados, alineadas y analizadas mediante filogenética de máxima verosimilitud.Haga clic aquí para descargar este archivo.
Discusión
En este estudio, utilizamos la técnica PLB para evaluar las propiedades electrofisiológicas de un canal K2P sintético a nivel de molécula individual. Entre los diversos modelos de lípidos planares descritos en la literatura científica, nos centramos en la formación de membranas lipídicas bimoleculares (BLMs), que se pintan sobre una abertura con un diámetro entre 50 y 140 µm, perforada en una superficie vertical no polar que separa dos compartimentos acuosos. Esta configuración permite simular el entorno de la membrana celular manteniendo el control sobre los parámetros experimentales, incluyendo la preparación de la membrana lipídica y la composición del electrolito (por ejemplo, fuerza iónica y pH)3. Reconstruimos las BLMs utilizando el método de Montal–Mueller (por plegamiento)5, en el cual la membrana se ensambla espontáneamente cuando dos monocapas lipídicas, previamente extendidas en la interfaz aire–agua de las dos soluciones acuosas, se unen sobre la abertura al elevar el nivel del agua.
El protocolo presentado aquí para la formación de membranas es muy intuitivo; sin embargo, varios pasos críticos influyen fuertemente en el éxito experimental. Para garantizar una conexión eléctrica adecuada entre el BLMchipMM y el amplificador, es esencial evitar la cloración de los extremos de los hilos de Ag/AgCl que se insertan en los conectores de la PCB. Durante el ensamblaje del BLMchipMM, una colocación inadecuada de los hilos puede provocar contacto con la carcasa del amplificador, lo que lleva a cortocircuitos y saturación de la señal. El procedimiento de pretratamiento del orificio es otro factor crítico: aplicar demasiada fuerza durante la aplicación de la solución de pretratamiento puede dañar el septo de poliimida, mientras que un manejo inadecuado de la solución electrolítica—especialmente remojar la región del orificio—puede afectar negativamente la formación de la membrana. Además, una limpieza cuidadosa de la cámara de registro del BLMchipMM es esencial para la reproducibilidad. El uso de alcohol isopropílico al 100 %, seguido de un enjuague exhaustivo y un secado completo, asegura que los residuos no interfieran con experimentos posteriores.
Es posible realizar varias modificaciones al protocolo. Aunque la cloración mediante remojo en lejía representa un enfoque práctico y ampliamente utilizado, también pueden emplearse métodos alternativos como la electrodeposición43. De manera similar, son factibles variaciones en el pretratamiento y en la preparación de lípidos. Las soluciones estándar de pretratamiento suelen consistir en alcanos de cadena larga disueltos en disolventes hidrocarburos volátiles36; aunque comúnmente se utiliza una solución al 1 % de hexadecano en n-hexano, otros disolventes pueden ser adecuados. La composición lipídica también puede adaptarse según los requisitos experimentales. Aunque los lípidos DPhPC proporcionan una estabilidad óptima de la membrana, pueden usarse mezclas lipídicas alternativas, incluyendo composiciones naturales o sintéticas36. Una ventaja clave de las bicapas lipídicas verticales formadas mediante el método de plegamiento es la capacidad de generar membranas asimétricas, en las que cada hojuela consiste en especies lipídicas diferentes5,22, una característica que se sabe influye en la función de las proteínas de membrana.
La solución de problemas en la formación de la membrana generalmente implica ajustes en los niveles de la fase acuosa. Si inicialmente no se produce la formación de la membrana, bajar y subir repetidamente el nivel del tampón en un compartimento puede facilitar el ensamblaje de la bicapa. Si este procedimiento no tiene éxito, aplicar una burbuja de aire sobre la apertura puede promover la redistribución de lípidos y la formación de la membrana. El fracaso persistente generalmente indica problemas relacionados con el pretratamiento o la contaminación, en cuyo caso se recomienda limpiar la cámara de registro y reiniciar el experimento.
Los componentes principales de este sistema incluyen el amplificador compacto eNPR de 100 kHz y el BLMchipMM. El amplificador es un sistema compacto de bloqueo de voltaje de bajo ruido que elimina la necesidad de dispositivos externos adicionales, incluyendo jaulas de Faraday externas, ya que la carcasa del amplificador proporciona un apantallamiento electromagnético eficaz. El BLMchipMM es una cámara de registro miniaturizada y preensamblada, integrada con una placa de circuito impreso (PCB) para conexión directa al amplificador. Consiste en dos compartimentos con forma de C separados por un septo de poliimida con una abertura cónica perforada con láser, donde se forma la membrana artificial. Las dimensiones reducidas del sistema, con volúmenes de compartimento de aproximadamente 110 µL, disminuyen significativamente el consumo de reactivos y reducen la capacitancia intrínseca, mejorando así la calidad de la señal. Además, el dispositivo puede reutilizarse varias veces sin necesidad de desmontarlo, siempre que se sigan los procedimientos adecuados de limpieza, lo que reduce la variabilidad y mejora la reproducibilidad experimental.
A pesar de estas ventajas, deben considerarse algunas limitaciones. La configuración actual no incluye módulos integrados para el control de temperatura, presión o perfusión. Se ha informado que la tensión intrínseca de la membrana influye en los canales mecanosensibles como TREK144,45,46; sin embargo, la configuración actual no incluye la manipulación controlada de la tensión de la membrana, y aquí no se extraen conclusiones mecanicistas. En general, esta plataforma proporciona un sistema robusto y accesible para registrar la actividad de canales iónicos en membranas artificiales. En este estudio, investigamos el canal sintético K2P ancTREK1, un canal ancestral derivado computacionalmente de la subfamilia TREK. Los datos registrados demuestran que ancTREK1 purificado, reconstituido en PLBs, exhibe un comportamiento de canal individual consistente con las propiedades de conductancia reportadas para canales tipo TREK1. En condiciones simétricas de potasio 200 mM sin Mg2+, el canal muestra una relación I–V medible, con valores de amplitud de aproximadamente 13 pA a 80 mV y −19 pA a −80 mV. Además, ancTREK1 exhibe el modo característico de alta conductancia observado en los canales TREK1, con mayor conductancia a potenciales negativos (~205,6 pS) en comparación con potenciales positivos (~112,8 pS). Destacablemente, ancTREK1 muestra un NPo aumentado a potenciales positivos (0,78 a 80 mV) y un NPo reducido a potenciales negativos (0,53 a −80 mV y 0,28 a −120 mV), lo cual difiere de las observaciones en configuraciones de parche exciso42. Estos hallazgos respaldan el uso de este sistema para la grabación de prueba de principio de proteínas de membrana reconstituidas a nivel de canal individual.
Divulgaciones
F.T. y A.P. son el director ejecutivo y un empleado de Elements S.r.l., respectivamente. Todos los demás autores declaran no tener intereses en conflicto.
Agradecimientos
Agradecemos a Sofia Diletta Guzzeloni por su ayuda con el procedimiento de transfección celular. Estamos agradecidos con los empleados de Elements, la Dra. Leon Juarez y el Dr. Michelangelo Paci. Este trabajo fue financiado por el Departamento de Medicina Molecular de la Universidad de Pavía, Italia, en el marco de la iniciativa Dipartimenti di Eccellenza (2023–2027), por la Fundación Cariplo (#2019-1809) y por el Programa de Investigación PNRR CN00000013 «Centro Nacional para HPC, Big Data y Computación Cuántica» concedido a M.L.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| 1,2-difitanoil-sn-glicerol-3-fosfocolina (DPhPC) | Avanti Polar Lipids | 850356P | Formación de bicapas lipídicas artificiales |
| 2-propanol (≥99,5 %) | Honeywell | 24137-5L | Limpieza del dispositivo BLMchipMM |
| Agarosa | Fisher BioReagents | BP160-500 | Preparación de geles de agarosa |
| Sistema horizontal de electroforesis en gel de agarosa | BTLabSystems | BT102 | Separación de fragmentos de ADN |
| Ampicilina | Fisher BioReagents | BP1760-25 | Selección de bacterias transformadas |
| Resina de Sepharosa con nanocuerpo anti-GFP (casera) | — | — | Purificación por afinidad de proteínas marcadas con GFP |
| Fosfatasa alcalina Anza | Invitrogen | IVGN2208 | Desfosforilación del vector |
| Anza EcoRI | Invitrogen | IVGN0116 | Digestión con enzimas de restricción |
| Anza NotI | Invitrogen | IVGN0014 | Digestión con enzimas de restricción |
| Buffer rojo Anza (10×) | Invitrogen | IVGN2008 | Buffer para digestión con enzimas de restricción |
| Inhibidor de proteasas aprotinina | Fisher Scientific | 15996008 | Prevención de la degradación proteica |
| Centrífuga de banco | Eppendorf | EP5420000164 | Formación de pellet celular y preparación de muestras |
| BLMchipMM | Elements s.r.l. | — | Formación de bicapas lipídicas planas |
| Hemisuccinato de colesterol (CHS) | Anatrace | CH210 | Estabilización de proteínas de membrana |
| Azul brillante de Coomassie | Sigma-Aldrich | 1125530025 | Tinción de proteínas |
| Lejía doméstica común | — | — | Cloración de alambres de Ag |
| DNasa I | Sigma-Aldrich | 11284932001 | Reducción de la viscosidad del lisado |
| Agua doblemente destilada | — | — | Preparación de tampones y soluciones |
| Etileno (puro, 99,9 %) | Girelli Alcool s.r.l. | — | Limpieza de alambres Ag/AgCl |
| Bromuro de etidio | Sigma-Aldrich | 1116080030 | Tinción de ADN |
| Papel de lija de grano extrafino | — | — | Eliminación del recubrimiento Ag/AgCl de los alambres |
| Amplificador eNPR de 100 kHz | Elements s.r.l. | — | Grabación electrofisiológica |
| Kit Gel-Out para extracción de ADN de agarosa | A&A Biotechnology | 023-250 | Purificación de ADN |
| Escalera de ADN GeneRuler de 1 kb | Thermo Fisher Scientific | SM0311 | Referencia de tamaño de ADN |
| FreeStyle™ 293-F | Thermo Fisher Scientific | R79007 | Expresión de la proteína ancTREK1 |
| HEPES (≥99,5 %) | Sigma-Aldrich | H3375-500G | Agente tampón |
| Hexadecano (≥99 %) | Sigma-Aldrich | H6703-100ML | Pretatamiento de la abertura |
| Hexano (≥99 %) | Sigma-Aldrich | 139386-100ML | Disolvente lipídico |
| Tinte casero de carga de ADN 5× | — | — | Preparación de muestras de ADN |
| Tampón Laemmli SDS casero 6× (reductor) | — | — | Preparación de muestras proteicas |
| Solución casera de decoloración | — | — | Decoloración de geles SDS-PAGE |
| Proteasa HRV-3C casera | — | — | Cleavage de proteínas de fusión |
| Tampón de marcha SDS-PAGE casero (10×) | — | — | Tampón para electroforesis SDS-PAGE |
| Imidazol | Alfa Aesar | A10221 | Elución de proteínas con etiqueta His |
| Columnas de purificación por lote | — | — | Flujos de trabajo de purificación de proteínas |
| Incubadora agitadora Innova44 | New Brunswick Innova | M1282 | Crecimiento de cultivos celulares |
| KCl | Honeywell | 31248-1KG | Preparación de electrolitos y tampones |
| Caldo LB (Lennox) | Condalab | 1231 | Cultivo bacteriano |
| Inhibidor de proteasas leupeptina | Thermo Scientific | 78435 | Prevención de la degradación proteica |
| Cloruro de magnesio hexahidratado | Acros Organics | 447700010 | Componente del tampón |
| Espectrofotómetro Nanodrop | DeNovix | DS-11 | Cuantificación de ADN y proteínas |
| n-Dodecil-β-D-maltósido (DDM) | NeoBiotech | NB-19-0056-25G | Solubilización de proteínas de membrana |
| Resina Ni Sepharose High Performance | Cytiva | 17526801 | Purificación IMAC |
| Portátil (ordenador) | — | — | Control de instrumentos y adquisición de datos |
| Ultracentrífuga Optima LE-80K | Beckman | 365668 | Aislamiento de fracciones de membrana |
| Pentano (≥99 %) | Sigma-Aldrich | 236705-100ML | Disolvente lipídico |
| Inhibidor de proteasas pepstatina A | Thermo Scientific | 78436 | Prevención de la degradación proteica |
| Tampón Phusion GC (5×) | Thermo Fisher Scientific | F519 | Tampón para PCR |
| ADN polimerasa Phusion de alta fidelidad | Thermo Fisher Scientific | F530S | Amplificación por PCR |
| Inhibidor de proteasas PMSF | Thermo Scientific | 36978 | Protección de proteínas durante la lisis |
| Polietilenimina (PEI) | Clinisciences | 24765-100 | Reactivo de transfección |
| Gel precolado ProteinEle Tris-Glicina (4–20 %) | TransGen Biotech | DG101-01-V2 | Separación de proteínas |
| Sistema de electroforesis en gel SDS-PAGE | Bio-Rad | 1658002FC | Electroforesis de proteínas |
| Butirato sódico | Fisher Scientific | A11079 | Potenciador de la expresión proteica |
| Ligasa T4 de ADN | Thermo Fisher Scientific | EL0011 | Ligación de ADN |
| Tampón para ligasa T4 de ADN (10×) | Thermo Fisher Scientific | B69 | Tampón de ligación |
| Ciclador térmico (Mastercycler Nexus) | Eppendorf | 6331000025 | Amplificación por PCR |
| Tris base | Sigma-Aldrich | T1503-1KG | Preparación de tampones |
| Agar triptona soya con lecitina y polisorbato 80 | HiMedia | M449-5KG | Plaqueo bacteriano |
| Dos alambres de Ag | Elements s.r.l. | — | Electrodos para electrofisiología |
| Concentrador ultracentrífugo (corte de 50 kDa) | Merck Amicon | UFC8050 | Concentración de proteínas |
| Vector de expresión pEG BacMam | Addgene | 160687 | Expresión de proteínas |
| Cable USB | — | — | Conexión entre amplificador y ordenador |
Referencias
- Wickenden, A. D. Overview of electrophysiological techniques. Curr Protoc Pharmacol. 11 (1), (2000).
- Polak, A., Mulej, B., Kramar, P. System for measuring planar lipid bilayer properties. J Membr Biol. 245 (10), 625-632 (2012).
- Zakharian, E. Recording of ion channel activity in planar lipid bilayer experiments. Methods Mol Biol. 998, 109-118 (2013).
- Mueller, P., Rudin, D., Tien, H. T., Wescott, W. C. Reconstitution of cell membrane structure in vitro and its transformation into an excitable system. Nature. 194, 979-980 (1962).
- Montal, M., Mueller, P. Formation of bimolecular membranes from lipid monolayers and a study of their electrical properties. Proc Natl Acad Sci U S A. 69 (12), 3561-3566 (1972).
- Coronado, R., Latorre, R. Phospholipid bilayers made from monolayers on patch-clamp pipettes. Biophys J. 43 (2), 231-236 (1983).
- Andersen, O. S. Ion movement through gramicidin A channels. Single-channel measurements at very high potentials. Biophys J. 41 (2), 119-133 (1983).
- Tank, D. W., Miller, C., Webb, W. W. Isolated-patch recording from liposomes containing functionally reconstituted chloride channels from Torpedo electroplax. Proc Natl Acad Sci U S A. 79 (24), 7749-7753 (1982).
- Criado, M., Keller, B. U. A membrane fusion strategy for single-channel recordings of membranes usually non-accessible to patch-clamp pipette electrodes. FEBS Lett. 224 (1), 172-176 (1987).
- Varnier, A., et al. A simple method for the reconstitution of membrane proteins into giant unilamellar vesicles. J Membr Biol. 233, 85-92 (2010).
- Garten, M., et al. Reconstitution of a transmembrane protein, the voltage-gated ion channel KvAP, into giant unilamellar vesicles for microscopy and patch clamp studies. J Vis Exp. (95), e52281 (2015).
- Funakoshi, K., Suzuki, H., Takeuchi, S. Lipid bilayer formation by contacting monolayers in a microfluidic device for membrane protein analysis. Anal Chem. 78 (24), 8169-8174 (2006).
- Heron, A. J., Thompson, J. R., Mason, A. E., Wallace, M. I. Direct detection of membrane channels from gels using water-in-oil droplet bilayers. J Am Chem Soc. 129 (51), 16042-16047 (2007).
- Iwamoto, M., Oiki, S. Contact bubble bilayers with flush drainage. Sci Rep. 5, 9110 (2015).
- Han, X., et al. Nanopore arrays for stable and functional free-standing lipid bilayers. Adv Mater. 19 (24), 4466-4470 (2007).
- Miyata, R., et al. Parallel recordings of transmembrane hERG channel currents based on solvent-free lipid bilayer microarray. Micromachines. 12 (1), 98 (2021).
- Kresak, S., Hianik, T., Naumann, R. L. C. Giga-seal solvent-free bilayer lipid membranes: from single nanopores to nanopore arrays. Soft Matter. 5 (20), 4021 (2009).
- Suzuki, H., Pioufle, B. L., Takeuchi, S. Ninety-six-well planar lipid bilayer chip for ion channel recording fabricated by hybrid stereolithography. Biomed Microdevices. 11, 17-22 (2009).
- Zagnoni, M., Sandison, M. E., Morgan, H. Microfluidic array platform for simultaneous lipid bilayer membrane formation. Biosens Bioelectron. 24 (5), 1235-1240 (2009).
- Baker, C. A., Bright, L. K., Aspinwall, C. A. Photolithographic fabrication of microapertures with well-defined, three-dimensional geometries for suspended lipid membrane studies. Anal Chem. 85 (19), 9078-9086 (2013).
- Tadaki, D., et al. Mechanically stable solvent-free lipid bilayers in nano- and micro-tapered apertures for reconstitution of cell-free synthesized hERG channels. Sci Rep. 7 (1), 17736 (2017).
- Collins, M. D., Keller, S. L. Tuning lipid mixtures to induce or suppress domain formation across leaflets of unsupported asymmetric bilayers. Proc Natl Acad Sci U S A. 105 (1), 124-128 (2008).
- Cohen, S. N., Chang, A. C. Y., Boyer, H. W., Helling, R. B. Construction of biologically functional bacterial plasmids in vitro. Proc Natl Acad Sci U S A. 70 (11), 3240-3244 (1973).
- Hoseini, S., Sauer, M. G. Molecular cloning using polymerase chain reaction, an educational guide for cellular engineering. J Biol Eng. 9 (1), 2 (2015).
- Goehring, A., et al. Screening and large-scale expression of membrane proteins in mammalian cells for structural studies. Nat Protoc. 9 (11), 2574-2585 (2014).
- Kawate, T., Gouaux, E. Fluorescence-detection size-exclusion chromatography for precrystallization screening of integral membrane proteins. Structure. 14 (4), 673-681 (2006).
- Porath, J., Carlsson, J., Olsson, I., Belfrage, G. Metal chelate affinity chromatography, a new approach to protein fractionation. Nature. 258 (5536), 598-599 (1975).
- Hochuli, E., Dobeli, H., Schacher, A. New metal chelate adsorbent selective for proteins and peptides containing neighbouring histidine residues. J Chromatogr A. 411, 177-184 (1987).
- Hochuli, E., et al. Genetic approach to facilitate purification of recombinant proteins with a novel metal chelate adsorbent. Biotechnology (N Y). 6 (11), 1321-1325 (1988).
- Kirchhofer, A., et al. Modulation of protein properties in living cells using nanobodies. Nat Struct Mol Biol. 17 (1), 133-138 (2010).
- Kubala, M. H., Kovtun, O., Alexandrov, K., Collins, B. M. Structural and thermodynamic analysis of the GFP:GFP-nanobody complex. Protein Sci. 19 (12), 2389-2401 (2010).
- Lee, H., Lolicato, M., Arrigoni, C., Minor, D. L. Production of K2P2.1 (TREK-1) for structural studies. Methods Enzymol. 653, 151-188 (2021).
- Kramar, P., Miklavcic, D., Kotulska, M., Lebar, A. M. Voltage- and current-clamp methods for determination of planar lipid bilayer properties. Adv Planar Lipid Bilayers Liposomes. 11, 29-69 (2010).
- Golowasch, J., Nadim, F. Capacitance, membrane. Encyclopedia of Computational Neuroscience. , (2014).
- Niles, W. D., Levis, R. A., Cohen, F. S. Planar bilayer membranes made from phospholipid monolayers form by a thinning process. Biophys J. 53 (3), 327-335 (1988).
- Gutsmann, T., et al. Protein reconstitution into freestanding planar lipid membranes for electrophysiological characterization. Nat Protoc. 10 (1), 188-198 (2015).
- White, S. H. A study of lipid bilayer membrane stability using precise measurements of specific capacitance. Biophys J. 10 (12), 1127-1148 (1970).
- Bockenhauer, D., Zilberberg, N., Goldstein, S. A. N. KCNK2: reversible conversion of a hippocampal potassium leak into a voltage-dependent channel. Nat Neurosci. 4 (5), 486-491 (2001).
- Li, X. T., et al. The stretch-activated potassium channel TREK-1 in rat cardiac ventricular muscle. Cardiovasc Res. 69 (1), 86-97 (2006).
- Honoré, E., Maingret, F., Lazdunski, M., Patel, A. J. An intracellular proton sensor commands lipid- and mechano-gating of the K+ channel TREK-1. EMBO J. 21 (12), 2968-2976 (2002).
- Patel, A. J., et al. A mammalian two pore domain mechano-gated S-like K+ channel. EMBO J. 17 (15), 4283-4290 (1998).
- Maingret, F., Honore, E., Lazdunski, M., Patel, A. J. Molecular basis of the voltage-dependent gating of TREK-1, a mechano-sensitive K+ channel. Biochem Biophys Res Commun. 292 (2), 339-346 (2002).
- Lemtiri-Chlieh, F., Ali, R. Characterization of heterologously expressed transporter genes by patch- and voltage-clamp methods: application to cyclic nucleotide-dependent responses. Methods Mol Biol. 1016, 67-93 (2013).
- Opsahl, L. R., Webb, W. W. Lipid-glass adhesion in giga-sealed patch-clamped membranes. Biophys J. 66 (1), 75-79 (1994).
- Perez-Mitta, G., MacKinnon, R. Freestanding lipid bilayer tensiometer for the study of mechanosensitive ion channels. Proc Natl Acad Sci U S A. 120 (12), e2221541120 (2023).
- Sorum, B., et al. Tension activation of mechanosensitive two-pore domain K+ channels TRAAK, TREK-1, and TREK-2. Nat Commun. 15 (1), 3142 (2024).
Reimpresiones y permisos
Este artículo ha sido publicado
Video próximamente