Este protocolo proporciona un método estandarizado para aislar y enriquecer mioblastos primarios del músculo óseo de ratón adulto y neonatal mediante disociación tisular, filtración secuencial, pre-placado y condiciones definidas de cultivo, permitiendo el establecimiento y mantenimiento de cultivos de mioblastos derivados de células satélite para aplicaciones experimentales posteriores.
Artículo de método
Aislamiento de células satélite del músculo esquelético para estudios in vitro de miogénesis
* These authors contributed equally
En este artículo
Resumen
Resumen
La regeneración y el crecimiento del músculo esquelético dependen de las células satélite, las células madre residentes del tejido muscular. Actualmente, estas células sirven como el modelo in vitro que representa con mayor precisión los procesos miogénicos naturales. No obstante, el aislamiento de las células satélite es técnicamente complicado, ya que existen en pequeños números dentro del músculo esquelético y la naturaleza típicamente heterogénea de las poblaciones celulares aisladas. En este estudio, describimos un método estandarizado para aislar y enriquecer mioblastos primarios de músculos esqueléticos tanto de ratones adultos como neonatales. El procedimiento describe la disección muscular, la disociación enzimática, la filtración secuencial, los pasos de pre-placado para limitar las células no miogénicas y las condiciones definidas de cultivo para establecer cultivos de mioblásticos derivados de células satélite. El protocolo ofrece orientación práctica sobre el momento, la gestión y los pasos críticos para establecer una cultura exitosa. Los mioblastos primarios generados mediante este protocolo pueden utilizarse para una variedad de aplicaciones posteriores, incluyendo estudios de miogénesis, análisis funcional, manipulación genética, imagen de células vivas o pruebas de fármacos. Las células se fusionan y maduran de forma fiable, lo que las hace muy adecuadas para estudiar la fusión de mioblastos, el desarrollo muscular, los mecanismos regenerativos para restaurar la función muscular esquelética, así como su metabolismo.
Introducción
La capacidad del músculo esquelético para regenerarse tras cualquier insulto a su integridad depende fundamentalmente de una población especializada de células precursoras miogénicas, conocidas como células satélite (SC), llamadas así por su posición satélite a lo largo de la miofibra. Se localizan bajo la lámina de las fibras musculares, unidas a las fibras muscularesmultinucleadas 1,2,3. Los SC se caracterizan por la expresión de la proteína caja emparejada Pax7, que se conserva en múltiples especies, incluyendo humanos, ratones, monos y cerdos. Pax7, que fue identificado como el primer marcador detectable de los SCs tanto en estado de reposo como activado, es esencial para el desarrollo y la supervivencia de losSCs 4. En condiciones normales, los SC se mantienen en estado de reposo (fase G0 del ciclo celular), caracterizado por una baja actividad metabólica y inactivostranscripcionalmente 5,6. Tras una lesión muscular o estrés mecánico, se activan, reanudan el ciclo celular, se expanden en número y se diferencian para contribuir a nuevas miofibras o reparar las dañadas 7,8,9. Durante este proceso, un subconjunto de SCs debe someterse a una autorrenovación, regresando a un estado de reposo (Pax7⁺) para mantener la integridad a largo plazo del pool de células madre. La autorrenovación ocurre mediante división asimétrica, donde una célula hija conserva características similares a las de un tallo mientras la otra se convierte en un progenitor miogénico comprometido, o por división simétrica, donde ambas células hijas mantienen una identidad similar a la del tallo o se diferencian, dependiendo del contexto fisiológico y de nicho 10,11,12.
Los SC desempeñan un papel vital en la regeneración muscular, lo que los convierte en un foco clave en la biología del músculo esquelético, la medicina regenerativa y la investigación sobre la distrofia muscular. Comprender cómo se comportan y funcionan estas células no solo arroja luz sobre los procesos fundamentales de reparación muscular, sino que también allana el camino para desarrollar terapias que traten condiciones de desgaste muscular y mejoren la regeneración.
El aislamiento de los SC del tejido muscular es un paso crucial en los estudios in vitro , permitiendo investigar sus características moleculares, potencial de proliferación, vías de diferenciación y respuestas a diversos estímulos. Sin embargo, este proceso presenta varios desafíos técnicos debido a la compleja estructura del músculo, la relativamente baja abundancia de células satélite en comparación con otros tipos celulares y la necesidad de preservar su viabilidad y resistencia durante el aislamiento.
Actualmente, se emplean tres técnicas principales para el aislamiento de los SCs: el método de preplacado, la clasificación de celdas activadas por fluorescencia (FACS) y la clasificación de celdas activadas magnéticamente (MACS). Cada método ofrece ventajas y limitaciones distintas en términos de pureza, rendimiento, viabilidad celular y preservación de los SCs.
El método de pre-placado aprovecha las propiedades adhesivas diferenciales de las células derivadas del músculo, siendo los SC de los menos adherentes. Tras digerir enzimáticamente el músculo esquelético, la suspensión celular heterogénea resultante se coloca sobre placas de cultivo normalmente recubiertas con colágeno tipo I. Tras 1-24 horas (dependiendo del protocolo) de incubación a 37°C, se recogen células no adherentes y se transfieren a una placa recubierta de Matrigel para un cultivoadicional 13,14,15,16. La población resultante suele incluir tanto SCs como fibroblastos, así como un pequeño número de adipocitos y célulasendoteliales 17,18. Repetir el proceso de pre-placado cada 24-48 horas durante hasta una semana para SCs aislados de ratones adultos y hasta 2 semanas para neonatos puede mejorar la pureza de la población celular. Aunque este método es rentable y técnicamente sencillo, requiere mucho trabajo y a menudo produce cultivos con composición variable. El método de pre-placado es adecuado para laboratorios sin FACS ni MACS, ofreciendo una forma sencilla de enriquecer células satélite mientras preserva la viabilidad y las propiedades similares a los tallos. Por ello, generalmente se recomienda combinar este enfoque con métodos adicionales de purificación para mejorar la pureza general de la población celular. En el protocolo actual, optimizamos el paso de pre-placado utilizando placas recubiertas de colágeno y ajustando el tiempo según el modelo. Esta adherencia diferencial acelera la eliminación de fibroblastos, acortando el periodo previo al encubrimiento, utilizando factores de crecimiento y reduciendo tanto el tiempo de manipulación como el estrés celular durante el aislamiento.
El FACS es un método ampliamente utilizado para aislar células satélite basado en la expresión de marcadores superficiales específicos (α7-integrina, CD34, CD29, β1-integrina, CXCR4), lo que permite una alta pureza y especificidad19,20. Sin embargo, a menudo resulta complicado debido a la complejidad técnica, el alto coste de los anticuerpos y la necesidad de equipos especializados. Además, el estrés mecánico y bioquímico impuesto durante la clasificación puede comprometer la viabilidad celular. La necesidad de generar una suspensión de célula única puede resultar en una pérdida celular significativa, mientras que la dependencia de marcadores fluorescentes específicos puede llevar a una representación incompleta de la heterogeneidad de las células satélite. Además, la digestión enzimática, que se emplea para disociar células, tiene el potencial de degradar antígenos superficiales críticos, afectando así la identificación y aislamiento precisos, y también puede afectar la funciónmioblasta 21,22. FACS es adecuado para aislar poblaciones altamente puras en un corto periodo, especialmente cuando se requiere una resolución fenotípica precisa. Sin embargo, este método es menos adecuado cuando mantener células intactas y viables es crítico, debido a las tensiones mecánicas y bioquímicas impuestas durante la clasificación, o para laboratorios que carecen de equipos especializados.
El MACS, por otro lado, es una técnica utilizada para aislar células satélite uniendo perlas magnéticas conjugadas a anticuerpos contra marcadores superficiales específicos de fibroblastos y células inmunitarias generales a sus superficies, y luego separarlas de poblaciones celulares no deseadas mediante un campo magnético. La elución de la selección negativa desde la fase estacionaria es la población de células satélite de interés. El MACS permite el enriquecimiento eficiente de celdas satélite con una pureza y escalabilidad relativamente altas, mientras requiere menos equipos especializados y conocimientos técnicos en comparación con el FACS. Además, su suave proceso de separación magnética preserva la integridad celular, lo que la hace adecuada para aplicaciones posteriores como cultivo celular, análisis de expresión génica y estudios de trasplante. Sin embargo, el MACS está limitado por una menor pureza cuando se necesitan múltiples marcadores, posible unión inespecífica o retención de perlas, y la falta de datos cuantitativos sobre la expresión demarcadores 23,24,25.
A pesar de la disponibilidad de protocolos para el aislamiento de células musculares esqueléticas, obtener cultivos primarios reproducibles y composicionalmente uniformes sigue siendo un reto, especialmente debido a la variabilidad del desarrollo y específica del tejido. El aislamiento de los SCs de los músculos neonatales ha sido menos caracterizado que en los músculos adultos, con relativamente menos protocolos publicados, muchos de los cuales requieren optimización adicional según las condiciones técnicas y el propósito experimental 26,27,28. El ajuste de parámetros, incluyendo la concentración enzimática, la duración de la digestión y las condiciones de cultivo, es a menudo necesario para diferentes etapas de desarrollo, especialmente en neonatos, para lograr el máximo rendimiento, viabilidad y pureza de las células satélite aisladas. En este artículo, demostramos un protocolo optimizado para el aislamiento de células satélite de músculos esqueléticos de ratones adultos y neonatales (días postnatales 6-14, P6-P14), combinando el preplacado y la clasificación MACS con ajustes en el momento de preplacado y composición del medio. Este protocolo ofrece una población celular reproducible a lo largo de las etapas del desarrollo, con células aisladas que muestran alta pureza y viabilidad. La inmunotinción indica que la proporción de células Pax7+ suele superar el 97%. Además, estos mioblastos exhiben un potencial de diferenciación robusto, formando miotubos multinucleados de forma eficiente al sustituir el medio de crecimiento por medio de diferenciación. Los miotubos diferenciados pueden observarse mediante microscopía de contraste de fase o verificarse mediante inmunotinción para la cadena pesada de miosina (MHC), un marcador indicativo de fibras musculares maduras.
Protocolo
En este estudio se utilizaron ratones machos adultos (3 meses) del genotipo C57BL/6J × STOCK Tyrcch Bmp5se+/+ Myo6sv/J, así como ratones recién nacidos machos y hembras (días posnatales 6-14, P6-P14) del genotipo C57BL/6J x flox/MK5/flox. Los ratones fueron criados y criados en condiciones libres de patógenos dentro de la instalación animal del Instituto Nencki de Biología Experimental, PAS. A lo largo de los experimentos, los ratones recibieron una dieta convencional para roedores. El cuidado animal y la eutanasia se llevaron a cabo de acuerdo con las directivas del Consejo de las Comunidades Europeas adoptadas en Polonia (Ley del 15 de enero de 2015 relativa al uso de animales en la investigación). Como todos los estudios usaban tejidos de animales sin causar sufrimiento, no se exigía la aprobación de un comité de ética. Los procedimientos se realizaron bajo la supervisión y autorización del Director del Instituto Nencki de Biología Experimental. Se concedieron las siguientes aprobaciones internas: 410P/2021/IBD y 487W/2022/IBD. Para los experimentos, se analizaron los siguientes músculos de las extremidades posteriores en animales adultos: gastrocnemio, sóleo, extensor largo del dedo y tibial anterior. En el recién nacido, se examinaron todos los músculos del tríceps de la extremidad posterior y antelantera.
Una visión general esquemática del procedimiento para aislar y purificar mioblastos primarios de los músculos de las extremidades posteriores de ratones se muestra en la Figura 1.
La información sobre los reactivos y equipos utilizados en este estudio se proporciona en la Tabla de Materiales.
1. Disección muscular
- Eutanasiar al ratón de acuerdo con las directrices aprobadas por la IACUC establecidas en la institución.
- Disecciona los músculos de las extremidades posteriores fuera del armario de bioseguridad. Rocía las extremidades traseras con etanol al 70% y coloca al ratón en posición supina.
NOTA: No se requiere técnica estéril para este paso, salvo el uso de instrumentos de disección autoclave y etanol al 70% para la descontaminación superficial. - Colección de músculos
- Retira cuidadosamente la piel de ambas extremidades traseras usando tijeras autoclavadas para exponer la musculatura subyacente. Con tijeras y pinzas estériles, haz una incisión en la piel dorsal y despega suavemente para exponer completamente los músculos de las extremidades posteriores. Retira cualquier tejido adiposo visible y tendones para asegurar una preparación limpia.
- Despega cuidadosamente la fascia que rodea el abdomen del músculo para asegurar un aislamiento más homogéneo y menos contaminación. Sigue aislando los tejidos y recoge músculos de una extremidad trasera. Transfiere inmediatamente los músculos a una placa de cultivo que contiene 1x solución salina con fosfato bufferizado con penicilina y estreptomicina al 1% (PBS + P/S). Repite la disección para la extremidad trasera opuesta y coloca los músculos en una segunda placa de cultivo que contenga PBS + P/S.
NOTA: El rango de edad óptimo para ratones recién nacidos es el día 6 (P6) al día 14 (P14) postnatal. Por debajo de P6, el aislamiento muscular es menos preciso y puede provocar contaminación de los tejidos circundantes, reduciendo así la homogeneidad del cultivo. A partir de P6, el aislamiento de los vientres musculares —desde el origen hasta los tendones de inserción— se vuelve más limpio y, por tanto, mejora la calidad general de los explantes. En ratones recién nacidos, los músculos de varios animales pueden agruparse en una sola placa. A partir de ese momento, todos los procedimientos deben realizarse en condiciones estériles en un gabinete de bioseguridad para evitar contaminaciones, y a temperatura ambiente (RT) si no se especifica lo contrario.
- Rocía el exterior de la placa con etanol al 70% antes de transferirla a un armario de bioseguridad estéril. Utilizando un segundo par de pinzas autoclave, transfiere los músculos de la placa de cultivo al primer pozo de una placa de 6 pozos que contiene PBS + P/S, y luego añade 2-3 gotas de betadine (100 mg/mL) para descontaminar el tejido. Tras un suave sacudón durante menos de 10 segundos, transfiere rápidamente los músculos por el segundo y tercer pozo que contienen PBS + P/S fresco para enjuagar bien la betadine y eliminar cualquier vello, tejido conectivo u otros restos restantes.
NOTA: Los músculos no deben estar expuestos a la betadina durante un periodo prolongado, ya que puede ser tóxica para las células.
2. Digestión muscular
- Utilizando un segundo par de pinzas autoclave, transfiere los músculos lavados a dos tubos de 1,5 mL (uno por grupo muscular de la extremidad posterior). Pica finamente el tejido con tijeras autoclavadas hasta que el músculo se reduzca a pequeños fragmentos uniformes de aproximadamente 1-2 mm de tamaño, asegurando una exposición uniforme durante la digestión enzimática posterior.
- Digestión por colagénasa
- Transfiere los músculos triturados a tubos de disociación tisular, que contienen un 0,2% de colagénasa en el Medio Eagle Modificado (DMEM) de Dulbecco, filtrado con un filtro de poros de 0,2 μm. Utiliza un tubo de disociación para cada grupo muscular de la extremidad posterior, manteniendo una proporción de 500 mg de tejido por cada 3 mL de solución de colagenasa.
NOTA: La colagénasa es una enzima proteolítica que puede causar irritación en la piel y los ojos, así como sensibilización respiratoria si se inhala. Manipula el polvo en una campana extractora química y usa el equipo de protección personal adecuado.
Un minucioso triturado del tejido muscular en esta etapa es fundamental para lograr un rendimiento óptimo de mioblastos. Sin embargo, si la masa tisular total supera los 500 mg, aumenta proporcionalmente la cantidad de colagenosa, ya que un exceso excesivo de tejido puede comprometer la eficiencia digestiva enzimática a la concentración enzimática descrita a continuación. - Incubar las muestras durante 30 minutos a 37 °C para iniciar la digestión enzimática.
- Transfiere los músculos triturados a tubos de disociación tisular, que contienen un 0,2% de colagénasa en el Medio Eagle Modificado (DMEM) de Dulbecco, filtrado con un filtro de poros de 0,2 μm. Utiliza un tubo de disociación para cada grupo muscular de la extremidad posterior, manteniendo una proporción de 500 mg de tejido por cada 3 mL de solución de colagenasa.
- Realizar disociación tisular utilizando un disociador tisular mecánico con el programa m_muscle_01 (que se refiere a un programa específico, predefinido y optimizado en el disociador que consiste en agitación mecánica controlada) diseñado para facilitar la digestión enzimática mientras se preserva la viabilidad celular. Aplica el programa dos veces para potenciar la alteración mecánica del tejido.
- Si no hay un disociador tisular disponible, pasa los músculos picados varias veces por una aguja de jeringuilla de 20 G hasta obtener una suspensión homogénea sin grandes fragmentos de tejido.
Alternativamente, transfiere el músculo picado a un tubo cónico de 15 mL con colagenasa al 0,2%.
- Si no hay un disociador tisular disponible, pasa los músculos picados varias veces por una aguja de jeringuilla de 20 G hasta obtener una suspensión homogénea sin grandes fragmentos de tejido.
- Incubar las muestras de nuevo durante 30 minutos adicionales a 37 °C para completar el proceso de digestión.
- Repita el paso 2.3 una vez más para asegurar una disociación mecánica completa del tejido restante.
NOTA: Observa cuidadosamente la digestión muscular en esta etapa. El tejido debe estar casi completamente disociado, dejando fragmentos visibles mínimos, y el medio digestivo debe parecer turbio. La incubación excesiva daña las células.
3. Filtración celular
- Coloca un colador de celda de 100 μm encima de un tubo cónico de 50 mL. Prehumedecer el colador con 1 mL de medio neutralizante (NM) precalentado (hasta 37 °C) que contenga DMEM de glucosa alta con un 10% de suero fetal bovino (FBS) y 1% de P/S.
- Vierte la suspensión muscular digerida sobre el colador prehumedeado de 100 μm. Enjuaga el colador con 1 mL adicional de NM para eliminar los restos residuales de tejido.
- En un nuevo tubo cónico de 50 mL, coloca un colador de celda de 70 μm y prehumedecelo con 1 mL de medio NM. Pasar el filtrado del colador de 100 μm a través de un colador prehumedecido de 70 μm para eliminar aún más células infiltrantes más grandes, incluidos los macrófagos. Enjuaga el colador de 70 μm con 1 mL de NM para recuperar las células restantes.
- En un tubo cónico nuevo de 50 mL, coloque un colador de celda de 40 μm y pase la mezcla celular por el colador prehumedecido de 40 μm. Enjuaga el colador de 40 μm con 1 mL de NM para recuperar las células restantes.
- Prepara un colador de celdas de 30 μm en un tubo cónico de 15 mL y prehumédelo con 1 mL de NM. Pasar el filtrado del filtro de 40 μm a través del colador prehumedecido de 30 μm para refinar aún más la suspensión de la celda. Lava el colador de 30 μm con 1 mL de NM para maximizar la recuperación celular.
- Centrifuga la suspensión de celda recogida a 300 × g durante 15 minutos en RT. Confirma que hay un pellet de glóbulos blancos visible en el fondo del tubo. Trabajando bajo un armario de bioseguridad estéril, retira y descarta cuidadosamente el sobrenadante (medio digestivo).
NOTA: Tras la centrifugación, el pellet celular puede ser resuspendido en un medio de proliferación de mioblastos (MPM) y proceder directamente a la sección 5 para el enriquecimiento de mioblastos o, opcionalmente, ser sometido a clasificación celular activada magnéticamente (MACS, descrito más adelante) para aumentar aún más la pureza de la población de mióblastos.
4. (Opcional) Clasificación de celdas activadas magnéticamente
- Resuspende el pellet celular obtenido en el paso 3.6 en un tampón de clasificación MACS recién preparado, compuesto por 1x PBS (pH 7,2), 0,5% FBS y 2 mM EDTA. Utiliza 80 μL de tampón por gramo de tejido original.
NOTA: Mantenga el buffer de clasificación MACS entre 2 y 8 °C durante todo el procedimiento. - Añadir 20 μL de reactivo de marcado magnético para aislamiento de células satélite por cada hasta 1 g de tejido.
NOTA: Para muestras menores a 1 g, utilice los mismos volúmenes de reactivos indicados para 1 g. Para muestras mayores a 1 g, escala todos los volúmenes de reactivos proporcionalmente (por ejemplo, para 2 g de tejido, usa el doble del volumen de reactivos). - Mezcla suavemente la muestra para asegurar un marcado homogéneo e incuba durante 15 minutos a 2-8 °C sobre hielo.
- Tras la incubación, ajustar el volumen total a 500 μL con el tampón de clasificación MACS para muestras derivadas de hasta 5 g de tejido. Para cantidades mayores de tejido, divide la suspensión por igual en varios tubos para mantener una eficiencia óptima de separación.
- Separación magnética y recogida de celdas satélite
NOTA: Realizar la separación magnética utilizando un sistema de separación de celda magnética según las instrucciones del fabricante.- Coloca una columna de separación en el campo magnético del separador magnético. Lava la columna de separación con 3 mL de tampón de clasificación para equilibrarla antes de la aplicación de la muestra.
- Aplicar la suspensión celular marcada sobre la columna y recoger la fracción eluente, que contiene la población enriquecida con células satélite.
- Lava la columna con dos porciones secuenciales de 1 mL de buffer de clasificación. Añade cada alicuota solo después de que el depósito de la columna se haya vaciado. Recoge las celdas que pasan y combínalas con el eluente del paso 4.5.3.
- Centrifugar la suspensión de celdas combinadas a 300 × g en RT durante 10 minutos para pelletar las celdas satélite aisladas en MPM.
5. Purificación de mioblastos (paso de pre-placado)
- Prepara placas recubiertas de colágeno.
- Diluir colágeno de rata tipo I en 20 mM de ácido acético (disuelto en agua destilada estéril) hasta una concentración de trabajo de 50 μg/mL y añadirlo al recipiente de cultivo. Incubar en tiempo de descanso durante 1 hora.
NOTA: Se requieren aproximadamente 5 mL de colágeno de 50 μg/mL para recubrir una placa de 100 mm con una superficie de ≈80cm2. - Aspira cuidadosamente la solución de las placas.
- Enjuaga bien las placas 3 veces con PBS estéril 1x en volúmenes iguales para eliminar el ácido restante.
NOTA: Los platos son adecuados para uso inmediato o pueden secarse al aire y almacenarse a 2-8 °C hasta que sea necesario.
- Diluir colágeno de rata tipo I en 20 mM de ácido acético (disuelto en agua destilada estéril) hasta una concentración de trabajo de 50 μg/mL y añadirlo al recipiente de cultivo. Incubar en tiempo de descanso durante 1 hora.
- Pellet de células de resuspensión obtenido en el paso 3.6 o 4.5.4 en 10 mL de medio proliferante de mióblastos (MPM) precalentado a 37 °C.
- Preparar MPM para mioblastos de ratón adultos que contienen DMEM de glucosa alta, 20% de FBS, 10% de suero de caballo (HS), 0,5% de extracto de embrión de pollo (CEE), 20 ng/mL de factor de crecimiento fibroblasto básico (bFGF) disuelto enH2Odestilado estéril, y 1% de P/S o MPM para mioblastos neonatales de ratón que contienen medio F10 (favorece un crecimiento más controlado y selectivo para el cultivo neonatal, que contiene una mayor proporción de fibroblastos), 20% FBS, 10% HS, 0,5% CEE, 20 ng/mL bFGF y 1% de P/S.
NOTA: Añadir bFGF directamente al medio de cultivo hasta una concentración final de 20 ng/mL. la bFGF es esencial para preservar el estado indiferenciado de los mioblastos y promover suproliferación.
La CEE también promueve el crecimiento y proliferación de mioblastos, además de desempeñar un papel importante en el mantenimiento de cultivos sanos de mióblastos al prevenir la fusión espontáneade mióblastos 14,30,31. - Una vez que el cultivo alcanza una mayor pureza miogénica (normalmente tras tres pasajes), el medio en mioblastos neonatales puede pasar a MPM que consiste en una mezcla 1:1 de DMEM de alta glucosa y F10, y posteriormente a la formulación estándar de MPM utilizada para mioblastos de ratón adultos.
NOTA: Es importante verificar la pureza inicial de antemano, ya que los cambios en el medio eliminarán la ventaja selectiva de crecimiento de los mioblastos frente a los fibroblastos. - Pre-placa.
- Primer pre-chapado
- Mioblastos adultos: Células semilla en placas recubiertas de colágeno. Mantén la placa en una incubadora deCO2 a 37 °C durante 24 horas.
- Mioblastos neonatales: Emplatar las células en platos recubiertos de colágeno e incubarlas durante 24 horas. Mantener cultivos en MPM complementados con medio F10 (véase la sección 5.4), salvo que se especifique lo contrario.
NOTA: En esta etapa, el examen microscópico revela una mezcla heterogénea de fragmentos musculares y células (Figura 2A).
Los fibroblastos neonatales muestran una alta capacidad proliferativa, mayor flexibilidad del citoesqueleto (caracterizada por una red actina-miosina menos rígida y un recambio focal de adhesión más dinámico) y presentan perfiles de expresión de integrina distintivos, en comparación con los fibroblastos adultos32,33. Estas características permiten una adherencia eficiente a las superficies de cultivo incluso en ausencia de recubrimientos de matriz extracelular exógena, como el colágeno. Por lo tanto, para mioblastos neonatales, las placas recubiertas de colágeno podrían sustituirse por el plástico estándar de cultivo tisular sin recubrir, aunque esto podría aumentar el número de preplacas necesarias.
- Segunda pre-plateado
- Mioblastos adultos: Utilizando una pipeta serológica de 10 mL, transfiere suavemente las células aún suspendidas en MPM a una placa recubierta de colágeno precalentada a 37 °C. Enjuaga la placa original con 1-2 mL de MPM tibio para recuperar las células que queden sin unir. Guarda la placa en una incubadora deCO2 a 37 °C durante 6-8 horas.
NOTA: El proceso debe ser cuidadosamente monitorizado mediante microscopía de contraste de fase para asegurar que todas las células no adherentes, que representan todo el espectro de células miogénicas, sean recogidas y transferidas a nuevas placas de cultivo. - Mioblastos neonatales: Repite un segundo preplacado en placas recubiertas de colágeno durante otras 16 horas, enjuagando la placa original con 1-2 mL de MPM F10 caliente para recuperar las células no unidas restantes.
NOTA: Las células grandes, predominantemente fibroblastos, permanecerán unidas a la base de la placa recubierta de colágeno (Figura 2B y Figura 3).
- Mioblastos adultos: Utilizando una pipeta serológica de 10 mL, transfiere suavemente las células aún suspendidas en MPM a una placa recubierta de colágeno precalentada a 37 °C. Enjuaga la placa original con 1-2 mL de MPM tibio para recuperar las células que queden sin unir. Guarda la placa en una incubadora deCO2 a 37 °C durante 6-8 horas.
- Primer pre-chapado
- Células de recubrimiento en placas recubiertas de Matrigel
- Prepara una solución de Matrigel al 10% diluyendo Matrigel con DMEM en frío. Usando una punta dispensadora, cubre uniformemente la superficie de la placa hasta que quede completamente cubierta. Deja que Matrigel polimerice a 37 °C durante 15 minutos.
NOTA: El recubrimiento con matriz debe realizarse sobre hielo, ya que se polimeriza rápidamente en RT. - Transfiere las células no adherentes de una placa recubierta de colágeno a una placa recubierta de Matrigel. Enjuaga la placa recubierta de colágeno con 1-2 mL de MPM tibio para recuperar las células restantes. Mantén la placa en la incubadora deCO-2 a 37 °C durante 72 horas.
- Para mioblastos adultos, confirmar que el cultivo contiene predominantemente mioblastos pequeños y redondeados adherentes después de 72 horas (Figura 2C). También pueden estar presentes algunos fibroblastos grandes de forma triangular, pero en abundancia muy baja. Si aún queda un gran número de fibroblastos tras la siembra en Matrigel, repite los pasos de pre-placado de 2 a 6 horas, dependiendo de la abundancia de fibroblastos.
- Para mioblastos neonatales, se realizan conductos adicionales combinados con un paso de pre-placado para eliminar fibroblastos y enriquecer progresivamente la población de mióblastos desde el cultivo heterogéneo inicial.
- Prepara una solución de Matrigel al 10% diluyendo Matrigel con DMEM en frío. Usando una punta dispensadora, cubre uniformemente la superficie de la placa hasta que quede completamente cubierta. Deja que Matrigel polimerice a 37 °C durante 15 minutos.
6. Mantenimiento y expansión de mioblastos
- Mantén mioblastos purificados en cultivo incubándolos en MPM, reemplazando el medio cada dos días.
NOTA: Evita permitir que las células superen el 60-70% de confluencia, ya que una mayor densidad puede desencadenar una fusión espontánea de mióblastos e iniciar la diferenciación. - Si es necesario, expande el cultivo dividiendo las células en varias placas recubiertas con un 10% de Matrigel.
NOTA: Mioblastos adultos: generalmente se recomiendan 2-3 conductos, ya que los conductos adicionales aumentan la elongación celular y la fusión espontánea. Los mioblastos neonatales pueden experimentar típicamente de 5 a 6 conductos sin una fusión espontánea significativa.- Para ampliar la población de mióblastos, se utiliza una mezcla 1:1 de DMEM de alta glucosa y F10 en MPM a partir del paso 3, una vez que la contaminación por fibroblastos haya disminuido sustancialmente. Para el pasaje 4, la cultura suele estar compuesta por una población de mióblastos casi pura; Cambiar a MPM para mioblastos neonatales de ratón.
7. Diferenciación de los mióblastos
- Visualiza las células bajo un microscopio. Confirma que las células son relativamente uniformes, pequeñas, redondas o en forma de huso, que proliferan activamente y que no están sobrepobladas. Esto asegura que la cultura esté lista para la diferenciación.
- Recubre la superficie del cultivo de tejidos adecuada para el diseño experimental con un 10% de Matrigel, como se describe en la sección 5.6.1.
NOTA: Aunque la calidad de imagen es superior en superficies de vidrio, las células miogénicas mostraron una menor adherencia y viabilidad en cámaras de vidrio, probablemente debido a una menor adhesión proteica Matrigel en comparación con el plásticode cultivo tisular 34. - Despega las células añadiendo 2 mL de tripsina-EDTA al 0,25% e incuba a 37 °C en una incubadora de CO₂ durante 2-5 minutos.
- Examina el cultivo al microscopio para confirmar que todas las células se han desprendido. Una vez completado el desprendimiento, añadir 2 mL de medio neutralizante (véase la sección 3.1).
- Centrifuga la suspensión de la celda a 300 × g en RT durante 10 minutos para pelletar las celdas.
- Resuspender y sembrar mioblastos primarios sobre placas de cultivo recubiertas de Matrigel e incubar a 37 °C en una incubadora de CO₂ durante 24 horas.
- Al día siguiente, sustituye el MPM por un medio diferenciador de mioblastos (MDM) que contenga DMEM con alta glucosa, 5% de HS y 1% de P/S.
NOTA: Para lograr una formación de miotubo de alta calidad, asegúrese de que los mioblastos alcancen una confluencia del 80-90% antes de cambiar al medio de diferenciación. Si no se alcanza la confluencia deseada al día siguiente, continúa la incubación hasta alcanzar la densidad óptima.
8. Inmunotinción de mioblastos y miotubos
- Lava las células dos veces con 1 PBS para eliminar el medio residual.
- Fija las células con paraformaldehído (PFA) al 4% en 1x PBS durante 15 minutos en RT. Se llevarán a cabo más pasos en RT si no se especifica lo contrario.
NOTA: El PFA es tóxico. Siempre maneja soluciones de PFA en una campana extractora química mientras llevas guantes, bata de laboratorio y protección ocular. Evita el contacto directo con la piel o los ojos. Eliminar los residuos que contienen PFA conforme a las normativas institucionales sobre productos químicos y biohazards. - Incubar las células fijas con 50 mM de cloruro de amonio (NH₄Cl) durante 30 minutos en RT (preferiblemente en un agitador, 50-100 rpm) para apagar los grupos aldehídos libres y reducir la unión inespecífica durante los siguientes pasos de tinción.
- Lava las células durante 3 x 5 minutos a RT con 1 PBS (en un shaker, 50-100 rpm).
- Realizar permeabilización de las células con 0,2% de Triton X-100 en 1x PBS durante 10 minutos (en un shaker).
- Lava las células durante 2-3 x 5 minutos con 1 PBS (en un shaker).
- Bloquear la unión de anticuerpos inespecíficos incubando las células en una solución bloqueante (suero de caballo al 2% en 1x PBS que contiene 0,02% de Triton X-100) durante 1,5 horas en RT (en un agitador, 50-100 rpm).
- Incubar las células durante la noche a 4 °C con los anticuerpos primarios diluidos (Pax7 - 1:100; MHC - 1:50) en solución de bloqueo (en un agitador, 50-100 rpm).
- Lava las celdas 3 x 10-15 minutos con 1 PBS que contenga un 0,02 % de Triton X-100 (en un agitador, 50-100 rpm).
- Incubar las células con anticuerpos secundarios adecuados diluidos 1:250 en solución bloqueante durante 1-1,5 horas en RT (sobre un agitador y protegidos de la luz).
- Lava las celdas durante 3 x 10-15 minutos con 1 PBS que contenga 0,02 % de Triton X-100 (en un agitador, 50-100 rpm).
- Montar las muestras utilizando un medio de montaje adecuado y una cubierta, según lo especificado por el diseño experimental.
- Para almacenamiento a largo plazo, mantener las muestras montadas a 4 °C, protegidas de la luz.
Resultados
La ejecución exitosa de este protocolo produce cultivos primarios de mióblastos altamente viables y morfológicamente distintos, derivados de músculos de las extremidades posteriores tanto de ratones adultos como neonatales. Al combinar filtración secuencial mediante filtros celulares de poros decrecientes con la clasificación celular activada magnéticamente (MACS) opcional, este protocolo permite el aislamiento de una población de mióblastos altamente purificados. Para mejorar aún más la pureza de las celdas Pax7+ aisladas, se incorporó un paso optimizado de pre-placado. Tras este paso (sección de protocolo 5), la mayoría de los fibroblastos y otras células no miogénicas permanecen adheridas (Figura 3) a la superficie inicial recubierta de colágeno, mientras que los mioblastos permanecen en suspensión y posteriormente se adhieren a las placas recubiertas de Matrigel (Figura 2B). Basándose en la eficacia previamente demostrada de componentes específicos del medio de proliferación de mioblastos (MPM), incluyendo una alta concentración sérica, la suplementación con bFGF y extracto de embrión de pollo (CEE), y el uso de recubrimiento Matrigel, esta formulación, optimizada por nosotros, proporciona una ventaja proliferativa clara para los mioblastos frente a las células no miogénicas 14,30,31,35. Así, dentro de las 72 horas de cultivo en MPM, deberían predominar mioblastos pequeños, redondos a en forma de huso, con una alta relación nuclear-citoplasmático (Figura 2C). Puede quedar una población menor de células grandes y aplanadas similares a fibroblastos, que normalmente representan menos del 3% del cultivo.
El rendimiento celular tras las 72 horas tras el aislamiento con este protocolo depende de la edad de los animales donantes. Para mioblastos aislados de un ratón adulto utilizando cuatro músculos de las extremidades posteriores (gastrocnemio, sóleo, tibial anterior y extensor largo del dedo) de ambas patas, el rendimiento típico es aproximadamente de 2-4 × 10⁶ células por animal. Más del 97% de las células aisladas de ratones adultos (**p < 0,01) y neonatales (***p < 0,0001) eran progenitores miogénicos, según la expresión de Pax7+ (Figura 4A,B), lo que confirma el alto enriquecimiento de los progenitores miogénicos. Esta evaluación de pureza basada en Pax7 se realizó tras completar el flujo de trabajo completo de enriquecimiento, incluyendo el preplacado seguido de MACS y/o expansión, y no sobre las fracciones preplacas adherentes tempranas.
Los mioblastos neonatales alcanzaron alta pureza con o sin MACS (Figura 4A,B), lo que hace que este protocolo sea adecuado para laboratorios con distintos niveles de soporte técnico. Sin embargo, cuando se omite el MACS, se requieren pasos adicionales de pre-placado para alcanzar una pureza comparable.
Para los mioblastos adultos, no se realizó una comparación estadística directa entre poblaciones clasificadas por MACS y no clasificadas. Sin embargo, dada la menor capacidad proliferativa y un mayor compromiso con la diferenciación, se espera que el MACS mejore el enriquecimiento en comparación con el preplateado por sí solo.
Al cambiar a medio de diferenciación (MDM) tras alcanzar una confluencia del 80-90%, los mioblastos se fusionan eficientemente para formar miotubos alargados y multinucleados en un plazo de 48-72 horas. Estos miotubos se visualizan fácilmente mediante microscopía de contraste de fase (Figura 2D) y pueden confirmarse mediante inmunotinción para la cadena pesada de miosina (MHC) (Figura 5A,B). La presencia de estructuras sarcómicas organizadas en miotubos diferenciados (Figura 5B) indica una maduración estructural compatible con la diferenciación miogénica bajo estas condiciones de cultivo.
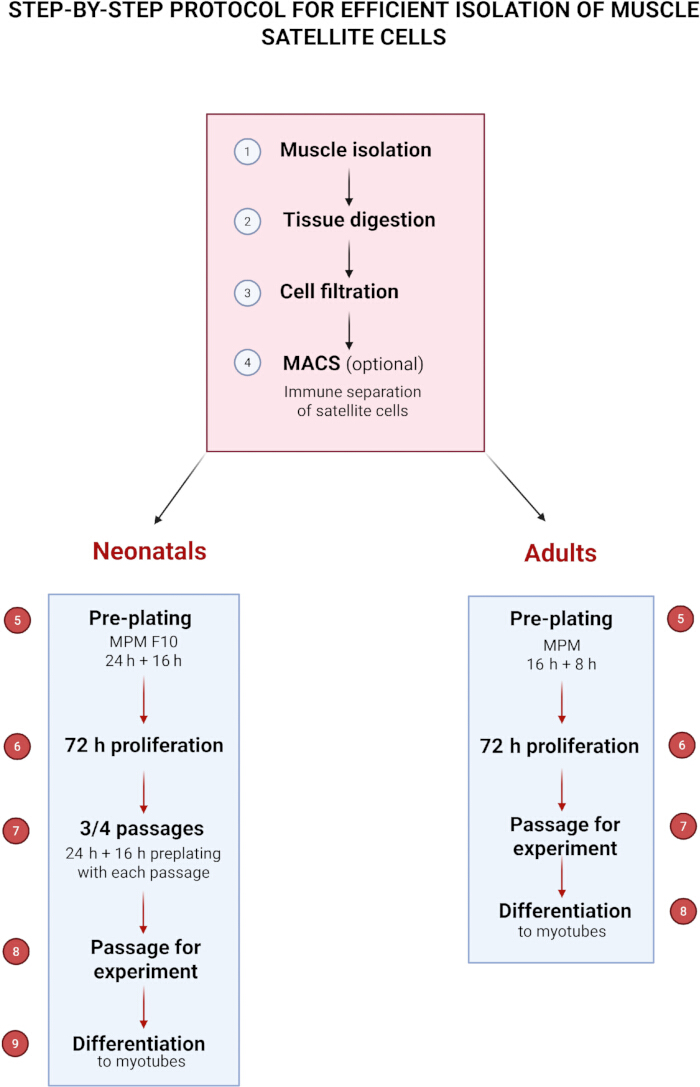
Figura 1: Protocolo paso a paso para el aislamiento eficiente de las células satélite musculares. Por favor, haga clic aquí para ver una versión ampliada de esta figura.
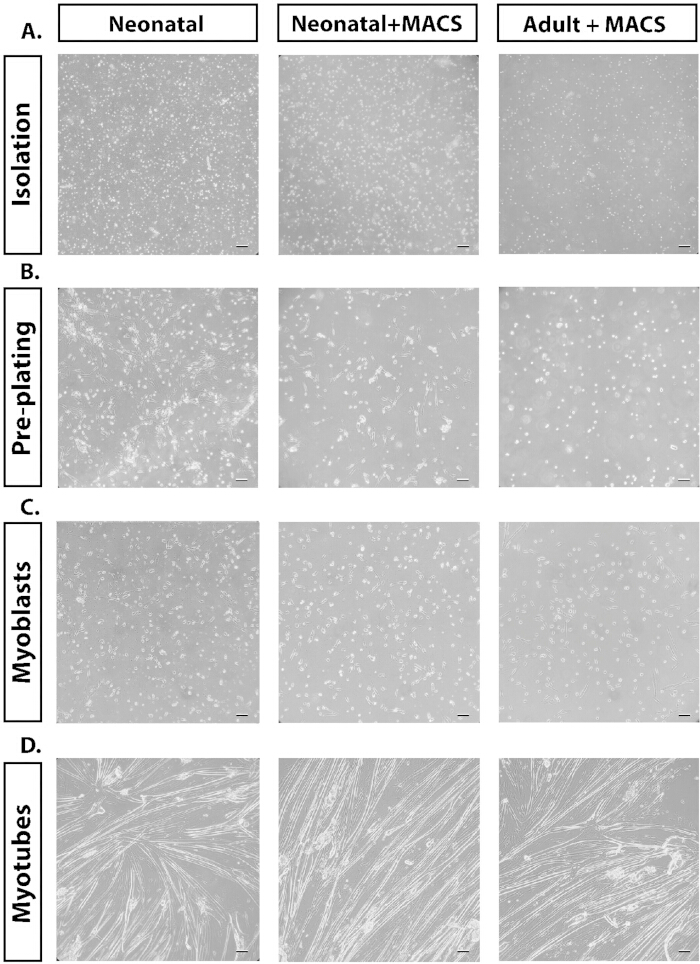
Figura 2: Imágenes representativas de microscopía de contraste de fase de las diferentes metodologías discutidas en el texto. (A) Imágenes de contraste de fase (20x) del aislamiento de las células tras la digestión. (B) Contraste de fase (20x) del preplacado de los cultivos con fibroblastos adheridos, junto con mioblastos no adheridos. (C) Contraste de fase (20x) de mioblastos proliferantes una vez unidos. (D) Contraste de fase (20x) de miotubos diferenciados. Barra de escala = 50 μm. Por favor, haga clic aquí para ver una versión ampliada de esta figura.
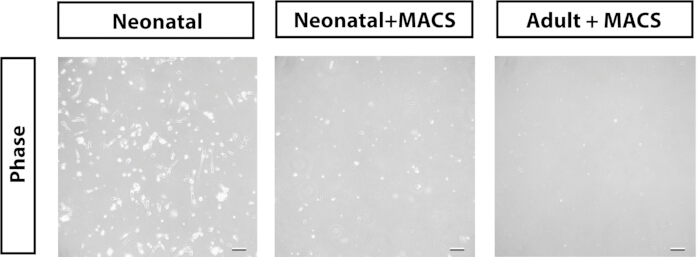
Figura 3: Imágenes representativas de microscopía de contraste de fase (20×) de las células que permanecen unidas tras el primer paso de pre-placado. Barra de escala = 50 μm. Por favor, haga clic aquí para ver una versión ampliada de esta figura.
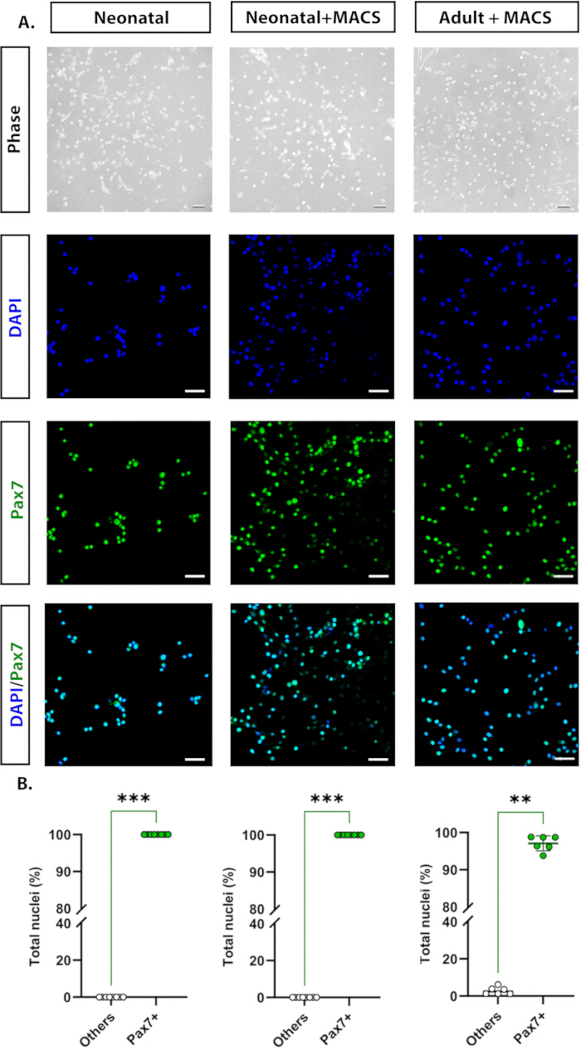
Figura 4: Imágenes representativas tomadas bajo microscopio de contraste de fase (20x) e inmunocitoquímica (40x). (A) Pax7+ (verde) y núcleos teñidos con DAPI (azul claro), y su colocalización en los canales fusionados. (B) Análisis de la pureza del cultivo de mióblastos, cuantificando el porcentaje de células Pax7+ normalizadas a núcleos por campo adquirido (un campo por pozo, en al menos seis pozos). La inmunotinción se repitió al menos tres veces, con dos o tres réplicas técnicas por experimento. **p < 0,01, ***p < 0,0001 (La significación estadística se analizó usando la prueba U de Mann Whitney). Barra de escala = 50 μm. Por favor, haga clic aquí para ver una versión ampliada de esta figura.
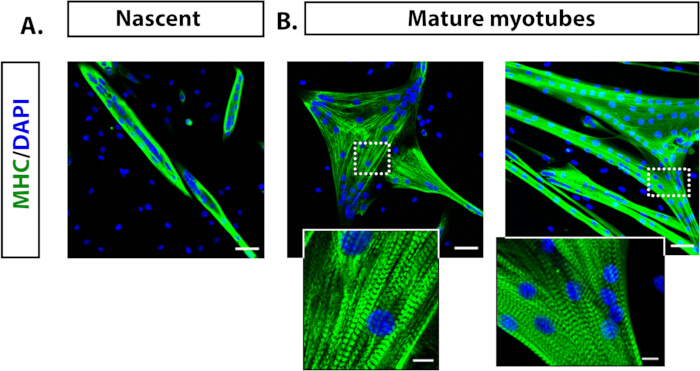
Figura 5: Imágenes representativas de inmunofluorescencia que muestran miotubos diferenciados de mioblastos de ratón adultos. (A) Miotubos incipientes (3 días en cultivo) tomados con 20x de MHC (verde) y núcleos teñidos con DAPI (azul claro). (B) Miotubos maduros (6 días en cultivo) tomados a 20x y detalles de la estructura del patrón sarcómico definidos por la tinción de miosina. La inmunotinción se repitió al menos tres veces, con dos o tres réplicas técnicas por experimento. Barra de escala = 50 μm; Barra de escala ampliada = 10 μm. Por favor, haga clic aquí para ver una versión ampliada de esta figura.
Discusión
Las células satélite (SC) constituyen la principal población madre miogénica y progenitora responsable del crecimiento, reparación y regeneración del músculoesquelético 36,37. Su capacidad para reincorporarse al ciclo celular y diferenciarse en miofibras maduras los hace indispensables para estudiar la biología del músculo esquelético. Cuando se aíslan y cultivan bajo condiciones in vitro definidas, las células elicénicas proliferan como mioblastos que pueden inducirse a diferenciarse y fusionarse en miotubos multinucleados, recapitulando aspectos clave de la miogénesis observados in vivo.
Nuestro método permite la recuperación de poblaciones celulares altamente viables y homogéneas ajustando cuidadosamente parámetros clave, incluyendo la concentración de enzimas, la duración de la digestión y las condiciones del cultivo, especialmente adaptado a tejidos neonatales. La combinación de disociación enzimática y mecánica, seguida de filtración en varios pasos y la clasificación opcional de células activadas magnéticamente (MACS) junto con el preplacado, garantiza un alto rendimiento y pureza celular. Es importante destacar que este protocolo permite la generación de cultivos que normalmente extienden progenitores miogénicos del 97% de Pax7+ , haciéndolos adecuados para ensayos de diferenciación posteriores y estudios moleculares.
La técnica de preplacado se basa en las diferentes propiedades de adhesión de los fibroblastos y los SCs 16,38,39. Este paso es especialmente crítico para determinar la pureza del cultivo, y pequeñas desviaciones en el tiempo o el lavado pueden provocar contaminación por fibroblastos o una reducción de la recuperación de los mióblastos. La inclusión de un paso de preplacado con precisión sincronizada es especialmente ventajosa, ya que separa eficazmente las células miogénicas de los fibroblastos y otras poblaciones no miogénicas. Este enfoque puede emplearse en ausencia de equipos de separación magnética o como medida adicional para aumentar aún más la pureza de los cultivos de mióblastos. En nuestro protocolo, optimizamos este paso utilizando placas recubiertas de colágeno y un periodo de pre-placado con precisión cronometrada, que separa eficientemente las células miogénicas de los fibroblastos y otras poblaciones no miogénicas.
Otro avance metodológico del protocolo actual es el uso de un medio de proliferación de mioblastos (MPM) definido, optimizado tanto para células adultas como neonatales. La combinación de alta concentración sérica, extracto de embrión de pollo (CEE) y factor básico de crecimiento de fibroblastos (bFGF) favorece la proliferación sostenida y el mantenimiento de un fenotipo indiferenciado. La CEE, en particular, contribuye con factores que promueven el crecimiento y mejoran la viabilidad de los mioblastos y retrasan la fusión espontánea, mientras que la bFGF mantiene la identidad de los SC mediante la activación de las vías de señalizacióncanónicas 29,31. El uso de superficies recubiertas de Matrigel mejora aún más la adhesión y la eficiencia de proliferación celular, contribuyendo a la alta viabilidad y homogeneidad morfológica observadas en las 72 horas posteriores al aislamiento.
Al pasar al medio de diferenciación, los mioblastos purificados se fusionan fácilmente en miotubos multinucleados y contráctiles que expresan cadena pesada de miosina (MHC), demostrando un potencial miogénico preservado y una maduración estructural. Los cultivos resultantes son muy adecuados para estudios sobre regeneración muscular esquelética, señalización celular, regulación transcripcional y modelización de enfermedades. La confluencia es un factor crítico, ya que cultivos con confluencia muy baja no progresan, mientras que una confluencia excesivamente alta inducirá fusión y diferenciación de mióblastos. Los mioblastos no deben mantenerse en el mismo plato de cultivo durante más de 5 días, independientemente de la confluencia, ya que una incubación prolongada también puede favorecer la diferenciación.
A pesar de estas ventajas, ciertos pasos siguen siendo sensibles a los fallos. La digestión enzimática debe calibrarse cuidadosamente para equilibrar la disociación tisular con la viabilidad celular. El tiempo de preplacado, la densidad celular antes de la diferenciación y el manejo suave durante la disociación influyen fuertemente en el rendimiento, la pureza y el potencial de fusión. Problemas comunes como la contaminación persistente por fibroblastos, bajo rendimiento, diferenciación prematura, mala fijación o formación débil de miotubo pueden abordarse a menudo mediante ajustes menores en el preplacado, la suplementación de medios o la técnica de blindaje.
Solución de problemas y consideraciones prácticas:
La pureza del aislamiento y la digestión enzimática requieren una atención cuidadosa, ya que variaciones en el tipo de enzima, concentración, tiempo de incubación o picado de tejidos pueden influir fuertemente tanto en el rendimiento celular como en la pureza del cultivo. La digestión insuficiente puede dejar el tejido parcialmente intacto, reduciendo la liberación de células elijosas y obstruyendo el colador en el siguiente paso, mientras que la sobredigestión puede parecer visualmente similar a una biopelícula y comprometer la viabilidad celular. Por tanto, una optimización cuidadosa es esencial para obtener resultados reproducibles.
La filtración y el uso de coladores también son fundamentales, ya que una filtración incompleta o ineficiente puede dejar residuos o agregados tisulares en la suspensión celular, lo que puede interferir con la unión celular y reducir la pureza del cultivo. Utilizar coladores del tamaño adecuado, pasar suavemente la suspensión a través de ellos y prehumedecer los filtros puede mejorar la eliminación de residuos minimizando el estrés mecánico sobre las células. Si fragmentos de tejido más grandes obstruyen el filtro, debe sustituirse por un colador nuevo en lugar de forzar la suspensión, ya que las células pueden quedar atrapadas en la superficie del filtro, lo que disminuye el rendimiento. Repetir la filtración con un filtro nuevo cuando sea necesario puede mejorar aún más la recuperación de mioblastos viables.
La diferenciación prematura o fallida puede ocurrir cuando los cultivos se vuelven excesivamente densos, ya que esto puede desencadenar diferenciación espontánea o fusión prematura, comprometiendo así el tiempo experimental. Por tanto, es fundamental monitorizar la densidad celular y ajustar la densidad de siembra o el volumen medio antes de la diferenciación. En casos de confluencia excesiva, la división parcial o la resiembra suave pueden ayudar a mantener la proliferación sin inducir la formación de miotubos no intencionados. Por el contrario, si no se alcanza la confluencia deseada antes del inicio de la diferenciación, la incubación debe continuar hasta alcanzar la densidad óptima para asegurar una diferenciación efectiva. Mantener mioblastos más allá del plazo recomendado (>5 días) aumenta el riesgo de diferenciación espontánea y reduce la capacidad proliferativa, independientemente de la confluencia inicial. La evaluación regular de la morfología celular, la adhesión a los plazos de cultivo y los cambios oportunos del medio son esenciales para preservar tanto la viabilidad como el potencial de diferenciación.
La contaminación persistente por fibroblastos puede minimizarse mediante un procesamiento meticuloso de tejidos, incluyendo la eliminación cuidadosa del tejido conectivo y adiposo durante la disección muscular. La optimización del paso de pre-placado es especialmente importante, ya que los fibroblastos que se adhieren rápidamente a superficies no recubiertas mientras los SC permanecen en suspensión. El uso de placas de cultivo recubiertas de colágeno en combinación con un medio de proliferación de mióblastos definido, suplementado con bFGF, promueve la expansión selectiva de los mioblastos mientras limita el crecimiento de fibroblastos. Se puede lograr una purificación adicional mediante estrategias de selección negativa como el MACS para agotar las poblaciones de fibroblastos. La monitorización microscópica regular es esencial para detectar el crecimiento excesivo temprano de fibroblastos y permitir una intervención oportuna.
En resumen, este protocolo avanza en la reproducibilidad y eficiencia del aislamiento primario de mioblastos integrando purificación secuencial, condiciones optimizadas de cultivo y opciones de purificación adaptables. Es importante destacar que produce de forma fiable células Pax7+ altamente enriquecidas, que pueden utilizarse además para estudios controlados de la biología de los SCs, compromiso miogénico y dinámica de diferenciación.
En contraste con los protocolos optimizados para una expansión serial prolongada, que pueden alterar el comportamiento celular y reducir el potencial miogénico y la capacidad de fusión, nuestro método está diseñado intencionadamente para preservar células con una identidad miogénica robusta y alta competencia en fusión. Este enfoque es ventajoso para aplicaciones que requieren relevancia fisiológica, diferenciación miogénica eficiente y la retención de características definitorias de los SC, especialmente en experimentos centrados en el estudio de la diferenciación y regeneración miogénica.
Divulgaciones
Los autores no tienen conflictos de interés que declarar.
Agradecimientos
La imagen confocal se realizó en el Laboratorio de Imagen de la Estructura y Función Tisular, que sirve como instalación central de imagen en el Instituto Nencki de Biología Experimental y forma parte de la infraestructura del Nodo Polaco Euro-BioImagery.
Este trabajo fue apoyado por el Centro Nacional de Ciencias de Polonia (beca Sonata 2022/47/D/NZ3/02737 a Lilya Lehka y beca Sonata bis 2020/38/E/NZ4/00314 a Grzegorz Sumara), y fondos estatutarios del Ministerio de Ciencia y Educación Superior al Instituto Nencki. Este trabajo fue apoyado por el proyecto financiado por el Ministro de Educación y Ciencia basado en el contrato nº 2022/WK/05 (Nodo Polaco Euro-BioImaging "Nodo Avanzado de Microscopía Óptica Polonia").
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| 0,25% tripsina-EDTA | Gibco | 25200-056 | |
| 100 & micro; Colador de células M | VWR | 732-2759 | |
| 30 y micro; colador m y nbsp; | Miltenyi Biotec | 130-041-407 | |
| 40 y micro; Colador de células M | VWR | 732-2757 | |
| 70 & micro; Colador de células M | VWR | 130-095-823 | |
| Ácido acético y nbsp; | POCH | 568760114 | Disuelto en dH2O hasta una concentración final de 20 mM y esterilizado mediante un 0,2 y micro; Filtro m |
| Alexa Fluor 488, anti-conejo burro | Invitrogen | A21206 | Disuelto en solución bloqueante (véase la Sección 8.7) a una dilución de 1:250 |
| Alexa Fluor 488, anti-ratón para cabras y nbsp; | Abcam | ab150113 | Disuelto en solución bloqueante (véase la Sección 8.7) a una dilución de 1:250 |
| Cloruro de amonio (NH4Cl) | BioShop | AMC303.500 | Disuelve en agua hasta una concentración final de 50 mM |
| Medios de montaje antifade | Vectashield | H-2000-10 | |
| Anticuerpo anti-PAX7 | Abcam | ab187339 | Disuelto en solución bloqueante (véase la Sección 8.7) a una dilución 1:100 |
| Factor básico de crecimiento de fibroblastos y nbsp; | Corning | 354060 | Disuelto en dH2O estéril a una concentración de stock de 10 y micro; g/mL |
| Betadine, 100 mg/mL | EGIS Pharmaceuticals | ||
| Placa de cultivo celular, 6 pozos, Cell+ | SARSTEDT | 83.3902.300 | |
| Extracto de embrión de pollo y nbsp; | MP Biomedicina | 2850145 | |
| Colágeno I, cola de rata | Gibco | A10483-01 | Disuelto en 20 mM de ácido acético y en la sección de ácido acético; |
| Colagenasa tipo I | Sigma | C0130-500MG | Disuelto en DMEM y esterilizado mediante un 0,2 y micro; Filtro m |
| Tubo de disociación (GentleMACS C Tubes) | Miltenyi Biotec | 130-093-237 | |
| Dulbecco's Modified Eagle Medium, glucosa alta | Gibco | 31966-021 | |
| EDTA | Invitrogen | AM9260G | |
| Tubos centrífugas cónicos Falcon, 15 mL | Corning | 352096 | |
| Tubos de centrifugadora cónicos Falcon, 50 mL | Corning | 352070 | |
| Suero fetal bovino | Gibco | 10082147 | |
| Suero para caballos | Gibco | 26050088 | |
| Reactivo de marcado magnético (Kit de aislamiento de celdas satélite) | Miltenyi Biotec | 130-104-268 | |
| Separador magnético (Separador MidiMACS) | Miltenyi Biotec | 130-042-302 | |
| Matrigel | Corning | CLS356234 | Disuelto en DMEM hasta una concentración del 10 % |
| Paraformaldehído, 4% en PBS | Thermo Fisher Scientific | J61899. AK | |
| Penicilina-Estreptomicina | Gibco | 15140122 | |
| Solución salina tamponada con fosfato | VWR | 392-0334 | |
| Columna de separación (Columnas LS) | Miltenyi Biotec | 130-042-401 | |
| Anticuerpo de Miosina del Músculo Esquelético, MHC | Santa Cruz | SC-32732 | Disuelto en solución bloqueante (véase la Sección 8.7) con una dilución de 1:50 |
| Plato TC, 100 x 20 mm | SARSTEDT | 83.3902 | |
| Disociador de tejidos (Disociador GentleMACS) | Miltenyi Biotec | 130-093-235 | |
| Triton X-100 | Sigma-Aldrich | X100-1L |
Referencias
- Yeh, C. -J., Sattler, K. M., Lepper, C. Molecular regulation of satellite cells via intercellular signaling. Gene. 858, 147172(2023).
- Gonzalez, M. L., Busse, N. I., Waits, C. M., Johnson, S. E. Satellite cells and their regulation in livestock. J Anim Sci. 98 (5), skaa081(2020).
- Mauro, A. Satellite cell of skeletal muscle fibers. J Biophys Biochem Cytol. 9 (2), 493-495 (1961).
- Yin, H., Price, F., Rudnicki, M. A. Satellite cells and the muscle stem cell niche. Physiol Rev. 93, 23-67 (2013).
- Kahn, R. E., Dayanidhi, S., Lacham-Kaplan, O., Hawley, J. A. Molecular clocks, satellite cells, and skeletal muscle regeneration. Am J Physiol Cell Physiol. 324 (1), C1332-C1340 (2023).
- Abreu, P., Mendes, S. V. D., Ceccatto, V. M., Hirabara, S. M. Satellite cell activation induced by aerobic muscle adaptation in response to endurance exercise. Life Sci. 170, 33-40 (2017).
- Dueweke, J. J., Awan, T. M., Mendias, C. L. Regeneration of skeletal muscle after eccentric injury. J Sport Rehabil. 26 (2), 171-179 (2017).
- Michele, D. E. Mechanisms of skeletal muscle repair and regeneration in health and disease. FEBS J. 289 (21), 6460-6462 (2022).
- Domingues-Faria, C., Vasson, M. -P., Goncalves-Mendes, N., Boirie, Y., Walrand, S. Skeletal muscle regeneration and impact of aging and nutrition. Ageing Res Rev. 26, 22-36 (2016).
- Tierney, M. T., Sacco, A. Satellite cell heterogeneity in skeletal muscle homeostasis. Trends Cell Biol. 26 (6), 434-444 (2016).
- Troy, A., et al. Coordination of satellite cell activation and self-renewal by Par-complex-dependent asymmetric activation of p38α/β MAPK. Cell Stem Cell. 11 (4), 541-553 (2012).
- Dumont, N. A., Wang, Y. X., Rudnicki, M. A. Intrinsic and extrinsic mechanisms regulating satellite cell function. Development. 142 (9), 1572-1581 (2015).
- Danoviz, M. E., Yablonka-Reuveni, Z. Skeletal muscle satellite cells: background and methods for isolation and analysis. Myogenesis. DiMario, J. X. 798, Humana Press. 21-52 (2012).
- Gharaibeh, B., et al. Isolation of a slowly adhering cell fraction containing stem cells from murine skeletal muscle by the preplate technique. Nat Protoc. 3 (9), 1501-1509 (2008).
- Benedetti, A., et al. A novel approach for the isolation and long-term expansion of pure satellite cells based on ice-cold treatment. Skelet Muscle. 11 (1), 7(2021).
- Yoshioka, K., et al. A modified preplating method for high-yield and high-purity muscle stem cell isolation. Front Cell Dev Biol. 8, 793(2020).
- Uezumi, A., Fukada, S., Yamamoto, N., Takeda, S., Tsuchida, K. Mesenchymal progenitors distinct from satellite cells contribute to ectopic fat formation. Nat Cell Biol. 12 (2), 143-152 (2010).
- Christov, C., et al. Muscle satellite cells and endothelial cells: close neighbors and privileged partners. Mol Biol Cell. 18 (4), 1397-1409 (2007).
- Elizalde, G., Munoz, A. Z., Almada, A. E. Protocol for the isolation of mouse muscle stem cells using fluorescence-activated cell sorting. STAR Protoc. 4 (4), 102656(2023).
- Pasut, A., Oleynik, P., Rudnicki, M. A. Isolation of muscle stem cells by fluorescence-activated cell sorting. Myogenesis. DiMario, X. 798, Humana Press. 53-64 (2012).
- Lee, J. D., Sinha, B. C., Larkin, L. M., Vandenburgh, H. H. Isolation and purification of satellite cells for skeletal muscle tissue engineering. J Regen Med. 3 (2), (2015).
- Llufrio, E. M., Wang, L., Naser, F. J., Patti, G. J. Sorting cells alters their redox state and cellular metabolome. Redox Biol. 16, 381-387 (2018).
- Cusmano, A. A., et al. Efficient isolation and ex vivo differentiation of murine satellite cells. Stem Cell. Turksen, K. 2939, Springer. 37-54 (2025).
- Park, Y. G., Moon, J. H., Kim, J. A. Comparative study of magnetic-activated cell sorting and preplating for myoblast purification. Yonsei Med J. 47 (2), 179-186 (2006).
- Park, Y. G., Baek, A., Kim, S. Myoblast purifying by magnetic-activated cell sorting. Methods Cell Biol. 112, Elsevier. 439-447 (2012).
- Lee, H., Han, N. R., Kim, S. J., Yun, J. I., Lee, S. T. Development of a high-yield isolation protocol for active muscle satellite cells. Int J Stem Cells. 15 (3), 283-290 (2022).
- Cui, Y., et al. An easy and practical method for isolation, culture and identification of mouse skeletal muscle satellite cells. Int J Clin Exp Med. 9, 19424-19431 (2016).
- Ding, S., et al. Characterization and isolation of highly purified porcine satellite cells. Cell Death Discov. 3, 17003(2017).
- Pawlikowski, B., Vogler, T. O., Gadek, K., Olwin, B. B. Regulation of skeletal muscle stem cells by fibroblast growth factors. Dev Dyn. 246 (5), 359-367 (2017).
- Shahini, A., et al. Efficient and high-yield isolation of myoblasts from skeletal muscle. Stem Cell Res. 30, 122-129 (2018).
- Lee, D. H., Kwak, K. B., Park, Y. C., Chung, C. H., Ha, D. B. Purification and characterization of myoblast fusion inhibitor. Mol Cells. 1, 177-182 (1991).
- Moulin, V., et al. Fetal and adult human skin fibroblasts display intrinsic differences in contractile capacity. J Cell Physiol. 188 (2), 211-222 (2001).
- Wilson, C. G., et al. Age-dependent expression of collagen receptors in rat cardiac fibroblasts. Microsc Microanal. 17 (4), 555-562 (2011).
- Kohen, N. T., Little, L. E., Healy, K. E. Characterization of Matrigel interfaces during defined hESC culture. Biointerphases. 4 (4), 69-79 (2009).
- Wang, Z., et al. In vitro culture system supporting robust expansion of myogenic progenitors. BioRes Open Access. 3 (3), 79-87 (2014).
- Péault, B., et al. Stem and progenitor cells in skeletal muscle development and therapy. Mol Ther. 15 (5), 867-877 (2007).
- Le Grand, F., Rudnicki, M. A. Skeletal muscle satellite cells and adult myogenesis. Curr Opin Cell Biol. 19 (6), 628-633 (2007).
- Rando, T. A., Blau, H. M. Primary mouse myoblast purification and transplantation. J Cell Biol. 125 (6), 1275-1287 (1994).
- Hindi, L., McMillan, J., Afroze, D., Hindi, S., Kumar, A. Isolation, culturing, and differentiation of primary myoblasts. Bio Protoc. 7 (9), (2017).
Reimpresiones y permisos
