La función del cristalino ocular para enfocar la luz en la retina depende de la transparencia tisular, la biomecánica y el índice de refracción. Esta revisión destaca la arquitectura tridimensional del cristalino y analiza los complejos mecanismos que mantienen la homeostasis tisular.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de revisión
El cristalino ocular de los mamíferos enfocado: desarrollo, anatomía, fisiología, transparencia, biomecánica y desafíos relacionados con la edad
En este artículo
Resumen
Resumen
El cristalino es un órgano elipsoide transparente en la cámara anterior del ojo que enfoca la luz en la retina. Compuesto por células epiteliales y fibras, este tejido tridimensional está altamente organizado para asegurar un camino claro de luz y utiliza múltiples estrategias para establecer y mantener un alto índice de refracción y transparencia. En los humanos, el cristalino cambia de forma para enfocar la luz desde diferentes distancias en un proceso conocido como acomodación, y estas propiedades elásticas y biomecánicas del cristalino dependen de mecanismos tisulares, celulares y moleculares. Las cataratas, definidas como cualquier opacidad en el cristalino normalmente transparente, siguen siendo la principal causa de ceguera en el mundo. La presbicia, debido a cambios relacionados con la edad en la rigidez del cristalino, se ha relacionado con un deterioro acomodativo y la necesidad de usar gafas de lectura. Esta revisión explorará el desarrollo y crecimiento de la lente en mamíferos, las proteínas cristalinas y del citoesqueleto, la comunicación y microcirculación célula-célula, la biomecánica de lentes y los retos y métodos novedosos para estudiar este tejido único.
Introducción
El cristalino ocular es, a primera vista, un tejido relativamente simple compuesto por dos tipos celulares, células epiteliales y células fibrosas. La masa global del cristalino está formada por células fibrosas, y hay una monocapa de células epiteliales que cubre el hemisferioanterior 1 (Figura 1A). Todo el tejido está encerrado en una fina membrana basal, llamada cápsula de cristalino, que está compuesta principalmente por colágeno IV y laminina, como se describió en una revisiónanterior 2. Al carecer de suministro sanguíneo y nervios, el cristalino está suspendido en la cámara anterior del ojo por fibras zonulares elásticas (también llamadas zonulas) que conectan la cápsula del cristalino con el cuerpociliar 1. Las células epiteliales del cristalino anterior o central son cuboidales y están dispuestas en un patrón deadoquines 3,4,5 (Figura 1A, células azul claro, arriba). Estas células están en reposo y noproliferan 6. Justo antes del ecuador lente, las células epiteliales se dividen en la zona germinativa (Figura 1A, células naranjas, arriba derecha), y estas células ecuatoriales migrarán hacia el ecuador, donde se ordenan altamente en filas meridionales con forma celularhexagonal 7,8,9,10 (Figura 1A, celdas verdes, arriba a la derecha). Las células meridionales anclan sus puntas apicales en el fulcro o modiolo del cristalino y comienzan a alargarse y diferenciarse en nuevas células fibrosas secundarias (Figura 1A, abajo a la izquierda). Las puntas apicales de las fibras secundarias migran hacia el polo anterior interactuando con el lado apical de las células epiteliales, formando una inusual uniónapical-apical 3 (Figura 1A, línea roja). Las puntas basales posteriores de las fibras recién formadas se extienden hacia el polo posterior moviéndose a lo largo de la cápsula del cristalino (Figura 1A, abajo a la izquierda). Una vez que las puntas de las células fibrosas alargadas alcanzan el polo anterior o posterior, las células se desprenden de las células epiteliales anteriores o de la cápsula posterior y se encuentran con las puntas de las células que se extienden desde el lado opuesto del tejido para formar la sutura 11,12,13 (Figura 1A, arriba a la izquierda). Las células de fibra de lente son una forma hexagonal alargada en sección transversal con 2 lados largos/anchos, 4 lados cortos y 6 uniones tricelulares (Figura 1A, abajo a la derecha)14. El espacio intercelular mínimo entre celdas de fibra vecinas reduce la dispersiónde luz 14. La adición continua de células fibradas corticales en la periferia, superpuestas a generaciones anteriores de fibras, facilita el crecimiento permanente delcristalino 14,15. El centro del cristalino se llama núcleo, y esta región del cristalino tiene una rigidez aumentada en comparación con la periferia o corteza, como se describió en una revisiónanterior 16.
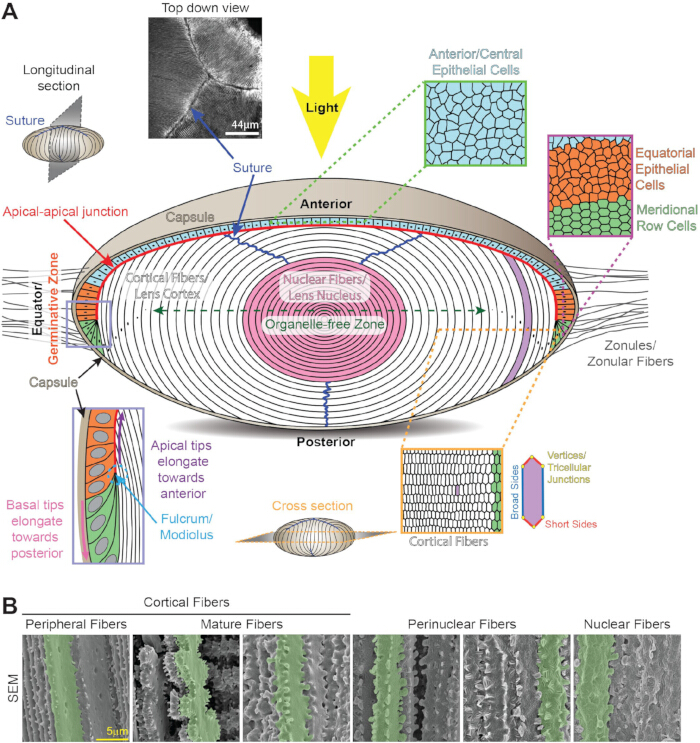
Figura 1: Anatomía y estructura del cristalino. (A) El cristalino está compuesto por una monocapa de células epiteliales (azul claro, naranja y verde claro) que cubren el hemisferio anterior y una masa masiva de fibras del cristalino (blancas y rosas). Una fina membrana colágena, conocida como cápsula de cristalino (bronceado), encapsula el tejido. El cristalino está suspendido en la cámara anterior del ojo mediante fibras zonulares (zonulas) insertadas en la cápsula alrededor del ecuador del cristalino. Las células epiteliales anteriores/centrales (azul claro, arriba) tienen forma cuboidal y son de sección transversal de adoquines. Las células epiteliales ecuatoriales (naranjas) en la zona germinativa se transforman de células agrupadas aleatoriamente (naranjas) a filas meridionales organizadas de celdas hexagonales (verde). Las células meridionales se alargan hasta convertirse en nuevas capas de fibras secundarias corticales (blancas) en la periferia del cristalino. Las puntas apicales de las fibras secundarias recién formadas se anclan en el fulcro/modiolo (caja periwinkle, abajo a la izquierda). Las puntas apicales de las fibras secundarias alargadas migran hacia el polo anterior a lo largo del lado apical de las células epiteliales del cristalino y forman una inusual unión apical-apical (línea roja). Las puntas basales de las fibras alargadas migran hacia el polo posterior a lo largo de la cápsula posterior. Cuando las fibras secundarias están completamente alargadas, las puntas se desprenden del epitelio anterior o cápsula posterior para formar la sutura del cristalino (líneas azul oscuro y imagen superior izquierda). Las células de fibra de cristalino son hexágonos alargados en sección transversal (abajo a la derecha) con 2 lados largos/anchos, 4 lados cortos y 6 uniones tricelulares. Durante la maduración de las células de fibra, todos los orgánulos celulares se eliminan para formar la zona libre de orgánulos (flecha de doble cabeza verde oscuro) y minimizar la dispersión de la luz. Las células más antiguas de fibras del cristalino se compactan en el centro del tejido para formar el núcleo del cristalino (rosa). Los dibujos animados no están dibujados a escala. (B) Las imágenes del microscopio electrónico de barrido de células de fibras a diferentes profundidades del cristalino muestran los cambios en la morfología celular durante la diferenciación y maduración. Las celdas individuales se resaltan en verde para enfatizar. Las fibras periféricas corticales presentan interdigitaciones en bola y cavidad a lo largo de los lados largos y pequeñas protuberancias en los lados cortos. Durante la maduración de las células fibrosas, grandes paletas decoradas con pequeñas protuberancias y grandes protuberancias decoran los lados cortos de las células maduras. Las fibras perinucleares presentan interdigitaciones de lengüeta y ranura a lo largo de toda la membrana y grandes protuberancias a lo largo de los lados cortos. Las fibras nucleares presentan grandes protuberancias a lo largo de los lados cortos y morfología de membrana globular. Barra de escala, 5 μm. Modificado desde 16.328. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
La complejidad del cristalino radica en la disposición celular tridimensional (3D) altamente ordenada, la maduración especializada de las fibras que degrada y elimina todos los orgánulos celulares, y los mecanismos moleculares y celulares para establecer y mantener la transparencia y un alto índice de refracción del tejido. La falta de orgánulos celulares en la mayoría de las células de fibras del cristalino aumenta las dificultades para mantener la salud y la longevidad de cada célula del cristalino jamás creada a lo largo de la vida de un organismo. El cristalino es un tejido excelente para estudiar el envejecimiento y los cambios relacionados con la edad, ya que las células más centrales se formaron durante el desarrollo embrionario temprano, y el cristalino continúa generando nuevas células en la periferia del tejido a lo largo de la vida, permitiendo el estudio de células que son cronológicamente antiguas frente a las células formadas durante la vejez. La función de enfoque fino del cristalino permite formar una imagen clara en la retina a partir de objetos a diferentes distancias y depende de la capacidad del cristalino para cambiar de forma o adaptarse. El cristalino es un tejido no conectivo y no muscular donde se requieren propiedades biomecánicas para su funcionamiento normal.
La principal causa de discapacidad visual es laedad de 17 años. Los cambios relacionados con la edad provocan dos patologías principales del cristalino, cataratas y presbicia18. Las cataratas o cualquier opacidad de cristalino siguen siendo la principal causa de ceguera en el mundoy son causadas por factores genéticos y ambientales, incluyendo radiación ultravioleta, tabaquismo, diabetes y estrés oxidativo, que conducen a la agregación de proteínas y/o defectos celulares, como se describió en revisionesanteriores 18,20,21,22,23,24,25. La presbicia, una disminución de la acomodación relacionada con la edad, se debe a una reducción en la capacidad del cristalino para cambiar de forma al enfocar objetos cercanos y, por extensión, a la necesidad de gafas de lectura 26,27,28. La Organización Mundial de la Salud estima que hay al menos 1.000 millones de personas en todo el mundo con discapacidad visual no abordada, incluyendo 65,2 millones de personas con cataratas y 826 millones conpresbicia 17. Con una población envejecida, es urgente comprender mejor la fisiología y la biología del cristal.
Esta revisión cubre la arquitectura tisular, la disposición celular y los mecanismos moleculares importantes para la función y homeostasis de las lentes de mamíferos, con información sobre lentes de otros vertebrados. El objetivo es ofrecer una visión general de la biología y fisiología del lente con referencias a revisiones detalladas adicionales. Los temas incluyen el desarrollo del cristalino embrionario, el crecimiento postnatal del cristalino, la disposición celular y tisular en 3D, las propiedades biomecánicas del tejido y la microcirculación. A continuación se discuten las principales proteínas de lente, a saber, los cristalinos, las redes citoesqueléticas y la comunicación célula-célula. La revisión concluirá con los desafíos actuales y métodos novedosos para estudiar este tejido único.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Revisión y perspectiva
Desarrollo del cristalino embrionario y crecimiento postnatal del cristalino
En los vertebrados, el cristalino se desarrolla a partir de células ectodermicas de la superficie, y el cristalino futuro comienza con el engrosamiento del ectodermo superficial sobre la vesículaóptica 6,29,30 (Figura 2A). En conjunto con la formación de la copa óptica, el ectodermo engrosado o placode del cristalino se invagina en la fosadel cristalino 6,29,30 (Figura 2B). Los filamentos de actina (F-actina) unen la fosa posterior del cristalino a la superficie anterior de la copa óptica en desarrollo para coordinar el movimiento y los cambios de forma de estos tejidosen desarrollo 31,32,33,34, y la constricción apical de las células epiteliales del cristalino es necesaria para la invaginación del pozo del cristalino 35,36,37,38,39,40 (Figura 2C). La apertura del pozo de la lente sigue estrechando hasta que el agujero se cierra, mientras las células del tallo de la lente sufren la apoptosis 41,42,43. La vesícula del cristalino se separa del futuro ectodermo corneal para formar la vesícula del cristalino, una esfera hueca de célulasepiteliales 6,29,30 (Figura 2D). Las células epiteliales posteriores en la vesícula del cristalino se alargan hacia el epitelio anterior y se diferencian en células fibratas primarias para llenar la cavidad y formar el cristalino embrionario (Figura 2E). La monocapa de células epiteliales que cubre el hemisferio anterior se mantiene mientras que no hay células epiteliales posteriores en el cristalino embrionario completamente formado (Figura 2F). Las células primarias de fibras forman la porción más central del núcleo del cristalino y están rodeadas por nuevas generaciones de fibras secundarias del cristalino que se añaden desde la periferia o corteza del cristalino a lo largo de toda lavida. Mientras que la mayoría de los cristalinos vertebrados se forman por invaginación, en los peces cebra la placa se espesa y luego se delamina para formar elcristalino 44.
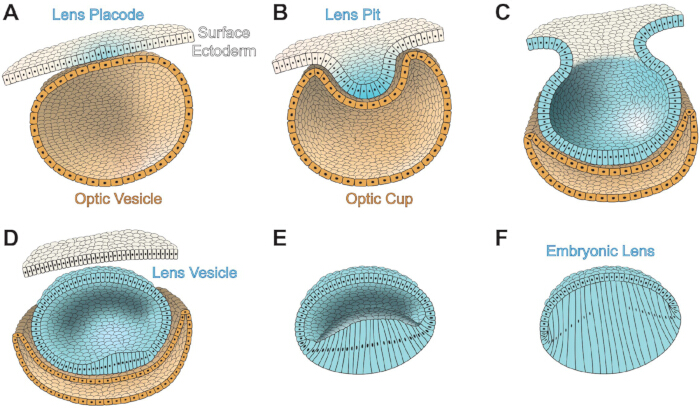
Figura 2: Desarrollo del cristalino embrionario en ojos de mamíferos. Las células de los ectodermos superficiales son blancas, las lentes son azul claro y las células de copa óptica/vesícula son color arena. (A) La placoda del cristalino embrionario (azul claro) se desarrolla a partir del ectodermo superficial. Detrás del ectodermo superficial y la placa del cristalino se encuentra la vesícula óptica. (B) La invaginación de la placa del cristalino forma el foso del cristalino, y la invaginación de la vesícula óptica forma la copa óptica. La copa óptica anterior se desarrollará hacia el iris y el cuerpo ciliar, mientras que la copa óptica posterior formará la retina y el epitelio pigmentado retiniano. (C) La abertura de la placa de la lente se estrecha hasta que la abertura se cierra. (D) La vesícula del cristalino se separa del ectodermo superficial y es una esfera hueca revestida de células epiteliales del cristalino. (E) Las células epiteliales posteriores del cristalino en la vesícula del cristalino comenzarán a alargarse y diferenciarse en fibras primarias del cristalino. (F) Las fibras primarias del cristalino llenan la cavidad de la vesícula para formar el cristalino embrionario. Los dibujos animados no están dibujados a escala. Modelado según el 411. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
Durante el desarrollo embrionario, el cristalino está rodeado por una red en forma de cesta de vasossanguíneos 6,45,46. Estos vasos se originan en la arteria hialoide de la retina y comienzan a formar una red en la parte posterior del foso del cristalino, creando finalmente una malla ordenada de la túnica vasculosa lentis para nutrir el cristalino embrionario hasta que la cámara anterior y la producción acuosa del humor estén completamentedesarrolladas 6,45. Estos vasos regresan y desaparecen para asegurar un camino de luz claro antes del nacimiento o antes de abrir los ojos, dependiendo de la especie 6,45,46,47.
Pax6 es necesario para el desarrollo temprano delojo 48,49,50,51,52 y es esencial y suficiente para el desarrollo de lentes 53,54,55,56. La fosforilación y la SUMOilación de Pax6 regulan la función de este factor de transcripción durante el desarrollo cerebral, del sistema nervioso central ydel ojo 57,58,59,60. Otras vías de señalización importantes necesarias para el desarrollo embrionario del ojo y lente se cruzan con la señalización Pax6, incluyendo potenciadores [Meis, proteínas morfogénicas óseas (Bmp) y factor de crecimiento de fibroblastos (FGF)] y proteínas aguas abajo [Foxe3 y ácido retinoico (AR)], como se describe en una revisiónanterior 61. Meis1 y Meis2 se adhieren a la región potenciadora del gen Pax6 y son necesarios para la inducción por lente envertebrados 62. Los estudios genéticos muestran que Bmp7 es necesario para el desarrollo de la placa del cristalino al regular la expresiónde Pax6 63,64. Foxe3 está a continuación de la señalización Pax6 y es necesario para el desarrollo delcristalino 65,66, especialmente para la separación limpia del tallo del cristalino del ectodermo superficial cuando se forma la vesícula del cristalino. La pérdida de Foxe3 provoca defectos oculares congénitos conocidos como Anomalía dePeters 67. La señalización del receptor FGF (FGFR) coopera con Bmp7 para regular la expresión de Pax6, lo que a su vez afecta a los niveles de Foxe3 en el lenteen desarrollo 68. La expresión de una forma inhibitoria de FGFR provoca un retraso en la formación de la placode del cristalino, una separación incompleta del tallo del cristalino y una pequeña vesícula68. La interrupción de la señalización de la AR provoca defectos en la formación ocular69, y cuando Pax6 se interrumpe, hay una disminución de la expresión de AR, lo que sugiere cierta diafonía entre las dos vías de señalización70.
Una vez que el cristalino embrionario está completamente formado, se piensa que el crecimiento continuo del cristalino mediante la proliferación y diferenciación de células epiteliales ecuatoriales en fibras secundarias del cristalino está impulsado por la señalización del factor de crecimiento, principalmente a través de FGF en lentes de mamíferos, como se describe en una revisiónanterior 71. Los FGF son más abundantes en el vítreo que el humor acuoso, lo que genera un gradiente de señales de crecimiento y diferenciación crecientes cerca del ecuadordel cristalino 72,73. El cristalino expresa 3 de 4 FGFRs, FGFR1, FGFR2 y FGFR3, con una expresión creciente en y posterior al ecuadordel cristalino 74,75. La sobreexpresión de FGF induce una elongación y diferenciación anormales de células epiteliales anteriores normalmente en reposo en células similares afibras 76,77,78. Además de la señalización FGF, los ensayos inhibidores indicaron que la vía Bmp juega un papel en la elongación de las fibras79,80, y que un receptor anormal del factor de crecimiento transformante beta (TGFβ) interrumpe la maduración normal de lasfibras 81.
Transparencia del cristal e índice de refracción
Las células de fibras lentilencas pasan por un proceso especializado para eliminar todos los orgánulos celulares durante la maduración, eliminar objetos que dispersan la luz en el camino de la luz y crear la zona libre de orgánulos (OFZ)82 (Figura 1A). La pérdida coordinada de todos los orgánulos celulares ocurre rápidamente una vez que las células fibrosas alcanzan una etapa específica de su programaciónde maduración 83,84,85,86,87,88. La degradación anormal de orgánulos conduce a cataratas, y varios modelos de pez cebra knockout (KO) y ratones han identificado genes para la degradación de la cromatina yel ADN 89,90,91,92,93, quinasas dependientes de ciclina 94,95, factor de choque térmico 4,91,96,97,98 y fosfolipasaPLATT 99 que son importantes para la formación de la OFZ. Una expresión o mutación anormal en las proteínas de membrana celular y citoesqueleto 100,101,102,103,104, cristalinos 105,106,107 y oncogenes 108,109 también pueden afectar la eliminación de orgánulos y la transparencia del cristalino. Sin embargo, la señal exacta que desencadena la degradación de los orgánulos en las fibras sigue sin estar clara. Trabajos recientes han revelado la importancia de las proteínas que se unen al ARN en el desarrollo de lentes y la cataractogénesis, como se describe en una revisiónanterior 110. La alteración de proteínas que se unen al ARN, incluyendo Tdrd7111, caprin2112, Rbm24113 y Celf1 114,115,116, conduce a un desarrollo anormal de cristalinos, alteración de la degradación de orgánulos y cataratas.
En comparación con la mayoría de los tipos celulares del cuerpo, las células de fibra de cristalino de mamíferos tienen una concentración de proteínas extremadamente alta (200–450 mg/ml)117,118,119,120. Las proteínas representan entre el 30% y el 35% del peso total del cristalino y, en consecuencia, el cristalino tiene un contenido de agua relativamente bajo, alrededor del 65%–70%121.122. El noventa por ciento de las proteínas cristalinas por masa soncristalinas 123, y hay 3 familias de proteínas cristalinas en lentes de mamíferos: α, β y γ, como se describió en revisionesanteriores 124,125. Un alto contenido proteico normalmente aumentaría el riesgo de agregados mayores a la mitad de la longitud de onda de la luz, lo que conduce a la dispersión dela luz 126, pero las proteínas cristalinas se organizan en el citoplasma de la célula de la fibra con orden de corto alcance para promover un alto índice de refracción ytransparencia 117,127. La agregación proteica se atenua por las funciones tipo chaperona de los cristalinos α, que se discuten a continuación. El índice de refracción gradiente (GRIN) a través del cristalino favorece el enfoque de la luz, como se describió en revisionesanteriores 128,129, y el índice de refracción máximo en el centro del cristalino está correlacionado con la compactación de las células de fibrasnucleares 130,131,132. En lentes de peces, los datos sugieren que un alto índice de refracción en el núcleo es resultado del transporte de proteínas hacia el centro deltejido 133. Se hipotetiza que la distribución uniforme de proteínas cristalinas entre las células y entre capas de fibras es facilitada por una vía de transporte macromolecular a través de fusiones de membranas a lo largo de las membranas celularesde fibras 134,135. Sin embargo, no se han observado claramente fusiones de membrana en lentesde ratón 136,137,138, y los estudios de impedancia en lentes de múltiples especies no detectan fusiones demembrana 139,140,141,142. Los datos de modelos murinos que interrumpen la comunicación de la unión de brecha sugieren que la comunicación célula a célula y la elongación de la fibra también contribuyen a la vía de transportemacromolecular 143.
Los cristalinos tienen un peso molecular de ~20–30 kDa y desempeñan un papel estructural y refractivo en el cristalino. Los alfa-cristalinos están compuestos por subunidades αA y αB, que comparten entre el 55% y el 60% de homología 144,145,146, y mientras que αB se expresa de forma ubicua en la mayoría de las células, αA-cristallina se expresa predominantemente en el cristalino y se ha detectado en niveles bajos en otros tejidos, incluyendo el bazo y el timo 147,148. Trabajos recientes también han demostrado que las células epiteliales pigmentadas de la retina y las células ganglionares pueden expresar αA-cristalina durante el estrés o la enfermedad, presumiblemente para proporcionar un efecto neuroprotector 149,150,151. Los alfa-cristalinos suelen asociarse en grandes heteromultiméricos de 30–35 subunidades mixtas αA yαB 123. En el epitelio de lentes de ratón, bovino y humano, solo se detecta αB en células anteriores, mientras que αA y αB existen en una proporción de 1:3 en células ecuatoriales; esta relación cambia a 3:1 durante la diferenciación y elongación de las células de fibrasecundarias 123,152,153. Los alfa-cristalinos pertenecen a la familia de las pequeñas proteínas de choque térmico y tienen funciones similares alas de chaperona 154, lo que permite a estas proteínas unirse y secuestrar proteínas anormales o no plegadas, evitando una agregación adicional de proteínas. Se han explorado péptidos pequeños de α-cristalina para prevenir enfermedades inducidas por agregación de proteínas, incluidas las cataratas, como se describe en una revisiónanterior 155. Sin embargo, el aumento o disminución de la actividad tipo chaperona de α-cristalinos en modelos murinos demuestra que cualquiera de los dos escenarios conduce a un aumento de la gravedad de la catarata y sugiere que una actividad adecuada similar a la chaperona de los cristalinos α es crucial para la transparencia del cristalino156. Los beta- y los γ-cristalinos pertenecen a su propia familia de proteínas β/γ-cristalinas y son específicos de células de fibra; En mamíferos, existen 7 isoformas de β-cristalinos que existen como dímeros, tetrámeros o oligómeros de orden superior, y hay 7 isoformas de γ-cristalinos que son monómeros, como se describe en una revisiónanterior 125. Además de las funciones estructurales, los β y γ-cristalinos se une a los iones calcio y regulan la disponibilidad y reservas de iones calcio en las fibras del cristalino 157,158,159,160,161.
Proteínas citoesqueléticas y de membrana del cristalino
Las células epiteliales y fibrosas del cristalino tienen redes de filamentos intermedios de F-actina, queratina o vimentina, filamentos intermedios especializados con perlas y microtúbulos, como se describió en revisiones anteriores. 162.163.164.165.166. Además de las funciones en el desarrollo del ojo y elcristalino 31,32,33,34, las diversas redes de F-actina en células epiteliales y fibrosas del cristalino son importantes para la transparencia del cristalino 167,168,169,170,171,172. Trabajos recientes han demostrado que la alteración de la red F-actina afecta a la biomecánica del cristalino 173,174,175,176. Los filamentos intermedios compuestos de vimentina o queratina solo están presentes en las primeras etapas de la diferenciación celular de fibras de cristalino o durante el desarrollo embrionario,respectivamente 177,178,179,180,181; en cambio, todas las fibras del cristalino tienen filamentos intermedios con perlas compuestos por heterodímeros de filensina (también conocida como CP95/CP115 y codificada por Bsfp1) y CP49 (también conocida como faquinina y codificada por Bsfp2)182,183,184. El aspecto de cuentas de estos heterodímeros se debe a oligómeros formados por CP49 y filensina que decoran el núcleo del filamento185,186 y a la unión de α-cristalinos a lo largo de estos filamentos intermediosespecializados 187,188,189,190,191. La pérdida de filensin o CP49 conduce a la pérdida total de esta red 192,193,194,195. La alteración de los filamentos intermedios de vimentina o filamentos intermedios con cuentas causa cataratas en modelos humanosy animales 192,193,196,197,198,199,200,201,202,203,204, mostrando la importancia de estas redes citoesqueléticas para la transparencia del cristalino. Trabajos recientes sugieren que los microtúbulos son importantes para la elongación de las células de fibrasdel cristalino (205,206) y la formación de la zona libre de orgánulos(177).
Las uniones adherentes que interactúan con el citoesqueleto de actina son importantes para la formación delcristalino 207 y la diferenciación de las células de fibra. La E-cadherina y la N-cadherina se expresan ambas en células epitelialesdel cristalino 208,209,210,211, y la E-cadherina se desactiva al inicio de la diferenciación de célulasfibrosas 212. La N-cadherina se expresa altamente en las células de fibras del cristalino y se enriquece en los puntos medios del pie hexagonal basal de las células fibrosasalargadas 8,209. La pérdida de N-cadherina tras la formación de células fibrales primarias provoca una alteración de la elongación de las células fibrares secundarias debido a la migración anormal de las puntas apicales de las fibras diferenciadoras a lo largo de la superficie apical de las células epitelialesanteriores 213. La interrupción de la señalización bidireccional Eph-efrina en el cristalino causa defectos en las unionesadherentes 4,7,214,215,216.
Otras proteínas importantes de membrana cristalina incluyen las acuaporinas; conexinas; MP20, tal como se describió en una reseñaanterior 217; Galectin 3; proteína interfibrosa relacionada con galectina (GRIFIN); integrinas, tal como se describió en una revisiónanterior 218; y secretó proteínas ácidas y ricas en cisteína (SPARC). Las acuaporinas y conexinas se discuten en la siguiente sección. MP20 (también conocida como MP17 o Lim2) es una proteína de membrana específica del cristalino con funciones de adhesióncélula-célula 85,219 que es abundante en las célulasfibrosas 220,221; las mutaciones en MP20 provocancataratas 222.223.224.225.226.227.228.229.230. Trabajos recientes han mostrado interacciones entre MP20 y galectina 3, otra molécula importante de adhesióncélula-célula 231,232,233. GRIFIN, una isoforma específica de lente de galectina, está localizada en las membranas celulares de fibras e interactúa con Pax6, cristalinas ycadherinas 234,235,236,237. Las integrinas son enlaces importantes, entre la matriz extracelular (ECM) y el citoesqueleto, necesarios para el desarrollo normal del cristalino. Las isoformas de integrina expresadas en el cristalino actúan como receptores para componentes de la cápsula como laminina, colágeno ofibronectina 8,238,239,240,241,242,243,244,245. Cada componente de la matriz puede interactuar con múltiples integrinas, lo que conduce a una señalización diversa a través de la expresión espaciotemporal de las integrinas durante el desarrollo y crecimiento delcristalino 218. Existe un interés particular en comprender los cambios en TGFβ, integrinas y componentes de la ECM durante la transición epitelial a mesenquimata en células epiteliales residuales del cristalino tras la cirugía de cataratas, lo que conduce a la opacificación de la cápsula posterior, como se describe en una revisiónanterior 218. SPARC, una molécula de adhesión y proliferación célula-célula, está localizada en el epitelio del cristalino y está ausente en las fibrasdiferenciadoras 246. La pérdida de SPARC provocacataratas 246,247,248, y estudios recientes han demostrado que SPARC puede tener funciones similares a laschaperonas 249, afecta a integrinas y proteínasECM 250,251,252, e influye en la vía demicrocirculación 253.
La vía microcirculatoria de un tejido avascular
Debido a la falta de suministro sanguíneo, el cristalino completamente formado genera su propia vía de microcirculación para suministrar nutrientes y eliminar residuos, como se describió en revisiones anteriores254,255,256,257. Una corriente iónica entra en el cristalino por los polos anterior y posterior y sale en elecuador 258. La corriente de entrada depende del movimiento de sodio hacia los espacios extracelulares entre las células de la lente en cada polo a lo largo de un gradiente de concentración generado por el transporte activo, y la corriente de salida se facilita mediante canales de unión de hueco en las membranas de las células fibrosas concentradas cerca del ecuador de la lente, permitiendo la salida de iones de sodio en el ecuador de la lente259. Las células epiteliales ecuatoriales y de fibra periférica tienen una alta expresión de bombas de Na+/K+ ATPasa que intercambian activamente 3 iones de sodio fuera de las células por 2 iones potasio del ambiente extralenticular 260,261,262. El cristalino mantiene una alta concentración de potasio (135mM) y una baja concentración de sodio (16mM) para crear las condiciones que permitan que el sodio vuelva a entrar en el cristalino en los polos, bajando el gradiente deconcentración de 259.263. Además de la ATPasa Na+/K+, el cotransportador iónico Na-K-2Cl cotransporter 1 (NKCC1) también ayuda a regular las concentraciones de iones de la lente mediante la activación por canales mecanosensibles, como se describió en una revisiónanterior 264.
Las uniones de brecha en el cristalino están compuestas por tres conexinas: la conexina 43 (Cx43 o α1), Cx46 (o α3) y Cx50 (o α8)265,266. Cx43 se expresa principalmente en células epiteliales delcristalino 267, y aunque la iniciación de la formación de células fibrosas es normal en lentes Cx43 KO, la interfaz entre células epiteliales y fibrosas ha aumentado el espacio extracelular y las vacuolas intracelulares, lo que sugiere una función de Cx43 en el equilibrio osmótico268. Cx46 está concentrado en células de fibras de cristalinos, y Cx50 está presente tanto en células epiteliales como encélulas de fibra 269. Cx23 también se expresa en células fibrosas de lentes de ratón, pero no en lentes humanas 270,271,272,273. Una mutación dominante en Cx23 causa defectos en las células fibrosas enratones 270, pero las lentes Cx23 KO no presentan defectos notables274. Seis subunidades de connexina forman un conexón o hemicanal, y un conexón en una celda se acopla con otro en la celda vecina para formar una unión de hueco, que crea un poro de ~10 angstrom entre las células vecinas, permitiendo el intercambio de pequeñas moléculas, iones yagua 275,276. Los hemicanales de connexina permiten el paso de materiales entre el citoplasma intracelular y el entorno extracelular, como se describe en revisiones anteriores277,278, y los hemicanales son importantes para lamicrocirculación 279, el transporte mecanosensible de nutrientes yantioxidantes 280,281,282,283 y la respuesta al estrésoxidativo 284,285,286.287.288. Las uniones gap se congregan en grandes placas en la membrana de la fibra celular; En el cristalino, las placas pueden tener un diámetro de micrón y están alineadas a lo largo de los lados largos de las células fibrosasvecinas 289. La pérdida de Cx46 en lentes de ratón conduce a cataratas nucleares densas debido a la obstrucción de la vía de salida de la microcirculación delcristalino 290,291. El ensamblaje y/o estabilidad de grandes placas Cx46 en la membrana de la célula fibrosa requiere la F-actina y las redes intermedias de filamentoscon perlas 289. Cx50 KO provoca microftalmia, cataratas nucleares leves y lentes pequeñas debido a una proliferación anormal de célulasepiteliales 292,293. La pérdida de Cx50 afecta a la compuerta de las placas restantes de unión Cx46 en las células de fibradel cristalino 139. El reemplazo de Cx50 por Cx46 knock-in expresado bajo el locus endógeno Cx50 (4 copias de Cx46) rescata cataratas debido a la pérdida de Cx50 y aumenta el acoplamiento de unión entre fibras, pero estas lentes transparentes de knock-in siguen siendopequeñas 142,294. Por tanto, Cx46 no puede reemplazar la función de crecimiento de lente de Cx50. La estrategia knock-in también se ha utilizado para rescatar cataratas nucleares causadas por proteínas mutantes γB-cristalina, lo que sugiere que un mayor acoplamiento de unión gap puede ser una estrategia para mejorar la homeostasis del cristalino y la prevenciónde cataratas 295.
El flujo iónico generado por los iones de sodio va acompañado por el flujo de agua hacia las células del cristalino a través de los canalesde acuaporina 259. Los canales de aquaporina están compuestos por Aqp1 en las células epiteliales, mientras que en las células de fibra, Aqp0 (también conocido como MIP) y Aqp5 forman canales de agua, dependiendo de la madurez de las células, como se describió en revisionesprevias 264,296,297. El movimiento del agua a través de canales de unión de hueco genera un gradiente de presión hidrostática a través de la lente298,299, y este gradiente mantiene la presión osmótica de la lente a través de canales mecanosensibles de potencial receptor transitorio 1 (TRPV1) y TRPV4 que aumentan y disminuyen, respectivamente, la presión hidrostáticade la lente 299,300,301,302. La disminución de la tensión zonular en la lente disminuye la presión hidrostática, activando TRPV1 y posteriormente NKCC1 para aumentar la concentración de iones en la lente y impulsar el flujo de agua hacia la lente para restaurar la presión hidrostáticanormal 300,301. Por el contrario, el aumento de la tensión zonular y el volumen del cristalino activan TRPV4 y, posteriormente, Na+/K+ ATPasa para disminuir la concentración de iones de lente y, por tanto, disminuir la presión hidrostática 300,301,302.
Los nutrientes esenciales y aminoácidos se transportan al cristalino a través de la vía demicrocirculación 303, y este transporte es especialmente importante para las fibras de OFZ. Los transportadores facilitadores de glucosa (GLUT) se encuentran en células epiteliales y de fibras del cristalino; GLUT1 se expresa en ambos tipos celulares, y GLUT3 en célulasepiteliales 304,305,306,307. Los ratones KO GLUT1 desarrollan cataratas, lo que sugiere que la captación de glucosa es necesaria para la transparenciadel cristalino 308. El glutatión (GSH), un antioxidante importante para la transparencia delcristalino 309,310, se produce en el cristalino y puede ser transportado al cristalino desde el humoracuoso 311,312,313,314,315. La cisteína, el glutamato y la glicina son aminoácidos esenciales para la síntesis de GSH, y la acumulación de estos aminoácidos está presente en la corteza y las regiones nucleares delcristalino 314,315. La disminución relacionada con la edad en la síntesis de GSH o el aumento del uso de GSH pueden provocar una disminución de la disponibilidad de GSH en el cristalino, especialmente en el núcleo 316,317,318,319,320,321. Las peroxidasas de glutatión (GPX) utilizan GSH como coenzima para neutralizar el hidroperóxido, y trabajos recientes muestran que la ferroptosis debida a peróxidos lipídicos tóxicos puede provocar cataratas debido a la alteración deGPX4 322,323.
Arquitectura de lentes 3D y biomecánica
El patrón de fibras de lente en filas organizadas de células hexagonales se origina a partir del patrón de células epiteliales ecuatoriales en filas meridionales (Figura 1A). Los mecanismos que impulsan la organización de células epiteliales ecuatoriales empaquetadas aleatoriamente y con forma de adoquines en células filas meridionales de forma hexagonal giran en torno al citoesqueleto de actina. La señalización de la tirosina quinasa receptora EphA2 es necesaria para impulsar la acumulación de F-actina en los vértices de las células hexagonales meridionales para promover la organización celular 7.324. La miosina IIA, una proteína contráctil que se une a la F-actina, también es importante para promover la forma de las célulashexagonales 8,325,326. Durante mucho tiempo se teoriza que este empaquetado altamente ordenado de células fibrosas es necesario para la transparencia del cristalino, pero el empaquetado incorrecto debido a la pérdida deEphA2 7.324, mutaciones en miosinaIIA 325.326 o células deformes producidas durante la edad130 sugieren que el empaquetado celular hexagonal no es necesario para la transparencia.
Las células fibrosas que se extienden desde los polos anterior hasta posterior pueden medir varios milímetros de longitud dependiendo de la especie animal y el tamaño delcristalino 327. Normalmente, las células fibrosas miden solo 4–7 μm en seccióneficaz 327, y estas células largas y delgadas están unidas por interdigitaciones dinámicas entre células celulares que forman una cremallera 3D entre las células de fibra vecinas, como se describe en una revisiónanterior 328. Las interdigitaciones de las células de fibras de cristalino presentan patrones complejos que cambian a medida que las células se diferencian y maduran desde 1) fibras periféricas recién formadas con pequeñas protuberancias a lo largo de los lados cortos y protuberancias en bola y alveolaje a lo largo de los lados largos, 2) células fibrosas maduras que sufren pérdida de orgánulos y que tienen grandes paletas con pequeñas protuberancias entrelazadas a lo largo de los lados cortos, 3) fibras perinucleares con grandes protuberancias entrelazadas a lo largo de los lados cortos y interdigitaciones de lengua y ranura a lo largo de toda la membrana, y 4) fibras nucleares con grandes protuberancias a lo largo de los lados cortos y morfología globular de la membrana a lo largo de todala membrana 137.328.329.330.331.332.333.334.335, 336.337.338.339 (Figura 1B). Trabajos recientes han proporcionado evidencia directa de que las interdigitaciones entre células de fibras del cristalino que dependen de redes de F-actina son importantes para la rigideztisular 174, apoyando una hipótesis largamente sostenida. La pérdida de ARVCF, un componente de las uniones adherentes, conduce a interdigitaciones anormales de células fibrosas, agrandamiento del espacio extracelular y cataratas corticales de inicio temprano340. Los defectos en la rigidez y tamaño del núcleo del cristalino están correlacionados con cambios en las interdigitaciones de la lengüeta y ranura y la transición tardía a la morfología de la membranaglobular 131.
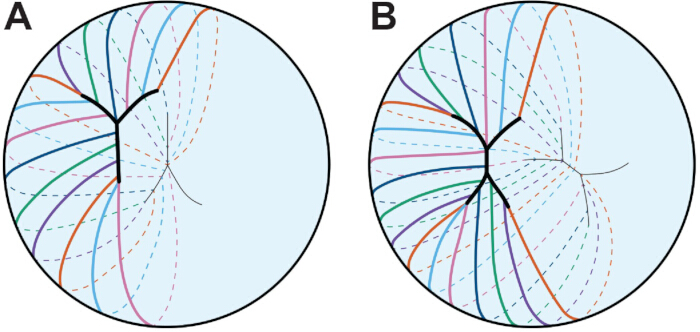
Figura 3: Patrón de suturas de lente. Cada línea de color representa una única celda de fibra. (A) Las células fibrosas en el cristalino embrionario humano forman una sutura en Y. La sutura en Y se refleja en los polos anterior y posterior. (B) A medida que el cristalino humano continúa desarrollándose y creciendo, la sutura se volverá más ramificada. Aquí se representa una sutura de cuatro ramas para simplificar. El patrón de sutura está desplazado entre los dos polos. Los dibujos animados no están dibujados a escala. Modelado según el 45. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
La forma general del cristalino varía según la especie, y se teoriza que la curvatura de las células fibrados y el tipo de sutura determinanla forma del cristalino 341,342. La sutura se forma por la unión de las puntas de las células fibrosas alargadas en los polos anterior y posterior, y la sutura se refleja entre los dos polos 11,12,13,343 (Figura 3). En las lentes de ratón, la sutura tiene forma de Y, y en las lentes de primates y humanos, la sutura comienza en forma de Y y se vuelve más ramificada a partir delos 11, 12 y 45 años. Curiosamente, la sutura en Y en lentes de ratón limita la elasticidad o resistencia del cristalino tras la eliminación de una carga mecánica, y las suturas ramificadas en lentes KO con interrupción de la señalización de efrina de Eph están correlacionadas con una mayorresiliencia 344. La formación normal de la sutura del cristalino requiere comunicación de la unión de huecos345, y las cataratas anteriores relacionadas con la edad en lentes de ratón son el resultado de una formación incompleta desutura 130.
Las propiedades biomecánicas del cristalino pueden verse influenciadas por una variedad de factores moleculares, celulares y tisulares, como se describió en una revisiónanterior 16. Se cree que el aumento de la rigidez del cristalino relacionado con la edad es un factor principal que contribuye a lapresbicia 346. En los humanos, al observar objetos lejanos, la relajación de los músculos ciliares estira las fibras zonulares unidas a la cápsula, lo que provoca el aplanamiento delcristalino 1. Al enfocar algo cercano, el músculo ciliar se contrae permitiendo que los zónulos se relajen, y el cristalino se redondea hacia arriba para enfocar la luz del objetocercano 1. Este proceso de acomodación requiere propiedades biomecánicas del cristalino, contracción del músculo ciliar y tensión zonular. Con la edad, los estudios han mostrado poco o ningún cambio en la contractilidad del músculo ciliar y en la flexibilidad y tensión zonular 347,348,349,350. Varios estudios han sugerido que el aumento del tamaño del cristalino y del núcleo y la rigidez contribuyen al endurecimiento general del cristalino completo a partir delos 26.351.352.353.354. Sin embargo, estudios sobre la rigidez del cristalino con la edad en ratones sugieren que hay poca correlación entre el tamaño del cristalino y el núcleo, con rigidez totaldel cristalino 130,132, lo que indica que otros factores influyen en el endurecimiento del cristalino relacionado con la edad. Trabajos recientes han demostrado que los cambios en las redes del citoesqueleto afectan a la rigidez del cristalino; La pérdida de tropomiosina 3.5, una proteína estabilizadora de F-actina, afecta la composición y disposición de las redes de F-actina en la membrana de las fibras celulares y disminuye la rigidez delcristalino 173. De manera similar, mutaciones espontáneas en varias líneas de ratones salvajes consanguíneos conducen a un KO espontáneo de CP49192.355 y lentes másblandas 356.357. Las membranas celulares de fibra del cristalino tienen un contenido inusualmente alto de colesterol 358,359,360,361,362,363, lo que puede regular la elasticidad dela membrana 364. Se teoriza que los cambios en el contenido de colesterol de membrana y la unión de los α-cristalinos a la membrana celular de fibra con la edad aumentan la rigidez del cristalino 365,366,367,368,369,370,371,372.
Desafíos y métodos novedosos para estudiar el objetivo
La estructura 3D del cristalino crea desafíos para entender la disposición célula-célula y para crear modelos in vitro adecuados que recapitulen la arquitectura tisular. Aunque se han elucidado valiosas ideas sobre señalización y localización de proteínas mutantes utilizando células inmortalizadas o de cultivo primario, las células epiteliales de lente aislada no presentan la morfología cuboidal característica ni la misma expresión génica o estructuras citoesqueléticas que las células epiteliales de lentenativas 373. In vitro lentoid, como se describe en una revisión anterior,los modelos 374 y lente375 crean células similares a fibras y bolas de células que se asemejan a una mini lente, respectivamente. Estos modelos crean una estructura transparente similar a una lente que puede ser útil para fines rápidos de cribado de drogas, pero ninguno de los dos recapitula la organización normal de las células de fibras ni la estructura 3D de la lente. Se han desarrollado muchos protocolos para localizar proteínas en secciones de tejido de cristalino e inmunotinción, y este método sigue siendo la forma más eficiente de entender si las proteínas se expresan en compartimentos celulares específicos. Sin embargo, la sección de tejidos para histologia e inmunotinción puede ser difícil, especialmente en muestras de mamíferos adultos mayores, debido a la fijación incompleta delcristalino 137; y estudiar la estructura 3D en secciones 2D elimina detalles importantes para entender la forma de las células, las interacciones entre células y la localización de proteínas. Aunque la microscopía electrónica (EM) sigue siendo el estándar de oro para estudiar la forma de las células de fibras, localizar proteínas en muestras de EM sigue siendo un reto376.377.378. Trabajos recientes con monturas planas de la monocapa epitelial 4,7,324,373, tinción de células de fibra única 85,173,174,379 e imagen de lente entera 4,7,324,344,380,381 han revelado información importante sobre adherencias célula-célula, biomecánica del cristalino y redes del citoesqueleto cambiante en las fibras del cristalino.
Las células epiteliales y de fibra tienen funciones diferentes, transcriptomas y proteomas, y estudios previos que comparaban los distintos compartimentos celulares resultaron difíciles porque solo hay una monocapa de células epiteliales que cubre el hemisferio anterior, limitando la cantidad de ARN o proteína que se puede recoger sin agrupar muchas muestras. Los avances en técnicas de extracción de ARN, PCR en tiempo real y electroforesis capilar automatizada han permitido el análisis génico y proteico de muestras de células epiteliales del cristalino recogidas de un par de ojos de ratón 130,132,373,382 o regiones microdiseccionadas del epitelio del cristalino, fibras corticales y fibrasnucleares 383. La transcriptómica unicelular permite un perfilado en profundidad de células cristalinas de embriones de pez cebra y embriones de larva ypollo 384,385. Estos nuevos métodos abren la puerta a los mecanismos moleculares que mantienen cada compartimento celular del cristalino durante el envejecimiento normal y la patología.
A medida que avanza el campo, es importante recordar que el fondo genético de ratones puede desempeñar papeles importantes en patología de lentes386,387 y biomecánica 355,356,357, por lo que los controles de camada para experimentos son cruciales para el análisis de datos. Los modelos de ratones mutantes y KO proporcionan un sistema para estudiar cataratas relacionadas con la edad y un aumento de la rigidez del cristalino 130.356.357.388.389.390.391.392.393.394.395.396.397, y debido a la vida relativamente corta de los ratones, los estudios de envejecimiento deberían realizarse en animales viejos en lugar de extrapolar datos de animales jóvenes.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Conclusiones
Los avances tecnológicos en transcriptómica, proteómica, imagen y pruebas biomecánicas han mejorado nuestra comprensión de la biología del cristalino, fisiología y patología. Nuestro conocimiento creciente sobre las diferencias entre poblaciones distintas de células epiteliales y fibrosas será importante para entender los cambios durante el envejecimiento y los mecanismos de la longevidad de proteínas y células. Ha aumentado el interés en desarrollar intervenciones farmacéuticas para pre...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
Los autores no tienen nada que revelar.
Agradecimientos
Este trabajo fue financiado por la subvención R01 EY032056 (a CC) del Instituto Nacional de la Vista. Los autores agradecen a Isaiah J. Innis y Gryffin M. Flowers sus valiosos comentarios.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Referencias
- Freddo, T. F., Chaum, E. Anatomy of the Eye and Orbit: The Clinical Essentials, 1e. , Lippincott Williams & Wilkins, a Wolters Kluwer business. (2018).
- Danysh, B. P., Duncan, M. K. The lens capsule. Exp Eye Res. 88 (2), 151-164 (2009).
- Zampighi, G. A., Eskandari, S., Kreman, M. Epithelial organization of the mammalian lens. Exp Eye Res. 71 (4), 415-435 (2000).
- Cheng, C., Gong, X. Diverse roles of Eph/ephrin signaling in the mouse lens. PLoS One. 6 (11), e28147(2011).
- Parreno, J., Cheng, C., Nowak, R. B., Fowler, V. M. The effects of mechanical strain on mouse eye lens capsule and cellular microstructure. Mol Biol Cell. 29 (16), 1963-1974 (2018).
- Lovicu, F. J., Robinson, M. L. Development of the Ocular Lens. , Cambridge University Press. (2011).
- Cheng, C., Ansari, M. M., Cooper, J. A., Gong, X. EphA2 and Src regulate equatorial cell morphogenesis during lens development. Development. 140 (20), 4237-4245 (2013).
- Bassnett, S., Missey, H., Vucemilo, I. Molecular architecture of the lens fiber cell basal membrane complex. J Cell Sci. 112 (Pt 13), 2155-2165 (1999).
- Bassnett, S., Sikic, H. The lens growth process. Prog Retin Eye Res. 60, 181-200 (2017).
- Sikic, H., Shi, Y., Lubura, S., Bassnett, S. A full lifespan model of vertebrate lens growth. R Soc Open Sci. 4 (1), 160695(2017).
- Kuszak, J. R. The development of lens sutures. Progress in Retinal and Eye Research. 14 (2), 567-591 (1995).
- Kuszak, J. R., Mazurkiewicz, M., Zoltoski, R. Computer modeling of secondary fiber development and growth: I. Nonprimate lenses. Mol Vis. 12, 251-270 (2006).
- Kuszak, J. R., Zoltoski, R. K., Tiedemann, C. E. Development of lens sutures. Int J Dev Biol. 48 (8-9), 889-902 (2004).
- Kuszak, J. R. The ultrastructure of epithelial and fiber cells in the crystalline lens. Int Rev Cytol. 163, 305-350 (1995).
- Kuszak, J. R., Macsai, M. S., Rae, J. L. Stereo scanning electron microscopy of the crystalline lens. Scan Electron Microsc. (Pt 3), 1415-1426 (1983).
- Cheng, C. Tissue, cellular, and molecular level determinants for eye lens stiffness and elasticity. Front Ophthalmol (Lausanne). 4, 1456474(2024).
- World Health Organization. World report on vision. , (2019).
- Michael, R., Bron, A. J. The ageing lens and cataract: a model of normal and pathological ageing. Philos Trans R Soc Lond B Biol Sci. 366 (1568), 1278-1292 (2011).
- Asbell, P. A., et al. Age-related cataract. Lancet. 365 (9459), 599-609 (2005).
- Hejtmancik, J. F. Oxidative Stress in Genetic Cataract Formation. Antioxidants (Basel). 13 (11), (2024).
- Shiels, A., Hejtmancik, J. F. Biology of Inherited Cataracts and Opportunities for Treatment. Annu Rev Vis Sci. 5, 123-149 (2019).
- Truscott, R. J. W., Friedrich, M. G. Molecular Processes Implicated in Human Age-related Nuclear Cataract. Invest Ophthalmol Vis Sci. 60 (15), 5007-5021 (2019).
- Fan, X., Monnier, V. M. Protein posttranslational modification (PTM) by glycation: Role in lens aging and age-related cataractogenesis. Exp Eye Res. 210, 108705(2021).
- Budnar, P., Tangirala, R., Bakthisaran, R., Rao, C. M. Protein Aggregation and Cataract: Role of Age-related Modifications and Mutations in alpha Crystallins. Biochemistry (Mosc). 87 (3), 225-241 (2022).
- Shiels, A., Hejtmancik, J. F. Inherited cataracts: Genetic mechanisms and pathways new and old. Exp Eye Res. 209, 108662(2021).
- Heys, K. R., Cram, S. L., Truscott, R. J. Massive increase in the stiffness of the human lens nucleus with age: the basis for presbyopia? Mol Vis. 10, 956-963 (2004).
- Glasser, A., Campbell, M. C. Biometric, optical and physical changes in the isolated human crystalline lens with age in relation to presbyopia. Vision Res. 39 (11), 1991-2015 (1999).
- Weeber, H. A., et al. Dynamic mechanical properties of human lenses. Exp Eye Res. 80 (3), 425-434 (2005).
- Piatigorsky, J. Lens differentiation in vertebrates. A review of cellular and molecular features. Differentiation. 19 (3), 134-153 (1981).
- Gunhaga, L. The lens: a classical model of embryonic induction providing new insights into cell determination in early development. Philos Trans R Soc Lond B Biol Sci. 366 (1568), 1193-1203 (2011).
- Chauhan, B. K., et al. Cdc42 and IRSp53 dependent contractile filopodia tether presumptive lens and retina to coordinate epithelial invagination. Development. 136 (21), 3657-3667 (2009).
- McAvoy, J. W. Cytoplasmic processes interconnect lens placode and optic vesicle during eye morphogenesis. Exp Eye Res. 31 (5), 527-534 (1980).
- Mann, I. The development of the human eye. , 3d, Grune & Stratton. (1964).
- Eiraku, M., et al. Self organizing optic cup morphogenesis in three dimensional culture. Nature. 472 (7341), 51-56 (2011).
- Lang, R. A., Herman, K., Reynolds, A. B., Hildebrand, J. D., Plageman, T. F. Jr p120 catenin dependent junctional recruitment of Shroom3 is required for apical constriction during lens pit morphogenesis. Development. 141 (16), 3177-3187 (2014).
- Plageman, T. F. Jr, et al. A Trio RhoA Shroom3 pathway is required for apical constriction and epithelial invagination. Development. 138 (23), 5177-5188 (2011).
- Borges, R. M., Lamers, M. L., Forti, F. L., Santos, M. F., Yan, C. Y. Rho signaling pathway and apical constriction in the early lens placode. Genesis. 49 (5), 368-379 (2011).
- Quintin, S., Gally, C., Labouesse, M. Epithelial morphogenesis in embryos: asymmetries, motors and brakes. Trends Genet. 24 (5), 221-230 (2008).
- Muccioli, M., Qaisi, D., Herman, K., Plageman, T. F. Jr Lens placode planar cell polarity is dependent on Cdc42 mediated junctional contraction inhibition. Dev Biol. 412 (1), 32-43 (2016).
- Houssin, N. S., Martin, J. B., Coppola, V., Yoon, S. O., Plageman, T. F. Jr Formation and contraction of multicellular actomyosin cables facilitate lens placode invagination. Dev Biol. 462 (1), 36-49 (2020).
- Glucksmann, A. Cell deaths in normal vertebrate ontogeny. Biol Rev Camb Philos Soc. 26 (1), 59-86 (1951).
- Ozeki, H., Ogura, Y., Hirabayashi, Y., Shimada, S. Suppression of lens stalk cell apoptosis by hyaluronic acid leads to faulty separation of the lens vesicle. Exp Eye Res. 72 (1), 63-70 (2001).
- Yan, Q., Liu, J. P., Li, D. W. Apoptosis in lens development and pathology. Differentiation. 74 (5), 195-211 (2006).
- Easter, S. S. Jr, Nicola, G. N. The development of vision in the zebrafish (Danio rerio). Dev Biol. 180 (2), 646-663 (1996).
- Mann, I. The development of the human eye. , The University Press. (1928).
- Darche, M., et al. Three dimensional characterization of developing and adult ocular vasculature in mice using in toto clearing. Communications Biology. 5 (1), 1135(2022).
- Wang, Z., Liu, C. H., Huang, S., Chen, J. Assessment and Characterization of Hyaloid Vessels in Mice. J Vis Exp. (147), e59222(2019).
- Hill, R. E., et al. Mouse small eye results from mutations in a paired like homeobox containing gene. Nature. 354 (6354), 522-525 (1991).
- Jordan, T., et al. The human PAX6 gene is mutated in two patients with aniridia. Nat Genet. 1 (5), 328-332 (1992).
- Hogan, B. L., et al. Small eyes (Sey): a homozygous lethal mutation on chromosome 2 which affects the differentiation of both lens and nasal placodes in the mouse. J Embryol Exp Morphol. 97, 95-110 (1986).
- Hanson, I. M., et al. Mutations at the PAX6 locus are found in heterogeneous anterior segment malformations including Peters' anomaly. Nat Genet. 6 (2), 168-173 (1994).
- Grindley, J. C., Davidson, D. R., Hill, R. E. The role of Pax 6 in eye and nasal development. Development. 121 (5), 1433-1442 (1995).
- Fujiwara, M., Uchida, T., Osumi Yamashita, N., Eto, K. Uchida rat (rSey): a new mutant rat with craniofacial abnormalities resembling those of the mouse Sey mutant. Differentiation. 57 (1), 31-38 (1994).
- Collinson, J. M., Hill, R. E., West, J. D. Different roles for Pax6 in the optic vesicle and facial epithelium mediate early morphogenesis of the murine eye. Development. 127 (5), 945-956 (2000).
- Quinn, J. C., West, J. D., Hill, R. E. Multiple functions for Pax6 in mouse eye and nasal development. Genes Dev. 10 (4), 435-446 (1996).
- Ashery Padan, R., Marquardt, T., Zhou, X., Gruss, P. Pax6 activity in the lens primordium is required for lens formation and for correct placement of a single retina in the eye. Genes Dev. 14 (21), 2701-2711 (2000).
- Kim, E. A., et al. Phosphorylation and transactivation of Pax6 by homeodomain interacting protein kinase 2. J Biol Chem. 281 (11), 7489-7497 (2006).
- Mikkola, I., Bruun, J. A., Bjorkoy, G., Holm, T., Johansen, T. Phosphorylation of the transactivation domain of Pax6 by extracellular signal regulated kinase and p38 mitogen activated protein kinase. J Biol Chem. 274 (21), 15115-15126 (1999).
- Yan, Q., et al. Sumoylation activates the transcriptional activity of Pax 6, an important transcription factor for eye and brain development. Proc Natl Acad Sci U S A. 107 (49), 21034-21039 (2010).
- Yan, Q., et al. Protein phosphatase 1 modulates the function of Pax 6, a transcription factor controlling brain and eye development. J Biol Chem. 282 (19), 13954-13965 (2007).
- Cvekl, A., Zhang, X. Signaling and Gene Regulatory Networks in Mammalian Lens Development. Trends Genet. 33 (10), 677-702 (2017).
- Zhang, X., Friedman, A., Heaney, S., Purcell, P., Maas, R. L. Meis homeoproteins directly regulate Pax6 during vertebrate lens morphogenesis. Genes Dev. 16 (16), 2097-2107 (2002).
- Dudley, A. T., Lyons, K. M., Robertson, E. J. A requirement for bone morphogenetic protein 7 during development of the mammalian kidney and eye. Genes Dev. 9 (22), 2795-2807 (1995).
- Wawersik, S., et al. BMP7 acts in murine lens placode development. Dev Biol. 207 (1), 176-188 (1999).
- Blixt, A., et al. A forkhead gene, FoxE3, is essential for lens epithelial proliferation and closure of the lens vesicle. Genes Dev. 14 (2), 245-254 (2000).
- Brownell, I., Dirksen, M., Jamrich, M. Forkhead Foxe3 maps to the dysgenetic lens locus and is critical in lens development and differentiation. Genesis. 27 (2), 81-93 (2000).
- Dimanlig, P. V., Faber, S. C., Auerbach, W., Makarenkova, H. P., Lang, R. A. The upstream ectoderm enhancer in Pax6 has an important role in lens induction. Development. 128 (22), 4415-4424 (2001).
- Faber, S. C., et al. Fgf receptor signaling plays a role in lens induction. Development. 128 (22), 4425-4438 (2001).
- Bavik, C., Ward, S. J., Chambon, P. Developmental abnormalities in cultured mouse embryos deprived of retinoic by inhibition of yolk sac retinol binding protein synthesis. Proc Natl Acad Sci U S A. 93 (7), 3110-3114 (1996).
- Enwright, J. F. 3rd, Grainger, R. M. Altered retinoid signaling in the heads of small eye mouse embryos. Dev Biol. 221 (1), 10-22 (2000).
- Lovicu, F. J., McAvoy, J. W. Growth factor regulation of lens development. Dev Biol. 280 (1), 1-14 (2005).
- Schulz, M. W., Chamberlain, C. G., de Iongh, R. U., McAvoy, J. W. Acidic and basic FGF in ocular media and lens: implications for lens polarity and growth patterns. Development. 118 (1), 117-126 (1993).
- Lovicu, F. J., Chamberlain, C. G., McAvoy, J. W. Differential effects of aqueous and vitreous on fiber differentiation and extracellular matrix accumulation in lens epithelial explants. Invest Ophthalmol Vis Sci. 36 (7), 1459-1469 (1995).
- de Iongh, R. U., Lovicu, F. J., Chamberlain, C. G., McAvoy, J. W. Differential expression of fibroblast growth factor receptors during rat lens morphogenesis and growth. Invest Ophthalmol Vis Sci. 38 (9), 1688-1699 (1997).
- de Iongh, R. U., Lovicu, F. J., Hanneken, A., Baird, A., McAvoy, J. W. FGF receptor 1 (flg) expression is correlated with fibre differentiation during rat lens morphogenesis and growth. Dev Dyn. 206 (4), 412-426 (1996).
- Lovicu, F. J., Overbeek, P. A. Overlapping effects of different members of the FGF family on lens fiber differentiation in transgenic mice. Development. 125 (17), 3365-3377 (1998).
- Robinson, M. L., et al. Extracellular FGF 1 acts as a lens differentiation factor in transgenic mice. Development. 121 (2), 505-514 (1995).
- Robinson, M. L., et al. Disregulation of ocular morphogenesis by lens specific expression of FGF 3/int 2 in transgenic mice. Dev Biol. 198 (1), 13-31 (1998).
- Faber, S. C., Robinson, M. L., Makarenkova, H. P., Lang, R. A. Bmp signaling is required for development of primary lens fiber cells. Development. 129 (15), 3727-3737 (2002).
- Belecky Adams, T., et al. Pax 6, Prox 1, and Chx10 homeobox gene expression correlates with phenotypic fate of retinal precursor cells. Invest Ophthalmol Vis Sci. 38 (7), 1293-1303 (1997).
- de Iongh, R. U., et al. Requirement for TGFbeta receptor signaling during terminal lens fiber differentiation. Development. 128 (20), 3995-4010 (2001).
- Bassnett, S. Lens organelle degradation. Exp Eye Res. 74 (1), 1-6 (2002).
- Bassnett, S. The fate of the Golgi apparatus and the endoplasmic reticulum during lens fiber cell differentiation. Invest Ophthalmol Vis Sci. 36 (9), 1793-1803 (1995).
- Bassnett, S., Beebe, D. C. Coincident loss of mitochondria and nuclei during lens fiber cell differentiation. Dev Dyn. 194 (2), 85-93 (1992).
- Bassnett, S., Shi, Y., Vrensen, G. F. Biological glass: structural determinants of eye lens transparency. Philos Trans R Soc Lond B Biol Sci. 366 (1568), 1250-1264 (2011).
- Counis, M. F., et al. Analysis of nuclear degradation during lens cell differentiation. Cell Death Differ. 5 (4), 251-261 (1998).
- Vrensen, G. F., Graw, J., De Wolf, A. Nuclear breakdown during terminal differentiation of primary lens fibres in mice: a transmission electron microscopic study. Exp Eye Res. 52 (6), 647-659 (1991).
- Costello, M. J., et al. Autophagy and mitophagy participate in ocular lens organelle degradation. Exp Eye Res. 116, 141-150 (2013).
- De Maria, A., Bassnett, S. DNase IIbeta distribution and activity in the mouse lens. Invest Ophthalmol Vis Sci. 48 (12), 5638-5646 (2007).
- He, S., et al. Chromatin remodeling enzyme Brg1 is required for mouse lens fiber cell terminal differentiation and its denucleation. Epigenetics Chromatin. 3 (1), 21(2010).
- Cui, X., et al. HSF4 regulates DLAD expression and promotes lens de nucleation. Biochim Biophys Acta. 1832 (8), 1167-1172 (2013).
- Nakahara, M., et al. Degradation of nuclear DNA by DNase II like acid DNase in cortical fiber cells of mouse eye lens. FEBS J. 274 (12), 3055-3064 (2007).
- Nishimoto, S., et al. Nuclear cataract caused by a lack of DNA degradation in the mouse eye lens. Nature. 424 (6952), 1071-1074 (2003).
- Chaffee, B. R., et al. Nuclear removal during terminal lens fiber cell differentiation requires CDK1 activity: appropriating mitosis related nuclear disassembly. Development. 141 (17), 3388-3398 (2014).
- Lyu, L., et al. Unfolded protein response associated stabilization of p27(Cdkn1b) interferes with lens fiber cell denucleation, leading to cataract. FASEB J. 30 (3), 1087-1095 (2016).
- Gao, M., et al. HSF4 regulates lens fiber cell differentiation by activating p53 and its downstream regulators. Cell Death Dis. 8 (10), e3082(2017).
- Fujimoto, M., et al. HSF4 is required for normal cell growth and differentiation during mouse lens development. EMBO J. 23 (21), 4297-4306 (2004).
- Min, J. N., Zhang, Y., Moskophidis, D., Mivechi, N. F. Unique contribution of heat shock transcription factor 4 in ocular lens development and fiber cell differentiation. Genesis. 40 (4), 205-217 (2004).
- Morishita, H., et al. Organelle degradation in the lens by PLAAT phospholipases. Nature. 592 (7855), 634-638 (2021).
- Capetanaki, Y., Smith, S., Heath, J. P. Overexpression of the vimentin gene in transgenic mice inhibits normal lens cell differentiation. J Cell Biol. 109 (4 Pt 1), 1653-1664 (1989).
- Hamai, Y., Kuwabara, T. Early cytologic changes of Fraser cataract. An electron microscopic study. Invest Ophthalmol. 14 (7), 517-527 (1975).
- Muggleton Harris, A. L., Festing, M. F., Hall, M. A gene location for the inheritance of the cataract Fraser (CatFr) mouse congenital cataract. Genet Res. 49 (3), 235-238 (1987).
- Hamai, Y., Fukui, H. N., Kuwabara, T. Morphology of hereditary mouse cataract. Exp Eye Res. 18 (6), 537-546 (1974).
- Takehana, M. Hereditary cataract of the Nakano mouse. Exp Eye Res. 50 (6), 671-676 (1990).
- Uga, S., Kador, P. F., Kuwabara, T. Cytological study of Philly mouse cataract. Exp Eye Res. 30 (1), 79-92 (1980).
- Nakamura, M., Russell, P., Carper, D. A., Inana, G., Kinoshita, J. H. Alteration of a developmentally regulated, heat stable polypeptide in the lens of the Philly mouse. Implications for cataract formation. J Biol Chem. 263 (35), 19218-19221 (1988).
- Wang, K., et al. GammaD crystallin associated protein aggregation and lens fiber cell denucleation. Invest Ophthalmol Vis Sci. 48 (8), 3719-3728 (2007).
- Cavalheiro, G. R., et al. N myc regulates growth and fiber cell differentiation in lens development. Dev Biol. 429 (1), 105-117 (2017).
- Khillan, J. S., et al. Defects in lens fiber differentiation are linked to c mos overexpression in transgenic mice. Genes Dev. 1 (10), 1327-1335 (1987).
- Lachke, S. A. RNA binding proteins and post transcriptional regulation in lens biology and cataract: Mediating spatiotemporal expression of key factors that control the cell cycle, transcription, cytoskeleton and transparency. Exp Eye Res. 214, 108889(2022).
- Lachke, S. A., et al. Mutations in the RNA granule component TDRD7 cause cataract and glaucoma. Science. 331 (6024), 1571-1576 (2011).
- Dash, S., Dang, C. A., Beebe, D. C., Lachke, S. A. Deficiency of the RNA binding protein caprin2 causes lens defects and features of Peters anomaly. Dev Dyn. 244 (10), 1313-1327 (2015).
- Dash, S., et al. The master transcription factor SOX2, mutated in anophthalmia/microphthalmia, is post transcriptionally regulated by the conserved RNA binding protein RBM24 in vertebrate eye development. Hum Mol Genet. 29 (4), 591-604 (2020).
- Siddam, A. D., et al. The RNA binding protein Celf1 post transcriptionally regulates p27Kip1 and Dnase2b to control fiber cell nuclear degradation in lens development. PLoS Genet. 14 (3), e1007278(2018).
- Siddam, A. D., et al. High Throughput Transcriptomics of Celf1 Conditional Knockout Lens Identifies Downstream Networks Linked to Cataract Pathology. Cells. 12 (7), (2023).
- Aryal, S., et al. The cataract linked RNA binding protein Celf1 post transcriptionally controls the spatiotemporal expression of the key homeodomain transcription factors Pax6 and Prox1 in lens development. Hum Genet. 139 (12), 1541-1554 (2020).
- Takemoto, L., Sorensen, C. M. Protein protein interactions and lens transparency. Exp Eye Res. 87 (6), 496-501 (2008).
- Oyster, C. W. The human eye : structure and function. , Sinauer Associates, Inc.. (1999).
- Flaugh, S. L., Kosinski Collins, M. S., King, J. Contributions of hydrophobic domain interface interactions to the folding and stability of human gammaD crystallin. Protein Sci. 14 (3), 569-581 (2005).
- Papanikolopoulou, K., et al. Formation of amyloid fibrils in vitro by human gammaD crystallin and its isolated domains. Mol Vis. 14, 81-89 (2008).
- Graw, J. Genetics of crystallins: cataract and beyond. Exp Eye Res. 88 (2), 173-189 (2009).
- Kosinski Collins, M. S., King, J. In vitro unfolding, refolding, and polymerization of human gammaD crystallin, a protein involved in cataract formation. Protein Sci. 12 (3), 480-490 (2003).
- Horwitz, J., Bova, M. P., Ding, L. L., Haley, D. A., Stewart, P. L. Lens alpha crystallin: function and structure. Eye (Lond). 13 (Pt 3b), 403-408 (1999).
- Hejtmancik, J. F., et al. Progress in Molecular Biology and Translational Science. Hejtmancik, J. F., Nickerson, J. M. 134, Academic Press. 169-201 (2015).
- Bloemendal, H., et al. Ageing and vision: structure, stability and function of lens crystallins. Prog Biophys Mol Biol. 86 (3), 407-485 (2004).
- Benedek, G. B. Theory of transparency of the eye. Appl Opt. 10 (3), 459-473 (1971).
- Delaye, M., Tardieu, A. Short range order of crystallin proteins accounts for eye lens transparency. Nature. 302 (5907), 415-417 (1983).
- Bassnett, S., Costello, M. J. The cause and consequence of fiber cell compaction in the vertebrate lens. Exp Eye Res. 156, 50-57 (2017).
- Pierscionek, B. K., Regini, J. W. The gradient index lens of the eye: an opto biological synchrony. Prog Retin Eye Res. 31 (4), 332-349 (2012).
- Cheng, C., et al. Age-related changes in eye lens biomechanics, morphology, refractive index and transparency. Aging (Albany NY). 11 (24), 12497-12531 (2019).
- Cheng, C., et al. EphA2 Affects Development of the Eye Lens Nucleus and the Gradient of Refractive Index. Invest Ophthalmol Vis Sci. 63 (1), 2(2022).
- Flowers, G. M., et al. Eph ephrin signaling affects lens growth and shape, nucleus size, and gradient refractive index in adult mice. Frontiers in Ophthalmology. 5, (2025).
- Kozlowski, T. M., Kroger, R. H. H. Constant lens fiber cell thickness in fish suggests crystallin transport to denucleated cells. Vision Res. 162, 29-34 (2019).
- Shestopalov, V. I., Bassnett, S. Expression of autofluorescent proteins reveals a novel protein permeable pathway between cells in the lens core. J Cell Sci. 113 (Pt 11), 1913-1921 (2000).
- Shestopalov, V. I., Bassnett, S. Development of a macromolecular diffusion pathway in the lens. J Cell Sci. 116 (Pt 20), 4191-4199 (2003).
- Dunia, I., et al. Structural and immunocytochemical alterations in eye lens fiber cells from Cx46 and Cx50 knockout mice. Eur J Cell Biol. 85 (8), 729-752 (2006).
- Blankenship, T., Bradshaw, L., Shibata, B., Fitzgerald, P. Structural specializations emerging late in mouse lens fiber cell differentiation. Invest Ophthalmol Vis Sci. 48 (7), 3269-3276 (2007).
- Lo, W. K., Reese, T. S. Multiple structural types of gap junctions in mouse lens. J Cell Sci. 106 (Pt 1), 227-235 (1993).
- Baldo, G. J., et al. Gap junctional coupling in lenses from alpha(8) connexin knockout mice. J Gen Physiol. 118 (5), 447-456 (2001).
- Baldo, G. J., Mathias, R. T. Spatial variations in membrane properties in the intact rat lens. Biophys J. 63 (2), 518-529 (1992).
- Duncan, G., Patmore, L., Pynsent, P. B. Impedance of the amphibian lens. J Physiol. 312, 17-27 (1981).
- Martinez Wittinghan, F. J., et al. Lens gap junctional coupling is modulated by connexin identity and the locus of gene expression. Invest Ophthalmol Vis Sci. 45 (10), 3629-3637 (2004).
- Cheng, C., et al. Gap junction communication influences intercellular protein distribution in the lens. Exp Eye Res. 86 (6), 966-974 (2008).
- Bloemendal, H. The vertebrate eye lens. Science. 197 (4299), 127-138 (1977).
- van der Ouderaa, F. J., de Jong, W. W., Bloemendal, H. The amino acid sequence of the alphaA2 chain of bovine alpha crystallin. Eur J Biochem. 39 (1), 207-222 (1973).
- Bloemendal, H., de Jong, W. W. Lens proteins and their genes. Prog Nucleic Acid Res Mol Biol. 41, 259-281 (1991).
- Kato, K., et al. Immunoreactive alpha A crystallin in rat non lenticular tissues detected with a sensitive immunoassay method. Biochim Biophys Acta. 1080 (2), 173-180 (1991).
- Srinivasan, A. N., Nagineni, C. N., Bhat, S. P. alpha A crystallin is expressed in non ocular tissues. J Biol Chem. 267 (32), 23337-23341 (1992).
- Nath, M., Fort, P. E. alphaA Crystallin Mediated Neuroprotection in the Retinal Neurons Is Independent of Protein Kinase B. Front Neurosci. 16, 912757(2022).
- Skeie, J. M., Mahajan, V. B. Proteomic interactions in the mouse vitreous retina complex. PLoS One. 8 (11), e82140(2013).
- Ruebsam, A., et al. A specific phosphorylation regulates the protective role of alphaA crystallin in diabetes. JCI Insight. 3 (4), (2018).
- Vermorken, A. J., Hilderink, J. M., van de Ven, W. J., Bloemendal, H. Lens differentiation. Crystallin synthesis in isolated epithelia from calf lenses. J Cell Biol. 76 (1), 175-183 (1978).
- Boyle, D. L., Takemoto, L., Brady, J. P., Wawrousek, E. F. Morphological characterization of the Alpha A and Alpha B crystallin double knockout mouse lens. BMC Ophthalmol. 3, 3(2003).
- Horwitz, J. Alpha crystallin. Exp Eye Res. 76 (2), 145-153 (2003).
- Raju, M., Santhoshkumar, P., Krishna Sharma, K. Alpha crystallin derived peptides as therapeutic chaperones. Biochim Biophys Acta. 1860 (1 Pt B), 246-251 (2016).
- Cheng, C., et al. Altered chaperone like activity of alpha crystallins promotes cataractogenesis. J Biol Chem. 285 (52), 41187-41193 (2010).
- Aravind, P., et al. The betagamma crystallin superfamily contains a universal motif for binding calcium. Biochemistry. 48 (51), 12180-12190 (2009).
- Srivastava, S. S., Mishra, A., Krishnan, B., Sharma, Y. Ca2+ binding motif of betagamma crystallins. J Biol Chem. 289 (16), 10958-10966 (2014).
- Vanmarle, J., Jonges, R., Vrensen, G. F., Dewolf, A. Calcium and its localization in human lens fibres: an electron tomographic study. Exp Eye Res. 65 (1), 83-88 (1997).
- Jobby, M. K., Sharma, Y. Calcium binding to lens betaB2 and betaA3 crystallins suggests that all beta crystallins are calcium binding proteins. FEBS J. 274 (16), 4135-4147 (2007).
- Bergman, M. R., Deravi, L. F. Manipulating polydispersity of lens beta crystallins using divalent cations demonstrates evidence of calcium regulation. Proc Natl Acad Sci U S A. 119 (48), e2212051119(2022).
- Cheng, C., Nowak, R. B., Fowler, V. M. The lens actin filament cytoskeleton: Diverse structures for complex functions. Exp Eye Res. 156, 58-71 (2017).
- Quinlan, R. A., Clark, J. I. Insights into the biochemical and biophysical mechanisms mediating the longevity of the transparent optics of the eye lens. J Biol Chem. 298 (11), 102537(2022).
- Song, S., et al. Functions of the intermediate filament cytoskeleton in the eye lens. J Clin Invest. 119 (7), 1837-1848 (2009).
- FitzGerald, P. G. Lens intermediate filaments. Exp Eye Res. 88 (2), 165-172 (2009).
- Logan, C. M., Menko, A. S. Microtubules: Evolving roles and critical cellular interactions. Exp Biol Med (Maywood). 244 (15), 1240-1254 (2019).
- More, M. I., Kirsch, F. P., Rathjen, F. G. Targeted ablation of NrCAM or ankyrin B results in disorganized lens fibers leading to cataract formation. J Cell Biol. 154 (1), 187-196 (2001).
- Lin, Q., et al. Genetic variations and polymorphisms in the ezrin gene are associated with age-related cataract. Mol Vis. 19, 1572-1579 (2013).
- Hao, J., Kunishima, S., Guo, X., Hu, R., Gao, W. A large family with MYH9 disorder caused by E1841K mutation suffering from serious kidney and hearing impairment and cataracts. Ann Hematol. 91 (7), 1147-1148 (2012).
- De Rocco, D., et al. MYH9 related disease: five novel mutations expanding the spectrum of causative mutations and confirming genotype/phenotype correlations. Eur J Med Genet. 56 (1), 7-12 (2013).
- Economou, M., et al. MYH9 related disorders: report on a patient of Greek origin presenting with macroscopic hematuria and presenile cataract, caused by an R1165C mutation. J Pediatr Hematol Oncol. 34 (6), 412-415 (2012).
- Saposnik, B., et al. Mutation spectrum and genotype phenotype correlations in a large French cohort of MYH9 Related Disorders. Mol Genet Genomic Med. 2 (4), 297-312 (2014).
- Cheng, C., et al. Tropomyosin 3.5 protects the F-actin networks required for tissue biomechanical properties. J Cell Sci. 131 (23), (2018).
- Cheng, C., et al. Tropomodulin 1 Regulation oF-actin Is Required for the Formation of Large Paddle Protrusions Between Mature Lens Fiber Cells. Invest Ophthalmol Vis Sci. 57 (10), 4084-4099 (2016).
- Maddala, R., Walters, M., Brophy, P. J., Bennett, V., Rao, P. V. Ankyrin B directs membrane tethering of periaxin and is required for maintenance of lens fiber cell hexagonal shape and mechanics. Am J Physiol Cell Physiol. 310 (2), C115-C126 (2016).
- Won, G. J., Fudge, D. S., Choh, V. The effects of actomyosin disruptors on the mechanical integrity of the avian crystalline lens. Mol Vis. 21, 98-109 (2015).
- Kasper, M., Moll, R., Stosiek, P., Karsten, U. Patterns of cytokeratin and vimentin expression in the human eye. Histochemistry. 89 (4), 369-377 (1988).
- Kasper, M., Viebahn, C. Cytokeratin expression and early lens development. Anat Embryol (Berl). 186 (3), 285-290 (1992).
- Ellis, M., Alousi, S., Lawniczak, J., Maisel, H., Welsh, M. Studies on lens vimentin. Exp Eye Res. 38 (2), 195-202 (1984).
- Ramaekers, F. C., Dunia, I., Dodemont, H. J., Benedetti, E. L., Bloemendal, H. Lenticular intermediate sized filaments: biosynthesis and interaction with plasma membrane. Proc Natl Acad Sci U S A. 79 (10), 3208-3212 (1982).
- Ramaekers, F. C., et al. Identification of the cytoskeletal proteins in lens forming cells, a special epitheloid cell type. Exp Cell Res. 127 (2), 309-327 (1980).
- FitzGerald, P. G. Immunochemical characterization of a Mr 115 lens fiber cell specific extrinsic membrane protein. Curr Eye Res. 7 (12), 1243-1253 (1988).
- Ireland, M. E., et al. Up regulation of novel intermediate filament proteins in primary fiber cells: an indicator of all vertebrate lens fiber differentiation? Anat Rec. 258 (1), 25-33 (2000).
- Quinlan, R. A., Stewart, M. Molecular interactions in intermediate filaments. Bioessays. 13 (11), 597-600 (1991).
- Goulielmos, G., et al. Filensin and phakinin form a novel type of beaded intermediate filaments and coassemble de novo in cultured cells. J Cell Biol. 132 (4), 643-655 (1996).
- Georgatos, S. D., Gounari, F., Goulielmos, G., Aebi, U. To bead or not to bead? Lens specific intermediate filaments revisited. J Cell Sci. 110 (Pt 21), 2629-2634 (1997).
- Ireland, M., Maisel, H. A cytoskeletal protein unique to lens fiber cell differentiation. Exp Eye Res. 38 (6), 637-645 (1984).
- Bloemendal, H., et al. Interaction of crystallins with the cytoskeletal plasma membrane complex of the bovine lens. Ciba Found Symp. 106, 177-190 (1984).
- Carter, J. M., Hutcheson, A. M., Quinlan, R. A. In vitro studies on the assembly properties of the lens proteins CP49, CP115: coassembly with alpha crystallin but not with vimentin. Exp Eye Res. 60 (2), 181-192 (1995).
- Chaves, J. M., Gupta, R., Srivastava, K., Srivastava, O. Human alpha A crystallin missing N terminal domain poorly complexes with filensin and phakinin. Biochem Biophys Res Commun. 494 (1-2), 402-408 (2017).
- FitzGerald, P. G., Graham, D. Ultrastructural localization of alpha A crystallin to the bovine lens fiber cell cytoskeleton. Curr Eye Res. 10 (5), 417-436 (1991).
- Sandilands, A., et al. Bfsp2 mutation found in mouse 129 strains causes the loss of CP49' and induces vimentin dependent changes in the lens fibre cell cytoskeleton. Exp Eye Res. 78 (4), 875-889 (2004).
- Sandilands, A., et al. Knockout of the intermediate filament protein CP49 destabilises the lens fibre cell cytoskeleton and decreases lens optical quality, but does not induce cataract. Exp Eye Res. 76 (3), 385-391 (2003).
- Alizadeh, A., et al. Targeted deletion of the lens fiber cell specific intermediate filament protein filensin. Invest Ophthalmol Vis Sci. 44 (12), 5252-5258 (2003).
- Alizadeh, A., et al. Targeted genomic deletion of the lens specific intermediate filament protein CP49. Invest Ophthalmol Vis Sci. 43 (12), 3722-3727 (2002).
- Perng, M. D., Zhang, Q., Quinlan, R. A. Insights into the beaded filament of the eye lens. Exp Cell Res. 313 (10), 2180-2188 (2007).
- Muller, M., et al. Dominant cataract formation in association with a vimentin assembly disrupting mutation. Hum Mol Genet. 18 (6), 1052-1057 (2009).
- Bornheim, R., et al. A dominant vimentin mutant upregulates Hsp70 and the activity of the ubiquitin proteasome system, and causes posterior cataracts in transgenic mice. J Cell Sci. 121 (Pt 22), 3737-3746 (2008).
- Jakobs, P. M., et al. Autosomal dominant congenital cataract associated with a deletion mutation in the human beaded filament protein gene BFSP2. Am J Hum Genet. 66 (4), 1432-1436 (2000).
- Conley, Y. P., et al. A juvenile onset, progressive cataract locus on chromosome 3q21 q22 is associated with a missense mutation in the beaded filament structural protein 2. Am J Hum Genet. 66 (4), 1426-1431 (2000).
- Zhang, Q., et al. Clinical description and genome wide linkage study of Y sutural cataract and myopia in a Chinese family. Mol Vis. 10, 890-900 (2004).
- Cui, X., et al. The E233del mutation in BFSP2 causes a progressive autosomal dominant congenital cataract in a Chinese family. Mol Vis. 13, 2023-2029 (2007).
- Ma, X., et al. A new mutation in BFSP2 (G1091A) causes autosomal dominant congenital lamellar cataracts. Mol Vis. 14, 1906-1911 (2008).
- Ramachandran, R. D., Perumalsamy, V., Hejtmancik, J. F. Autosomal recessive juvenile onset cataract associated with mutation in BFSP1. Hum Genet. 121 (3-4), 475-482 (2007).
- Logan, C. M., Bowen, C. J., Menko, A. S. Functional role for stable microtubules in lens fiber cell elongation. Exp Cell Res. 362 (2), 477-488 (2018).
- Basu, S., Rajakaruna, S., Reyes, B., Van Bockstaele, E., Menko, A. S. Suppression of MAPK/JNK MTORC1 signaling leads to premature loss of organelles and nuclei by autophagy during terminal differentiation of lens fiber cells. Autophagy. 10 (7), 1193-1211 (2014).
- Pontoriero, G. F., et al. Co operative roles for E-cadherin and N-cadherin during lens vesicle separation and lens epithelial cell survival. Dev Biol. 326 (2), 403-417 (2009).
- Leonard, M., Zhang, L., Bleaken, B. M., Menko, A. S. Distinct roles for N-cadherin linked c Src and fyn kinases in lens development. Dev Dyn. 242 (5), 469-484 (2013).
- Leonard, M., et al. Modulation of N-cadherin junctions and their role as epicenters of differentiation specific actin regulation in the developing lens. Dev Biol. 349 (2), 363-377 (2011).
- Maddala, R., Nagendran, T., Lang, R. A., Morozov, A., Rao, P. V. Rap1 GTPase is required for mouse lens epithelial maintenance and morphogenesis. Dev Biol. 406 (1), 74-91 (2015).
- Wigle, J. T., Chowdhury, K., Gruss, P., Oliver, G. Prox1 function is crucial for mouse lens fibre elongation. Nat Genet. 21 (3), 318-322 (1999).
- Xu, L., Overbeek, P. A., Reneker, L. W. Systematic analysis of E , N and P cadherin expression in mouse eye development. Exp Eye Res. 74 (6), 753-760 (2002).
- Logan, C. M., et al. N-cadherin regulates signaling mechanisms required for lens fiber cell elongation and lens morphogenesis. Dev Biol. 428 (1), 118-134 (2017).
- Cooper, M. A., et al. Loss of ephrin A5 function disrupts lens fiber cell packing and leads to cataract. Proc Natl Acad Sci U S A. 105 (43), 16620-16625 (2008).
- Son, A. I., et al. Further analysis of the lens of ephrin A5 / mice: development of postnatal defects. Mol Vis. 19, 254-266 (2013).
- Biswas, S., Son, A. I., Yu, Q., Zhou, R., Lo, W. K. Breakdown of interlocking domains may contribute to formation of membranous globules and lens opacity in ephrin A5( / ) mice. Exp Eye Res. 145, 130-139 (2016).
- Maher, G. J., Black, G. C., Manson, F. D. Focus on molecules: lens intrinsic membrane protein (LIM2/MP20). Exp Eye Res. 103, 115-116 (2012).
- Walker, J., Menko, A. S. Integrins in lens development and disease. Exp Eye Res. 88 (2), 216-225 (2009).
- Shi, Y., et al. Further analysis of the lens phenotype in Lim2 deficient mice. Invest Ophthalmol Vis Sci. 52 (10), 7332-7339 (2011).
- Mulders, J. W., et al. MP17, a fiber specific intrinsic membrane protein from mammalian eye lens. Curr Eye Res. 7 (2), 207-219 (1988).
- Voorter, C. E., et al. Distribution of MP17 in isolated lens fibre membranes. Curr Eye Res. 8 (7), 697-706 (1989).
- Steele, E. C. Jr, et al. Identification of a mutation in the MP19 gene, Lim2, in the cataractous mouse mutant To3. Mol Vis. 3, 5(1997).
- Irum, B., et al. Mutation in LIM2 Is Responsible for Autosomal Recessive Congenital Cataracts. PLoS One. 11 (11), e0162620(2016).
- Wang, X., et al. Elongated axial length and myopia related fundus changes associated with the Arg130Cys mutation in the LIM2 gene in four Chinese families with congenital cataracts. Ann Transl Med. 9 (3), 235(2021).
- Berry, V., et al. A recurrent variant in LIM2 causes an isolated congenital sutural/lamellar cataract in a Japanese family. Ophthalmic Genet. 43 (5), 622-626 (2022).
- Pei, R., et al. A novel mutation of LIM2 causes autosomal dominant membranous cataract in a Chinese family. Int J Ophthalmol. 13 (10), 1512-1520 (2020).
- Ponnam, S. P., Ramesha, K., Tejwani, S., Matalia, J., Kannabiran, C. A missense mutation in LIM2 causes autosomal recessive congenital cataract. Mol Vis. 14, 1204-1208 (2008).
- Pras, E., et al. A missense mutation in the LIM2 gene is associated with autosomal recessive presenile cataract in an inbred Iraqi Jewish family. Am J Hum Genet. 70 (5), 1363-1367 (2002).
- Goyal, S., Singh, R., Singh, J. R., Vanita, V. Novel and known variants in GJA3 and LIM2 in congenital cataract families from North India. BMC Genomics. 25 (1), 31(2024).
- Puk, O., Ahmad, N., Wagner, S., de Angelis, M. H., Graw, J. Microphakia and congenital cataract formation in a novel Lim2(C51R) mutant mouse. Mol Vis. 17, 1164-1171 (2011).
- Dahm, R., Bramke, S., Dawczynski, J., Nagaraj, R. H., Kasper, M. Developmental aspects of galectin 3 expression in the lens. Histochem Cell Biol. 119 (3), 219-226 (2003).
- Gonen, T., Donaldson, P., Kistler, J. Galectin 3 is associated with the plasma membrane of lens fiber cells. Invest Ophthalmol Vis Sci. 41 (1), 199-203 (2000).
- Gonen, T., Grey, A. C., Jacobs, M. D., Donaldson, P. J., Kistler, J. MP20, the second most abundant lens membrane protein and member of the tetraspanin superfamily, joins the list of ligands of galectin 3. BMC Cell Biol. 2, 17(2001).
- Barton, K. A., Hsu, C. D., Petrash, J. M. Interactions between small heat shock protein alpha crystallin and galectin related interfiber protein (GRIFIN) in the ocular lens. Biochemistry. 48 (18), 3956-3966 (2009).
- Garcia Caballero, G., et al. Chicken lens development: complete signature of expression of galectins during embryogenesis and evidence for their complex formation with alpha , beta , delta , and tau crystallins, N CAM, and N-cadherin obtained by affinity chromatography. Cell Tissue Res. 379 (1), 13-35 (2020).
- Garcia Caballero, G., et al. Chicken GRIFIN: binding partners, developmental course of localization and activation of its lens specific gene expression by L Maf/Pax6. Cell Tissue Res. 375 (3), 665-683 (2019).
- Ogden, A. T., et al. GRIFIN, a novel lens specific protein related to the galectin family. J Biol Chem. 273 (44), 28889-28896 (1998).
- Menko, A. S., Philip, N. J. Beta 1 integrins in epithelial tissues: a unique distribution in the lens. Exp Cell Res. 218 (2), 516-521 (1995).
- Menko, S., Philp, N., Veneziale, B., Walker, J. Integrins and development: how might these receptors regulate differentiation of the lens. Ann N Y Acad Sci. 842, 36-41 (1998).
- Walker, J. L., Menko, A. S. alpha6 Integrin is regulated with lens cell differentiation by linkage to the cytoskeleton and isoform switching. Dev Biol. 210 (2), 497-511 (1999).
- Walker, J. L., Zhang, L., Zhou, J., Woolkalis, M. J., Menko, A. S. Role for alpha 6 integrin during lens development: Evidence for signaling through IGF 1R and ERK. Dev Dyn. 223 (2), 273-284 (2002).
- Wederell, E. D., et al. Laminin binding integrins in rat lens morphogenesis and their regulation during fibre differentiation. Exp Eye Res. 81 (3), 326-339 (2005).
- Barbour, W., et al. Expression patterns of beta1 related alpha integrin subunits in murine lens during embryonic development and wound healing. Curr Eye Res. 29 (1), 1-10 (2004).
- Wu, J. E., Santoro, S. A. Complex patterns of expression suggest extensive roles for the alpha 2 beta 1 integrin in murine development. Dev Dyn. 199 (4), 292-314 (1994).
- Duncan, M. K., Kozmik, Z., Cveklova, K., Piatigorsky, J., Cvekl, A. Overexpression of PAX6(5a) in lens fiber cells results in cataract and upregulation of (alpha)5(beta)1 integrin expression. J Cell Sci. 113 (Pt 18), 3173-3185 (2000).
- Bassuk, J. A., et al. Disruption of the Sparc locus in mice alters the differentiation of lenticular epithelial cells and leads to cataract formation. Exp Eye Res. 68 (3), 321-331 (1999).
- Gilmour, D. T., et al. Mice deficient for the secreted glycoprotein SPARC/osteonectin/BM40 develop normally but show severe age onset cataract formation and disruption of the lens. EMBO J. 17 (7), 1860-1870 (1998).
- Kantorow, M., Horwitz, J., Carper, D. Up regulation of osteonectin/SPARC in age-related cataractous human lens epithelia. Mol Vis. 4, 17(1998).
- Emerson, R. O., Sage, E. H., Ghosh, J. G., Clark, J. I. Chaperone like activity revealed in the matricellular protein SPARC. J Cell Biochem. 98 (4), 701-705 (2006).
- Weaver, M. S., Sage, E. H., Yan, Q. Absence of SPARC in lens epithelial cells results in altered adhesion and extracellular matrix production in vitro. J Cell Biochem. 97 (2), 423-432 (2006).
- Weaver, M. S., Workman, G., Sage, E. H. The copper binding domain of SPARC mediates cell survival in vitro via interaction with integrin beta1 and activation of integrin linked kinase. J Biol Chem. 283 (33), 22826-22837 (2008).
- Yan, Q., Perdue, N., Blake, D., Sage, E. H. Absence of SPARC in murine lens epithelium leads to increased deposition of laminin 1 in lens capsule. Invest Ophthalmol Vis Sci. 46 (12), 4652-4660 (2005).
- Greiling, T. M., Stone, B., Clark, J. I. Absence of SPARC leads to impaired lens circulation. Exp Eye Res. 89 (3), 416-425 (2009).
- Giannone, A. A., Li, L., Sellitto, C., White, T. W. Physiological Mechanisms Regulating Lens Transport. Front Physiol. 12, 818649(2021).
- Donaldson, P. J., Chen, Y., Petrova, R. S., Grey, A. C., Lim, J. C. Regulation of lens water content: Effects on the physiological optics of the lens. Prog Retin Eye Res. 95, 101152(2023).
- Donaldson, P. J., Grey, A. C., Maceo Heilman, B., Lim, J. C., Vaghefi, E. The physiological optics of the lens. Prog Retin Eye Res. 56, e1-e24 (2017).
- Mathias, R. T., Kistler, J., Donaldson, P. The lens circulation. J Membr Biol. 216 (1), 1-16 (2007).
- Robinson, K. R., Patterson, J. W. Localization of steady currents in the lens. Curr Eye Res. 2 (12), 843-847 (1982).
- Mathias, R. T., Rae, J. L., Baldo, G. J. Physiological properties of the normal lens. Physiol Rev. 77 (1), 21-50 (1997).
- Gao, J., Sun, X., Yatsula, V., Wymore, R. S., Mathias, R. T. Isoform specific function and distribution of Na/K pumps in the frog lens epithelium. J Membr Biol. 178 (2), 89-101 (2000).
- Alvarez, L. J., Candia, O. A., Grillone, L. R. Na+ K+ ATPase distribution in frog and bovine lenses. Curr Eye Res. 4 (2), 143-152 (1985).
- Delamere, N. A., Dean, W. L. Distribution of lens sodium potassium adenosine triphosphatase. Invest Ophthalmol Vis Sci. 34 (7), 2159-2163 (1993).
- Paterson, C. A. Distribution and movement of ions in the ocular lens. Doc Ophthalmol. 31 (1), 1-28 (1972).
- Donaldson, P. J., Petrova, R. S., Nair, N., Chen, Y., Schey, K. L. Regulation of water flow in the ocular lens: new roles for aquaporins. J Physiol. 602 (13), 3041-3056 (2024).
- Goodenough, D. A. The crystalline lens. A system networked by gap junctional intercellular communication. Semin Cell Biol. 3 (1), 49-58 (1992).
- Mathias, R. T., White, T. W., Gong, X. Lens gap junctions in growth, differentiation, and homeostasis. Physiol Rev. 90 (1), 179-206 (2010).
- Beyer, E. C., Kistler, J., Paul, D. L., Goodenough, D. A. Antisera directed against connexin43 peptides react with a 43 kD protein localized to gap junctions in myocardium and other tissues. J Cell Biol. 108 (2), 595-605 (1989).
- Gao, Y., Spray, D. C. Structural changes in lenses of mice lacking the gap junction protein connexin43. Invest Ophthalmol Vis Sci. 39 (7), 1198-1209 (1998).
- Rong, P., et al. Disruption of Gja8 (alpha8 connexin) in mice leads to microphthalmia associated with retardation of lens growth and lens fiber maturation. Development. 129 (1), 167-174 (2002).
- Puk, O., et al. Mutation in a novel connexin like gene (Gjf1) in the mouse affects early lens development and causes a variable small eye phenotype. Invest Ophthalmol Vis Sci. 49 (4), 1525-1532 (2008).
- Sonntag, S., et al. Mouse lens connexin23 (Gje1) does not form functional gap junction channels but causes enhanced ATP release from HeLa cells. Eur J Cell Biol. 88 (2), 65-77 (2009).
- Bassnett, S., Wilmarth, P. A., David, L. L. The membrane proteome of the mouse lens fiber cell. Mol Vis. 15, 2448-2463 (2009).
- Wang, Z., Han, J., David, L. L., Schey, K. L. Proteomics and phosphoproteomics analysis of human lens fiber cell membranes. Invest Ophthalmol Vis Sci. 54 (2), 1135-1143 (2013).
- Berthoud, V. M., et al. Connexin23 deletion does not affect lens transparency. Exp Eye Res. 146, 283-288 (2016).
- Fleishman, S. J., Unger, V. M., Yeager, M., Ben Tal, N. A Calpha model for the transmembrane alpha helices of gap junction intercellular channels. Mol Cell. 15 (6), 879-888 (2004).
- Unger, V. M., Kumar, N. M., Gilula, N. B., Yeager, M. Three dimensional structure of a recombinant gap junction membrane channel. Science. 283 (5405), 1176-1180 (1999).
- Hu, Z., Riquelme, M. A., Gu, S., Jiang, J. X. Regulation of Connexin Gap Junctions and Hemichannels by Calcium and Calcium Binding Protein Calmodulin. Int J Mol Sci. 21 (21), (2020).
- Quan, Y., Du, Y., Tong, Y., Gu, S., Jiang, J. X. Connexin Gap Junctions and Hemichannels in Modulating Lens Redox Homeostasis and Oxidative Stress in Cataractogenesis. Antioxidants (Basel). 10 (9), (2021).
- Ebihara, L., Korzyukov, Y., Kothari, S., Tong, J. J. Cx46 hemichannels contribute to the sodium leak conductance in lens fiber cells. Am J Physiol Cell Physiol. 306 (5), C506-C513 (2014).
- Liu, J., et al. Mechanosensitive collaboration between integrins and connexins allows nutrient and antioxidant transport into the lens. J Cell Biol. 219 (12), (2020).
- Tong, Y., et al. Mechano activated connexin hemichannels and glutathione transport protect lens fiber cells against oxidative insults. Redox Biol. 73, 103216(2024).
- Wang, G., Quan, Y., Ma, B., Gu, S., Jiang, J. X. Mechano activated connexin hemichannels mediate intercellular glutathione transport and support lens redox homeostasis. Redox Biol. 85, 103767(2025).
- Shi, W., Riquelme, M. A., Gu, S., Jiang, J. X. Connexin hemichannels mediate glutathione transport and protect lens fiber cells from oxidative stress. J Cell Sci. 131 (6), (2018).
- Ramachandran, S., Xie, L. H., John, S. A., Subramaniam, S., Lal, R. A novel role for connexin hemichannel in oxidative stress and smoking induced cell injury. PLoS One. 2 (8), e712(2007).
- Quan, Y., Du, Y., Wu, C., Gu, S., Jiang, J. X. Connexin hemichannels regulate redox potential via metabolite exchange and protect lens against cellular oxidative damage. Redox Biol. 46, 102102(2021).
- Quan, Y., Du, Y., Wu, C., Gu, S., Jiang, J. X. Data on Connexin 43 hemichannels regulation of cellular redox in lens. Data Brief. 39, 107572(2021).
- Ren, Q., et al. Cataract causing mutation of human connexin 46 impairs gap junction, but increases hemichannel function and cell death. PLoS One. 8 (9), e74732(2013).
- Siller Jackson, A. J., et al. Adaptation of connexin 43 hemichannel prostaglandin release to mechanical loading. J Biol Chem. 283 (39), 26374-26382 (2008).
- Cheng, C., et al. Lens ion homeostasis relies on the assembly and/or stability of large connexin 46 gap junction plaques on the broad sides of differentiating fiber cells. Am J Physiol Cell Physiol. 308 (10), C835-C847 (2015).
- Gong, X., et al. Disruption of alpha3 connexin gene leads to proteolysis and cataractogenesis in mice. Cell. 91 (6), 833-843 (1997).
- Gong, X., Baldo, G. J., Kumar, N. M., Gilula, N. B., Mathias, R. T. Gap junctional coupling in lenses lacking alpha3 connexin. Proc Natl Acad Sci U S A. 95 (26), 15303-15308 (1998).
- White, T. W., Goodenough, D. A., Paul, D. L. Targeted ablation of connexin50 in mice results in microphthalmia and zonular pulverulent cataracts. J Cell Biol. 143 (3), 815-825 (1998).
- Sellitto, C., Li, L., White, T. W. Connexin50 is essential for normal postnatal lens cell proliferation. Invest Ophthalmol Vis Sci. 45 (9), 3196-3202 (2004).
- White, T. W. Unique and redundant connexin contributions to lens development. Science. 295 (5553), 319-320 (2002).
- Li, L., et al. Connexin mediated cataract prevention in mice. PLoS One. 5 (9), (2010).
- Schey, K. L., et al. Lens Aquaporins in Health and Disease: Location is Everything! Front Physiol. 13, 882550(2022).
- Schey, K. L., Petrova, R. S., Gletten, R. B., Donaldson, P. J. The Role of Aquaporins in Ocular Lens Homeostasis. Int J Mol Sci. 18 (12), (2017).
- Gao, J., et al. Lens intracellular hydrostatic pressure is generated by the circulation of sodium and modulated by gap junction coupling. J Gen Physiol. 137 (6), 507-520 (2011).
- Gao, J., Sun, X., White, T. W., Delamere, N. A., Mathias, R. T. Feedback Regulation of Intracellular Hydrostatic Pressure in Surface Cells of the Lens. Biophys J. 109 (9), 1830-1839 (2015).
- Shahidullah, M., et al. TRPV1 activation stimulates NKCC1 and increases hydrostatic pressure in the mouse lens. Am J Physiol Cell Physiol. 318 (5), C969-C980 (2020).
- Petrova, R. S., et al. Modulation of Membrane Trafficking of AQP5 in the Lens in Response to Changes in Zonular Tension Is Mediated by the Mechanosensitive Channel TRPV1. Int J Mol Sci. 24 (10), (2023).
- Chen, Y., Petrova, R. S., Qiu, C., Donaldson, P. J. Intracellular hydrostatic pressure regulation in the bovine lens: a role in the regulation of lens optics? Am J Physiol Regul Integr Comp Physiol. 322 (3), R263-R279 (2022).
- Donaldson, P. J., Musil, L. S., Mathias, R. T. Point: A critical appraisal of the lens circulation model an experimental paradigm for understanding the maintenance of lens transparency? Invest Ophthalmol Vis Sci. 51 (5), 2303-2306 (2010).
- Merriman Smith, B. R., Krushinsky, A., Kistler, J., Donaldson, P. J. Expression patterns for glucose transporters GLUT1 and GLUT3 in the normal rat lens and in models of diabetic cataract. Invest Ophthalmol Vis Sci. 44 (8), 3458-3466 (2003).
- Merriman Smith, R., Donaldson, P., Kistler, J. Differential expression of facilitative glucose transporters GLUT1 and GLUT3 in the lens. Invest Ophthalmol Vis Sci. 40 (13), 3224-3230 (1999).
- Zahraei, A., et al. Mapping Glucose Uptake, Transport and Metabolism in the Bovine Lens Cortex. Front Physiol. 13, 901407(2022).
- Lim, J. C., Perwick, R. D., Li, B., Donaldson, P. J. Comparison of the expression and spatial localization of glucose transporters in the rat, bovine and human lens. Exp Eye Res. 161, 193-204 (2017).
- Swarup, A., et al. Deletion of GLUT1 in mouse lens epithelium leads to cataract formation. Exp Eye Res. 172, 45-53 (2018).
- Reddy, V. N. Metabolism of glutathione in the lens. Exp Eye Res. 11 (3), 310-328 (1971).
- Truscott, R. J. Age-related nuclear cataract oxidation is the key. Exp Eye Res. 80 (5), 709-725 (2005).
- Kannan, R., Yi, J. R., Zlokovic, B. V., Kaplowitz, N. Molecular characterization of a reduced glutathione transporter in the lens. Invest Ophthalmol Vis Sci. 36 (9), 1785-1792 (1995).
- Mackic, J. B., et al. Transport of circulating reduced glutathione at the basolateral side of the anterior lens epithelium: physiologic importance and manipulations. Exp Eye Res. 62 (1), 29-37 (1996).
- Li, B., Li, L., Donaldson, P. J., Lim, J. C. Dynamic regulation of GSH synthesis and uptake pathways in the rat lens epithelium. Exp Eye Res. 90 (2), 300-307 (2010).
- Lim, J., Li, L., Jacobs, M. D., Kistler, J., Donaldson, P. J. Mapping of glutathione and its precursor amino acids reveals a role for GLYT2 in glycine uptake in the lens core. Invest Ophthalmol Vis Sci. 48 (11), 5142-5151 (2007).
- Li, L., Lim, J., Jacobs, M. D., Kistler, J., Donaldson, P. J. Regional differences in cystine accumulation point to a sutural delivery pathway to the lens core. Invest Ophthalmol Vis Sci. 48 (3), 1253-1260 (2007).
- Rathbun, W. B. Activity of glutathione synthesis enzymes in the rhesus monkey lens related to age: a model for the human lens. Curr Eye Res. 5 (2), 161-166 (1986).
- Sethna, S. S., Holleschau, A. M., Rathbun, W. B. Activity of glutathione synthesis enzymes in human lens related to age. Curr Eye Res. 2 (11), 735-742 (1982).
- Giblin, F. J., et al. Nuclear light scattering, disulfide formation and membrane damage in lenses of older guinea pigs treated with hyperbaric oxygen. Exp Eye Res. 60 (3), 219-235 (1995).
- Padgaonkar, V. A., et al. Hyperbaric oxygen in vivo accelerates the loss of cytoskeletal proteins and MIP26 in guinea pig lens nucleus. Exp Eye Res. 68 (4), 493-504 (1999).
- Padgaonkar, V., Giblin, F. J., Reddy, V. N. Disulfide cross linking of urea insoluble proteins in rabbit lenses treated with hyperbaric oxygen. Exp Eye Res. 49 (5), 887-899 (1989).
- Lou, M. F., Dickerson, J. E. Jr Protein thiol mixed disulfides in human lens. Exp Eye Res. 55 (6), 889-896 (1992).
- Wei, Z., et al. Aging lens epithelium is susceptible to ferroptosis. Free Radic Biol Med. 167, 94-108 (2021).
- Wei, Z., et al. Deficiency in glutathione peroxidase 4 (GPX4) results in abnormal lens development and newborn cataract. Proc Natl Acad Sci U S A. 121 (48), e2407842121(2024).
- Cheng, C., Fowler, V. M., Gong, X. EphA2 and ephrin A5 are not a receptor ligand pair in the ocular lens. Exp Eye Res. 162, 9-17 (2017).
- Islam, S. T., Cheheltani, S., Cheng, C., Fowler, V. M. Disease related non muscle myosin IIA D1424N rod domain mutation, but not R702C motor domain mutation, disrupts mouse ocular lens fiber cell alignment and hexagonal packing. Cytoskeleton (Hoboken). 81 (12), 789-805 (2024).
- Islam, S. T., Cheng, C., Parreno, J., Fowler, V. M. Nonmuscle Myosin IIA Regulates the Precise Alignment of Hexagonal Eye Lens Epithelial Cells During Fiber Cell Formation and Differentiation. Invest Ophthalmol Vis Sci. 64 (4), 20(2023).
- Forrester, J. V., Dick, A. D., McMenamin, P. G., Roberts, F., Pearlman, E. The Eye (Fourth Edition). Forrester, J. V. , W.B. Saunders. 1-102.e102 (2016).
- D’Amore, P. A. Encyclopedia of the Eye (Second Edition). , Elsevier. 514-520 (2025).
- Vrensen, G. F. Aging of the human eye lens a morphological point of view. Comp Biochem Physiol A Physiol. 111 (4), 519-532 (1995).
- Vrensen, G. F., Duindam, H. J. Maturation of fiber membranes in the human eye lens. Ultrastructural and Raman microspectroscopic observations. Ophthalmic Res. 27 Suppl 1, 78-85 (1995).
- Willekens, B., Vrensen, G. The three dimensional organization of lens fibers in the rabbit. A scanning electron microscopic reinvestigation. Albrecht Von Graefes Arch Klin Exp Ophthalmol. 216 (4), 275-289 (1981).
- Willekens, B., Vrensen, G. The three dimensional organization of lens fibers in the rhesus monkey. Graefes Arch Clin Exp Ophthalmol. 219 (3), 112-120 (1982).
- Willekens, B., Vrensen, G. Lens fiber organization in four avian species: a scanning electron microscopic study. Tissue Cell. 17 (3), 359-377 (1985).
- Lo, W. K., et al. Aquaporin 0 targets interlocking domains to control the integrity and transparency of the eye lens. Invest Ophthalmol Vis Sci. 55 (3), 1202-1212 (2014).
- Lo, W. K., Harding, C. V. Square arrays and their role in ridge formation in human lens fibers. J Ultrastruct Res. 86 (3), 228-245 (1984).
- Kistler, J., et al. Membrane interlocking domains in the lens. Invest Ophthalmol Vis Sci. 27 (10), 1527-1534 (1986).
- Dickson, D. H., Crock, G. W. Interlocking patterns on primate lens fibers. Invest Ophthalmol. 11 (10), 809-815 (1972).
- Kuszak, J., Alcala, J., Maisel, H. The surface morphology of embryonic and adult chick lens fiber cells. Am J Anat. 159 (4), 395-410 (1980).
- Kuwabara, T. The maturation of the lens cell: a morphologic study. Exp Eye Res. 20 (5), 427-443 (1975).
- Martin, J. B., et al. Arvcf Dependent Adherens Junction Stability is Required to Prevent Age-related Cortical Cataracts. Front Cell Dev Biol. 10, 840129(2022).
- Chen, Y., Stump, R. J., Lovicu, F. J., Shimono, A., McAvoy, J. W. Wnt signaling is required for organization of the lens fiber cell cytoskeleton and development of lens three dimensional architecture. Dev Biol. 324 (1), 161-176 (2008).
- Sugiyama, Y., et al. Concave to convex curve conversion of fiber cells correlates with Y shaped suture formation at the poles of the rodent lens. Exp Eye Res. 248, 110066(2024).
- Kuszak, J. R., Sivak, J. G., Weerheim, J. A. Lens optical quality is a direct function of lens sutural architecture. Invest Ophthalmol Vis Sci. 32 (7), 2119-2129 (1991).
- Cheng, C. EphA2 and Ephrin A5 Guide Eye Lens Suture Alignment and Influence Whole Lens Resilience. Invest Ophthalmol Vis Sci. 62 (15), 3(2021).
- Xia, C. H., et al. Absence of alpha3 (Cx46) and alpha8 (Cx50) connexins leads to cataracts by affecting lens inner fiber cells. Exp Eye Res. 83 (3), 688-696 (2006).
- BEERS, A. P. A., van der HEIJDE, G. L. Age-related Changes in the Accommodation Mechanism. Optometry and Vision Science. 73 (4), 235-242 (1996).
- van Alphen, G. W., Graebel, W. P. Elasticity of tissues involved in accommodation. Vision Res. 31 (7-8), 1417-1438 (1991).
- Fisher, R. F. The ciliary body in accommodation. Trans Ophthalmol Soc U K (1962). 105 (Pt 2), 208-219 (1986).
- Graebel, W. P., van Alphen, G. W. H. M. The Elasticity of Sclera and Choroid of the Human Eye, and Its Implications on Scleral Rigidity and Accommodation. Journal of Biomechanical Engineering. 99 (4), 203-208 (1977).
- Tamm, S., Tamm, E., Rohen, J. W. Age-related changes of the human ciliary muscle. A quantitative morphometric study. Mech Ageing Dev. 62 (2), 209-221 (1992).
- Scarcelli, G., Kim, P., Yun, S. H. In vivo measurement of age-related stiffening in the crystalline lens by Brillouin optical microscopy. Biophys J. 101 (6), 1539-1545 (2011).
- Zhou, H., Yan, H., Yan, W., Wang, X., Li, Q. In vivo ultraosound elastographic evaluation of the age-related change of human lens nuclear stiffness. BMC Ophthalmol. 20 (1), 135(2020).
- Hermans, E., Dubbelman, M., van der Heijde, R., Heethaar, R. The shape of the human lens nucleus with accommodation. J Vis. 7 (10), 16.1-10 (2007).
- Fisher, R. F., Pettet, B. E. Presbyopia and the water content of the human crystalline lens. J Physiol. 234 (2), 443-447 (1973).
- Alizadeh, A., et al. Characterization of a mutation in the lens specific CP49 in the 129 strain of mouse. Invest Ophthalmol Vis Sci. 45 (3), 884-891 (2004).
- Fudge, D. S., et al. Intermediate filaments regulate tissue size and stiffness in the murine lens. Invest Ophthalmol Vis Sci. 52 (6), 3860-3867 (2011).
- Gokhin, D. S., et al. Tmod1 and CP49 synergize to control the fiber cell geometry, transparency, and mechanical stiffness of the mouse lens. PLoS One. 7 (11), e48734(2012).
- Duindam, J. J., Vrensen, G. F., Otto, C., Greve, J. Aging affects the conformation of cholesterol in the human eye lens. Ophthalmic Res. 28 Suppl 1, 86-91 (1996).
- Li, L. K., So, L., Spector, A. Age dependent changes in the distribution and concentration of human lens cholesterol and phospholipids. Biochim Biophys Acta. 917 (1), 112-120 (1987).
- Mainali, L., Raguz, M., O'Brien, W. J., Subczynski, W. K. Changes in the Properties and Organization of Human Lens Lipid Membranes Occurring with Age. Curr Eye Res. 42 (5), 721-731 (2017).
- Truscott, R. J. Age-related nuclear cataract: a lens transport problem. Ophthalmic Res. 32 (5), 185-194 (2000).
- Subczynski, W. K., Raguz, M., Widomska, J., Mainali, L., Konovalov, A. Functions of cholesterol and the cholesterol bilayer domain specific to the fiber cell plasma membrane of the eye lens. J Membr Biol. 245 (1), 51-68 (2012).
- Widomska, J., Subczynski, W. K. Why Is Very High Cholesterol Content Beneficial for the Eye Lens but Negative for Other Organs? Nutrients. 11 (5), (2019).
- Khadka, N. K., Mortimer, M. F., Marosvari, M., Timsina, R., Mainali, L. Membrane elasticity modulated by cholesterol in model of porcine eye lens lipid membrane. Exp Eye Res. 220, 109131(2022).
- Bracchi, P. G., Carta, F., Fasella, P., Maraini, G. Selective binding of aged alpha crystallin to lens fibre ghosts. Exp Eye Res. 12 (1), 151-154 (1971).
- Maraini, G., Fasella, P. Reversible binding of soluble lens proteins to lens fibre ghosts. Exp Eye Res. 10 (1), 133-139 (1970).
- Broekhuyse, R. M., Kuhlmann, E. D. Lens membranes. IV. Preparative isolation and characterization of membranes and various membrane proteins from calf lens. Exp Eye Res. 26 (3), 305-320 (1978).
- Friedrich, M. G., Truscott, R. J. Large scale binding of alpha crystallin to cell membranes of aged normal human lenses: a phenomenon that can be induced by mild thermal stress. Invest Ophthalmol Vis Sci. 51 (10), 5145-5152 (2010).
- Khadka, N. K., Timsina, R., Mainali, L. An AFM Approach Applied in a Study of alpha Crystallin Membrane Association: New Insights into Lens Hardening and Presbyopia Development. Membranes (Basel). 12 (5), (2022).
- Timsina, R., Khadka, N. K., Maldonado, D., Mainali, L. Interaction of alpha crystallin with four major phospholipids of eye lens membranes. Exp Eye Res. 202, 108337(2021).
- Timsina, R., Mainali, L. Association of Alpha Crystallin with Fiber Cell Plasma Membrane of the Eye Lens Accompanied by Light Scattering and Cataract Formation. Membranes (Basel). 11 (6), (2021).
- Timsina, R., Trossi Torres, G., O'Dell, M., Khadka, N. K., Mainali, L. Cholesterol and cholesterol bilayer domains inhibit binding of alpha crystallin to the membranes made of the major phospholipids of eye lens fiber cell plasma membranes. Exp Eye Res. 206, 108544(2021).
- Parreno, J., et al. Methodologies to unlock the molecular expression and cellular structure of ocular lens epithelial cells. Front Cell Dev Biol. 10, 983178(2022).
- Cvekl, A., Camerino, M. J. Generation of Lens Progenitor Cells and Lentoid Bodies from Pluripotent Stem Cells: Novel Tools for Human Lens Development and Ocular Disease Etiology. Cells. 11 (21), (2022).
- Murphy, P., et al. Light focusing human micro lenses generated from pluripotent stem cells model lens development and drug induced cataract in vitro. Development. 145 (1), (2018).
- Goldberg, M. W. High Resolution Scanning Electron Microscopy and Immuno Gold Labeling of the Nuclear Lamina and Nuclear Pore Complex. Methods Mol Biol. 1411, 441-459 (2016).
- Goldberg, M. W., Fiserova, J. Immunogold Labeling for Scanning Electron Microscopy. Methods Mol Biol. 1474, 309-325 (2016).
- Hermann, R., Walther, P., Muller, M. Immunogold labeling in scanning electron microscopy. Histochem Cell Biol. 106 (1), 31-39 (1996).
- Vu, M. P., Cheng, C. Preparation and Immunofluorescence Staining of Bundles and Single Fiber Cells from the Cortex and Nucleus of the Eye Lens. J Vis Exp. (196), e65638(2023).
- Emin, G., et al. Whole Mount Imaging to Visualize and Quantify Peripheral Lens Structure, Cell Morphology, and Organization. J Vis Exp. (203), e66017(2024).
- Zhou, Y., Shiels, A. Epha2 and Efna5 participate in lens cell pattern formation. Differentiation. 102, 1-9 (2018).
- Huynh, P. N., Cheng, C. Spatial temporal comparison of Eph/Ephrin gene expression in ocular lenses from aging and knockout mice. Front Ophthalmol (Lausanne). 4, 1410860(2024).
- Disatham, J., et al. Lens differentiation is characterized by stage specific changes in chromatin accessibility correlating with differentiation state specific gene expression. Dev Biol. 453 (1), 86-104 (2019).
- Farnsworth, D. R., Posner, M., Miller, A. C. Single cell transcriptomics of the developing zebrafish lens and identification of putative controllers of lens development. Exp Eye Res. 206, 108535(2021).
- Tangeman, J. A., et al. Integrated single cell multiomics uncovers foundational regulatory mechanisms of lens development and pathology. Development. 151 (1), (2024).
- Xia, C. H., et al. Periaxin gene variants are linked to age-related cataracts in Cx46 deficient lenses. Commun Biol. 8 (1), 1356(2025).
- Gong, X., Agopian, K., Kumar, N. M., Gilula, N. B. Genetic factors influence cataract formation in alpha 3 connexin knockout mice. Dev Genet. 24 (1-2), 27-32 (1999).
- Baradia, H., Nikahd, N., Glasser, A. Mouse lens stiffness measurements. Exp Eye Res. 91 (2), 300-307 (2010).
- Sindhu Kumari, S., et al. Role of Aquaporin 0 in lens biomechanics. Biochem Biophys Res Commun. 462 (4), 339-345 (2015).
- Cheng, C., Gokhin, D. S., Nowak, R. B., Fowler, V. M. Sequential Application of Glass Coverslips to Assess the Compressive Stiffness of the Mouse Lens: Strain and Morphometric Analyses. J Vis Exp. (111), e53986(2016).
- Wolf, N. S., Li, Y., Pendergrass, W., Schmeider, C., Turturro, A. Normal mouse and rat strains as models for age-related cataract and the effect of caloric restriction on its development. Exp Eye Res. 70 (5), 683-692 (2000).
- Martin Montalvo, A., et al. Metformin improves healthspan and lifespan in mice. Nat Commun. 4, 2192(2013).
- Pearson, K. J., et al. Resveratrol delays age-related deterioration and mimics transcriptional aspects of dietary restriction without extending life span. Cell Metab. 8 (2), 157-168 (2008).
- Pendergrass, W., Penn, P., Possin, D., Wolf, N. Accumulation of DNA, nuclear and mitochondrial debris, and ROS at sites of age-related cortical cataract in mice. Invest Ophthalmol Vis Sci. 46 (12), 4661-4670 (2005).
- Pendergrass, W. R., Penn, P. E., Li, J., Wolf, N. S. Age-related telomere shortening occurs in lens epithelium from old rats and is slowed by caloric restriction. Exp Eye Res. 73 (2), 221-228 (2001).
- Schriner, S. E., et al. Extension of murine life span by overexpression of catalase targeted to mitochondria. Science. 308 (5730), 1909-1911 (2005).
- Wolf, N., et al. Age-related cataract progression in five mouse models for anti oxidant protection or hormonal influence. Exp Eye Res. 81 (3), 276-285 (2005).
- Panja, S., et al. Aggrelyte 2 promotes protein solubility and decreases lens stiffness through lysine acetylation and disulfide reduction: Implications for treating presbyopia. Aging Cell. 22 (4), e13797(2023).
- Panja, S., Nam, M. H., Gaikwad, H., Rankenberg, J., Nagaraj, R. H. Topical ocular application of aggrelyte 2A reduces lens stiffness in mice. Frontiers in Ophthalmology. 3, (2023).
- Kador, P. F., Guo, C., Kawada, H., Randazzo, J., Blessing, K. Topical nutraceutical Optixcare EH ameliorates experimental ocular oxidative stress in rats. J Ocul Pharmacol Ther. 30 (7), 593-602 (2014).
- Kador, P. F., Webb, T. R., Bras, D., Ketring, K., Wyman, M. Topical KINOSTAT ameliorates the clinical development and progression of cataracts in dogs with diabetes mellitus. Vet Ophthalmol. 13 (6), 363-368 (2010).
- Kador, P. F., Wyman, M., Oates, P. J. Aldose reductase, ocular diabetic complications and the development of topical Kinostat((R)). Prog Retin Eye Res. 54, 1-29 (2016).
- Maden, M. Salamanders as Key Models for Development and Regeneration Research. Methods Mol Biol. 2562, 1-23 (2023).
- Grogg, M. W., Call, M. K., Tsonis, P. A. Signaling during lens regeneration. Semin Cell Dev Biol. 17 (6), 753-758 (2006).
- Tsonis, P. A., Makarev, E. On dorsal/ventral specific genes in the iris during lens regeneration. Cell Mol Life Sci. 65 (1), 41-44 (2008).
- Kha, C. X., Son, P. H., Lauper, J., Tseng, K. A. A model for investigating developmental eye repair in Xenopus laevis. Exp Eye Res. 169, 38-47 (2018).
- Gwon, A. E., Gruber, L. J., Mundwiler, K. E. A histologic study of lens regeneration in aphakic rabbits. Invest Ophthalmol Vis Sci. 31 (3), 540-547 (1990).
- Gwon, A., Gruber, L. J., Mantras, C. Restoring lens capsule integrity enhances lens regeneration in New Zealand albino rabbits and cats. J Cataract Refract Surg. 19 (6), 735-746 (1993).
- Medvedovic, M., Tomlinson, C. R., Call, M. K., Grogg, M., Tsonis, P. A. Gene expression and discovery during lens regeneration in mouse: regulation of epithelial to mesenchymal transition and lens differentiation. Mol Vis. 12, 422-440 (2006).
- Call, M. K., Grogg, M. W., Del Rio Tsonis, K., Tsonis, P. A. Lens regeneration in mice: implications in cataracts. Exp Eye Res. 78 (2), 297-299 (2004).
- Kuszak, J. R., Brown, H. G. Embryology and anatomy of the crystallin lens. , W.B. Saunders. 82-96 (1994).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Reimpresiones y permisos
Este artículo ha sido publicado
Video próximamente