Este protocolo presenta un método detallado para aislar suspensiones unicelulares de alta calidad tanto de tejido pulmonar murino sano como tumoral. Este protocolo puede aplicarse a scRNA-seq, análisis de citometría de flujo y aislamiento de células primarias.
Artículo de método
Preparación optimizada de tejido pulmonar completo con tumores de murino para citometría de flujo y secuenciación de ARN unicelular
En este artículo
Resumen
Resumen
El NSCLC representa aproximadamente el 85% de los cánceres de pulmón, y el sarcoma de rata de Kirsten (KRAS) es el gen más mutado en el NSCLC. Aunque la gestión de la NSCLC ha avanzado notablemente en los últimos años, su heterogeneidad y plasticidad siguen siendo incompletamente comprendidas. La secuenciación de ARN unicelular (scRNA-seq) se ha convertido en una herramienta esencial para diseccionar la heterogeneidad celular en tejidos complejos como el pulmón. Sin embargo, generar suspensiones unicelulares de alta calidad a partir de tejido pulmonar con tumores es un reto, especialmente durante la formación tumoral, cuando el tejido se vuelve fibrótico y heterogéneo. Un requisito clave para el éxito del scRNA-seq es la preparación de células individuales viables con un estrés o daño inducido por el procesamiento mínimo. Aquí se presenta un protocolo detallado paso a paso para aislar suspensiones unicelulares de alta calidad tanto de tejido pulmonar sano como tumoral de ratón en un KrasG12D; Modelo de ratón reportero de tdTomate. El procedimiento incluye perfusión tisular, digestión enzimática controlada, disociación mecánica suave, lisis de glóbulos rojos, filtración y evaluación de viabilidad, y logra un >85% de células viables antes de la secuencia de SCRNA. Finalmente, las células tumorales de tdTomato+ se aíslan eficientemente mediante FACS y pueden detectarse como agrupaciones distintas mediante scRNA-seq usando este protocolo.
Introducción
El cáncer de pulmón es una de las principales causas de muertes relacionadas con el cáncer en todo el mundo. Puede clasificarse en dos subtipos principales: cáncer de pulmón de células pequeñas (SCLC) y cáncer de pulmón no de células pequeñas (NSCLC)1. El CPNPC representa aproximadamente el 85% de todos los casos de cáncer de pulmón, siendo el adenocarcinoma el subtipohistológico 2 más común. Aunque las estrategias terapéuticas para el CPNPC han mejorado sustancialmente en las últimas décadas, la tasa de mortalidad por cáncer de pulmón sigue siendoalta. La quimioterapia e inmunoterapia son las dos principales modalidades de tratamiento utilizadas en la práctica clínica; sin embargo, muchos pacientes experimentan resistencia a los medicamentos o no responden a la inmunoterapia 4,5.
El microambiente tumoral (TME) desempeña un papel fundamental en la iniciación, progresión y resistencia terapéuticadel tumor 6. Cada vez hay más evidencia que sugiere que la composición de la TME cambia dinámicamente con eltiempo 7,8. Las células inmunitarias antitumorales suelen enriquecerse en la TME durante las primeras fases de la tumorogénesis, mientras que las poblaciones celulares inmunosupresoras y asociadas al cáncer se vuelven predominantes a medida que el tumor sedesarrolla. Por lo tanto, comprender la heterogeneidad y plasticidad de la EMT durante la progresión del cáncer de pulmón es esencial para dilucidar los mecanismos de la enfermedad y mejorar los resultados terapéuticos.
La secuenciación de ARN unicelular (scRNA-seq) permite un perfilado de alta resolución de la expresión génica a nivel celular individual, permitiendo la caracterización integral de transcriptomas tejidoscomplejos 10. Esta técnica se ha vuelto indispensable para estudiar la heterogeneidad celular e identificar los mecanismos subyacentes a la progresión tumoral y la resistencia a fármacos en el cáncerde pulmón. La preparación de una suspensión de célula única de alta calidad es un componente crítico para el éxito del scRNA-seq, ya que el estrés o el daño celular durante la disociación pueden conducir a resultadosinexactos 12,13.
Este protocolo permite secuenciar ARN de todas las células individuales purificadas de pulmones completos portadores de tumores, agnóstico respecto al tamaño celular y sin descartar subpoblaciones celulares vivas. Muchos estudios previos han informado de secuenciación unicelular de pulmones con tumores que se centraban en células tumorales y CD45+descartadas 14, 15, 16, o bien en células inmunitarias u otros tipos celularesespecíficos 17 y células tumorales descartadas. Este protocolo tiene como objetivo disociar eficazmente todos los tipos celulares del tejido pulmonar murino entero portador de tumores, asegurando la liberación de células malignas y preservando la viabilidad de las células normales. Al incluir todas las células vivas individuales, este protocolo permite el estudio de todos los tipos celulares relevantes dentro del microambiente pulmonar portador de tumores, incluyendo las células similares a macrófagos asociadas al cáncer (CAMLs)18. Se incluyen pasos opcionales de clasificación celular activada por fluorescencia (FACS) para el control de calidad y el enriquecimiento de poblaciones celulares específicas. Se proporciona orientación adicional para la tinción de anticuerpos, el marcaje de 4',6-diamidino-2-fenilindol (DAPI) y procedimientos de fijación a corto plazo cuando la clasificación inmediata no es factible.
Una posible limitación de este protocolo es que ha sido optimizado y validado para tejidos pulmonares que contienen tumores en estadio inicial y con una carga tumoral inferior al 40%. En pulmones que contienen tumores de grado superior o en los que la carga tumoral supera el 50%, la eficiencia de disociación puede verse comprometida por la presencia de componentes estromales densos y fibrosisextensa, que podría bloquear la liberación completa de células malignas.
Protocolo
Todos los experimentos relacionados con animales se realizaron conforme a las directrices de Scripps Research para el cuidado y uso de animales y fueron aprobados por el Comité de Cuidado y Uso Animal de la Institución de Investigación Scripps bajo el protocolo #10-0019. El KrasLSL-G12D/+; Se generaron ratones TdTomato+/- cruzando ratones Kras LSL-G12D/+ con ratones reporteros TdTomato. KrasLSL-G12D/+ de nueve o diez semanas; Se utilizaron ratones TdTomato+/- como modelos de cáncer de pulmón. Se infectan intratraquealmente con lentivirus que expresa Cre recombinasa, con un título viral de 5 ×10 5 unidades formadoras de placa por ratón. Se recogieron tejidos pulmonares con tumores tras 25 semanas. Los posibles problemas digestivos y la solución de problemas se enumeran en la Tabla Suplementaria 1. Los reactivos y el equipo utilizado se enumeran en la Tabla de Materiales.
1. Preparación de los tampones
- Medio DMEM/F12: Preparar FBS inactivado por calor al 2% (v/v) en medio DMEM/F12.
- Buffer de lavado celular: Preparar un 2% (v/v) de FBS inactivado por calor en PBS libre de Ca+/Mg+ (pH 7,4).
- Tampón de perfusión: PBS libre de Ca+/Mg+ preenfriado (pH 7,4).
- Soluciones enzimáticas estándar: Disolver 10 mg (1600 U/mg) de colagenasa IV en 1 mL de DMEM/F12 para obtener una solución stock de colagenasa intravenosa de 16000 U/mL; Disolver 42 mg (1,19 U/mg) de Dispase II en 1 mL de medio DMEM/F12 para obtener una solución stock de Dispase II de 50 U/mL; Disuelve 5 mg de DNasa I en 1 mL de DMEM/F12 medio para obtener una solución de 5 mg/mL de DNasa I de serie.
- Medio digestivo: Mezclar 250 μL de colagenosa IV, 200 μL de Dispasa II y 100 μL de soluciones stock de DNasa I en un medio DMEM/F12 de 5 mL para obtener una concentración final de 800 U/mL de colagenosa IV, 2 U/mL de Dispasa II y 0,1 mg/mL de DNasa I.
- Amortiguador de resuspensión: Mezclar 1 μL de 0,5 M EDTA (10 μM), 1 mL de FBS inactivado por calor (2% v/v) en 50 mL PBS libre de Ca+/Mg+ (pH 7,4).
- Solución stock de BSA: Disolver 0,5 g de BSA en 100 mL PBS libre de Ca+/Mg+ para obtener una solución stock de BSA al 0,5% (p/v).
- Buffer FACS: Mezclar 2,5 mL de 1 M HEPES, 200 μL de 0,5 M EDTA en una solución stock de 100 mL de BSA para obtener una concentración final de 25 mM HEPES y 1 mM de EDTA.
2. Colección de tejido pulmonar murino
NOTA: Todos los instrumentos quirúrgicos se desinfectan con un 70% de etanol entre muestras. Las muestras se mantienen en hielo entre cada paso, y todo el material plástico está certificado libre de DNasa/RNasa.
- Eutanasiar al ratón en una cámara deCO-2 (siguiendo protocolos aprobados por la institución). Coloca el ratón boca arriba sobre una almohadilla de disección y sujeta los pies. Rocía generosamente con etanol al 70%.
- Realiza una incisión mediana de 2–3 cm de ancho a través de la piel y los músculos de la parte baja del abdomen. Abre cuidadosamente el tórax y evita cortar los pulmones o el corazón.
- Acopla una aguja multifly de seguridad de 21 G a una jeringuilla de 50 mL y aspira un buffer de perfusión de 30 mL.
- Inserta la aguja en el ventrículo izquierdo y haz una pequeña incisión en la aurícula derecha usando unas tijeras afiladas y rectas.
- Perfundir21 de cuerpo entero con buffer de perfusión de 15 mL.
NOTA: El blanqueamiento del hígado indica que la perfusión corporal completa se ha completado. - Extrae los pulmones del tórax y elimina el exceso de tejido adherido a lospulmones 22. Coloca los pulmones en 10 mL de PBS preenfriado sin Ca+/Mg+ para eliminar el exceso de sangre.
- Transfiere los pulmones a un tubo de 1,5 mL que contiene 500 μL de DMEM/F12 helado.
3. Preparación de la suspensión pulmonar de célula única
- Corta el tejido pulmonar en pequeños trozos (1–2 mm3) con unas tijeras rectas extra estrechas durante 2–3 minutos.
- Transfiere el tejido pulmonar picado a una bandeja de 6 cm que contenga un medio digestivo de 5 mL.
- Coloca una antena de 6 cm en un agitador termostático a 50 rpm durante 25 minutos a 37 °C. Mezcla la suspensión con una pipeta de 1 mL cada 8 minutos.
- Coloca un colador de malla de 100 μm en un plato de 10 cm. Prehumedece el colador con 1 mL de DMEM/F12 medium.
- Transfiere la suspensión digerida al colador. Empuja el tejido a través del colador con el extremo de goma de un émbolo de jeringuilla estéril.
- Coloca un colador de malla de 70 μm sobre un tubo centrífuga de 50 mL. Prehumedece el colador con 1 mL de DMEM/F12 medium.
- Filtra la suspensión de la celda a través de un colador y enjuaga el colador con medio DMEM/F12 de 5 mL.
- Centrifuga la suspensión de celda filtrada a 400 g durante 10 minutos a 4 °C y retira el sobrenadante con cuidado. Resuspende el pellet celular en 1 mL de tampón lisador de glóbulos rojos durante 2 minutos a temperatura ambiente.
- Añade 14 mL de tampón de lavado de celdas y centrifuga a 400 g durante 10 minutos a 4 °C.
NOTA: Si la pellet sigue roja tras lavarla, repite los pasos 8 y 9. - Descarta el sobrenadante y vuelve a suspender las celdas en un buffer de resuspensión de 20 mL.
- Mezcla 10 μL de suspensión monocelular con un volumen igual de azul tripáno y añade 10 μL de la mezcla al portaobjetos de la cámara de conteo celular. Comprueba la viabilidad de la celda viva, el número de celda y el estado de celda única usando un contador de celdas.
4. Análisis de citometría de flujo
- Resuspender las células en un buffer FACS helado y transferir 100 μL de suspensión celular a tubos de 1,5 mL que contienen 1 μL de anticuerpo Fc block (1:100). Incuba muestras durante 15 minutos sobre hielo.
- Centrifuga muestras a 500 g durante 5 minutos y desecha el sobrenadante. Resuspender las células en 200 μL del anticuerpo CD326-APC (1:100) e incubar durante 45 minutos en la oscuridad a 4 °C.
- Centrifuga muestras a 500 g durante 5 minutos y desecha el sobrenadante. Resuspender las células en 500 μL de buffer FACS que contiene tinción DAPI (1:5000).
- Transfiere todas las muestras a tubos FACS y protégelas de la luz.
- Analiza las muestras usando el citómetro de flujo. Se utilizaron los siguientes fluoróforos: DAPI-V450, Tdtomato-YG585, CD326-APC. La estrategia de gating se muestra en la Figura 1.
Resultados
Se logró una alta viabilidad de celda en la suspensión de celda única preparada usando este protocolo optimizado. Los cambios que mejoraron la viabilidad celular en pulmones con tumores incluyeron la optimización de la concentración de enzimas (Tabla Suplementaria 2), agitar y mezclar las muestras durante la incubación a 37 °C. Además, se eliminó el uso de un colador de malla adicional de 40 μm en el paso 6 para reducir el esfuerzo de corte mecánico que aumenta la probabilidad de daño celular; incluir el colador adicional puede reducir la formación de multiplets. De media, la viabilidad celular superó el 85%, frente a menos del 80% antes de la optimización (Tabla 1). Las variaciones en la concentración celular se atribuyeron principalmente a diferencias en el tamaño pulmonar y el medio de suspensión utilizado entre réplicas.
En este modelo murino de adenocarcinoma pulmonar impulsadopor Kras G12D, existen nódulos tumorales y las cargas tumorales oscilan entre el 10% y el 40% veinticinco semanas después del inicio deltumor 23. Dos suspensiones monocelulares de pulmón completo fueron sometidas a scRNA-seq en la plataforma 10x de Genómica. La evaluación de calidad de Cell Ranger identificó 23.488 y 21.436 células estimadas en las dos muestras, respectivamente (Tabla 2). El diagrama de códigos de barras indicó una contaminación mínima por ARN ambiental, probablemente reflejando la alta viabilidad celular (Figuras 2A, B).
El análisis de componentes principales (PCA) y la aproximación y proyección de variedades uniformes (UMAP) revelaron clústeres bien definidos, representando todos los principales tipos celulares pulmonares (Figura 3A). Los gráficos de puntos de genes marcadores representativos confirmaron que los biomarcadores canónicos estaban altamente expresados en sus tipos celulares correspondientes (Figura 3B). Además, las células TdTomato+ se enriquecieron en racimos relacionados con epitelios, y las células TdTomato+/EpCAM+ fueron aisladas con éxito por FACS (Figura 1).
En resumen, este protocolo optimizado permite una disociación eficiente del tejido pulmonar con tumores murinos, lo que proporciona alta viabilidad celular, baja contaminación por ARN y una representación celular integral.
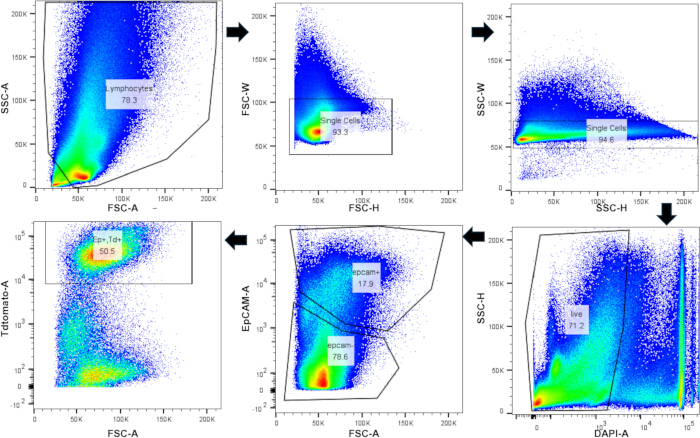
Figura 1: Aislamiento de células TdTomato+/CD326 (EpCAM+) mediante citometría de flujo. Estrategia de compuerta de citometría de flujo para suspensión unicelular de pulmón murino. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
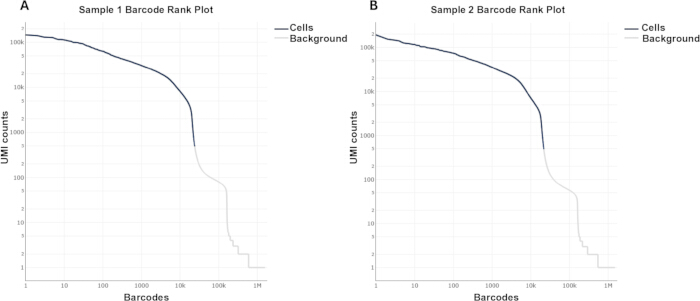
Figura 2: Gráfico de rango del código de barras ScRNA-seq de pulmones con tumores murinos. KrasLSL-G12D/+; Se recogieron pulmones de ratón TdTomato+/- 25 semanas después de la infección con lentivirus-Cre. (A,B) Gráfico de rango de código de barras en pulmón con un tumor basado en el análisis de Cellranger. Por favor, haga clic aquí para ver una versión ampliada de esta figura.
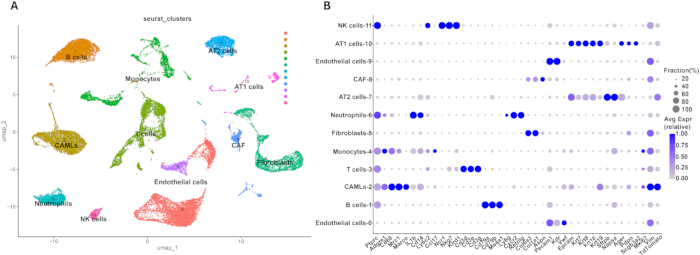
Figura 3: Análisis transcriptómico de células únicas de pulmones con tumores murinos. (A) Proyección UMAP de conjuntos de datos completos de pulmones con tumores. (B) Diagrama de puntos de genes clásicos usados para anotaciones de conglomerados. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
| Antes de la optimización | Después de la optimización | |||
| Repite 1 | Repetir 2 | Repite 1 | Repetir 2 | |
| Número total de celdas | 1.3E+06 | 6.4E+05 | 1.8E+06 | 6.4E+05 |
| Celdas vivas | 9.8E+05 | 5.0E+05 | 1.5E+06 | 5.7E+05 |
| Porcentaje de células vivas | 76% | 77% | 83% | 89% |
Tabla 1: Viabilidad de las células de suspensión unicelular en pulmón portador de tumores antes y después de la optimización. La concentración celular y el porcentaje de células vivas se determinan antes y después de usar este protocolo.
| Ejemplo 1 | Ejemplo 2 | |
| Número estimado de celdas | 23,488 | 21,436 |
| Lecturas medias por celda | 18,354 | 20,542 |
| Genes medianos por célula | 2,565 | 2,513 |
| Total de genes detectados | 30,893 | 30,556 |
| Recuento mediano de UMI por célula | 6,864 | 6,583 |
| Códigos de barras válidos | 95.90% | 95.80% |
| Saturación de secuenciación | 26.10% | 28.20% |
| Lecturas de fracciones en celdas | 94.10% | 95.40% |
Tabla 2: Análisis de control de calidad de ScRNA-seq por Cell Ranger. Las estimaciones clave de los datos de celda única obtenidas de Cell Ranger
Tabla suplementaria 1: Soluciones de solución de problemas. Se sugieren soluciones para abordar los problemas que puedan surgir durante el proceso digestivo. Por favor, haga clic aquí para descargar este archivo.
Tabla suplementaria 2: Componentes de cócteles enzimáticos antes y después de la optimización. Las concentraciones finales del cóctel enzimático se usan antes y después de la optimización. Por favor, haga clic aquí para descargar este archivo.
Discusión
Este protocolo proporciona un procedimiento detallado paso a paso para preparar suspensiones unicelulares de alta calidad a partir de tejido pulmonar murino. Se requieren varios pasos críticos para lograr resultados óptimos.
Antes de la digestión enzimática, debe realizarse una perfusión corporal total para eliminar la sangre de los pulmones. Esto garantiza que las células inmunitarias detectadas por SCRNA-seq se originen en el tejido pulmonar en lugar de la sangre circulante. Durante la perfusión, es esencial insertar la aguja en el ventrículo izquierdo para evitar que la perfusión entre en la circulación pulmonar y dañe las células pulmonares. Para preservar la viabilidad celular, todos los tampones, incluidos los lavados, resuspensión y soluciones de perfusión, deben ser preenfriados sobre hielo. Dada la heterogeneidad inherente del tejidopulmonar 24, las muestras deben mantenerse en un medio DMEM/F12 antes y durante la digestión, ya que este medio proporciona nutrientes esenciales que sostienen la viabilidad celular.
La alta viabilidad celular y los agrupamientos celulares bien definidos observados en este protocolo confirman que la combinación enzimática es tanto leve como eficaz. Se sabe que los iones de calcio y magnesio promueven la agrupación celular y aumentan la actividadenzimática 25,26. Por lo tanto, se utiliza PBS libre de Ca+/Mg+ para preparar la mayoría de los tampones y así minimizar la agrupación, mientras que el DMEM/F12 que contiene estos iones se utiliza como medio basal para el tampón digestivo y así mantener una eficiencia enzimática equilibrada.
Aunque estudios previos han descrito pulmones murinos disociativos o tejidos tumorales, a menudo presentan una variabilidad significativa o una descripción incompleta de la selección y concentración deproteasas 11,15,27. Por ejemplo, Han et al.11 usaron cócteles enzimáticos sin informar la concentración, lo que dificulta la replicación. Por el contrario, un método altamente especializado descrito por Chen et al.28 es eficaz para la disociación de células Alveolar Tipo II (AT2), pero implica un flujo de trabajo complejo, lo cual es poco práctico si es necesario recoger varios ratones al mismo tiempo.
Un desafío crítico en la investigación en oncología pulmonar es la heterogeneidad estructural del pulmón portador de tumores, que consiste tanto en células normales frágiles como en células tumorales malignas. Los protocolos estándar o los kits comerciales suelen estar diseñados específicamente para muestras de tejido normal o tumores. O bien provocan una digestión incompleta, que no libera células cancerosas del núcleo tumoral, o una digestión excesiva, lo que induce un estrés significativo y muerte celular en el tejido normal más sensible de las muestras pulmonares con tumores.
Este protocolo aborda esto ajustando finamente el cóctel enzimático (Colagenasa IV, Dispasa II y DNasa I) para lograr una disociación equilibrada. Esta optimización garantiza la liberación de células malignas mientras preserva la viabilidad de las células normales. Esto se apoya en el análisis de citometría de flujo, donde identificamos y resolvimos con éxito dos células epiteliales distintas. Las células epiteliales están bien separadas en células TdTomato+ o TdTomato-. Este nivel de resolución demuestra que este método es adecuado para estudiar todo el microambiente pulmonar portador de tumores sin sacrificar la integridad del tejido huésped. Al incluir todas las células vivas individuales en el análisis, este protocolo permite el estudio de todos los tipos celulares relevantes dentro del microambiente pulmonar portador de tumores, incluidas las células similares a macrófagos asociadas al cáncer (CAMLs) (Figura 3), que no se han informado ampliamente en estudiosprevios 15,16,17.
Tras la digestión, los análisis de scRNA-seq demostraron que este procedimiento aísla con éxito diversos tipos celulares. Las soluciones enzimáticas deben prepararse frescas el día del experimento. Todos los parámetros digestivos están optimizados para un solo pulmón murino entero. Cuando se utiliza solo un lóbulo o varios pulmones, se debe ajustar el tiempo de digestión para asegurar una alta viabilidad celular y una disociación completa del tejido. La contaminación por ARN ambiental y la formación de multipletes son dos factores principales que afectan a la calidad delscRNA-seq 29. Aunque a menudo se utilizan kits de eliminación de células muertas para mejorar la viabilidad, este protocolo produce consistentemente más del 80% de las células vivas tras la digestión, haciendo que este paso sea opcional. El gráfico de rango por código de barras confirmó una contaminación mínima por ARN ambiental incluso sin la extracción de células muertas.
El estudio actual valida esta metodología en el contexto de todo el pulmón murino portador de tumores. Esta digestión enzimática optimizada proporciona una plantilla para estudiar diversos otros tejidos portadores de tumores caracterizados por microambientes similares. Además, la alta viabilidad celular y la preservación de todos los tipos celulares logradas por este protocolo lo hacen adecuado para tecnologías avanzadas de secuenciación, como CITE-seq para el mapeo de proteínas superficiales y ATAC-seq para perfilado epigenético.
Aunque este protocolo produce suspensiones de célula única de alta calidad a bajo coste, el estrés celular inducido por el proceso puede seguir ocurriendo durante la digestión enzimática. Para minimizar los artefactos de expresión génica relacionados con el estrés, un solo operador no debe procesar más de cuatro muestras simultáneamente.
Divulgaciones
Los autores declaran que no tienen intereses en competencia.
Agradecimientos
Este trabajo ha sido apoyado por el Instituto Nacional de Salud, el Instituto Nacional de Ojos (NEI), EE. UU., subvenciones 5R01EY026202, R01EY035333; las concesiones del Instituto Nacional de Investigación Dental y Craneofacial (NIDCR) R01DE031044, 2R01DE014756, y las subvenciones del Instituto Nacional del Cáncer (NCI) R01CA271500 y 2R01CA211187.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| DMEM/F12 | Thermo Fisher | 11320033 | Cultivo celular |
| Colagenasa Tipo IV | Sigma Aldich | C5138 | Enzimas digestivas |
| Dispasa II | Sigma Aldich | D4693 | Enzimas digestivas |
| DNasa I | Roche | 11284931001 | Eliminar ADN |
| Colador Falcon 70 Cell | Halcón | 352350 | Eliminar tejido no digerido |
| Tijeras estérils | FST | 14088-10 | Tejidos cortados |
| Amortiguador de lisis de glóbulos rojos | Sigma Aldich | R7757 | Eliminar las células sanguíneas |
| FBS inactivado por calor | Phoenix Scientific | PS100 | Proteger las células |
| PBS libre de Ca+/Mg+ | Thermo Fisher | 10010023 | Enzimas disolutas/Células de lavado |
| Aguja 21G de seguridad multifly y nbsp; | Sarstedt | 3051524 | Perfusión corporal total |
| 50 mL jeringuillas | BD | 300866 | Perfusión corporal total |
| Plato de 6 cm | Corning | 430116 | Tejidos digestivos |
| Plato de 10 cm | Corning | 430167 | Tejidos digestivos |
| Anticuerpo de bloqueo Fc | BD | 553141; RRID:AB_394655 | Citometría de flujo |
| DAPI | BD | 564907; RRID:AB_2869624 | Citometría de flujo |
| CD326 | BD | 563478; RRID:AB_2738234 | Citometría de flujo |
| HIVmPGKCre VSVG | UI Viral Vectore Core | VVC-U de Iowa-7556 | Lentiviro |
| Citómetro de flujo ZE5 (Yeti) | Bio-Rad | Análisis de citometría de flujo | |
| Ratón KrasLSL-G12D/+ | Laboratorio Jackson | 008179; RRID:IMSR_JAX:008179 | |
| Ratón reportero de TdTomato | Laboratorio Jackson | 007909; RRID:IMSR_JAX:007909 |
Referencias
- Leiter, A., Veluswamy, R. R., Wisnivesky, J. P. The global burden of lung cancer: current status and future trends. Nat Rev Clin Oncol. 20 (9), 624-639 (2023).
- Schabath, M. B., Cote, M. L. Cancer progress and priorities: Lung cancer. Cancer Epidemiol Biomarkers Prev. 28 (10), 1563-1579 (2019).
- Sung, H., et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 71 (3), 209-249 (2021).
- Yu, H. A., et al. Poor response to erlotinib in patients with tumors containing baseline EGFR T790M mutations. Ann Oncol. 25 (2), 423-428 (2014).
- Cappuzzo, F., et al. MET increased gene copy number and primary resistance to gefitinib therapy in non-small-cell lung cancer. Ann Oncol. 20 (2), 298-304 (2009).
- Maman, S., Witz, I. P. A history of exploring cancer in context. Nat Rev Cancer. 18 (6), 359-376 (2018).
- Croci, D. O., et al. Dynamic cross-talk between tumor and immune cells in orchestrating the immunosuppressive network. Cancer Immunol Immunother. 56 (11), 1687-1700 (2007).
- Dunn, G. P., Old, L. J., Schreiber, R. D. The immunobiology of cancer immunosurveillance and immunoediting. Immunity. 21 (2), 137-148 (2004).
- Mittal, D., Gubin, M. M., Schreiber, R. D., Smyth, M. J. New insights into cancer immunoediting: Elimination, equilibrium and escape. Curr Opin Immunol. 27, 16-25 (2014).
- Papalexi, E., Satija, R. Single-cell RNA sequencing to explore immune cell heterogeneity. Nat Rev Immunol. 18 (1), 35-45 (2018).
- Han, G., et al. An atlas of epithelial cell states and plasticity in lung adenocarcinoma. Nature. 627 (8004), 656-663 (2024).
- van den Brink, S. C., et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 14 (10), 935-936 (2017).
- Denisenko, E., et al. Systematic assessment of tissue dissociation and storage biases in single-cell and single-nucleus RNA-seq workflows. Genome Biol. 21 (1), 130(2020).
- Zhao, W., et al. A cellular and spatial atlas of TP53-associated tissue remodeling defines a multicellular tumor ecosystem in lung adenocarcinoma. Nat Cancer. 6 (11), 1857-1879 (2025).
- Marjanovic, N. D., et al. Emergence of a high-plasticity cell state during lung cancer evolution. Cancer Cell. 38 (2), 229-246.e13 (2020).
- Xie, L., et al. PLVAP mediates regulation of the tumour microenvironment in early-stage lung adenocarcinoma. Clin Transl Med. 15 (12), e70532(2025).
- Fernandes, L. M., et al. A single-cell atlas of normal and KRASG12D-malformed lymphatic vessels. JCI Insight. 10 (5), e185181(2025).
- Pirrello, A., Killingsworth, M., Spring, K., Rasko, J. E. J., Yeo, D. Cancer-associated macrophage-like cells as a prognostic biomarker in solid tumors. J Liquid Biopsy. 6, 100275(2024).
- Rudnick, J. A., Debnath, J. Autophagy in host stromal fibroblasts supports tumor desmoplasia. Autophagy. 17 (12), 4497-4498 (2021).
- Nissen, N. I., Karsdal, M., Willumsen, N. Collagens and cancer-associated fibroblasts in reactive stroma. J Exp Clin Cancer Res. 38 (1), 115(2019).
- Wu, J., et al. Transcardiac perfusion of the mouse for brain tissue dissection and fixation. Bio Protoc. 11 (5), e3988(2021).
- Morton, J., Snider, T. A. Guidelines for collection and processing of lungs from aged mice for histological studies. Pathobiol Aging Age Relat Dis. 7 (1), 1313676(2017).
- Pariollaud, M., et al. Circadian disruption enhances HSF1 signaling and tumorigenesis in KRAS-driven lung cancer. Sci Adv. 8 (39), eabo1123(2022).
- Wu, F., et al. Single-cell profiling of tumor heterogeneity and microenvironment in advanced NSCLC. Nat Commun. 12 (1), 2540(2021).
- McKeehan, W. L., Ham, R. G. Calcium and magnesium ions regulate multiplication in normal and transformed cells. Nature. 275 (5682), 756-758 (1978).
- Seltzer, J. L., Welgus, H. G., Jeffrey, J. J., Eisen, A. Z. Role of Ca2⁺ in mammalian collagenase activity. Arch Biochem Biophys. 173 (1), 355-361 (1976).
- Shao, S., et al. Pharmacological expansion of type II alveolar epithelial cells promotes airway repair. Proc Natl Acad Sci U S A. 121 (16), e2400077121(2024).
- Chen, Q., Liu, Y. Isolation and culture of mouse alveolar type II cells. STAR Protoc. 2 (1), 100241(2021).
- Arceneaux, D., et al. A contamination-focused approach for optimizing single-cell RNA-seq experiments. iScience. 26 (7), 107242(2023).
Reimpresiones y permisos
