El estudio presenta un método para la investigación in vitro de infecciones bacterianas utilizando organoides intestinales derivados de células madre tisulares. El protocolo describe cómo cultivar y diferenciar organoides en dos dimensiones, infectarlos con Escherichia coli invasiva adherente y evaluar indicadores clave, incluyendo la ruptura de la barrera epitelial, la imagen de infecciones y la respuesta del ARN epitelial.
Artículo de método
Un cultivo de organoides bidimensional sobre una invasina o extracto de membrana basal para estudiar las interacciones huésped-bacteria
En este artículo
Resumen
Resumen
La tecnología organoide proporciona una plataforma experimental in vitro para estudiar la fisiología humana en salud y enfermedad. En comparación con otros sistemas in vitro , como las líneas celulares o explantas derivadas del cáncer, los organoides derivados de células madre tisulares (TSC) ofrecen ventajas clave: pueden expandirse indefinidamente manteniendo la estabilidad genómica y son susceptibles de modificación con CRISPR. Dado que estos organoides se generan a partir de TSCs normales, contienen los tipos celulares de su tejido de origen. Esto hace que los organoides sean especialmente valiosos para investigar las interacciones entre bacterias y células humanas diferenciadas y no tumorales. Los organoides intestinales se cultivan como monocapas polarizadas bidimensionales sobre insertos de cultivo celular recubiertos con extracto de membrana basal (BME) o invasina, una alternativa libre de animales y rentable, y pueden diferenciarse en los principales tipos celulares epiteliales intestinales para la infección por E. coli invasivo de adherentes patógenos. Las lecturas clave de infecciones incluyen el seguimiento de la expresión génica epitelial mediante PCR cuantitativa de transcripción inversa (RT-qPCR), la visualización de las interacciones bacteria-epitelio mediante microscopía confocal y la cuantificación de la ruptura de la barrera epitelial. El protocolo puede adaptarse fácilmente para estudiar otros órganos y especies bacterianas, proporcionando una plataforma versátil para investigar las interacciones huésped-microbio en organoides.
Introducción
El epitelio intestinal constituye la primera línea de defensa contra bacterias patógenas presentes en la luz intestinal. Los modelos in vitro del epitelio intestinal se han utilizado ampliamente para estudiar cómo interactúan las bacterias con las células epiteliales, cómo responden estas células a la infección y cómo las bacterias atraviesan la barreraepitelial 1. Estos modelos son especialmente valiosos para investigar patógenos específicos de humanos en un entorno controlado y reduccionista. Históricamente, la biología de la infección in vitro se ha basado en líneas celulares derivadas de tumores, por ejemplo, células Caco-2, o en explantas derivadas del paciente mantenidas ex vivo 2,3. Más recientemente, los organoides intestinales generados a partir de células madre de tejido humano han surgido como una herramienta poderosa que combina las ventajas de ambos enfoques: al igual que las líneas celulares, los organoides pueden ser transitados, expandidos, criopreservados, descongelados y manipulados genéticamente; y, al igual que los explantes, derivan de células madre no tumorales capaces de diferenciarse en todos los principales tipos celularesepiteliales 4,5.
Cuando se incrustan en una matriz como el Matrigel o el Extracto de Membrana Basal (BME), los organoides intestinales humanos suelen autoorganizarse en estructuras esféricas y polarizadas, con una superficie apical orientada hacia el interior y una superficie basal hacia el exterior. Dado que la mayoría de los patógenos intestinales acceden a las células epiteliales desde el lado apical, se han desarrollado varias estrategias para exponer esta superficie a bacterias enorganoides 4. Un enfoque consiste en microinyectar bacterias directamente en el lumenorganoide 6. Otra consiste en invertir la polaridad de los organoides liberándolos de la matriz extracelular, produciendo organoides "apical-out" en suspensión7. Una tercera estrategia consiste en disociar organoides en células individuales y sembrarlas en insertos de cultivo celular para formar monocapas polarizadas bidimensionales (láminas organoides 2D) con el lado apical orientado hacia el compartimentosuperior 8. Los dos primeros métodos tienen limitaciones importantes: la microinyección es laboriosa y tardada, limitando el rendimiento, y los organoides apical-out solo sobreviven unos días sin soporte matricial y no pueden diferenciarse1. En cambio, las láminas organoides 2D permiten experimentación de alto rendimiento (las bacterias pueden añadirse simplemente al compartimento superior) y pueden mantenerse durante varias semanas mientras se diferencian en los principales tipos de células epitelialesintestinales 9.
A diferencia de las líneas celulares inmortalizadas que se adhieren fácilmente a superficies plásticas, las células derivadas de organoides requieren un recubrimiento de placas para una adhesión eficiente. El recubrimiento puede realizarse usando BME10 diluido, o alternativamente usando invasina, una proteína bacteriana que se une a las integrinas en célulasorganoides 11. La invasina es fácil de producir en laboratorio, es sustancialmente más rentable que la BME o el Matrigel, y completamente libre de animales.
Este protocolo describe el establecimiento y diferenciación de organoides intestinales como monocapas polarizadas bidimensionales en insertos de cultivo celular recubiertos con invasina o extracto de membrana basal (BME). Las láminas organoides diferenciadas se infectan posteriormente con Escherichia coli adherente-invasiva (AIEC), una cepa patógena asociada a la enfermedad inflamatoria intestinal12. Se describen múltiples indicadores de infección aguas abajo para evaluar las respuestas epiteliales y la translocación bacteriana. Dado que la AIEC invade células epiteliales y rompe el epitelio intestinal —un mecanismo que se cree contribuye a su patogenicidad—, la ruptura epitelial se cuantifica midiendo bacterias que llegan a la cámara basolateral del inserto de cultivo celular tras confirmar la integridad de la barrera mediante la medición de resistencia eléctrica transepitelial/transendotelial (TEER) 13. También se proporcionan procedimientos para fijar e imaginar monocapas infectadas para visualizar la AIEC intracelular y extracelular, así como para la extracción de ARN y evaluar las respuestas transcripcionales epiteliales a la infección. El protocolo completo puede realizarse en menos de dos semanas y solo requiere equipos de laboratorio comúnmente disponibles, incluyendo un gabinete BSL-2, un microscopio confocal y un instrumento de PCR cuantitativo.
En conjunto, este protocolo proporciona un método rentable, versátil y accesible para estudiar la infección bacteriana del epitelio intestinal humano diferenciado in vitro. Puede adaptarse fácilmente a otros sistemas organoides y especies microbianas, lo que lo convierte en un modelo útil para estudios de biología de infecciones in vitro .
Protocolo
Los organoides intestinales humanos se generaron a partir de material de desecho de pacientes sometidos a cirugía de cáncer colorrectal en el Centro Médico Universitario de Utrecht (UMCU). Los pacientes proporcionaron su consentimiento informado para la generación de sus organoides, de acuerdo con el protocolo UPORT Cancer Biobank 21-042, aprobado por el comité de ética local para biobanca. La Figura 1A ilustra las 8 secciones del protocolo. Los detalles sobre reactivos y equipos se enumeran en la Tabla de Materiales.
1. Recubrimiento del inserto de cultivo celular
- Recubrimiento con invasina
- Realiza todos los procedimientos dentro de una campana de cultivo de tejidos en condiciones estériles.
- Preparar una solución de 5 μg/mL de invasina en solución salina estéril tamponada con fosfato (PBS).
- Añadir 100 μL de esta solución al compartimento superior de cada inserto de cultivo celular de poliéster de 3 μm colocado en una placa de 24 pozos.
- Asegúrate de que la membrana esté completamente cubierta.
- Incubar durante la noche a 4 °C.
NOTA: Evita generar burbujas durante la dispensación, ya que las burbujas impiden un recubrimiento uniforme.
- Recubrimiento con extracto de membrana basal (alternativa)
- Extracto de membrana del sótano de descongelación sobre hielo.
- Prepara una solución al 10% en DMEM bien frío.
NOTA: Mantén la solución fría para evitar la polimerización prematura. - Añadir 100 μL de la solución diluida al compartimento superior de cada inserto de cultivo celular de poro de 3 μm.
- Asegura una cobertura completa de la superficie de la membrana.
- Incuba durante 1 hora a temperatura ambiente.
2. Siembra de células organoides
- Preparación de organoides
- Retirar el medio de cultivo de las placas organoides mantenidas en condiciones de expansión (3-5 días después de la escisión).
- Resuspende los organoides en 1 mL de DMEM14 helado.
- Transfiere la suspensión a un tubo cónico de 15 mL que contiene 4 mL de DMEM helado.
NOTA: Utiliza aproximadamente 1 pozo completo de una placa de 12 pozos para sembrar 4 insertos de cultivo celular.
- Organoides de pelleting
- Centrifugar durante 5 minutos a 500 × g a 4 °C.
- Elimina completamente el sobrenadante.
- Organoides disociadores
- Resuspende el pellet en 3 mL de sustituto de tripsina recombinante.
- Haz una pipeta arriba y abajo usando una pipeta P1000 para alterar mecánicamente los organoides.
- Incubar a 37 °C durante 15-20 minutos hasta obtener células individuales o pequeños grupos (3-4 células).
NOTA: No excedas los 20 minutos de incubación. Pipeta cada 5 minutos para facilitar la disociación. Inserta una punta P10 dentro de una punta P1000 si se requiere una fuerza mecánica adicional.
- Lavado de celdas
- Añade 5 mL de DMEM bien frío.
- Centrifugar durante 5 minutos a 500 × g a 4 °C.
- Quita el sobrenadante.
- Preparar la suspensión de celdas
- Resuspender las células en medio de expansión (100 μL por inserto de cultivo celular; véase la Tabla 1 para la composición del medio de expansión).
NOTA: No incluyas antibióticos. Incluye inhibidor de la rho quinasa para prevenir anoikis. - Cuenta las células usando un contador celular o un hemocitómetro.
- Ajusta aproximadamente 2 × 10⁶ celdas/mL.
- Resuspender las células en medio de expansión (100 μL por inserto de cultivo celular; véase la Tabla 1 para la composición del medio de expansión).
- Siembra de los insertos de cultivo celular
- Retira la solución de recubrimiento de los insertos.
- Añadir 100 μL de suspensión de celdas (2 × 10⁵ celdas) al compartimento superior.
- Añadir 500 μL de medio de expansión al compartimento inferior.
3. Cultivo de inserción y diferenciación de cultivo celular
- Incubar a 37 °C con un 5% deCO-2 hasta alcanzar la confluencia (aproximadamente 3 días).
NOTA: Refresca el medio en ambos compartimentos cada 4-5 días si es necesario. - Una vez en confluencia, lava ambos compartimentos con DMEM precalentado.
- Añadir medio de diferenciación de 500 μL (Tabla 2) al compartimento inferior.
- Añadir 100 μL de DMEM/F12 avanzado complementado con HEPES y Glutamax (AdvDMEM++) (Tabla 3) al compartimento superior.
- Incubar durante 5 días a 37 °C con 5% deCO2.
- Cambia el soporte en ambos compartimentos cada 2 días.
4. Medición de la resistencia eléctrica transepitelial/transendotelial (TEER)
- Esteriliza electrodos TEER al 70% de etanol durante 15 minutos.
- Enjuaga electrodos en PBS estéril.
- Inserta el electrodo corto en el compartimento superior y el electrodo largo en el compartimento inferior.
NOTA: No toques la monocapa con la punta del electrodo. - Registrar valores de resistencia.
- Mide la resistencia en blanco usando un inserto sin celda que contenga PBS (100 μL superior, 500 μL menos).
- Calcular TEER: TEER = (inserto de cultivo R_cell − R_blank) × superficie (cm²)
NOTA: Para insertos de 24 pozos, área superficial = 0,33 cm².
5. Infección con AIEC
- Preparar el cultivo bacteriano
- Inocular AIEC fluorescenteen medio 15 de 3 mL LB.
- Incubar durante la noche a 37 °C con agitación.
PRECAUCIÓN: Realiza todos los procedimientos bacterianos en una capucha BSL-2.
- Prepara el inóculo
- Centrifugar 500 μL de cultivo durante 5 minutos a 1500 × g.
- Resuspende en 1 mL AdvDMEM++.
- Mide la densidad óptica (OD).
- Diluye a aproximadamente 1 × 10⁸ CFU/mL en AdvDMEM++.
NOTA: OD = 1 corresponde aproximadamente a 1 × 10⁹ UFC/mL.
- Infectando las monocapas
- Cambia el soporte en ambos compartimentos.
- Añadir medio de diferenciación de 500 μL al compartimento inferior.
- Añadir 100 μL de suspensión bacteriana en el compartimento superior para la condición infectada.
- Añadir 100 μL de AdvDMEM++ al compartimento superior para la condición no infectada.
- Incubar a 37 °C, 5% de CO₂.
6. Evaluación de la ruptura del epitelio
- A las 2,5 horas tras la infección, recoge 100 μL del compartimento inferior.
- Diluye en PBS y empieza en LB agar.
- Añade 100 μL de medio de diferenciación fresco al compartimento inferior.
- Incubar las placas durante la noche a 37 °C.
- Muestreo repetido a las 5 horas después de la infección.
- Cuenta la Unidad Formadora de Colonias (CFU) al día siguiente.
- Calcular UFC por inserto de cultivo celular: UFC/inserto de cultivo celular = colonias × factor de dilución de 5 ×
7. Infección por imagen
- A las 5 horas después de la infección, retira el medio y fija con paraformaldehído al 4%.
PRECAUCIÓN: El paraformaldehído es tóxico y volátil. Agarra el mango dentro de una campana extractora mientras llevas guantes. - Arregla durante 30 minutos.
- Lava tres veces con PBS.
- Extirpe el inserto de membrana y coloque las células orientadas hacia arriba en una placa de pozo.
- Tinte con faloidina fluorescente durante 1-2 horas.
- Lava tres veces con PBS.
- Tinte núcleos con DAPI durante 10 minutos.
- Lava tres veces con PBS.
- Monte sobre una corredera de cristal con medio de montaje y aplica un protector de cubierta.
- Sella con esmalte de uñas.
- Adquiere imágenes confocales de DAPI, actina y canales bacterianos.
- Adquiere un pila z que abarca superficies basales a apicales con intervalos de 1 μm.
- Imágenes abiertas en Fiyi.
- Seleccionar imagen → proyecto Z → intensidad media.
- Selecciona pilas de imágenes → → vistas ortogonales para visualizar secciones transversales.
8. Análisis de la respuesta epitelial
- A las 5 horas después de la infección, retira el medio.
- Añade un buffer de lisis de 350 μL al compartimento superior.
- Pipetear para lisar células y transfiere a un tubo libre de RNasa sobre hielo.
- Realiza la extracción de ARN según las instrucciones del kit.
- Mide la concentración de ARN y normaliza las muestras.
- Realiza transcripción inversa.
- Realizar PCR cuantitativa siguiendo las instrucciones del fabricante (las secuencias cebadoras para TNFα y el gen de referencia β-actina se proporcionan en la Tabla 4).
Resultados
Tras alcanzar la confluencia, las células intestinales en el inserto de cultivo celular mostraron un patrón en forma de mosaico (Figura 1B) sin huecos visibles en la monocapa. Tras la diferenciación, se evaluó la estanqueidad epitelial midiendo la resistencia eléctrica transepitelial (TEER) (Figura 1C). Los valores TEER superiores a 500 Ω·cm² eran consistentes con la formación de una monocapa epitelial compacta¹⁶.
La cantidad de AIEC detectada en el compartimento basolateral aumentó con el tiempo, reflejando la ruptura bacteriana de la barrera epitelial (Figura 2A,B). La ausencia de AIEC en el compartimento inferior indicaría un fracaso de la translocación bacteriana.
El flujo de trabajo para visualizar la infección se resume en la Figura 3A. La imagen confocal demostró la formación de una monocapa polarizada, con núcleos localizados en la base y un enriquecimiento apical de la red de actina (Figura 3B). Un aumento mayor reveló tanto la presencia intracelular de la CEI como de bacterias extracelulares adheridas a la membrana apical (Figura 3C).
El análisis RT-qPCR mostró una regulación alcista de la expresión de TNFα en respuesta a la infección por AIEC (Figura 4A,B), confirmando la activación de una respuesta inflamatoria epitelial.
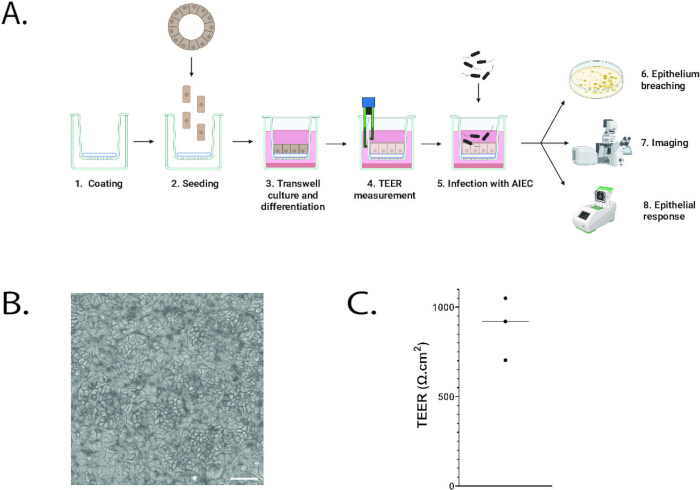
Figura 1: Visión general del protocolo. (A) Esquemas del protocolo. (B) Imagen de campo brillante de células organoides intestinales cultivadas y diferenciadas en un inserto de cultivo celular recubierto de invasión. Barra de escamas: 50 μm. (C) Resistencia eléctrica transepitelial/transendotelial (TEER) de organoides intestinales cultivados y diferenciados en inserciones de cultivo celular recubiertas de invasina. Cada punto muestra un experimento independiente. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
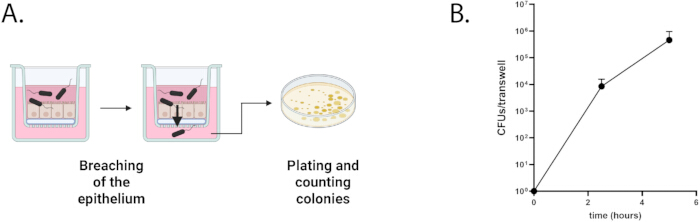
Figura 2: Evaluación de la ruptura epitelio (A) Esquemas del protocolo. (B) Cuantificación de las Unidades Formadoras de Colonias (CFU) de AIEC a lo largo del tiempo en el compartimento inferior del inserto de cultivo celular. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
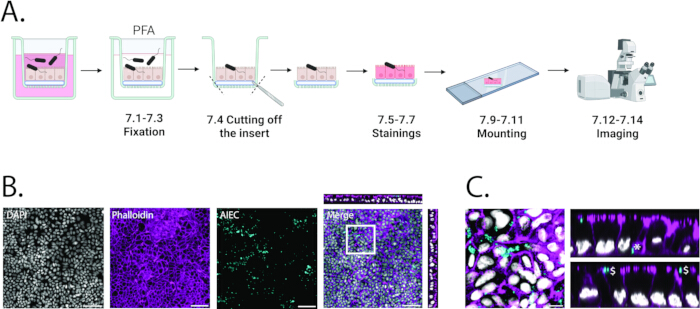
Figura 3: Infección por imagen. (A) Esquemas del protocolo. (B) Imagen confocal de organoides intestinales infectados con AIEC fluorescente durante 5 horas. Gris: DAPI. Magenta: faloidina. Cyan: AIEC. Barra de escala: 50 μm. Las vistas ortogonales de la imagen fusionada se muestran en la parte superior y a la derecha. (C) Alta ampliación del cuadrado blanco en B. Gris: DAPI. Magenta: faloidina. Cyan: AIEC. Barra de escala: 10 μm. Las vistas ortogonales se muestran a la derecha. Se destacan los AIEC intracelulares (*) y los AIEC extracelulares unidos a la membrana apical de las células epiteliales ($). Por favor, haz clic aquí para ver una versión ampliada de esta figura.
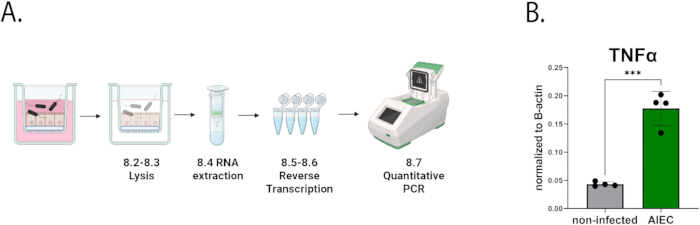
Figura 4: Análisis de la respuesta epitelial. (A) Esquemas del protocolo. (B) Expresión de TNFα por organoides intestinales tras 5 horas de infección con AIEC (verde) frente a control no infectado (gris). La expresión de TNFα se normalizó a la expresión de B-actina usando la fórmula 2-(Cq(TNFα)-Cq(β-actina)). n=4 se replica. El análisis estadístico se realizó utilizando un test t de Student no emparejado. P < 0,001. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
| Componente | Concentración |
| DMEM avanzado | 1X final |
| HEPES | 1% frente a favor |
| Glutamax | 1% frente a favor |
| Sustituto Wnt | 0,5 nM |
| R-spo1 UPE | 2% v/v |
| Noggin UPE | 1% frente a favor |
| B27 sin vitamina A | 2% v/v |
| N-acetil cisteína | 1,25 mM |
| Nicotinamida | 10 μM |
| hEGF | 50 ng/mL |
| A83-01 (inhibidor de TGF-β) | 0,5 μM |
| SB202190 (inhibidor de p38) | 3 μM |
| Prostaglandina E2 | 1 μM |
| Inhibidor de la rho quinasa | 10 μM |
Tabla 1: Medio de expansión para organoides intestinales humanos. Composición del medio de expansión utilizado para el mantenimiento y proliferación de organoides intestinales humanos.
| Componente | Concentración |
| DMEM avanzado | 1X final |
| HEPES | 1% frente a favor |
| Glutamax | 1% frente a favor |
| R-spo1 UPE | 2% v/v |
| Noggin UPE | 1% frente a favor |
| B27 sin vitamina A | 2% v/v |
| NAC | 1,25 mM |
| hEGF | 50 ng/mL |
Tabla 2: Medio de diferenciación para organoides intestinales humanos. Composición del medio de diferenciación utilizado para promover la maduración epitelial de las monocapas organoides intestinales humanas.
| Componente | Concentración |
| DMEM avanzado | 1X final |
| HEPES | 1% frente a favor |
| Glutamax | 1% frente a favor |
Tabla 3: ADV DMEM++ para infección. Composición del medio avanzado DMEM/F12 suplementado con HEPES y Glutamax (Adv DMEM++) utilizado durante los ensayos de infección bacteriana.
| Nombre | Secuencia |
| TNFα F | CTCTTCTGCCTGCTGCACTTTG |
| TNFα R | ATGGGCTACAGGCTTGTCACTC |
| β-actina F | TGACGTTGACATCCGTAAAG |
| β-actina R | GAGGAGCAATGATCTCTCT |
Tabla 4: Cebadores para qPCR de TNFα. Muestra las secuencias cebadoras utilizadas para el análisis cuantitativo por PCR de TNFα usando β-actina como gen de referencia.
Discusión
Este estudio estableció un protocolo para investigar la infección bacteriana de células epiteliales intestinales humanas utilizando organoides derivados de TSC cultivados en insertos de cultivo celular. Los insertos con poros de 3 μm permitían una fijación celular eficiente y una translocación bacteriana, mientras que los poros de 0,4 μm no permiten el paso de AIEC, consistente con el tamaño aproximado de 1 μm de E. coli. No se observó translocación de células organoides a través de poros de 3 μm, probablemente debido a su fenotipo epitelial y no invasivo.
Varias variables experimentales fueron críticas para la reproducibilidad, incluyendo la fijación celular eficiente, la densidad adecuada de siembra y la confluencia completa antes de la infección. Las células epiteliales derivadas de organoides no se adhieren al plástico sin recubrimiento, por lo que el recubrimiento es esencial. La BME proporcionaba una eficiencia de acoplamiento consistentemente alta. El recubrimiento invasin produjo resultados comparables y representa una alternativa rentable11, aunque debe producirse internamente. También se ha propuesto el recubrimiento de colágeno comoalternativa 17.
Las condiciones de crecimiento bacteriano influyen fuertemente en la eficiencia de la infección. Las cepas de E. coli crecen bien en DMEM; sin embargo, los antibióticos residuales pueden inhibir la proliferación. En condiciones óptimas, los cultivos infectados suelen mostrar una turbidez aumentada en comparación con los controles, y el crecimiento bacteriano puede confirmarse mediante el contenido del compartimento apical.
La estrategia de imagen permitió la visualización tanto de bacterias intracelulares como extracelulares al dirigirse a AIEC que expresa un fluoróforo bajo un promotor constitutivo (por ejemplo, usando el plásmido pMB1-spect-PthrC-eGFP). Métodos alternativos permiten la detección selectiva de bacterias intracelulares, incluyendo la tinción diferencial de inmunofluorescencia18 o reporteros expresados en etapas definidas de invasión19. Los ensayos de protección con gentamicina proporcionan un enfoque cuantitativo adicional20.
Este modelo es intencionadamente reduccionista y se centra en las interacciones directas entre bacterias y el epitelio intestinal. Permite investigar la infección en una monocapa epitelial diferenciada sin necesidad de tipos celulares in vivo adicionales. El medio de diferenciación indujo predominantemente la diferenciación de enterocitos y célulascaliciformes 21, pero puede modificarse para alterar la composición epitelial22,23. La complejidad del sistema puede incrementarse mediante el co-cultivo de células inmunitarias o estromales en el compartimentobasal 24.
El sistema no reproduce la arquitectura tridimensional de la mucosa intestinal. Las plataformas organ-on-chip superan algunas limitacionesestructurales 25 , pero requieren mayor complejidad técnica y recursos. Además, el modelo es más adecuado para infecciones agudas, ya que el sobrecrecimiento bacteriano limita los experimentos a aproximadamente 8 horas. Se requieren sistemas más complejos, como plataformas microfluídicas que permiten el intercambio continuo de medios, para estudiar infecciones crónicas invitro 26.
Se han aplicado sistemas de infección organoides similares basados en cultivos celulares por inserción en múltiples tejidos y patógenos, incluyendo organoides estomacales infectados con Helicobacter pylori 27,28, organoides intestinales infectados con Shigella29, organoides de las vías respiratorias infectados con Pseudomonas aeruginosa10 y organoides uroteliales infectados con Enterococcus faecalis30. Por tanto, este protocolo proporciona un marco versátil para investigar las interacciones epiteliales-bacterianas entre sistemas orgánicos, siempre que se tengan en cuenta los requisitos de crecimiento específicos de cada patógeno.
La tecnología organoide proporciona modelos humanos fisiológicamente relevantes para investigar las interacciones huésped-patógeno en células epiteliales notransformadas 4,5. Dada la creciente carga de infecciones resistentes a los antibióticos y su asociación con enfermedades inflamatorias crónicas y cáncer, estos sistemas in vitro representan herramientas valiosas para la investigación mecanicista y traslacional.
Divulgaciones
H.C. es inventor de varias patentes relacionadas con la tecnología organoide. La divulgación completa de H.C. se da en https://www.uu.nl/staff/JCClevers/.
Agradecimientos
Los autores agradecen al Portal de Utrecht para la Tecnología Organoide (UPORT), en particular a Anneta Brousali, Jorieke Salij y Arnold Binda, así como a los pacientes y cirujanos del Centro Médico Universitario de Utrecht por proporcionar tejidos de colon. Los autores también agradecen a Nicolas Barnich por compartir la cepa AIEC LF82. Este trabajo fue apoyado por una subvención CRUK OPTIMISTIC (C10674/A27140). TG fue financiado por el programa de investigación e innovación Horizonte 2020 de la Unión Europea bajo el acuerdo de subvención Marie Sklodowska-Curie 101107988. Los esquemas se creaban usando BioRender (https://www.biorender.com/).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| A83-01 (inhibidor de TGF y beta) | Tocris | 2939 | |
| Escherichia coli LF82 invasiva adherente | generoso regalo de Nicolas Barnich | ||
| DMEM/F12 avanzado | Invitrogen | 12634-010 | |
| B27 sin vitamina A | Invitrogen | 12587010 | |
| Kit de ADNcDNA | Biosistemas Aplicados | 4387406 | El manual está disponible aquí: https://documents.thermofisher.com/TFS-Assets/LSG/manuals/MAN 0017977_highcap_cDNA_RT_UG.pdf |
| Contador de celdas | DeNovix | H2796 | |
| Contador de celdas | Leica | Stellaris | |
| Coberturas 24 mm x 50 mm | Menzel-Glä Zer. | BB024050S1 | |
| Extracto de membrana basal de Cultrex (BME) | R& Sistemas D, Bio-Techne | 3533-001-02 | |
| DAPI | Sigma-Aldrich | 10236276001 | |
| Bisturí desechable estéril N° 10 | Swann Morton | 3033838 | |
| DMEM | Gibco | 11965092 | |
| Fiyi | Fiyi | Fiyi es de acceso abierto y puede descargarse aquí: https://imagej.net/software/fiji/downloads | |
| Glutamax | Gibco | 35050-061 | |
| hEGF | Peprotech | AF-100-15 | |
| HEPES | Gibco | 15630-080 | |
| Invasina | hecha a medida según Wijnakker et al. PNAS 2024 | ||
| LB | Thermofisher | CM0996 | |
| LB Agar | Thermofisher | CM1116 | |
| Cámara de Malassez | KOVA | 87144E | |
| Portaobjetos de microscopio | Skycraft | 18901 | |
| Voltohmómetro de células de Milli (medición TEER) | Merck | MERS00002 | |
| Medio de montaje | Laboratorios Vectors | Vectashield H-1000-10 | |
| N-Acetil cisteína | Sigma-Aldrich | A9165 | |
| Nicotinamida | Sigma-Aldrich | N0636 | |
| Noggin UPE | Terapias IPA | N002 | |
| Solución de paraformaldehído 4% | Sigma-Aldrich | 1.00496 | |
| Faloidina 647 | Sigma-Aldrich | 65906-10NMOL | |
| plásmido pMB1-spect-PthrC-eGFP | Addgene | 107408 | |
| Prostaglandina E2 | Tocris | 2296 | |
| Máquina qPCR | Biorad | C1000-Touch | |
| Inhibidor de la rho quinasa | AbMole | M1817 | |
| Kit de extracción de ARN | Qiagen | 74534 | El manual está disponible aquí: https://www.qiagen.com/us/resources/resourcedetail?id=bf60203 F-291D-48AE-8206-86B0696B28C0& lang=en |
| R-spo3 UPE | Terapias IPA | R001 | |
| SB202190 (inhibidor de p38) | Sigma-Aldrich | S7076 | |
| Spectinomicina | Sigma-Aldrich | S9007 | |
| Placa de suspensión para el cultivo de organoides | Greiner | 665102 | |
| SYBR verde | Biorad | 170-8887 | El manual está disponible aquí: https://www.bio-rad.com/webroot/web/pdf/lsr/literature/4106212.pdf |
| Termociclador | Biorad | T100 | |
| Inserto de cultivo celular | Transwells 24w 3 y micro; m pores, Greiner | 662631 | |
| Triton X-100 | Sigma-Aldrich | T8787 | |
| Triple | Gibco, Thermo Fisher Scientific | 12605-010 | |
| Sustituto Wnt | U-Protein Express | Orden personalizado | https://www.life-sciences-europe.com/organisation/protein-express-immunoprecise-group-utrecht-netherlands-west-europe-2001-30404.html |
Referencias
- McCoy, R., et al. In vitro Models for Investigating Intestinal Host-Pathogen Interactions. Adv Sci. 11 (8), 2306727(2023).
- Sambuy, Y., De Angelis, I., Ranaldi, G., Scarino, M. L., Stammati, A., Zucco, F. The Caco-2 cell line as a model of the intestinal barrier: influence of cell and culture-related factors on Caco-2 cell functional characteristics. Cell Biol Toxicol. 21 (1), 1-26 (2005).
- Gustafsson, J. K., Ermund, A., Johansson, M. E. V., Schütte, A., Hansson, G. C., Sjövall, H. An ex vivo method for studying mucus formation, properties, and thickness in human colonic biopsies and mouse small and large intestinal explants. Am J Physiol Gastrointest Liver Physiol. 302 (4), G430-G438 (2012).
- Puschhof, J., Pleguezuelos-Manzano, C., Clevers, H. Organoids and organs-on-chips: Insights into human gut-microbe interactions. Cell Host Microbe. 29 (6), 867-878 (2021).
- Clevers, H. Modeling Development and Disease with Organoids. Cell. 165 (7), 1586-1597 (2016).
- Kim, M., Fèvre, C., Lavina, M., Disson, O., Lecuit, M. Protocol for live imaging of bacteria-cell interactions in genetically modified mouse small intestinal organoids. STAR Protoc. 5 (1), 102773(2024).
- Co, J. Y., Margalef-Català, M., Monack, D. M., Amieva, M. R. Controlling the polarity of human gastrointestinal organoids to investigate epithelial biology and infectious diseases. Nat Protoc. 16 (11), 5171-5192 (2021).
- Moon, C., VanDussen, K. L., Miyoshi, H., Stappenbeck, T. S. Development of a primary mouse intestinal epithelial cell monolayer culture system to evaluate factors that modulate IgA transcytosis. Mucosal Immunol. 7 (4), 818-828 (2014).
- VanDussen, K. L., et al. Development of an enhanced human gastrointestinal epithelial culture system to facilitate patient-based assays. Gut. 64 (6), 911-920 (2015).
- Pleguezuelos-Manzano, C., et al. Dual RNA sequencing of a co-culture model of Pseudomonas aeruginosa and human 2D upper airway organoids. Sci Rep. 15 (1), 2222(2025).
- Wijnakker, J. J. A. P. M., et al. Integrin-activating Yersinia protein Invasin sustains long-term expansion of primary epithelial cells as 2D organoid sheets. Proc Natl Acad Sci U S A. 122 (1), e2420595121(2025).
- Darfeuille-Michaud, A., et al. Presence of adherent Escherichia coli strains in ileal mucosa of patients with Crohn's disease. Gastroenterology. 115 (6), 1405-1413 (1998).
- Darfeuille-Michaud, A., et al. High prevalence of adherent-invasive Escherichia coli associated with ileal mucosa in Crohn's disease. Gastroenterology. 127 (2), 412-421 (2004).
- Pleguezuelos-Manzano, C., Puschhof, J., van den Brink, S., Geurts, V., Beumer, J., Clevers, H. Establishment and culture of human intestinal organoids derived from adult stem cells. Curr Protoc Immunol. 130 (1), e106(2020).
- Anilionyte, O., Liang, H., Ma, X., Yang, L., Zhou, K. Short, auto-inducible promoters for well-controlled protein expression in Escherichia coli. Appl Microbiol Biotechnol. 102 (16), 7007-7015 (2018).
- Chen, S., Einspanier, R., Schoen, J. Transepithelial electrical resistance (TEER): a functional parameter to monitor the quality of oviduct epithelial cells cultured on filter supports. Histochem Cell Biol. 144 (5), 509-515 (2015).
- In, J. G., Foulke-Abel, J., Clarke, E., Kovbasnjuk, O. Human colonoid monolayers to study interactions between pathogens, commensals, and host intestinal epithelium. J Vis Exp. (146), e59357(2019).
- Quereda, J. J., et al. A dual microscopy-based assay to assess Listeria monocytogenes cellular entry and vacuolar escape. Appl Environ Microbiol. 82 (1), 211-217 (2016).
- Schulte, M., Grotheer, L., Hensel, M. Bright individuals: Applications of fluorescent protein-based reporter systems in single-cell cellular microbiology. Mol Microbiol. 121 (3), 605-617 (2024).
- Sharma, A., Puhar, A. Gentamicin protection assay to determine the number of intracellular bacteria during infection of human TC7 intestinal epithelial cells by Shigella flexneri. Bio-protocol. 9 (13), e3292(2019).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
- Fujii, M., et al. Human intestinal organoids maintain self-renewal capacity and cellular diversity in niche-inspired culture conditions. Cell Stem Cell. 23 (6), 787-793 (2018).
- He, G. -W., et al. Optimized human intestinal organoid model reveals interleukin-22-dependency of paneth cell formation. Cell Stem Cell. 29 (9), 1333-1345 (2022).
- Ding, L., et al. Toll-like receptor 9 pathway mediates Schlafen⁺-MDSC polarization during Helicobacter-induced gastric metaplasias. Gastroenterology. 163 (2), 411-425 (2022).
- Alonso-Roman, R., et al. Organ-on-chip models for infectious disease research. Nature Microbiol. 9 (4), 891-904 (2024).
- Jalili-Firoozinezhad, S., et al. A complex human gut microbiome cultured in an anaerobic intestine-on-a-chip. Nature Biomed Eng. 3 (7), 520-531 (2019).
- Vllahu, M., et al. Inflammation promotes stomach epithelial defense by stimulating the secretion of antimicrobial peptides in the mucus. Gut Microbes. 16 (1), 2390680(2024).
- Aguilar, C., et al. et al.Helicobacter pylori shows tropism to gastric differentiated pit cells dependent on urea chemotaxis. Nature Commun. 13 (1), 1-14 (2022).
- Llanos-Chea, A., et al. Bacteriophage therapy testing against Shigella flexneri in a novel human intestinal organoid-derived infection model. J Ped Gastroenterol Nutr. 68 (4), 509-516 (2019).
- Horsley, H., Dharmasena, D., Malone-Lee, J., Rohn, J. L. A urine-dependent human urothelial organoid offers a potential alternative to rodent models of infection. Sci Rep. 8 (1), 1238(2018).
Reimpresiones y permisos
