SNRNP70 muestra potencial como marcador diagnóstico de la osteoartritis (OA), con una expresión consistentemente menor en los tejidos OA que en los controles. También puede ejercer efectos antiinflamatorios, lo que sugiere una vía terapéutica. Futuros estudios mecanicistas podrían ayudar a avanzar en la gestión de la AO.
Artículo de investigación
SNRNP70 está asociada con firmas focales relacionadas con adherencias e inflamación de condrocitos en la osteoartritis
* These authors contributed equally
En este artículo
Resumen
Resumen
La osteoartritis (OA) es una enfermedad degenerativa articular caracterizada por la degradación progresiva del cartílago y la inflamación sinovial, aunque los principales factores moleculares de su patogénesis permanecen incompletamente comprendidos. Aquí, se realizó el examen para determinar si el SNRNP70 —un componente central del complejo snRNP U1 esencial para el empalme pre-ARNm— contribuye a la progresión de la OA. El análisis de diez conjuntos de datos transcriptómicos públicos mostró que SNRNP70 estaba consistentemente regulada a la baja en el cartílago de la artrosis en comparación con los controles normales. Un metaanálisis indicó además una buena precisión diagnóstica para la artositis, con un AUC agrupado de 0,92. En los condrocitos primarios de rata estimulados con interleucina-1β (IL-1β), SNRNP70 expresión se suprimió bajo condiciones inflamatorias. La expresión forzada de SNRNP70 no solo redujo la producción de mediadores proinflamatorios (IL-6 y MMP-13), sino que también restauró componentes clave de la matriz extracelular (ECM) (ACAN y COL2A1) y promovió la migración de condrocitos y la cicatrización de heridas. La correlación de Pearson, seguida del enriquecimiento con KEGG, indicó que la señalización de adhesión focal era una vía asociada a la regulación SNRNP70 . Los experimentos de rescate apoyaron la idea de que SNRNP70 mejora la capacidad reparadora de condrocitos, al menos en parte, al activar esta vía. En conjunto, estos hallazgos sugieren que SNRNP70 puede actuar como un regulador previamente no reconocido de la función inflamatoria de los condrocitos y la homeostasis del cartílago. También plantean la posibilidad de un vínculo mecanicista entre la actividad del espicosoma y la síntesis de matriz mediada por adhesión focal, lo que justifica una evaluación adicional de SNRNP70 como marcador diagnóstico candidato o objetivo terapéutico en la OA.
Introducción
La artrosis (OA) representa una dolencia articular prevalente que afecta principalmente a personas de 65 años o más, afectando aproximadamente al 7% de la población mundial 1,2. Sorprendentemente, entre 1990 y 2019, la prevalencia mundial de la artrosis aumentó un asombroso 113,25%, pasando de 247,51 millones de casos a 527,81millones 3. La OA se caracteriza principalmente por la progresión insidiosa de cambios degenerativos en los tejidos articulares, destacando la degradación del cartílago y la inflamaciónsinovial 4,5,6. Cabe destacar que la sobrecarga mecánica y el paso inexorable del tiempo se han establecido como los dos factores de riesgo más pronunciados que contribuyen a supatogénesis 7,8. Además, un número creciente de estudios subraya el papel fundamental que desempeña la degeneración meniscal como elemento integral en la intrincada patología de laAO 9. Investigaciones previas han demostrado de forma convincente que las lesiones meniscales afectan entre el 68% y el 90% de los pacientes conOA 10,11.
A nivel molecular, un creciente cuerpo de evidencia indica que la OA no es simplemente consecuencia del estrés biomecánico y el envejecimiento, sino también una enfermedad impulsada por complejas alteraciones en la regulación génica y el controlpost-transcripcional 12,13,14. Entre estos mecanismos, el espiosoma ha recibido una atención creciente en diversos contextos de enfermedades. Curiosamente, aunque ha sido objeto de extensa investigación sobre la patogénesis de la inflamación, el papel del espiosoma en la artrosis ha permanecido notablemente pocoestudiado 15,16,17. En esencia, el espiosoma puede conceptualizarse como una ribozima metálicadirigida a proteínas 18,19. Entre estos mecanismos, el empalme de ARN ha surgido como un determinante crítico del fenotipo de condrocitos y la homeostasis de la MEC. El empalme preciso garantiza la expresión correcta de proteínas estructurales y de señalización esenciales para la integridad del cartílago, mientras que el empalme aberrante puede interrumpir la renovación de la CLE, promover vías catabólicas y acelerar la degeneracióndel cartílago 20,21,22.
Estudios recientes han destacado las proteínas espicosómicas como reguladores clave de la homeostasis del tejido articular, pero el papel de estas proteínas en la patogénesis de la OA sigue siendo en gran medidainexplorado 23. En particular, SNRNP70, un componente central del pequeño complejo ribonucleoproteico nuclear U1, regula el reconocimiento de los sitios de empalme 5′ durante el procesamiento pre-ARNm y, por tanto, influye en la inclusión o exclusión de exonesespecíficos 24,25. La desregulación de la SNRNP70 ha estado implicada en diversas afecciones patológicas, pero su contribución a la degeneración del cartílago no se había caracterizado previamente. Un objetivo potencial de la regulación mediada por espicosomas es la quinasa de adhesión focal (FAK), una molécula central de señalización que integra señales mecánicas y bioquímicas para controlar la adhesión de los condrocitos, la dinámica del citoesqueleto, la supervivencia y la mecantransducción26. La actividad aumentada de la FAK se ha relacionado con un aumento de la señalización de adhesión focal, que a su vez promueve la síntesis de ECM y la regulación al alza de proteínas clave específicas del cartílago, incluyendo el aggrecan (ACAN) y el colágeno tipo II alfa 1 (COL2A1)27,28. Estas proteínas son indispensables para mantener la estructura y función del cartílago, y su regulación a la baja es una característica distintiva de la progresión de la OA.
A pesar de los avances en la investigación transcripcional y epigenética en la OA, el papel de la regulación FAK mediada por espiosomas en el control de la señalización de adhesión focal y el metabolismo de la ECM sigue estando poco definido. Basándose en estas observaciones, se razonó que SNRNP70 podría afectar el comportamiento de los condrocitos y la homeostasis de la ECM modulando el empalme alternativo FAK y, posteriormente, la señalización de adhesión focal. Para probar esta idea, la primera pregunta fue si SNRNP70 expresión se altera en la OA; Se evaluó su potencial como marcador diagnóstico y se exploraron sus posibles vínculos con respuestas inflamatorias y vías focales relacionadas con adhesiones en condrocitos.
Protocolo
El protocolo del estudio animal fue aprobado por el Comité de Ética de la Universidad Médica de Guangxi y del Primer Hospital Afiliado de la Universidad Médica de Guangxi (código de protocolo 202109001, NO.2022-KY-E-252).
PRECAUCIÓN: Todos los procedimientos deben seguir las directrices institucionales y nacionales de cuidado animal. El personal entrenado debe llevar EPI (guantes, mascarillas, batas de laboratorio) al manipular animales o muestras. Las cirugías requieren anestesia adecuada y monitorización postoperatoria. Informa de los eventos adversos (hemorragias, infecciones, cambios de comportamiento) de forma inmediata. Deshazte adecuadamente de los cadáveres y materiales contaminados. Realiza inspecciones regulares de las instalaciones para garantizar el cumplimiento. Los detalles comerciales de los animales, reactivos y equipos utilizados en este estudio se enumeran en la Tabla de Materiales.
Pacientes y conjuntos de datos de expresión génica
Para investigar los patrones de expresión de SNRNP70 en la OA, se recuperaron sistemáticamente conjuntos de datos de secuenciación de ARN (RNA-seq) y microarrays disponibles públicamente de la base de datos Gene Expression Omnibus (GEO) (https://www.ncbi.nlm.nih.gov/geo/)21. La estrategia de búsqueda incorporaba las siguientes palabras clave: "SNRNP70 OR RPU1 OR SNP1 OR U1AP OR U170K OR U1RNP O RNPU1Z OR SNRP70 O U1-70K" combinadas con "OA." Los criterios de inclusión se definieron de la siguiente manera: (i) conjuntos de datos derivados de muestras humanas; (ii) estudios centrados específicamente en la artrosis, excluyendo la artritis reumatoide y otras enfermedades inflamatorias articulares; (iii) disponibilidad de al menos tres réplicas biológicas independientes tanto en grupos OA como en grupos de control normal (NC), permitiendo así el cálculo de diferencias medias estandarizadas (DME). Flujo de trabajo de procesamiento de datos: Tras identificar los conjuntos de datos elegibles, se descargaron los datos de expresión en bruto y los metadatos clínicos correspondientes. Para conjuntos de datos de microarrays, los datos a nivel de sonda se normalizaron usando el algoritmo robusto de promedio multiarray (RMA), y las sondas se anotaron a símbolos génicos oficiales usando los archivos de anotación de plataforma. Para los conjuntos de datos RNA-seq, los conteos en bruto se convirtieron en valores de transcritos por millón (TPM) y luego se transformaron log2 para asegurar la comparabilidad entre conjuntos de datos. Cuando varias sondas se asignaban al mismo gen, se mantenía la sonda con mayor varianza de expresión entre muestras. Control de calidad y armonización: Para minimizar los efectos por lotes entre diferentes estudios, se aplicó la función ComBat del paquete "sva" R. Se realizó un análisis de componentes principales (PCA) tanto antes como después de la corrección para evaluar la efectividad de la eliminación por efecto de lotes. Se excluyeron de análisis posteriores los conjuntos de datos que mostraron baja calidad, anotaciones incompletas o que no distinguieron entre grupos de OA y NC.
Identificación de SNRNP70 expresados diferencialmente en OA y tejidos cartílagos normales
Para evaluar la expresión diferencial de SNRNP70 entre OA y tejidos de cartílago normal (NC), se empleó un enfoque analítico de varios pasos. Primero, se extrajeron datos de expresión para SNRNP70 de los conjuntos de datos disponibles. Se realizaron comparaciones estadísticas entre los grupos de OA y NC utilizando la prueba t de Student para determinar si los niveles medios de expresión diferían significativamente. Para evaluar aún más el poder discriminatorio de la SNRNP70, se generaron curvas de característica de funcionamiento del receptor (ROC) utilizando GraphPad Prism 8.0 y la plataforma Sangerbox (http://vip.sangerbox.com/). El área bajo la curva (AUC) se calculó para cuantificar la eficiencia diagnóstica de los niveles de expresión SNRNP70 .
A continuación, se realizó un metaanálisis utilizando Stata 14.0 para integrar los hallazgos en múltiples conjuntos de datos. La heterogeneidad estadística se evaluó utilizando la prueba Q de Cochran y la estadística I2 . Cuando la heterogeneidad era baja (p > 0,01 e I2 < 50%), se aplicó un modelo de efectos fijos; de lo contrario, se adoptó un modelo de efectos aleatorios. La diferencia media estandarizada (DME) con su correspondiente intervalo de confianza (IC) del 95% se calculó para cuantificar la expresión diferencial de SNRNP70 entre los tejidos OA y NC. Para mayor precisión diagnóstica, se realizó un metaanálisis diagnóstico utilizando el módulo Midas en Stata. Este análisis estimó la sensibilidad agrupada, la especificidad, la razón de verosimilitud positiva (PLR), la razón de verosimilitud negativa (NLR) y la razón de probabilidades diagnósticas (DOR) para SNRNP70. Además, se construyó una curva de característica de funcionamiento del receptor (sROC) resumida para proporcionar una evaluación global del rendimiento diagnóstico. Finalmente, se realizaron análisis de sensibilidad excluyendo secuencialmente conjuntos de datos individuales para evaluar la robustez y estabilidad de los resultados agrupados. El posible sesgo de publicación se evaluó utilizando la prueba de asimetría del diagrama embudo de Deeks. Utilizando este marco analítico integrado, se evaluaron sistemáticamente los patrones de expresión y el potencial diagnóstico de la SNRNP70 en los tejidos de artrosis en comparación con los tejidos NC.
Aislamiento y cultivo celular
Se aislaron condrocitos primarios del cartílago articular de ratas de Sprague–Dawley del día 2 posnatales. Se utilizaron un total de seis ratas neonatales para cada aislamiento. Como los animales se recogieron en una etapa postnatal temprana, no se determinó el sexo. Para cada preparación celular independiente, se extrajeron y agruparon tejidos de cartílago de las seis ratas antes del cultivo. Cada preparación de condrocitos aislada de forma independiente —derivada de un conjunto separado de animales— se trataba como una sola réplica biológica. Las réplicas técnicas, incluyendo pozos repetidos o reacciones qRT-PCR repetidas de la misma preparación celular, no se consideraron réplicas biológicas independientes.
En resumen, las ratas neonatales fueron eutanasiadas en condiciones estériles y las articulaciones de las rodillas fueron diseccionadas para exponer el cartílago articular. El tejido cartílago se separaba cuidadosamente del hueso subcondral usando tijeras microquirúrgicas, se molía en fragmentos de aproximadamente 1 mm³ y luego se digiería secuencialmente con enzimas. Los fragmentos de tejido se incubaron primero con tripsina–EDTA al 0,25% durante 30 minutos a 37 °C para eliminar el tejido conectivo residual. Tras lavarse con solución salina tamponada con fosfato, los fragmentos restantes se digerieron con colagnasa tipo II al 0,2% en DMEM sin suero durante 4–6 horas a 37 °C con agitación suave. La suspensión celda resultante se filtró a través de un colador de células de 70 μm, centrifugada a 300 × g durante 5 minutos y resuspendida en DMEM completo suplementado con suero bovino fetal al 10%, 100 U/mL de penicilina y 100 μg/mL de estreptomicina. Las células se sembraron en matrazas de cultivo y se mantuvieron a 37 °C en una incubadora humidificada con un 5% de CO₂. El medio se cambiaba cada 2–3 días. Solo se utilizaron condrocitos de paso 1 o 2 para experimentos posteriores para minimizar la desdiferenciación.
La identidad y pureza de los condrocitos se confirmaron antes del uso experimental. Morfológicamente, las células primarias mostraron una apariencia típica de condrocitos poligonales o de adoquines bajo microscopía de contraste de fase. A nivel molecular, la identidad de los condrocitos se verificó mediante la expresión de marcadores asociados al cartílago, incluyendo COL2A1 y ACAN, utilizando un Western blot. Para el modelo inflamatorio in vitro , los condrocitos primarios se estimularon con interleucina-1β (IL-1β) recombinante de rata a 10 ng/mL durante 48 horas. Las células no tratadas cultivadas en condiciones idénticas sirvieron como grupo de control normal. Para SNRNP70 experimentos de sobreexpresión, los condrocitos de preparaciones biológicas independientes se transfectaron por separado, y cada réplica biológica se procesó de forma independiente durante la transfección, estimulación de IL-1β, extracción de ARN/proteínas y análisis estadístico.
PCR cuantitativa en tiempo real (qRT-PCR)
El ARN total se aisló de cultivos de condrocitos subconfluentes (~80% de confluencia) utilizando el kit RNAfast200. La pureza del ARN se evaluó con un NanoDrop 2000, aceptando solo muestras con una relación A260/280 de 1,8–2,0, y la integridad se confirmó mediante electroforesis en gel de agarosa al 1%. El ADN de primera cadena se transcribió inversamente de 1 μg de ARN total utilizando el kit qPCR RT en una reacción de 20 μL que contenía cebadores aleatorios y dNTPs. El perfil térmico para la transcripción inversa fue de 42 °C durante 30 minutos, seguido de 95 °C durante 5 minutos. Se realizó qPCR con una premezcla basada en SYBR Green en un sistema de PCR en tiempo real. Cada reacción de 20 μL consistía en 10 μL de SYBR Green Master Mix, 0,5 μL de cebadores directos y inversos (10 μM), 2 μL de ADNc y 7 μL de agua libre de nucleasa. Las condiciones de ciclismo fueron: 95 °C durante 30 s, luego 40 ciclos de 95 °C durante 5 s y 60 °C durante 30 s. Se realizó un análisis de curva de fusión tras la amplificación para verificar la especificidad de un solo producto. GAPDH servía como referencia interna, y la expresión relativa se calculaba mediante el método 2−ΔΔCt . Las reacciones se realizaron en triplicado con tres réplicas biológicas independientes. Las secuencias de cebadores se enumeran en la Tabla 1.
Western blot
La expresión proteica de ACAN, COL2A1 y MMP13 se evaluó en condrocitos tras el tratamiento con IL-1β y la sobreexpresión SNRNP70. Las células fueron lavadas dos veces con solución salina tamponada con fosfato frío (PBS) y lisadas en un tampón RIPA que contenía proteasas e inhibidores de fosfatasa. Los lisados se incubaron sobre hielo durante 30 minutos con vórtices periódicos, y luego se centrifugaron a 12.000 × g durante 15 minutos a 4 °C. Las concentraciones de proteínas en los supernacionantes eliminados se determinaron mediante un kit de BCA. Cantidades iguales de proteína (30 μg por carril) se separaron con un 10% de SDS-PAGE y se transfirieron a las membranas PVDF mediante transferencia húmeda. Las membranas se bloquearon con leche desnatada al 5% en TBST a temperatura ambiente durante 1 hora, y luego se sondaron durante la noche a 4 °C con anticuerpos primarios contra ACAN (1:1000), COL2A1 (1:1000) o MMP13 (1:1000). Tras tres lavados de TBST (10 min cada uno), las membranas se incubaron con anticuerpos secundarios conjugados con HRP (1:5000) durante 1 hora a temperatura ambiente. La señal se desarrolló utilizando reactivo ECL y se capturó en un sistema ChemiDoc XRS+. Se realizó densitometría de banda con ImageJ, y todas las señales de proteínas objetivo se normalizaron a GAPDH como control de carga. Los datos se presentan como niveles relativos de proteína frente al grupo control.
Transfección
Los condrocitos fueron transfectados con un plásmido de sobreexpresión SNRNP70 (OE-SNRNP70) una vez que los cultivos alcanzaron alrededor del 80% de confluencia. Para la transfección, las células se sembraron en placas de 6 pozos a 2 × 10⁵ células por pozo y se dejaron adherirse durante la noche en un medio de crecimiento estándar (DMEM suplementado con suero fetal al 10% y 1% penicilina/estreptomicina) a 37 °C con un 5% de CO₂. Las transfecciones se realizaron con LipoFiter 3.0 siguiendo las instrucciones del fabricante. En resumen, se diluyeron 2–3 μg de ADN plasmídico por pozo en 100 μL de medio libre de suero y se mezclaron con la cantidad adecuada de reactivo lipídico. Los complejos ADN-lípidos se incubaron durante 15–20 minutos a temperatura ambiente para permitir la formación de complejos, y luego se añadieron suavemente a cada pozo que contenían condrocitos en un medio fresco y libre de suero. Tras 6 horas, el medio se sustituyó por medio de crecimiento completo para reducir la citotoxicidad.
La eficiencia de la transfección y la expresión SNRNP70 se evaluaron entre 48 y 72 horas después de la transfección. SNRNP70 niveles de ARNm se midieron mediante PCR cuantitativa en tiempo real (qRT-PCR), con GAPDH como control interno. La expresión proteica se evaluó utilizando el Sistema Automatizado Western Blot Simple Western según el protocolo del fabricante. En resumen, se prepararon lisados celulares, se midieron las concentraciones de proteínas y se cargaron muestras en cartuchos capilares para separación automatizada e inmunodetección con anticuerpos anti-SNRNP70. La eficiencia de transfección se calculó comparando SNRNP70 expresión en células transfectadas con OE-SNRNP70 con la de células control transfectadas con el vector vacío.
Inmunofluorescencia
La inmunofluorescencia se utilizó para examinar los niveles de proteínas IL-6 y MMP-13 en condrocitos oe-SNRNP70 tras la estimulación con IL-1β. Brevemente, las células se sembraron sobre cubiertas de vidrio estériles en placas de 24 pozos y se cultivaron bajo condiciones estándar hasta alcanzar una confluencia del 70–80%. Luego se fijaron con paraformaldehído al 4% durante 15 minutos a temperatura ambiente y se lavaron tres veces con PBS. Para la permeabilización, se aplicó un 0,1% de Triton X-100 en PBS durante 10 minutos a temperatura ambiente. Los sitios de unión inespecíficos se bloquearon incubando las células en albúmina sérica bovina al 5% (BSA) en PBS durante 1 hora a temperatura ambiente.
Tras la bloqueación, las células se incubaron durante la noche a 4 °C con anticuerpos primarios contra IL-6 y MMP-13 (diluido 1:200 en 1% de BSA/PBS). Tras tres lavados con PBS para eliminar anticuerpos primarios no unidos, las células se incubaron con anticuerpos secundarios conjugados con fluoróforos específicos de la especie (diluidos 1:500) durante 1 hora a temperatura ambiente en la oscuridad. Los núcleos se contra-tinturaron con 4′,6-diamidino-2-fenilindol (DAPI) durante 5 minutos. Las cubiertas se montaron sobre portaobjetos de vidrio con medio antidesvanecimiento, y se capturaron imágenes de fluorescencia usando un microscopio de fluorescencia a un aumento del 20×. Para el análisis cuantitativo, se analizaron 10 células seleccionadas aleatoriamente por muestra en ImageJ para medir la intensidad de fluorescencia de las proteínas objetivo. La intensidad media de fluorescencia se calculó para cada grupo y se utilizó para la comparación estadística.
Ensayo de cierre de heridas por arañazo celular
Se realizó un ensayo de cierre de herida por arañazo para evaluar la capacidad de los condrocitos para cerrar una brecha artificial bajo diferentes condiciones de tratamiento. Los condrocitos primarios se sembraron en placas de 6 pozos con una densidad de 1 × 10⁵ células por pozo y se cultivaron hasta alcanzar aproximadamente el 90% de confluencia. Se generó un rayado lineal en la monocapa de la celda utilizando una punta de pipeta estéril de 200 μL. Las células desprendidas se extrajeron lavando dos veces con PBS, y luego se añadió un medio de cultivo completo y fresco que contenía los tratamientos indicados. Las células se asignaron a los siguientes grupos: control normal, tratado con IL-1β e IL-1β más sobreexpresión SNRNP70 . Se capturaron imágenes de la misma zona de la herida en los momentos de 6 y 12 horas tras el rascado usando un microscopio invertido (Figura suplementaria 1). El cierre de la herida se calculó como el porcentaje de reducción en el área de la herida en relación con el área inicial a 0 h utilizando la siguiente fórmula:
Cierre de la herida (%) = [(área de la herida en 0 h - área de la herida en el momento indicado) / área de la herida en 0 h] × 100. (1)
Análisis estadístico
Todos los datos cuantitativos se presentan como la media ± desviación estándar (DS) de tres réplicas biológicas independientes (n = 3), salvo que se indique lo contrario. Se realizaron análisis estadísticos utilizando GraphPad Prism 8.0. Para comparar entre dos grupos, se utilizó una prueba t de Student no emparejada. La significación estadística se indicó de la siguiente manera: *p < 0,05 y **p < 0,01.
Resultados
SNRNP70 Expresión en tejidos de la cavidad articular
Para investigar de forma exhaustiva el papel de la SNRNP70 en la OA, se realizó un cribado sistemático de 10 conjuntos de datos de RNA-seq y microarrays disponibles públicamente que cumplían criterios estrictos de inclusión y exclusión (Tabla 2). SNRNP70 niveles de expresión fueron cuidadosamente extraídos y analizados en estos conjuntos de datos. De manera llamativa, en 6 de 10 cohortes, la expresión de SNRNP70 se redujo significativamente en los tejidos de la artrosis en comparación con los controles normales (p < 0,05), lo que sugiere un patrón consistente de supresión transcripcional (Figura 1).
Cabe destacar que tres conjuntos de datos (GSE114007, GSE169077 y GSE19060) no revelaron diferencias estadísticamente significativas entre la OA y las muestras de control. En lugar de ignorar estas discrepancias, se aprovecharon estrategias de corrección por lotes e integración de conjuntos de datos para mejorar la robustez y fiabilidad del análisis. Específicamente, se fusionaron conjuntos de datos derivados de plataformas de secuenciación idénticas para aumentar el poder estadístico. Por ejemplo, GSE114007 se combinó con GSE89408 para generar GSE114007-89408, mientras que GSE169077, GSE12021 y GSE55457 se fusionaron en GSE169077-12021-55457 (Figura 1). Este enfoque integrador minimizó la variabilidad entre estudios y fortaleció la reproducibilidad de los hallazgos. En resumen, los análisis de conjuntos de datos humanos revelan una regulación a la baja consistente de la SNRNP70 en los tejidos articulares de la OA, lo que sugiere su potencial como biomarcador diagnóstico. Sin embargo, no está claro si esta disminución provoca directamente la desregulación del empalme o la degeneración del cartílago en humanos y está pendiente de verificación, preferiblemente en modelos de tejido humano.
Capacidad diagnóstica clínica de SNRNP70
Para evaluar rigurosamente el valor diagnóstico de la SNRNP70 en la OA, se realizó un metaanálisis exhaustivo que integró datos de 165 muestras de OA y 125 controles normales. Esto representa, según el mejor conocimiento disponible, la evaluación sistemática de SNRNP70 como posible biomarcador diagnóstico en la artrosis (OA). El análisis de heterogeneidad reveló una heterogeneidad significativa entre conjuntos de datos (I2 = 72,9%; p = 0,001), lo que requiere un modelo de efectos aleatorios. El análisis agrupado demostró una reducción robusta y consistente de la expresión de SNRNP70 en tejidos de OA en comparación con controles normales, con una diferencia media estandarizada (DMS) de -1,07 (IC 95%: -1,34 a -0,80) (Figura 2A–B). Más allá del perfil de expresión, se evaluó aún más el rendimiento diagnóstico de SNRNP70 . Los resultados de las pruebas diagnósticas agrupadas revelaron una sensibilidad combinada de 0,82 (IC 95%: 0,57–0,94) y una especificidad de 0,88 (IC 95%: 0,73–0,95), lo que subraya su fuerte capacidad discriminatoria (Figura 3A). De forma consistente, la curva de característica operativa del receptor resumen (SROC) arrojó un área bajo la curva (AUC) de 0,92 (IC 95%: 0,90–0,94), lo que resaltó aún más la alta precisión de la SNRNP70 en la distinción de pacientes con artrosis de individuos sanos (Figura 3B).
Para garantizar la robustez de estos hallazgos, se realizó un análisis de sensibilidad, confirmando que la exclusión secuencial de conjuntos de datos individuales no alteró de manera significativa el tamaño total del efecto (Figura 4A). Es importante destacar que tanto la prueba de asimetría de diagramas embudo de Deek (p = 0,41) como la prueba de Egger no indicaron sesgo significativo de publicación, lo que reforza la credibilidad de los resultados (Figura 4B). En conjunto, estos datos muestran que la expresión de SNRNP70 se reduce en la artrosi y sugieren que podría servir como biomarcador diagnóstico. Dicho esto, la heterogeneidad entre conjuntos de datos y la ausencia de una cohorte de validación independiente merecen precaución. Por tanto, estos hallazgos se consideran preliminares, pendientes de estudios adicionales para aclarar la utilidad clínica de la SNRNP70 en el diagnóstico y manejo de la artrositis.
SNRNP70 Modulación de la expresión génica inflamatoria en la OA
Para delimitar el papel regulador de la SNRNP70 en la señalización inflamatoria durante la progresión de la OA, se estableció inicialmente un modelo in vitro de OA exponiendo los condrocitos a IL-1β, una citoquina proinflamatoria bien caracterizada. El análisis qRT-PCR realizado tras 48 horas de estimulación de IL-1β reveló una regulación a la baja significativa de SNRNP70 niveles de ARNm en comparación con el grupo NC (Figura 5). Esta supresión de la expresión de SNRNP70 en condiciones inflamatorias fue coherente con los datos transcriptómicos de conjuntos de datos de AO disponibles públicamente, proporcionando así evidencia sólida de que SNRNP70 está consistentemente reprimida en la inflamación asociada a la OA. Para investigar más a fondo si restaurar la expresión SNRNP70 podía modular el fenotipo inflamatorio de los condrocitos, se transfectaron células utilizando un plásmido de sobreexpresión SNRNP70 (oe-SN). De forma notable, la expresión forzada de SNRNP70 alivió sustancialmente la inflamación inducida por IL-1β, reflejada en cambios tanto transcripcionales como traduccionales. Específicamente, la qRT-PCR mostró una reducción robusta en los niveles de ARNm de IL-6 y MMP-13 en el grupo oe-SN en comparación con los controles tratados con IL-1β (Figura 5).
Además de estos hallazgos moleculares, la tinción por inmunofluorescencia proporcionó evidencia celular directa del potencial antiinflamatorio de SNRNP70. En las células tratadas con IL-1β, la IL-6 mostró una acumulación citoplasmática pronunciada, consistente con un estado inflamatorio activado. De manera llamativa, la sobreexpresión de SNRNP70 llevó a una notable atenuación de la intensidad de la tinción citoplasmática de IL-6 (Figura 6A), destacando así su capacidad para revertir la respuesta inflamatoria a nivel celular. Se observó un patrón similar para MMP-13, donde el tratamiento con IL-1β mejoró su expresión, pero SNRNP70 sobreexpresión suprimió notablemente la localización de MMP-13 y la intensidad de la señal (Figura 6B).
A diferencia de investigaciones anteriores que se centraban principalmente en el daño estructural del cartílago, los datos in vitro de condrocitos de rata sugieren que SNRNP70 actúa como regulador de la expresión génica inflamatoria. Específicamente, la expresión forzada de SNRNP70 mediadores proinflamatorios atenuados impulsados por IL-1β, incluyendo IL-6 y MMP-13, en este modelo de rata. Es importante destacar que, dado que estos experimentos se realizaron exclusivamente en un modelo inflamatorio de ratas, no recapitulan directamente los hallazgos del conjunto de datos humanos. No obstante, estos resultados ofrecen un marco conceptual, indicando que SNRNP70 puede funcionar no solo como un factor de empalme, sino también como un posible modulador de la inflamación, una posibilidad que merece una exploración más profunda en tejidos humanos.
Identificación de vías relacionadas con SNRNP70 en la OA
Para explorar las vías biológicas asociadas con la expresión SNRNP70 en la osteoartritis, el análisis de correlación de Pearson se realizó por separado en los conjuntos de datos transcriptómicos públicos GSE98918, GSE117999, GSE129147, GSE51588, GSE169077_12021_55457, GSE114007-89408 y GSE82107-19060. Se consideraron que genes con un coeficiente de correlación absoluto (|r|) > 0,8 y p < 0,05 estaban significativamente correlacionados con la expresión de SNRNP70 en cada conjunto de datos. Se generó la unión de genes correlacionados en todos los conjuntos de datos, dando lugar a 929 genes relacionados con SNRNP70.
Posteriormente, el análisis de enriquecimiento de vías KEGG se realizó utilizando el paquete clusterProfiler, con ajustes para múltiples pruebas mediante el método Benjamini–Hochberg. Este análisis reveló un enriquecimiento significativo de los genes identificados en varias vías, incluida la vía de adhesión focal (Figura 7). Se sabe que esta cascada de señalización regula la adhesión de condrocitos, la mecanotransducción y la remodelación de la MEC, todos procesos clave en la progresión de la OA. En conjunto, estos hallazgos sugieren una relación entre la expresión SNRNP70 y las firmas de expresión génica relacionadas con adhesión focal en conjuntos de datos de OA.
SNRNP70 media la reparación inflamatoria de los condrocitos a través de la vía de adhesión focal
Para evaluar el papel de la SNRNP70 en la capacidad de cicatrización de la herida de los condrocitos inflamatorios, se realizó un ensayo de cierre de herida rascado utilizando condrocitos primarios. Las células se asignaron a tres grupos: control normal, tratamiento con IL-1β y IL-1β más sobreexpresión SNRNP70. La estimulación de IL-1β redujo el grado de cierre del scratch gap en comparación con el grupo control normal, lo que indica una capacidad de cicatrización de heridas deteriorada en condiciones inflamatorias. En cambio, SNRNP70 sobreexpresión promovió el cierre de la brecha de rasguño en los condrocitos tratados con IL-1β en comparación con el tratamiento solo con IL-1β (Figura 8A). En conjunto, estos resultados indican que la sobreexpresión SNRNP70 potencia la respuesta de cierre de heridas de los condrocitos tratados con IL-1β.
A nivel molecular, los análisis Western Blot demostraron que el tratamiento con IL-1β suprimía la expresión de las proteínas de la matriz cartilaginosa ACAN y COL2A1, al tiempo que promovía la regulación al alza de la enzima degradativa MMP13. Es importante destacar que SNRNP70 sobreexpresión no solo restauró los niveles de ACAN y COL2A1 , sino que también redujo significativamente la MMP13, preservando así la integridad de la ECM (Figura 8B). Mecánicamente, in vitro, los efectos beneficiosos de la SNRNP70 estuvieron estrechamente asociados con la activación de la vía de señalización de adhesión focal.
En conjunto, los análisis de conjuntos de datos humanos revelan que SNRNP70 está regulada a la baja en la OA y que su expresión se correlaciona con los genes implicados en la vía de adhesión focal. En los condrocitos de rata expuestos a la estimulación con IL-1β, la expresión forzada de SNRNP70 promueve la reparación celular inflamatoria y la síntesis de ECM, y también se asocia con la señalización de adhesión focal. Aunque estas observaciones in vitro de un modelo de rata son sugerentes, no corroboran directamente los hallazgos derivados de conjuntos de datos humanos. No obstante, estas líneas convergentes de evidencia apoyan un modelo en el que SNRNP70 contribuye a la patogénesis de la artrosis humana mediante la señalización de adhesión focal, una hipótesis que ahora espera confirmación definitiva en tejidos humanos o en modelos in vivo con relevancia humana.
DISPONIBILIDAD DE DATOS:
Los conjuntos de datos utilizados y analizados en este estudio están disponibles en el conjunto de datos GEO (https://www.ncbi.nlm.nih.gov/geo/). Todos los datos generados o analizados durante este estudio han sido completamente presentados y discutidos dentro del manuscrito. Los datos en bruto de este estudio se suben como un Archivo Suplementario.
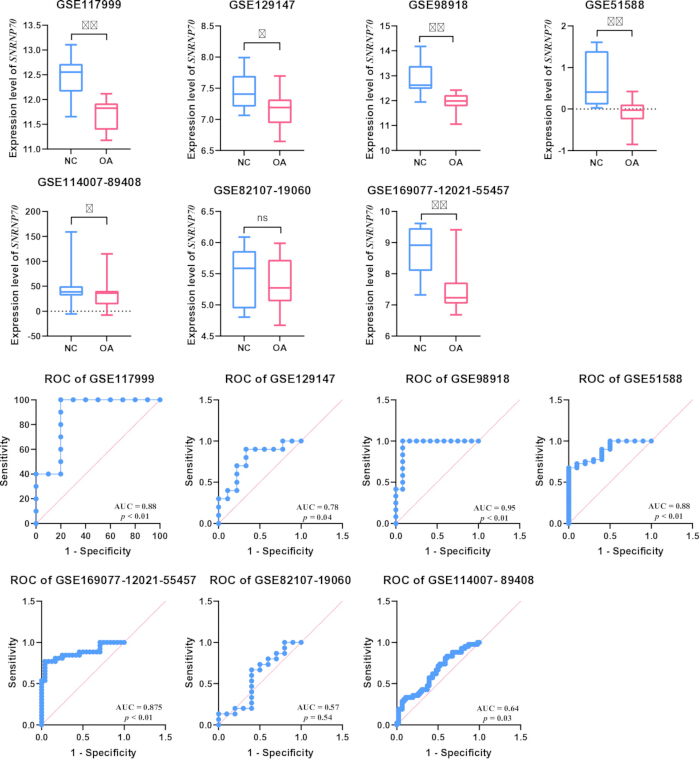
Figura 1: La prueba t de los estudiantes y la curva ROC para siete estudios. Los resultados sugirieron que la expresión SNRNP70 fue menor en los tejidos de la artrosis que en los tejidos NC en GSE117999, GSE129147, GSE98918, GSE51558, GSE114007-89408 y GSE169077-12021-55457 (p < 0,05), y el AUC ROC indicó una alta viabilidad. p < 0,05 (*), p < 0,01(**). Por favor, haz clic aquí para ver una versión ampliada de esta figura.
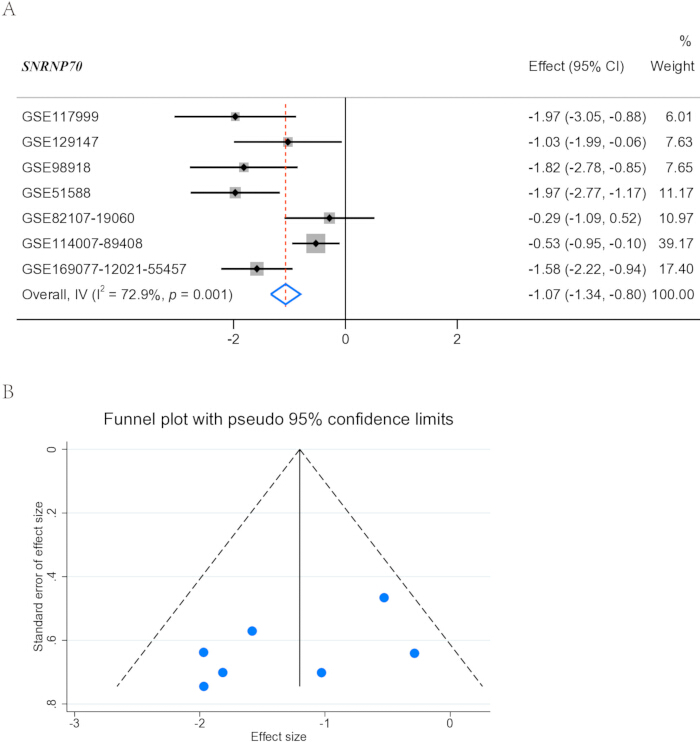
Figura 2: El metaanálisis para siete conjuntos de datos. (A) Los resultados mostraron que I2 = 72,9%, p = 0,001, y la DME total fue de -1,07. (B) El diagrama de embudo fue evaluado en el metaanálisis para detectar sesgo de publicación. Se comprobó que era básicamente simétrica. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
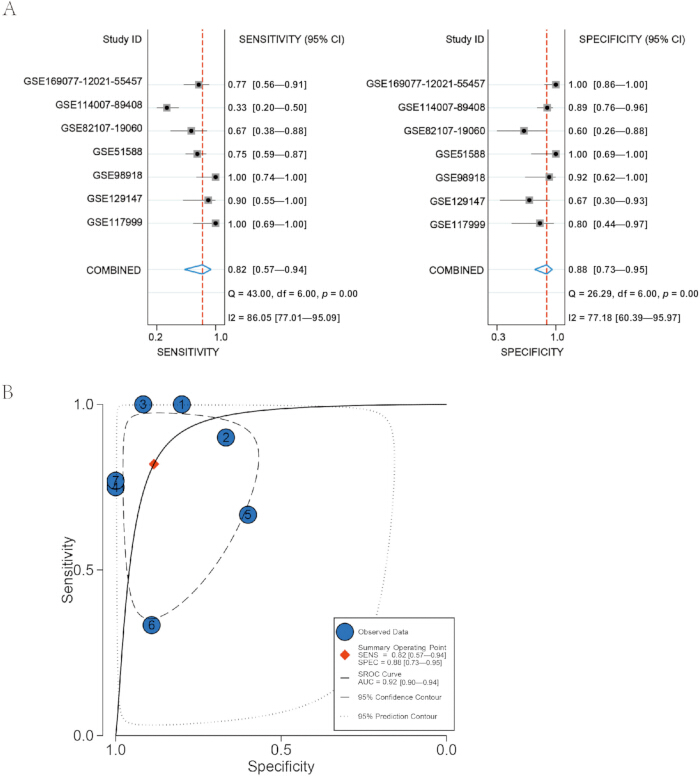
Figura 3: El rendimiento diagnóstico de SNRNP70. (A) La prueba Q reveló que tanto la sensibilidad como la especificidad tenían valores p < 0,05, con valores de I2 del 86,05% y 77,18%, respectivamente, indicando una heterogeneidad sustancial. El estudio informó de una sensibilidad de 0,82 y una especificidad de 0,88, destacando su notable desempeño. (B) El AUC de la sROC fue de 0,92, lo que indica un alto nivel de confianza en la investigación. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
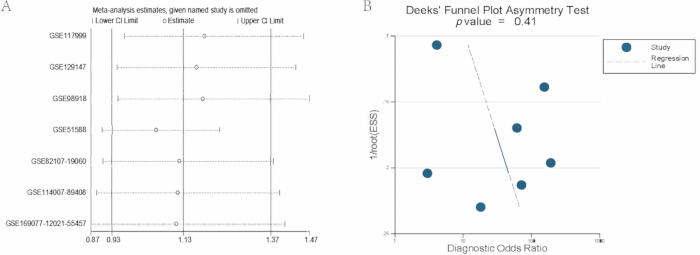
Figura 4: Análisis de influencias y diagrama del embudo de Deek. (R) El análisis de influencia indicó que excluir ningún estudio individual no afectó notablemente los resultados generales. (B) En siete estudios, todos los resultados no mostraron sesgo significativo (p = 0,41). Por favor, haz clic aquí para ver una versión ampliada de esta figura.
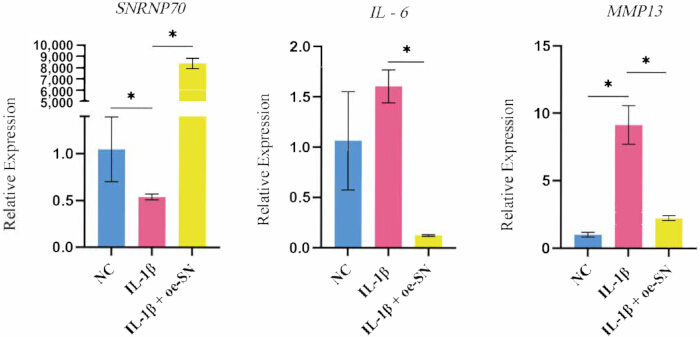
Figura 5: Los resultados de la qRT-PCR indican una reducción significativa en la expresión de SNRNP70 en los condrocitos tras el tratamiento con IL-1β. En el grupo oe-SN, hubo una disminución notable en los niveles de expresión de los marcadores inflamatorios IL-6 y MMP13 en comparación con el grupo IL-1, lo que sugiere que la sobreexpresión de SNRNP70 puede revertir los marcadores inflamatorios en los condrocitos tratados con IL-1β. Los datos se presentan como media ± DE a partir de n = 3 réplicas biológicas independientes. los valores p < 0,05 (*), los valores p < 0,01(**). Por favor, haz clic aquí para ver una versión ampliada de esta figura.
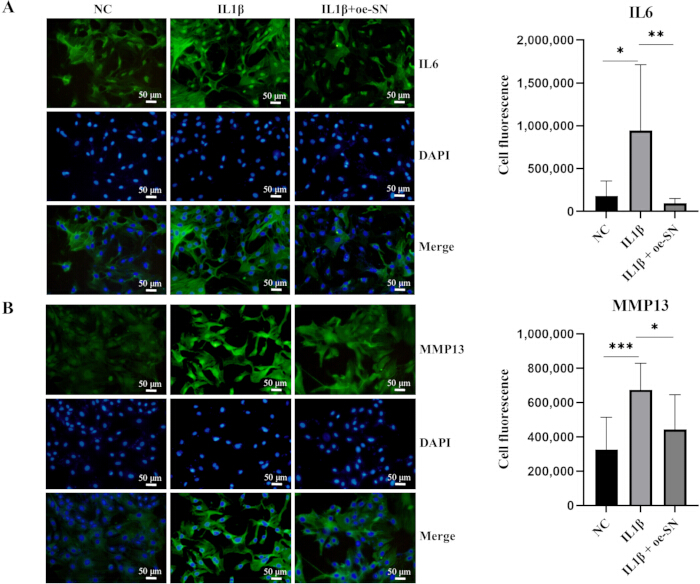
Figura 6: El análisis de FI de condrocitos tratados con IL-1β tras el tratamiento con IL-1β, mostrando la intensidad de fluorescencia. (A) La intensidad de fluorescencia de IL-6 y (B) MMP13 aumentó significativamente. Sin embargo, la sobreexpresión de SNRNP70 provocó una reducción notable en la intensidad de fluorescencia de los marcadores inflamatorios IL-6 y MMP13. Estos resultados sugieren que SNRNP70 sobreexpresión puede mitigar la inflamación en los condrocitos tratados con IL-1β. Todas las imágenes microscópicas se tomaron con un aumento de 10x. Los datos se presentan como media ± DE a partir de n = 3 réplicas biológicas independientes. los valores p < 0,05 (*), los valores p < 0,01(**). Barra de escala = 50 μm. Por favor, haga clic aquí para ver una versión ampliada de esta figura.
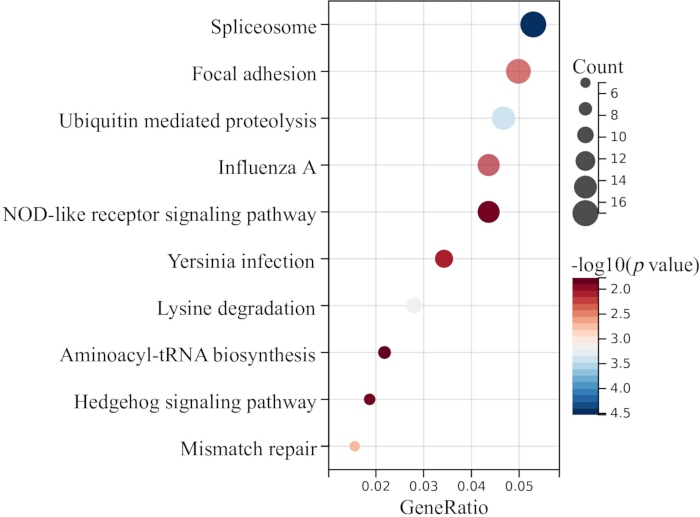
Figura 7: Análisis de enriquecimiento KEGG basado en correlación de genes asociados a SNRNP70 en conjuntos de datos de osteoartritis. Las 10 principales vías enriquecidas identificadas por clusterProfiler (corrección de Benjamini–Hochberg). Tamaño de la burbuja = recuento de genes; color = significación (-log10(valor p )). La vía de adhesión focal (destacada) media la adhesión de los condrocitos, la mecanotransducción y la remodelación de la ECM en la OA. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
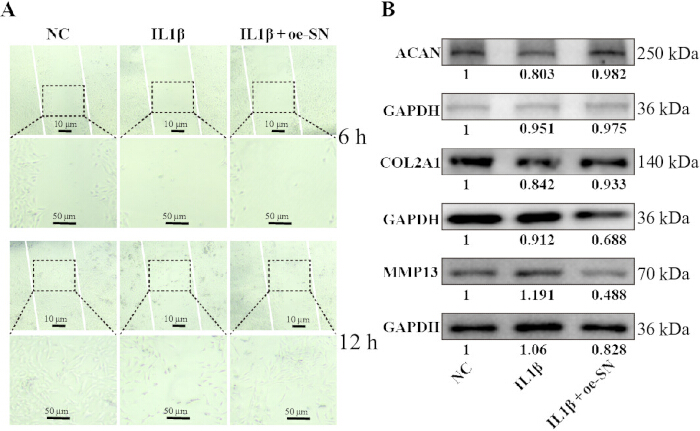
Figura 8: SNRNP70 sobreexpresión restaura la reparación de la ECM en condrocitos tratados con IL-1β. (A) Imágenes del cierre de heridas rascadas en control, tratado con IL-1β y condrocitos con sobreexpresión de IL-1β SNRNP70. (B) Manchas occidentales representativas de la matriz cartilágica clave y proteínas catabólicas. Se sondearon las membranas para detectar ACAN, COL2A1 y MMP13. GAPDH se muestra como un control de carga. Las aumentaciones son las siguientes: grupos NC, IL-1β e IL-1β+oe-SN: A 4x de aumento: barra de escala = 10 μm. A 10x de ampliación: barra de escala = 50 μm. Por favor, haga clic aquí para ver una versión ampliada de esta figura.
Figura suplementaria 1: Análisis cuantitativo del cierre de heridas y densitometría de Western blot. (A) Cuantificación del cierre por arañazo en condrocitos primarios de los grupos NC, IL-1β e IL-1β + oe-SNRNP70. (B) Cuantificación densitométrica de las bandas western blot de ACAN, COL2A1 y MMP13. Las intensidades de las bandas se cuantificaron usando ImageJ y se normalizaron a GAPDH. Los datos se presentan como media ± DE a partir de n = 3 réplicas biológicas independientes. *p < 0,05, **p < 0,01. Por favor, haga clic aquí para descargar este archivo.
| Gen objetivo | Secuencia de cebador hacia adelante | Secuencia de cebador hacia adelante |
| GAPDH | 5'-TCTCTGCTCCCCCTCTCT-3' | 5'-ATCCGTTCACACCGACCTTC-3' |
| SNRNP70 | 5'-GAGACATGCACTCCACCACG-3' | 5'-TGCGGTGCTGTGATCTTACC-3' |
| IL6 | 5'-ACAAGTCCGGAGAGACT-3' | 5'-ACAGTGCATCATCGCTGTTC-3' |
| MMP13 | 5'-GGACAAAGACTATCCCCGCC-3' | 5'-GGCATGACTCTCAATGCG-3' |
Tabla 1: Los cebadores para los genes objetivo. Se muestran secuencias de cebadores hacia adelante y hacia atrás para GAPDH, SNRNP70, IL6 y MMP13 usadas en qRT-PCR, todas en orientación 5′ > 3′. GAPDH era el control interno.
| Identificación de estudio | Andén | NC (n) | OA (n) | Tejidos |
| GSE114007 | GPL11154, GPL18573 | 18 | 20 | Cartílagos |
| GSE117999 | GPL20844 | 10 | 10 | Cartílagos |
| GSE129147 | GPL15207 | 9 | 10 | Cartílagos |
| GSE169077 | GPL96 | 5 | 6 | Cartílagos |
| GSE12021 | GPL96 | 13 | 20 | Synoviums |
| GSE55457 | GPL96 | 10 | 10 | Synoviums |
| GSE89408 | GPL11154 | 28 | 22 | Synoviums |
| GSE82107 | GPL570 | 7 | 10 | Synoviums |
| GSE19060 | GPL570 | 3 | 5 | Menisco |
| GSE98918 | GPL20844 | 12 | 12 | Menisco |
| GSE51588 | GPL13497 | 10 | 40 | Hueso subcondral |
Tabla 2: Los conjuntos de datos de este estudio proceden de la base de datos GEO. Resumen de 11 conjuntos de datos GEO disponibles públicamente que cumplen con los criterios de inclusión. Para cada conjunto de datos, se proporcionan el ID de acceso, la plataforma y el número de muestras de control normal (NC) y artrosis (OA), junto con el tipo de tejido. n = número de muestras.
Discusión
El presente trabajo sugiere que SNRNP70 puede funcionar como un gen protector en la patogénesis de la artrosis, un trastorno articular multifacético que supone un importante desafío sanitario global29,30. Este estudio es el primero en informar sobre el papel de la SNRNP70 en la OA. En este estudio, demostramos una regulación significativa a la baja de la expresión de SNRNP70 en tejidos de OA, como lo demuestra el análisis de los datos GEO (DME global = -1,07, IC 95%: -1,34, -0,80; Figura 2). Es importante destacar que este hallazgo fue posteriormente validado en condrocitos tratados con IL-1β. Además, este estudio exploró el papel de la SNRNP70 en la respuesta inflamatoria de los condrocitos tratados con IL-1β. Como gen protector asociado a la artosis arosi, SNRNP70 mostró la capacidad de dificultar la progresión de la artosis suprimiendo la expresión de IL-1 y MMP13. Hasta la fecha, este es el primer estudio experimental que reporta una disparidad discernible en los niveles de expresión SNRNP70 entre los tejidos de OA y NC, lo que sugiere un posible papel de la SNRNP70 en la patogénesis de la OA. Esta observación intrigante nos lleva a considerar las posibles implicaciones diagnósticas de la SNRNP70 en la artrosis.
El metaanálisis que realizamos, que incorporó múltiples conjuntos de datos y arreglos de RNA-seq, aportó evidencia de la posible relevancia diagnóstica de SNRNP70. La DME de -1,07 subrayó la constante regulación a la baja de la SNRNP70 en tejidos de OA, aumentando la posibilidad de su utilidad como candidato diagnóstico. El análisis de la curva ROC enfatizó aún más este potencial, con una AUC de 0,92, indicativa de un poder discriminatorio robusto. Además, los valores combinados de sensibilidad y especificidad apoyaban la idea de que SNRNP70 podría permitir un diagnóstico de artrosis más temprano y preciso. Más allá de su promesa diagnóstica, SNRNP70 sigue siendo un candidato de interés en el contexto de la gestión de la AO. La patogénesis de la AO es un proceso multifactorial que implica sobrecarga mecánica, envejecimiento, predisposición genética einflamación 31,32. Entre estos factores, la inflamación ha ganado reconocimiento creciente como un factor clave en la progresión de laOA 33,34. Orquesta una cascada de eventos, incluyendo la degradación del cartílago, la inflamación sinovial y la alteración de la homeostasis articular.
Este estudio exploró el potencial antiinflamatorio de la SNRNP70, motivado por su papel como componente del esplicosoma35,36. Utilizando un modelo in vitro, los condrocitos se trataron con IL-1β recombinante de rata para imitar el microambiente inflamatorio en las articulaciones OA. Estos hallazgos sugieren que SNRNP70 puede desempeñar un papel en la modulación de la inflamación en los condrocitos estimulados por IL-1β. Los ensayos de ayuno intermitente proporcionaron un apoyo adicional a las propiedades antiinflamatorias de SNRNP70. Los condrocitos tratados con IL-1β mostraron una mayor expresión de proteínas inflamatorias, que fueron atenuadas por oe-SN. Esta modulación de la expresión de proteínas inflamatorias por SNRNP70 pone de manifiesto un posible vínculo con la cascada inflamatoria asociada a la patogénesis de la OA.
Aunque este estudio proporciona evidencia observacional del potencial diagnóstico y terapéutico de la SNRNP70 en la artrosis, los mecanismos precisos que subyacen a sus efectos siguen siendo un área de interés37. SNRNP70 es un componente crítico del espicosoma, un complejo implicado en el empalme de ARN, un proceso fundamental en la regulación de la expresión génica. El empalme de ARN desempeña un papel fundamental en la expresión génica al eliminar regiones no codificantes (intrones) y unir regiones codificantes (exones) de moléculas de ARNm, dando forma finalmente al proteoma 38,39,40. Es plausible que la implicación de SNRNP70 en el empalme de ARN pueda afectar la expresión de genes asociados a la patogénesis de la OA. Los objetivos específicos de ARN y los eventos de empalme regulados por SNRNP70 en los tejidos afectados por OA aún están por esclarecerse. Comprender estos mecanismos puede ofrecer valiosas perspectivas sobre los fundamentos moleculares de la OA y los objetivos candidatos para una investigación posterior. Además, futuras investigaciones deberían explorar la interacción de la SNRNP70 con otras moléculas implicadas en la patogénesis de la artrositis. Investigar su intercomunicación con las vías de señalización implicadas en la inflamación, la degradación del cartílago y la remodelación del tejido articular podría proporcionar una comprensión más completa de sus múltiples efectos.
Este estudio presenta ciertas limitaciones que merecen ser consideradas. Aunque el metaanálisis incorporó un número considerable de conjuntos de datos, las variaciones en el diseño del estudio, la demografía de los pacientes y el procesamiento de datos pueden introducir heterogeneidad. Además, los conjuntos de datos incluidos variaron en origen tisular (por ejemplo, cartílago frente a sinovio) y en plataformas de procesamiento, lo que puede explicar en parte la heterogeneidad observada entre estudios (I2 = 73,3%). Además, este análisis integrativo se basó en conjuntos de datos humanos disponibles públicamente, mientras que los experimentos funcionales utilizaron condrocitos aislados de ratas neonatales. Esta discrepancia entre especies limita hasta qué punto los hallazgos in vitro pueden extrapolarse directamente a la fisiopatología de la artrosofis humana. Otra advertencia es la dependencia de un modelo agudo de estimulación IL-1β, que captura solo la respuesta inflamatoria temprana y no recapitula completamente la naturaleza crónica, progresiva y multifactorial de la OA en humanos. Además, los experimentos funcionales se limitaron a enfoques de ganancia de función (SNRNP70 sobreexpresión); No se realizaron experimentos de pérdida de función (por ejemplo, SNRNP70 knockdown), lo que representa una limitación del estudio actual. Finalmente, aunque los análisis de correlación implican SNRNP70 en la vía de adhesión focal, los eventos de empalme FAK no se examinaron directamente, y no se proporcionó evidencia experimental de que la señalización de adhesión focal se altere aguas abajo de SNRNP70 . Por lo tanto, es necesario validar en cohortes de pacientes más grandes y modelos animales para reforzar la solidez de estos hallazgos. Además, los experimentos in vitro utilizaron un modelo de cultivo celular, que puede no reflejar completamente el complejo microambiente in vivo de las articulaciones OA. Futuros estudios deberían explorar los efectos de la SNRNP70 en modelos animales de artrosi para evaluar su potencial terapéutico en un contexto fisiológicamente más relevante.
Divulgaciones
Los autores no tienen conflictos de interés.
Agradecimientos
Esta investigación fue financiada por el Guangxi Key Research, China (GuiKe AB22035014), el Fondo Especial del Equipo de Innovación Característica del Primer Hospital Afiliado de la Universidad Médica de Guangxi (YYZS2022003), y el Proyecto Conjunto Provincial de Innovación en Ciencia y Tecnología de la Salud de Hainan (WSJK2026QN087).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Anti-aggrecan (ACAN) antibody | Abcam | ab36861 | Anticuerpo primario, dilución 1:1000 |
| Anti-collagen type II alpha 1 (COL2A1) antibody | Abcam | ab34712 | Anticuerpo primario, dilución 1:1000 |
| Anti-IL6 antibody | Proteintech | 21865-1-AP | Antibióticos para cultivo celular |
| Anti-MMP13 antibody | Proteintech | 18165-1-AP | Anticuerpo primario, dilución 1:1000 |
| BCA protein assay kit | Thermo Fisher Scientific | 23225 | Determinación de concentración total de proteína |
| CFX96 Real-Time PCR Detection System | Bio-Rad | 1855195 | Sistema de detección de PCR en tiempo real |
| ChemiDoc XRS+ imaging system | Bio-Rad | 1708265 | Sistema de imagen de quimioluminiscencia |
| Collagenase type II | Sigma-Aldrich | C6885 | Digestión de tejido de cartílago, 2 mg/mL |
| DAPI | Thermo Fisher Scientific | 62248 | Contratinta nuclear |
| Dulbecco’s Modified Eagle Medium/F12 | Gibco | 11320033 | Medio de cultivo celular basal |
| ECL reagent | Thermo Fisher Scientific | 34580 | Reactivo de quimioluminiscencia mejorado |
| Fetal bovine serum | Gibco | 10082147 | Concentración del 10% como suplemento de cultivo |
| Fluorescent microscope | Olympus | BX53 | Imagen de inmunofluorescencia (magnificación 20x) |
| GEO database | NCBI | N/A | Conjuntos de datos públicos de RNA-seq y microarray |
| GraphPad Prism 8.0 | GraphPad | N/A | Análisis de curva ROC |
| HRP-conjugated secondary antibodies | Santa Cruz Biotechnology | sc-516102 | Anticuerpo secundario |
| ImageJ software | NIH | N/A | Software de análisis densitométrico |
| LipoFiter 3.0 | Hanbio | HB-TF3001 | Reactivo de transfección |
| NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | Medición de pureza y concentración de ARN (relación A260/280) |
| oe-SNRNP70 | Hanbio | HB-OV5101 | Plásmido de sobreexpresión |
| Penicillin | Thermo Fisher Scientific | 15140122 | Antibiótico para cultivo celular |
| Primer-BLAST | NCBI | N/A | Diseño de cebadores específicos de genes |
| Primers (synthesized) | Sangon Biotech | N/A | Síntesis comercial de cebadores PCR |
| protease and phosphatase inhibitor cocktails | Roche | 4693159001 | Cóctel de inhibidores de proteasa y fosfatasa |
| PVDF membrane | Millipore | IPVH00010 | Membrana de transferencia de proteínas |
| ReverTra Ace qPCR RT Kit | TOYOBO | FSQ-101 | Síntesis de primera cadena de ADNc |
| RIPA buffer | Beyotime | P0013B | Búfer de lisis celular con inhibidores de proteasa y fosfatasa |
| Recombinant rat interleukin-1β | PeproTech | 400-01B | Inducir respuesta inflamatoria en condrocitos |
| Sangerbox platform | http://vip.sangerbox.com/ | N/A | Análisis de curva ROC |
| Simple Western Automated Western Blot System | ProteinSimple Jess | Jess (model 004-600) | Sistema automatizado de detección de expresión de proteínas |
| Stata 14.0 | Stata | N/A | Metaanálisis |
| Streptomycin | Thermo Fisher Scientific | Antibiótico para cultivo celular | |
| SYBR® Premix Ex Taq™ Kit | Takara | QPK-201 | PCR cuantitativa en tiempo real |
| The RNAfast200 kit | Fastagen Biotech | 220010-100 | Extracción total de ARN de condrocitos |
| Trypsin-EDTA | Gibco | 25200072 | Destaco celular, 0.25% trypsin-EDTA |
Referencias
- David, J. H., Lyn, M., Mabel, C. Osteoarthritis in 2020 and beyond: a Lancet Commission. Lancet. 396 (10264), 1711-1712 (2020).
- Leifer, V. P., Katz, J. N., Losina, E. The burden of OA-health services and economics. Osteoarthritis Cartilage. 30 (1), 10-16 (2022).
- Long, H., et al. Prevalence Trends of Site-Specific Osteoarthritis From 1990 to 2019: Findings From the Global Burden of Disease Study 2019. Arthritis Rheumatol. 74 (7), 1172-1183 (2022).
- Loeser, R., Collins, J., Diekman, B. Aging and the pathogenesis of osteoarthritis. Nat Rev Rheumatol. 12 (7), 412-420 (2016).
- Tang, Y., Wang, Z., Cao, J., Tu, Y. Bone–brain crosstalk in osteoarthritis: pathophysiology and interventions. Trends Mol Med. 31 (3), 281-295 (2025).
- Chen, M., et al. Remodeling the Proinflammatory Microenvironment in Osteoarthritis through Interleukin-1 Beta Tailored Exosome Cargo for Inflammatory Regulation and Cartilage Regeneration. ACS Nano. 19 (4), 4924-4941 (2025).
- Murphy, M., et al. Articular cartilage regeneration by activated skeletal stem cells. Nat Med. 26 (10), 1583-1592 (2020).
- Zhang, H., et al. Mechanical overloading promotes chondrocyte senescence and osteoarthritis development through downregulating FBXW7. Ann Rheum Dis. 81 (5), 676-686 (2022).
- MacMullan, P., McCarthy, G. The meniscus, calcification and osteoarthritis: a pathologic team. Arthritis Res Ther. 12 (3), 116(2010).
- Jarraya, M., et al. Meniscus morphology: Does tear type matter? A narrative review with focus on relevance for osteoarthritis research. Semin Arthritis Rheum. 46 (5), 552-561 (2017).
- Fu, X., et al. Erythropoietin enhances meniscal regeneration and prevents osteoarthritis formation in mice. Am J Transl Res. 12 (10), 6464-6477 (2020).
- Li, C., et al. Integrated Analysis of Transcriptome Changes in Osteoarthritis: Gene Expression, Pathways, and Alternative Splicing. Cartilage. 14 (2), 235-246 (2023).
- Liu, H., et al. Regulation of Chondrocyte Metabolism and Osteoarthritis Development by Sirt5 Through Protein Lysine Malonylation. Arthritis Rheumatol. 77 (9), 1216-1227 (2025).
- Zhou, H., et al. FTO-mediated SMAD2 m6A modification protects cartilage against Osteoarthritis. Exp Mol Med. 56 (10), 2283-2295 (2024).
- Li, Y., et al. A Wnt-induced lncRNA-DGCR5 splicing switch drives tumor-promoting inflammation in esophageal squamous cell carcinoma. Cell Rep. 42 (6), 112542(2023).
- Mann, M., et al. Bromodomain-containing Protein 4 regulates innate inflammation via modulation of alternative splicing. Front Immunol. 14, 1212770(2023).
- Zhang, L., et al. RNF213 loss of function reshapes vascular transcriptome and spliceosome leading to disrupted angiogenesis and aggravated vascular inflammatory responses. J Cereb Blood Flow Metab. 42 (11), 2107-2122 (2022).
- Yan, C., Wan, R., Shi, Y. Molecular Mechanisms of pre-mRNA Splicing through Structural Biology of the Spliceosome. Cold Spring Harb Perspect Biol. 11 (1), (2019).
- Borisek, J., et al. Atomic-Level Mechanism of Pre-mRNA Splicing in Health and Disease. Acc Chem Res. 54 (1), 144-154 (2020).
- Pala, D., et al. Focal adhesion kinase/Src suppresses early chondrogenesis: central role of CCN2. J Biol Chem. 283 (14), 9239-9247 (2008).
- Kim, Y. H., Lee, J. W. Targeting of focal adhesion kinase by small interfering RNAs reduces chondrocyte redifferentiation capacity in alginate bead culture with type II collagen. J Cell Physiol. 218 (3), 623-630 (2009).
- Byun, S., et al. Response splicing quantitative trait loci in primary human chondrocytes identify putative osteoarthritis risk genes. Nat Commun. 16 (1), 1-17 (2025).
- Yang, B., Li, X., Su, Y. Single-cell sequencing and machine learning-based prediction of spliceosome-associated factor 2 may represent potential targets for osteoarthritis. Osteoarthritis Cartilage Open. 8 (2), (2026).
- Will, C., Lührmann, R. Spliceosome structure and function. Cold Spring Harb Perspect Biol. 3 (7), (2011).
- Nakaya, T. Dissection of FUS domains involved in regulation of SnRNP70 gene expression. FEBS Lett. 594 (21), 3518-3529 (2020).
- Zhou, C., et al. Microenvironmental stiffness mediates cytoskeleton re-organization in chondrocytes through laminin-FAK mechanotransduction. Int J Oral Sci. 14 (1), 1-13 (2022).
- Shin, H., et al. Focal Adhesion Assembly Induces Phenotypic Changes and Dedifferentiation in Chondrocytes. J Cell Physiol. 231 (8), 1822-1831 (2016).
- Li, G., et al. Zyxin-involved actin regulation is essential in the maintenance of vinculin focal adhesion and chondrocyte differentiation status. Cell Prolif. 52 (1), 1-14 (2018).
- Bowden, J., et al. Core and adjunctive interventions for osteoarthritis: efficacy and models for implementation. Nat Rev Rheumatol. 16 (8), 434-447 (2020).
- Chen, S., et al. Epidemiological trends and characteristics of osteoarthritis in China during 1990–2021. J Orthop Translat. 51, 218-226 (2025).
- Luo, P., et al. The role of cells and signal pathways in subchondral bone in osteoarthritis. Bone Joint Res. 12 (9), 536-545 (2023).
- Ming, L., Nafiza, H., Jingyi, H., Guangju, Z. Osteoarthritis year in review 2023: metabolite and protein biomarkers. Osteoarthritis Cartilage. 31 (11), 1437-1453 (2023).
- Zeyu, H., Ketao, W., Shenglong, D., Mingzhu, Z. Cross-talk of inflammation and cellular senescence: a new insight into the occurrence and progression of osteoarthritis. Bone Res. 12 (1), 1-17 (2024).
- Ma, J., et al. GYY4137-induced p65 sulfhydration protects synovial macrophages against pyroptosis by improving mitochondrial function in osteoarthritis development. J Adv Res. 71, 173-188 (2025).
- Kiebler, M., Ninkovic, J. RNA biology: Alternative splicing hits synaptic function and behavior. Curr Biol. 32 (23), R1314-R1316 (2022).
- Nikolaou, N., et al. Cytoplasmic pool of U1 spliceosome protein SNRNP70 shapes the axonal transcriptome and regulates motor connectivity. Curr Biol. 32 (23), 5099-5115.e8 (2022).
- Hu, Z., et al. U1 snRNP proteins promote proximal alternative polyadenylation sites by directly interacting with 3' end processing core factors. J Mol Cell Biol. 14 (8), (2022).
- Jobbins, A., et al. Pre-RNA splicing in metabolic homeostasis and liver disease. Trends Endocrinol Metab. , (2023).
- Zheng, Y., Zhong, G., He, C., Li, M. Targeted splicing therapy: new strategies for colorectal cancer. Front Oncol. 13, 1222932(2023).
- Zhang, Y., Hu, W., Li, H. RNA modification-mediated translational control in immune cells. RNA Biol. 20 (1), 603-613 (2023).