Este protocolo describe la producción y purificación recombinante de la hidrofobina SC16 de Escherichia coli y proporciona ensayos basados en fluorescencia para monitorizar su autoensamblaje.
Artículo de método
Producción y purificación recombinante de hidrofobina SC16 a partir de Escherichia coli y monitorización de su autoensamblaje mediante ensayos de fluorescencia
En este artículo
Resumen
Resumen
Las hidrofobinas son pequeñas proteínas anfipáticas que se autoensamblan en interfaces hidrofóbicas-hidrofílicas para formar recubrimientos estables e impermeables sobre esporas fúngicas. Las hidrofobinas de Clase I forman "rodletes" particularmente estables que contienen estructuras ordenadas similares a amiloides que recubren las superficies. Esta inusual química superficial les proporciona aplicaciones potenciales en la administración de fármacos, estabilización de espuma, emulsificación y modificación de superficies. Para producir hidrofobinas, se necesitan protocolos integrales y de alto rendimiento a partir de sistemas de expresión simple. Además, es necesario proporcionar métodos sencillos para caracterizar la función de la hidrofobina tras la producción y purificación recombinante. En este caso, describimos protocolos para la producción y caracterización de SC16, una hidrofobina de clase IB producida por el hongo Schizophyllum commune, que puede expresarse recombinantemente en Escherichia coli y posteriormente purificarse bajo condiciones nativas no reductoras. Esto implica la transformación de un plásmido de expresión que codifica SC16 fusionado con una proteína de fusión N-terminal en E. coli, inducir la expresión de proteínas, lisis celular en condiciones nativas, cromatografía de afinidad y escisión de proteasas para aislar la hidrofobica a rendimientos de ≥5 mg. El autoensamblaje de SC16 puede monitorizarse mediante ensayos de punto final o basados en fluorescencia cinética usando tioflavina T. Ambos ensayos implican incubación de SC16 con mezcla prolongada para promover el autoensamblaje en interfaces aire-agua y se monitorizan mediante mediciones de fluorescencia. En conjunto, estos enfoques proporcionan protocolos simplificados para purificar SC16 y monitorizar su autoensamblaje, y pueden extenderse a otros sistemas que involucren autoensamblaje de proteínas similares.
Introducción
Las hidrofobinas son proteínas anfipáticas activas en la superficie secretadas por hongos que se autoensamblan en interfaces hidrofóbicas-hidrofílicas (por ejemplo, interfaces aire-agua en estructuras fúngicas). En la naturaleza, sus funciones son recubrir esporas y cuerposfructíferos 1,2, haciéndolos resistentes al agua, evitando encharcamientos en canales de aire y facilitando sudispersión 1. Debido a su inusual química superficial, las hidrofobinas tienen diversas aplicaciones industriales, incluyendo recubrimientos para aumentar la biocompatibilidad de implantes yprótesis 3,4,5, tensioactivos biocompatibles para la administración de fármacos y tratamientosmédicos 6,7,8,9,10, y candidatos para capturananoplástica 11.
Las hidrofobicas pueden subdividirse en clase I y clase II, ambas autoensambladas en interfaces hidrofóbicas-hidrofílicas, incluyendo aire–agua, aceite–agua 12,13,14 y plástico–agua 15,16,17. Una característica definitoria de las hidrofobinas de clase I es que forman estructuras "rodlet" altamente estables en las interfaces, conteniendo características ordenadas similares a amiloides (ricas en β láminas)18, lo que las hace especialmente adecuadas para aplicaciones que implican modificación o protección de superficies. En cambio, las hidrofobicas de clase II no forman estructuras similares a amiloides, sino que forman películas que pueden disociarsefácilmente 1,18. Curiosamente, también existe una tercera clase de hidrofobias, con características estructurales conservadas de las clases I y II 18,19. Debido a estas diferencias, es importante monitorizar la autoensamblaje de hidrofobinas para la clasificación y para evaluar el plegamiento y función adecuados de las hidrofobinas producidas recombinantemente.
El autoensamblaje de hidrofobinas puede ser fácilmente monitorizado mediante métodos fluorométricos utilizando tintes de unión a amiloides como la tioflavina T (ThT), que se une a estructuras de β cruzadas presentes en losamiloides 20. ThT contiene un único enlace covalente que separa dos anillos aromáticos que normalmente giran libremente. Al unirse a estructuras de β cruzadas, esta rotación se restringe, resultando en fluorescencia20. Debido a su fluorescencia selectiva, el ThT se utiliza ampliamente para monitorizar el autoensamblaje de hidrofobinas en interfaces aire–agua 21,22,23,24,25,26,27,28. Los ensayos ThT proporcionan información cinética dependiente del tiempo sobre el autoensamblaje dehidrofobinas 23,27,28, ofreciendo ventajas frente a técnicas como la microscopía de fuerza atómica (AFM) y las mediciones de ángulos de contacto, que son de menor rendimiento y menos adecuadas para análisis dependientes del tiempo. Además, ThT presenta un fuerte aumento de fluorescencia al unirse a estructuras de β cruzadas, con una fluorescencia mínima en su formalibre 20. Estas propiedades hacen que los ensayos ThT sean métodos simples y sensibles para monitorizar el autoensamblaje de hidrofobias, que pueden complementarse con técnicas estructurales más intensivas.
Dadas las diversas aplicaciones de las hidrofobinas, es necesario disponer de protocolos accesibles para monitorizar su autoensamblaje. Específicamente, el presente protocolo proporciona un marco para optimizar la purificación y caracterización funcional de las hidrofobinas recombinantes. Anteriormente, Morris y Sunde (2013) describieron protocolos para la expresión recombinante en Escherichia coli, purificación y monitorización basada en ThT del autoensamblaje dehidrofobina 21. Este trabajo amplía esos métodos describiendo un procedimiento modificado para purificar la hidrofobica SC16. SC16 es una hidrofobica de clase I (de Schizophyllum commune) que puede purificarse fácilmente de E. coli sin necesidad de desnaturalización, reducción o reoxidación de enlaces disulfuro. La proteína resultante de SC16 es funcional, como demuestran los ensayos de autoensamblaje en puntos finales y cinéticos basados en ThT que monitorizan la formación de rodillos. El objetivo de este artículo es detallar un protocolo completo y optimizado para la producción recombinante, purificación y ensayos funcionales basados en ThT de la hidrofofina clase IB SC16.
Protocolo
Este estudio no implica participantes humanos, animales vertebrados ni muestreo de tejidos. Por lo tanto, no se requería ninguna aprobación ética.
1. Expresión de hidrofobina SC16 en E. coli
- Transformar las células de SHuffle T7 Express de E. coli mediante un choque térmico a 42°C durante 45 s utilizando un plásmido de expresión pET-21 que codifica un dominio B1 marcado con hexahistidina de la proteína G fusionado a SC16 (H-GB1-SC16).
NOTA: Las células expresas SHuffle T7 fueron seleccionadas por su capacidad para promover la formación correcta de enlacesdisulfuro 29. El plásmido H-GB1-SC16 puede generarse mediante clonación enzimática de restricción como se describióanteriormente 30. - Inocular 2 mL de caldo de lisógeno (LB) que contenga 100 μg mL−1 de ampicilina con una sola colonia. Incubar durante la noche a 37°C con agitación.
- Inocular 1 L de LB (en un matraz de fondo redondo con despejitor de 2,8 L) con 1 mL del cultivo nocturno. Cultivar el cultivo a 37°C con agitación (~120–135 rpm, órbita circular de 19 mm) hasta que la densidad óptica a 600 nm alcance 0,6 ± 0,1.
- Añadir isopropil-β-D-1-tiogalactopiranósido a una concentración final de 0,5 mM para inducir la expresión de H-GB1-SC16. Incubar toda la noche a 20°C con agitación.
NOTA: Esta temperatura se eligió para reducir el riesgo de formación de cuerpos de inclusión y plegamientoincorrecto 31. - Extrae las células por centrifugación a 4000 × g durante 20 minutos. Echa el sobrenadante.
PUNTO DE PAUSA: Guarda el pellet celular a −20°C durante hasta 3 semanas antes de proceder a la purificación. Evita ciclos repetidos de congelación y deshielo.
2. Purificación de la hidrofobina SC16
- Resuspende el pellet celular en 30 mL de tampón de lisis (20 mM tris(hidroximetil)aminometano [Tris], pH 8, 250 mM NaCl).
- Lisa las células incubando la suspensión en un baño maria a 80°C durante 15 minutos. Mezcla suavemente cada 5 minutos durante la incubación.
NOTA: Este paso depende de la estabilidad térmica de SC16 y puede no ser adecuado para otras proteínas.
PRECAUCIÓN: Utiliza guantes resistentes al calor al manipular tubos y baños maria a 80°C. Evita salpicar líquido caliente durante la mezcla y la extracción del tubo. - Centrifuga el lisado celular a 25.000 × g durante 20 minutos a 4°C. Cargar el sobrenadante sobre una columna gravitatoria que contenga 2–3 mL de resina de cromatografía metálica inmovilizada inmovilizada (IMAC) de 2–3 mL.
- Lava la columna con un tampón de lisis que contiene imidazol de 30 mM. Elute proteína usando 10 mL de tampón de lisis que contiene 300 mM de imidazol.
- Diálisa la fracción eluída contra 1 L de tampón que contiene Tris (pH 8; 20 mM) y NaCl (50 mM) durante 3 horas utilizando tubos de diálisis de corte de peso molecular de 3500 kD, agitando a 100 rpm.
NOTA: La velocidad de agitación durante la diálisis puede variar según la configuración (por ejemplo, el volumen del tubo y la geometría del vaso de precipitados). Remueve a las revoluciones mínimas necesarias para inducir una rotación suave de la bolsa de diálisis. - Añadir la proteasa de trombina (proteína de fusión 20 U mg−1 ) directamente a la bolsa de diálisis (10 mL de volumen total de reacción) para cortar la proteína de fusión. Cambia el buffer.
PUNTO DE PAUSA: Tras la adición de proteasa y el reemplazo del tampón, continúa la diálisis durante la noche a 4°C. Reanuda la purificación al día siguiente. Verifica la completación de la división por SDS-PAGE (espera la desaparición de la banda de ~18 kDa y la aparición de bandas en ~10 y ~8 kDa). - Recarga la muestra diálisis en la columna IMAC cargadacon Ni 2⁺. Lavar y eluir con aproximadamente 12 mL cada uno de tampón que contienen 30 mM y 300 mM de imidazol, respectivamente.
- Analizar fracciones recogidas mediante electroforesis en gel de dodecilsulfato de sodio y poliacrilamida (SDS-PAGE) bajo condiciones reductoras (usando β-mercaptoetanol en el tampón de carga). Identificar SC16 por la presencia de una banda en la fracción de lavado al peso molecular esperado (~10 kDa). Diálisa la fracción de lavado que contiene SC16 en su totalidad frente a 1 L de tampón que contiene Tris (pH 8; 20 mM) y NaCl (50 mM) durante 3 horas para eliminar el imidazol residual.
NOTA: SC16 suele detectarse en la fracción de lavado, mientras que H-GB1 suele estar enriquecido en el eluato. También puede haber una pequeña cantidad de SC16 residual en el eluato. - Cuantifiquen el SC16 mediante un método de elección (por ejemplo, análisis de aminoácidos mediante cromatografía líquida de alto efecto, ensayo de Bradford o absorbancia a 280 nm). Con este método, se esperan rendimientos de ≥5 mg de SC16 por litro de cultivo.
NOTA: Nuestro grupo cuantifica rutinariamente SC16 mediante absorbancia a 280 nm usando un coeficiente de extinción previsto de 3480 M−1 cm−1 32 Este es el método preferido para cuantificar SC16 debido a su simplicidad. - Recoger muestras durante la purificación para el análisis SDS-PAGE.
3. Ensayo de fluorescencia en el punto final del autoensamblaje SC16
- Preparar mezclas de reacción triplicadas que contengan 50 μg mL−1 de SC16, 50 mM de NaCl y 20 mM cada una de ácido 2-(N-morfolino)etanolsulfónico (MES), Tris y fosfato de sodio. Prepara con antelación un tampón de stock que contenga MES, Tris y fosfato de sodio ajustado a un pH final de 6,5 mediante la adición gota a gota de HCl concentrado o 1 M NaOH. Añade proteína y NaCl justo antes de empezar el ensayo.
NOTA: Los controles pueden prepararse en este paso. Por ejemplo, incluye controles positivos que contienen SC16 que no sufren rotación extremo a extremo y controles negativos que contienen solo buffer. Se han analizado concentraciones de SC16 de 25 a 100 μg mL−1 , con resultados más consistentes en 50 μg mL−1. Optimiza este parámetro según sea necesario. - Transfiere las mezclas a tubos de 2–5 mL.
NOTA: Asegúrate de que el tubo de muestra esté lleno al 50% de su capacidad para permitir la mezcla adecuada tras la inversión. - Gira los tubos de punta a punta a 20 rpm durante 2 horas. Transfiere 100 μL de cada muestra a una placa negra opaca de fondo de 96 pozos con pozos redondos tipo chimenea.
- Añadir ThT filtrado a una concentración final de 20 μM en todas las muestras.
- Ajusta el lector de microplacas a longitudes de onda de excitación y emisión dentro del rango adecuado para la fluorescenciaThT 33,34,35,36. Ajusta la ganancia a 55 y el tiempo de integración a 20 μs. Mide la intensidad de fluorescencia de cada muestra inmediatamente después del periodo de rotación de 2 horas.
NOTA: Los máximos de excitación y emisión reportados de ThT son 450 nm y 490nm 37, respectivamente. Este experimento utilizó valores de excitación y emisión de 438 y 494 nm, respectivamente, basados en la disponibilidad del filtro óptico. La rotación de extremo a extremo se realizaba utilizando un dispositivo de rotación fabricado.
4. Ensayo de fluorescencia cinética del autoensamblaje SC16
- Preparar mezclas de reacción triplicadas de 100 μL en una placa negra de 96 pozos.
- Incluye 50 μg mL−1 de SC16, 50 mM de NaCl, 20 μM de ThT filtrado y 20 mM de MES, Tris y fosfato de sodio cada uno. Preparar controles negativos que contengan solo ThT y buffer (sin SC16).
- Ajusta el pH del tampón (que contiene Tris, MES y fosfato de sodio) a 5,5, 6,5, 7,5 o 8,5 usando HCl concentrado o 1 M NaOH antes de añadir SC16 y ThT. El sistema de buffer mixto permite ajustar el pH sin cambiar la identidad del buffer.
- Coloca la placa en el lector de microplacas.
- Ajusta las longitudes de onda de excitación y emisión dentro del rango adecuado para la fluorescencia deThT 33,34,35,36.
- Programa el lector para mediciones cíclicas cada 70 s.
- Incluye 60 s de agitación orbital a 432 rpm, seguidos de un periodo de descanso de 10 s por ciclo.
- Ajusta el tiempo de integración a 20 μs y la ganancia a 55.
- Ejecuta el ensayo durante 120 ciclos para monitorizar los cambios de fluorescencia durante 2 horas de agitación.
NOTA: Asegúrese de seleccionar el movimiento orbital; El agitado lineal puede dar resultados de autoensamblaje inconsistentes o subóptimos.
Resultados
La Figura 1 presenta un gel SDS-PAGE teñido con Coomassie que monitoriza la purificación de SC16. Los códigos representan el marcador (M), antes de la inducción (B), después de la inducción (A), fracción soluble (S), flujo directo (F), lavado (W), eluado (E) y diálisis (D). En el primer eluado IMAC, una banda con un peso molecular estimado de ~18 kDa corresponde a la proteína H-GB1-SC16 antes de la clivación de la trombina. Tras la cisión con trombina, no hay proteína en la segunda fracción de flujo directo del IMAC, y hay una banda de ~10 kDa correspondiente a SC16 en el lavado. En el segundo eluato IMAC, hay algo de residuo de SC16 y una proteína más pequeña de ~8 kDa correspondiente a H-GB1. El SC16 purificado se utilizó entonces para ensayos de autoensamblaje de puntos finales y cinéticos. Estos resultados confirman una purificación exitosa de SC16, como indica la presencia de la banda de peso molecular esperada y la separación del socio de fusión H-GB1 tras la clivación de la trombina.
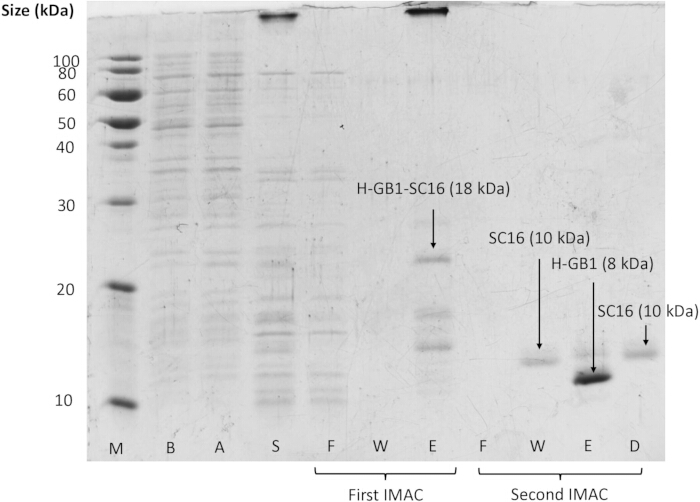
Figura 1. Análisis SDS-PAGE de la purificación de SC16 para la primera (antes de la clivación de trombina) y la segunda (después de la clivación de trombina) separaciones IMAC. Se muestra un marcador de peso molecular (M), junto con muestras recogidas antes de la inducción (B), después de la inducción (A), el sobrenadante de lisis celular (S), el flujo directo (F), el lavado (W) y las fracciones eluadas (E), así como la muestra dializada (D). Por favor, haz clic aquí para ver una versión ampliada de esta figura.
El ensayo ThT en el punto final del autoensamblaje de SC16 presentado en la Tabla 1 revela un aumento de 11 veces en la intensidad de fluorescencia de ThT tras 2 horas de rotación en el laboratorio en comparación con controles que contienen proteínas y que no fueron rotados. Asimismo, no observamos cambios significativos en la intensidad de la fluorescencia al rotar las muestras de tampón. Este aumento de la fluorescencia de ThT al agitar SC16 representa la formación de láminas de β tipo amiloide que indican el autoensamblaje deSC16 24,25. Estos resultados demuestran que el ensayo basado en fluorescencia descrito monitoriza eficazmente el autoensamblaje de SC16 bajo las condiciones probadas.
| Ejemplo | Fluorescencia ThT (cuenta ± SD) |
| SC16 sin rotación | 2679 ± 177 |
| SC16 tras la rotación | 30315 ± 2141 |
| Buffer tras la rotación | 665 ± 888 |
Tabla 1. Mediciones de fluorescencia ThT recogidas tras la rotación extrema a extremo de las muestras de SC16. Las muestras de SC16 (50 μg mL−1) fueron incubadas sin agitación o sometidas a rotación durante 2 horas. Se añadió ThT (20 μM) antes de las mediciones de fluorescencia. La fluorescencia se midió en longitudes de onda de excitación y emisión de 438 y 494 nm, respectivamente, y se informa como conteos en bruto. Los valores se presentan como media ± desviación estándar (DE).
El ensayo de autoensamblaje cinético de SC16 cuando se agita en diferentes tampones durante varias horas se presenta en la Figura 2. Las curvas típicas de autoensamblaje cinético en forma de S para la fibrilación amiloide incluyen retraso característico, crecimiento y periodos de meseta38. Para SC16, no se observa un periodo de retraso sustancial durante las lecturas iniciales, aunque este comportamiento se ha documentado en otras hidrofobias, como EAS21,23. Las curvas de autoensamblaje para cada pH son comparables, con pendientes fuertes y positivas correspondientes a la formación de rodillos. Tras aproximadamente 20 minutos de agitación, la intensidad de la fluorescencia se estabiliza y luego disminuye lentamente. En muestras de control que carecen de SC16, no hay cambios sustanciales en la fluorescencia a lo largo del experimento.
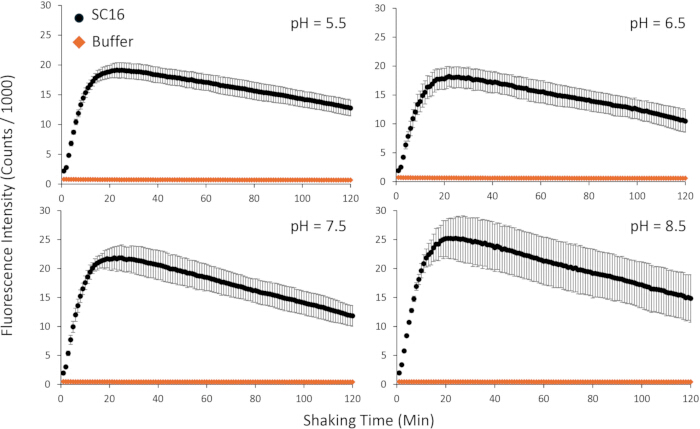
Figura 2. Curvas de autoensamblaje de SC16 medidas mediante un ensayo de fluorescencia cinética de ThT. SC16 fue preparado a 50 μg mL−1 en un tampón multicomponente que contenía 20 μM de ThT, 50 mM NaCl, 20 mM fosfato de sodio, 20 mM de MES y 20 mM Tris. Se realizaron mediciones tras 60 segundos de agitación orbital y un periodo de reposo de 10 segundos. El eje x representa el tiempo de agitación (total de 2 h). La fluorescencia se midió utilizando longitudes de onda de excitación y emisión de 438 nm y 494 nm, respectivamente, y se informa en conteos × 10−3. Las barras de error representan la desviación estándar (n = 3). Los paneles corresponden a pH 5,5 (arriba a la izquierda), 6,5 (arriba a la derecha), 7,5 (abajo a la izquierda) y 8,5 (abajo a la derecha). Por favor, haz clic aquí para ver una versión ampliada de esta figura.
La Figura 3 muestra un ejemplo de resultados subóptimos para el ensayo de autoensamblaje cinético. En este caso, el ensayo se completó tal y como se describe en la sección del protocolo, pero usando un ajuste de agitación "lineal" en lugar del ajuste de agitación "orbital".
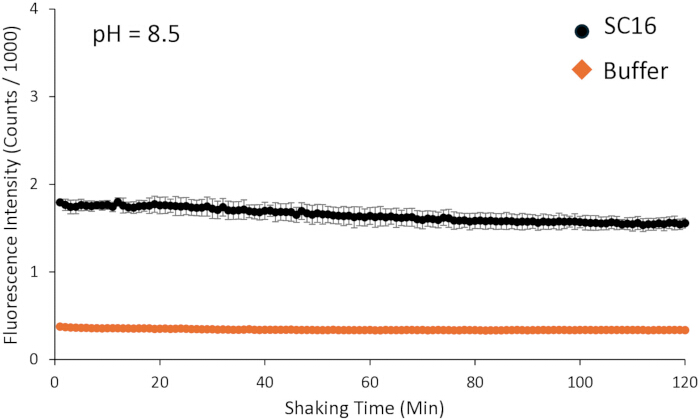
Figura 3. Ejemplo de datos de autoensamblaje cinético subóptimos de SC16 obtenidos utilizando el ensayo de fluorescencia cinética ThT. En este caso, el agitado se realizó usando un ajuste lineal en lugar del movimiento orbital. Las muestras se prepararon según lo descrito para la Figura 2. Las mediciones se tomaron tras 60 segundos de agitación lineal y un periodo de reposo de 10 segundos. El eje x representa el tiempo de agitación (total de 2 h). La fluorescencia se midió utilizando longitudes de onda de excitación y emisión de 438 nm y 494 nm, respectivamente, y se informa como conteos × 10−3. Las barras de error representan la desviación estándar (n = 3). Por favor, haz clic aquí para ver una versión ampliada de esta figura.
Discusión
Aquí resumimos los protocolos para la expresión y purificación de la hidrofobica SC16, así como para ensayos de fluorescencia de bajo y alto rendimiento de autoensamblaje SC16, cada uno con ventajas y desventajas distintas. Estos flujos de trabajo pueden aplicarse a sistemas relacionados para monitorizar el autoensamblaje de proteínas. En este protocolo, el calor se utiliza para lisar células antes de la purificación de SC16, a diferencia de la mayoría de protocolos que emplean métodos más tradicionales para lisar E. coli. Hemos comprobado que H-GB1-SC16 es soluble y caloríficamente estable hasta 80°C, y que la lisis térmica sirve como un paso inicial de limpieza de la muestra, precipitando proteasas no estables al calor y otras proteínas contaminantes dentro del lisatocelular 39. Sin embargo, SC16 representa un caso especial, ya que las hidrofobinas suelen expresarse de forma insoluble en cuerpos de inclusión 12,21,40. Cuando se expresan como cuerpos de inclusión, normalmente se requieren condiciones de desnaturalización, seguidas de un replegue utilizando los protocolosestablecidos 21, 40 y 41.
En este protocolo, SDS-PAGE se utiliza para evaluar la purificación de SC16 en cada paso, incluyendo el pellet celular antes y después de la inducción, la fracción soluble tras la lisis celular y todas las fracciones columnas posteriores. Esto se ilustra en la Figura 1; sin embargo, en comparación con H-GB1, la banda correspondiente a SC16 es relativamente tenue. Hemos comprobado que, para muchas hidrofobias, incluida SC16, lograr una tinción constante e intensa con Coomassie es un reto. SC16 suele aparecer como una banda de intensidad media cuando se utiliza β-mercaptoetanol como agente reductor (Figura 1). En algunos casos, puede ser necesario tintar con plata para visualizar las hidrofobinas con mayor claridad.
Se pueden utilizar ensayos de fluorescencia de punto final y cinética para monitorizar el autoensamblaje de SC16. El ensayo ThT en el punto final es ventajoso porque proporciona una evaluación rápida y sencilla del autoensamblaje. Además del aumento de la fluorescencia tras 2 horas de rotación en el laboratorio, el autoensamblaje suele ir acompañado de una visible opacidad blanca en el tubo de reacción. Este ensayo utiliza un rotador de mesa sencillo para mezclar, lo que minimiza el desgaste de los componentes del lector de microplacas. En nuestra experiencia, este ensayo es relativamente insensible a parámetros instrumentales, como los ajustes de agitación en un lector de microplacas.
El ensayo cinético ThT proporciona información más detallada sobre el autoensamblaje. Por ejemplo, el autoensamblaje de SC16 no depende apreciablemente de las condiciones de tampón24, aunque se observa una mayor variación entre réplicas en valores de pH más altos. Sin embargo, este comportamiento no es universal entre las hidrofobinas, y se sabe que factores como la concentración de sales, el pH 24,27,42 y los aditivos (por ejemplo, detergentes o alcoholes) influyen en la autoensamblaje dehidrofobinas 27,28. Por ejemplo, la hidrofobina SLH4 muestra un autoensamblaje más eficiente con baja fuerza iónica y pHbajo 24, mientras que se ha reportado que el autoensamblaje HFBII es independiente del pH y la concentraciónde electrolitos 42, similar al SC16. Otros estudios han correlacionado los efectos de los aditivos en la formación de rodillas con cambios en la tensiónsuperficial 27,28. Dadas estas diferencias, es importante considerar la composición del tampón y el pH de cada sistema y monitorizar su influencia en la curva de autoensamblaje, incluyendo la fase de retraso, el crecimiento y las regiones de meseta.
Una limitación importante es que el ensayo cinético ThT es altamente sensible a los parámetros instrumentales del lector de microplacas y puede variar entre instrumentos. Por ejemplo, se observa una diferencia sustancial en el autoensamblaje de SC16 entre los ajustes orbitales (movimiento circular) y lineales (de ida y vuelta) (Figura 2 y Figura 3, respectivamente). Aunque los ensayos basados en ThT proporcionan un método eficaz para modelar el autoensamblaje de hidrofobia, presentan limitaciones inherentes debido a la selectividad variable, que puede dar lugar a señales falsos positivos o falsosnegativos 43. Además, la dispersión de luz de los agregados de hidrofobina puede influir en la intensidad de fluorescenciamedida 44, reduciendo la precisión de las mediciones. La dilución de la muestra y la reducción de la longitud del camino pueden ayudar a mitigar estos efectos.
Los protocolos resumidos aquí proporcionan métodos eficaces para purificar y monitorizar el autoensamblaje de SC16. El ensayo final es sencillo y depende menos de la instrumentación, mientras que el ensayo cinético proporciona información detallada resuelta en el tiempo, aunque con mayor sensibilidad a los parámetros instrumentales. Este protocolo describe un enfoque sencillo para purificar SC16 y puede ser aplicable a otras hidrofobinas correctamente plegadas expresadas en E. coli. Aunque los ensayos ThT descritos tienen limitaciones inherentes, proporcionan información accesible de autoensamblaje dependiente del tiempo en comparación con técnicas como AFM o mediciones únicas de ángulos de contacto. Estos flujos de trabajo pueden adaptarse para proteínas relacionadas y son especialmente relevantes para aplicaciones en desarrollo de biomateriales, administración de fármacos y otras áreas donde entender el autoensamblaje de proteínas es importante.
Divulgaciones
Los autores no declaran que no hay intereses financieros o no financieros en competencia.
Agradecimientos
Los autores reconocen la financiación del Fondo New Frontiers in Research (Curso de Exploración; NFRFE-2023-00322) y el Consejo de Investigación en Ciencias Naturales e Ingeniería de Canadá (NSERC; Grant de descubrimiento; RGPIN-2024-06440). El IED cuenta con el apoyo de una Beca de Posgrado de Canadá – Programa de Máster (NSERC). RH cuenta con el apoyo de los donantes de Molly Appeal a través del Programa de Becas de Posgrado 2024 de la Facultad de Medicina de Dalhousie y la Beca de Posgrado de Nueva Escocia (nivel doctoral).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| 2-(N-morpholino)ethanesulfonic acid (MES) | Sigma-Aldrich | 145224-94-8 | Componente de tampón para ensayos de autoensamblaje |
| Tubo de poliestireno de fondo redondo de 5 mL | Falcon | 352054 | Usado para ensayos de autoensamblaje de bajo rendimiento |
| Microplaca de poliestireno negra de 96 pocillos | Grenier | 655076 | Usado para mediciones de fluorescencia en lector de microplacas |
| Solución de acrilamida/Bis-acrilamida (29:1) (40%) | BioShop | ACR004.500 | Usado para preparar geles de SDS-PAGE |
| Ágar | BioShop | AGR002.1 | Ágar usado para hacer placas LB resistentes a ampicilina |
| Ampicilina | IBI Scientific | IB02040 | Antibiótico usado en placas de LB-ágar |
| Matraces Fernbach de 2,8 L con deflectores | Fisher Scientific | 955239 | Usados para el crecimiento de cultivos bacterianos de gran volumen |
| β-mercaptoetanol | TCI Chemicals | 60-24-2 | Agente reductor usado en la preparación de muestras de SDS-PAGE |
| Columna (columna de gravedad de gravedad de 1,5 cm de diámetro) | Bio-Rad | 7371522 | Usado para la purificación por afinidad de níquel |
| Tubo de diálisis (MWCO de 3500 kDa) | BioDesign | D302 | Usado para el intercambio de tampón durante la purificación |
| Filtro de emisión | Edmund Optics | 84080 | Usado para ensayos ThT (494 nm, paso de banda de 20 nm) |
| Filtro de excitación | Edmund Optics | 67012 | Usado para ensayos ThT (438 nm, paso de banda de 24 nm) |
| Lector de microplacas de fluorescencia | Tecan | Infinite F200 Pro | Usado para medir la intensidad de fluorescencia de ThT |
| Baño de agua con placa caliente | Lab Fish | HS5C | Usado para el montaje del baño de agua con monitoreo de temperatura |
| Ácido clorhídrico (HCl) | Fisher Chemical | A144-212 | Usado para el ajuste de pH de los tampones |
| Imidazol | TCI Chemicals | 288-32-4 | Usado en la purificación IMAC (tampones de lavado y elución) |
| Isopropil β-D-1-tiogalactopiranósido (IPTG) | Sigma-Aldrich | 367-93-1 | Induce la expresión de proteínas en E. coli |
| Caldo LB (Lennox) | BioShop | LBL405.5 | Medio de crecimiento para cultivos bacterianos |
| Centrífuga refrigerada de baja velocidad | Beckman Coulter | 360291 | Usada para pelletizar células antes del almacenamiento |
| Perlas de agarosa NTA de níquel | GoldBio | H-350-50 | Resina usada para la purificación por afinidad de proteínas marcadas con His |
| Plásmido SC16 | BioBasic | N/A | Construcción de ADN personalizada que codifica la proteína de fusión H-GB1-SC16 |
| E. coli competente SHuffle T7 Express | New England Biolabs | C3029J | Cepa hospedadora usada para la expresión de proteínas recombinantes |
| Cloruro de sodio (NaCl) | BioShop | SOD001.5 | Componente del tampón y regulador de fuerza iónica |
| Hidróxido de sodio (NaOH) | Fisher Chemical | SS255-1 | Usado para el ajuste de pH de los tampones |
| Fosfato de sodio | BioShop | SPD579.1 | Componente del tampón para mantener el pH |
| Espectrofotómetro | Pharmacia Biotech | 5096 | Usado para la cuantificación de SC16 |
| Tioflavina T (ThT) | Acros Organics | 2390-54-7 | Colorante fluorescente usado para monitorear el autoensamblaje de proteínas |
| Proteasa trombina | Sigma-Aldrich | 04-04-9002 | Usada para la clivación de la proteína de fusión H-GB1-SC16 |
| Tris(hidroximetil)aminometano (Tris) | BioShop | TRS001.5 | Tampón usado en soluciones de purificación y ensayo |
| Centrífuga refrigerada de alta velocidad | Sorvall | 46915 | Usada para aclarar el lisado después de la lisis celular |
| Configuración de SDS-PAGE | Bio-Rad | 1658000EDU | Usado para preparar y ejecutar geles de SDS-PAGE |
Reimpresiones y permisos
