En este estudio, mediante la comparación de los resultados de detección de 24 suspensiones bacterianas cultivadas de Helicobacter pylori (H. pylori) obtenidos mediante métodos de detección de antígenos y PCR digital, analizamos sus correlaciones para investigar su significado en la caracterización de materiales de referencia de H. pylori y en la evaluación diagnóstica in vitro.
Artículo de investigación
Correlación entre el título de antígeno de H. pylori y la cuantificación mediante reacción en cadena de la polimerasa digital: Evaluación analítica de aislamientos cultivados e inactivados
En este artículo
Resumen
Resumen
La estandarización del diagnóstico de Helicobacter pylori (H. pylori) sigue siendo un desafío debido a la heterogeneidad de los ensayos de detección disponibles. La inmunocromatografía detecta antígenos específicos de H. pylori, pero proporciona únicamente resultados cualitativos, susceptibles a interferencias causadas por proteínas bacterianas solubles no específicas mediante unión no específica o inhibición competitiva. Por el contrario, la PCR digital (dPCR) permite la cuantificación precisa de copias de ADN genómico, identificando tanto bacterias viables como no viables. En este estudio se compararon los títulos finales obtenidos mediante inmunocromatografía (valores semicuantitativos calculados como el recíproco de la mayor dilución seriada detectable en diluciones dobles) con los números de copias de ácido nucleico cuantificados mediante dPCR. Se sometieron veinticuatro suspensiones bacterianas de H. pylori, cultivadas durante 72 h a 37 °C en agar Brucella suplementado con 5 % de sangre de oveja desfibrinada en condiciones microaerófilas (85 % N2, 10 % CO2, 5 % O2), a pruebas paralelas de antígenos y mediciones mediante dPCR. Se aplicaron correlación de Pearson y regresión lineal para la evaluación estadística. Se observó una correlación positiva significativa entre el título de antígeno y el número de copias genómicas (r = 0,536, n = 24, P = 0,007). Sin embargo, el bajo coeficiente de determinación (R2 = 0,287) demostró un poder predictivo limitado, ya que el título de antígeno explicó únicamente el 29 % de la varianza medida por dPCR y no permite realizar predicciones robustas a partir de una sola muestra. Los perfiles discordantes con alta dPCR y bajo título pueden originarse en restos bacterianos no viables o en ADN genómico libre. Los ensayos basados en antígenos y los basados en ácidos nucleicos cuantifican analitos biológicamente relacionados, pero no intercambiables. Se sugiere una caracterización multiparamétrica que combine unidades formadoras de colonias, títulos de antígenos y números de copias genómicas para el desarrollo de materiales de referencia y la validación de ensayos diagnósticos. Este trabajo resalta la necesidad de directrices consensuadas específicas para H. pylori que permitan resolver las discrepancias diagnósticas.
Introducción
Helicobacter pylori (H. pylori) es un bacilo gramnegativo microaerófilo que coloniza comúnmente el tracto gastrointestinal humano, particularmente en el antro gástrico. Constituye la causa principal de gastritis crónica, úlceras pépticas y cáncer gástrico1,2. La transmisión de H. pylori entre humanos ocurre principalmente por vías oral-oral o fecal-oral, y es ampliamente prevalente a nivel mundial, con tasas de infección que varían según las regiones. En países desarrollados, la tasa de infección es aproximadamente del 50 %, mientras que en algunos países en desarrollo puede alcanzar hasta el 80 %3. En 1994, la Organización Mundial de la Salud (OMS) clasificó a H. pylori como carcinógeno del grupo 1 para el cáncer gástrico4. Factores clave de virulencia como CagA (antígeno asociado a citotoxina A) y VacA (citotoxina vacuolizante A) inducen inflamación crónica y daño epitelial, contribuyendo a los mecanismos patogénicos que sustentan su clasificación como carcinógeno del grupo 1. En 2018, el número de casos de cáncer atribuibles a la infección por H. pylori alcanzó los 810 000, superando el número combinado de casos de cáncer cervical y hepático causados por el virus del papiloma humano (VPH), el virus de la hepatitis B (VHB) y el virus de la hepatitis C (VHC)5. Esta estadística subraya el riesgo sustancial de cáncer asociado a H. pylori, que, si no se trata, podría conducir al cáncer gástrico con una probabilidad aproximada del 1 %–3 % según algunas investigaciones. La alta prevalencia mundial de la infección por H. pylori hace que la cuantificación precisa —no solo la detección— sea una prioridad de salud pública, ya que la evaluación exacta de la carga bacteriana puede orientar las decisiones terapéuticas y ayudar a evitar tratamientos de erradicación innecesarios o fallidos. Por lo tanto, la detección y cuantificación precisas de H. pylori tienen gran importancia para las investigaciones epidemiológicas, la selección de planes de tratamiento y la evaluación de la eficacia terapéutica.
Dada la considerable carga de cáncer atribuible a H. pylori, la detección y cuantificación precisas son fundamentales para la vigilancia epidemiológica, la selección de tratamientos y el seguimiento terapéutico. Los métodos no invasivos actuales incluyen la prueba de antígeno en heces (SAT), la prueba de aliento con urea y los ensayos moleculares. Aunque la PCR digital (dPCR) ofrece alta precisión y cuantificación absoluta, su aplicación clínica está limitada por mayores costos, complejidad técnica y requisitos de instrumentación en comparación con la SAT. Esta disparidad es la razón por la cual es necesario estudiar la correlación entre ambos métodos, con el objetivo de mejorar la estandarización de la SAT utilizando la dPCR como referencia cuantitativa.
La PCR digital (dPCR), una tecnología emergente de cuantificación absoluta, puede detectar directamente el número absoluto de copias de genes diana sin depender de una curva patrón. En la investigación de H. pylori, la dPCR se ha utilizado para la cuantificación bacteriana en muestras de mucosa gástrica, saliva y heces6,7.
En el desarrollo, evaluación de la calidad y regulación de reactivos de diagnóstico in vitro, la preparación y calibración de materiales de referencia son fundamentales para garantizar la exactitud, comparabilidad y trazabilidad de los resultados. Para los reactivos bacterianos de diagnóstico in vitro (como los reactivos de detección de antígenos/anticuerpos de H. pylori), los materiales de referencia a menudo deben contener cepas o muestras clínicas con concentraciones bien definidas o unidades de actividad. El método tradicional de cuantificación bacteriana es la Unidad Formadora de Colonias (UFC/mL), que refleja directamente el número de bacterias viables con capacidad proliferativa y que se utiliza frecuentemente para la asignación de valores de sustancias bacterianas estándar, evaluación de la sensibilidad del reactivo y comparación metodológica8. Aunque la UFC aún se utiliza ampliamente, presenta limitaciones evidentes en cuanto al tiempo de detección, consumo de materiales y costos de mano de obra9.
Con el uso más amplio de tecnologías diagnósticas in vitro, métodos moleculares como la dPCR ahora cuantifican patógenos con mayor precisión y sensibilidad. Al mismo tiempo, métodos inmunológicos como la titulación de antígenos se aplican cada vez más en la práctica clínica. Sin embargo, en operaciones prácticas, la mayoría de los aislamientos clínicos recolectados o las muestras estándar preparadas son muestras inactivadas o muestras conservadas a largo plazo, lo que dificulta o impide realizar el cultivo bacteriano viable y el recuento de UFC10. Al preparar los materiales de referencia, para cumplir con los requisitos de bioseguridad y garantizar la estabilidad a largo plazo de los materiales, se debe realizar la inactivación. Por lo tanto, los métodos cuantitativos basados en antígenos o ácidos nucleicos se convierten en medios esenciales para la determinación de valores8,11.
Esto plantea una pregunta práctica sobre la correlación y equivalencia de estos dos enfoques cuantitativos distintos: al utilizar la detección de antígenos y la PCR digital para evaluar sustancias patrón, ¿existe una relación estable y cuantificable entre los resultados de estos dos métodos? Experimentos preliminares que emplearon un conjunto limitado de muestras de H. pylori inactivadas mostraron una correlación positiva constante entre la intensidad de la señal de los ensayos inmunocromatográficos y los números de copias de ADN cuantificados mediante PCR digital. Se planteó la hipótesis de que existe una correlación positiva significativa y constante entre el título de antígeno de H. pylori, medido mediante ensayos inmunocromatográficos, y el número de copias de ADN, cuantificado mediante PCR digital, en muestras bacterianas inactivadas. Si dicha correlación existe, permitiría convertir resultados cualitativos basados en antígenos en equivalentes cuantitativos de ácidos nucleicos. Esto proporcionará una base importante para la evaluación del desempeño de reactivos, el establecimiento de estándares, la asignación de materiales de referencia y la interpretación de resultados de pruebas clínicas cuando no sea factible el cultivo tradicional.
Actualmente, la investigación sobre la relación entre los resultados de antígenos de H. pylori y el contenido de ácido nucleico es insuficiente, y existe una falta de datos sistemáticos que respalden trabajos de revisión, regulación y estandarización. Para probar esta hipótesis, este estudio realizó pruebas paralelas en 24 suspensiones bacterianas cultivadas de H. pylori con el fin de analizar sistemáticamente la correlación entre la titulación de antígeno detectada mediante el método inmunocromatográfico coloidal y el resultado cuantitativo absoluto de la dPCR. Con base en nuestros hallazgos, presentamos opiniones de referencia sobre la evaluación del desempeño de reactivos para la detección de H. pylori y la asignación de valores a materiales de referencia.
Protocolo
Todos los aislamientos de Helicobacter pylori incluidos en este estudio fueron originalmente aislados de biopsias gástricas y muestras fecales humanas por el Quinto Hospital Afiliado de la Universidad de Zhengzhou, que proporcionó suspensiones bacterianas completamente procesadas y anonimizadas para nuestros experimentos in vitro. Todos los procedimientos originales (recolección de muestras clínicas, aislamiento bacteriano y criopreservación inicial) fueron aprobados por el Comité de Ética del Quinto Hospital Afiliado de la Universidad de Zhengzhou (Número de Aprobación Ética: KY2026080). Se obtuvo consentimiento informado de todos los participantes antes de la recolección de muestras, y todos los procedimientos cumplieron estrictamente con la Declaración de Helsinki y las directrices éticas nacionales pertinentes para la investigación biomédica. Toda la información identificable del paciente fue eliminada permanentemente por el hospital de origen antes de la transferencia de las muestras, y no se puede deducir la identidad de ningún paciente individual a partir de los materiales experimentales ni de los resultados reportados en este estudio.
El presente estudio no requiere aprobación ética independiente adicional ni consentimiento informado. Todos los experimentos solo implican ensayos in vitro utilizando suspensiones bacterianas anonimizadas, sin acceso a muestras humanas originales, registros clínicos de pacientes ni información personal privada. De acuerdo con las normativas nacionales sobre ética en la investigación biomédica, la investigación in vitro no interventora que utiliza aislamientos microbianos completamente anonimizados cumple con los criterios para la exención ética. La aprobación ética original otorgada por el Quinto Hospital Afiliado de la Universidad de Zhengzhou ya incluye todas las aplicaciones académicas secundarias legítimas de estas cepas anonimizadas, lo cual ha sido confirmado oficialmente por el comité de ética institucional.
Todos los experimentos H. pylori in vitro se realizaron en laboratorios con certificación vigente de bioseguridad (Nivel de Bioseguridad 2, BSL-2, Registro de Bioseguridad de Laboratorios de la Comisión de Salud del Distrito Dongcheng de Beijing [2020] N.º 059), siguiendo los procedimientos operativos estándar institucionales y cumpliendo con todos los requisitos de revisión y autorización en materia de bioseguridad. La aprobación de bioseguridad para este estudio cubre todos los procedimientos que involucran material de H. pylori inactivado por calor, incluido el trabajo con material que no está completamente inactivado (es decir, que contiene organismos viables residuales caracterizados mediante PCR de viabilidad). Se mantuvo estricta adherencia a las prácticas microbiológicas estándar, los requisitos de equipo de protección personal (EPP) y los procedimientos de descontaminación de residuos durante todo el estudio. Todas las muestras bacterianas se inactivaron adecuadamente antes de su eliminación, de acuerdo con las directrices institucionales para la gestión de residuos biopeligrosos. Los detalles de todos los reactivos, equipos y software utilizados para el análisis estadístico se enumeran en la Tabla de Materiales.
Cepa y cultivo
PRECAUCIÓN: H. pylori es un patógeno humano del Grupo de Riesgo 2. Todas las manipulaciones de cultivos viables (inoculación, incubación y preparación de suspensiones) deben realizarse dentro de una cabina de seguridad biológica certificada en instalaciones BSL-2, utilizando bata de laboratorio, guantes y protección ocular.
La inactivación por calor a 56 °C durante 25 min reduce drásticamente, pero no elimina por completo, los organismos viables (ver sección 1); las suspensiones parcialmente inactivadas deben seguir manipulándose bajo condiciones de BSL-2. Todos los desechos biológicos y los materiales contaminados deben autoclavarse (121 °C, ≥30 min) o desinfectarse de acuerdo con los procedimientos institucionales de bioseguridad antes de su eliminación. El trabajo con BSL-2 descrito aquí fue autorizado bajo la misma declaración de bioseguridad (Declaración de Bioseguridad de Laboratorio de la Comisión de Salud del Distrito Dongcheng de Beijing [2020] No. 059).
El Helicobacter pylori Las cepas utilizadas en este estudio fueron 24 suspensiones bacterianas cultivadas, que inicialmente se obtuvieron de biopsias gástricas y especímenes fecales por el Quinto Hospital Afiliado de la Universidad de Zhengzhou y luego se transfirieron en forma de suspensión bacteriana a la colección de cepas del In Vitro Departamento Diagnóstico de Enfermedades Infecciosas en los Institutos Nacionales para el Control de Medicamentos (NIDC), Beijing, China, y todo el trabajo experimental de este estudio se realizó en el NIDC (Beijing, China). Estas cepas se inocularon en placas de medio Brucella suplementadas con 5% de sangre de oveja desfibrinada y se cultivaron en condiciones microaerófilas (85% N₂, 10% CO₂₂, 5 % O₂₂) en 37 °C durante 72 h. Este tiempo de cultivo corresponde a la fase estacionaria de crecimiento, durante la cual la expresión de antígenos de cada cepa es relativamente estable. Luego se recolectaron las suspensiones bacterianas.
La inactivación por calor se realizó utilizando un baño de agua digital a 56 °C durante 25 min. Este tratamiento se llevó a cabo para cumplir con los requisitos de bioseguridad y garantizar la estabilidad a largo plazo de los materiales de referencia. La inactivación por calor a 56 °C durante 25 min reduce drásticamente la viabilidad bacteriana, pero no elimina por completo todos los organismos viables, como se confirmó mediante análisis posterior de PCR de viabilidad, que midió una fracción viable residual mediana del 4,6 % (rango: 0,00 %–33,00 %) en las 24 suspensiones bacterianas cultivadas (véase la sección 6 de Resultados y Discusión). La aprobación de bioseguridad para este estudio incluye el trabajo con material que no está completamente inactivado (véase la Declaración Ética y de Bioseguridad). Se considera mínimo el posible impacto de la inactivación por calor en la detección de antígenos, ya que el tratamiento térmico se encuentra por debajo del umbral de desnaturalización de la mayoría de los antígenos superficiales de H. pylori; sin embargo, podría afectar la integridad de algunos antígenos proteicos termolábiles. Para la cuantificación de ADN, la inactivación por calor no degrada el ADN genómico y, de hecho, podría mejorar la eficiencia de extracción al romper las membranas celulares.
Detección de antígenos
Las 24 suspensiones bacterianas recolectadas se diluyeron 100 veces con PBS para preparar muestras de detección de antígenos. Una dilución inicial 100 veces ajusta la concentración de antígeno al rango de detección lineal de los kits comerciales y minimiza la interferencia de la matriz, garantizando así resultados de detección confiables y precisos. La dilución también conserva el volumen de la muestra. Estas muestras se probaron utilizando ocho kits registrados de detección de antígenos de H. pylori (Tabla 1), incluyendo el método de oro coloidal, el método de látex y el método inmunocromatográfico. Si el resultado era positivo, la muestra diluida se diluía seriamente (1:2, 1:4, 1:8, etc.) y se ensayaba hasta que el resultado fuera negativo. La mayor relación de dilución que permanecía positiva se registraba y definía como la «relación final de dilución positiva del antígeno» (por ejemplo, 1:64). Las diluciones seriadas al doble se prepararon en solución salina tamponada con fosfatos (PBS, 0,01 M, pH 7,2–7,4). Tras la aplicación de la muestra, cada tira se incubó a temperatura ambiente durante 15–20 minutos antes de la lectura; el resultado se leía visualmente por un operador entrenado comparando con la línea de control, y el punto final se registraba como la mayor dilución que mostraba una línea de prueba visible. Dado que las tiras de oro coloidal se leen visualmente, el umbral de corte depende del operador.
Para cada muestra analizada mediante múltiples kits comerciales de detección de antígenos, la titulación final se define como la mediana de todas las titulaciones individuales de los kits. Dado que los ocho kits utilizados en este estudio fueron diseñados con antígenos diana y principios de detección heterogéneos, no se utilizó el coeficiente Kappa de Cohen ni el CV% para cuantificar la concordancia entre los kits, ya que estos indicadores suponen la existencia de un patrón de referencia común. Por lo tanto, la variabilidad observada entre los kits refleja la heterogeneidad biológica y analítica real, y no errores de medición. La mediana, como medida robusta de tendencia central, puede resistir eficazmente las desviaciones específicas de cada kit. En las 24 muestras, la dispersión dentro de la muestra entre las titulaciones más alta y más baja varió de 2 a 16 veces (mediana, 4 veces): seis muestras difirieron en 2 veces, catorce en 4 veces, tres en 8 veces y una en 16 veces entre los kits. Las titulaciones mínima, mediana y máxima por kit para cada muestra se indican en la Tabla Suplementaria 1.
Detención cuantitativa por PCR digital
Las 24 suspensiones bacterianas recolectadas fueron diluidas 500 veces con PBS y luego utilizadas como muestras para la detección cuantitativa mediante dPCR. La cuantificación absoluta de estas muestras diluidas fue realizada por cuatro laboratorios de dPCR (Tabla 2). La dPCR se llevó a cabo utilizando conjuntos específicos de cebadores y sondas comerciales, dirigidos a secuencias genómicas conservadas de H. pylori. Los kits de detección de dPCR utilizados en este estudio son kits de reactivos universales aplicables a múltiples patógenos y múltiples dianas. Cada plataforma diseñó y optimizó de forma independiente las secuencias específicas de cebadores/sondas y las regiones génicas diana, que constituyen su propiedad intelectual principal. Estas secuencias no fueron reveladas a los usuarios finales. Solo se nos informó que la diana específica de detección para H. pylori es una región genómica conservada que ha sido verificada como capaz de permitir una detección específica. Las secuencias del gen 23S rRNA de 24 cepas de Helicobacter pylori han sido depositadas en NCBI GenBank bajo el número de acceso del BioProject PRJNA1520048. Estas secuencias fueron enviadas para confirmación de la identidad de las cepas y no corresponden a la diana de cuantificación mediante dPCR. Dado que el diseño de cebadores/sondas, la química de amplificación y el conteo de particiones basado en la distribución de Poisson son propiedad exclusiva de cada plataforma, estos pasos dependen de la plataforma y no pueden reproducirse sin acceso al fabricante; en contraste, los procedimientos de dilución de la muestra, replicación de la extracción y agregación de datos descritos anteriormente son independientes de la plataforma y están completamente especificados. Los números absolutos de copias se calcularon utilizando el algoritmo de distribución de Poisson implementado en el software de análisis exclusivo del instrumento. Los parámetros computacionales específicos y el código fuente son propiedad del fabricante y no fueron revelados a los usuarios finales. Finalmente, el número absoluto de copias (copias/mL) del gen diana en la solución original se calculó en función de la distribución de Poisson y el factor de dilución.
Cuatro laboratorios independientes de dPCR (Sniper, Jiangsu Bioperfectus Technologies Co., Ltd., Ustar Biotechnologies Ltd. y TargetingOne) participaron en este estudio, utilizando cada uno kits de extracción y reactivos de dPCR propios, optimizados para su plataforma instrumental, todos dirigidos a secuencias genómicas conservadas de H. pylori. Cada plataforma recibió la suspensión bacteriana sin diluir y preparó las muestras según su propio protocolo: Ustar utilizó la suspensión sin diluir directamente, mientras que Sniper, Jiangsu Bioperfectus Technologies Co., Ltd. y TargetingOne la diluyeron 500 veces en PBS antes de la extracción. Para cada aislado en cada plataforma, se realizaron dos extracciones independientes de ácidos nucleicos a partir de la misma suspensión bacteriana diluida 500 veces, y cada extracto se analizó por triplicado, obteniendo seis mediciones por aislado y por plataforma (con una excepción en Ustar, donde una extracción produjo solo dos réplicas válidas). Una reacción se clasificó como inválida y se excluyó si el número de gotas positivas estaba por debajo del límite inferior de detección del instrumento o si el control sin plantilla mostraba amplificación inespecífica; las reacciones inválidas se repitieron una vez, y los fracasos persistentes condujeron al descarte de toda la extracción. Los datos brutos específicos de cada plataforma se proporcionan en la Tabla Suplementaria 1.
La agregación de datos siguió un procedimiento de dos niveles: primero, se promediaron todas las mediciones brutas válidas (copias/µL) dentro de cada plataforma y se convirtieron a la concentración original de la suspensión bacteriana sin diluir (copias/mL) utilizando fórmulas de conversión específicas para cada plataforma; segundo, se promediaron las cuatro concentraciones obtenidas por plataforma para cada aislado (media aritmética) para obtener el valor final único del número de copias. Este marco garantiza una contribución equitativa de cada plataforma independientemente de la variación entre réplicas dentro de la plataforma, al tiempo que mitiga los sesgos sistemáticos inherentes a instrumentos o sistemas de reactivos individuales.
Cada suspensión bacteriana cultivada se cuantificó en paralelo en cuatro plataformas de PCR digital, y se calculó el coeficiente de variación (CV) de los números de copia transformados mediante log₁₀ entre plataformas para cada aislado, con el fin de evaluar la variabilidad interlaboratorio. Los resultados correspondientes se presentan en la sección de Resultados.
Análisis estadístico
El H. pylori La concentración de antígeno se definió como el recíproco del mayor factor de dilución de la muestra en el que se observó un resultado positivo (por ejemplo, una dilución de 1:64 corresponde a una concentración de 64). Para cada aislado, las ocho concentraciones de antígeno específicas de cada kit se agruparon mediante su mediana, y las cuatro concentraciones de dPCR específicas de cada plataforma se agruparon mediante su media aritmética, con el fin de obtener un único valor representativo por aislado para el análisis de correlación posterior. Esta estrategia de reducción de datos está justificada metodológicamente porque: (i) los ocho kits de antígenos detectan el mismo analito utilizando principios de inmunoensayo comparables, y la mediana proporciona un estimador robusto frente a lecturas atípicas esporádicas; (ii) cada una de las cuatro plataformas de dPCR cuantifica una secuencia conservada H. pylori locus genómico, y la media aritmética de las estimaciones de concentración con distribución logarítmico-normal proporciona una tendencia central insesgada; y (iii) esta agregación se alinea con el objetivo principal del estudio—evaluar la concordancia entre las modalidades de cuantificación basadas en el título de antígeno y en el ADN a nivel de aislado—, en lugar de evaluar el rendimiento analítico entre kits o entre plataformas. La correlación entre el título de antígeno y la cuantificación por dPCR (copias/mL) se evaluó primero mediante análisis de correlación de Pearson. Ambas variables presentan distribución aproximadamente normal tras la transformación logarítmica (asimetría: log10 dPCR = −0,66; log2 título de antígeno = −0,60; asimetría del residuo de la regresión = −0,16), cumpliendo así los supuestos para la correlación de Pearson. El título de antígeno se transformó mediante log2 para reflejar la linealización de una dilución seriada por duplicado, mientras que los resultados de la dPCR se transformaron mediante log10, lo cual también se ajusta al formato de presentación del estándar de carga bacteriana. Posteriormente, para evaluar la asociación lineal, se realizaron análisis de correlación de Pearson y de regresión lineal utilizando el título de antígeno transformado mediante log2 y los resultados de la dPCR transformados mediante log10. Para todos los análisis, un nivel de significancia (α) de 0,05 se aplicó, con P < 0,05 considerado estadísticamente significativo. Todos los análisis estadísticos se realizaron utilizando la plataforma en línea de análisis estadístico SPSSPRO.
Resultados
Comparison of H. pylori antigen titer and dPCR absolute quantification results
Among the total of 24 cultured bacterial suspensions, the antigen titer ranged from 8 to 256, with a median of 32 (Table 1). The dPCR quantification results ranged from 2.67 × 10⁷ copies/mL to 2.04 × 10⁹ copies/mL, with a median of log₁₀ = 8.61 (≈4.09 × 10⁸ copies/mL) (Table 2). The relationship exhibited non-linear characteristics in the raw data, suggesting a power-law or exponential association, which justified the subsequent logarithmic transformations applied to both antigen titer and dPCR quantification values.
Linear association between log-transformed antigen titer and dPCR quantitative results
To test whether there is a significant correlation between the results of the two detection methods, we applied logarithmic transformation and performed Pearson correlation analysis, as both variables are approximately normally distributed after log transformation. As shown in Figure 1, after transformation, the antigen titer (log2-transformed) and the absolute quantitative result of dPCR (log10-transformed) exhibited a significant moderate positive linear correlation (r = 0.536, n = 24, P = 0.007).
Quantitative modeling of the relationship between antigen titer and dPCR copy number
To quantify the relationship between the two detection methods and assess the potential for mutual prediction, we applied linear regression analysis to the log-transformed data, so as to utilize the regression model to predict bacterial load through antigen titer in the future. The analysis reveals a linear relationship between log2 (antigen titer) and log10 (dPCR), yielding the equation: log10(dPCR) = 0.1588 × log2(titer) + 7.7988 (R2 = 0.287). The regression coefficients (with standard errors and 95% confidence intervals) were: slope 0.1588 ± 0.053 (95% CI 0.048–0.270) and intercept 7.7988 ± 0.292 (95% CI 7.193–8.404); the residual standard error was 0.318 log10 units, and the overall regression was significant (F(1,22) = 8.84, P = 0.007). This indicates that for every doubling of the antigen titer, the dPCR copy number only increases by 1.441 times (100.1588). However, for a given antigen titer, the 95% prediction interval of the dPCR results can span nearly two orders of magnitude (for example, at a titer of 1:32, the prediction interval is approximately 8.3 × 10⁷ to 1.85 × 10⁹copies/mL). This indicates that in practical applications, the antigen titer alone cannot accurately predict the copy number of nucleic acid in a single sample, but using this model may provide a coarse estimation of the order of magnitude for group-level comparisons, though it is limited for individual sample prediction due to the moderate explanatory power (R2 = 0.287).
Inter-platform variability of dPCR quantification and sensitivity analysis of the correlation
Interlaboratory variability was assessed on log10-transformed concentrations to account for the log-normal distribution of microbial quantification data. The CV% across the four platform-derived log10 concentrations ranged from 0.9% to 8.3% (median 1.8%, mean 2.5%) across 24 isolates. One outlier (Hp06, CV = 8.3%) showed a >30-fold discrepancy between Sniper (5.93 × 10⁸ copies/mL) and TargetingOne (1.50 × 10⁷ copies/mL); excluding this isolate, CVs ranged from 0.9% to 6.4%. To ensure that this outlier did not drive the observed antigen–dPCR correlation, a sensitivity analysis was performed excluding Hp06, which yielded r = 0.479, R2 = 0.230, and P = 0.021 (n = 23) — comparable to the primary analysis including all 24 isolates — confirming that the headline correlation does not depend on this isolate. This dispersion reflects systematic differences among platforms in extraction efficiency, reagent sensitivity, and instrument calibration rather than random measurement error, which supports cross-platform averaging to reduce platform-specific bias.
Defining and classifying results using dual-method thresholds
Based on the analyses above and on exploratory, dataset-specific criteria, this study set the median titer of antigen detection at 1:32 as the threshold for high antigen detection, due to the non-normal distribution of antigen titer data, and selected the actual median log₁₀(dPCR) = 8.61 (≈4.09 × 10⁸ copies/mL) as the threshold for high nucleic acid content. These thresholds are exploratory, dataset-specific cutoffs derived from cultured isolate data and do not represent validated clinical diagnostic criteria. Consequently, any application of these cutoffs to other sample collections or analytical contexts would require re-derivation from the corresponding data rather than direct transfer.
Using the exploratory thresholds (antigen titer ≥ 1:32 as high, ≤ 1:16 as low; dPCR log₁₀ ≥ 8.61 as high nucleic acid load), the four-quadrant classification of the 24 cultured bacterial suspensions (Figure 2, Table 3) is as follows: 9 samples (Hp03, Hp04, Hp11, Hp13, Hp18, Hp19, Hp21, Hp22, Hp25) fall into the high antigen–high nucleic acid category (37.5%); 3 samples (Hp09, Hp26, Hp27) are classified as low antigen–high nucleic acid (12.5%); 8 samples (Hp01, Hp02, Hp05, Hp08, Hp10, Hp14, Hp15, Hp17) exhibit high antigen–low nucleic acid (33.3%); and 4 samples (Hp06, Hp07, Hp12, Hp20) belong to the low antigen–low nucleic acid category (16.7%). Because the 24 isolates were divided into six titer groups with an average of only 4 samples per group, formal inter-group comparison (e.g., Kruskal-Wallis testing) would lack sufficient statistical power; therefore, only descriptive summaries of dPCR quantitative results across titer groups are reported.
Residual viable fraction after heat inactivation (viability PCR)
To quantify residual viable bacteria following heat inactivation, a viability PCR reagent system was used for all 24 isolates. Briefly, each heat-inactivated suspension (200 µL) was incubated with the membrane-impermeable Viability PCR Reagent (10 µM final concentration) at 37 °C for 75 min, with a parallel reagent-omitted control (−VR) processed identically. The reagent was then chemically inactivated by adding Viability PCR Neutralization Buffer (20 µL, 10×) and incubating at room temperature for 15 min. Genomic DNA was extracted from both the +VR and −VR aliquots, and dPCR was performed on each extract; the viable fraction was calculated as the ratio of +VR to −VR copy numbers × 100%. The median viable fraction was 4.6% (range 0.00%–33.00%; full per-isolate results in Supplementary Table 2). The viable percentage did not correlate significantly with antigen titer (r = 0.03, P = 0.90) or with dPCR copy number (r = 0.37, P = 0.08).
DATA AVAILABILITY:
The 23S rRNA gene sequences of 24 Helicobacter pylori strains have been deposited in NCBI GenBank under BioProject accession PRJNA1520048. These sequences were used solely for strain identity confirmation and do not represent the dPCR quantification target, which is a manufacturer-proprietary conserved genomic region, as described in Protocol.
The raw kit-specific antigen titers from eight commercial colloidal gold immunochromatographic kits and the platform-specific dPCR quantitative values from four digital PCR instruments cannot be deposited in a public repository because of commercial sensitivity, manufacturer confidentiality agreements, and regulatory restrictions associated with CE-marked/National Medical Products Administration-approved in vitro diagnostic products.
Additional restricted data may be made available confidentially when necessary, subject to the applicable confidentiality and regulatory restrictions.
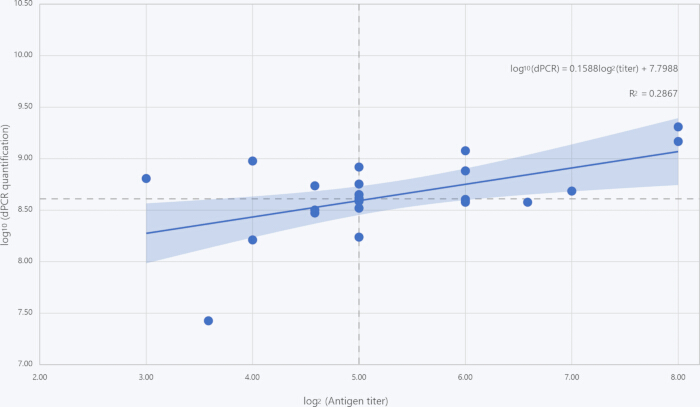
Figure 1: Correlation between Helicobacter pylori antigen titer and digital polymerase chain reaction (dPCR) quantification. A scatter plot with a regression line is presented to illustrate the relationship between antigen titer and DNA copy numbers in 24 cultured bacterial suspensions (n = 24). Antigen titers were ascertained via a colloidal gold immunochromatographic assay with visual reading. Serial dilutions of each sample were examined, and the titer is expressed as the highest dilution factor that yields a positive result (presented on the x-axis as log2-transformed, dimensionless values). DNA copy numbers were quantified through dPCR and are presented on the y-axis as log10-transformed concentrations (log10 copies/mL). Each dot represents an individual bacterial suspension sample. The blue solid line represents the linear regression fit. The shaded band around the regression line represents the 95% confidence interval of the fitted mean response. The dashed vertical and horizontal lines indicate the exploratory classification thresholds (log₂ titer = 5, i.e., 1:32; log₁₀ dPCR = 8.61, i.e., 4.09 × 10⁸ copies/mL) used in Figure 2 and Table 3. Correlation was evaluated using the Pearson correlation coefficient, resulting in r = 0.536, P = 0.007, R2 = 0.287, which indicates a statistically significant positive correlation between the two methods. Please click here to view a larger version of this figure.
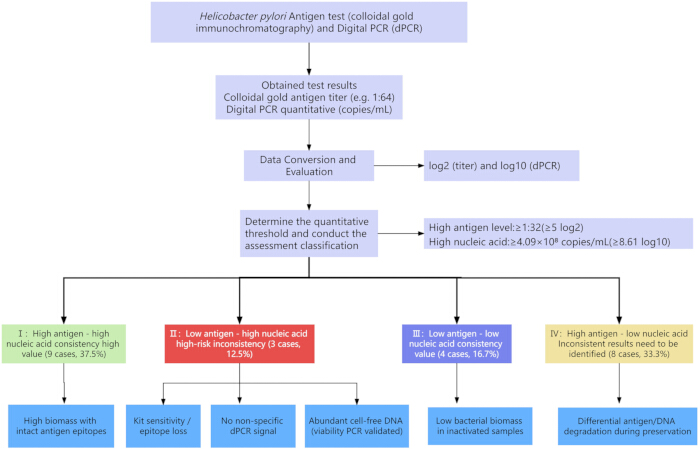
Figure 2: Analytical classification framework for H. pylori testing combining antigen test results with dPCR quantification. This figure depicts the four-quadrant classification of 24 cultured bacterial suspensions (n = 24) based on the concordance between immunochromatographic antigen titer and dPCR quantitative results. Using exploratory, dataset-specific thresholds (antigen titer ≥ 1:32 as high, ≤ 1:16 as low; dPCR log₁₀ ≥ 8.61 as high nucleic acid load), samples are classified into: high antigen–high nucleic acid (n = 9, 37.5%), high antigen–low nucleic acid (n = 8, 33.3%), low antigen–high nucleic acid (n = 3, 12.5%), and low antigen–low nucleic acid (n = 4, 16.7%). These thresholds are exploratory cutoffs derived from cultured isolate data and do not represent validated clinical diagnostic criteria. The classification framework illustrates the agreement and discordance between immunological and molecular detection methods. Categories with discrepancies may reflect factors such as antigen stability, bacterial viability, or DNA copy number variation. This framework is intended for analytical comparison purposes and does not constitute clinical diagnostic or treatment recommendations. Please click here to view a larger version of this figure.
| No. | Detection reagent | Manufacturer |
| 1 | Helicobacter pylori antigen detection kit (colloidal gold method) | Bioneovan Co., Ltd |
| 2 | Gastric Helicobacter pylori (HP) Antigen Detection Kit (Colloidal Gold Method) | Shanghai Chemtron BIOTECH Co., Ltd |
| 3 | Helicobacter pylori antigen detection kit (colloidal gold method) | Jiangsu Mole Bioscience Co., Ltd |
| 4 | Helicobacter pylori antigen detection kit (colloidal gold method) | Hangzhou Genesis Biodetecton & Biocontrol Ltd |
| 5 | Helicobacter pylori antigen detection kit (colloidal gold method) | JIANGSU COWIN BIOTECH CO., LTD |
| 6 | Helicobacter pylori antigen detection reagent (latex method) | ABON Biopharm (Hangzhou) Co. Ltd |
| 7 | Helicobacter pylori (HP) antigen detection reagent (immunochromatographic method) | GUANGZHOU WONDFO BIOTECH CO., LTD |
| 8 | Helicobacter pylori antigen detection kit (colloidal gold method) | Beijing Core Technology Co., Ltd |
Table 1: List of Helicobacter pylori Antigen Detection Reagents and Their Manufacturers. The table enumerates eight commercially accessible immunochromatographic assays for the detection of H. pylori antigen, which were assessed in this study. For each product, the No. (as supplied by the manufacturer), the commercial designation of the detection reagent, and the manufacturer's name are presented. These kits were chosen on the basis of their extensive utilization in clinical diagnostics and point-of-care testing. All information was retrieved from the manufacturers' product inserts and official websites (accessed in March 2026). The inclusion of these reagents does not signify an endorsement; they are representative of the diversity of available tests.
| No. | Instrument model | Digital PCR Platforms |
| 1 | DQ24 | Sniper |
| 2 | Bio Rad QX200 Droplet Digital PCR | Jiangsu Bioperfectus Technologies Co., Ltd |
| 3 | DQ24 Pro | Ustar Biotechnologies (Hangzhou) Ltd |
| 4 | TD-1 Digital PCR System | TargetingOne |
Table 2: List of Digital PCR (dPCR) Platforms and Instrument Models. This table enumerates four laboratory platforms equipped with dPCR systems, along with the corresponding instrument models employed for testing. These platforms were chosen in consideration of their technological diversity and representativeness of the current implementation of dPCR. All information is provided by each respective platform. The inclusion of these platforms does not signify an endorsement; they simply represent the scope of existing dPCR systems.
| Type | Number of cases | Proportion | Sample number |
| High antigen - High nucleic acid | 9 | 37.5% | Hp03, Hp04, Hp11, Hp13, Hp18, Hp19, Hp21, Hp22, Hp25 |
| Low antigen - High nucleic acid | 3 | 12.5% | Hp09, Hp26, Hp27 |
| Low antigen - Low nucleic acid | 4 | 16.7% | Hp06, Hp07, Hp12, Hp20 |
| High antigen - Low nucleic acid | 8 | 33.3% | Hp01, Hp02, Hp05, Hp08, Hp10, Hp14, Hp15, Hp17 |
Table 3: Classification and Proportion of Antigen Test and Nucleic Acid Test Results in This Study. This table classifies 24 cultured bacterial suspensions according to the concordance between antigen titer (determined by immunochromatographic assay, expressed as the highest dilution factor resulting in a positive result) and absolute quantitative digital polymerase chain reaction (dPCR) results (expressed as log₁₀ copies/mL). Using an antigen titer cutoff of 1:32 (high ≥ 1:32, low ≤ 1:16) and a dPCR quantification cutoff of 4.09 × 10⁸ copies/mL (log₁₀ = 8.61) as exploratory, dataset-specific thresholds, isolates were classified into four subgroups: High Antigen-High Nucleic Acid, Low Antigen–High Nucleic Acid, High Antigen–Low Nucleic Acid, and Low Antigen-Low Nucleic Acid. Among the 24 samples, 9 were categorized as High Antigen–High Nucleic Acid (37.5%; Hp03, Hp04, Hp11, Hp13, Hp18, Hp19, Hp21, Hp22, Hp25), 3 as Low Antigen–High Nucleic Acid (12.5%; Hp09, Hp26, Hp27), 8 as High Antigen–Low Nucleic Acid (33.3%; Hp01, Hp02, Hp05, Hp08, Hp10, Hp14, Hp15, Hp17), and 4 as Low Antigen–Low Nucleic Acid (16.7%; Hp06, Hp07, Hp12, Hp20). For each category, the table shows the number of cases (n), the proportion relative to the total sample size (%), and the sample numbers within each category. This classification illustrates the agreement and discordance between immunological and molecular detection methods; categories with discrepancies may reflect factors such as antigen stability, bacterial viability, or DNA copy number variation, offering insights for the interpretation of analytical test results.
Supplementary Table 1: Aggregated dataset of antigen detection and dPCR quantification for the 24 Helicobacter pylori isolates. Sheet 1 (Antigen Detection): per-kit endpoint titers from the eight commercial colloidal gold immunochromatographic kits for each isolate, with the per-sample minimum, median, and maximum titer and within-sample fold range. Sheet 2 (Digital PCR Quantitative Detection): platform-specific dPCR concentrations (copies/mL) for each isolate, with inter-platform summary statistics (median, minimum, maximum, and CV% of log₁₀-transformed concentrations). Sheet 3 (Correlation and Regression Analysis): strain-level log₂-transformed antigen titers and log₁₀-transformed dPCR concentrations, Pearson correlation and linear regression results (r, R2, regression equation), sensitivity analysis excluding the outlier Hp06, and detailed regression statistics (standard errors, 95% confidence intervals, residual standard error, F-statistic, and P-value). Kit-specific and platform-specific identifiers are anonymized for commercial confidentiality; the dataset contains all values required to reproduce Figures 1–2 and Table 3.Please click here to download this file.
Supplementary Table 2: Viability PCR results for the 24 Helicobacter pylori isolates. Per-isolate dPCR copy numbers of the viability reagent–treated (+VR) and reagent-omitted (−VR) aliquots after heat inactivation at 56 °C for 25 min, with the calculated viable fraction (%) and equivalent ΔCq for each isolate. The median viable fraction across all isolates was 4.6% (range 0.00%–33.00%).Please click here to download this file.
Discusión
En este estudio de 24 aislamientos cultivados de H. pylori, el título de antígeno inmunocromatográfico y el número de copias genómicas por dPCR mostraron una correlación positiva moderada pero significativa (r = 0,536, P = 0,007); sin embargo, el título de antígeno explicó solo el 29 % de la varianza en el número de copias por dPCR (R2 = 0,287), por lo que ambas medidas están relacionadas pero no son intercambiables. La principal limitación de este estudio es su pequeño tamaño muestral (n = 24), lo que restringe el poder estadístico y explica el carácter exploratorio de los umbrales de clasificación utilizados a continuación.
Este estudio analizó cuantitativamente el título de antígeno en H. pylori cultivos y los números de copia de ácidos nucleicos detectados por dPCR, revelando una correlación moderada aunque significativa entre los resultados de detección de estos dos métodos (r = 0,536, P = 0,007). Aunque se observa una correlación significativa entre ambos métodos a nivel poblacional, en la práctica clínica es frecuente encontrar discrepancias a nivel individual. Esto se debe a que los diferentes objetivos de detección reflejan características biológicas distintas de los patógenos. Específicamente, las pruebas de antígenos detectan proteínas que podrían persistir tras la eliminación bacteriana, mientras que las pruebas de ácidos nucleicos detectan ADN que podría permanecer en niveles bajos incluso después de la eliminación de bacterias viables. Esta discordancia ha sido ampliamente documentada en diversas enfermedades infecciosas. Por ejemplo, en el diagnóstico clínico de la infección por Clostridioides difficile, algunos portadores presentan resultados positivos en la detección del gen de la toxina pero negativos en la detección del antígeno de la proteína de la toxina, lo que conduce a un diagnóstico erróneo como persona infectada y provoca un tratamiento excesivo y la aparición de resistencia a fármacos. Por lo tanto, la Sociedad de Enfermedades Infecciosas de América (IDSA)12 distinguía claramente el significado clínico de "detección de toxinas" y "detección de genes de toxinas" para Clostridioides difficile en las guías. No es suficiente diagnosticar la infección únicamente mediante pruebas de ácido nucleico, y se recomienda adoptar métodos que puedan detectar directamente la toxina activa. Además, en la neumonía adquirida en la comunidad tras el tratamiento con antibióticos, la carga de ADN bacteriano en el esputo del paciente disminuye rápidamente, mientras que el antígeno urinario permanece positivo tras la recuperación y persiste durante varias semanas hasta varios meses13. Fenómenos similares también se observan en el diagnóstico y tratamiento de H. pylori infección. En 2022, los Laboratorios de la Clínica Mayo evaluaron que, en 223 pacientes de seguimiento tras el tratamiento con antibióticos, la PCR fue relativamente sensible para detectar ADN residual de bajo nivel en muestras fecales. Algunos pacientes, aunque clínicamente recuperados y con resultados negativos en antígenos, aún presentaron resultados positivos por PCR durante varias semanas14. Todos estos hallazgos confirman además las diferencias biológicas entre los distintos objetivos de detección.
En este estudio, la identificación de una correlación cuantitativa y equivalencia entre el título antigénico de H. pylori detectado mediante el método inmunocromatográfico y los valores de cuantificación por dPCR ofrece orientación práctica para la caracterización de materiales de referencia de H. pylori y para la evaluación de reactivos de diagnóstico in vitro. 1) Promover la mejora del modelo de evaluación del rendimiento del producto: Actualmente, la evaluación clínica de reactivos para la detección del antígeno de H. pylori adopta una comparación ciega y sincrónica con «estándares de oro» clínicos como la histología, el cultivo o la prueba de la ureasa15. Esta investigación propone que las entidades reguladoras exijan a las empresas aportar datos de correlación pertinentes entre sus resultados de prueba y métodos cuantitativos de ácido nucleico en los materiales de solicitud durante el proceso de revisión, y que definan claramente el desempeño de sus productos en el «rango de resultados discordantes», con el fin de reflejar de manera más realista la capacidad de detección del producto en escenarios clínicos complejos y definir de forma más completa el LOD del reactivo. 2) Esto proporciona un enfoque novedoso para la asignación de materiales de referencia bacterianos: los materiales de referencia para control de calidad y calibración pueden transformarse de un único valor «CFU» a «valores característicos multidimensionales»8 que incluyan el título antigénico y el número de copias de ácido nucleico. El modelo de regresión establecido en este estudio puede ofrecer una estimación aproximada del orden de magnitud de la relación entre estos dos valores, aportando una base cuantitativa para el uso de materiales de referencia y para comparaciones interlaboratorio.
Recomendamos que los fabricantes incluyan no solo el límite de detección (LOD) en unidades analíticas (por ejemplo, UFC/mL o título de antígeno), sino también su equivalencia en copias genómicas —determinada mediante PCR digital (dPCR)—, para que los resultados puedan compararse y alinearse entre laboratorios y plataformas. La presentación de resultados en estas dos unidades es coherente con los requisitos de trazabilidad metrológica de la norma ISO 175118 y con el marco para la evaluación de la capacidad de detección del CLSI EP17-A216.
Las posibles razones para la aparición de muestras de «bajo antígeno–alto ácido nucleico» son las siguientes: 1) Variación genética de la cepa: si se sustituye el aminoácido en el epítopo antigénico, o si la proteína de secreción se bloquea durante el transporte y la secreción, puede producirse un fenómeno de «escape» en la detección del antígeno17. 2) La dPCR está diseñada para dirigirse y amplificar secuencias genéticas conservadas. El gen específico objetivo de la dPCR en este estudio no fue revelado en la documentación del fabricante. Sin embargo, los kits comerciales de detección de antígenos pueden dirigirse a diferentes antígenos de H. pylori (por ejemplo, VacA, ureasa, proteínas flagelares o antígenos celulares completos), y cualquier desajuste entre el gen objetivo de la dPCR y el antígeno reconocido por un kit determinado podría manifestarse como una discordancia cuantitativa en los cuatro cuadrantes del diagrama de dispersión: alta dPCR/bajo antígeno, baja dPCR/alto antígeno, concordancia alta-alta o concordancia baja-baja, en lugar de discrepancias binarias positivo/negativo18. 3) Limitaciones del método de detección: la tecnología de detección de antígenos está limitada por concentraciones extremadamente bajas o extremadamente altas de antígenos, lo que debilitará la señal debido a una afinidad insuficiente con los anticuerpos o a una sobresaturación, y también se ve afectada por la matriz de la muestra. 4) Asimetría en el rendimiento del límite de detección: el límite inferior de detección (LOD) de la dPCR puede alcanzar 10–100 copias/mL, mientras que el límite de detección del método inmunocromatográfico coloidal para la ureasa es aproximadamente 104–105 UFC/mL. Cuando la cantidad de bacterias se encuentra en el valor crítico, es propenso a ocurrir el fenómeno de «bajo antígeno–alto ácido nucleico». 5) La influencia del estado de infección en los resultados clínicos es significativa, particularmente al distinguir infecciones bacterianas de virales. En el proceso de infección, el número de copias del gen y el nivel de expresión del antígeno no presentan una relación constante de correspondencia. Tras un tratamiento exitoso, los niveles de ácido nucleico pueden disminuir rápidamente, mientras que la eliminación del antígeno puede retrasarse durante algún tiempo19.
Las suspensiones bacterianas utilizadas en este estudio se obtuvieron tanto de especímenes de biopsia gástrica como de muestras fecales, representando entornos matriciales distintos con diferentes perfiles de interferencia. Los aislados derivados de biopsias gástricas están en gran parte libres de inhibidores de la PCR asociados con las heces, pero podrían estar sujetos a exposición residual a pepsina durante el procesamiento de las muestras. En contraste, las muestras fecales contienen inhibidores de la PCR (por ejemplo, sales biliares, polisacáridos complejos, productos de degradación de la hemoglobina) que pueden reducir la eficiencia de amplificación y provocar una cuantificación por dPCR subestimada, así como proteasas intestinales que podrían degradar los antígenos diana incluso cuando el ADN bacteriano permanece intacto. Estos efectos específicos de la matriz actúan independientemente de los mecanismos de desajuste en la región diana descritos anteriormente, e indican que los protocolos de preparación y la validación de métodos deben adaptarse al tipo de espécimen al interpretar discrepancias cuantitativas entre diferentes muestras clínicas.
Para cuantificar experimentalmente la proporción de bacterias viables frente a no viables tras la inactivación por calor, se realizó una PCR de viabilidad utilizando un sistema de reactivos de PCR de viabilidad en los 24 aislados cultivados. Este reactivo funciona de manera análoga al monoazida de propidio (PMA): penetra selectivamente en células con membranas dañadas y modifica covalentemente su ADN genómico, bloqueando así la amplificación posterior. El porcentaje de bacterias viables se calculó mediante la fórmula: Porcentaje viable = (copias de ADN/µL tratadas con reactivo de viabilidad (VR)) / (copias de ADN/µL sin VR) × 100. En todos los aislados, la fracción viable mediana tras la inactivación por calor fue del 4,6 % (rango: 0,00 %–33,0 %), lo que confirma que nuestra inactivación térmica de 56 °C durante 25 minutos reduce drásticamente la viabilidad bacteriana, aunque no logra eliminar completamente los organismos viables. Estos datos de viabilidad respaldan firmemente nuestra interpretación de que los perfiles discordantes de alta dPCR y bajo título de antígeno provienen principalmente del ADN libre residual y del ADN presente en partículas bacterianas no viables, y no de H. pylori intactos y viables. Los resultados completos de la cuantificación de viabilidad para las 24 cepas se resumen en la Tabla Suplementaria 2.
En este estudio, la clasificación en cuatro cuadrantes (basada en umbrales exploratorios y específicos del conjunto de datos) reveló que 8 muestras presentaron alto antígeno–bajo ácido nucleico y 4 muestras pertenecieron al grupo de bajo antígeno–bajo ácido nucleico, junto con 9 categorías concordantes alta–alta y 3 baja–alta. La presencia de muestras con alto antígeno–bajo ácido nucleico (n = 8) sugiere que la expresión de antígenos y el contenido de ácido nucleico no siempre coinciden, incluso en cultivos puros. Los 24 aislamientos se recolectaron en la fase estacionaria de crecimiento (cultivo de 72 h; véase la sección 1 del Protocolo). En la fase estacionaria, la replicación del ADN ha cesado en gran parte, mientras que los antígenos estructurales y metabólicos persisten o incluso continúan acumulándose; esta desacoplamiento por fase de crecimiento ofrece una base biológica plausible para la asimetría entre la clase abundante de alto antígeno–bajo ácido nucleico (n = 8) y la clase pequeña de bajo antígeno–alto ácido nucleico (n = 3), aunque por sí solo no puede descartar otros mecanismos, como diferencias entre cepas en la expresión de antígenos o lisis parcial durante la inactivación por calor. La existencia de muestras con bajo antígeno–alto ácido nucleico (n = 3) confirma que una baja titulación de antígenos no corresponde inevitablemente a una baja carga de ácido nucleico, lo que demuestra que la prueba de ácido nucleico complementa la prueba de antígenos en escenarios específicos. Estos umbrales son exploratorios y específicos del conjunto de datos, y no representan criterios clínicos diagnósticos validados.
Este estudio tiene la limitación del pequeño tamaño de la muestra (n = 24), lo que hace que el poder estadístico sea insuficiente para respaldar un análisis de subgrupos robusto. La muestra se dividió en seis grupos según el título, con un promedio de solo 4 muestras en cada grupo, por lo que las comparaciones formales entre grupos carecen del poder estadístico suficiente para detectar diferencias significativas. Por lo tanto, no se aplicó la prueba de Kruskal-Wallis, para evitar presentar resultados estadísticos inferenciales con poder insuficiente. Además, todas las muestras fueron aislados cultivados y no cubrieron los efectos de matriz más complejos presentes en muestras clínicas como la mucosa gástrica, las heces o la saliva.
Divulgaciones
Los autores no tienen nada que revelar.
No se utilizaron herramientas de inteligencia artificial en la redacción, edición, análisis estadístico, desarrollo de código o preparación de figuras de este manuscrito.
CONTRIBUCIONES DE LOS AUTORES:
Todos los autores confirmaron sus respectivas contribuciones a este trabajo. A continuación se enumeran los roles individuales de cada autor. Todos los autores leyeron y aprobaron el manuscrito final presentado y asumen plena responsabilidad por la exactitud e integridad de los datos de investigación. Wenwen Sun: Investigación, Curación de datos, Análisis formal, Metodología, Redacción del borrador, Adquisición de fondos; Xiaona Han: Investigación, Metodología; Jin Zhang: Investigación, Metodología; Xinxin Duan: Investigación, Metodología; Tingting Li: Conceptualización, Supervisión; Manyu Li: Conceptualización, Supervisión, Redacción – revisión y edición; Haiwei Zhou: Conceptualización, Supervisión, Redacción – revisión y edición.
Agradecimientos
Este estudio está financiado por la Fundación de Investigación para el Desarrollo Juvenil de los Institutos Nacionales para el Control de Drogas (NIDC) (Número de subsidio: 2025C5).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Mezcla maestra de sonda dPCR 2X Plus (Rox) | Sniper | RT021096A | Reactivo de detección cuantitativa de PCR digital |
| Kit de extracción de ADN genómico bacteriano | Tiangen Biochemical Technology (Beijing) Co., Ltd. | Y2213/DP302-02 | Extracción de ácido nucleico bacteriano |
| Sistema Bio-Rad QX200 de PCR digital por gotas | Jiangsu Bioperfectus Technologies Co., Ltd. | QX200 | Detección cuantitativa de PCR digital |
| Máquina integrada de PCR digital | Sniper | DQ24 | Detección cuantitativa de PCR digital |
| Máquina integrada de PCR digital | Ustar Biotechnologies (Hangzhou) Ltd. | DQ24 | Detección cuantitativa de PCR digital |
| Baño de agua digital | Yiheng Scientific Instrument Co., Ltd. | DK-8D | Inactivación térmica de suspensiones bacterianas a 56 °C |
| Primer directo | Sangon Biotechnology (Shanghai) Co., Ltd. | / | Amplificación de ácido nucleico por PCR digital |
| Kit de detección de antígeno de Helicobacter pylori gástrico (método de oro coloidal) | Shanghai Chemtron Biotech Co., Ltd. | B202301020 | Detección de antígeno de H. pylori |
| Medio de agar para Helicobacter pylori (sólido) | Qingdao Haibo Biotechnology Co., Ltd. | HB8647 | Medio de cultivo para H. pylori |
| Kit de detección de antígeno de Helicobacter pylori (método de oro coloidal) | Bioneovan Co., Ltd. | 202403001 | Detección de antígeno de H. pylori |
| Kit de detección de antígeno de Helicobacter pylori (método de oro coloidal) | Jiangsu Mole Bioscience Co., Ltd. | 20240310 | Detección de antígeno de H. pylori |
| Kit de detección de antígeno de Helicobacter pylori (método de oro coloidal) | Hangzhou Genesis Biodetection & Biocontrol Ltd. | GG230601021 | Detección de antígeno de H. pylori |
| Kit de detección de antígeno de Helicobacter pylori (método de oro coloidal) | Jiangsu Cowin Biotech Co., Ltd. | 28223 | Detección de antígeno de H. pylori |
| Kit de detección de antígeno de Helicobacter pylori (método de oro coloidal) | Beijing Core Technology Co., Ltd. | 2415810 | Detección de antígeno de H. pylori |
| Reactivo de detección de antígeno de Helicobacter pylori (método inmunocromatográfico) | Guangzhou Wondfo Biotech Co., Ltd. | W028402001 | Detección de antígeno de H. pylori |
| Reactivo de detección de antígeno de Helicobacter pylori (método de látex) | ABON Biopharm (Hangzhou) Co., Ltd. | 0000805308 | Detección de antígeno de H. pylori |
| Incubadora tri-gas Heracell | Thermo Fisher Scientific | N/A | Cultivo microaeróbico; composición del gas: 5 % O₂, 10 % CO₂, 85 % N₂ |
| Tubos microcentrífugos (1,5 mL / 2 mL) | Axygen Scientific Inc. | MCT-150-C / MCT-200-C | Dilución de muestras y extracción de ácido nucleico |
| Reactivo de extracción o purificación de ácido nucleico | Jiangsu Bioperfectus Technologies Co., Ltd. | SDK60105 | Extracción de ácido nucleico bacteriano |
| Reactivo de extracción de ácido nucleico | TargetingOne | Pathogens TNA-B1 (11019) | Extracción de ácido nucleico bacteriano |
| PBS, 1X (pH 7,2-7,4, 0,01 M, cultivo celular) | Solarbio Science & Technology Co., Ltd. | P1020 | Dilución de muestras |
| Placas de Petri (90 mm) | Beekman Biotech | N/A | Placas de cultivo estériles para aislamiento y subcultivo bacteriano |
| Puntas de pipeta (10 uL / 200 uL / 1000 uL) | Axygen Scientific Inc. | T-300 / T-200-Y / T-1000-B | Puntas filtradas estériles para dilución de muestras y dispensación de reactivos |
| Sonda | Sangon Biotechnology (Shanghai) Co., Ltd. | / | Amplificación de ácido nucleico por PCR digital |
| Primer inverso | Sangon Biotechnology (Shanghai) Co., Ltd. | / | Amplificación de ácido nucleico por PCR digital |
| Plataforma de análisis estadístico en línea SPSSPRO | SPSSPRO | Basado en web (https://www.spsspro.com/; acceso en agosto de 2026) | Análisis estadístico: correlación de Pearson, regresión lineal |
| Sangre de oveja estéril desfibrinada | Solarbio Science & Technology Co., Ltd. | TX0030-100 mL | Suplemento para placas de cultivo de H. pylori |
| Sistema TD-1 de PCR digital | TargetingOne | TD-1 | Detección cuantitativa de PCR digital |
| Sistema de reactivo de PCR de viabilidad | Promega | A8881 | Evaluación por PCR de viabilidad de H. pylori inactivado por calor |
| Mezclador de vórtice | Scientific Industries Inc. | SI-0256 | Homogeneización de suspensiones bacterianas |
Referencias
- Ndip RN, et al. Helicobacter pylori isolates recovered from gastric biopsies of patients with gastro-duodenal pathologies in Cameroon: current status of antibiogram. Trop Med Int Health. 2008;13(6):848-54.
- Malfertheiner P, et al. Management of Helicobacter pylori infection: the Maastricht VI/Florence consensus report. Gut. 2022;71(9):1724-62.
- Hooi JKY, et al. Global prevalence of Helicobacter pylori infection: systematic review and meta-analysis. Gastroenterology. 2017;153(2):420-9.
- International Agency for Research on Cancer. Schistosomes, liver flukes and Helicobacter pylori. IARC Monogr Eval Carcinog Risks Hum. 1994;61:1-241.
- de Martel C, et al. Global burden of cancer attributable to infections in 2018: a worldwide incidence analysis. Lancet Glob Health. 2020;8(2):e180-90.
- Wang YK, et al. Diagnosis of Helicobacter pylori infection: current options and developments. World J Gastroenterol. 2015;21(40):11221-35.
- Hindson BJ, et al. High-throughput droplet digital PCR system for absolute quantitation of DNA copy number. Anal Chem. 2011;83(22):8604-10.
- International Organization for Standardization. ISO 17511:2020, In vitro diagnostic medical devices—requirements for establishing metrological traceability of values assigned to calibrators, trueness control materials and human samples. International Organization for Standardization; Geneva; 2020.
- Morisset D, et al. Quantitative analysis of food and feed samples with droplet digital PCR. PLoS One. 2013;8(5):e62583.
- World Health Organization. WHO international standard for SARS-CoV-2 RNA, NIBSC code 20/146. World Health Organization; Geneva; 2020.
- Forootan A, et al. Methods to determine limit of detection and limit of quantification in quantitative real-time PCR (qPCR). Biomol Detect Quantif. 2017;12:1-6.
- Johnson S, et al. Clinical practice guideline by the Infectious Diseases Society of America (IDSA) and Society for Healthcare Epidemiology of America (SHEA): 2021 focused update guidelines on management of Clostridioides difficile infection in adults. Clin Infect Dis. 2021;73(5):e1029-44.
- Hyams C, Williams OM, Williams P. Urinary antigen testing for pneumococcal pneumonia: is there evidence to make its use uncommon in clinical practice? ERJ Open Res. 2020;6(1):00223-2019.
- Marrero Rolon R, et al. Erratum for Marrero Rolon et al., “Clinical evaluation of a real-time PCR assay for simultaneous detection of Helicobacter pylori and genotypic markers of clarithromycin resistance directly from stool.” J Clin Microbiol. 2022;60(2):e0245221.
- China Food and Drug Administration. Technical review guidelines for registration of Helicobacter pylori antigen/antibody detection reagents. China Food and Drug Administration; Beijing; 2018.
- Clinical and Laboratory Standards Institute. EP17-A2, Evaluation of detection capability for clinical laboratory measurement procedures; approved guideline. 2nd ed. Clinical and Laboratory Standards Institute; Wayne, PA; 2012.
- Yamaoka Y, Graham DY. Helicobacter pylori virulence and cancer pathogenesis. Future Oncol. 2014;10(8):1487-500.
- Leal YA, et al. Utility of stool sample-based tests for the diagnosis of Helicobacter pylori infection in children. J Pediatr Gastroenterol Nutr. 2011;52(6):718-28.
- Devonshire AS, et al. The use of digital PCR to improve the application of quantitative molecular diagnostic methods for tuberculosis. BMC Infect Dis. 2016;16:366.