Este artículo describe protocolos detallados para mantener una colonia de laboratorio de Carausius morosus, incluyendo procedimientos clave para el manejo de los animales, el manejo de huevos, el cuidado de los ninfas, métricas representativas de desempeño y una visión general de la longevidad y características biológicas de la especie.
Artículo de método
Un protocolo estandarizado para el cultivo de Carausius morosus (Phasmatodea, Insecta) en condiciones de laboratorio
En este artículo
Resumen
Resumen
Carausius morosus, el insecto palo indio, es un insecto delgado con forma de ramita endémico de la India. Aunque ha sido ampliamente introducido mediante cautiverio en todo el mundo y se utiliza comúnmente en laboratorios o se mantiene como mascota doméstica, faltan protocolos estandarizados de manejo animal en el laboratorio. Aquí presentamos condiciones detalladas de cultivo en laboratorio para C. morosus. Mantenemos existencias en 23 °C, 70 % de humedad relativa y un fotoperíodo luz-oscuridad de 12:12 h. Este cultivo se ha mantenido con éxito bajo estas condiciones durante más de dos años, con protocolos estandarizados para la alimentación y el acondicionamiento de las jaulas. También presentamos métodos para el cuidado de huevos y crías para apoyar experimentos continuos con C. morosus. Bajo nuestras condiciones de cultivo, 105 lotes monitoreados de huevos puestos en el mismo período de 24 horas eclosionaron dentro de un período constante de 12 días, y el 13,9 % de las ninfas emergidas alcanzaron con éxito la etapa adulta. Estos métodos estandarizados mejoran la reproducibilidad y accesibilidad, permitiendo el uso más amplio de C. morosus como un sistema modelo en laboratorio para una amplia gama de estudios, incluyendo análisis del desarrollo, el comportamiento y la fisiología.
Introducción
A medida que aumenta el interés en sistemas modelo alternativos no mamíferos, los insectos ofrecen la oportunidad de explorar una amplia gama de diversidad biológica, al mismo tiempo que proporcionan modelos de investigación más económicos, requisitos de cuidado más simples y menos barreras regulatorias que los modelos mamíferos1. Los sistemas modelo emergentes basados en insectos permiten investigar fenómenos biológicos únicos, como, por ejemplo, la partenogénesis en insectos palo tales como Carausius morosus (Sinéty, 1901)2. Si bien la mosca del vinagre Drosophila melanogaster ha moldeado nuestra comprensión de los procesos del desarrollo y genéticos desde principios del siglo XX3, otros sistemas modelo de insectos como C. morosus representan una oportunidad única no solo para la biología del desarrollo, sino también para investigar el control motor, la locomoción y los sistemas regulados por neurohormonas4.
Además, dentro del campo de la biología evolutiva del desarrollo, los insectos hemimetábolos (de desarrollo directo) siguen estando subrepresentados, siendo D. melanogaster, un insecto holometábolo (de desarrollo indirecto o que pasa por metamorfosis), el modelo mejor estudiado. Estudiar especies de insectos de desarrollo directo como C. morosus, que atraviesa varias etapas de estadios ninfales antes de alcanzar la madurez sexual5, nos permite llenar lagunas filogenéticas clave en la investigación de la biología evolutiva del desarrollo. Esto posibilita la comparación entre insectos hemimetábolos y holometábolos, que divergieron tempranamente en la evolución de los insectos pero que no están igualmente representados en los actuales sistemas modelo de laboratorio. El uso más amplio de C. morosus como organismo de laboratorio ha estado limitado por condiciones de cría inconsistentes, irreproducibles y por la falta de puntos de referencia claros para el desarrollo y la supervivencia. Aquí presentamos un protocolo paso a paso con condiciones de cultivo definidas y resultados esperados que puede aplicarse en diferentes laboratorios, apoyando múltiples aplicaciones, incluidos el seguimiento de la embriogénesis, el desarrollo longitudinal y experimentos sobre el rendimiento reproductivo.
C. morosus son fáciles de criar en cautividad, lo que los hace muy adecuados tanto para investigación de laboratorio como para entornos educativos. Su capacidad de reproducirse por partenogénesis6 elimina la necesidad de montajes complejos de cría, reduce las exigencias de mantenimiento y simplifica la gestión de poblaciones. Aunque una cría exitosa se beneficia de condiciones ambientales controladas, su manejo sigue siendo sencillo y rentable en comparación con muchos otros modelos de laboratorio. C. morosus se alimenta fácilmente de material vegetal común, como hiedra (Hedera helix), zarza (Rubus fruticosus) o hojas de rosa (Rosa spp.). Otras ventajas de este sistema incluyen la autotomía, la capacidad de regenerar patas7, el gran tamaño corporal y la capacidad de alimentarse de una variedad de plantas hospederas. Sin embargo, esta especie también presenta limitaciones, como la ausencia de una secuencia genómica disponible públicamente, un tiempo de desarrollo relativamente largo y una exocorion embrionario duro que puede dificultar las inyecciones8. A pesar de estas limitaciones, C. morosus ofrece un modelo práctico y eficaz para aplicaciones tanto de investigación como docentes.
Los protocolos estandarizados de cría para C. morosus son fundamentales para obtener resultados consistentes y reproducibles en estudios de investigación. Aunque se han reportado múltiples estudios de laboratorio sobre C. morosus en la literatura6,9,10,11,12, hasta donde sabemos, hasta la fecha no se han publicado protocolos detallados para la cría de C. morosus en el laboratorio. En este estudio, hemos establecido con éxito un conjunto completo de protocolos estandarizados para cultivos de C. morosus en el laboratorio, incluyendo la cría de huevos, ninfas recién eclosionadas y adultos reproductivamente maduros. Con estos métodos, pretendemos facilitar el acceso a este insecto por parte de la comunidad más amplia de investigación biológica.
Protocolo
1. Environmental rearing conditions
- Maintain the laboratory culture in a climate-controlled room or incubator with environmental settings as follows: 23 °C, relative humidity 70%, light-dark photoperiod of 12:12 h.
NOTE: Under these conditions, C. morosus eggs are expected to hatch approximately 74-80 days after being laid.
2. Establishment and maintenance of mesh enclosures
NOTE: Mesh insect enclosures with fabric mesh ventilation on three sides are recommended for housing C. morosus. An enclosure measuring 61 x 61 x 91.5 cm is suitable for maintaining up to 50 adults or, when establishing a new colony, up to 500 hatchlings.
- Select a mesh enclosure of appropriate size. Ensure the container is clean and free of debris before introducing the animals.
- For establishing a new colony using mature adults, place 25–50 adult females into a clean 61 cm x 61 cm x 91.5 cm mesh enclosure.
NOTE: Mesh openings should be in the range of 0.2–1.0 mm to prevent escape of the small first instar hatchlings. - For establishing a new colony using hatchlings, transfer up to approximately 500 hatchlings into a clean 61 cm x 61 cm x 91.5 cm mesh enclosure.
3. Feeding and maintenance
- During cage cleanings, let the insects stay in the enclosure; gently take them off foliage and place them on the bottom of the mesh enclosure while cleaning around them.
NOTE: Expect cleaning to take roughly 10–20 min per cage. - Provide fresh foliage such as ivy, bramble, or rose once per week. Ensure all plant material is pesticide-free. Wash foliage with tap water prior to addition to cages to remove surface debris and contaminants.
- Trim stems to fit vessels (small jars or bottles) filled with tap water to maintain leaf hydration. Place the prepared foliage inside the enclosure, making sure leaves are elevated and accessible to the insects. Carefully close the enclosure after placement.
- During weekly cage cleanings, remove wilted or dried foliage and any accumulated excrement from the bottom of the enclosure.
NOTE: Replace foliage when leaves show signs of dehydration, such as dryness, brittleness, wilting, or discoloration. Maintaining a clean environment is essential for colony health and well-being. - Lightly mist each enclosure daily with 1–2 sprays of tap water from a 250 mL spray bottle to ensure proper hydration.
NOTE: This is especially crucial on the first day post-hatching. Reduce density if rapid food depletion occurs.
4. Collection and maintenance of Carausius morosus hatchlings
NOTE: In this study, we use “hatchling” to refer to individuals immediately after emerging from the egg (first instar), while “nymph” refers to juvenile stages following postembryonic molts.
- Gather 6 cm Petri dishes with newly emerged hatchlings.
- Using blunt plastic forceps, gently transfer no more than 500 hatchlings into a clean 61 cm x 61 cm x 91.5 cm mesh enclosure.
NOTE: Collect only fully emerged, stretched out nymphs that have completed exoskeleton expansion. Disturbing the nymphs before they have fully emerged from the egg may impair body extension and lead to premature death. For similar reasons, try to minimize direct handling of nymphs following transfer to the mesh enclosure. - Provide fresh foliage as described in section 3.
- Label new colony enclosures with the following information: egg batch collection date(s), date of hatching or range of hatching dates, and number of hatchlings added.
NOTE: This tracks enclosure age and predicts the start of reproductive maturity. - Lightly mist each enclosure immediately after hatchling transfer, and daily thereafter, with 1–2 sprays of tap water from a 250 mL spray bottle to ensure proper hydration.
NOTE: This is especially crucial on the first day post-hatching. Hatchlings may remain in the same enclosure throughout development until adulthood. Under the laboratory conditions described in section 1, approximately 13% of hatchlings survive to adulthood in 4–5 months (Table 1). - Remove any dead or damaged hatchlings during weekly cage cleaning to prevent contamination.
5. Collection and maintenance of C. morosus eggs
- Open an enclosure containing adult females.
- Using a gloved hand, gently sweep the substrates on the bottom of the cage, which contain both eggs and fecal matter, towards the front opening.
- Carefully transfer the material using a gloved hand to a 15 cm Petri dish for egg retrieval.
6. Termination of insects and disposal of enclosure waste
NOTE: When C. morosus are no longer needed for experiments, have died, or eggs are not required:
- Euthanasia/Disposal of insects: Transfer live or dead insects no longer needed for culture or experiments into an autoclavable waste bag, and store in a -20 °C freezer for at least 72 h.
- Egg destruction: To prevent overpopulation, remove any eggs not used for experiments from cages or Petri dishes, place them in an autoclavable waste bag, and store at -20 °C for at least 72 h.
- Waste handling: Place any contaminated waste from enclosures or materials used for egg or insect collection in an autoclavable waste bag, and store at -20 °C for at least 72 h.
- After freezing materials, transfer the autoclavable waste bag to a biohazard bin for proper disposal.
NOTE: As C. morosus is an invasive species outside of India, it is crucial that all materials are properly disposed of as described above to prevent accidental release into the environment.
7. Egg retrieval
- Using blunt plastic forceps, carefully pick up each egg and place it into a clean 6 cm Petri dish.
NOTE: Mature eggs are protected by a hardened exochorion and are dark brown, resembling plant seeds. Using a white background can help differentiate droppings from eggs when sorting. - Label the dish with the date and time of collection for tracking purposes. Keep the lid off during incubation to allow ventilation.
NOTE: A 6 cm Petri dish is sufficient for storing up to 200 eggs. - Approximately 1 week before the expected hatching window (74–80 days after egg laying; Kovacikova & Extavour, unpublished data), replace the Petri dish cover.
- Begin daily monitoring of egg containers before the expected hatching date to observe emerging hatchlings.
8. Life expectancy
- After hatching, monitor individuals as they undergo five to six molts before reaching reproductive maturity, which under the laboratory conditions described in Section 1, happens on average 139 days after hatching (Table 1).
- To follow this protocol, define developmental timing under these culture conditions as follows: embryogenesis duration (egg laying to hatching) is 74–80 days; time from hatching to sexual maturity (onset of oviposition) is approximately 135 days, corresponding to approximately 200 days from egg laying to sexual maturity, and total lifespan from egg laying to death is approximately 9.5 months.
Resultados
Recopilamos datos que documentan el exitoso cultivo en laboratorio de C. morosus desde huevos hasta adultos reproductivamente maduros entre septiembre de 2024 y noviembre de 2025. Durante este período de 14 meses, establecimos, mantenimos y monitoreamos cinco jaulas para uno o más de los siguientes fines: mortalidad de adultos, huevos puestos, momento de eclosión de los huevos y supervivencia de las crías hasta la edad adulta. Nuestro método permite el mantenimiento a largo plazo de la colonia sin signos evidentes de enfermedades relacionadas con patógenos o declive reproductivo, ambos considerados resultados subóptimos. Tras más de dos años de cultivo continuo, no observamos muertes masivas evidentes relacionadas con patógenos, y la producción de huevos y crías se mantuvo estable a través de las generaciones.
Los datos mostrados en la Figura 1 y la Figura 2 presentan observaciones de las cinco jaulas monitoreadas desde el montaje hasta la edad adulta de los recién nacidos, incluyendo los huevos puestos y la mortalidad de adultos para cada jaula. Después de que los individuos fundadores en cada jaula alcanzaron la madurez sexual y comenzaron a poner huevos, registramos el número de adultos presentes en cada jaula para establecer la población inicial al comienzo de la oviposición. El número de adultos en cada jaula a lo largo del tiempo se muestra en la Figura 1 y la Tabla 1. Interpretamos la disminución constante en la supervivencia como una mortalidad relacionada con la edad.
Monitoreamos la producción de huevos en paralelo en las mismas cinco jaulas que se monitorearon para la supervivencia de los adultos (Figura 1 y Figura 2). Los recuentos diarios de huevos por jaula fueron más altos durante los primeros 30–50 días de puesta y disminuyeron gradualmente después. Aunque la producción total de huevos varió entre las jaulas (Tabla 2), este patrón general fue consistente en las cinco jaulas replicadas. Monitoreamos la dinámica de eclosión de huevos durante un período de 50 días para un total de 105 lotes de huevos, siendo cada lote un grupo de huevos ovipositados en la misma jaula dentro de un período de 24 horas. Para los análisis de tamaño de lote mostrados en la Figura 3, se agruparon 75 lotes en categorías pequeña, mediana y grande. Descubrimos que una vez que eclosionó el primer huevo de un lote, se alcanzó el 90 % de eclosión dentro de los 12 días posteriores a la emergencia del primer eclosionado (Figura 3D), independientemente del tamaño del lote (Figura 3B). Al utilizar el término «completitud de eclosión» para describir la proporción de huevos en un lote que han eclosionado en un momento determinado tras la emergencia del primer eclosionado del lote, observamos que la distribución de los lotes de huevos según el día en que se alcanzó el 90 % de eclosión indica que la mayoría de los lotes llegaron a este umbral entre los días 10 y 14 de eclosión (Figura 3C) tras la emergencia del primer eclosionado.
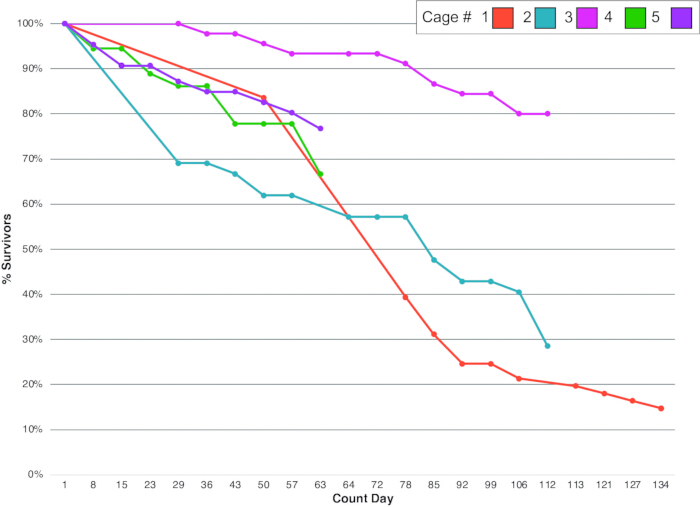
Figura 1. Dinámica de mortalidad en adultos. Trayectorias de supervivencia a lo largo del tiempo en cinco jaulas experimentales replicadas de C. morosus. Se representa el porcentaje de supervivencia a lo largo del tiempo para los individuos de cada jaula monitoreada. Véanse las métricas resumidas en Tabla 1. Haga clic aquí para ver una versión más grande de esta figura.
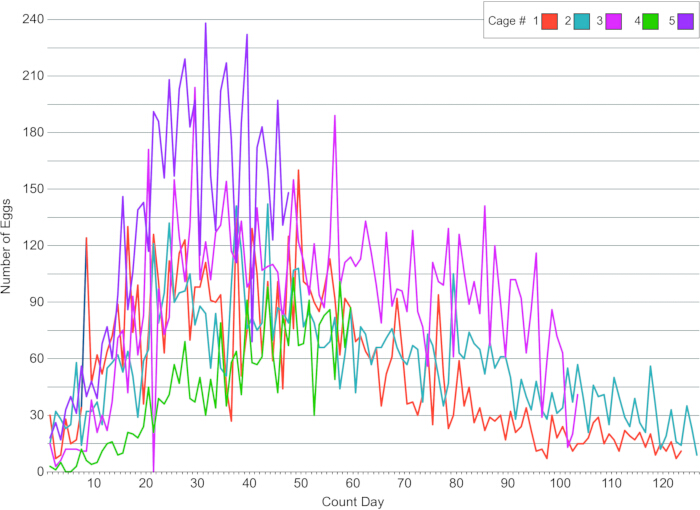
Figura 2. Dinámica de producción de huevos. Número de huevos recolectados de las mismas cinco jaulas monitoreadas en la Figura 1. Las jaulas 1 a 5 fueron monitoreadas diariamente durante 47, 58, 106, 129 y 132 días, respectivamente. El gráfico muestra datos de los primeros 126 días de oviposición. Véanse las métricas resumidas en la Tabla 2. Haga clic aquí para ver una versión más grande de esta figura.
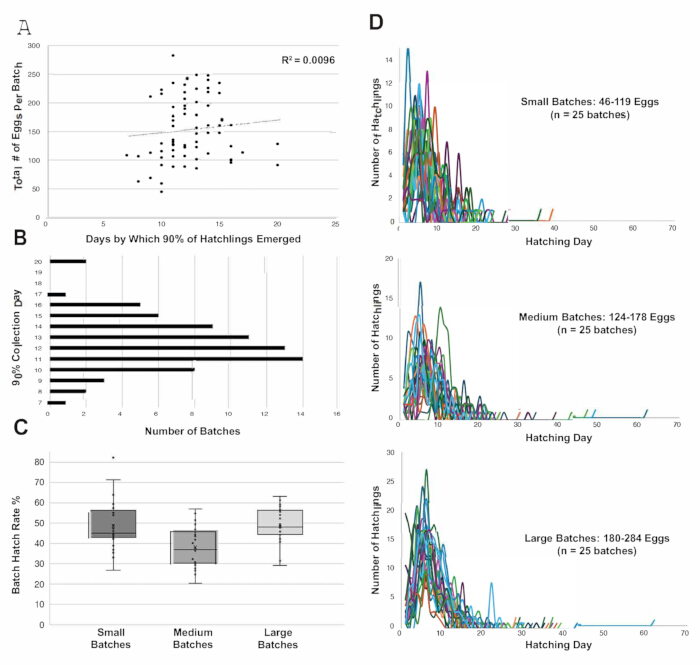
Figura 3. Dinámica de eclosión de huevos. (A) Relación entre el número total de huevos por lote y el número de días necesarios para alcanzar el 90 % de finalización de la eclosión. (B) Distribución de los lotes de huevos según el día en que alcanzaron el 90 % de finalización de la eclosión durante los días 7 a 20 de eclosión. (C) Distribución de la tasa de eclosión por lote en lotes de huevos pequeños, medianos y grandes. n = 25 lotes por categoría de tamaño de lote. (D) Trayectorias de eclosión durante un período de recolección de 70 días para los 75 lotes de huevos utilizados en el análisis del tamaño del lote. Se monitorearon un total de 105 lotes de huevos; para los análisis mostrados aquí, los 75 lotes se agruparon según el número total de huevos utilizando puntos de corte por terciles. Haga clic aquí para ver una versión más grande de esta figura.
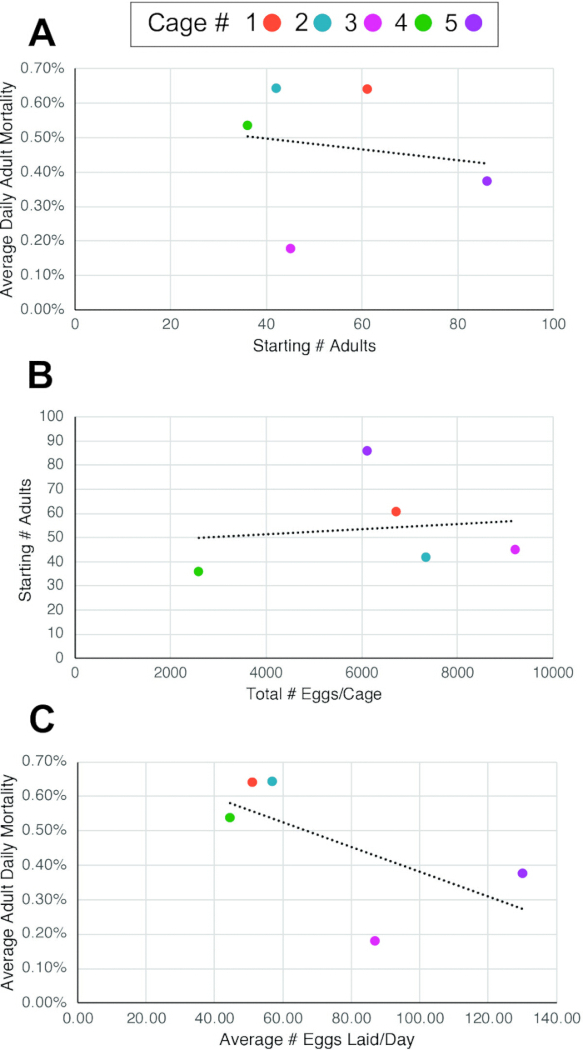
Figura 4. Relaciones entre el número de adultos, la mortalidad de adultos y la producción de huevos por jaula. (A) No existe una relación significativa (R2 = 0.025) entre la mortalidad diaria promedio de adultos y el número de adultos fundadores en una jaula. (B) No existe una relación significativa (R2 = 0.017) entre la producción total de huevos y el número de adultos fundadores en una jaula. (C) Existe una correlación negativa moderada (R2 = 0.411) entre la producción diaria promedio de huevos y la mortalidad diaria promedio de adultos. Mortalidad diaria promedio de adultos = (% de mortalidad total) / (número total de días monitoreados). Haga clic aquí para ver una versión más grande de esta figura.
| Número de jaula # | número de jaula antigua | Eclosión del primer día crías agregadas a la jaula fundadora | Eclosión del último día crías agregadas a la jaula fundadora | # Eclosión crías agregadas a la jaula | Rango de días de eclosión se añadieron los lings | Tiempo promedio entre el inicio de la jaula y el conteo de adultos # | Primer día de conteo de adultos | Primer día en que los adultos comenzaron a poner huevos | Tiempo transcurrido entre la eclosión y la edad adulta | Tiempo transcurrido entre la eclosión y la puesta de huevos | Número inicial de adultos | Supervivencia de los recién nacidos hasta la edad adulta campana | Último día de conteo de adultos | Número final de adultos | Duración del tiempo que se monitoreó al adulto # [días] | Mortalidad media de adultos durante el período de vigilancia [%] | Mortalidad Diaria Promedio en Adultos [%] |
| 1 | 7 | 12/7/ 2024 | 12/21/ 2024 | ND | 14.00 | 166.00 | 5/29/ 2025 | 5/29/ 2025 | 173.00 | 173.00 | 61.00 | ND | 10/9/ 2025 | 9.00 | 133.00 | 85.25% | 0.64% |
| 2 | 8 | 2/10/ 2025 | 3/9/ 2025 | ND | 27.00 | 130.00 | 7/17 /2025 | 7/17/ 2025 | 157.00 | 157.00 | 42.00 | ND | 11/5/ 2025 | 12.00 | 111.00 | 71.43% | 0.64% |
| 3 | 9 | 4/5/ 2025 | 4/12/ 2025 | ND | 7.00 | 110.00 | 7/17/ 2025 | 7/27/ 2025 | 103.00 | 113.00 | 45.00 | ND | 11/5/ 2025 | 36.00 | 111.00 | 20.00% | 0.18% |
| 4 | 10 | 5/8/ 2025 | 5/22/ 2025 | 350 | 14.00 | 121.00 | 9/4/ 2025 | 9/13/2 025 | 119.00 | 128.00 | 36.00 | 10.29% | 11/5/ 2025 | 24.00 | 62.00 | 33.33% | 0.54% |
| 5 | 11 | 5/23/ 2025 | 6/6/ 2025 | 536 | 14.00 | 117.00 | 9/4/ 2025 | 9/24/ 2025 | 104.00 | 124.00 | 86.00 | 16.04% | 11/5/ 2025 | 66.00 | 62.00 | 23.26% | 0.38% |
| Promedios | 15.20 | 128.80 | 131.20 | 139.00 | 54.00 | 13.17% | 29.40 | 95.80 | 46.65% | 0.48% |
Tabla 1: Dinámica de supervivencia y mortalidad de adultos en jaulas experimentales. Resultados de supervivencia de adultos en cinco jaulas experimentales replicadas. Para cada jaula, se informa el rango de fechas de establecimiento de la jaula, el número de nacidos utilizados para establecer cada jaula (para 2 de las 5 jaulas), la supervivencia de nacidos hasta la edad adulta (para 2 de las 5 jaulas), el tiempo entre el establecimiento de la jaula, el inicio de los conteos de adultos y el inicio de la puesta de huevos, la duración del monitoreo de adultos, los tamaños poblacionales iniciales y finales de adultos, la mortalidad de adultos durante el período monitoreado y la mortalidad diaria promedio. La supervivencia de nacidos hasta la edad adulta se calculó únicamente para las jaulas con número inicial de nacidos conocido.
| N.º de jaula | Fecha de inicio de la recolección de huevos | Fecha de finalización de la recolección de huevos | Duración de la recolección de huevos [días] | N.º total de huevos/jaula | Promedio de huevos puestos/día | N.º inicial de individuos adultos | Total de huevos/Adultos iniciales | Promedio de huevos/Adulto inicial/Día |
| 1 | 29/5/2025 | 8/10/ 2025 | 132.00 | 6721.00 | 50.92 | 61.00 | 110.18 | 0.83 |
| 2 | 4/7/2025 | 10/11/2025 | 129.00 | 7333.00 | 56.84 | 42.00 | 174.60 | 1.35 |
| 3 | 27/7/2025 | 10/11/2025 | 106.00 | 9198.00 | 86.77 | 45.00 | 204.40 | 1.93 |
| 4 | 13/9/2025 | 10/11/2025 | 58.00 | 2583.00 | 44.53 | 36.00 | 71.75 | 1.24 |
| 5 | 24/9/2025 | 10/11/2025 | 47.00 | 6104.00 | 129.87 | 86.00 | 70.98 | 1.51 |
| Promedios | 94.40 | 6387.80 | 73.79 | 54.00 | 126.38 | 1.37 |
Tabla 2: Producción de huevos en las jaulas experimentales. Producción de huevos de cinco jaulas experimentales replicadas que contienen adultos maduros. Para cada jaula, se informan las fechas de inicio y finalización de la recolección de huevos, la duración total de la recolección, la producción acumulada de huevos por jaula y el número promedio de huevos puestos por día.
Discusión
Los métodos de cría detallados aquí proporcionan un marco sencillo y reproducible para mantener poblaciones de laboratorio de C. morosus. Aunque C. morosus se ha mantenido durante mucho tiempo en laboratorios o como mascota doméstica, los protocolos de cría para investigación científica han variado entre estudios6,9,10,11,12. Garantizar condiciones ambientales y prácticas alimenticias consistentes es fundamental para convertir a C. morosus en un organismo modelo confiable en investigaciones sobre desarrollo, fisiología y evolución.
Temporización del desarrollo en C. morosus en relación con otros insectos modelo
En comparación con insectos holometábolos como la mosca del vinagre Drosophila melanogaster, C. morosus presenta tasas de desarrollo más lentas y una fase juvenil más prolongada. Mientras que D. melanogaster completa la embriogénesis en ~24 h y alcanza la madurez reproductiva en 10–12 días a 25 °C13, bajo nuestras condiciones de cría, C. morosus requiere entre 74 y 80 días para la embriogénesis y aproximadamente entre 135 y 139 días después de la eclosión para alcanzar la madurez reproductiva, lo que equivale a unos 200 días desde la puesta de huevos hasta la madurez reproductiva a 23 °C (datos no mostrados). Esta cronología prolongada refleja diferencias fisiológicas y evolutivas fundamentales entre insectos hemimetábolos y holometábolos14,15 y se observa repetidamente en todo el orden Phasmatodea16,17,18. Aunque otros insectos hemimetábolos, como el grillo Gryllus bimaculatus, completan la embriogénesis y alcanzan la madurez sexual en un período más corto (diez días y seis semanas, respectivamente, a 29 °C19), el desarrollo más lento de C. morosus ofrece una oportunidad única para investigaciones reproducibles y estudios longitudinales detallados de la embriogénesis y el desarrollo juvenil.
Origen del follaje y prácticas de alimentación
En este protocolo, describimos el uso del hiedra (Hedera helix) como fuente principal de alimento para nuestra colonia de C. morosus, con follaje recolectado durante todo el año desde un lugar fijo en el campus. Aunque el hiedra puede no estar disponible para todos los laboratorios, se han reportado varias fuentes alternativas de alimento vegetal adecuadas para mantener colonias de C. morosus, incluyendo zarza (Rubus spp.), ligustro (Ligustrum spp.), coronilla de Cristo (Pyracantha spp.), rosa (Rosa spp.), espino (Crataegus monogyna), roble (Quercus spp.) y avellano (Corylus spp.)20. Una consideración importante al utilizar follaje recolectado desde fuentes externas es que el contenido nutricional es menos controlado que en sistemas de laboratorio que dependen de dietas estandarizadas (por ejemplo, Drosophila melanogaster), lo que podría introducir variabilidad nutricional. Para ayudar a limitar esto, utilizamos la misma especie vegetal proveniente del mismo lugar durante todas las estaciones y proporcionamos follaje a todas las jaulas una vez por semana durante el mantenimiento rutinario. Las ramas de hiedra utilizadas para la alimentación generalmente presentaban una mezcla de hojas tiernas y maduras; no seleccionamos ramas según una etapa específica de desarrollo foliar. Todas las hojas se lavaron antes de colocarlas en las jaulas. Aplicamos un calendario semanal de reemplazo, eliminando todo el follaje y reemplazándolo el mismo día, con el fin de mantener la consistencia y gestionar adecuadamente la escala de la colonia. El follaje cortado de hiedra se mantuvo en recipientes con agua dentro de las jaulas para conservar la hidratación durante la semana. En la mayoría de los casos, las hojas permanecieron en buenas condiciones durante toda la semana, aunque ocasionalmente podían presentarse desecación o agotamiento, en cuyo caso reemplazábamos el follaje antes de la semana completa.
Tamaño de la colonia, tasas de supervivencia y reproducción de adultos
Una configuración adecuada de la colonia y una gestión cuidadosa de la densidad poblacional fueron fundamentales para mantener las poblaciones sanas. Mantener un máximo de aproximadamente 500 nacidos o 50 adultos por recinto de 61 cm x 61 cm x 91,5 cm permitió condiciones estables, el mantenimiento de la colonia y observaciones reproductibles del desarrollo.
La comparación de la mortalidad diaria promedio con el número de adultos fundadores en una jaula (Figura 4A y Tabla 1) no reveló una relación predecible entre estos dos parámetros. De manera similar, no hubo una relación predictiva fuerte entre el número total de adultos fundadores y la producción total de huevos (Figura 4B, Tabla 1 y Tabla 2). En cambio, las jaulas con menor mortalidad diaria promedio de adultos mostraron una ligera tendencia a tener una mayor producción diaria promedio de huevos (Figura 4C). Sin embargo, las diferencias entre jaulas sugieren que la producción de huevos varió entre los adultos (Tabla 1 y Tabla 2), lo que podría indicar que factores más allá de la supervivencia de los adultos contribuyen a los patrones de fecundidad, y que las hembras individuales también pueden variar en la cantidad de huevos que ponen cada día.
La producción de huevos en todas las jaulas monitoreadas disminuyó generalmente a lo largo del experimento (Figura 2). La mayoría de las jaulas presentaron las tasas diarias más altas de puesta de huevos al inicio del período reproductivo (los primeros 50 días), tras lo cual la producción disminuyó gradualmente (Figura 2). Este patrón es consistente con nuestra observación de que los individuos alcanzan típicamente la madurez sexual y comienzan a poner huevos aproximadamente a los 135 días posteriores a la eclosión, y de que la mortalidad comienza aproximadamente 90 días después (~225 días posteriores a la eclosión; datos no mostrados).
Duración y dinámica de la eclosión
En los lotes de huevos monitoreados, la mayor parte de la eclosión ocurrió dentro de un período constante de 12 días tras el inicio de la emergencia (Figura 3D). De manera similar, no hubo correlación entre el tamaño del lote y el momento en que se completó el 90 % de la eclosión (Figura 3A), y la mayoría de los lotes alcanzaron el 90 % de eclosión entre los días 10 y 14 después de que emergió la primera ninfa (Figura 3B). Este período predecible de eclosión es una característica útil para la gestión de colonias de C. morosus, ya que permite agrupar a las ninfas en cohortes de edad similar, mejorando la sincronización del desarrollo y reduciendo la variabilidad experimental. Saber cuándo ocurrirá la eclosión masiva también permite planificar mejor la rotación de recintos y la asignación de recursos, incluyendo la preparación oportuna de recintos, follaje y materiales de seguimiento, lo cual es especialmente importante en estudios a gran escala o a largo plazo. Aunque se han estudiado especies de Phasmatodea tanto sexuales como partenogenéticas, no conocemos evidencia de que el modo reproductivo por sí solo determine diferencias en el momento de la embriogénesis. En cambio, se ha reportado que la variación en el desarrollo es específica de la especie y está influenciada por las condiciones ambientales2.
Manejo de huevos y consideraciones sobre el sustrato
Nuestro método de manipulación de huevos consiste en recolectar los huevos directamente del suelo del recinto e incubarlos en placas de Petri ventiladas. Este enfoque permite observar fácilmente los huevos, a diferencia de los sistemas con grillos que recolectan huevos en sustratos como fibra de coco o mechas de algodón21. El exocorion duro de los huevos de C. morosus proporciona protección durante la manipulación y contra la desecación, lo que permite una incubación segura en placas de Petri sin sustrato adicional bajo nuestras condiciones de cultivo. En conjunto, estos procedimientos estandarizados ofrecen un enfoque estructurado para mantener poblaciones saludables de C. morosus destinadas a investigaciones reproductibles en desarrollo, comportamiento, genética o fisiología. Controles ambientales constantes (23 °C, 70 % de HR, ciclo luz-oscuridad 12:12), mantenimiento regular del recinto y cronologías de desarrollo predecibles hacen que C. morosus sea un sistema modelo accesible y de bajo costo. Es importante destacar que, a diferencia de algunos sistemas con grillos en los que el hacinamiento, el canibalismo o la carga de patógenos pueden desestabilizar rápidamente las colonias22, C. morosus es fácil de mantener, lo que lo hace especialmente adecuado para experimentos a gran escala y estudios que abarcan múltiples generaciones. A medida que C. morosus se adopta más ampliamente como especie modelo hemimetabólica, el uso de métodos estandarizados debería fomentar la reproductibilidad y la comparabilidad entre estudios en diversas áreas de la biología de insectos.
Supervivencia desde la eclosión hasta la edad adulta
La supervivencia desde el estado de recién eclosionado hasta la edad adulta en nuestro estudio (~13 %) es considerablemente más baja que la reportada en otro estudio cuantitativo sobre la supervivencia de ninfas de C. morosus bajo condiciones controladas de laboratorio, en el que sobrevivió hasta el 68 % de los individuos hasta la edad adulta con restricción calórica y hasta el 87 % con alimentación ad libitum23. Especulamos que la menor supervivencia observada en nuestra colonia (~13 %) en comparación con el estudio anterior se debe a diferencias en el modo de cría de los animales, que a su vez reflejan los distintos objetivos de nuestros cultivos y del estudio previo. Nuestro protocolo fue diseñado para mantener colonias grandes y continuamente reproductivas, en lugar de maximizar la supervivencia de grupos individuales. Por lo tanto, mantenimos los animales a densidades relativamente altas, en contraste con el estudio anterior, que crió animales aislados desde el huevo hasta la edad adulta en jaulas individuales23. Especulamos que el método de cultivo en alta densidad que describimos aquí podría aumentar la mortalidad en comparación con el criadero en aislamiento, especialmente durante las primeras etapas ninfales, cuando los individuos podrían ser más sensibles al hacinamiento o a la competencia. En nuestras jaulas más grandes, también podría haber influido la variación en la calidad de las plantas, en comparación con el enfoque de cría individual, que alimentaba a los individuos con discos de tamaño controlado cortados de hojas de plantas23. Sin embargo, a pesar de su tasa de supervivencia comparativamente más baja, nuestra colonia produjo consistentemente grandes cantidades de huevos y se mantuvo estable con el tiempo (Figura 1, Figura 3, Tabla 1 y Tabla 2). Esto sugiere que el enfoque que describimos aquí es eficaz para mantener un cultivo de laboratorio a largo plazo.
Factores que influyen en la supervivencia y limitaciones del protocolo
Varios factores en este protocolo probablemente influyan en la supervivencia y deben controlarse cuidadosamente. La densidad poblacional es un parámetro importante, ya que la sobrepoblación puede reducir la supervivencia, particularmente durante las primeras etapas de estadios larvales. Otro parámetro que influye en la supervivencia es la hidratación adecuada, especialmente durante las primeras etapas de estadios larvales. Todos los procedimientos y tiempos descritos en el protocolo se basan en las condiciones ambientales específicas utilizadas en este estudio. Sin embargo, cambios en la humedad, la temperatura, la circulación de aire o el tipo de planta pueden afectar la frecuencia del riego con nebulización, con qué frecuencia se debe reemplazar el follaje, el tiempo de eclosión de los huevos y la supervivencia general. Por ejemplo, en condiciones de cultivo más secas, puede ser necesario nebulizar agua y reemplazar las plantas con mayor frecuencia para mantener la hidratación. Diferentes especies vegetales también pueden influir en la alimentación y el desarrollo. Estos factores deben ajustarse según las condiciones de cría y los objetivos experimentales. Para aplicaciones que requieran alta supervivencia de juveniles, seguimiento individual o ensayos conductuales, pueden ser preferibles densidades iniciales más bajas.
Divulgaciones
Los autores no tienen conflictos de intereses que declarar.
Agradecimientos
Este proyecto recibió apoyo del Premio de la National Science Foundation IOS 22207477 otorgado a CGE, quien es investigadora del Howard Hughes Medical Institute. Reconocemos que se cree que Carausius morosus proviene de Tamil Nadu, India, y que las culturas de laboratorio de esta especie se han mantenido fuera de India desde al menos 1908. Agradecemos sinceramente a Stanislav Gorb y Thies Büscher (Universidad de Kiel) por proporcionar el grupo inicial de adultos utilizado para establecer nuestra cultura, y a todos los miembros del laboratorio Extavour por su apoyo, incluido el exmiembro del laboratorio el Dr. Upendra Bhattarai (afiliación actual: Universidad de Brown), quien estableció la colonia inicial.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Bolsas de polipropileno autoclavables, 30,5 cm × 61 cm | VWR | 95042-554 | Para la eliminación de residuos de insectos, huevos y recintos |
| Contenedor de residuos biológicos | N/A | N/A | Para la eliminación después de la congelación |
| Pinzas plásticas romas | Amazon | B07YZ5FB27 | Para recolectar y manipular huevos y nacidos |
| Habitación con clima controlado o incubadora | N/A | N/A | Para mantener 23 °C, 70 % de HR y un fotoperiodo de 12:12 h luz-oscuridad |
| Guantes desechables | N/A | N/A | Para la recolección de huevos y manejo de residuos |
| Placas de Petri desechables, 150 × 15 mm | VWR | 25384-326 | Para la recolección de huevos |
| Placas de Petri desechables, 60 × 15 mm | VWR | 25384-092 | Para la incubación de huevos |
| Follaje fresco (hojas de hiedra, zarza o rosa) | N/A | N/A | Alimento libre de pesticidas |
| Congelador, -20 °C | N/A | N/A | Para eutanasia/eliminación y congelación de huevos o residuos antes de desecharlos |
| Recintos para insectos con malla | Amazon | B09GS2CH1G | Utilizados para albergar insectos |
| Botella pulverizadora, 250 mL | Amazon | B000H88PCU | Para rociar con niebla los recintos con malla |
| Recipiente de vidrio alto, altura de 18–23 cm | N/A | N/A | Utilizado para contener agua y tallos de plantas |
| Agua del grifo | N/A | N/A | Para rociar con niebla y mantener la hidratación del follaje |
| Superficie o bandeja blanca para clasificación | N/A | N/A | Para diferenciar los huevos de las heces durante la clasificación |
Referencias
- Adamski Z, et al. Beetles as model organisms in physiological, biomedical and environmental studies: a review. Front Physiol. 2019;10:319.
- Schwander T, et al. On the repeated evolution of parthenogenesis in stick insects. Evolution. 2026;80(3):513-24.
- Arias AM. Drosophila melanogaster and the development of biology in the 20th century. Methods Mol Biol. 2008;420:1-25.
- Dürr V, König Y, Kittmann R. The antennal motor system of the stick insect Carausius morosus: anatomy and antennal movement pattern during walking. J Comp Physiol A Neuroethol Sens Neural Behav Physiol. 2001;187(2):131-44.
- Roth HL. XIX. Observations on the growth and habits of the stick insect, Carausius morosus, Br.; intended as a contribution towards a knowledge of variation in an organism which reproduces itself by the parthenogenetic method. Trans R Entomol Soc Lond. 1917;64(3-4):345-86.
- Pijnacker LP. The maturation divisions of the parthenogenetic stick insect Carausius morosus Br. (Orthoptera, Phasmidae). Chromosoma. 1966;19(1):99-112.
- Browaeys-Poly E. Extracellular matrix of the regeneration chamber and plasma membranes of the epidermis during leg regeneration in an insect Carausius morosus. Tissue Cell. 1991;23(1):41-55.
- Di Cristina G, et al. Pioneering genome editing in parthenogenetic stick insects: CRISPR/Cas9-mediated gene knockout in Medauroidea extradentata. Sci Rep. 2025;15(1):2584.
- Cavallin M. [“Substitutive polyembryony” and the problem of germinal line origin in the phasma Carausius morosus Br]. C R Acad Hebd Seances Acad Sci D. 1971;272(3):462-5.
- Giorgi F, Cecchettini A, Masetti M. Changes in the patterns of proteins stored and synthesized by developing embryos of the stick insect Carausius morosus Br. Comp Biochem Physiol B. 1990;95(1):107-13.
- Pijnacker LP, Godeke J. Development of ovarian follicle cells of the stick insect, Carausius morosus Br. (Phasmatodea), in relation to their function. Int J Insect Morphol Embryol. 1984;13(1):21-8.
- Pijnacker LP. Effect of centrifugation of the eggs on the sex of Carausius morosus Br. Nature. 1966;210(5041):1184-5.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila model system. Genetics. 2015;201(3):815-42.
- Truman JW, Riddiford LM. The evolution of insect metamorphosis: a developmental and endocrine view. Philos Trans R Soc Lond B Biol Sci. 2019;374(1783):20190070.
- Truman JW, Riddiford LM. The origins of insect metamorphosis. Nature. 1999;401(6752):447-52.
- Bedford GO. Description and development of the eggs of two stick insects (Phasmatodea: Phasmatidae) from New Britain. Aust J Entomol. 1977;15(4):389-93.
- Kim MJ, et al. Development of a phenology model for egg hatching of walking-stick insect, Ramulus mikado (Phasmatodea: Phasmatidae) in Korea. Forests. 2023;14(9):1710.
- Lee J, et al. Temperature-dependent development and oviposition models of Ramulus irregulariterdentatus (Phasmida: Phasmatidae). J Asia Pac Entomol. 2018;21(3):903-13.
- Donoughe S, Extavour CG. Embryonic development of the cricket Gryllus bimaculatus. Dev Biol. 2016;411(1):140-56.
- Conle O, Hennemann F, Riquelme PV, Kneubühler B. Phasmatodea [Internet]. 2000. Available from: https://www.phasmatodea.com/
- Ventura MK, Stull VJ, Paskewitz SM. Maintaining laboratory cultures of Gryllus bimaculatus, a versatile orthopteran model for insect agriculture and invertebrate physiology. J Vis Exp. 2022; (184):e63277.
- de Miranda JR, et al. Virus diversity and loads in crickets reared for feed: implications for husbandry. Front Vet Sci. 2021;8:642085.
- Roark AM, Bjorndal KA. Bridging developmental boundaries: lifelong dietary patterns modulate life histories in a parthenogenetic insect. PLoS One. 2014;9(11):e111654.
Reimpresiones y permisos
