Este protocolo describe un método de imagenología con células vivas y lapso de tiempo para visualizar la fagocitosis de células de cáncer de mama triple negativo marcadas con proteína verde fluorescente por macrófagos derivados de células mononucleares de sangre periférica, mediante el uso de un microscopio automatizado.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de método
Imágenes de lapso de tiempo de la fagocitosis de células de cáncer de mama triple negativo marcadas con proteína de fluorescencia verde por macrófagos mediada por anticuerpos
* These authors contributed equally
En este artículo
Resumen
Resumen
La fagocitosis celular dependiente de anticuerpos es un mecanismo clave mediante el cual los macrófagos engloban células cancerosas opsonizadas con anticuerpos. Este protocolo describe un método de imágenes en vivo con lapso de tiempo para visualizar la fagocitosis mediada por macrófagos dependiente de anticuerpos en células de cáncer de mama triple negativo que expresan la proteína verde fluorescente y CD24. Los macrófagos se obtienen a partir de células mononucleares de sangre periférica humana, se diferencian con factor estimulante de colonias de macrófagos y se polarizan usando interferón gamma y lipopolisacárido para generar un fenotipo proinflamatorio. Las células cancerosas se opsonizan con un anticuerpo monoclonal anti-CD24 antes de la co-cultura con macrófagos a una proporción definida de efector a blanco. Los eventos fagocíticos se registran durante un período de 16 h mediante un microscopio automatizado equipado con control ambiental para mantener condiciones fisiológicas. Las imágenes se obtienen mediante canales de campo claro y fluorescencia, lo que permite identificar las células cancerosas y monitorear su internalización por los macrófagos. Imágenes representativas con lapso de tiempo muestran el englobamiento progresivo de células cancerosas fluorescentes a lo largo del tiempo. Para permitir una evaluación cuantitativa, se realiza un ensayo paralelo de punto final bajo condiciones idénticas de co-cultura, en el cual se eliminan las células cancerosas no internalizadas antes del análisis de imágenes, permitiendo una medición precisa de los eventos fagocíticos. Este método proporciona un enfoque estandarizado y reproducible para visualizar in vitro la fagocitosis mediada por anticuerpos en macrófagos. Es importante destacar que la integración de imágenes con lapso de tiempo con cuantificación basada en puntos finales permite una evaluación complementaria de la cinética y la magnitud de la fagocitosis. Este protocolo facilita la evaluación de anticuerpos terapéuticos y terapias inmunológicas contra el cáncer dirigidas a macrófagos en un entorno in vitro controlado.
Introducción
El cáncer de mama es la malignidad diagnosticada con mayor frecuencia entre las mujeres en todo el mundo, representando aproximadamente 2,3 millones de nuevos casos anualmente1. La enfermedad es clínicamente heterogénea y se clasifica en al menos cuatro subtipos moleculares principales según el estado de los receptores hormonales: receptor de estrógeno (ER) y receptor de progesterona (PR), así como la expresión del oncogén del receptor 2 del factor de crecimiento epidérmico humano (HER2)2. Los tumores luminales A expresan ER y/o PR sin sobreexpresión de HER2 (ER/PR+ y HER2−); los tumores luminales B expresan simultáneamente ER/PR y HER2 (ER/PR+ y HER2+); los tumores HER2+ se caracterizan por una alta expresión de HER2 independientemente del estado de los receptores hormonales; y el cáncer de mama triple negativo (TNBC) carece de expresión de los tres marcadores (ER−, PR− y HER2−)2,3. Entre estos subtipos, el TNBC representa la forma clínicamente más desafiante y constituye aproximadamente del 15% al 20% de todos los cánceres de mama. Los pacientes con TNBC presentan el curso de enfermedad más agresivo, con el peor pronóstico y la menor supervivencia general a 5 años, debido a la escasa respuesta a la quimioterapia convencional y a la ausencia de terapias dirigidas efectivas3,4. Además, el TNBC muestra una marcada tendencia a la metástasis visceral, particularmente hacia los pulmones dentro de los 5 años posteriores al diagnóstico, y los pacientes con TNBC avanzado o metastásico (mTNBC) tienen una supervivencia mediana que rara vez supera los 2 años5,6. Estas estadísticas resaltan la necesidad crítica e insatisfecha de nuevas estrategias terapéuticas para el TNBC.
El microambiente tumoral (TME) desempeña un papel fundamental en la progresión del cáncer de mama y en la evasión inmunitaria. Los macrófagos asociados al tumor se encuentran entre las células inmunitarias más abundantes dentro del TME y recientemente han sido reconocidos como mediadores críticos de la inmunidad innata antitumoral7,8,9. Aunque históricamente los macrófagos asociados al tumor se dividían en estados proinflamatorios «M1» y protumorales «M2», este modelo binario no logra capturar la verdadera heterogeneidad de los macrófagos. Por el contrario, los macrófagos asociados al tumor ocupan un espectro funcional dinámico que evoluciona en respuesta a las diversas señales bioquímicas presentes en el TME. En este complejo entorno, las células cancerosas subvierten activamente la actividad de los macrófagos mediante diversas estrategias de evasión inmunitaria, especialmente la sobreexpresión de señales de «no me comas». El eje CD47/SIRPα fue la primera señal de control inmunitario innato identificado en este contexto6,10, y más recientemente, el CD24 ha surgido como una nueva y potente señal antifagocítica11,12. El CD24 es una pequeña glucoproteína tipo mucina, altamente glicosilada, anclada a la membrana celular mediante un enlace fosfatidilinositol glucosílico13. Se expresa en diversas linajes de células inmunitarias en condiciones fisiológicas, pero con frecuencia está sobreexpresado en tumores sólidos, incluyendo cánceres de mama, ovárico, pancreático y colorrectal14. En las células tumorales, el CD24 se une al receptor inhibitorio denominado lectina tipo inmunoglobulina que se une a ácido siálico 10 (Siglec-10), expresado en los macrófagos. Esta interacción desencadena la fosforilación de los dominios de motivos inhibitorios basados en tirosina del receptor inmunitario en la cola citoplasmática del Siglec-10, activando las fosfatasas SHP-1 y SHP-2 que suprimen la señalización fagocítica descendente11. Se ha demostrado que la inhibición de la interacción CD24/Siglec-10 mediante un anticuerpo monoclonal aumenta considerablemente la fagocitosis de tumores humanos que expresan CD24 por parte de los macrófagos. Nuestro estudio reciente también mostró que la eliminación del CD24a en células de cáncer de mama incrementa su susceptibilidad a la fagocitosis por macrófagos en un modelo murino de cáncer de mama triple negativo9.
La fagocitosis celular dependiente de anticuerpos (ADCP) es un mecanismo fundamental mediante el cual los anticuerpos dirigen a los macrófagos para que fagociten células tumorales15,16. Tras unirse a antígenos expresados en las células tumorales, la región Fc del anticuerpo interactúa con los receptores Fcγ (FcγR) en los macrófagos, desencadenando cascadas de señalización intracelular que culminan en la reorganización del citoesqueleto, la formación de la copa fagocítica y la internalización de la célula diana17.
En este estudio, desarrollamos y validamos un protocolo de imagenología en células vivas con lapso de tiempo para medir la fagocitosis de células de cáncer de mama mediada por anticuerpos en macrófagos. El método utiliza macrófagos derivados de células mononucleares de sangre periférica (PBMC) de donantes humanos sanos, diferenciados con factor estimulante de colonias de macrófagos (M-CSF) y posteriormente estimulados con lipopolisacárido (LPS) e interferón gamma (IFN-γ). El análisis mediante citometría de flujo confirmó la sobreexpresión de CD80 dentro de la población CD11b⁺ tras la estimulación (Figura 1), lo que respalda el fenotipo clásicamente activado. Este estado de activación confiere una capacidad robusta de fagocitosis mediada por anticuerpos, lo que lo hace adecuado para evaluar la fagocitosis celular dependiente de anticuerpos (ADCP). Las células diana son células de cáncer de mama positivas para CD24 marcadas con GFP, que se opsonizan con un anticuerpo monoclonal terapéutico anti-CD24 antes de la co-cultura. Los eventos fagocíticos se registran durante un período de 16 h mediante un microscopio automatizado bajo condiciones ambientales controladas. Para permitir una evaluación cuantitativa paralela a la visualización dinámica, se realiza un ensayo independiente de punto final bajo condiciones idénticas de co-cultura, lo que permite una medición rigurosa de la fagocitosis tras la eliminación de las células diana no internalizadas. Este protocolo proporciona una plataforma estandarizada, reproducible y visualmente informativa para evaluar la ADCP mediada por un anticuerpo anti-CD24. Es importante destacar que la integración de la imagenología con lapso de tiempo con una estrategia complementaria de cuantificación basada en puntos finales permite la evaluación simultánea de la cinética y la magnitud de la fagocitosis. El método puede adaptarse para investigar otros objetivos inmunoterapéuticos dirigidos a macrófagos. Este protocolo es especialmente adecuado para evaluar la ADCP mediada por anticuerpos monoclonales terapéuticos contra antígenos de superficie en células cancerosas. Es ideal para la selección comparativa de anticuerpos candidatos, la caracterización de respuesta a la dosis y estudios mecanicistas de la interacción Fc–FcγR, incluyendo los efectos del bloqueo de las señales de «no me comas» (por ejemplo, CD47–SIRPα). Dado que el ensayo utiliza macrófagos humanos primarios, también es apropiado para estudios traslacionales que requieran evaluar la variabilidad entre donantes antes del desarrollo clínico.
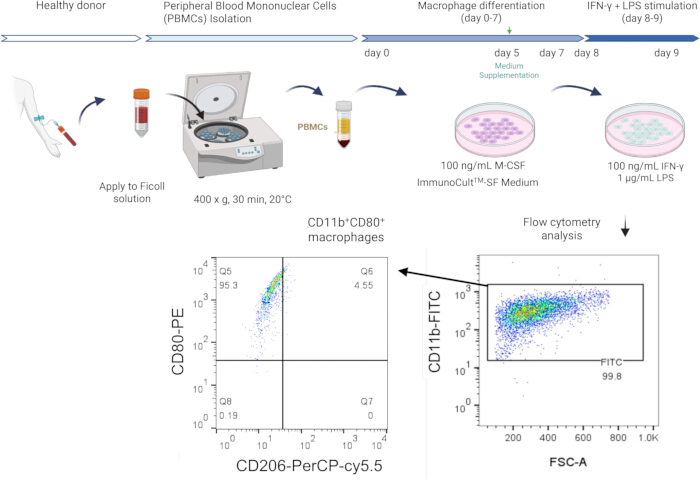
Figura 1. Generación y validación mediante citometría de flujo de macrófagos estimulados con IFN-γ/LPS derivados de células mononucleares de sangre periférica. Panel superior: Las células mononucleares de sangre periférica (PBMCs) se aíslan de donantes sanos mediante centrifugación en gradiente de densidad utilizando solución de Ficoll a 400 × g durante 30 min a 20°C, con todos los reactivos pre-equilibrados a 20°C ± 2°C. Las PBMCs aisladas se cultivan en medio ImmunoCult-SF suplementado con 100 ng/mL de factor estimulante de colonias de macrófagos (M-CSF) durante 7 días para inducir la diferenciación a macrófagos (Día 0–7), con suplementación del medio al Día 5. Al Día 8, los macrófagos diferenciados se estimulan con 100 ng/mL de IFN-γ y 1 µg/mL de LPS durante 48 h (Día 8–10). Posteriormente, las células se someten a análisis por citometría de flujo. Panel inferior: Análisis por citometría de flujo de macrófagos. Las células se tiñeron con un panel de superficie compuesto por CD11b-FITC, CD80-PE y CD206-PerCP-Cy5.5, seguido de la adición de DAPI antes de la adquisición para excluir células muertas. Estrategia de selección: Primero, las células se seleccionaron según viabilidad (DAPI⁻), seguido de la identificación de CD11b⁺ en un gráfico de CD11b-FITC versus FSC-A para confirmar la identidad de macrófago. Los eventos viables CD11b⁺ se analizaron luego en un gráfico de puntos de CD80 versus CD206 para confirmar la población CD80⁺CD206⁻ inducida por la estimulación con IFN-γ/LPS. Derecha: Gráfico de puntos representativo de CD11b-FITC versus FSC-A que muestra que el 99,8 % de las células seleccionadas fueron CD11b⁺, confirmando la identidad de macrófago. Izquierda: La mayoría de las células CD11b⁺ se ubicaron dentro de la puerta CD80⁺CD206⁻ (Q1: 95,2 %), lo que indica el fenotipo proinflamatorio esperado bajo las condiciones de estimulación aplicadas. Haga clic aquí para ver una versión ampliada de esta figura.
Los usuarios deben considerar varias limitaciones al aplicar esta técnica. Primero, la variabilidad entre donantes en los macrófagos derivados de PBMC puede introducir una varianza considerable en el rendimiento fagocítico, y recomendamos utilizar múltiples donantes (n ≥ 3) con los datos individuales de cada donante reportados junto con los resultados agrupados. Segundo, el formato de co-cultivo en 2D no reproduce el microambiente tumoral, y los hallazgos deben validarse en modelos en 3D o in vivo antes de realizar inferencias clínicas. Tercero, la ventana de imagen de 16 horas captura eventos fagocíticos tempranos, pero no refleja procesos a más largo plazo, como la presentación de antígenos o la activación inmune secundaria. Por lo tanto, el uso combinado de imágenes en tiempo real y cuantificación en el punto final proporciona un marco complementario que mejora la interpretabilidad y la reproducibilidad de las mediciones de ADCP.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Protocolo
Este protocolo implica el uso de macrófagos primarios derivados de muestras de sangre de donantes sanos. La recolección y el procesamiento de las muestras se realizaron de acuerdo con las directrices del Comité de Revisión Institucional (IRB) de la Universidad Médica de China.
1. Preparación de macrófagos derivados de PBMC
NOTA: Realice todos los procedimientos que involucren sangre humana bajo la aprobación del comité institucional de revisión (IRB) (por ejemplo, CMUH IRB). Obtenga el consentimiento informado de los donantes sanos antes de la recolección de sangre.
PRECAUCIÓN: manipule todos los productos sanguíneos humanos bajo condiciones de Nivel de Bioseguridad 2 utilizando precauciones universales.
- Recolección de sangre
- Recolectar sangre completa de un donante sano en tubos vacutainer recubiertos con ácido etilendiaminotetraacético (EDTA) de 10 mL.
- Dilución de la sangre
- Diluir la sangre completa en una proporción 1:1 con solución salina tamponada con fosfato fría (PBS; sin Ca2⁺/Mg2⁺) (por ejemplo, 10 mL de sangre + 10 mL de PBS).
- Mezclar invirtiendo el tubo de tres a cinco veces.
NOTA: Mantener el PBS en hielo antes de su uso. La baja temperatura ayuda a preservar la viabilidad celular durante el procesamiento.
- Capa de gradiente de densidad
- Superponer cuidadosamente la sangre diluida sobre Ficoll–Paque PLUS en una proporción de volumen 2:1 (v/v) en un tubo cónico (por ejemplo, 8 mL de sangre sobre 4 mL de Ficoll en un tubo de 15 mL, o 30 mL sobre 15 mL en un tubo de 50 mL).
- Equilibrar tanto la sangre diluida como el Ficoll–Paque PLUS a 20°C ± 2°C antes de la superposición.
- Retirar el Ficoll–Paque PLUS del almacenamiento a 4°C al menos 30 minutos antes del uso, o calentarlo brevemente en un baño de agua a 20°C ± 2°C.
- No utilizar reactivos fríos, ya que la densidad del Ficoll está calibrada para 20°C ± 2°C, y las desviaciones comprometerán la eficiencia de separación y el rendimiento de PBMC.
NOTA: Inclinar el tubo a un ángulo de 45° y pipetear la sangre lentamente por la pared para mantener una interfase definida. No perturbar la capa de Ficoll.
- Centrifugación
- Centrifugar a 400 × g durante 30 minutos a 20°C con el freno desactivado (Figura 1).
NOTA: El frenado interrumpirá el gradiente de densidad y reducirá el rendimiento de PBMC.
- Centrifugar a 400 × g durante 30 minutos a 20°C con el freno desactivado (Figura 1).
- Recolección de PBMC
- Aspirar cuidadosamente solo la capa de buffy coat (la interfase blanquecina entre las capas de plasma y Ficoll), sin perturbar el plasma superior ni la capa de Ficoll inferior, utilizando una pipeta serológica.
- Transferir la capa recolectada a un nuevo tubo cónico de 50 mL.
- Lavado de PBMC
- Añadir PBS para alcanzar un volumen total de 25 mL en un tubo cónico de 50 mL.
- Utilizar un tubo de 50 mL para asegurar una centrifugación y equilibrado adecuados.
- Centrifugar a 300 × g durante 10 minutos.
- Lisis de glóbulos rojos
- Desechar el sobrenadante.
- ReSuspender el sedimento en 5 mL de tampón de lisis de glóbulos rojos (RBC) mediante pipeteo suave hacia arriba y hacia abajo con una pipeta serológica hasta que el sedimento esté completamente disperso y no queden grumos visibles.
- Incubar a temperatura ambiente durante 5 minutos.
ADVERTENCIA: Es necesario lograr una dispersión completa para asegurar una lisis uniforme; sin embargo, evitar pipetear con fuerza o usar vórtex, ya que podría dañar los PBMC. No exceder los 5 minutos de incubación con el tampón de lisis de glóbulos rojos, ya que una exposición prolongada podría comprometer la viabilidad de los PBMC.
- Sedimentación de PBMC
- Centrifugar a 500 × g durante 5 minutos para sedimentar los PBMC y eliminar los restos de glóbulos rojos lisados.
- ReSuspensión final
- Desechar el sobrenadante.
- ReSuspender el sedimento en 5 mL de medio macrofágico ImmunoCult-SF.
NOTA: En condiciones estándar, 10 mL de sangre completa suelen producir entre 1,5–2,0 × 10⁷ PBMC.
2. Diferenciación de macrófagos (días 0–7)
NOTA: Utilice placas de Petri no tratadas para cultivo de tejidos (TC) para seleccionar macrófagos diferenciados derivados de monocitos mediante adhesión. Los linfocitos no adherentes se eliminarán mediante lavado durante el cultivo subsiguiente.
- Día 0: Siembra celular
- Realice el conteo celular y siembre 1 × 10⁷ PBMC en una placa de Petri de 10 cm no tratada para cultivo celular (TC).
- Lleve el volumen total a 10 mL utilizando medio para macrófagos ImmunoCult-SF suplementado con 100 ng/mL de M-CSF (preparado añadiendo el stock de M-CSF directamente al medio completo inmediatamente antes de su uso y mezclando mediante inversión suave).
NOTA: El protocolo puede escalarse proporcionalmente para adaptarse a variaciones en el rendimiento de PBMC del donante, utilizando una densidad de siembra a partir de 1 × 10⁶ células/mL como referencia.
- Incubación y monitoreo
- Incube a 37°C con 5% de CO₂ en un incubador humedecido.
- Monitoree diariamente la formación de agregados de monocitos en suspensión y la aparición de células adherentes.
NOTA: Los monocitos aumentarán gradualmente de tamaño y formarán agregados conforme avance la diferenciación. Algunos monocitos comenzarán a adherirse a la placa. No se requiere ninguna intervención en este paso.
- Día 5: Suplementación del medio
- Añada suavemente 5 mL de medio fresco para macrófagos ImmunoCult-SF suplementado con 100 ng/mL de M-CSF a la placa, teniendo cuidado de no perturbar los macrófagos adherentes.
- Continúe el cultivo durante 2 días adicionales (hasta el día 7).
ADVERTENCIA: Añada el medio fresco suavemente por la pared de la placa para evitar perturbar los macrófagos adherentes, ya que la perturbación mecánica podría afectar la eficiencia de diferenciación y el rendimiento celular.
NOTA: Evite reemplazar el medio para preservar los factores autocrinos/paracrinos que favorecen la diferenciación de macrófagos.
- Día 7: Evaluación morfológica
- Examine la eficiencia de diferenciación de macrófagos mediante microscopía invertida.
- Las células adherentes presentan una morfología característica de macrófago: grandes, aplanadas y de forma irregular, con pseudópodos visibles.
- El día 7 deberían observarse macrófagos bien diferenciados.
ADVERTENCIA: La evaluación morfológica el día 7 constituye un requisito previo crítico para la validación posterior mediante citometría de flujo. Los macrófagos bien diferenciados deben ser claramente visibles al microscopio, y una mayor proporción de células adherentes con morfología de macrófago refleja una mayor eficiencia de diferenciación (aproximadamente un 70% de confluencia de macrófagos adherentes con morfología característica se considera indicativo de una diferenciación exitosa). Los cultivos que muestren escasa adherencia, células predominantemente redondeadas u otra diferenciación morfológica deficiente probablemente no proporcionen resultados confiables en citometría de flujo y no deben avanzar hacia la estimulación y tinción.
3. Polarización de macrófagos (días 8–10)
- Recogida y clarificación del medio acondicionado
- En el día 8, aspire cuidadosamente los 15 mL de medio del plato de cultivo sin perturbar los macrófagos adherentes y transfiéralos a un tubo cónico estéril de 50 mL.
- Centrifugue el medio recogido a 400 × g durante 5 min para obtener un sedimento con los restos celulares.
- Guarde el sobrenadante clarificado para el siguiente paso.
- Estimulación con interferón gamma (IFN-γ) y lipopolisacárido (LPS)
- Transfiera los 15 mL de sobrenadante clarificado a un tubo estéril nuevo y suplemente con 100 ng/mL de IFN-γ y 1 µg/mL de LPS.
- Mezcle bien mediante pipeteo suave hacia arriba y hacia abajo (5–10 veces) para asegurar una distribución uniforme de las citocinas sin introducir burbujas.
- Devuelva los 15 mL completos del medio suplementado con citocinas al plato de cultivo original, pipeteando suavemente a lo largo de la pared interna para evitar perturbar los macrófagos adherentes.
- Incube a 37°C con 5% de CO₂ durante 48 h (del día 8 al día 10).
NOTA: Utilice medio acondicionado (viejo) para preservar los factores autocrinos/paracrinos. Esta combinación de IFN-γ y LPS se utiliza para polarizar los macrófagos hacia un fenotipo proinflamatorio. Bajo las condiciones de estimulación con IFN-γ (100 ng/mL) y LPS (1 µg/mL) empleadas en este protocolo, los macrófagos muestran cambios morfológicos característicos, incluyendo láminas citoplasmáticas alargadas, consistentes con un estado activado proinflamatorio, así como expresión de CD11b y CD80.
ADVERTENCIA: Manipule el LPS siguiendo los procedimientos adecuados de seguridad en el laboratorio, ya que es un endotoxina bioactiva que puede provocar respuestas inflamatorias tras la exposición.
4. Confirmación de los marcadores del fenotipo inflamatorio de macrófagos estimulados con IFN-γ y LPS mediante citometría de flujo
- Recolección de células
- Recolecte un subconjunto de macrófagos polarizados en el día 10 para la fenotipificación.
- Añada 10 mM de EDTA en PBS e incube durante 10–15 min a 37°C.
- Desprenda las células mediante pipeteo suave.
NOTA: Prolongue la incubación con EDTA durante 30 min adicionales a 37°C si las células siguen adheridas, luego repita el pipeteo suave. Evite el pipeteo vigoroso o el raspado mecánico para preservar la viabilidad celular y la integridad de los marcadores de superficie.
- Preparación de la tinción con anticuerpos
- Marque las células con anticuerpos conjugados con fluorocromo contra CD11b (marcador de linaje pan-macrófago), CD80 (marcador inflamatorio) y CD206 (marcador antiinflamatorio utilizado como marcador de exclusión negativo para la identificación del fenotipo inflamatorio).
- Procedimiento de tinción
- Transfiera 5 × 10⁵ macrófagos desprendidos a un tubo de citometría de flujo que contenga 100 µL de PBS frío.
- Añada los anticuerpos CD11b-FITC, CD80-PE y CD206-PerCP-Cy5.5 a una concentración final de 1 µg/mL cada uno.
- Mezcle la suspensión celular mediante pipeteo suave.
- Incube las muestras en hielo durante 1 h, protegidas de la luz.
- Centrifugue las muestras a 300 × g durante 1 min a 4°C.
- Aspire cuidadosamente el sobrenadante.
- Añada 0,5 mL de PBS frío para lavar el botón celular.
- Centrifugue las muestras a 300 × g durante 1 min a 4°C.
- Descarte el sobrenadante.
- Resuspenda el botón celular en 200 µL de PBS frío.
- Añada DAPI a una concentración final de 1 µg/mL.
NOTA: Incluya controles de isotipo adecuados y un colorante de viabilidad (por ejemplo, DAPI o Viobility 405/452 Fixable Dye).
- Análisis por citometría de flujo
- Adquiera las muestras marcadas utilizando un citómetro de flujo.
- Confirme la expresión de CD11b y CD80 en la población de macrófagos.
- Continúe con el ensayo de fagocitosis solo tras confirmar la expresión de marcadores compatible con un fenotipo inflamatorio.
- Adquisición y configuración de la citometría de flujo
- Configuración del instrumento
- Configure el citómetro de flujo utilizando los siguientes canales: Pacific Blue/V450 (DAPI), FITC (CD11b), PE (CD80) y PerCP-Cy5.5 (CD206).
- Establezca el parámetro de adquisición para recolectar 10.000 eventos por muestra dentro de la puerta principal definida.
- Calibración del umbral y la ganancia
- Abra cuatro diagramas de dispersión que muestren FSC en el eje x y un canal de fluoróforo en el eje y.
- Prepare células marcadas con anticuerpos de control de isotipo correspondientes a cada fluoróforo.
- Adquiera las muestras de control de isotipo.
- Ajuste la ganancia de cada canal para posicionar la población de control de isotipo por debajo de 101 en la escala logarítmica.
- Utilice este umbral para definir los niveles de señal de fondo.
NOTA: Utilice un rango de escala logarítmica de 101 a 101·5 para establecer una separación confiable entre la señal de fondo y la señal específica.
- Compensación
- Añada una gota de perlas de compensación a un tubo microcentrífugo de 1,5 mL.
- Añada el anticuerpo conjugado con el fluoróforo correspondiente a una concentración final de 1 µg/mL.
- Incube durante 30 min en hielo, protegido de la luz.
- Centrifugue a 400 × g durante 1 min.
- Descarte el sobrenadante.
- Resuspenda las perlas en 200 µL de PBS frío.
- Adquiera controles monocromáticos.
- Aplique compensación espectral para corregir el derrame de fluoróforos.
- Estrategia de puertas
- Selección de células viables
- Muestre Pacific Blue/V450 (DAPI) en el eje y y FSC en el eje x.
- Defina una puerta sobre los eventos negativos para DAPI (por debajo de 101) para seleccionar células viables.
- Identificación de macrófagos
- Establezca la población de células viables como puerta principal.
- Muestre FITC (CD11b) en el eje y y FSC en el eje x.
- Defina una puerta sobre los eventos CD11b⁺ (por encima de 101).
- Identificación del fenotipo inflamatorio
- Establezca la población CD11b⁺ como puerta principal.
- Muestre PE (CD80) en el eje y y PerCP-Cy5.5 (CD206) en el eje x.
- Aplique una división en cuadrantes en 101.5 en ambos ejes.
- Identifique las células CD80⁺CD206⁻ en el cuadrante superior izquierdo (Q1).
- Selección de células viables
- Configuración del instrumento
- Criterios de aceptación
- Confirme que ≥90% de las células dentro de la puerta principal CD11b⁺ sean CD80⁺CD206⁻.
- Continúe con el ensayo de fagocitosis solo cuando se alcance este umbral.
- Repita el aislamiento de PBMC, la diferenciación con M-CSF y la estimulación con IFN-γ/LPS si las muestras no cumplen con este criterio.
5. Ensayo de fagocitosis dependiente de anticuerpos
NOTA: Verifique la expresión estable de GFP en las células cancerosas antes de configurar el ensayo. Confirme la expresión de CD24 en las células diana antes del ensayo. Utilice células cancerosas con una positividad para CD24 del 50 % al 100 % para obtener un rendimiento óptimo. Las células MDA-MB-468 utilizadas en este protocolo presentan una positividad del 100 % para CD24.
- Siembra de macrófagos
- Siembre macrófagos estimulados con IFN-γ y LPS, como se validó en el paso 4, a 2 × 10⁵ células por pocillo en una placa de cultivo celular de 24 pocillos.
- Incube la placa a 37°C en condiciones estáticas con 5% de CO₂ durante 12–16 h para permitir la adherencia celular (Figura 2A).
NOTA: Asegúrese de que los macrófagos se adhieran firmemente antes de continuar. Los macrófagos mal adheridos podrían desprenderse durante la imagen y confundir los resultados.
- Preparación de células cancerosas
- Cultive células de cáncer de mama marcadas con GFP y positivas para CD24 (MDA-MB-468) hasta alcanzar una confluencia del 70%–80%.
- Aspire el medio de cultivo.
- Lave la monocapa celular una vez con PBS.
- Desprendimiento de células cancerosas
- Añada EDTA 10 mM en PBS al recipiente de cultivo.
- Incube las células a 37°C durante 5–10 min.
- Desprenda las células mediante pipeteo suave para lograr la liberación completa de las células.
NOTA: Evite el uso de tripsina para el desprender las células. La digestión enzimática podría escindir CD24 de la superficie celular y comprometer la unión del anticuerpo.
- Recolección y conteo de células cancerosas
- Recoja las células desprendidas en un tubo de centrífuga.
- Centrifugue las células a 300 × g durante 5 min.
- Deseche el sobrenadante.
- Resuspenda el sedimento celular en medio RPMI completo.
- CUente las células viables.
- Opsonización con anticuerpos de células cancerosas
- Resuspenda las células cancerosas a una densidad de 2 × 10⁵ células/mL en 0,5 mL de medio RPMI completo.
- Añada el anticuerpo monoclonal anti-CD24 hasta una concentración final de 1 µg/mL.
- Mezcle la suspensión celular mediante pipeteo suave para asegurar una distribución uniforme del anticuerpo.
- Incube las células a 37°C durante 30 min en condiciones estáticas.
NOTA: Incluya un control de IgG con isotipo emparejado a la misma concentración como control negativo para la fagocitosis dependiente de anticuerpos.
- Preparación para el co-cultivo
- No lave las células después de la opsonización.
- Proceda directamente al co-cultivo para mantener el recubrimiento de anticuerpos en la superficie celular.
- Configuración del co-cultivo
- Añada 1 × 10⁵ células de cáncer de mama marcadas con GFP y opsonizadas con anticuerpos a cada pocillo que contenga macrófagos.
- Mantenga una relación efector-objetivo de 2:1.
NOTA: Ajuste la relación efector-objetivo según el diseño experimental. Utilice relaciones más altas de macrófagos respecto a células cancerosas que la relación 2:1 descrita (por ejemplo, 3:1 o 5:1) para aumentar la frecuencia de contacto célula-célula y mejorar la detección de eventos fagocíticos.
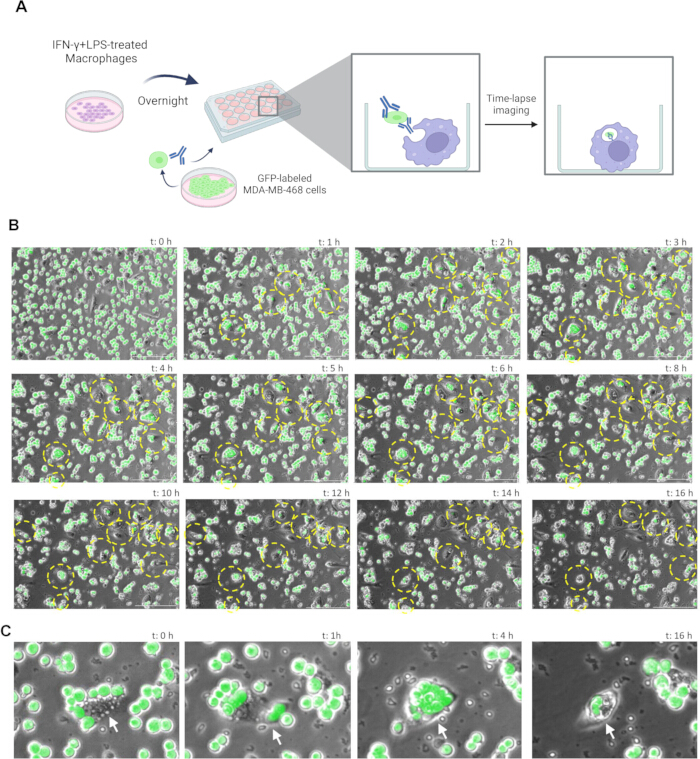
Figura 2. Imagen de lapso de tiempo de la fagocitosis celular dependiente de anticuerpos. (A) Esquema general del sistema de co-cultivo y del montaje para la adquisición de imágenes de lapso de tiempo. Los parámetros de imagen incluyeron intervalos de 10 min durante un tiempo total de adquisición de 16 h (97 cuadros), utilizando un objetivo de 10× con canales de contraste de fase y GFP. (B) Imágenes representativas de lapso de tiempo desde 1 h hasta 16 h que muestran eventos fagocíticos caracterizados por la internalización de células cancerosas GFP-positivas por los macrófagos a lo largo del tiempo. Círculos discontinuos amarillos resaltan eventos fagocíticos representativos. En el canal de contraste de fase, las células cancerosas ingeridas aparecen como estructuras intracelulares brillantes en el citoplasma del macrófago (flechas blancas). En el canal GFP, la fluorescencia localizada dentro de los macrófagos confirma la internalización. (C) Vistas ampliadas de eventos fagocíticos representativos a las 0, 1, 4 y 16 h, que ilustran el proceso secuencial de englobamiento mediado por macrófagos de células cancerosas marcadas con GFP. La secuencia de imágenes se seleccionó como representativa basándose en la visualización clara de eventos fagocíticos mediados por macrófagos. Las flechas blancas indican macrófagos que interactúan con y internalizan células diana. Haga clic aquí para ver una versión más grande de esta figura.
6. Imagen de lapso de tiempo (sistema automatizado de imagen en células vivas)
NOTA: Configure el protocolo de imagen mediante un sistema automatizado de imágenes de células vivas Lionheart y el software Gen5 de imágenes automatizadas de células vivas antes del ensayo. Obtenga la capacitación adecuada antes de operar el sistema de imágenes para garantizar una configuración precisa, un rendimiento óptimo y un uso seguro.
- Preparación del instrumento
- Encienda el sistema de imagen, el módulo de control ambiental y el suministro de gas CO₂ al menos 1 h antes de la adquisición de imágenes.
- Abra el panel de Control Ambiental en el software automatizado de imágenes en células vivas.
- Establezca la temperatura en 37°C y el CO₂ en 5%.
- Confirme que la temperatura de la cámara se estabilice dentro de ± 0,2°C y el CO₂ en 5,0% ± 0,1% antes de colocar la placa.
- Preparación de la placa
- Coloque la placa de 24 pocillos en la cámara de imagen del sistema de adquisición.
- Configuración inicial
- Abra el Administrador de Tareas del software automatizado de imágenes en células vivas.
- Seleccione [Modo manual del imagenador].
- Haga clic en [Capturar ahora] para inicializar los parámetros de imagen.
- Seleccione un objetivo de 10×.
- Seleccione microplaca como ajuste del filtro.
- Seleccione una placa de 24 pocillos desde la biblioteca de placas del software automatizado de imágenes en células vivas.
- Enfoque y configuración de la imagen
- Seleccione el canal de Contraste de Fase.
- Seleccione un pocillo representativo (por ejemplo, A1).
- Active el enfoque automático antes de la adquisición de imágenes en intervalos de tiempo.
- Capture una imagen utilizando el icono de cámara.
- Confirme la morfología celular y la calidad del enfoque.
- Navegue hasta [Procesar/Analizar].
- Seleccione [Crear experimento a partir de un conjunto de imágenes] para configurar el experimento.
- Parámetros de adquisición en intervalos de tiempo
- Abra el panel de configuración [Procedimiento].
- Establezca la temperatura en 37°C y el CO₂ en 5%.
- En [Iniciar cinética], establezca el tiempo de ejecución en 16:00:00.
- Establezca el intervalo de adquisición de imágenes en 0:10:00.
- Establezca el número total de lecturas en 97.
- Utilice un intervalo de adquisición de imágenes de 10–15 min para equilibrar la resolución temporal y la fototoxicidad durante la captura de eventos fagocíticos tempranos.
- Configuración de canales de imagen
- Establezca el Canal 1 en Contraste de Fase.
- Establezca el Canal 2 en GFP (Ex 469/35, Em 525/39).
- Seleccione un objetivo de 10× para obtener un campo de visión y resolución óptimos.
- Establezca la iluminación, el tiempo de integración y la ganancia en [Automático], o ajústelos manualmente.
- Utilice un tiempo típico de exposición para GFP de 100–300 ms para evitar la saturación de la señal.
- Aplique los mismos parámetros de adquisición de imágenes en todos los pocillos.
- Configuración de posiciones de imagen
- Abra el menú [Definir balizas].
- Desactive la adquisición de cortes Z (Z-stack).
- Desactive la adquisición de mosaicos (montaje).
- Realice la adquisición de imágenes en un único plano focal.
- Defina manualmente las posiciones de imagen seleccionando regiones representativas y no superpuestas dentro de cada pocillo, utilizando el icono del microscopio.
- Mantenga posiciones idénticas de adquisición de imágenes en todos los puntos temporales.
- Seleccione al menos 4–6 campos de visión por pocillo.
- Adquisición en intervalos de tiempo
- Haga clic en [Reproducir] para iniciar la adquisición automatizada de imágenes en intervalos de tiempo.
- Exportación y visualización de datos
- Abra el archivo del experimento guardado tras la adquisición.
- Seleccione las posiciones de imagen.
- Exporte los datos de imágenes en intervalos de tiempo en formato MP4.
- Abra la [Herramienta de Procesamiento].
- Aplicar [Deconvolución de imagen] si es necesario para mejorar la visualización e identificar eventos representativos de fagocitosis.
NOTA: Utilice la adquisición de imágenes en intervalos de tiempo únicamente para visualización cualitativa. Las células cancerosas GFP-positivas que no han sido fagocitadas pueden solaparse o asociarse transitoriamente con macrófagos, lo que puede generar señales falsas positivas. Realice el análisis cuantitativo mediante un ensayo independiente al final del experimento.
7. Cuantificación del fagocitosis en el punto final
- Eliminación de células no internalizadas
- Realice el ensayo en condiciones de co-cultivo idénticas.
- Termine el experimento a las 4 h.
- Retire el medio de cultivo.
- Añada EDTA 10 mM en PBS.
- Incube a 37°C durante 5 min.
- Lave suavemente con PBS para eliminar las células positivas para GFP no internalizadas.
- Añada medio fresco para macrófagos.
- Adquisición de imágenes para cuantificación
- Adquiera imágenes utilizando los canales de contraste de fase y GFP.
- Capture al menos 4–6 campos de visión por pocillo.
- Analice un mínimo de tres pocillos por condición.
- Definición de eventos fagocíticos
- Identifique macrófagos que contengan señales positivas para GFP completamente encerradas dentro del límite celular.
- Análisis de imágenes
- Abra las imágenes en el software ImageJ.
- Utilice el complemento Cell Counter.
- Cuente el número total de macrófagos.
- Cuente los macrófagos que contienen células positivas para GFP internalizadas.
- Cálculo del índice de fagocitosis
- Calcule:
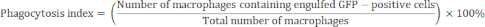
- Realice el análisis de manera ciega.
- Repita el análisis en al menos tres experimentos independientes.
- Calcule:
- Presentación de los datos
- Presente imágenes representativas de lapso de tiempo en orden cronológico (Figura 2B y Figura 2C).
- Presente imágenes representativas del punto final (Figura 3A y Figura 3B).
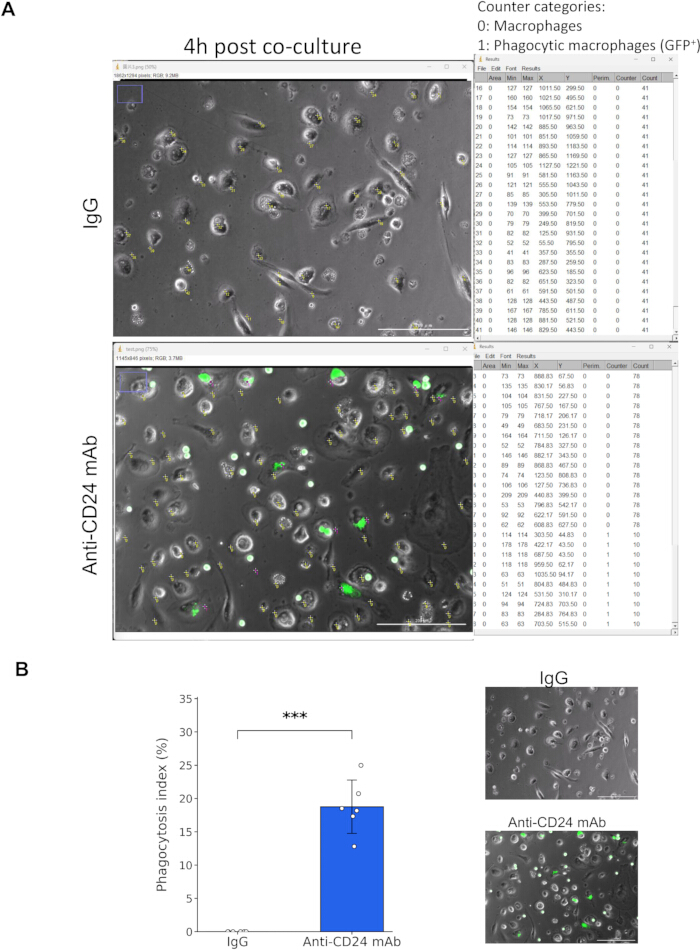
Figura 3. Cuantificación de la fagocitosis de macrófagos dependiente de anticuerpos mediante análisis de punto final. (A) Imágenes representativas de contraste de fase y de fluorescencia GFP de macrófagos co-cultivados con células de cáncer de mama marcadas con GFP durante 4 h, seguidas por la eliminación de las células no ingeridas mediante tratamiento con EDTA. Los canales de contraste de fase y GFP se fusionaron para identificar macrófagos y objetivos GFP-positivos internalizados. Se contabilizaron macrófagos (contador 0) y macrófagos fagocíticos GFP-positivos (contador 1) utilizando el complemento Cell Counter en ImageJ. En la condición control IgG, no se observaron eventos fagocíticos, mientras que el tratamiento con anticuerpo monoclonal anti-CD24 produjo señales intracelulares claras de GFP dentro de los macrófagos, lo que indica fagocitosis activa. Barra de escala = 200 µm. (B) Cuantificación del índice de fagocitosis, definido como el porcentaje de macrófagos que contienen células GFP-positivas internalizadas respecto a la población total de macrófagos. El anticuerpo monoclonal anti-CD24 aumentó significativamente el índice de fagocitosis en comparación con el control IgG (0,00 ± 0,00% frente a 18,76 ± 4,01%, media ± DE; n = 6 campos por grupo; ***p < 0,001, prueba t no pareada de Welch). Los datos son representativos de al menos tres experimentos independientes. Haga clic aquí para ver una versión ampliada de esta figura.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Resultados
Se confirmó con éxito la generación y polarización de macrófagos a partir de PBMC mediante evaluación morfológica y análisis de citometría de flujo (Figura 1). Los PBMC aislados mediante centrifugación en gradiente de densidad se cultivaron en medio suplementado con M-CSF, obteniéndose células adherentes con morfología característica de macrófagos para el día 7. Tras la estimulación con IFN-γ y LPS, las células mostraron un fenotipo consistente con la activación bajo las condiciones aplicada...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
Varios pasos en este protocolo son fundamentales para obtener resultados confiables y reproducibles. En primer lugar, la calidad y pureza del aislamiento de PBMC influyen directamente en el rendimiento de macrófagos y en la eficiencia de diferenciación. Es esencial realizar un cuidadoso estratificado de sangre diluida sobre el gradiente de Ficoll y una centrifugación con el freno desactivado para preservar la interfase del capa blanca. Una lisis incompleta de glóbulos rojos o una incubación excesiva con el tampón de lisi...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
Los autores no declaran ningún conflicto de intereses.
Agradecimientos
Este trabajo fue apoyado por el Centro de Biología del Cáncer y Terapéutica de Precisión, Universidad Médica de China, dentro del Programa de Centros de Investigación de Áreas Destacadas en el marco del Proyecto Brotes de Educación Superior del Ministerio de Educación (MOE) en Taiwán (CBPTC-PROJ-5-2).
Agradecemos al Centro de Biología del Cáncer y Terapéutica de Precisión por proporcionar financiamiento y apoyo académico.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Solución stock de ácido etilendiaminotetraacético (EDTA) 0,5 M | Sigma-Aldrich (o equivalente) | E7889 (o equivalente) | Utilizado para preparar una solución de trabajo de EDTA 10 mM en PBS para la disociación celular |
| Placas de cultivo celular de 24 pocillos (tratadas para cultivo tisular) | Corning (o equivalente) | 3524 | Utilizado para el cultivo conjunto de macrófagos y células cancerosas durante el ensayo de fagocitosis |
| Anticuerpo antihumano CD206 (citometría de flujo) | BioLegend (o equivalente) | 321122 (o equivalente) | Marcador para el fenotipo alternativo de macrófagos |
| Anticuerpo monoclonal anti-CD24 humano | Thermo Fisher Scientific (o equivalente) | MA1-91384 (o equivalente) | Utilizado para opsonizar células cancerosas para la fagocitosis dependiente de anticuerpos |
| Sistema automatizado de imagenología en células vivas con cámara de control ambiental (por ejemplo, Lionheart FX) | Agilent Technologies (o equivalente) | Microscopio automático BioTek Lionheart FX | Permite la obtención de imágenes de lapso de tiempo prolongado bajo temperatura controlada y 2 condiciones |
| Software de imagen para microscopía automatizada de células vivas (por ejemplo, Gen5) | Agilent Technologies (o equivalente) | N/A | Utilizado para la adquisición y el análisis de datos de imágenes de lapso de tiempo |
| Centrífuga (rotor de cubeta oscilante) | Thermo Fisher Scientific (o equivalente) | Multifuge X4R Pro con rotor TX-1000 (o equivalente) | Utilizado para el aislamiento de PBMC y los pasos de lavado celular |
| 2 incubadora (37°C, 5% 2) | Thermo Fisher Scientific (o equivalente) | Forma Direct Heat 2 Incubadora (o equivalente) | Mantiene condiciones fisiológicas para el cultivo celular |
| 2 suministro de gas con regulador | Agilent Technologies (o equivalente) | N/A | Suministros 2 para control ambiental del incubador y del sistema de imagen |
| Tubos cónicos (15 mL y 50 mL) | Corning (o equivalente) | 352070 (o equivalente) | Utilizado para el aislamiento, lavado y centrifugación de PBMC |
| Tubos para la recolección de sangre recubiertos con EDTA (vacutainer) | BD Biosciences (o equivalente) | 367863 (o equivalente) | Utilizado para la recolección de muestras de sangre completa de donantes |
| Ficoll-Paque PLUS | Cytiva (o equivalente) | 17144003 (o equivalente) | Medio de gradiente de densidad para el aislamiento de PBMCs |
| Citómetro de flujo (por ejemplo, FACSCanto II) | BD Biosciences (o equivalente) | BD FACSCanto II | Utilizado para el análisis fenotípico de macrófagos |
| Perlas de compensación (citometría de flujo) | Biolegend (o equivalente) | 424602 | Utilizado para controles de compensación de un solo color |
| anticuerpo FITC anti-CD11b humano (citometría de flujo) | BioLegend (o equivalente) | 101205 (o equivalente) | Marcador utilizado para identificar macrófagos |
| anticuerpo PE anti-CD80 humano (citometría de flujo) | BioLegend (o equivalente) | 375410 (o equivalente) | Marcador asociado con el fenotipo de macrófago activado |
| Línea celular de cáncer de mama que expresa GFP (MDA-MB-468) | ATCC (o equivalente) | HTB-132 (o equivalente) | Células diana utilizadas en el ensayo de fagocitosis; la GFP permite la visualización |
| Medio para macrófagos ImmunoCult-SF | STEMCELL Technologies (o equivalente) | 10961 (o equivalente) | Medio libre de suero utilizado para la diferenciación de macrófagos |
| Dulbecco’Medio de Eagle modificado (DMEM) | Thermo Fisher Scientific (o equivalente) | 12100046 | Utilizado para el cultivo y resuspensión de células cancerosas |
| Anticuerpo de control de isotipo (IgG) | Bio X Cell (o equivalente) | BE0297 (o equivalente) | Control negativo para el ensayo de fagocitosis dependiente de anticuerpos |
| Lipopolisacárido (LPS) | Sigma-Aldrich (o equivalente) | L2630 (o equivalente) | Estímulo utilizado para activar macrófagos en combinación con IFN-γ |
| Interferón gamma humano recombinante (IFN-γ) | STEMCELL Technologies (o equivalente) | 78020 (o equivalente) | Citocina utilizada para la activación de macrófagos |
| Factor estimulante de colonias de macrófagos recombinante humano (M-CSF) | STEMCELL Technologies (o equivalente) | 78057 (o equivalente) | Factor de crecimiento utilizado para la diferenciación de macrófagos |
| Pipetas de Pasteur o pipetas serológicas | Jetbiofil (o equivalente) | GSP010010 (o equivalente) | Utilizado para el manejo de líquidos durante el aislamiento de PBMC y el cultivo celular |
| PBS (Ca2+-/Mg2+-libre | Thermo Fisher Scientific (o equivalente) | BP399-500 (o equivalente) | Tampón utilizado para el lavado de células y los pasos de dilución |
| Placas de Petri (100 mm, no–tratado para cultivo de tejidos | Corning (o equivalente) | 430591 | Utilizado para la diferenciación de macrófagos mediante selección por adherencia |
| Buffer de lisis de glóbulos rojos (GR) | BioLegend (o equivalente) | 420301 (o equivalente) | Utilizado para eliminar glóbulos rojos durante el aislamiento de PBMC |
| Colorante fijable Viobility 405/452 | Miltenyi Biotec (o equivalente) | 130-130-404 (o equivalente) | Utilizado para evaluar la viabilidad celular durante el análisis de citometría de flujo |
| DAPI | Sigma-Aldrich (o equivalente) | D9542 (o equivalente) | Utilizado para la exclusión de células muertas en citometría de flujo |
Referencias
- Sung H, et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2021;71(3):209-249.
- Perou CM, et al. Molecular portraits of human breast tumours. Nature. 2000;406(6797):747-752.
- Foulkes WD, Smith IE, Reis-Filho JS. Triple-negative breast cancer. N Engl J Med. 363(20):1938-1948.
- Dent R, et al. Triple-negative breast cancer: Clinical features and patterns of recurrence. Clin Cancer Res. 2007;13(15 Pt 1):4429-4434.
- Lin NU, et al. Sites of distant recurrence and clinical outcomes in patients with metastatic triple-negative breast cancer: High incidence of central nervous system metastases. Cancer. 2008;113(10):2638-2645.
- Bianchini G, De Angelis C, Licata L, Gianni L. Treatment landscape of triple-negative breast cancer - expanded options, evolving needs. Nat Rev Clin Oncol. 2022;19(2):91-113.
- Lecoultre M, Dutoit V, Walker PR. Phagocytic function of tumor-associated macrophages as a key determinant of tumor progression control: A review. J Immunother Cancer. 2020;8(2).
- Mantovani A, Allavena P, Marchesi F, Garlanda C. Macrophages as tools and targets in cancer therapy. Nat Rev Drug Discov. 2022;21(11):799-820.
- Chan SH, Lin CY, Tseng HJ, Wang LH. Cd24a knockout results in an enhanced macrophage- and cd8⁺ t cell-mediated anti-tumor immune responses in tumor microenvironment in a murine triple-negative breast cancer model. J Biomed Sci. 2025;32(1):73.
- Majeti R, et al. CD47 is an adverse prognostic factor and therapeutic antibody target on human acute myeloid leukemia stem cells. Cell. 2009;138(2):286-299.
- Barkal AA, et al. CD24 signalling through macrophage siglec-10 is a target for cancer immunotherapy. Nature. 2019;572(7769):392-396.
- Wang X, et al. CD24-siglec axis is an innate immune checkpoint against metaflammation and metabolic disorder. Cell Metab. 2022;34(8):1088-1103.e1086.
- Chan SH, et al. Identification of the novel role of CD24 as an oncogenesis regulator and therapeutic target for triple-negative breast cancer. Mol Cancer Ther. 2019;18(1):147-161.
- Huang S, Zhang X, Wei Y, Xiao Y. Checkpoint CD24 function on tumor and immunotherapy. Front Immunol. 2024;15:1367959.
- Weiskopf K, Weissman IL. Macrophages are critical effectors of antibody therapies for cancer. MAbs. 2015;7(2):303-310.
- Cao X, et al. Promoting antibody-dependent cellular phagocytosis for effective macrophage-based cancer immunotherapy. Sci Adv. 2022;8(11):eabl9171.
- Aderem A, Underhill DM. Mechanisms of phagocytosis in macrophages. Annu Rev Immunol. 1999;17:593-623.
- Flannagan RS, Jaumouille V, Grinstein S. The cell biology of phagocytosis. Annu Rev Pathol. 2012;7:61-98.
- Denardo DG, Ruffell B. Macrophages as regulators of tumour immunity and immunotherapy. Nat Rev Immunol. 2019;19(6):369-382.
- Horsthemke M, Wilden J, Bachg AC, Hanley PJ. Time-lapse 3d imaging of phagocytosis by mouse macrophages. J Vis Exp. 2018;(140). doi:10.3791/57566.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Reimpresiones y permisos
Este artículo ha sido publicado
Video próximamente