Este protocolo proporciona un enfoque estandarizado de corte dentro de la cámara para determinar el inicio, el momento máximo y la cinética de las emisiones volátiles inducidas por heridas, junto con mediciones simultáneas de intercambio gaseoso.
Artículo de método
Un método de corte dentro de la cámara para la cuantificación en tiempo real de los volátiles por heridas en hojas y el intercambio gaseoso
31 visualizaciones
⸱
11 de septiembre de 2026
En este artículo
Resumen
Resumen
Los compuestos orgánicos volátiles (COV) liberados por las hojas de las plantas desempeñan funciones clave en la señalización de estrés, las interacciones planta–atmósfera y la defensa vegetal. Entre ellos, los COV inducidos por heridas (wCOV) se emiten en cuestión de segundos tras daños mecánicos, herbivoría o perturbaciones ambientales. La dinámica de su emisión depende fuertemente del momento, la gravedad y el método de la alteración del tejido. Sin embargo, su cuantificación precisa sigue siendo un reto debido a artefactos mecánicos, condiciones de exposición variables y retrasos entre la lesión y la medición. Este estudio presenta un protocolo estandarizado de excisión de hojas dentro de una cámara para el monitoreo en tiempo real de wCOV e intercambio gaseoso. Un cortador de grado quirúrgico se integró en una cámara portátil de intercambio gaseoso para permitir cortes limpios y controlados dentro de una cámara sellada, bajo condiciones estables de luz, humedad, CO2 y temperatura. Un espectrómetro de masas de tiempo de vuelo con reacción de transferencia de protones (PTR-TOF-MS) midió continuamente las emisiones volátiles en la salida de la cámara, minimizando así el retraso y la distorsión de la señal. Este sistema permite resolver con alta fidelidad temporal el inicio de la emisión, el momento del pico, la velocidad máxima de aumento y la liberación total. La aplicación del método a Quercus rubra, Acer platanoides y Gossypium hirsutum demostró su capacidad para distinguir patrones de emisión inducidos por heridas en tipos de hojas contrastantes. Al eliminar los retrasos asociados con muestreos convencionales, este método resuelve la trayectoria cinética completa de las emisiones inducidas por heridas y supera importantes limitaciones de enfoques previos. Proporciona un marco robusto para el estudio de respuestas rápidas al estrés en fisiología vegetal, bioquímica ecológica e interacciones planta–atmósfera.
Introducción
Las plantas responden a las lesiones liberando una señal química rápida, pero capturar con precisión dicha señal sigue siendo un desafío técnico. En cuestión de segundos tras la herbivoría, daños por el viento o perturbaciones mecánicas, las plantas emiten una ráfaga transitoria de compuestos orgánicos volátiles (COV) que activan defensas internas y preparan a las plantas vecinas1,2,3,4. Estos COV inducidos por heridas (wCOV) incluyen volátiles del tipo de las hojas verdes (GLV), metanol, alcoholes y aldehídos de cadena corta, terpenoides y derivados de oxilipinas. Estos compuestos se originan ya sea por síntesis de novo en células del mesófilo o por la ruptura de estructuras de almacenamiento como conductos resiníferos y tricomas. Como señales inmediatas de estrés, los wCOV coordinan defensas fisiológicas, median en la comunicación entre plantas e interactúan con la química atmosférica1,5,6,7.
Dado que la herbivoría natural combina daño mecánico con elicidores salivales y microbianos, los estudios experimentales utilizan heridas simuladas para aislar las respuestas al daño físico por sí solo8. Sin embargo, la naturaleza transitoria de los COVs dificulta su captura. Los métodos convencionales, como el muestreo de espacio de cabeza estático acoplado a cromatografía de gases-espectrometría de masas (GC-MS), a menudo pasan por alto el estallido inicial de emisiones y distorsionan su perfil cinético9,10. Los retrasos en el equilibrio, las temperaturas elevadas de incubación y las líneas de muestreo prolongadas aumentan el tiempo de residencia y distorsionan la señal registrada, especialmente para compuestos reactivos como los sesquiterpenos9,11,12. En conjunto, estos artefactos reducen la magnitud de la señal y ocultan la dinámica temporal de las emisiones volátiles inducidas por heridas, complicando así la interpretación de las respuestas al estrés en las plantas.
Muchos estudios también interrumpen la medición para herir hojas fuera de la cámara. Esta interrupción desestabiliza el flujo de gas, altera el momento de la herida y reduce el control sobre la precisión del corte13,14,15. Como resultado, los primeros minutos tras la lesión a menudo se pierden o distorsionan13, justo cuando las tasas de emisión alcanzan su máximo y surgen patrones cinéticos característicos3,6,16,17. Algunos enfoques han trasladado la excisión de hojas al interior de cámaras de gran volumen utilizando cuchillas de teflón o punzones mecánicos12,18,19. Sin embargo, estas configuraciones a menudo provocaron inestabilidad en el sellado, longitudes de corte inconsistentes y cortes irregulares debido al desplazamiento del cortador o a diferencias en la resistencia de las hojas. El gran volumen de la cámara retrasó además el recambio de aire y amplió la señal de compuestos volátiles16. En conjunto, estas limitaciones experimentales impiden la caracterización precisa de la dinámica temporal de las emisiones inducidas por heridas bajo condiciones fisiológicas estables.
Para superar estos desafíos, este estudio presenta un protocolo de herida en tiempo real dentro de la cámara que integra un cortador de grado quirúrgico en un sistema de intercambio gaseoso acoplado a un espectrómetro de masas con transferencia de protones y tiempo de vuelo (PTR-TOF-MS). El protocolo permite la herida foliar sincrónica y la detección de compuestos volátiles bajo condiciones ambientales controladas, mientras mide simultáneamente los flujos de volátiles e intercambio gaseoso con alta resolución temporal. Al realizar la escisión foliar dentro de la cámara de medición, el protocolo minimiza los retrasos de muestreo asociados con los métodos convencionales, preserva la dinámica temporal de los volátiles inducidos por heridas que se emiten rápidamente y muestra un procedimiento de corte estandarizado en hojas con diferentes propiedades mecánicas. Esta resolución temporal permite la caracterización directa del inicio, el momento del pico y la cinética específica de cada especie en las emisiones de volátiles inducidos por heridas.
El protocolo se evaluó utilizando tres especies con características anatómicas y fisiológicas contrastantes (Quercus rubra, Acer platanoides y Gossypium hirsutum) para demostrar su aplicabilidad en diversos tipos de hojas. Aplicar condiciones de medición idénticas en todas las especies demuestra que el protocolo puede resolver la dinámica de VOC inducidos por heridas en un amplio rango de patrones de emisión, al tiempo que minimiza la variabilidad experimental. El enfoque es ampliamente aplicable a estudios que requieran mediciones de alta resolución temporal de VOC inducidos por heridas bajo condiciones ambientales controladas. En conjunto, estas características proporcionan un marco estandarizado para investigar respuestas rápidas al estrés en plantas y facilitan la aplicación del protocolo entre especies y sistemas experimentales.
Protocolo
Todas las plantas se cultivaron en condiciones de ambiente controlado en cámaras de crecimiento. Los reactivos y el equipo utilizados se enumeran en la Tabla de materiales.
1. Construcción e instalación del cortador de hojas dentro de la cámara
- Fabrique un cortador de hojas giratorio diseñado para ajustarse a las dimensiones internas (4 cm × 2 cm) de la cabeza de medición estándar.
- Coloque una cuchilla de afeitar en una varilla de acero inoxidable (diámetro de 1 mm) utilizando soldadura de plata para garantizar estabilidad mecánica.
ADVERTENCIA: Las cuchillas de afeitar son extremadamente afiladas. Use guantes resistentes a cortes durante su manipulación. Después de su uso, deseche las cuchillas de afeitar de acuerdo con los procedimientos de seguridad institucionales para objetos punzantes. Realice la soldadura con plata bajo ventilación adecuada y use protección ocular. - Introduzca la varilla portadora de la cuchilla en una aguja de jeringa de acero inoxidable (diámetro externo de 1,6 mm) para permitir una rotación axial libre.
- Selle ambos extremos de la aguja utilizando un tapón de politetrafluoroetileno (PTFE) de baja emisión para mantener condiciones herméticas mientras se conserva la rotación.
- Monte una perilla giratoria manual en el extremo proximal de la varilla para permitir la rotación controlada del cortador interno.
- Coloque dos soportes flexibles hechos de lámina de latón elástico (espesor de 0,2 mm) en la superficie externa de la aguja para fijar el cortador a la mitad inferior de la cámara.
- Realice una incisión triangular en la junta de la cámara inferior para permitir la inserción de la cuchilla sin contacto con la superficie de la hoja.
- Selle el punto de inserción utilizando una masilla sellante de baja emisión para evitar fugas de gas.
NOTA: Antes de continuar, verifique que la instalación del cortador no haya comprometido el sellado de la cámara. Confirme que la cámara se cierre completamente, que el termopar permanezca en contacto con la superficie de la hoja y que el sistema de intercambio de gases indique un flujo de aire estable sin evidencia de fugas. Continúe únicamente después de haber confirmado condiciones estables en la cámara. Seleccione la longitud de la cuchilla para producir un corte de aproximadamente 10 mm. El mecanismo de corte integrado y su posición dentro de la cámara de hojas se muestran en Figura 1B.
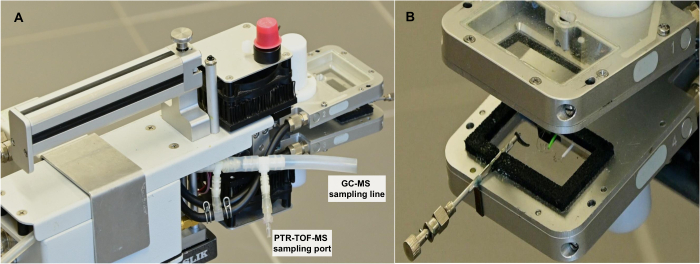
Figura 1: Sistema modificado de intercambio gaseoso con un cortador de hojas integrado en la cámara y líneas de muestreo de compuestos volátiles. (A) Vista general del sistema modificado de intercambio gaseoso, que muestra el puerto de muestreo PTR-TOF-MS y la línea de muestreo de GC-MS colocada cerca de la salida de la cámara para la recolección de volátiles. (B) Vista ampliada de la cámara abierta, que muestra el mecanismo de corte integrado y la zona donde se coloca la hoja durante el daño mecánico. El cortador está integrado herméticamente en la cámara, lo que permite herir la hoja sin abrir el recinto durante la medición. Esta configuración permite el monitoreo en tiempo real de las emisiones de compuestos volátiles y del intercambio gaseoso bajo condiciones ambientales controladas. Haga clic aquí para ver una versión más grande de esta figura.
2. Configuración de las vías de muestreo de compuestos volátiles
- Instale una pieza en T de teflón (1/16″ o 1/8″ de diámetro interno) adyacente a la salida de la cámara (Figura 1A) para minimizar la longitud del tubo entre la cámara y el analizador de compuestos volátiles.
- Conecte la salida al sistema de recolección de COV utilizando un tubo inerte (por ejemplo, FEP o PTFE; diámetro interno de 1,6 mm). Instale la pieza en T inmediatamente adyacente a la salida de la cámara para mantener el tubo entre la cámara y el analizador de volátiles lo más corto posible, minimizando así el volumen interno, el tiempo de residencia y las pérdidas por adsorción.
- Mantenga el flujo de aire en la cámara a 750 µmol s-1.
NOTA: El tubo inerte corto reduce la adsorción y el tiempo de residencia de los compuestos reactivos.
3. Preparación del material vegetal
- Cultive Quercus rubra, Acer platanoides y Gossypium hirsutum en una cámara de ambiente controlado a 25 °C durante el día / 20 °C durante la noche, 60 % de humedad relativa, intensidad lumínica de 1000 µmol m-2 s-1 y fotoperiodo de 16 h / 8 h durante 4 meses.
- Mantenga las plantas bajo una concentración ambiental de CO2 (~430 ppm) durante todo el experimento.
- Riegue todas las plantas cada dos días hasta que el suelo alcance la capacidad de campo.
- Seleccione hojas completamente expandidas y no senescentes para experimentos en un estadio de desarrollo comparable.
4. Experimentos de daño foliar y recolección de COV
- Encerrar la hoja y establecer las condiciones ambientales
- Encierre una hoja completamente expandida y adherida en la cámara equipada con el cortador interno.
- Establezca la temperatura del bloque en 25 °C, la humedad relativa del aire en 60 %, la intensidad de la luz actínica en 1000 µmol m-2 s-1 (90 % roja, 10 % azul) y el flujo de aire en 750 µmol s-1.
- Permita que la hoja se aclimate bajo las condiciones ambientales seleccionadas hasta que se alcancen valores estacionarios de asimilación neta de CO2, conductancia estomática y señales de compuestos orgánicos volátiles (COV) de referencia, lo cual ocurre típicamente entre 20 y 30 minutos tras encerrar la hoja.
- Realizar el monitoreo de intercambio gaseoso, fluorescencia y COV
- Inicie mediciones simultáneas de intercambio gaseoso y COV con resolución de 1 Hz.
- Tras completar las mediciones de intercambio gaseoso, registre el rendimiento de fluorescencia en estado estacionario (Fs) y luego aplique un pulso saturante (8000 µmol m-2 s-1, 0.6 s) mediante el fluorímetro de cámara (3055-FL) para determinar el rendimiento máximo de fluorescencia (Fm′) en hojas adaptadas a la luz.
- Apague la luz actínica y adapte la hoja a la oscuridad durante 20 minutos.
- Registre la respiración nocturna de la hoja.
- Mida la fluorescencia inicial (F₀) utilizando una luz de medición modular débil (0.03 µmol m-2 s-1), seguida de un pulso saturante para obtener la fluorescencia máxima en hojas adaptadas a la oscuridad (Fm).
- Vuelva a encender la luz actínica.
- Continúe las mediciones de COV e intercambio gaseoso bajo las mismas condiciones ambientales hasta que la línea base previa al daño esté estable.
NOTA: Antes del daño, confirme que las condiciones ambientales seleccionadas permanezcan estables y que la asimilación neta de CO₂, la transpiración y las señales de COV de referencia hayan alcanzado valores estacionarios. Proceda únicamente después de que estas condiciones se hayan mantenido bajo la configuración de medición seleccionada.
- Daño a la hoja y recolección de COV
- Inserte el primer cartucho de COV en la línea de salida y conéctelo a una bomba portátil de muestreo de aire de flujo constante. Pase el aire de la cámara a través del cartucho a un flujo constante de 200 mL min-1. Utilice un cartucho adsorbente de acero inoxidable con múltiples lechos (10,5 cm de longitud, 3 mm de diámetro interno), adecuado para la captura de volátiles C3–C17, relleno con Carbotrap C de malla 20/40 (0,2 g), Carbopack B de malla 40/60 (0,1 g) y Carbotrap X de malla 20/40 (0,1 g), dispuestos desde la fuerza de adsorción más débil hasta la más fuerte en la dirección del muestreo.
NOTA: Antes del muestreo, condicione los cartuchos haciendo pasar helio de alta pureza a través de ellos a 200 mL min-1 durante 3 h a 250 °C. La recolección con cartuchos permite análisis posteriores mediante GC-MS para la identificación de compuestos cuando los objetivos experimentales lo requieran. Aunque la recolección con cartuchos forma parte del procedimiento descrito aquí, los resultados representativos presentados en este estudio se derivan de mediciones continuas mediante PTR-TOF-MS. Seleccione el adsorbente según el rango de volatilidad y polaridad de los COV objetivo, así como según las condiciones de muestreo. - Recoja los COV previos al daño durante 15 min a 200 mL min-1.
- Reemplace el cartucho y recoja COV durante 2 min.
- Gire el cortador interno 360° para excindir la hoja sin abrir la cámara y regrese la cuchilla a su posición inicial.
NOTA: Coloque la hoja dentro de la cámara de manera que el corte se realice en la lámina encerrada, manteniendo el sellado completo de la cámara. Siempre que el tamaño y la morfología de la hoja lo permitan, evite cortar a través de la vena principal y mantenga la posición del corte lo más consistente posible entre las muestras. Dado que el daño a las venas principales puede aumentar considerablemente las emisiones de volátiles inducidas por heridas, una colocación consistente del daño mejora la reproducibilidad experimental5.
ADVERTENCIA: Asegúrese de que la cámara esté completamente sellada antes de realizar el corte. - Continúe la recolección de COV con el mismo cartucho durante 13 min.
- Inserte un tercer cartucho y recoja COV durante 15 min.
- Utilice el PTR-TOF-MS de forma continua durante todos los periodos para detección en tiempo real.
NOTA: Antes y después de cada medición en la planta, recoja una muestra de fondo de la cámara vacía bajo las mismas condiciones ambientales. Utilice estas mediciones de fondo para la corrección de la línea base de los datos de emisión de COV durante el análisis.
- Inserte el primer cartucho de COV en la línea de salida y conéctelo a una bomba portátil de muestreo de aire de flujo constante. Pase el aire de la cámara a través del cartucho a un flujo constante de 200 mL min-1. Utilice un cartucho adsorbente de acero inoxidable con múltiples lechos (10,5 cm de longitud, 3 mm de diámetro interno), adecuado para la captura de volátiles C3–C17, relleno con Carbotrap C de malla 20/40 (0,2 g), Carbopack B de malla 40/60 (0,1 g) y Carbotrap X de malla 20/40 (0,1 g), dispuestos desde la fuerza de adsorción más débil hasta la más fuerte en la dirección del muestreo.
5. Detección de compuestos volátiles y funcionamiento del instrumento
- Configure la temperatura de la entrada y del tubo de deriva del PTR-TOF-MS a 80 °C, el flujo de entrada a 100 mL min-1, el flujo de vapor de agua a 4,0 mL min-1, la corriente iónica a 4,0 mA, la presión de la cámara de deriva a 2,1 mbar, la relación de densidad de campo del tubo de deriva a 115 Td y la presión del módulo TOF-MS a 1,2 × 10⁻⁷ mbar.
- Registre las señales volátiles con una resolución temporal de 1 Hz y un intervalo de muestreo de 400 ps.
- Calibre el PTR-TOF-MS antes de cada experimento utilizando una mezcla estándar de gas certificada que contenga COV representativos de las principales clases de compuestos volátiles vegetales. Procese los datos de calibración y calcule las concentraciones de COV mediante el software PTR-MS Viewer siguiendo los procedimientos descritos13,16.
6. Análisis por GC-MS en modo fuera de línea de muestras de cartucho
NOTA: El siguiente procedimiento describe el análisis fuera de línea de muestras de cartuchos recolectadas durante el flujo de trabajo anterior. El análisis por GC-MS proporciona una identificación complementaria de compuestos, mientras que los resultados representativos presentados en este estudio se basan en mediciones continuas por PTR-TOF-MS.
- Desorber térmicamente los cartuchos utilizando una unidad automatizada de desorción térmica acoplada a un sistema de GC-MS, siguiendo el procedimiento descrito por Kännaste et al.20.
- Identificar los compuestos mediante comparación con estándares auténticos y con la biblioteca espectral de masas NIST. Realizar la detección espectrométrica de masas utilizando ionización por impacto electrónico (70 eV) y confirmar las identidades de los compuestos comparando tanto los tiempos de retención como los espectros de masas con estándares auténticos, cuando estén disponibles.
NOTA: El muestreo con cartuchos sigue el protocolo modificado de Kännaste et al.20 para la captura de volátiles C3–C17.
7. Análisis de datos
- Reste el fondo de la cámara vacía de todas las trazas de emisión antes del análisis. Defina la línea base previa a la herida para cada masa monitoreada como la señal media durante un intervalo fijo inmediatamente antes del corte.
- Utilice el momento del corte como punto de referencia común para todas las masas monitoreadas. Determine el inicio de la emisión como el primer aumento detectable en la señal de COV corregida respecto a la línea base tras el corte de la hoja.
NOTA: El inicio de la emisión se definió como el primer aumento consecutivo por encima de la línea base previa a la herida que continuó hacia la fase ascendente del pico de emisión, excluyendo así fluctuaciones aisladas atribuibles al ruido instrumental. - Calcule el tiempo hasta el pico como el intervalo entre el momento del corte y la señal máxima de emisión. Calcule la pendiente máxima del pico de emisión a partir de la primera derivada de la señal corregida respecto a la línea base, utilizando la media de las pendientes hacia adelante y hacia atrás entre puntos de datos adyacentes13. Defina la magnitud del pico como el valor máximo de emisión observado durante el pico.
Resultados
Para evaluar si la posición de muestreo de compuestos volátiles influye en la detección de la señal, comparamos dos configuraciones mediante inyecciones controladas de gas en la cámara foliar. En una configuración, los volátiles se muestrearon directamente en la salida de la cámara de intercambio gaseoso modificada (Figura 1). En contraste, en la otra, el aire pasaba a través del tubo del analizador de intercambio gaseoso antes de llegar al detector. La grabación simultánea de ambas señales permitió una comparación directa de sus dinámicas temporales.
La inyección de compuestos volátiles puros produjo respuestas rápidas del detector con picos de emisión distintos (Figura 2). Cuando se muestrearon directamente en la salida de la cámara, las señales aumentaron inmediatamente después de la inyección, alcanzaron máximos agudos y decayeron rápidamente. Cuando se muestrearon después del tubo del analizador, los mismos compuestos produjeron respuestas retardadas y atenuadas.
Para el isopreno (m/z 69), el retraso temporal entre las posiciones de muestreo fue mínimo, y las magnitudes de los picos se mantuvieron similares (Figura 2A). Para el Z-3-hexen-1-ol (m/z 83), el paso a través del tubo redujo la altura del pico y ensanchó la curva de decaimiento en comparación con el muestreo directo (Figura 2B). Este efecto fue más pronunciado para el α-pineno (m/z 137), donde el paso por el tubo atenuó fuertemente el pico en comparación con la señal medida directamente en la salida de la cámara (Figura 2C).
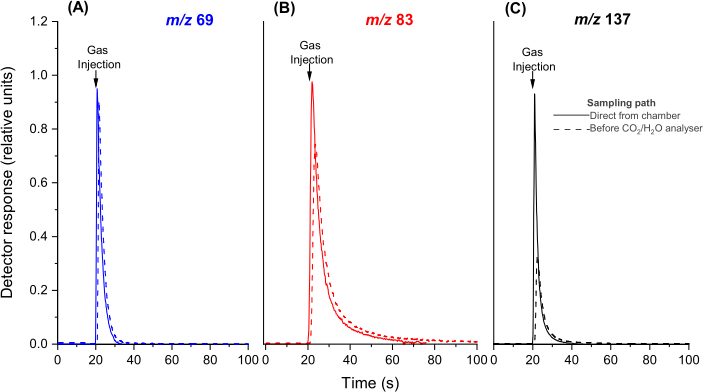
Figura 2: Efecto de la posición de muestreo sobre la respuesta temporal de la detección de compuestos volátiles. Se registraron las respuestas tras la inyección de isopreno puro (A) (m/z 69), (B) Z-3-hexen-1-ol, detectado principalmente como el ion fragmento m/z 83, y (C) α-pineno (m/z 137) en dos posiciones de muestreo. Las líneas continuas representan el muestreo inmediatamente después de la salida de la cámara, mientras que las líneas discontinuas representan la posición estándar de muestreo antes de los analizadores de CO₂/H₂O, tras el paso a través de los tubos del sistema de intercambio gaseoso. Las flechas indican la inyección de gas. Las respuestas se normalizaron respecto a la señal máxima detectada por el PTR-QMS muestreando junto a la cámara. Para visualizar las diferencias en la forma de la respuesta, los cursos temporales del muestreo estándar se desplazaron 0,9 s con respecto al muestreo directo. Esta figura fue modificada de Rasulov et al.16. Haga clic aquí para ver una versión más grande de esta figura.
El corte de hojas provocó emisiones rápidas de compuestos volátiles específicos en todas las especies (Quercus rubra, Acer platanoides y Gossypium hirsutum), y el sistema detectó estas emisiones en cuestión de segundos. Debido a que la configuración dentro de la cámara resolvió directamente el inicio y el momento máximo de emisión, permitió la cuantificación de la cinética específica de cada compuesto sin interrumpir la medición.
En todas las especies, la señal dominante inducida por heridas detectada mediante PTR-TOF-MS se observó en m/z 99, asignada tentativamente a compuestos del tipo hexenal derivados de LOX según estudios previos con PTR-TOF-MS (Figura 3, Figura 4 y Figura 5). Las emisiones máximas oscilaron entre 24 y 300 nmol m-2 s-1 en las tres especies, lo que demuestra la capacidad del protocolo para resolver la dinámica de COV inducidos por heridas en un amplio rango de intensidades de emisión (Figura 3, Figura 4 y Figura 5). En todos los casos, m/z 99 aumentó en cuestión de segundos tras el corte, alcanzó su pico en aproximadamente 39–57 s y mostró el ascenso más pronunciado entre las masas monitoreadas (Tabla 1), lo que lo identifica como el componente agudo dominante del estallido inducido por heridas.
La masa 69 permaneció despreciable antes del corte en A. platanoides (Figura 4B) y en G. hirsutum (Figura 5B), y aumentó solo ligeramente después de la herida. En contraste, Q. rubra mostró emisiones basales sustanciales antes del corte, seguidas por un aumento transitorio moderado y una posterior estabilización, lo que es consistente con la liberación constitutiva de isopreno superpuesta a la respuesta a la herida (Figura 3B).
Otras masas monitoreadas revelaron una secuencia temporal clara tras el corte. Entre especies, los valores de m/z 43, 57, 69 y 99 definieron la fase temprana del estallido, mientras que los de m/z 45 y 83 alcanzaron su pico más tarde (Figura 3, Figura 4 y Figura 5; Tabla 1). Este patrón fue más pronunciado en A. platanoides, donde el m/z 45 comenzó a aumentar inmediatamente después del corte, pero alcanzó su pico solo tras aproximadamente 155 s, lo que indica una respuesta más lenta y prolongada que los fragmentos tempranos relacionados con LOX (Figura 4A; Tabla 1). De manera similar, el m/z 83 alcanzó su pico más tarde que los fragmentos iniciales en todas las especies y se retrasó especialmente en G. hirsutum, alcanzando su máximo solo tras aproximadamente 223 s (Figura 5A; Tabla 1).
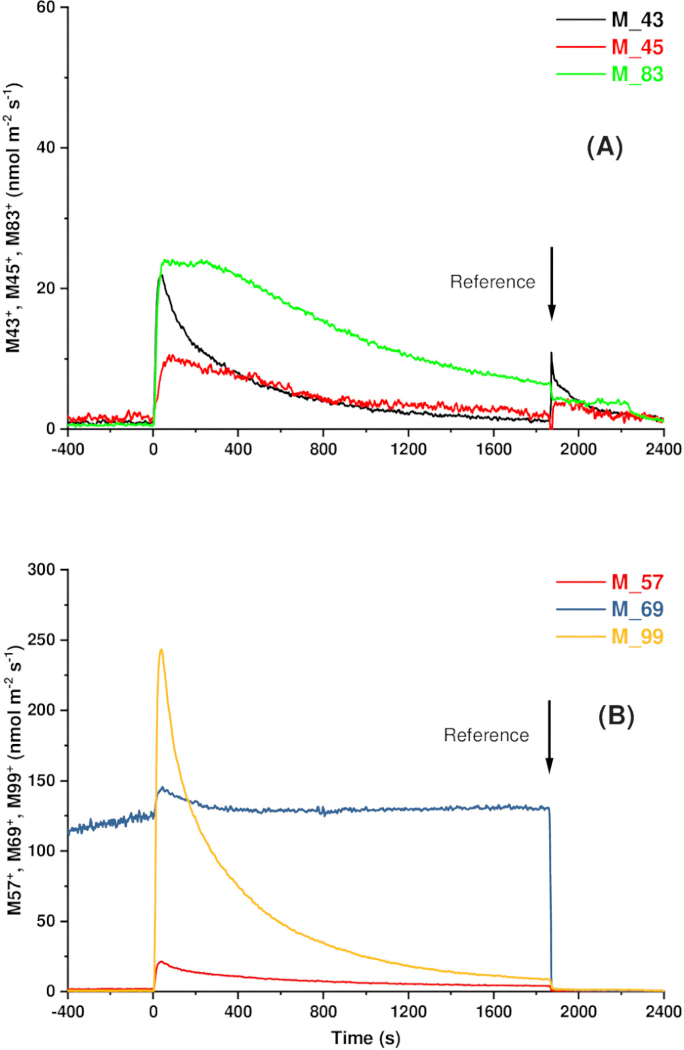
Figura 3: Emisiones volátiles inducidas por heridas con resolución temporal en una hoja representativa de Quercus rubra. (A) m/z 43, 45 y 83. (B) m/z 57, 69 y 99. En t = 0, la hoja fue cortada utilizando un cortador de hojas dentro de la cámara, mostrado en la Figura 1, produciendo una incisión de 10 mm. Las emisiones volátiles fueron monitoreadas continuamente mediante un espectrómetro de masas con tiempo de vuelo y reacción de transferencia de protones (PTR-TOF-MS), y las tasas de intercambio gaseoso fueron medidas con un sistema Walz GFS-3000. Las señales se muestran como perfiles de emisión representativos corregidos respecto a la línea base, que ilustran la resolución temporal alcanzable con el protocolo. Véase la Tabla 1 para descriptores cinéticos representativos extraídos de estos perfiles de emisión. Haga clic aquí para ver una versión más grande de esta figura.
A pesar de estas características compartidas, las mediciones representativas ilustran que las trayectorias de emisión pueden diferir entre especies. En Q. rubra, los valores de m/z 43 y 57 aumentaron rápidamente pero divergieron durante la fase de decaimiento, con una disminución más lenta de m/z 57 en comparación con m/z 43 (Figura 3A,B). En A. platanoides, este patrón se invirtió, mostrando m/z 43 una disminución más lenta en la fase tardía (Figura 4A). En G. hirsutum, todas las señales fueron menores en magnitud, y los perfiles de emisión combinaron picos iniciales rápidos con un decaimiento más gradual. Notablemente, m/z 45 mostró un pequeño aumento secundario durante la fase de decaimiento (Figura 5A).
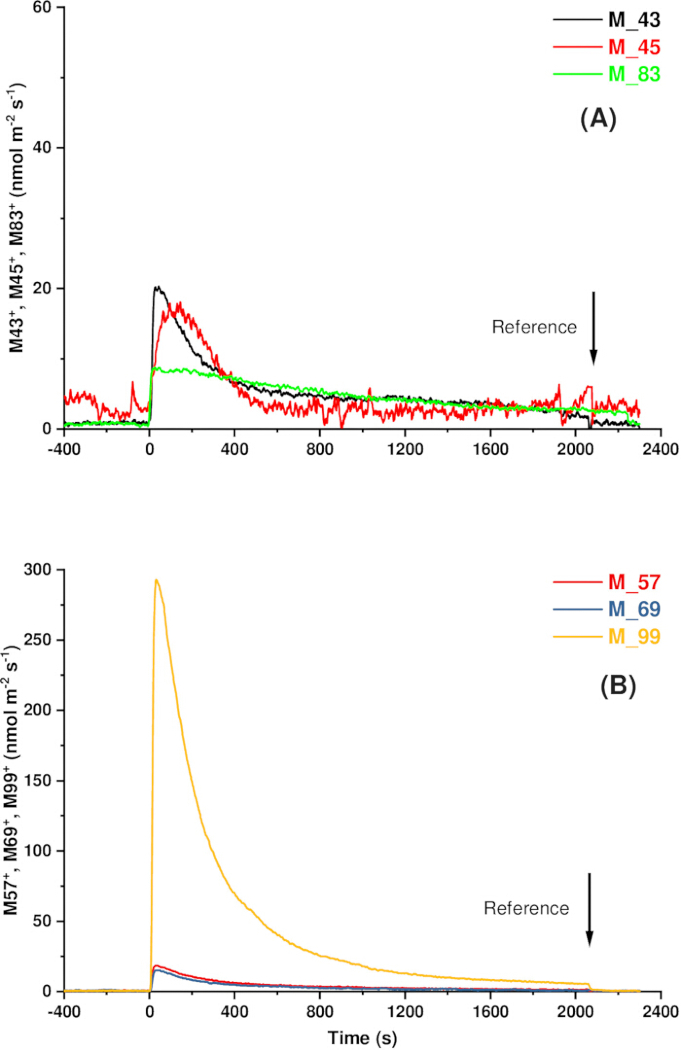
Figura 4: Emisiones volátiles inducidas por heridas con resolución temporal en una hoja representativa de Acer platanoides. (A) m/z 43, 45 y 83. (B) m/z 57, 69 y 99. La hoja fue cortada en t = 0 usando un cortador interno a la cámara (Figura 1; incisión de 10 mm). Las emisiones volátiles se midieron continuamente con un espectrómetro de masas de tiempo de vuelo con reacción de transferencia de protones (PTR-TOF-MS), y el intercambio gaseoso se midió con un sistema Walz GFS-3000. Las señales se muestran como perfiles de emisión corregidos respecto a la línea base representativos, que ilustran la resolución temporal alcanzable con el protocolo. Véase la Tabla 1 para descriptores cinéticos representativos extraídos de estos perfiles de emisión. Haga clic aquí para ver una versión más grande de esta figura.
En conjunto, estos patrones indican que las emisiones inducidas por heridas siguen una cascada específica por compuesto en lugar de una ráfaga sincrónica única, con componentes iniciales agudos seguidos por respuestas más amplias y retardadas.
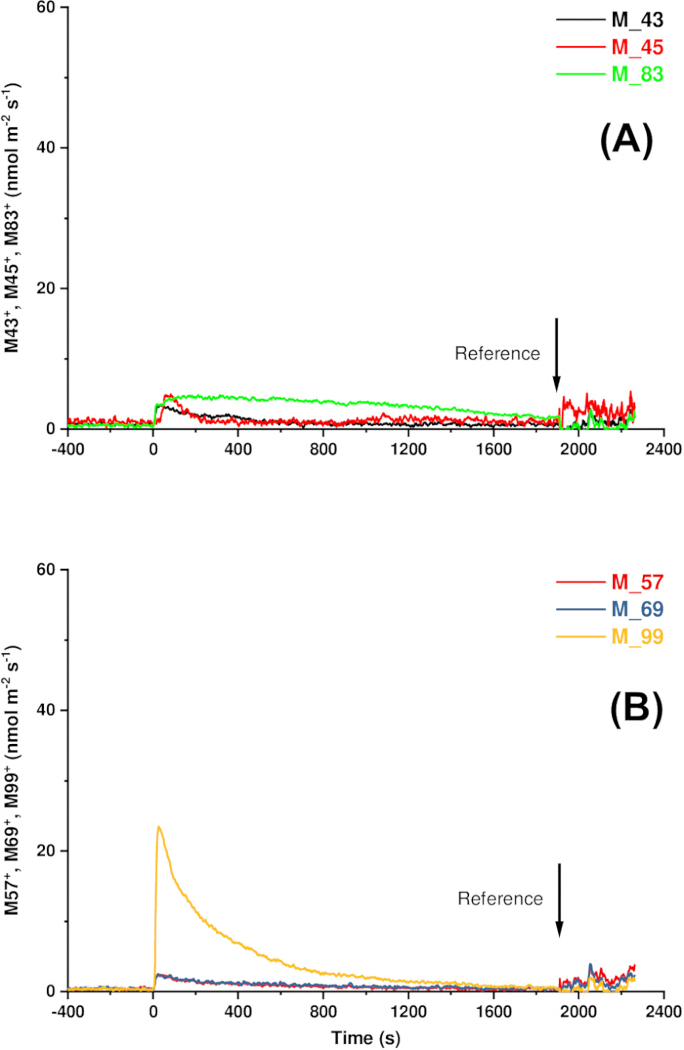
Figura 5: Emisiones volátiles inducidas por herida con resolución temporal en una hoja representativa de Gossypium hirsutum. (A) m/z 43, 45 y 83. (B) m/z 57, 69 y 99. La hoja fue cortada en t = 0 usando un cortador interno a la cámara (Figura 1; incisión de 10 mm). Las emisiones volátiles se midieron continuamente mediante un espectrómetro de masas con tiempo de vuelo y reacción de transferencia de protones (PTR-TOF-MS), y el intercambio gaseoso se midió con un sistema Walz GFS-3000. Las señales se muestran como perfiles de emisión representativos corregidos respecto a la línea base, que ilustran la resolución temporal alcanzable con el protocolo. Véase Tabla 1 para descriptores cinéticos representativos extraídos de estos perfiles de emisión. Haga clic aquí para ver una versión ampliada de esta figura.
Discusión
El protocolo presentado aquí permite un análisis de alta resolución temporal de las emisiones volátiles inducidas por heridas bajo condiciones experimentales controladas. Al integrar directamente el evento de corte en la cámara foliar y monitorear continuamente las señales volátiles (Figura 1), el sistema registra la respuesta de emisión sin las distorsiones introducidas por el muestreo tardío, la apertura de la cámara o la manipulación de la hoja fuera del sistema de medición. Estas perturbaciones pueden alterar tanto el momento aparente como la magnitud de los picos de emisión en mediciones basadas en recintos3,6,13,17. Al mantener la herida y la medición en el mismo recinto, el protocolo preserva la cronología de emisión y permite una cuantificación fiable y resuelta en el tiempo de las respuestas volátiles inducidas por estrés.
| Especies | Masa molecular protonada | Magnitud máxima (nmol m-2 s-1) | Inicio después del corte(s) | Tiempo del pico (s) | Pendiente máxima (nmol m-2 s-2) |
| Quercus rubra | 43 | 21.91 | ~0.0 | 55.6 | 1.49 |
| 45 | 10.52 | 7 | 111.4 | 0.29 | |
| 57 | 21.27 | 20 | 55.6 | 1.37 | |
| 69 | 145.6 | 25 | 61 | 1.44 | |
| 83 | 24.13 | 21 | 71.8 | 1.39 | |
| 99 | 243.16 | 21 | 57.4 | 18.17 | |
| Acer platanoides | 43 | 20.26 | 5.4 | 54 | 1.59 |
| 45 | 18.06 | 1.8 | 154.8 | 0.55 | |
| 57 | 18.65 | 10.8 | 41.4 | 1.55 | |
| 69 | 15.15 | 10.8 | 41.4 | 1.13 | |
| 83 | 8.78 | 7.2 | 57.6 | 0.76 | |
| 99 | 292.86 | 10.8 | 43.2 | 23.62 | |
| Gossypium hirsutum | 43 | 3.5 | 5.4 | 48.6 | 0.19 |
| 45 | 4.98 | 9 | 95.4 | 0.29 | |
| 57 | 2.48 | 10.8 | 36 | 0.18 | |
| 69 | 2.42 | 12.6 | 37.8 | 0.17 | |
| 83 | 4.83 | 14.4 | 223.2 | 0.3 | |
| 99 | 23.47 | 12.6 | 39.6 | 1.95 |
Tabla 1: Valores representativos de la magnitud máxima, inicio de la emisión, tiempo hasta el pico y pendiente máxima extraídos de mediciones continuas mediante PTR-TOF-MS tras el daño foliar. Los valores incluyen la magnitud máxima, inicio de la emisión, tiempo hasta el pico y pendiente máxima. Estos valores ilustran el tipo de descriptores cinéticos generados por el protocolo y se proporcionan como ejemplos de prueba de concepto, más que como comparaciones estadísticas entre especies. El inicio de la emisión se definió como el primer aumento detectable por encima de la línea base previa al daño tras el corte, el tiempo hasta el pico como el intervalo entre el corte y la señal máxima, y la pendiente máxima como la máxima derivada primera de la señal corregida respecto a la línea base.
La comparación de las posiciones de muestreo mostró que la configuración de muestreo afectó notablemente la señal registrada (Figura 2). El muestreo directo en la salida de la cámara conservó la formación rápida de los picos, mientras que el muestreo después de la tubería del analizador retrasó la formación de picos y atenuó la intensidad de la señal. Este efecto fue insignificante para el isopreno (m/z 69), moderado para m/z 83 y más pronunciado para el α-pineno (m/z 137), lo cual es coherente con una distorsión creciente relacionada con el transporte para compuestos más pesados o reactivos10,21. La adsorción en las superficies del tubo, el transporte retardado a través de la línea de muestreo y las interacciones químicas durante el transporte pueden ensanchar o atenuar los picos de emisión, alterando así la interpretación de la cinética de los compuestos volátiles9,12,21.
Una ventaja central del presente protocolo es su capacidad para resolver la fase más temprana de la emisión de compuestos volátiles inducida por heridas. En todas las especies, esta fase temprana surgió en cuestión de segundos tras el corte y estuvo dominada por un pico en m/z 99, que mostró tanto la mayor magnitud del pico como la pendiente máxima más pronunciada (Figura 3, Figura 4 y Figura 5; Tabla 1). Los máximos de los picos ocurrieron aproximadamente entre 40 y 57 s después del corte, notablemente antes que los 100–280 s habitualmente reportados en estudios previos13,19,22. Este cambio probablemente refleja la sincronización entre la lesión y la detección dentro de la cámara, minimizando los retrasos causados por el manejo de la hoja y el transporte a través de la línea de muestreo.
Al sincronizar la lesión y la detección dentro del mismo recinto, el protocolo también resolvió una cascada a nivel de fragmentos en la que m/z 43 y 57 aumentaron inmediatamente después del corte, mientras que m/z 45 alcanzó su pico más tarde y mostró una dinámica de decaimiento más amplia (Figura 3, Figura 4 y Figura 5; Tabla 1). Este ordenamiento permanece consistente con estudios previos basados en PTR, a pesar de la falta de separación a nivel de compuestos en comparación con GC-MS, en los cuales las emisiones tempranas están dominadas por aldehídos C6 derivados de la lipoxigenasa, seguidos por alcoholes derivados y productos relacionados19,22. En concordancia con estudios previos mediante PTR-TOF-MS, la señal dominante en m/z 99 corresponde a compuestos tipo hexenal, cuyo fragmento de deshidratación en m/z 81 ha sido identificado como una señal temprana importante, mientras que m/z 83 refleja contribuciones de hexenoles y hexanal22. Esta secuencia respalda aún más una jerarquía dependiente del tamaño y de la ruta metabólica, en la cual compuestos oxigenados más pequeños y rápidamente formados se liberan antes que moléculas más grandes o más complejas13,23.
Más allá de los fragmentos derivados de la lipooxigenasa, la señal en m/z 69, asignada tentativamente al isopreno, mostró trayectorias de emisión distintas entre los ejemplos representativos (Figura 3, Figura 4, y Figura 5). Q. rubra mostraron emisiones sustanciales en la línea base, mientras que A. platanoides y G. hirsutum produjeron solo niveles traza, consistentes con sus características conocidas de emisión24,25. A través de especies, el isopreno respondió débilmente al daño mecánico, lo cual es consistente con su de novo síntesis mediante la vía MEP, que depende del metabolismo fotosintético y por lo tanto solo se ve afectada indirectamente por lesiones mecánicas15.
Estas dinámicas rápidas reflejan respuestas bioquímicas bien establecidas de las hojas al daño mecánico. La lesión mecánica activa rápidamente la vía de la lipoxigenasa, que produce pulsos transitorios de compuestos volátiles C6 y compuestos oxigenados relacionados a partir de la oxidación de lípidos de membrana5,7,17,22,23. Estas emisiones presentan dinámicas fuertemente asimétricas, con un rápido aumento tras la alteración del tejido, seguido por una fase de decaimiento más lenta16. Este patrón asimétrico en el sistema actual se desarrolla en una escala de tiempo de segundos a minutos, como lo ilustran los descriptores cinéticos representativos resumidos en Tabla 1, mientras que estudios que lesionan hojas fuera de la cámara reportan picos retardados13. Esta mayor resolución capta la señal desde su inicio, reduce el ensanchamiento temporal y permite la cuantificación directa de ambas fases, la de aumento y la de decaimiento. Estas características cinéticas juntas definen la trayectoria completa de emisión, que enfoques con muestreo discreto o diferido frecuentemente subestiman5,15.
La estandarización del evento de corte dentro de la cámara mejora aún más la reproducibilidad experimental al garantizar una geometría y gravedad de la herida consistentes, ambas determinadas por la longitud del corte e influyen directamente en la magnitud de la emisión de COV5,18,22. No obstante, debido a que la cuchilla de corte ocupa una posición fija dentro de la cámara, la colocación del corte depende del tamaño y la morfología de la hoja, así como de la necesidad de mantener un sello hermético. Siempre que sea posible, el corte debe ubicarse dentro de la lámina intercostal, evitando el nervio central y otras venas principales. Sin embargo, no siempre puede garantizarse por completo la ausencia de daño en venas principales, especialmente en hojas estrechas o pequeñas. Dado que el daño en venas principales puede alterar sustancialmente las emisiones de COV inducidas por la herida5, la posición del corte debe mantenerse lo más consistente posible entre las muestras dentro del mismo experimento.
Mantener condiciones ambientales estables es igualmente importante para obtener mediciones reproducibles de COV inducidos por heridas. Dado que la producción, liberación y transporte de COV están influenciados por las condiciones ambientales, la temperatura, humedad, irradiación, concentración de CO2 y flujo de aire en la cámara se mantuvieron constantes durante todas las mediciones. La estandarización de estas variables reduce aún más la variabilidad experimental y mejora la reproducibilidad de la cinética de COV inducidos por heridas. Además, dado que el protocolo es completamente compatible con mediciones simultáneas de intercambio gaseoso, aplicaciones futuras podrían relacionar directamente la dinámica de emisión de COV con cambios en la fotosíntesis y la transpiración bajo condiciones experimentales idénticas26. Dichas mediciones podrían ayudar a distinguir la regulación bioquímica de la producción de COV de los procesos físicos que afectan la liberación de volátiles, incluida la evaporación aumentada de compuestos oxigenados solubles en agua desde el tejido herido16. Por consiguiente, las diferencias entre tratamientos o especies deben interpretarse solo cuando las condiciones ambientales, la geometría de la herida y el material vegetal, incluida la etapa de desarrollo de la hoja, se han estandarizado a lo largo del experimento12.
Aunque enfoques previos dentro de cámaras demuestran la viabilidad de mediciones en tiempo real de COV inducidos por heridas, también revelaron importantes limitaciones técnicas. Cortes irregulares, tamaño inconsistente de la herida y perturbaciones en el sellado de la cámara introdujeron variabilidad entre las mediciones18,19. Además, estos enfoques a menudo dependían de volúmenes de cámara relativamente grandes, lo que ralentizaba el recambio de aire, retrasaba la formación del pico y ensanchaba los perfiles de señal de compuestos volátiles22,27. Dichos efectos se vuelven más pronunciados para compuestos menos volátiles y pueden variar con la temperatura21. En contraste, la cámara más pequeña utilizada en el presente protocolo (~8 mL de volumen interno) reduce el tiempo de residencia del aire, contribuyendo al inicio más agudo observado en nuestras mediciones (Figura 1).
El protocolo fue desarrollado para experimentos fisiológicos controlados y no para el monitoreo directo in situ de ecosistemas forestales. Las mediciones se realizan en hojas intactas bajo condiciones ambientales bien definidas, minimizando así la variabilidad experimental y permitiendo una caracterización precisa de la cinética de compuestos orgánicos volátiles (VOC) inducida por heridas. Las aplicaciones de campo dependerán de la disponibilidad de sistemas portátiles de intercambio gaseoso y detección de VOC. No obstante, dado que el mecanismo de corte integrado puede adaptarse a diferentes configuraciones de cámara con solo modificaciones menores, el enfoque debería transferirse fácilmente a plataformas portátiles de intercambio gaseoso y otras plataformas experimentales a medida que estas tecnologías estén disponibles. Esta flexibilidad amplía las oportunidades para investigar respuestas rápidas al estrés en plantas, preservando al mismo tiempo la resolución temporal necesaria para caracterizar con precisión la dinámica de emisión de VOC, facilitando así estudios mecanicistas sobre las primeras respuestas fisiológicas y bioquímicas al daño foliar.
Divulgaciones
Los autores declaran que no existen conflictos de intereses.
Agradecimientos
Agradecemos el financiamiento del Consejo de Investigación de Estonia (PRG2207) y del Ministerio de Educación e Investigación de Estonia (Centro de Excelencia Agro-CropFuture, «Agroecología y nuevos cultivos en climas futuros», TK200U1).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Sistema GC-MS con desorbedor térmico TD-20 | Shimadzu | GCMS-QP2010 Plus; TD-20 | Sistema GC-MS con desorbedor térmico TD-20. www.shimadzu.com |
| Sistema de intercambio gaseoso GFS-3000 | Walz GmbH | GFS-3000 | Mediciones de intercambio gaseoso foliar. www.walz.com |
| Helio de alta pureza (99,999 %) | Proveedor local | N/A | Utilizado para acondicionar cartuchos adsorbentes y para la desorción térmica en GC-MS. www.airliquide.com (o proveedor equivalente). |
| Patrón de calibración de isopreno | Sigma-Aldrich Chemie GmbH | Personalizado | Patrón de calibración personalizado de isopreno (3,43 ppm). www.sigmaaldrich.com |
| Masa sellante de bajas emisiones | Proveedor local | N/A | Utilizada para sellar el punto de inserción del cortador en la cámara. |
| Cartucho adsorbente de acero inoxidable con múltiples lechos | Supelco | Personalizado | Longitud de 10,5 cm × diámetro interno de 3 mm; relleno con Carbotrap C (0,2 g, malla 20–40), Carbopack B (0,1 g, malla 40–60) y Carbotrap X (0,1 g, malla 20–40). Utilizado para la identificación opcional de COV mediante GC-MS fuera de línea. www.sigmaaldrich.com |
| Bomba portátil de muestreo de aire de flujo constante | SKC Inc. | 210-1003MTX | Bomba portátil de muestreo de aire de flujo constante. |
| Espectrómetro de masas PTR-TOF 8000 | Ionicon Analytik GmbH | PTR-TOF 8000 | Detección de COV. www.ionicon.com |
| Alambre de soldadura de plata | Proveedor local | N/A | Utilizado para fijar una cuchilla de afeitar a una varilla de acero inoxidable. |
| Lámina de latón elástica (0,2 mm de espesor) | Proveedor local | N/A | Soportes flexibles utilizados para asegurar el cortador. |
| Varilla de acero inoxidable (1 mm de diámetro) | Proveedor local | N/A | Varilla de soporte para el cortador. |
| Aguja de jeringa de acero inoxidable (1,6 mm de diámetro externo) | Proveedor local | N/A | Carcasa para una cuchilla de corte giratoria. |
| Taponamiento de teflón | Proveedor local | N/A | Utilizado para sellar la carcasa del cortador permitiendo la rotación. |
| Conector en T de teflón | Proveedor local | N/A | Instalado cerca de la salida de la cámara para reducir la longitud del tubo. |
| Tubo de teflón (FEP o PTFE) | Proveedor local | N/A | Línea de muestreo de COV entre la cámara y los detectores. |
| Mezcla de gases de calibración de COV | Ionimed GmbH | Personalizado | 1 ppm de cada compuesto en N2; utilizada para la calibración del PTR-TOF-MS. www.ionimed.com |
Referencias
- Bergman ME, Huang XQ, Baudino S, Caissard JC, Dudareva N. Plant volatile organic compounds: emission and perception in a changing world. Curr Opin Plant Biol. 2025;85:102706.
- Luo R, Lun X, Gao R, Wang L, Yang Y, Su X, et al. A review of biogenic volatile organic compounds from plants: research progress and future prospects. Toxics. 2025;13(5):1-35.
- Molleman F, Mandal M, Sokół-Łętowska A, Walczak U, Volf M, Mallick S, et al. Simulated herbivory affects the volatile emissions of oak saplings, while neighbourhood affects flavan-3-ols content of their leaves. J Chem Ecol. 2024;50(5-6):250-261.
- Huang PC, Berg-Falloure KM, Gao X, Meeley R, Kolomiets MV. Pentyl leaf volatiles promote insect and pathogen resistance via enhancing ketol-mediated defense responses. Plant Physiol. 2025;197(2):1-18.
- Portillo-Estrada M, Niinemets Ü. Massive release of volatile organic compounds due to leaf midrib wounding in Populus tremula. Plant Ecol. 2018;219(9):1021-1028.
- Engelberth M, Engelberth J. Leaf developmental stages strongly modulate indole emissions in response to simulated insect herbivory. Plants (Basel). 2025;14:3761.
- Matsui K. How and why plants came to smell green: the origins, biosynthesis, and roles of green leaf volatiles. J Exp Bot. 2025;76:1-14.
- Waterman JM, Cazzonelli CI, Hartley SE, Johnson SN. Simulated herbivory: the key to disentangling plant defence responses. Trends Ecol Evol. 2019;34(5):447-458.
- Tholl D, Boland W, Hansel A, Loreto F, Röse USR, Schnitzler JP. Practical approaches to plant volatile analysis. Plant J. 2006;45(4):540-560.
- Ormeño E, Goldstein A, Niinemets Ü. Extracting and trapping biogenic volatile organic compounds stored in plant species. TrAC Trends Anal Chem. 2011;30(7):978-989.
- Chang YY, Huang YM, Chang HT. Using headspace gas chromatography-mass spectrometry to investigate the volatile terpenoids released from the Liquidambar formosana leaf and its essential oil. Forests. 2024;15(9):1-12.
- Niinemets Ü, Kuhn U, Harley PC, Staudt M, Arneth A, Cescatti A, et al. Estimations of isoprenoid emission capacity from enclosure studies: measurements, data processing, quality and standardized measurement protocols. Biogeosciences. 2011;8(8):2209-2246.
- Portillo-Estrada M, Kazantsev T, Talts E, Tosens T, Niinemets Ü. Emission timetable and quantitative patterns of wound-induced volatiles across different leaf damage treatments in aspen (Populus tremula). J Chem Ecol. 2015;41(12):1105-1117.
- Waterman JM, Cofer TM, Von Laue OM, Mateo P, Wang L, Erb M. Leaf size determines damage- and herbivore-induced volatile emissions in maize. Plant Cell Environ. 2025;48(5):3766-3777.
- Yuan Y, Mao Y, Yuan H, Guo M, Zhou G, Niinemets Ü, et al. Impacts of mechanical injury on volatile emission rate and composition in 45 subtropical woody broad-leaved storage and non-storage emitters. Plants (Basel). 2025;14(5):1-40.
- Rasulov B, Talts E, Niinemets Ü. A novel approach for real-time monitoring of leaf wounding responses demonstrates unprecedentedly fast and high emissions of volatiles from cut leaves. Plant Sci. 2019;283:256-265.
- Portillo-Estrada M, Okereke CN, Jiang Y, Talts E, Kaurilind E, Niinemets Ü. Wounding-induced VOC emissions in five tropical agricultural species. Molecules. 2021;26(9):1-20.
- Mithöfer A, Wanner G, Boland W. Effects of feeding Spodoptera littoralis on lima bean leaves. II. Continuous mechanical wounding resembling insect feeding is sufficient to elicit herbivory-related volatile emission. Plant Physiol. 2005;137(3):1160-1168.
- Brilli F, Ruuskanen TM, Schnitzhofer R, Müller M, Breitenlechner M, Bittner V, et al. Detection of plant volatiles after leaf wounding and darkening by proton transfer reaction time-of-flight mass spectrometry (PTR-TOF). PLoS One. 2011;6(5):e20419.
- Kännaste A, Copolovici L, Niinemets Ü. Gas chromatography-mass spectrometry method for determination of biogenic volatile organic compounds emitted by plants. In: Rodríguez-Concepción M, editor. Plant Isoprenoids Methods and Protocols. New York (NY): Humana Press; 2014. p. 161-169.
- Schaub A, Blande JD, Graus M, Oksanen E, Holopainen JK. Real-time monitoring of herbivore-induced volatile emissions in the field. Physiol Plant. 2010;138(2):123-133.
- Fall R, Karl T, Hansel A, Jordan A, Lindinger W. Volatile organic compounds emitted after leaf wounding: on-line analysis by proton-transfer-reaction mass spectrometry. J Geophys Res Atmos. 1999;104(D13):15963-15974.
- Kaur D, Schedl A, Lafleur C, Martinez Henao J, van Dam NM, Rivoal J, et al. Arabidopsis transcriptomics reveals the role of Lipoxygenase2 (AtLOX2) in wound-induced responses. Int J Mol Sci. 2024;25(11):5898.
- Gentner DR, Ormeño E, Fares S, Ford TB, Weber R, Park JH, et al. Emissions of terpenoids, benzenoids, and other biogenic gas-phase organic compounds from agricultural crops and their potential implications for air quality. Atmos Chem Phys. 2014;14(11):5393-5413.
- Harley P, Deem G, Flint S, Caldwell M. Effects of growth under elevated UV-B on photosynthesis and isoprene emission in Quercus gambelii and Mucuna pruriens. Glob Chang Biol. 1996;2(2):149-154.
- Lobo-do-Vale R, Schenk HJ, Kübert A, Lintunen A. Gas phase in plants: integrating physiology, ecology and environmental sciences. Tree Physiol. 2026;46(13):1-4.
- Niinemets Ü. Whole plant photosynthesis. In: Flexas J, Loreto F, Medrano H, editors. Terrestrial Photosynthesis in a Changing Environment A Molecular Physiological and Ecological Approach. Cambridge: Cambridge University Press; 2012. p. 399-423.
Reimpresiones y permisos
Este artículo ha sido publicado
Video próximamente