Este protocolo tiene como objetivo evaluar el desarrollo del melanoma en xenoinjertos de pez cebra utilizando resonancia paramagnética electrónica in vivo (espectroscopía para detectar y analizar radicales de melanina), ofreciendo un enfoque novedoso para la investigación preclínica del melanoma y la evaluación terapéutica.
Artículo de método
Resonancia paramagnética electrónica en banda X para el monitoreo de cambios radicales asociados a melanina en xenoinjertos de melanoma de pez cebra in vivo
En este artículo
Resumen
Resumen
Este protocolo presenta una novedosa aplicación in vivo de espectroscopía de resonancia paramagnética electrónica en banda X (9,5 GHz) para monitorizar la dinámica de radicales asociados a melanina en modelos de xenoinjerto de melanoma pez cebra (Danio rerio). El objetivo de este método es permitir una evaluación directa, sin etiquetadores y cuantitativa, de los cambios redox asociados a melanina durante el desarrollo embrionario y de las interacciones tumor-huésped en un modelo vertebrado fisiológicamente relevante.
Aprovechando las propiedades paramagnéticas intrínsecas de la melanina, este enfoque proporciona información bioquímica complementaria que no puede obtenerse únicamente con imágenes convencionales basadas en fluorescencia. Es importante destacar que la señal de resonancia paramagnética electrónica detectada refleja la fracción redox activa del polímero de melanina y, por tanto, sirve como una lectura sensible a la redox en lugar de una medida directa de la abundancia total de pigmento.
El rendimiento del método se validó mediante la detección selectiva de radicales asociados a la melanina en embriones de tipo salvaje pigmentados, ausencia de señal en controles albinos, cambios estadísticamente significativos en el desarrollo en la señal normalizada de resonancia paramagnética electrónica entre réplicas biológicas independientes y resultados comparables obtenidos utilizando portamuestras alternativas y muestras congeladas.
Al combinar espectroscopía de resonancia paramagnética electrónica en banda X con modelos de xenoinjertos de pez cebra, este protocolo proporciona una plataforma escalable, éticamente favorable y transferible para la investigación preclínica del melanoma, estudios de biología redox y la evaluación de intervenciones moduladoras de melanogénesis.
Introducción
El objetivo general de este estudio es desarrollar y validar un método in vivo fiable para la detección y cuantificación de radicales de melanina en embriones de pez cebra (Danio rerio) modelo de xenoinjerto combinado con espectroscopía de resonancia paramagnética electrónica en banda X (9,5 GHz). Este enfoque tiene como objetivo permitir una evaluación directa y cuantitativa de los procesos redox asociados a melanina durante el desarrollo del melanoma y en respuesta a intervenciones farmacológicas.
La melanina es un grupo heterogéneo de biopolímeros responsables de la pigmentación en la piel, el cabello y los ojos en una amplia variedad de organismos. Entre sus formas, la eumelanina y la feomelanina desempeñan papeles distintos en la biología. La eumelanina presenta propiedades antioxidantes y fotoprotectoras, mientras que la feomelanina puede favorecer la generación de especies reactivas de oxígeno (ROS), especialmente bajo exposición a los rayos UV 1,2,3. Tanto las acciones antioxidantes como las prooxidantes están relacionadas con la formación de radicales melaninosos. A nivel molecular, la melanina es un polímero heterogéneo redox activo compuesto por subunidades que contienen indólicas y quinona que pueden existir en múltiples estados físicoquímicos, incluyendo quinona totalmente oxidada, semiquinona parcialmente reducida y hidroquinonatotalmente reducida 4,5,6. La abundancia relativa de especies de radicales semiquinona es dinámica y depende de las condiciones fisicoquímicas locales, incluyendo la disponibilidad de osígeno, las especies reactivas de oxígeno (ROS), las interacciones de iones metálicos, el pH, el grado de polimerización y la maduración de los melanosomas 7,8,9.
Por tanto, se necesitan métodos que permitan la evaluación cuantitativa de estas concentraciones radicales para comprender mejor los cambios en el estado redox de la melanina. En el melanoma, la desregulación de la melanogénesis en los melanocitos contribuye a la iniciación y progresión del melanoma. Esta desregulación suele estar relacionada con los cambios de estado redox, dependientes de las condiciones microambientales locales. Esto convierte la actividad redox de melanina como un factor importante en la biologíatumoral 10. Por lo tanto, los métodos que permitan la evaluación directa de los radicales melaninicos son esenciales para comprender la patogénesis y la respuesta terapéutica del melanoma.
Los embriones de pez cebra representan un potente modelo in vivo para estudiar la pigmentación y el melanoma. Hasta 5 días después de la fertilización (120 horas después de la fertilización, hpf), no están clasificados como animales protegidos según la Directiva 2010/63/UE, lo que permite experimentación de alto rendimiento sin aprobación ética formal. El rápido desarrollo, la transparencia óptica y los protocolos establecidos hacen que el pez cebra sea muy adecuado para estudios toxicológicosy farmacológicos 11,12. Es importante destacar que este pez comparte significativas similitudes genéticas y fisiológicas con los humanos, y las vías clave implicadas en la melanogénesis estánconservadas 13. Mientras que los peces cebra de tipo salvaje producen predominantemente eumelanina y sirven como modelo para la pigmentación fisiológica, los modelos de xenoinjertos —basados en la implantación de líneas celulares de melanoma que producen eumelanina y feomelanina— permiten investigar la progresión tumoral de mamíferos y las respuestas a fármacos en un microambiente fisiológicamenterelevante 14,15.
Actualmente, la imagen basada en fluorescencia es el método estándar utilizado en los estudios de xenoinjertos de melanoma de pez cebra. Este enfoque permite la visualización en tiempo real del crecimiento, migración y respuesta al tratamiento tumoral mediante tintes fluorescentes, por ejemplo, diacetato de diclorodihidrofluoresceína (DCFDA) o líneas transgénicas (Grx1-roGFP2, HyPer)16,17. Sin embargo, las técnicas de fluorescencia proporcionan principalmente información morfológica y espacial y tienen una capacidad limitada para capturar procesos bioquímicos y relacionados con redox. Además, sus lecturas pueden verse afectadas por el fotoblanqueo, la fuga de colorantes, la interferencia de compuestos fluorescentes y posibles alteraciones en la fisiología celular causadas por el marcado. De forma crucial, los métodos basados en fluorescencia no proporcionan información directa sobre los radicales melaninosos ni su comportamiento dinámico redox.
La espectroscopía de resonancia paramagnética electrónica ofrece un enfoque analítico único y potente, ya que permite la detección y cuantificación directa de especies paramagnéticas, incluidos los radicales estables asociados a la melanina. Tanto la eumelanina como la feomelanina contienen semiquinones que generan señales características de resonancia paramagnética electrónica, y la contribución relativa de estas señales se ha explorado como biomarcador del estado de pigmentación y progresión delmelanoma 18,19. Es importante destacar que, dado que solo la fracción de semiquinona redox activa contribuye directamente a la señal detectada, la espectroscopía de resonancia paramagnética electrónica proporciona información complementaria a los ensayos convencionales relacionados con melanogénesis, como la cuantificación del contenido de melanina, la actividad de tirosinasa o el análisis de pigmentación. Por tanto, la intensidad de la señal de resonancia paramagnética electrónica debe interpretarse como una lectura sensible al redox del estado funcional de la melanina, influenciada por condiciones fisicoquímicas locales, en lugar de una medida directa de la abundancia total de pigmento.
Aunque la mayoría de los estudios in vivo de resonancia paramagnética electrónica se han realizado utilizando sistemas de banda L (una forma de espectroscopía de resonancia paramagnética electrónica que utiliza microondas de baja frecuencia (alrededor de 1–2 GHz) para estudiar especies paramagnéticas, especialmente en muestras más grandes donde se requiere una penetración más profunda de la señal)20— la resonancia paramagnética electrónica en banda X proporciona mayor resolución espectral y sensibilidad para muestras de pequeño volumen, lo que la hace especialmente adecuada para embriones de pez cebra. Además, los desarrollos técnicos recientes, incluidos los sistemas de detección multiarmónico, mejoran significativamente la calidad de la señal y permiten mediciones fiables en muestras biológicas difíciles (pequeñas y más hidratadas) 21,22. El tamaño del resonador en banda X es el tamaño adecuado para unos pocos embriones de pez cebra, lo que, combinado con una resolución superior a la del sistema en banda L, permite reducir el número de animales utilizados. Esto es especialmente importante al trabajar con modelos de xenoinjertos.
A pesar de estas ventajas, la aplicación de la resonancia paramagnética electrónica en banda X a embriones vivos de pez cebra y xenoinjertos de melanoma en este modelo sigue siendo en gran medida inexplorada. Los estudios in vitro utilizando líneas celulares de melanoma, como B16F10, han proporcionado valiosas ideas sobre las propiedades de los radicales melaninosos; sin embargo, carecen del complejo contexto fisiológico de un organismo vivo23,24. En particular, el microambiente del pez cebra introduce factores críticos —como gradientes de oxígeno, interacciones célula-célula y actividad metabólica dinámica— que pueden influir significativamente en el comportamiento de los radicalesmelaninas 25,26. Por lo tanto, existe una clara necesidad de desarrollar y validar una metodología in vivo que permita la medición directa de los radicales de melanina bajo condiciones fisiológicamente relevantes.
En este estudio, presentamos un protocolo detallado para aplicar espectroscopía de resonancia paramagnética electrónica en banda X a embriones de pez cebra, incluyendo modelos de xenoinjertos que contienen líneas celulares de melanoma B16F10 y B16F1. Este método ofrece un enfoque complementario a la imagen basada en fluorescencia al permitir una evaluación cuantitativa del contenido de radicales melaninas, proporcionando así una visión sobre la dinámica redox. Al integrar información estructural y espacial de técnicas de fluorescencia con conocimientos bioquímicos de la resonancia paramagnética electrónica, esta estrategia combinada potencia el poder analítico de los modelos de pez cebra para la investigación preclínica del melanoma. Es importante destacar que la señal de resonancia paramagnética electrónica detectada en este protocolo refleja la fracción redox-activa del polímero de melanina. Por tanto, la intensidad de la señal debe interpretarse como una lectura sensible al redox en lugar de una medida directa del contenido total de melanina, y considerarse en combinación con el contenido total de pigmento como indicación de desplazamientos redox asociados a la melanina. Debido al enfoque de medición del organismo completo y al número limitado de células de melanoma inyectadas, la señal detectada representa principalmente cambios radicales globales asociados a la melanina a nivel de todo el embrión/larva del pez cebra, en lugar de una señal específica del melanoma originada exclusivamente en el xenoinjerto. Esta distinción es especialmente relevante en sistemas biológicos dinámicos, donde pueden producirse cambios en el estado de oxidación de la melanina de forma independiente de los cambios en la cantidad total de pigmento.
Protocolo
En este estudio se utilizaron embriones de pez cebra (Danio rerio) hasta 5 días después de la fecundación (120 hpf). En esta etapa de desarrollo, los embriones no se consideran animales protegidos según la Directiva 2010/63/UE y, por tanto, los experimentos no requieren autorización formal por parte de un comité de ética. No obstante, todo el trabajo se llevó a cabo conforme a las buenas prácticas de laboratorio y las directrices institucionales para el cuidado y uso del pez cebra.
1. Preparación de reactivos y mantenimiento de líneas celulares de melanoma de ratón B16F1 y B16F10
- Preparación del medio completo
- Añade 50 mL de suero fetal bovino (FBS) y 5,5 mL de solución de penicilina-estreptomicina a 500 mL del Medio Águila Modificado (DMEM) de Dulbecco.
- Calienta todo el medio a 37 °C antes de usarlo.
NOTA: Utiliza soluciones precalentadas para minimizar el estrés térmico durante el manejo de las celdas.
- Descongelación y inicio del cultivo a partir de células congeladas
- Descongela rápidamente el vial congelado con las celdas en un baño maria a 37 °C (~1–2 minutos).
- Desinfecta el exterior del vial con etanol al 70%. Realiza todos los pasos posteriores en condiciones asépticas.
- Transfiere la suspensión de la celda a un tubo cónico de 15 mL que contiene 9 mL de medio completo precalentado. Conserva una pequeña alitería de la suspensión original para la prueba de micoplasma.
- Centrifugar las celdas en el tubo a 200 × g durante 5 minutos a temperatura ambiente.
- Aspira el sobrenadante para eliminar el residuo de dimetil sulfóxido (DMSO; del medio congelante).
- Resuspende la pellet celular en 10 mL de medio completo fresco y precalentado.
- Transfiere las células a una placa de Petri de ⌀�9 cm y gira suavemente en forma de ocho para distribuir las células de forma uniforme.
- Incubar las células a 37°C, 5% de CO₂ y ≥95% de humedad durante la noche.
- Sustituye el medio de cultivo por medio completo fresco y precalentado tras 16–24 horas.
- Continúa la incubación hasta que las células alcancen una confluencia del >80%. Proceder a la subcultura (véase el paso 1.3).
NOTA: Alternativamente a las placas de Petri, pueden usarse recipientes de cultivo estériles (por ejemplo, matrazas en T). Si se prefieren platos o frascos más pequeños, divide las células proporcionalmente para mantener la misma superficie relativa de cultivo.
- Subcultivo de células
- Retira el medio de cultivo de la monocapa celular. Conserva una pequeña alicuota para la prueba de micoplasma.
- Añade 10 mL de solución salina con fosfato (PBS) al plato de cultivo.
- Deja reposar el PBS sobre las células a temperatura ambiente durante 3–5 minutos para permitir la eliminación completa de las proteínas séricas.
- Aspira suavemente el PBS, teniendo cuidado de no desalojar las células.
- Añade 1 mL de reactivo de disociación celular e incuba a 37°C hasta que las células se agrupen y desprendan (no excedan los 5 minutos de incubación).
- Añade 1 mL de medio completo precalentado para evitar la disociación enzimática.
- Pipetea suavemente la suspensión de celda varias veces para obtener una suspensión de celda única.
- Transfiere las células a una nueva placa de Petri o a un termo en T que contenga un medio completo precalentado con una proporción dividida de 1:4 a 1:10. Gira suavemente en forma de ocho para distribuir las células de forma uniforme.
- Incuba las células a 37 °C, 5% de CO₂ y ≥95% de humedad.
NOTA: Utilice soluciones precalentadas (37 °C) y realice todos los procedimientos en condiciones asépticas en un armario de seguridad biológica de Clase II mientras se lleva el equipo de protección individual adecuado. Subcultivar células cada 2–3 días o con una confluencia del 80–90%. Utiliza células de paso bajo (
- Criopreservación (almacenamiento) de células
- Utiliza células sanas que crecen exponencialmente (~70%–80% confluentes).
- Extraer las células según lo descrito en los pasos 1.3.1–1.3.7 y transferir la suspensión celular a un tubo cónico de 15 mL.
- Centrifuga las pilas a 300 × g durante 2 minutos.
- Retirar el sobrenadante y volver a suspender las células en un medio de criopreservación a 1–5 × 10⁶ celdas/mL.
- Suspensión celular alicuota en crioviales marcados (línea celular, número de paso, fecha).
- Congela los viales durante la noche a -80°C usando un recipiente de congelación a tasa controlada.
- Como alternativa, emplea un método de aislamiento anidado: inserta los viales en un pequeño estante de poliestireno diseñado para tubos de 1,5/2,0 mL, que luego se sitúa dentro de una caja de poliestireno más grande.
NOTA: Esta configuración de doble capa está diseñada para proporcionar el buffer térmico necesario para lograr una tasa de enfriamiento gradual, lo cual es fundamental para la criopreservación exitosa.
NOTA: Los materiales criogénicos deben manipularse con guantes aislantes y protección facial. Sigue las directrices institucionales para la manipulación de nitrógeno líquido y residuos peligrosos.
- Como alternativa, emplea un método de aislamiento anidado: inserta los viales en un pequeño estante de poliestireno diseñado para tubos de 1,5/2,0 mL, que luego se sitúa dentro de una caja de poliestireno más grande.
- Tras una incubación nocturna a -80 °C, transfiere los viales a nitrógeno líquido para su almacenamiento a largo plazo. Los Cryovials pueden almacenarse a -80 °C para almacenamiento a corto plazo.
- Pruebas de micoplasma
- Recoger una pequeña alitería de medio de cultivo o suspensión celular durante el descongelamiento, subcultivo o criopreservación.
- Evalúa la contaminación por micoplasma utilizando un kit validado de detección de micoplasmas basado en PCR o enzimático según las instrucciones del fabricante.
- Utiliza cultivos de micoplasma negativo para experimentos o para la banca de líneas celulares.
- Registrar los resultados y descartar o aislar cualquier cultivo contaminado hasta que se aclare.
NOTA: Haz pruebas regulares para detectar contaminación por micoplasmas.
2. Trasplante de células cancerosas en larvas de pez cebra
- Preparar las células cancerosas para el trasplante
- Haz crecer las células hasta ~80% de confluencia.
- Cosechar las células según se describen en los pasos 1.3.1–1.3.7.
- Transfiere la suspensión de la celda a un tubo microcentrífuga de 2 mL.
- Centrifuga las pilas a 300 × g durante 2 minutos a temperatura ambiente.
- Retira el sobrenadante y lava la pellet celular con 1 mL de PBS estéril.
- Repite los pasos 2.1.4–2.1.5 y vuelve a suspender las celdas en el PBS restante. Una suspensión más densa proporciona menos sedimentación.
- Pipetear la suspensión suavemente arriba y abajo hasta obtener una suspensión homogénea de célula única.
NOTA: Uso de una punta de pipeta de 200 μL prehumedecida (cebada) con una solución de polivinilpirrolidona (PVP) al 45%, ya que ayuda a prevenir la sedimentación celular dentro de la microaguja de inyección. - Mantén la suspensión de la célula en hielo hasta la inyección.
NOTA: Si se produce agrupación celular, pasar la suspensión celular por un colador celular de 35–40 μm y/o tratar las células con 0,01–0,05 mg/mL de DNasa I.
- Producción de huevos de pez cebra
- La noche anterior a la recogida esperada de huevos, coloque el pez cebra adulto en tanques de cría que contienen agua del sistema (preparados para la puesta en desove).
- Mantener los tanques en completa oscuridad durante la noche; Esto asegura que la reproducción se active por la mañana del día siguiente, cuando se encienden las luces.
- Los peces desovan después de la luz al día siguiente. Recoge los huevos vertiendo el agua del acuario sobre un colador de té.
- Enjuaga bien los huevos con medium E3 (5 mM NaCl, 0,17 mM KCl, 0,33 mMCaCl 2, 0,33 mMMgSO 4).
- Transfiere los huevos fertilizados a placas de Petri de 9 cm que contienen entre 20 y 25 mL de medio E3. No coloque más de 50 embriones en cada plato.
- Incubar los embriones a 28 °C hasta su uso adicional.
NOTA: Procura mantener los huevos húmedos en todo momento.
- Preparación de embriones de pez cebra
- Retirar manualmente los coriones de los embriones a aproximadamente 36 hpf.
- Usa dos pares de pinzas ultrafinas Jewelry No. 5. Con un par, pellizca firmemente pero suavemente el corion para estabilizar el huevo. Usa el segundo par de pinzas para agarrar el corion cerca del primero.
- Tira suavemente de las pinzas en direcciones opuestas para crear un pequeño desgarro. Ensancha cuidadosamente la abertura hasta que el embrión se deslice hacia fuera.
- Anestesiar las larvas decorionadas con solución de tricaína recién preparada según los protocolos establecidos para pecescebra 27.
NOTA: Los embriones sin coriones son frágiles, pegajosos y deben evitar la exposición al aire. Utiliza pipetas de cristal y placas de Petri recubiertas de agarosa mientras trabajas con pez cebra <3 dpf.
- Retirar manualmente los coriones de los embriones a aproximadamente 36 hpf.
- Prepara agujas de microinyección
- Extrae los capilares de vidrio sin filamento usando un extractor con parámetros establecidos según las directrices del fabricante.
- Con pinzas finas, rompe la punta de la aguja en dos pasos: primero, haz una pequeña ruptura en la punta fina de la aguja. Luego, realiza una segunda ruptura justo donde las células se quedan atascadas. Esto crea una abertura óptima que es lo suficientemente grande para que las células pasen, pero que se mantenga lo más pequeña posible.
- Rellena la aguja con la suspensión de celdas usando un microlader largo, una punta para rellenar microcapilares de vidrio. Evita introducir burbujas de aire.
- Utilizar la mayor densidad celular posible (concentración máxima) para la suspensión; La dosis específica de la célula se controla mediante la configuración del inyector.
- Carga la aguja con frecuencia con pequeñas alicuotas, limitando la columna de suspensión dentro de la aguja a una altura máxima de 2 mm. Esto minimiza la sedimentación celular dentro de la aguja, asegurando una distribución más homogénea y una entrega más consistente durante las inyecciones.
- Monta la aguja cargada en un soporte del aparato de microinyección.
- Ajusta la presión de inyección y la duración del pulso para administrar el número deseado de células por inyección (el volumen total de la suspensión de células inyectadas no debe superar el tamaño del ojo del embrión de pez cebra en el momento de la inyección).
NOTA: Ejemplos detallados de la metodología de microinyección de xenoinjertos de pez cebra fueron descritos previamente por otrosautores 28.
- Procedimiento de microinyección
- Inyectar la suspensión celular en el saco vitelino o en la circulación según el diseño experimental.
- Administrar más de 1000 células por embrión bajo condiciones de inyección calibradas.
NOTA: Incluir embriones inyectados con solución salina tamponada con fosfato (PBS) como controles negativos.
- Manipulación post-inyección
- Mantener el embrión o larvas inyectados a 28-32 °C
- Monitorizar la supervivencia y progresión del desarrollo larval diariamente bajo un microscopio disecador.
- Evaluar la proliferación y migración de células tumorales en los puntos experimentales seleccionados.
- Proceder con la medición de resonana paramagnética electrónica (EPR) según la sección 3.1 o almacenar la muestra como se describe en la sección 2.7
NOTA: Descarta las larvas con trauma por inyección o inyección incorrecta. Sigue todas las directrices institucionales de bioseguridad y cuidado animal. Manipular la tricaína y los residuos biológicos según los protocolos de seguridad. Eliminar materiales peligrosos según la normativa.
- Recogida de muestras para congelación
- Eutanasia las larvas inmersiones en una solución fría de tricaína durante al menos 3 minutos.
- Transfiere grupos de 10 larvas a tubos microcentrífugas de 1,5 mL. Retira el exceso de medio de cada tubo.
- Almacenar muestras a -20 °C hasta el análisis de resonancia paramagnética electrónica.
3. Detección de radicales melaninas mediante espectroscopía de resonancia paramagnética electrónica
- Detección de radicales melaninas en larvas de pez cebra in vivo
- Encienda el espectrómetro de resonancia paramagnética de electrones en banda X y permita que el sistema se estabilice según las instrucciones del fabricante.
- Transfiere entre 20 y 30 larvas de pez cebra (3–5 días después de la fertilización, dpf) a un tubo microcentrífuga de 1,5 mL.
- Rellena el capilar plano para larvas de pez cebra con 100 μL de medio E3.
- Sella un extremo del capilar con una tapa de plástico y asegúrate de que la columna de líquido permanezca confinada a la cámara plana.
- Transfiere varias larvas junto con un pequeño volumen de medio E3 a un capilar hematocrito de 100 μL.
- Depositar suavemente las larvas desde el capilar hematocrito en la parte superior de la parte plana.
NOTA: Procura preservar la continuidad de la solución. No deberían haber burbujas de aire en la parte plana ni cerca de la parte superior de la parte plana. - Eliminar el exceso de líquido de la sección tubular externa del capilar manteniendo un contacto continuo con el líquido dentro de la cámara plana.
- Repite los pasos 3.1.5–3.1.7 hasta que se carguen 20–30 larvas en el capilar plano.
- Elimina el líquido residual de las secciones tubulares del capilar.
- Inserta el capilar en el espectrómetro de resonancia paramagnética electrónica y coloca la muestra en el centro del resonador.
- Establecer los parámetros de adquisición en el software del espectrómetro de la siguiente manera: campo central = 335 mT; ancho de barrido = 10 mT; amplitud de modulación = 500 μT; potencia de microondas = 1,6 mW; número de escaneos = 32; tiempo de barrido = 11 s; Constante de tiempo = 0.
- Adquiere el espectro de resonancia paramagnética electrónica.
- Retira el capilar del resonador y libera las larvas en un medio fresco E3 en una placa de Petri.
NOTA: Evitar introducir burbujas de aire durante la carga de la muestra, ya que las discontinuidades en la columna de líquido pueden reducir la reproducibilidad de la señal. Si no hay detección multiarmónica disponible, se reduce la amplitud de modulación y se optimizan los parámetros de adquisición para maximizar la intensidad de la señal sin distorsión espectral.
- Detección de radicales de melanina en larvas de pez cebra congeladas
- Descongelar una muestra congelada que contiene 10 larvas de pez cebra eutanasiadas a temperatura ambiente durante 5–10 minutos.
- Añade 100 μL de medio E3 a la muestra descongelada.
- Transfiere las larvas junto con el medio a un capilar hematocrito de 100 μL.
- Eliminar el exceso de líquido del capilar hasta que la muestra ocupe solo el volumen del resonador activo (aproximadamente 1 cm de longitud).
- Sella el capilar con un compuesto sellante.
- Inserta el capilar en el espectrómetro de resonancia paramagnética electrónica y coloca la muestra en el centro del resonador.
- Establecer los parámetros de adquisición en el software del espectrómetro de la siguiente manera: campo central = 335 mT; ancho de barrido = 10 mT; amplitud de modulación = 500 μT; potencia de microondas = 1,6 mW; número de escaneos = 32; tiempo de barrido = 11 s; Constante de tiempo = 0.
- Adquiere y guarda el espectro de resonancia paramagnética electrónica.
NOTA: Asegúrese de que el borde superior de la muestra permanezca por debajo del borde superior del resonador para evitar la distorsión de la señal. Si no hay detección multiarmónica disponible, se reduce la amplitud de modulación y se optimiza la potencia de microondas para maximizar la intensidad de la señal sin distorsión espectral.
- Extracción de datos de resonancia paramagnética electrónica a partir de software de analizadores multiarmónicos y postprocesado de espectros
- Abre el espectro de resonancia paramagnética electrónica registrada en el software de análisis multiarmónico.
- Activa el procesamiento de señales de doble canal seleccionando Usar dos canales.
- Establece el número de armónicos procesados a 30.
- Ajusta el parámetro de fase/grado de microondas hasta obtener componentes simétricos de absorción y dispersión.
- Ajusta el parámetro de fase/grado de modulación hasta que el Canal 1 muestre una señal de absorción pura y el Canal 2 una señal de dispersión pura.
- Ajusta el parámetro de amplitud/G de modulación hasta obtener la línea espectral más estrecha y sin distorsión.
- Configura el parámetro Pasa-Bajos/Hz para reducir el ruido de alta frecuencia mientras se conserva la forma de la línea espectral.
- Selecciona la pestaña de supresión de ruido y haz clic en Activar supresión de ruido. Ajusta el factor de suavizado y los parámetros de refinamiento de línea estrecha hasta que la relación señal-ruido mejore sin distorsión visible de la línea espectral.
- Selecciona la pestaña de Artefactos y activa la corrección de valores atípicos y la corrección de ancho de banda.
- Guarda espectros en un formato utilizado por el software de análisis de datos para análisis posteriores.
- Calcular la intensidad de la señal doble integrada utilizando integración numérica en un software de análisis de datos adecuado.
NOTA: Al trabajar con resonadores de alta Q, la corrección de ancho de banda mejora la reconstrucción de componentes armónicos de mayor calidad. La reconstrucción multiarmónica permite la recuperación de espectros no distorsionados a partir de datos en bruto sobremodulados y mejora la relación señal-ruido en muestras biológicas de baja intensidad.
Resultados
Una visión esquemática del flujo de trabajo experimental se presenta en la Figura 1. Se recogieron embriones de pez cebra, se trasplantaron con células de melanoma B16F10, se incubaron bajo condiciones controladas y se monitorizaron mediante microscopía de campo brillante o fluorescencia antes del análisis de resonancia paramagnética electrónica en banda X. Posteriormente, los embriones vivos se cargaban en un capilar/soporte plano para medir la resonancia paramagnética electrónica de organismos completos, lo que permitía la detección no invasiva de señales radicales asociadas a la melanina. Tras la adquisición de la resonancia paramagnética electrónica, los embriones se liberaban en un medio E3 fresco, permitiendo mediciones longitudinales en los mismos ejemplares biológicos.
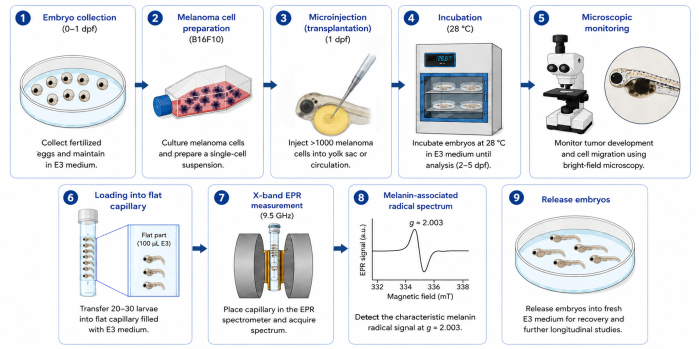
Figura 1: Visión gráfica del flujo de trabajo experimental para el monitoreo in vivo de radicales asociados a melanina en xenoinjertos de melanoma pez cebra utilizando espectroscopía de resonancia paramagnética electrónica (EPR) en banda X. Se recogen embriones de pez cebra, se trasplantan con células de melanoma, se incuban y se monitorizan microscópicamente antes de cargarlos en un capilar plano personalizado para mediciones EPR de organismos completos. Tras la detección de la señal radical asociada a melanina característica (g ≈ 2,003), las larvas son liberadas para mediciones longitudinales de seguimiento. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
Para validar la especificidad del método, se realizaron mediciones en embriones de pez cebra tipo salvaje (WT) y albinos. Los embriones de WT comienzan a desarrollar pigmentación visible aproximadamente a 27 hpf. Correspondientemente, los espectros de resonancia paramagnética electrónica adquiridos de embriones WT exhiben una señal característica de línea única centrada en g ≈ 2,003, consistente con los radicales semiquinones derivados de eumelanina (por ejemplo, DHI/DHICA). En contraste, los embriones albinos, que carecen de síntesis funcional de melanina, no muestran ninguna señal detectable de resonancia paramagnética electrónica en la misma región espectral incluso a los 5 días tras la fertilización (dpf). Esto confirma que la señal observada se origina específicamente en los radicales melanininas y representa un control negativo de validación de la selectividad del método (Figura 2).
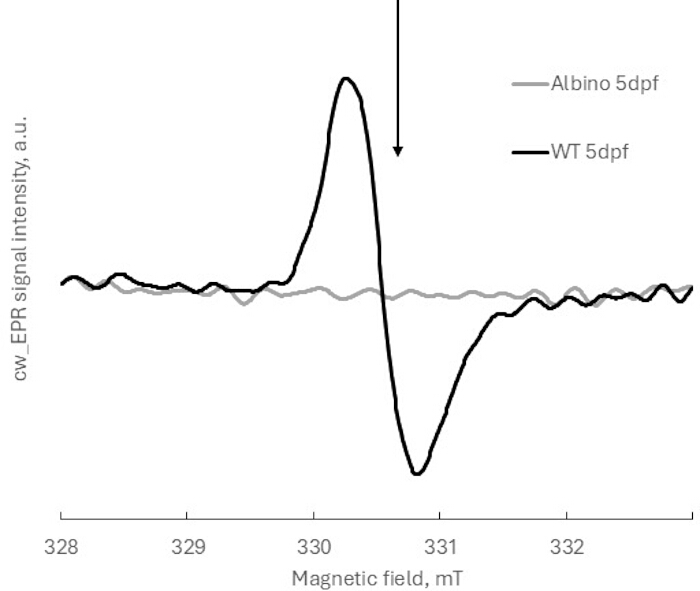
Figura 2: Espectros representativos de resonancia paramagnética de electrones en banda X de embriones de tipo salvaje (WT) y albino de pez cebra a 5dpf. La flecha indica la posición de resonancia (g ≈ 2,003) de la señal radical asociada a melanina de embriones de pez cebra 5dpf WT. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
El método permite el seguimiento cuantitativo de la formación de radicales melaniniques durante el desarrollo. A medida que avanza la pigmentación, se observa un claro aumento en la intensidad de la señal de resonancia paramagnética electrónica. La comparación de embriones WT de 2 dpf a 5 dpf muestra un aumento sustancial en la señal de resonancia paramagnética electrónica doble integrada normalizada por embrión. La normalización se realizó dividiendo las intensidades brutas de la señal de resonancia paramagnética electrónica por el número de embriones en la muestra antes de calcular la doble integral (Figura 3A).
El análisis estadístico se realizó utilizando la prueba de Kruskal–Wallis seguida de la prueba de comparaciones múltiples de Dunn. El análisis de seis réplicas biológicas independientes (cada una con 7–10 embriones) demostró diferencias estadísticamente significativas en la señal normalizada de resonancia paramagnética electrónica entre las etapas de desarrollo (p < 0,05), lo que confirma la sensibilidad del método.
La doble integral de los espectros de resonancia paramagnética de electrones es proporcional al número de espíns electrónicos no apareados. Por tanto, su aumento indica un incremento en la población de radicales asociados a la melanina durante el desarrollo. Es importante destacar que este aumento probablemente refleja cambios en el equilibrio redox de melanina asociados a melanogénesis progresiva, más que solo a la acumulación de pigmento.
La reproducibilidad del protocolo se evaluó a fondo comparando espectros representativos de resonancia paramagnética electrónica adquiridos de muestras que contenían diferentes números de embriones (7 frente a 10) en la misma etapa de desarrollo (5 dpf). Como era de esperar, los espectros en bruto mostraron diferencias en la amplitud de la señal proporcionales al tamaño de la muestra (Figura 3B). Tras la normalización de cada espectro al número de embriones por muestra, los espectros se solaparon casi por completo (Figura 3C), y la variabilidad entre lotes permaneció por debajo del 10%. Estos resultados destacan la importancia de la normalización por embrión y confirman la solidez del método para estudios comparativos.
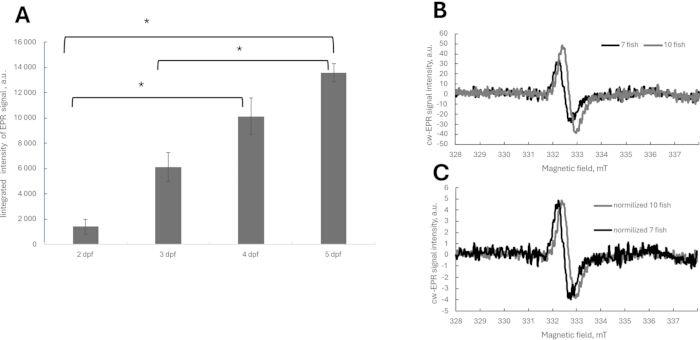
Figura 3: Monitorización cuantitativa de la dinámica radical asociada al desarrollo de melanina y normalización de espectros de resonancia paramagnética electrónica. (A) Señal de resonancia paramagnética de electrones en banda X doble integrada obtenida de embriones de pez cebra tipo salvaje (WT) a los 2, 3, 4 y 5 días después de la fertilización (dpf). La intensidad de la señal se normalizó al número de embriones por muestra. Los datos representan la media ± DS de seis réplicas biológicas independientes, cada una compuesta por 7–10 embriones. Diferencias estadísticamente significativas - *p < 0,05. (B) Espectros representativos de resonancia paramagnética de electrones crudos adquiridos de 5 embriones dpf WT utilizando muestras que contienen 7 y 10 embriones. La amplitud de la señal aumenta proporcionalmente al número de embriones en la muestra. (C) Los mismos espectros de resonancia paramagnética electrónica mostrados en el panel B tras la normalización, es decir, las intensidades espectrales brutas se dividen por el número de embriones en el capilar. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
Para evaluar si el protocolo depende del capilar plano personalizado utilizado para mediciones in vivo de pez cebra, se realizó la detección de radicales asociados a melanina utilizando tanto el capilar plano personalizado como un capilar comercial estándar disponible para análisis ex vivo . Los espectros representativos de resonancia paramagnética electrónica adquiridos usando ambos portamuestras mostraron una forma lineal y posición de resonancia altamente comparables (Figura 4A), lo que indica que la detección fiable de radicales asociados a melanina no se limita al diseño capilar personalizado. Las señales procedentes de los capilares planos, tras normalización por embrión, fueron dos veces menores que las recalculadas desde el capilar estándar.
Para evaluar aún más la flexibilidad en el manejo de la muestra, se midieron embriones de pez cebra inmediatamente después de la recogida y tras congelar, seguidos de un análisis ex vivo utilizando capilares estándar. No se observaron diferencias estadísticamente significativas entre muestras frescas y congeladas en seis réplicas biológicas independientes (Figura 4B). Estos resultados demuestran que el protocolo puede adaptarse a los portamuestras de resonancia paramagnética electrónica comúnmente disponibles y soporta análisis ex vivo retardado, aumentando significativamente la accesibilidad, flexibilidad y reproducibilidad del método en laboratorios con diferentes espectrómetros de resonancia paramagnética electrónica.
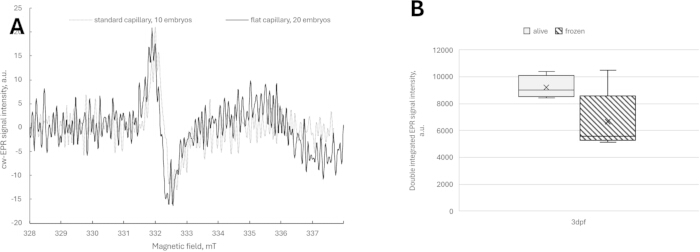
Figura 4: Compatibilidad del protocolo. (A) Espectros de resonancia paramagnética electrónica en bruto medidos en capilares estándar y planos de pez cebra WT 2dpf. (B) Comparación de las mismas réplicas biológicas (pez cebra 3 dpf WT) medidas vivas y congeladas en capilares estándar. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
Para determinar si la señal de resonancia paramagnética electrónica detectada podía atribuirse directamente a radicales de melanina derivados del melanoma, se utilizaron embriones de pez cebra albinos como fondo libre de melanina e inyectados con células de melanoma B16F10. Las mediciones de resonancia paramagnética electrónica se realizaron a los 4 días post-fertilización (dpf) bajo las mismas condiciones de adquisición que se usan para embriones de tipo salvaje. Como era de esperar, los embriones albinos no inyectados no mostraron señal detectable de resonancia paramagnética electrónica en la región espectral específica de melanina. Es importante destacar que no se observó ninguna señal detectable de resonancia paramagnética electrónica asociada a melanina en embriones albinos con células B16F10 inyectadas (Figura 5A), a pesar de que el enjerto celular exitoso fue confirmado por microscopía brillante (Figura 5B).
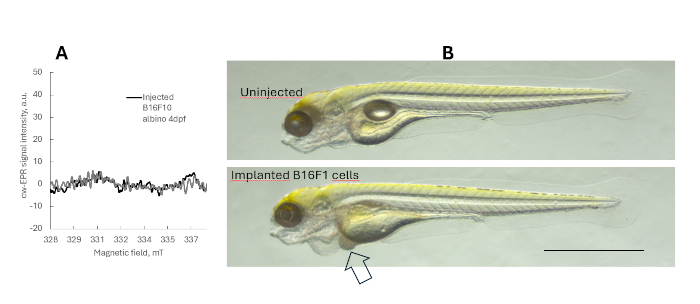
Figura 5: Evaluación de la detección directa de radicales asociados a melanina derivados del melanoma en xenoinjertos de pez cebra albinos B16F10. (A) Señal de resonancia paramagnética electrónica asociada a melanina en mediciones de xenoinjertos albinos y albinos B16F10 de 4df medidas con un espectrómetro de resonancia paramagnética de electrones en banda X. Se utilizaron tres réplicas biológicas de 10 embriones cada una. (B) Imagen en campo claro de 4 dpf albinos y xenoinjertos albinos con B16F10 tres días después de la implantación de células cancerosas. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
Estos resultados indican que, bajo las condiciones experimentales actuales, el número de células de melanoma inyectadas está por debajo del umbral directo de detección de la resonancia paramagnética electrónica en banda X. Por lo tanto, la señal asociada a la melanina detectada en mediciones de organismos completos refleja principalmente cambios globales en el estado redox de melanina del embrión/larva de pez cebra, en lugar de una señal específica del melanoma originada exclusivamente en el xenoinjerto.
En los experimentos con xenoinjertos, la eficiencia del enjerto y crecimiento de células de melanoma dependía fuertemente del lugar de inyección. La inyección en la circulación (torrente sanguíneo) resultó en un desarrollo tumoral más constante y permitió una detección fiable de la señal de resonancia paramagnética electrónica asociada a las células del melanoma. En cambio, la inyección en el saco vitelino provocó un desarrollo embrionario deteriorado y un crecimiento tumoral deficiente, resultando en señales débiles o inconsistentes. Por ello, se recomienda la inyección en el torrente sanguíneo para obtener resultados robustos e interpretables (Figura 6).
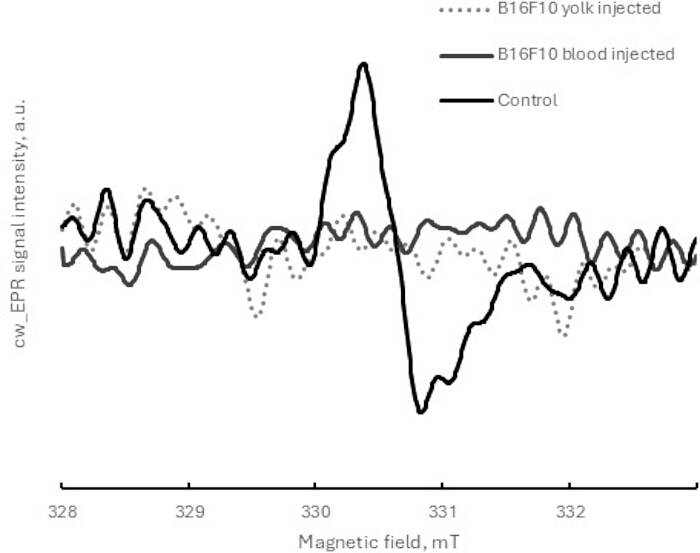
Figura 6: Efecto del sitio de inyección de células de melanoma sobre el embrión de pez cebra 2 dpf y el desarrollo de xenoinjertos medido con resonancia paramagnética electrónica en banda X. Espectros representativos de resonancia paramagnética electrónica de embriones de pez cebra inyectados con células de melanoma B16F10 en el saco vitelino o circulación. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
Para demostrar aún más la aplicabilidad del método en modelos de melanoma, comparamos la señal de resonancia paramagnética electrónica obtenida de embriones de pez cebra tipo salvaje (WT) y embriones WT inyectados con células de melanoma B16F10 a lo largo de diferentes momentos de desarrollo.
En embriones de WT, la señal de resonancia paramagnética electrónica aumentó progresivamente con el tiempo, reflejando la acumulación natural de eumelanina durante el desarrollo. En contraste, los embriones con xenoinjertos B16F10 presentaron dinámica de señal alterada, con una señal de resonancia paramagnética electrónica modificada en comparación con WT en los puntos temporales correspondientes (Figura 7). Estas diferencias probablemente reflejan la modulación inducida por tumores de la melanogénesis del huésped y las condiciones redox sistémicas, más que la detección directa de radicales melanininos derivados del melanoma por sí solos. Como las células B16F10 producen principalmente eumelanina, no se detectó ninguna señal de feomelanina.
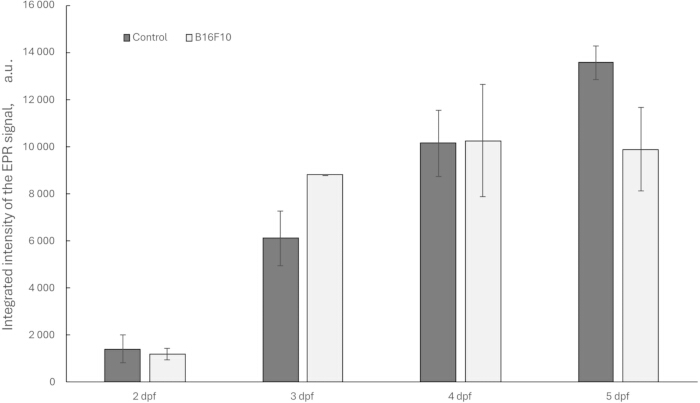
Figura 7: Comparación representativa de la dinámica de señales EPR de organismos completos en embriones de pescado cebra portadores de WT y WT B16F10. Señal de resonancia paramagnética electrónica de banda X doble integrada obtenida de embriones de pez cebra de tipo salvaje (WT) y xenoinjertos WT B16F10 a los 2, 3, 4 y 5 días después de la fertilización (dpf). La intensidad de la señal se normalizó al número de embriones por muestra. Los datos representan la media ± de la DE de seis réplicas biológicas independientes (para control) y tres para xenoinjertos de B16F10, cada uno compuesto por 7–10 embriones. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
En general, la implementación exitosa de este protocolo se indica por: (i) la detección de una señal clara de resonancia paramagnética de electrones de línea única en g ≈ 2 en embriones pigmentados, (ii) la ausencia de señal en controles albinos, (iii) el aumento de la intensidad de la señal en la etapa de desarrollo, y (iv) la reproducibilidad entre réplicas biológicas tras la normalización.
Discusión
Este estudio presenta un protocolo robusto y sensible para la detección in vivo de radicales asociados a la melanina en embriones de pez cebra mediante espectroscopía de resonancia paramagnética electrónica en banda X. El método permite un seguimiento no invasivo y sin marcadores de los cambios redox asociados a melanina durante la melanogénesis fisiológica, el desarrollo de xenoinjertos de melanoma y la intervención farmacológica. Al combinar la alta sensibilidad de la espectroscopía de resonancia paramagnética de electrones en banda X con la plataforma de xenoinjertos de pez cebra, este enfoque amplía las capacidades analíticas de los modelos actuales de melanoma de pez cebra más allá de la imagen morfológica convencional hacia la caracterización bioquímica directa de especies de melanina activas en redox. A diferencia de la imagen basada en fluorescencia, que proporciona principalmente información estructural y espacial, la espectroscopía de resonancia paramagnética electrónica detecta directamente los radicales paramagnéticos estables de semiquinona, proporcionando una visión funcional complementaria de la biología redox de la melanina.
El flujo de trabajo presentado tiene una amplia aplicabilidad en la investigación sobre pigmentación y melanoma. Las aplicaciones potenciales incluyen la evaluación de terapias antimelanomas, la investigación de cambios inducidos por fármacos en el equilibrio redox, la evaluación de compuestos moduladores de melanogénesis como agentes despigmentantes o de respuesta UV, y el análisis de interacciones tumor-huésped in vivo. Además, la integración con imágenes de fluorescencia y otros ensayos fenotípicos puede proporcionar una plataforma multimodal que combine información espacial, morfológica y bioquímica, mejorando así el valor predictivo de los modelos de pez cebra en la investigación preclínica y el desarrollo terapéutico.
Varios parámetros experimentales son críticos para obtener resultados fiables. En experimentos con xenoinjertos, la inyección en la circulación proporcionó mediciones de enjerto más consistentes y resonancia paramagnética electrónica reproducible que la inyección en saco vitelino, lo cual coincide con estudiosprevios 29,30. La elección de la temperatura de incubación juega un papel importante. Aunque los xenoinjertos de pez cebra suelen mantenerse a 32 °C para favorecer la cinética celularde mamíferos 31, las líneas de melanoma B16F10 murino empleadas en este estudio parecen lo suficientemente agresivas como para demostrar capacidades proliferativas y migratorias robustas a 28 °C. Dado que un entorno a 32 °C podría acelerar significativamente el desarrollo del pez cebra—potencialmente conduciendo a un comportamiento alimenticio independiente antes del quinto día tras la fertilización—mantener las larvas a 28 °C garantizaría que los organismos permanezcan dentro de las etapas de desarrollono protegidas 32. En consecuencia, esta elección de temperatura podría permitir la observación exitosa de la progresión y metástasis tumoral, manteniendo al mismo tiempo el cumplimiento de las normativas de bienestar animal que protegen a las larvas una vez que alcanzan la etapa de alimentación independiente. Otro punto crítico es que la normalización precisa del número de embriones y la constante etapa del desarrollo son esenciales para minimizar la variabilidad biológica. Las señales débiles o inconsistentes pueden deberse a una pigmentación insuficiente, baja carga tumoral, una colocación subóptima de la muestra dentro del resonador o un empaste capilar incompleto. En tales casos, aumentar el número de embriones por muestra, optimizar la eficiencia del trasplante y verificar la colocación de la muestra dentro del volumen activo del resonador puede mejorar la detección de señales. Se requieren mayores cantidades de embriones para mediciones in vivo en un capilar plano debido a las pérdidas dieléctricas y al factor de llenado reducido asociado a las mediciones de organismos completos en muestras biológicas acuosas. Aun así, este método podría usarse con capilares estándar ex vivo. Estos hallazgos demuestran que el protocolo es compatible con configuraciones de espectroscopía de resonancia paramagnética electrónica en banda X comúnmente disponibles y soporta análisis ex vivo retardados, aumentando la accesibilidad y la reproducibilidad entre laboratorios que utilizan diferentes instrumentos.
A pesar de sus ventajas, el método presenta varias limitaciones. Una consideración biológica importante es que la señal de resonancia paramagnética electrónica detectada refleja la fracción redox activa del polímero de melanina en lugar del contenido total de pigmentopor sí sola 15,21,33. Por tanto, los cambios en la intensidad de la señal de resonancia paramagnética electrónica deben interpretarse como cambios en el equilibrio redox asociado a melanina y no como un sustituto directo de la abundancia de melanina. Los experimentos con xenoinjertos albinos demostraron además que, bajo las condiciones experimentales actuales, el número de células de melanoma inyectadas permanecía por debajo del umbral de detección directa de la espectroscopía de resonancia paramagnética electrónica en banda X. Por lo tanto, la señal del organismo completo detectada en larvas portadoras de xenoinjertos refleja principalmente cambios globales en el estado redox asociado a la melanina del huésped inducidos por interacciones tumor-huésped, más que por la señal específica del melanoma originada exclusivamente en el xenoinjerto. Es importante destacar que el microambiente del pez cebra introduce gradientes dinámicos de oxígeno, interacciones metabólicas y condiciones de estrés oxidativo que pueden modular adicionalmente las poblaciones de radicales melaninas invivo. En aplicaciones de xenoinjertos, el método se limita actualmente a modelos de melanoma altamente pigmentados, ya que se requiere una concentración suficiente de melanina para una detección fiable de señales. Los tumores amelanóticos o de pigmentación débil pueden no producir señalesdetectables 27. Además, las líneas celulares de melanoma utilizadas en este estudio (B16F10) producen predominantemente eumelanina, resultando en una única línea de resonancia paramagnética electrónica. En modelos con contribución significativa de feomelanina, puede producirse solapamientoespectral 13. En tales casos, sería necesaria una simulación espectral avanzada y una deconvolución para distinguir entre señales de eumelanina y feomelanina.
No obstante, el flujo de trabajo presentado ofrece un amplio potencial para estudiar la biología del melanoma, la modulación inducida por fármacos de la melanogénesis, el estrés oxidativo y las interacciones tumor-huésped in vivo. La integración de la espectroscopía de resonancia paramagnética electrónica con imágenes de fluorescencia, reporteros genéticos y otros ensayos fenotípicos puede potenciar aún más el valor predictivo de los modelos de pez cebra en la investigación preclínica del melanoma y el desarrollo terapéutico.
Divulgaciones
El autor Mikołaj Baranowski trabaja para Novilet, que fabrica componentes del espectrómetro utilizado en este estudio (analizador multiarmónico). Los autores restantes no declaran intereses en competencia.
Agradecimientos
El proyecto "Un nuevo capilar y un método para determinar el radical melanina para su uso en estudios preclínicos de posibles fármacos para el melanoma en el modelo de embrión Danio rerio " FENG.02.07-IP.05-0059/23 se llevó a cabo dentro del programa FENG POC de la Fundación para la Ciencia Polaca, cofinanciado por la Unión Europea bajo los Fondos Europeos para la Economía Inteligente 2021–2027 (FENG). Esta investigación fue apoyada por la Unión Europea bajo el Programa de Operaciones de Crecimiento Inteligente (número de proyecto POIR.01.02.00-00-0077/18).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| 1.5 mL or 0.5 mL eppendorf tubes | Eppendorf | 0030120086, 0030121023 | Para transferir larvas de pez cebra a capilar |
| 3 mL disposable Pasteur pipettes | Medlab Products | 76-1303-2 | Para clasificar y transferir embriones y larvas |
| Benchtop X-band EPR spectrometer MiniScope MS200 | Magnettech | Bruker.com | Registro de espectros EPR |
| Calcium chloride, dihydrate | Chempur | 363-118748706 | Para preparar medio E3 |
| Cell counting slides (e.g., EVE or EVE PLUS) | Nanoentek Inc | NC2200445 | Para contador de células |
| CellTracker Green | Thermo Fisher | C2925 | Colorante fluorescente para rastreo celular, para el etiquetado de células |
| CM-DiI | Thermo Fisher | C7000 | Colorante fluorescente para rastreo celular, para el etiquetado de células |
| CO2 incubator ICO240med | Memmert | N/A | Para el mantenimiento de células, ajustado a 37°C, 5% CO2, ≥95% de humedad |
| Countess II Automated Cell Counter | Invitrogen | AMQAX1000 | Para contar células y densidad celular |
| Cryogenic storage boxes CryoKING | Biologix | BGX-ID81 | Para el almacenamiento de peces cebra con xenoinjertos |
| Cryopreservation medium CM-1 | Cytion | #800150 | Para congelar células cancerosas |
| Dulbecco's Modified Eagle Medium (DMEM), high glucose, glutamine, without sodium pyruvate | Gibco | #11965-092 | Para el mantenimiento de cultivo celular |
| E3 medium | In house | N/A | Para mantener embriones/larvas de pez cebra, preparado de acuerdo con Cold Spring Harb Protoc 2011, doi: 10.1101/pdb.rec066449 |
| Egg incubator | Incubato | 10130024 | Para la incubación de embriones/larvas de pez cebra, ajustado a 28–32°C |
| eSpect+ software | Novilet | https://novilet.eu/products/espect/ | Para el analizador multiarmónico |
| Fetal Bovine Serum (FBS) | Gibco | A5256701 | Suplemento para DMEM |
| Fine forceps, ceramic coated, Dumont #5, 11 cm | Dumont SA | 11252-50 | Para la decoriocinación de embriones de pez cebra |
| Flat glass capillaries designed for zebrafish (Application No.: 21 736) | N/A | N/A | Para mediciones EPR de embriones de pez cebra |
| Glass capillary needles | Harvard Apparatus | GB100-10 | Sin filamentos, para microinyecciones |
| Hematocrit capillaries (BRAND disposable BLAUBRAND micropipettes), volume 50 and 100 μL | BRAND | 41121500 | Para mediciones EPR o para transferir larvas de pez cebra a capilar plano |
| Magnesium chloride, hexahydrate | Chempur | 363-116120500 | Para preparar medio E3 |
| Microinjection system with micromanipulator FemtoJet | Eppendorf | EPE5252000021 | Para cargar células en microagujas |
| Microloader tips for needle loading | Eppendorf | #5242956003 | Para el sistema de microinyección |
| Mouse melanoma cell line B16-F1 | Cytion | CLS-400122 | Para xenoinjertos |
| Mouse melanoma cell line B16-F10 | Cytion | 305157 | Para xenoinjertos |
| Multiharmonic analyser eSpect+ | Novilet | https://novilet.eu/products/espect/ | Para el espectrómetro EPR, para aumentar la sensibilidad |
| Penicillin-Streptomycin solution | Sigma | P0781-50ml | Opcional, suplemento para DMEM para cultivo celular |
| Petri dish, 55 mm | Medlab Products | 51-0056-0A-NX | Para la incubación de huevos, embriones y larvas de pez cebra |
| Phosphate Buffered Saline (PBS), calcium and magnesium free | Sigma | D8537-500ml | Para enjuagar células |
| Potassium chloride | Chempur | 363-117397402 | Para preparar medio E3 |
| Sealing kit for hematocrit capillaries - Critoseal | Noxygen | NOX-A.3-VPC | Para mediciones EPR de embriones de pez cebra |
| Sodium chloride | Chempur | 363-117941206 | Para preparar medio E3 |
| Static Storage Liquid Nitrogen Container | Biobase | YDS-47-127-FS | Para el almacenamiento de cultivos celulares |
| Stereomicroscope | Optatech | SK Series | Para la evaluación del desarrollo de embriones de pez cebra |
| Sterile 15 mL Falcon tubes | SPL Life Sciences | S50015 | Para la recolección de células (centrifugación) |
| Sterile 90 nm Petri dishes | Googlab Scientific | GP508 | Para cultivos celulares |
| Sterile cryovials: CryoPure Tube 1.0 mL | Sarstedt | 72.377 | Para congelar células |
| Tissue culture sterile Pasteur pipettes (Corning Falcon Serological Pipettes), volume 5, 10, 25 mL | Corning | 357543, 356551, 356535 | Para cultivos celulares |
| Tricaine (MS-222) | Sigma | 886-86-2 | Solución fresca preparada de 4 g/L, para anestesia y eutanasia de peces cebra |
| TrypLE Express (1×) or Trypsin-EDTA (0.05%) | Gibco | #12605-010 | Para la separación de células durante el pasaje |
| Water bath Precision GP 05 | Thermo Scientific | N/A | Ajustado a 37 °C, para calentar el medio celular |
| Zebrafish embryos | ZIRC | https://zebrafish.org/documents/fees.php | 1 día después de la fertilización, preferiblemente cepas sin pigmento (por ejemplo, albino) |
Referencias
- Karkoszka, M., Rok, J., Wrześniok, D. Melanin biopolymers in pharmacology and medicine–skin pigmentation disorders, implications for drug action, adverse effects and therapy. Pharmaceuticals. 17 (4), 521(2024).
- Song, W., et al. Melanin: Insights into structure, analysis, and biological activities for future development. J Mater Chem B. 11 (32), 7528-7543 (2023).
- Terranova, M. L. Physiological roles of eumelanin- and melanogenesis-associated diseases: A look at the potentialities of engineered and microbial eumelanin in clinical practice. Bioengineering. 11 (8), 756(2024).
- Mostert, A. B. Melanin, the what, the why and the how: An introductory review for materials scientists interested in flexible and versatile polymers. Polymers. 13 (10), 1670(2021).
- Mostert, A. B. On the free radical redox chemistry of 5,6-dihydroxyindole. Chem Phys. 546, 111158(2021).
- Sealy, R. C. Radicals in melanin biochemistry. Methods Enzymol. 105, 479-483 (1984).
- Seagle, B. -L. L., et al. Time-Resolved Detection of Melanin Free Radicals Quenching Reactive Oxygen Species. J Am Chem Soc. 127 (32), 11220-11221 (2005).
- Qin, W., et al. Evidence for the generation of reactive oxygen species from hydroquinone and benzoquinone: Roles in arsenite oxidation. Chemosphere. 150, 71-78 (2016).
- Slominski, R. M., et al. Melanoma, melanin, and melanogenesis: The yin and yang relationship. Front Oncol. 12, 842496(2022).
- Becker, A. L., Indra, A. K. Oxidative stress in melanoma: Beneficial antioxidant and pro-oxidant therapeutic strategies. Cancers (Basel). 15 (11), 3038(2023).
- Cassar, S., et al. Use of zebrafish in drug discovery toxicology. Chem Res Toxicol. 33 (1), 95-118 (2020).
- Horzmann, K. A., Freeman, J. L. Making waves: New developments in toxicology with the zebrafish. Toxicol Sci. 163 (1), 5-12 (2018).
- Van Rooijen, E., Fazio, M., Zon, L. I. From fish bowl to bedside: The power of zebrafish to unravel melanoma pathogenesis and discover new therapeutics. Pigment Cell Melanoma Res. 30 (4), 402-412 (2017).
- Tao, J., et al. Apoptosis-sensing xenograft zebrafish tumor model for anticancer evaluation of redox-responsive cross-linked pluronic micelles. ACS Appl Mater Interfaces. 14 (35), 39775-39786 (2022).
- Hason, M., Bartůněk, P. Zebrafish models of cancer–new insights on modeling human cancer in a non-mammalian vertebrate. Genes (Basel). 10 (11), 935(2019).
- Hamre, K., et al. Systemic and strict regulation of the glutathione redox state in mitochondria and cytosol is needed for zebrafish ontogeny. Biochim Biophys Acta Gen Subj. 1868 (6), 130603(2024).
- Gauron, G., et al. Hydrogen peroxide (H2O2) controls axon pathfinding during zebrafish development. Dev Biol. 414 (2), 133-141 (2016).
- Cesareo, E., et al. An endogenous electron spin resonance (ESR) signal discriminates nevi from melanomas in human specimens: A step forward in its diagnostic application. PLoS One. 7 (11), e48849(2012).
- Nakagawa, K., Minakawa, S., Sawamura, D., Hara, H. Characterization of melanin radicals in paraffin-embedded malignant melanoma and nevus pigmentosus using X-band EPR and EPR imaging. Anal Sci. 33 (12), 1357-1361 (2017).
- Mignion, L., et al. Noninvasive detection of the endogenous free radical melanin in human skin melanomas using electron paramagnetic resonance (EPR). Free Radic Biol Med. 190, 226-233 (2022).
- Wehbi, M., Mignion, L., Joudiou, N., Harkemanne, E., Gallez, B. Highly sensitive detection of melanin in melanomas using multi-harmonic low frequency EPR. Mol Imaging Biol. 26 (3), 484-494 (2024).
- Chlewicki, W., Baranowski, M., Czechowski, T., Szczepanik, P. Performance of image reconstrucion algorithms in electron paramagnetic resonance tomography with multiharmonic analysis. 2017 IEEE 37th International Conference on Electronics and Nanotechnology (ELNANO), , 292-295 (2017).
- Beaumont, K. A., Mohana-Kumaran, N., Haass, N. K. Modeling melanoma in vitro and in vivo. Healthcare (Basel). 2 (1), 27-46 (2014).
- Marconi, A., Quadri, M., Saltari, A., Pincelli, C. Progress in melanoma modelling in vitro. Exp Dermatol. 27 (5), 578-586 (2018).
- Yin, J., et al. Zebrafish patient-derived xenograft model as a preclinical platform for uveal melanoma drug discovery. Pharmaceuticals. 16 (4), 598(2023).
- Fazio, M., Ablain, J., Chuan, Y., Langenau, D. M., Zon, L. I. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 20 (5), 263-273 (2020).
- The Zebrafish Information Network (ZFIN) Community. Tricaine. , ZFIN. Available from: https://zfin.atlassian.net/wiki/spaces/prot/pages/362220023/TRICAINE (2026).
- Martinez-Lopez, M., Póvoa, V., Fior, R. Generation of zebrafish larval xenografts and tumor behavior analysis. J Vis Exp. (172), e62373(2021).
- Vargas-Patron, L. A., et al. Xenotransplantation of human glioblastoma in zebrafish larvae: In vivo imaging and proliferation assessment. Biol Open. 8 (5), bio043257(2019).
- Schueler, J., et al. Impact of the injection site on growth characteristics, phenotype and sensitivity towards cytarabine of twenty acute leukaemia patient-derived xenograft models. Cancers (Basel). 12 (5), 1349(2020).
- Cabezas-Sáinz, P., Pensado-López, A., Sáinz, B. Jr, Sánchez, L. Modeling cancer using zebrafish xenografts: Drawbacks for mimicking the human microenvironment. Cells. 9 (9), 1978(2020).
- Miller, A., et al. Temperature-dependence of early development of zebrafish and the consequences for laboratory use and animal welfare. PLoS One. 20 (12), e0340193(2025).
- Godechal, Q., Ghanem, G. E., Cook, M. G., Gallez, B. Electron paramagnetic resonance spectrometry and imaging in melanomas: Comparison between pigmented and nonpigmented human malignant melanomas. Mol Imaging. 12 (4), 218-223 (2013).
Reimpresiones y permisos
Este artículo ha sido publicado
Video próximamente