La nefropatía diabética (ND) implica disfunción mitocondrial. Mediante el uso de transcriptómica, farmacología de redes y aprendizaje automático, identificamos CAT, FABP1, MAOA y MAOB como biomarcadores candidatos relacionados con las mitocondrias para Ligustri Lucidi Fructus. En ratones db/db, LLF reguló al alza CAT y MAOA, lo que respalda una mayor investigación mecanicista.
Artículo de investigación
Identificación de biomarcadores candidatos relacionados con las mitocondrias del Ligustri Lucidi Fructus en nefropatía diabética
En este artículo
Resumen
Resumen
La disfunción mitocondrial y el estrés oxidativo excesivo dentro de las mitocondrias son factores patológicos clave que impulsan la lesión tubular renal en la nefropatía diabética (DN). Aunque el Ligustri Lucidi Fructus (LLF) se utiliza tradicionalmente para tratar la DN, los mecanismos implicados, particularmente aquellos relacionados con genes y vías asociados a las mitocondrias, aún no se comprenden bien. En este estudio se utilizó el análisis de expresión diferencial del conjunto de datos GSE142025 para identificar genes con expresión diferencial (DEG) relacionados con la DN. Los genes característicos se seleccionaron mediante la comparación cruzada de los resultados de cuatro modelos de aprendizaje automático. Los genes que mostraron expresión diferencial significativa y patrones de expresión consistentes en ambos conjuntos de datos se evaluaron posteriormente mediante análisis de la curva ROC (característica de operación del receptor). Aquellos con un área bajo la curva (AUC) > 0,7 en ambos conjuntos de datos se definieron como biomarcadores candidatos. Se realizaron análisis de enriquecimiento funcional, infiltración inmune, construcción de redes y acoplamiento molecular. Se utilizó un modelo de ratón con DN para evaluar la glucosa en sangre, la microalbumina urinaria, la histopatología y la expresión mediante RT-qPCR de los biomarcadores candidatos. CAT y MAOA se reguló significativamente hacia arriba in vivo. Los biomarcadores candidatos se enriquecieron en vías relacionadas con la función del ribosoma, la degradación de valina, leucina e isoleucina, las interacciones entre citocinas y sus receptores, y los peroxisomas. Estos mostraron correlación negativa con células T CD8+ y células mastocíticas activadas, y correlación positiva con células NK activadas y células B naïve. La taxifolina, el beta-sitosterol y la eriodictiol mostraron energías de enlace inferiores a -5 kcal/mol con los biomarcadores candidatos. CAT y MAOA son candidatos prometedores que justifican una investigación mecanicista más profunda.
Introducción
La nefropatía diabética (ND), la causa principal de enfermedad renal en etapa terminal en todo el mundo, es una de las complicaciones más comunes de la diabetes mellitus. Desde el punto de vista patológico, se caracteriza por la acumulación excesiva de matriz extracelular en los compartimentos glomerular y tubular, junto con el engrosamiento y la esclerosis de los vasos sanguíneos intrarrenales2. La ND se asocia comúnmente con proteinuria e hipertensión3. Su desarrollo está estrechamente relacionado con el daño en las células endoteliales vasculares, una respuesta inflamatoria exacerbada y un estrés oxidativo aumentado como consecuencia de la hiperglucemia prolongada4. La incidencia de la ND está en aumento a nivel mundial, especialmente entre personas diabéticas de mediana edad y ancianos. A medida que la enfermedad progresa, puede conducir a insuficiencia renal en etapa terminal e incluso a complicaciones cardiovasculares, afectando significativamente la calidad de vida y el pronóstico de los pacientes5. A pesar de los avances en los enfoques diagnósticos y terapéuticos para la ND, aún no se han identificado biomarcadores candidatos precisos y tempranos para el diagnóstico, y faltan estrategias terapéuticas efectivas para revertir los procesos patológicos. Por lo tanto, existe una necesidad urgente de desarrollar fármacos anti-ND novedosos y dirigidos.
Las mitocondrias son fundamentales para la bioenergética celular, la síntesis de precursores metabólicos, la homeostasis del calcio, la producción de especies reactivas de oxígeno (ROS), la señalización inmunitaria y la apoptosis, todos los cuales son esenciales para mantener la estabilidad celular y del organismo6. Como centrales energéticas de la célula, las mitocondrias desempeñan un papel fundamental en procesos básicos como la glucólisis, el ciclo del ácido tricarboxílico y la fosforilación oxidativa7. La obesidad altera el ciclo de Krebs y la cadena respiratoria mitocondrial, lo que conduce a disfunción mitocondrial y un aumento en la producción de ROS. Los niveles elevados de ROS en la cadena respiratoria mitocondrial pueden inducir estrés oxidativo, el cual agrava la respuesta inflamatoria asociada con la obesidad y promueve la apoptosis8. Investigaciones recientes han destacado el papel significativo de la disfunción mitocondrial en la patogénesis y progresión de la nefropatía diabética (DN), incluyendo alteraciones en el metabolismo energético, generación excesiva de ROS y señalización apoptótica aumentada9. La disfunción mitocondrial crónica acelera la progresión de la enfermedad renal10. Por lo tanto, mejorar la función mitocondrial podría representar una estrategia protectora crucial contra la DN.
Ligustri Lucidi Fructus (LLF) es un fruto seco y maduro de la familia Luteaceae que es reconocido por sus propiedades nutritivas para el hígado y los riñones, así como por su capacidad para oscurecer el cabello y mejorar la visión. Se ha identificado un heteropolisacárido natural extraído de LLF, que revela su potencial para proteger los riñones contra la fibrosis11. En los últimos años, se ha prestado cada vez más atención al uso de LLF en el tratamiento de la nefropatía diabética (DN), con efectos renoprotectores notables demostrados11,12,13. Además, se ha investigado y validado ampliamente la relación compleja entre LLF y las mitocondrias. En particular, un estudio ha demostrado que LLF ejerce sus efectos beneficiosos mediante la modulación de la función mitocondrial a través de la activación de la vía de señalización AMPK14. Este mecanismo protege eficazmente a las mitocondrias contra el daño causado por el estrés oxidativo. Estos hallazgos subrayan aún más el papel esencial de LLF en el mantenimiento del metabolismo energético celular y en la mejora de la resistencia de las células al estrés oxidativo. Sin embargo, el mecanismo terapéutico exacto, particularmente en relación con la recuperación de la función mitocondrial, sigue siendo poco comprendido.
El objetivo de este estudio fue esclarecer los mecanismos biológicos subyacentes al efecto terapéutico de LLF sobre la función mitocondrial en la DN. Se realizaron búsquedas en bases de datos públicas mediante herramientas de bioinformática para identificar biomarcadores candidatos asociados con los efectos nefroprotectores de LLF, integrando datos transcriptómicos e información sobre ingredientes activos. Análisis adicionales, incluyendo infiltración inmunitaria, asociación con características clínicas, modificación de ARN por m6A, enriquecimiento funcional, construcción de redes reguladoras y acoplamiento molecular, sugirieron que estos biomarcadores candidatos desempeñan un papel fundamental en la regulación de la función mitocondrial durante el tratamiento de la DN. La validación in vivo confirmó además su importancia. Este análisis integral profundiza nuestra comprensión de los mecanismos mediante los cuales LLF trata la DN y proporciona una base sólida para el desarrollo de nuevos objetivos terapéuticos basados en la disfunción mitocondrial.
Protocolo
Recolección de datos
La matriz de expresión génica y los datos clínicos correspondientes de los conjuntos de datos GSE142025 y GSE96804, relacionados con la DN, se obtuvieron de la base de datos Gene Expression Omnibus (GEO) (https://www.ncbi.nlm.nih.gov/geo/)15. El conjunto de entrenamiento (GSE142025) incluyó muestras de tejido renal de 27 pacientes con DN y nueve controles, secuenciadas mediante la plataforma GPL20301. El conjunto de validación (GSE96804) comprendió datos de secuenciación de 41 pacientes con DN y 20 controles, procesados mediante la plataforma GPL17586. Ambos conjuntos de datos se centran en tejido renal; el conjunto de datos GSE96804 examina específicamente el glomérulo, la unidad principal de filtración del riñón (Figura 1). El conjunto de datos GSE142025 (conjunto de entrenamiento) comprende muestras de tejido renal completo y proporciona una visión amplia del paisaje transcriptómico de la DN. El conjunto de datos GSE96804 (conjunto de validación), por otro lado, se enfoca específicamente en el tejido glomerular, que es el sitio principal de la lesión por filtración glomerular. Dado que estos dos conjuntos de datos no se fusionaron directamente debido a diferencias en la plataforma y el tejido, no se aplicó corrección del efecto de lote. En su lugar, se realizó una validación cruzada entre conjuntos de datos de forma independiente. Se seleccionaron como candidatos robustos aquellos genes con cambios direccionales consistentes y un área bajo la curva (AUC) mayor de 0,7 en ambos conjuntos de datos, lo que respalda su generalización a través de los compartimentos renales.
Se extrajeron un total de 1.136 genes relacionados con las mitocondrias (MRGs) de la base de datos MitoCarta3.0 (https://www.broadinstitute.org/mitocarta). Los ingredientes activos de LLF se predijeron utilizando la base de datos de Farmacología Sistémica de la Medicina Tradicional China (TCMSP) (http://sm.nwsuaf.edu.cn/lsp/tcmsp.php), basándose en un umbral de biodisponibilidad oral (OB) ≥30 % y un umbral de similitud con fármacos (DL) ≥0,18. Posteriormente, se predijeron los genes diana potenciales para los constituyentes activos mediante la base de datos Swiss Target Prediction (http://www.swisstargetprediction.ch/).
Análisis de expresión diferencial
Se realizó el análisis de expresión diferencial de GSE142025 (DN frente a control) utilizando el paquete limma (v3.54.1), con criterios de significancia establecidos en P.adj < 0,05 y |log2FoldChange| > 0,516. Los gráficos de volcan y mapas de calor se visualizaron utilizando los paquetes ggplot2 (v 3.3.6) y ComplexHeatmap (v 2.14.0)17,18, respectivamente. Se intersectaron los genes con expresión diferencial (DEGs), los genes relacionados con la respuesta mitocondrial (MRGs) y los genes diana potenciales de los ingredientes activos, y los genes superpuestos se definieron como genes candidatos. La red que vincula los ingredientes activos con los genes candidatos se construyó utilizando el software Cytoscape (v 3.9.0)19.
Análisis de enriquecimiento funcional y construcción de la red de interacción proteína-proteína (PPI)
Se realizaron análisis de enriquecimiento de Ontología Genética (GO) y del Banco de Datos Kyoto de Genes y Genomas (KEGG) para los genes candidato utilizando el paquete clusterProfiler (v 4.6.2) con el fin de explorar sus funciones biológicas y las vías de señalización asociadas (P.adjust < 0.05). Posteriormente, los genes candidato se introdujeron en la base de datos STRING (https://cn.string-db.org/) para recuperar las relaciones de interacción proteína-proteína (nivel de confianza ≥ 0.4), seguido de la construcción de una red PPI mediante Cytoscape (v 3.9.0)20.
Aprendizaje automático
Se implementaron cuatro algoritmos de aprendizaje automático, incluyendo bosque aleatorio (RF), vecino más cercano k (KNN), mínimos cuadrados parciales (PLS) y máquina de vectores de soporte con un núcleo de base radial (SVM), utilizando el paquete caret (v6.0-93) basado en el conjunto de datos GSE142025. Los genes candidatos identificados en el análisis previo se utilizaron como variables predictoras, y el estado de la enfermedad (DN o control) se utilizó como resultado. Para el modelo KNN, se implementó una validación cruzada de 10 pliegues utilizando la función trainControl, con tuneLength = 10. El modelo RF se ajustó con 20 árboles (ntree = 20); los modelos PLS y SVM se ajustaron utilizando los parámetros establecidos en el flujo de trabajo original de caret.
Las distribuciones residuales del modelo se evaluaron utilizando el paquete DALEX (v2.4.3). Posteriormente, se realizó una evaluación de variables basada en permutación usando la función variable_importance de DALEX, especificando el error cuadrático medio (RMSE) como función de pérdida. El dropout_loss resultante representa el RMSE obtenido tras la permutación de la variable correspondiente21,22. En el flujo de trabajo analítico original, se conservaron las variables con una dropout loss < 0.281 en todos los modelos, y los genes comunes a los cuatro modelos se definieron como genes característicos de consenso para su validación posterior.
Los cuatro modelos de aprendizaje automático se utilizaron principalmente para la priorización de características en lugar de para la construcción de un clasificador clínico final. Por consiguiente, la discriminación diagnóstica se evaluó posteriormente a nivel de gen individual mediante análisis ROC en ambos conjuntos de datos, el de descubrimiento y el de validación.
Identificación de biomarcadores candidatos
En GSE142025 y GSE96804, se evaluaron las diferencias de expresión en genes característicos entre muestras DN y controles utilizando la prueba de Wilcoxon. Solo se seleccionaron los genes con expresión diferencial significativa (P < 0,05) y tendencias de expresión concordantes en ambos conjuntos de datos para el análisis de la curva característica de operación del receptor (ROC). Se utilizó el paquete pROC (v1.18.0) para generar las curvas ROC y calcular el área bajo la curva (AUC), clasificándose como biomarcadores candidatos aquellos genes que mostraron un AUC > 0,7 en ambos conjuntos de datos23.
Análisis de enriquecimiento de conjuntos de genes (GSEA)
Las funciones biológicas y las vías de señalización asociadas con los biomarcadores candidatos se exploraron adicionalmente mediante el análisis de enriquecimiento genético (GSEA) en el conjunto de datos GSE142025. Primero, se realizó un análisis de correlación de Spearman entre los biomarcadores candidatos y todos los demás genes utilizando el paquete psych (v2.2.9).24. Se calcularon y ordenaron los coeficientes de correlación (de mayor a menor). El conjunto de genes de referencia fue c2.cp.kegg.v2023.1.Hs.symbols.gmt de la Base de Datos de Firmas Moleculares (Molecular Signatures Database, MSigDB, https://www.gsea-msigdb.org/gsea/msigdb/). Luego, se realizó un análisis GSEA para evaluar el enriquecimiento de los genes ordenados en el conjunto de genes de referencia utilizando el paquete clusterProfiler (v4.6.2). Se aplicó corrección por múltiples pruebas. vía el método FDR y ajustado P-valores (denotados como P.ajuste) se consideraron significativos si < 0.05.
Análisis de la modificación m6A
Para investigar las modificaciones de metilación del ARN en biomarcadores candidatos, se utilizó la base de datos SRAMP (http://www.cuilab.cn/sramp/) para predecir m6Sitios de modificación en biomarcadores candidatos, centrándose en posiciones de alta confianza dentro de sus estructuras secundarias. Luego, se utilizó la base de datos ENCORI (https://starbase.sysu.edu.cn/) para identificar proteínas modificadas por m6A que interactúan con los biomarcadores candidatos, utilizando |HepG2 (shRNA)| > 1 parámetro para detectar las proteínas clave. Posteriormente, se utilizó la base de datos RPISeq (http://pridb.gdcb.iastate.edu/RPISeq/) para predecir la probabilidad de interacciones entre las proteínas clave y los biomarcadores candidatos. Las secuencias de ARN de ambos se cargaron en formato de texto plano para generar puntuaciones de predicción mediante los clasificadores RF y SVM. Se consideró significativa una interacción cuando la puntuación superaba 0,5.25Se realizó el análisis con SRAMP utilizando el umbral 'Alto' para la predicción de sitios m6A, en modo 'Transcripto' y con los parámetros predeterminados. El análisis con ENCORI utilizó la función de interacción 'miARN-ARNm' con el parámetro 'HepG2 (shARN)' > 1. El análisis RPISeq utilizó el clasificador RF con parámetros predeterminados; puntuaciones > 0,5 indicó una interacción positiva. Estas son predicciones computacionales, no evidencia experimental de modificación m6A ni de interacciones ARN-proteína en tejido renal. El criterio de shRNA en HepG2 se derivó de conjuntos de datos precalculados de ENCORI y puede no reflejar la regulación específica del riñón.
Análisis de infiltración inmunitaria
Se aplicó el algoritmo CIBERSORT para estimar las proporciones de 22 tipos de células inmunitarias en muestras de control y con DN del conjunto GSE142025, con visualización mediante un mapa de calor generado utilizando el paquete ggplot2 (v3.3.6)26. CIBERSORT se ejecutó utilizando la matriz de firmas LM22, con 1.000 permutaciones y sin normalización por cuantiles (según se recomienda para datos de microarrays). Se conservaron para análisis posteriores las muestras con p de CIBERSORT < 0,05. CIBERSORT estima las fracciones de células inmunitarias a partir de la expresión en tejido renal total, lo cual no permite distinguir la infiltración específica por compartimentos (por ejemplo, glomerular frente a túbulo-intersticial) ni diferenciar los leucocitos infiltrantes de las células inmunitarias residentes. Por lo tanto, las correlaciones informadas corresponden al nivel tisular y deben validarse mediante métodos espaciales. Se realizó un análisis de correlación de Spearman entre las células inmunitarias con abundancia diferencial y los biomarcadores candidatos utilizando el paquete psych.
Construcción de redes y acoplamiento molecular
Se predijeron las microARNs (miARNs) que interactúan con los biomarcadores candidatos utilizando la base de datos miRNet (https://www.mirnet.ca). Posteriormente, se predijeron las ARN largos no codificantes (lncARNs) que dirigen sus dianas a las miARNs identificadas mediante las bases de datos TarBase (http://www.diana.pcbi.upenn.edu/tarbase) y starbase (http://starbase.sysu.edu.cn/). Se seleccionaron los lncARNs comunes a ambas bases de datos para la construcción de la red. Luego, se construyó una red reguladora de lncARN-miARN-mARN utilizando el software Cytoscape. Se seleccionaron ingredientes activos potenciales que dirigen sus dianas a los biomarcadores candidatos para construir una red de ingrediente activo-biomarcador. Además, se incorporaron en Cytoscape los ingredientes activos, los biomarcadores candidatos y las vías identificadas en el análisis GSEA para crear una red de ingrediente activo-biomarcador-vía.
Se realizó un análisis de acoplamiento molecular para evaluar la afinidad de unión entre los ingredientes activos potenciales y los biomarcadores candidatos. Las estructuras tridimensionales de las proteínas biomarcadoras se obtuvieron desde la Base de Datos del Protein Data Bank del Research Collaboratory for Structural Bioinformatics (RCSB PDB, https://www.rscb.org/pdb) en formato de archivo PDB. Las estructuras bidimensionales de los ingredientes activos potenciales se recuperaron en formato SDF desde la base de datos PubChem (http://pubchem.ncbi.nlm.nih.gov). El acoplamiento molecular se llevó a cabo utilizando la plataforma CB-Dock (http://clab.labshare.cn/cb-dock/php/blinddock.php). Una energía de unión inferior a -5 kcal/mol indicó una afinidad de unión fuerte27.
Preparación y autenticación de Ligustri Lucidi Fructus
Aquí, Ligustri Lucidi Fructus (LLF) se refiere al fruto seco maduro de Ligustrum lucidum W. T. Aiton (Oleaceae). El material botánico fue autenticado de acuerdo con la Farmacopea de China, y un ejemplar depositado con el número 20240506,20240911,20241103 fue archivado en la Universidad de Medicina Tradicional China de Shanxi.
Para la preparación del decocción, 200 g de rodajas calificadas de LLF se remojaron en 1.000 mL de agua destilada durante 30 min a temperatura ambiente. La mezcla se hirvió vigorosamente y luego se cocinó a fuego lento durante 60 min. Se recogió el filtrado, y los materiales herbáceos residuales se sometieron nuevamente a decocción con otros 1.000 mL de agua destilada durante 60 min. Los dos filtrados se combinaron, filtraron, centrifugaron y concentraron bajo presión reducida para obtener una concentración final de 1 g de droga cruda/mL (volumen total de 100 mL). La decocción preparada se almacenó a 4 °C para uso a corto plazo o a −20 °C para conservación a largo plazo. La calidad del LLF y su decocción se identificó y verificó rigurosamente de acuerdo con las normas de la Farmacopea China para garantizar la confiabilidad y la reproducibilidad del experimento.
Para la identificación cualitativa, se realizó cromatografía en capa fina. Brevemente, un volumen adecuado de la decocción preparada se centrifugó y el sobrenadante se extrajo con metanol. Después de la filtración, la solución de la muestra y la solución estándar de referencia de specnuezhenida se aplicaron en la misma placa de gel de sílice G. Tras el desarrollo, secado e inspección bajo luz ultravioleta, la mancha de la solución de la muestra mostró color y posición coincidentes con el compuesto de referencia, confirmando la presencia del componente bioactivo característico del LLF.
Para el control de calidad cuantitativo, se realizó la detección mediante cromatografía líquida de alta eficacia. El análisis se llevó a cabo utilizando una columna C18 con metanol–agua como fase móvil. La longitud de onda de detección se estableció a 224 nm. El contenido de especnuezhenida en la decocción se determinó en función de la curva patrón. Los resultados demostraron una composición química estable y uniforme de la decocción preparada, asegurando una calidad constante del fármaco durante todo el experimento de intervención en animales.
Experimentos con animales
Doce ratones machos de grado SPF db/db (8–9 semanas de edad) y seis ratones db/m de edad comparable se mantuvieron en las instalaciones para animales SPF de la Universidad de Medicina Tradicional China de Shanxi. Antes de los experimentos, los animales se aclimataron durante 7 días bajo un ciclo de 12 h de luz/12 h de oscuridad con acceso ad libitum a alimento y agua. El estudio fue aprobado por el Comité de Ética de la Universidad de Medicina Tradicional China de Shanxi (Número de aprobación: 2022DW167). Los animales que presentaron una pérdida de peso corporal >20%, un estado moribundo o una incapacidad para acceder al alimento o al agua fueron sacrificados humanamente antes del final previsto del estudio. Al finalizar el estudio, todos los ratones restantes fueron sacrificados mediante inyección intraperitoneal de pentobarbital sódico seguida de dislocación cervical, de acuerdo con los protocolos institucionales.
Tras el período de aclimatación, se confirmó el establecimiento de un modelo de DN en ratones db/db mediante un nivel de glucosa en sangre de la vena de la cola ≥ 16 mmol/L y microalbuminuria, indicada por una prueba positiva con tira reactiva para microalbumina urinaria. Tras el establecimiento exitoso del modelo de DN, los ratones db/db se dividieron aleatoriamente en dos grupos (n = 6 por grupo): el grupo modelo de DN (DN) y el grupo tratado con LLF (Tratamiento). Además, se utilizaron ratones db/m (n = 6) como grupo control (Control). La dosis se seleccionó con base en estudios farmacodinámicos previos de LLF en ratas diabéticas y se convirtió a la dosis equivalente humana utilizando la normalización por área de superficie corporal28. A los grupos Control y DN se les administró agua destilada, mientras que al grupo de tratamiento se le administró 3,5 g/kg de LLF durante 8 semanas. Tras 8 semanas de administración, todos los ratones fueron sacrificados para recolectar suero, orina y tejido renal para pruebas posteriores.
Indicadores sanguíneos y urinarios
Los niveles séricos de glucosa se analizaron utilizando un analizador automático completo de bioquímica sanguínea. La concentración de microalbúmina urinaria se midió según las instrucciones del kit (Archivo complementario 1).
Observación patológica de tejidos renales de ratón
Los tejidos renales se procesaron para examen histopatológico. Después de la fijación en paraformaldehído al 4%, los tejidos se lavaron, deshidrataron, embebieron en parafina y seccionaron. Luego se realizó la tinción con hematoxilina y eosina (HE), y las secciones teñidas se examinaron al microscopio óptico para evaluar los cambios patológicos.
Reacción en cadena de la polimerasa cuantitativa con transcripción inversa (RT-qPCR)
Se utilizó RT-qPCR para determinar la expresión de los biomarcadores candidatos en tejido renal de ratón. El ARN total se extrajo según las instrucciones del fabricante, tras lo cual se evaluó la concentración y calidad del ARN (Tabla 1). Se sintetizó ADN complementario (cDNA) a partir del ARN extraído utilizando el Kit de Síntesis de cDNA. La amplificación se realizó con los pares de cebadores listados en la Tabla 1, utilizando GAPDH como gen de referencia. Los niveles de expresión relativos se calcularon mediante el método 2−ΔΔCt13,26.
Análisis estadístico
Todos los análisis estadísticos se realizaron utilizando el software R (versión 4.2.2) junto con el software necesario para los procedimientos experimentales correspondientes. A menos que se indique lo contrario, todas las pruebas estadísticas fueron bilaterales, y las diferencias se consideraron estadísticamente significativas con un valor de P < 0,05. El análisis de expresión diferencial transcriptómica se realizó utilizando el paquete limma. Se definieron como genes diferencialmente expresados aquellos con un valor de P ajustado < 0,05 y un cambio absoluto en el log2 de la razón mayor a 0,5.
Para las comparaciones de la expresión de genes candidatos entre muestras independientes de DN y controles, se utilizaron pruebas no paramétricas de suma de rangos de Wilcoxon cuando se indicó en el flujo de trabajo analítico original. Las correlaciones entre biomarcadores candidatos y fracciones de células inmunitarias se evaluaron mediante la correlación de rangos de Spearman.
Los datos experimentales se presentan como media ± DE. Las comparaciones entre los tres grupos independientes de animales se realizaron mediante análisis de varianza de un factor cuando se cumplieron los supuestos del análisis paramétrico. Para las comparaciones post hoc, se utilizó la prueba de diferencia mínima significativa cuando las varianzas eran homogéneas, mientras que se empleó la prueba de Dunnett T3 cuando las varianzas eran desiguales. Las mediciones farmacodinámicas de la línea base y de la semana 8 se analizaron y presentaron por separado; no se realizó ninguna inferencia respecto a una interacción grupo por tiempo. Los scripts de R y los datos originales utilizados para los análisis de bioinformática y de aprendizaje automático se proporcionan en Archivo Suplementario 1.
Resultados
Para investigar sistemáticamente posibles biomarcadores candidatos relacionados con las mitocondrias para LLF en el tratamiento de la DN, diseñamos un flujo de trabajo analítico de cuatro fases (Figura 1). En la Fase I, integramos datos transcriptómicos del conjunto de datos GSE142025 (conjunto de entrenamiento, riñón completo, n=36) y GSE96804 (conjunto de validación, glomérulo, n = 61) con 1.136 genes relacionados con mitocondrias de la base de datos MitoCarta 3.0 y 517 dianas predichas de 9 ingredientes activos de la base de datos TCMSP. La superposición de estos tres conjuntos de genes produjo 9 genes candidatos. En la Fase II, se aplicaron cuatro modelos de aprendizaje automático (RF, KNN, PLS y SVM) para priorizar los genes características utilizando RMSE < 0,281 como umbral. La validación entre conjuntos de datos mediante análisis ROC (AUC > 0,7 en ambos conjuntos de datos) identificó cuatro biomarcadores candidatos: CAT, FABP1, MAOB y MAOA. En la Fase III, realizamos análisis de enriquecimiento de vías KEGG mediante GSEA, análisis de infiltración inmunitaria utilizando CIBERSORT, predicción de modificaciones m6A y construimos redes lncRNA-miRNA-mRNA, redes ingrediente activo–biomarcador y redes ingrediente activo–biomarcador–vía, seguidos de acoplamiento molecular. En la Fase IV, se evaluaron los efectos farmacodinámicos de LLF y los cambios en la expresión de ARNm de los cuatro biomarcadores candidatos en un modelo de ratón db/db de DN.
Selección de genes candidatos para el tratamiento de la DN con LLF
En el conjunto de datos GSE142025, se identificaron 3.810 genes diferencialmente expresados (DEG) entre los grupos con DN y control, incluyendo 1.904 DEG regulados hacia arriba y 1.906 regulados hacia abajo (Figura 2A,B). Se predijeron 13 ingredientes activos de LLF mediante la base de datos TCMSP, a saber, beta-sitosterol, kaempferol, taxifolina, Lucidumoside D, Lucidumoside D_qt, (20S)-24-ene-3,20-diol-3-acetate, eriodictyol, siringaresinol diglucósido_qt, Lucidusculine, Olitoriside, Olitoriside_qt, luteolina y quercetina (Tabla 2). Cuatro ingredientes activos —Lucidumoside D_qt, (20S)-24-ene-3,20-diol-3-acetate, siringaresinol diglucósido_qt y Olitoriside_qt— no predijeron ningún gen diana potencial, mientras que los nueve ingredientes restantes predijeron 517 genes diana potenciales. Al superponer los 3.810 DEG, 1.136 MRG y 517 genes diana potenciales, se identificaron nueve genes candidatos: GPX1, BAX, CASP8, MAOA, MAOB, CAT, AKR1B10, ALDH2 y FABP1 (Figura 2C). Posteriormente, se construyó una red de ingredientes activos-genes candidatos (Figura 2D). Estos nueve genes candidatos se enriquecieron en 341 términos GO, incluyendo respuesta a sustancias tóxicas, proceso catabólico de compuestos hidroxílicos orgánicos y detoxificación celular (Figura 2E). Además, se asociaron con 52 vías KEGG, tales como metabolismo del triptófano, vías neurodegenerativas y metabolismo de la histidina (Figura 2F).
Selección de biomarcadores candidatos para el tratamiento de DN en LLF
La red de interacción de proteínas (PPI) reveló siete nodos y ocho enlaces, con interacciones entre MAOA, ALDH2, MAOB y AKR1B10 (Figura 3A). Los genes con valores de RMSE menores a 0,281 en cuatro modelos de aprendizaje automático se identificaron como genes característicos: CAT, MAOB, MAOA, BAX y FABP1 (Figura 3B-E). El análisis de expresión mostró que CAT, FABP1, MAOB y MAOA presentaban diferencias significativas entre los grupos con DN y el grupo control, y fueron consistentes en ambos conjuntos de datos GSE142025 y GSE96804 (Figura 3F,G). Además, sus valores de AUC en el análisis de la curva ROC superaron 0,7 en ambos conjuntos de datos, lo que indica que estos genes podrían diferenciar eficazmente las muestras de DN de las muestras control y servir como biomarcadores candidatos para el tratamiento de DN en LLF (Figura 4A-H).
Enriquecimiento significativo de biomarcadores candidatos en vías inflamatorias y relacionadas con el sistema inmune
El análisis GSEA identificó cuatro biomarcadores candidatos prominentemente enriquecidos en la vía de señalización de quimioquinas y en las interacciones citocina-receptor de citocina (Figura 5A-D). Entre estos, la vía de señalización de peroxidasa mostró una asociación significativa con CAT, MAOA y MAOB.
Correlación de los biomarcadores candidatos con células inmunitarias
Se observaron diferencias notables en la expresión de nueve tipos de células inmunitarias —células B naïve, macrófago M0, macrófago M1, macrófago M2, célula mastocítica activada, célula NK activada, célula T CD4+ de memoria en reposo, célula T CD4+ naïve y célula T CD8+— entre las muestras con DN y las muestras de control (P < 0,05) (Figura 6A,B). Se encontró una correlación positiva significativa (cor = 0,6) entre las células B naïve y las células NK activadas, mientras que se detectó una correlación negativa significativa (cor = -0,69) entre las células B naïve y las células mastocíticas activadas (Figura 6C). Todos los biomarcadores candidatos mostraron fuertes correlaciones negativas con las células T CD8+ y las células mastocíticas activadas, y correlaciones positivas con las células NK activadas y las células B naïve (Figura 6D).
Interacción de proteínas clave modificadas por m6A con biomarcadores candidatos
La modificación de metilación del ARN por m6A afecta profundamente la síntesis y el metabolismo del ARN y está implicada en la patogénesis de diversas enfermedades29. Las ubicaciones de los sitios de modificación por m6A en los biomarcadores candidatos y sus posiciones de alta confianza en las estructuras secundarias se ilustran en la Figura 7A-H. Un análisis adicional reveló que las proteínas clave modificadas por m6A que interactúan con CAT incluían AQR y RBM22, mientras que FABP1 interactuaba tanto con SF3A3 como con AQR. Se encontró que MAOA interactúa con IGF2BP3 e IGF2BP2, y MAOB con TIA1 (Tabla 3).
Predicciones de unión in silico favorables para taxifolina, beta-sitosterol y eriodictiol en el tratamiento con LLF de la DN
En miRNet, se predijo que CAT interactuaba con 24 miARNs, mientras que FABP1 se asoció con cinco miARNs. Además, MAOB y MAOA se vincularon con 29 y 26 miARNs, respectivamente. Entre estos, se identificaron 23 ARNlnc en ambas bases de datos, TarBase y Starbase. Luego se construyó una red reguladora ARNlnc-miARN-mARN, que incluyó cuatro biomarcadores candidatos, 74 miARNs y 23 ARNlnc (Figura 8A). Los ingredientes activos potenciales que actuaban sobre los biomarcadores candidatos incluyeron luteolina, beta-sitosterol, eriodictiol, kaempferol, quercetina y taxifolina (Figura 8B). Asimismo, se estableció una red ingrediente activo-biomarcador-vía metabólica basada en los ingredientes activos, los biomarcadores candidatos y las cinco vías principales identificadas en el análisis GSEA (Figura 8C). Por ejemplo, la taxifolina actuó sobre CAT en la vía del peroxisoma. Las energías de unión entre CAT y taxifolina (-8,8 kcal/mol), FABP1 y beta-sitosterol (-8,1 kcal/mol), y MAOB y eriodictiol (-9,8 kcal/mol) fueron todas inferiores a -5 kcal/mol, lo que sugiere fuertes afinidades entre estos biomarcadores candidatos y sus respectivos ingredientes activos27. Se identificó a la taxifolina, el beta-sitosterol y el eriodictiol como ingredientes activos potenciales con predicciones de unión in silico favorables en el tratamiento con LLF de la DN (Figura 8D-F). Sin embargo, se presentan como constituyentes predichos por bases de datos, no como intermediarios bioactivos confirmados de los efectos observados in vivo.
Validar biomarcadores candidatos en el modelo murino de DN
Evaluación farmacodinámica de LLF en el tratamiento de ratones con DN
Durante el período de administración, se monitorearon los niveles de glucosa en sangre y de microalbumina urinaria en los ratones (Figura 9A-D). En comparación con el grupo control, la glucosa en sangre y la microalbumina urinaria en el grupo modelo de DN aumentaron significativamente (P < 0,01); en comparación con el grupo modelo de DN, la glucosa en sangre de los ratones en el grupo de tratamiento disminuyó significativamente después de 4 semanas de administración (P < 0,01) y la microalbumina urinaria de los ratones en el grupo de tratamiento disminuyó significativamente después de 8 semanas de administración (P < 0,05). Los resultados sugieren que LLF podría ser beneficioso en el tratamiento de la DN.
Evaluación patológica del LLF en el tratamiento de ratones con DN
Tras la tinción con HE, el grupo control mostró estructuras glomerulares claras en el tejido renal. En contraste, el grupo modelo de DN presentó pirocariósis e hipercromasia nuclear glomerular, junto con infiltración de células inflamatorias alrededor de los glomérulos, en comparación con el grupo normal. El tratamiento con LLF mejoró el daño patológico en los riñones de ratones db/db (Figura 9E).
Análisis por RT-PCR de la expresión de biomarcadores candidatos en ratones con DN
Tras el establecimiento exitoso de un modelo de ratón con DN y la observación de una mejora significativa de los síntomas con el tratamiento con LLF, se utilizó además RT-qPCR para analizar los cambios en los biomarcadores candidatos. En comparación con el grupo control, el grupo con DN mostró una expresión significativamente reducida de CAT y MAOA (P < 0.05 o P < 0.001). Por el contrario, el grupo de tratamiento mostró una expresión de CAT y MAOA significativamente mayor que el grupo con DN (P < 0.05). Sin embargo, no se observaron diferencias estadísticamente significativas en la expresión de MAOB y FABP1 entre los grupos (Figura 9F-I).
Disponibilidad de los datos
Los conjuntos de datos de expresión génica analizados en este estudio están disponibles públicamente en el Gene Expression Omnibus (GEO) bajo los números de acceso GSE142025 y GSE96804. Los scripts en R utilizados para los análisis bioinformáticos, junto con los datos experimentales originales (glucosa en sangre, microalbumina urinaria y datos de RT-qPCR), se proporcionan en el Archivo Suplementario 1. Todas las demás bases de datos, software y recursos web utilizados en este estudio se enumeran en la Tabla de Materiales.
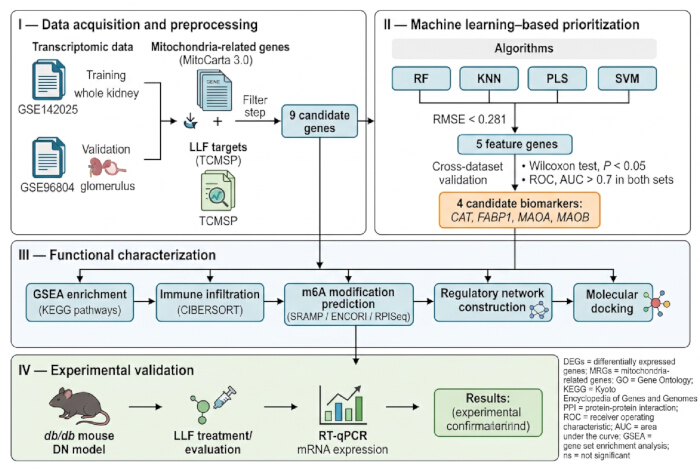
Figura 1: Flujo de trabajo del estudio. Se integraron conjuntos de datos transcriptómicos, genes relacionados con las mitocondrias y objetivos predichos de Ligustri Lucidi Fructus para identificar genes candidatos. Luego, se utilizaron cuatro algoritmos de aprendizaje automático para priorizar los genes característicos, seguidos de validación cruzada entre conjuntos de datos, caracterización funcional y validación experimental en ratones db/db. Abreviaturas: DN = nefropatía diabética; DEGs = genes diferencialmente expresados; MRGs = genes relacionados con las mitocondrias; LLF = Ligustri Lucidi Fructus; RF = bosque aleatorio; KNN = vecino más cercano k; PLS = mínimos cuadrados parciales; SVM = máquina de vectores de soporte; RMSE = error cuadrático medio; GSEA = análisis de enriquecimiento de conjuntos de genes; RT-qPCR = reacción en cadena de polimerasa cuantitativa por transcripción inversa. Haga clic aquí para ver una versión más grande de esta figura.
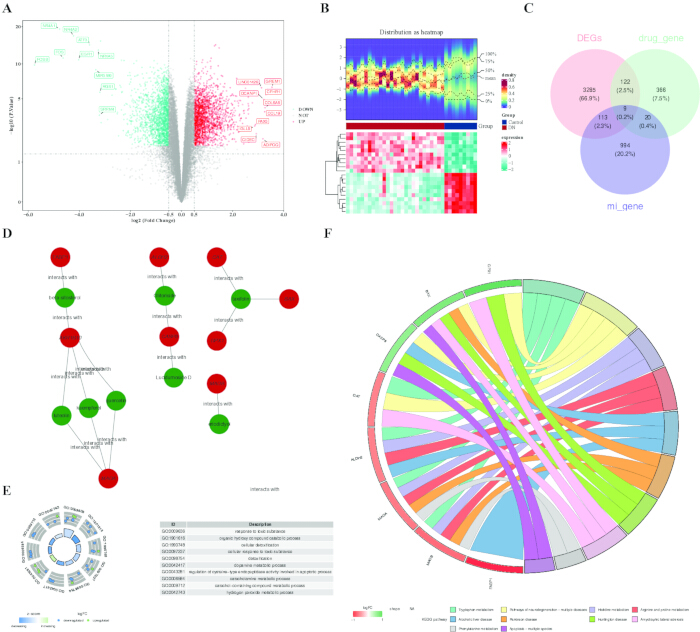
Figura 2: Selección y caracterización funcional de genes candidatos para el tratamiento de la DN con LLF. (A) Gráfico de volcan mostrando los genes diferencialmente expresados entre muestras de DN y controles en GSE142025. (B) Mapa térmico de los 10 principales genes regulados hacia arriba y los 10 principales genes regulados hacia abajo, ordenados por |log2FC|. (C) Diagrama de Venn que muestra la intersección entre DEG, MRG y genes objetivo de LLF predichos. (D) Red de ingredientes activos–genes candidatos. (E) Análisis de enriquecimiento de Ontología Genética de los genes candidatos. La altura de las barras representa la significancia del enriquecimiento, y el valor z indica la dirección predicha de la regulación funcional. (F) Análisis de enriquecimiento de vías de la Enciclopedia de Kyoto de Genes y Genomas (KEGG) de los genes candidatos. Abreviaturas: DN = nefropatía diabética; LLF = Ligustri Lucidi Fructus; DEG = genes diferencialmente expresados; MRG = genes relacionados con mitocondrias; GO = Ontología Genética; KEGG = Enciclopedia de Kyoto de Genes y Genomas. Haga clic aquí para ver una versión más grande de esta figura.
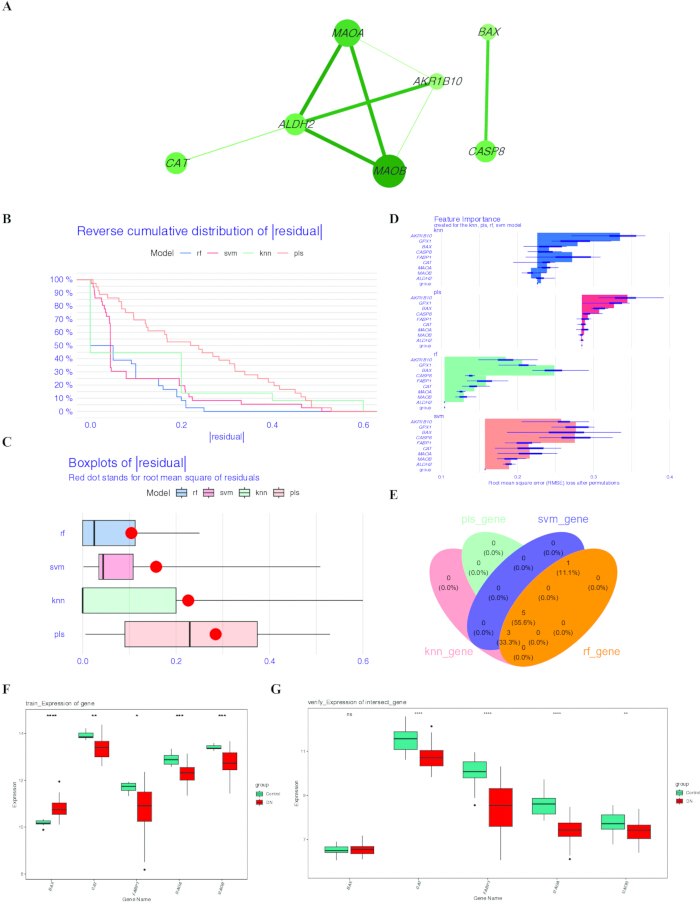
Figura 3: Identificación basada en aprendizaje automático de biomarcadores candidatos. (A) Red de interacción proteína-proteína de las proteínas codificadas por los genes candidatos. (B) Distribución acumulativa inversa de los residuos para los modelos RF, KNN, PLS y SVM. (C) Diagramas de caja que muestran las distribuciones de residuos de los cuatro modelos; el punto rojo indica el error cuadrático medio. (D) Importancia basada en el RMSE de los genes candidatos en los cuatro modelos de aprendizaje automático. (E) Intersección de los genes característicos que cumplen el criterio de RMSE < 0,281 en los cuatro modelos. (F,G) Expresión de los genes característicos seleccionados en GSE142025 y GSE96804, respectivamente. Abreviaturas: RF = bosque aleatorio; KNN = vecino más cercano k; PLS = mínimos cuadrados parciales; SVM = máquina de vectores de soporte; RMSE = error cuadrático medio. Haga clic aquí para ver una versión más grande de esta figura.
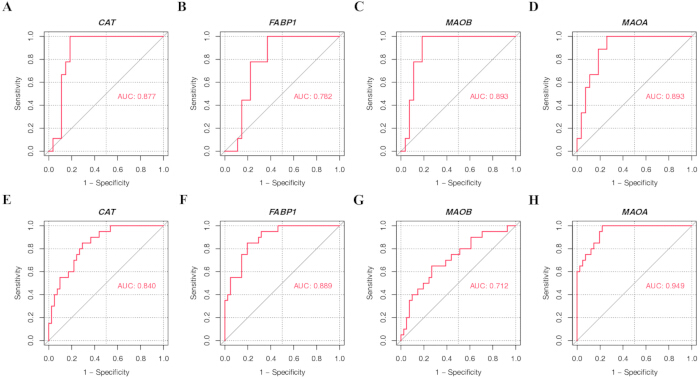
Figura 4: Curvas de característica de operación del receptor de los cuatro biomarcadores candidatos. Curvas ROC para CAT, FABP1, MAOB y MAOA en el conjunto de datos de entrenamiento (A-D) GSE142025 y el conjunto de datos de validación (E-H) GSE96804. El AUC representa el área bajo la curva de característica de operación del receptor. Abreviaturas: ROC = curva de característica de operación del receptor; AUC = área bajo la curva. Haga clic aquí para ver una versión más grande de esta figura.
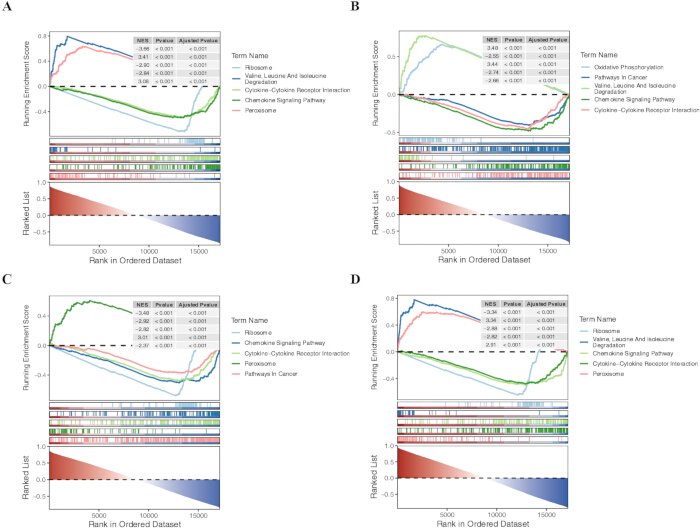
Figura 5: Análisis de enriquecimiento de conjuntos de genes de biomarcadores candidatos. AEG mostrando vías KEGG significativamente enriquecidas asociadas con (A) CAT, (B) FABP1, (C) MAOA y (D) MAOB en el conjunto de datos GSE142025. Abreviaturas: AEG = análisis de enriquecimiento de conjuntos de genes; KEGG = Enciclopedia de Kyoto de Genes y Genomas. Haga clic aquí para ver una versión más grande de esta figura.
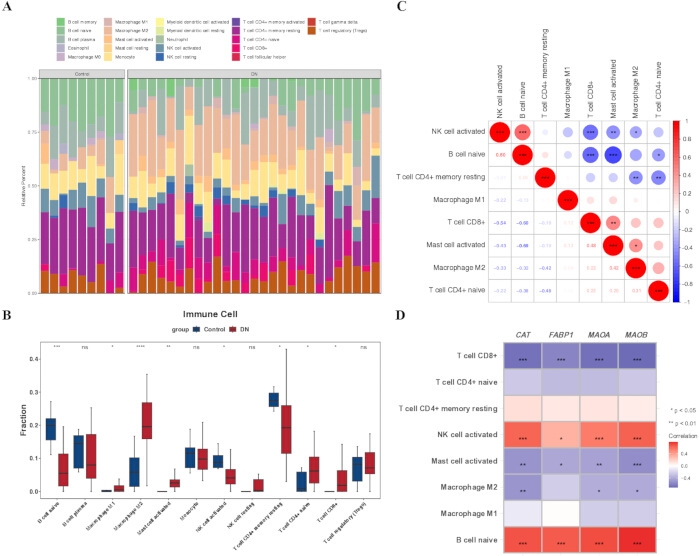
Figura 6: Infiltración de células inmunitarias y su asociación con biomarcadores candidatos en la DN. (A) Proporciones relativas de 22 tipos de células inmunitarias estimadas mediante CIBERSORT en muestras de DN y controles. (B) Comparación de fracciones de células inmunitarias significativamente diferentes entre los grupos de DN y control. (C) Matriz de correlación entre los tipos de células inmunitarias con abundancia diferencial. (D) Correlaciones de Spearman entre la expresión de CAT, FABP1, MAOA y MAOB y los tipos de células inmunitarias con abundancia diferencial. Abreviaturas: DN = nefropatía diabética. Haga clic aquí para ver una versión más grande de esta figura.
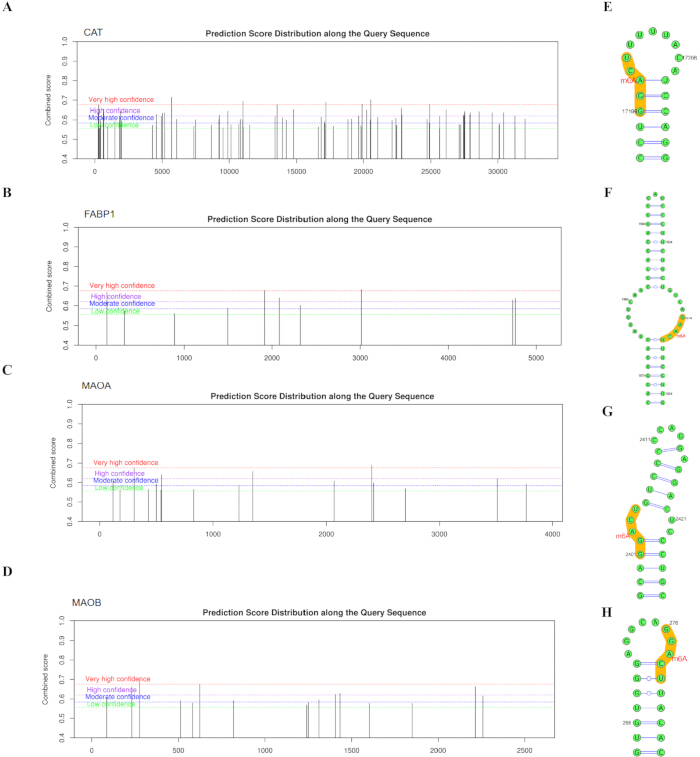
Figura 7: Sitios predichos de modificación m6A y estructuras secundarias del ARN de los transcritos de biomarcadores candidatos. Sitios predichos de modificación m6A en (A) CAT, (B) FABP1, (C) MAOA y (D) MAOB. Estructuras secundarias predichas del ARN que muestran regiones asociadas a m6A con alta confianza para (E) CAT, (F) FABP1, (G) MAOA y (H) MAOB. Las regiones resaltadas en amarillo indican las regiones de secuencia predichas que contienen sitios de modificación m6A. Abreviatura: m6A = N6-metiladenosina. Haga clic aquí para ver una versión más grande de esta figura.
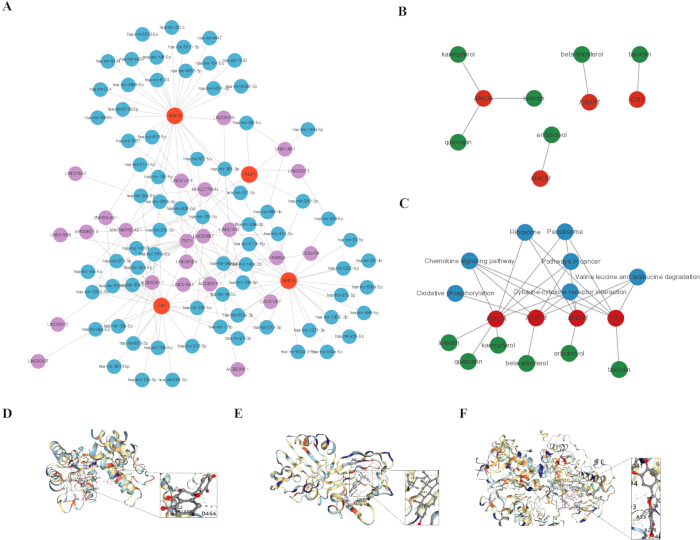
Figura 8: Redes reguladoras y acoplamiento molecular de los ingredientes activos potenciales de LLF. (A) Red reguladora predicha lncRNA–miRNA–mRNA que incluye los biomarcadores candidatos. (B) Red de ingredientes activos potenciales de LLF y biomarcadores candidatos. (C) Red de ingrediente activo–biomarcador–vía basada en los resultados del análisis de enriquecimiento de conjuntos de genes (GSEA). (D-F) Conformaciones predichas de acoplamiento molecular de (D) CAT con taxifolina, (E) FABP1 con beta-sitosterol, y (F) MAOB con eriodictyol. Abreviaturas: LLF = Ligustri Lucidi Fructus; lncRNA = ARN largo no codificante; miRNA = microARN; GSEA = análisis de enriquecimiento de conjuntos de genes. Haga clic aquí para ver una versión más grande de esta figura.
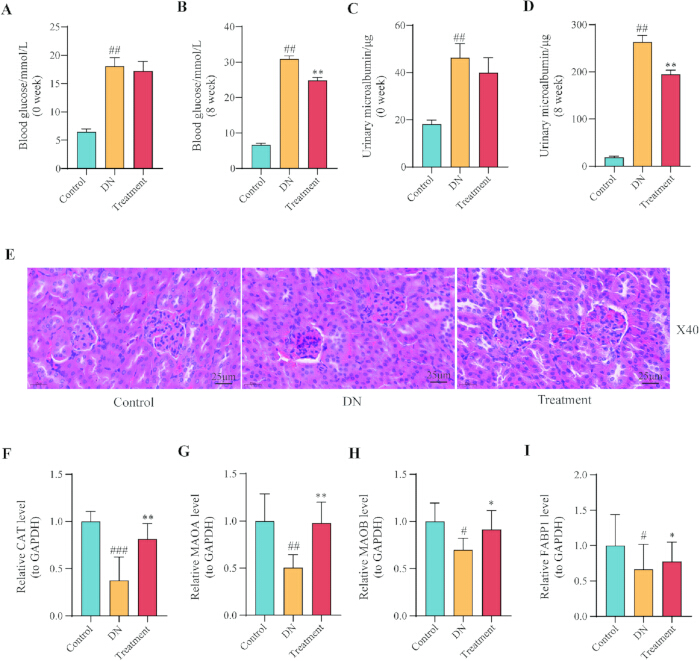
Figura 9: Efectos del tratamiento con LLF sobre los indicadores bioquímicos, la histopatología renal y la expresión de biomarcadores candidatos en ratones db/db. (A,B) Niveles de glucosa en sangre en el momento basal y en la semana 8, respectivamente. (C,D) Niveles de microalbumina urinaria en el momento basal y en la semana 8, respectivamente. (E) Secciones representativas de riñón teñidas con hematoxilina y eosina de los grupos Control, DN y Tratamiento (aumento, ×40; barra de escala = 25 µm). (F-I) Niveles relativos de expresión de ARNm renal de Cat, Maoa, Maob y Fabp1, respectivamente, medidos mediante RT-qPCR. #P < 0,05, ##P < 0,01 y ###P < 0,001 frente al grupo Control; *P < 0,05, **P < 0,01 y ***P < 0,001 frente al grupo DN. Abreviaturas: LLF = Ligustri Lucidi Fructus; DN = nefropatía diabética; RT-qPCR = reacción en cadena de la polimerasa cuantitativa por transcripción inversa. Haga clic aquí para ver una versión más grande de esta figura.
| cebo | secuencias |
| CAT F | TCACTGACGAGATGGCACAC |
| CAT R | ATCGAACGGCAATAGGGGTC |
| FABP1 F | CAATAGGTCTGCCCGAGGAC |
| FABP1 R | GTCATGGTCTCCAGTTCGCA |
| MAOB F | GCACTGAAACAGCCTCACAC |
| MAOB R | TCGTGCAGGGACATCCAAAG |
| MAOA F | ACTTACCCATTCCGTGGTGC |
| MAOA R | ACCACAGGGCAGATACCTCA |
| M-GAPDH F | CCTTCCGTGTTCCTACCCC |
| M-GAPDH R | GCCCAAGATGCCCTTCAGT |
Tabla 1: Secuencias de cebadores utilizadas para el análisis de transcripción reversa cuantitativa por reacción en cadena de la polimerasa (RT-qPCR) en tejidos renales de ratón. Abreviaturas: F = cebador directo; R = cebador inverso; RT-qPCR = reacción en cadena de la polimerasa cuantitativa por transcripción reversa.
| ID de la molécula | Nombre de la molécula | OB (%) | DL | Número de dianas |
| MOL000358 | beta-sitosterol | 36.91 | 0.75 | 100 |
| MOL000422 | kaempferol | 41.88 | 0.24 | 103 |
| MOL004576 | taxifolin | 57.84 | 0.27 | 92 |
| MOL005146 | Lucidumoside D | 48.87 | 0.71 | 104 |
| MOL005147 | Lucidumoside D_qt | 54.41 | 0.47 | 0 |
| MOL005169 | (20S)-24-ene-3,20-diol-3-acetate | 40.23 | 0.82 | 0 |
| MOL005190 | eriodictyol | 71.79 | 0.24 | 101 |
| MOL005195 | syringaresinol diglucoside_qt | 83.12 | 0.8 | 0 |
| MOL005209 | Lucidusculine | 30.11 | 0.75 | 105 |
| MOL005211 | Olitoriside | 65.45 | 0.23 | 100 |
| MOL005212 | Olitoriside_qt | 103.23 | 0.78 | 0 |
| MOL000006 | luteolin | 36.16 | 0.25 | 102 |
| MOL000098 | quercetin | 46.43 | 0.28 | 103 |
Tabla 2: Trece ingredientes activos de Ligustri Lucidi Fructus identificados utilizando la base de datos TCMSP. Abreviaturas: OB = biodisponibilidad oral; DL = similitud con fármaco.
| ARNm | Proteína | RF | SVM |
| CAT | AQR | 0.7 | 0.98 |
| CAT | RBM22 | 0.8 | 0.97 |
| FABP1 | AQR | 0.65 | 0.94 |
| FABP1 | SF3A3 | 0.7 | 0.8 |
| MAOA | IGF2BP2 | 0.75 | 0.97 |
| MAOA | IGF2BP3 | 0.75 | 0.97 |
| MAOB | TIA1 | 0.85 | 0.89 |
Tabla 3: Interacciones predichas entre cuatro ARNm de biomarcadores mitocondriales y proteínas fijadoras de ARN relacionadas con m6A. CAT, FABP1, MAOA y MAOB denotan ARNm de biomarcadores humanos; AQR, RBM22, SF3A3, IGF2BP2, IGF2BP3 y TIA1 denotan proteínas fijadoras de ARN. Puntuaciones RF y SVM > 0,5 indican interacciones ARN–proteína predichas. Abreviaturas: RF = bosque aleatorio; SVM = máquina de vectores de soporte.
Archivo complementario 1. Secuencias de bioinformática y datos experimentales originales. Este archivo contiene los secuencias en R utilizados para el procesamiento de datos, análisis de expresión diferencial, enriquecimiento funcional, aprendizaje automático, análisis de características de operación del receptor, análisis de enriquecimiento de conjuntos de genes, análisis de correlación de Spearman y análisis de infiltración de células inmunitarias mediante CIBERSORT, junto con los datos originales de glucosa en sangre, microalbumina urinaria y experimentos de RT-qPCR. Haga clic aquí para descargar este archivo.
Discusión
LLF es una medicina tradicional china comúnmente utilizada, empleada principalmente para nutrir el hígado y los riñones y para tratar la diabetes y sus complicaciones. Actualmente, no existen fármacos ni terapias específicas para la DN, y su manejo depende principalmente de tratamientos hipoglucemiantes, hipolipemiantes y antihipertensivos30,31,32. Sin embargo, estos tratamientos solo pueden ralentizar la progresión del daño renal en una pequeña proporción de pacientes33. Se ha demostrado que LLF ejerce efectos protectores renales en modelos de rata con DN mediante la corrección de trastornos del metabolismo de la glucosa y los lípidos y la reducción del estrés oxidativo34. Notablemente, como un órgano con un contenido mitocondrial excepcionalmente alto y un elevado consumo de oxígeno, la dinámica mitocondrial anormal en el riñón desempeña un papel fundamental en la patogénesis de la DN35. Este estudio revela un mecanismo novedoso mediante el cual LLF podría influir en la función mitocondrial a través de biomarcadores candidatos específicos (CAT, FABP1, MAOB y MAOA) en el tratamiento de la DN.
Estudios previos han indicado que la catalasa (CAT), la proteína fijadora de ácidos grasos 1 (FABP1), la monoaminooxidasa B (MAOB) y la monoaminooxidasa A (MAOA) están implicadas en la DN en diversos grados. CAT participa en el sistema de defensa antioxidante, protegiendo al riñón frente al daño inducido por estrés oxidativo36. CAT, una enzima antioxidante fundamental en el organismo, interviene en la regulación de la aparición y progresión de la DN mediante la modulación de procesos fisiológicos relacionados con las mitocondrias37. CAT cataliza específicamente la descomposición del peróxido de hidrógeno (H₂O₂) en agua y oxígeno, eliminando eficazmente las ERO procedentes de las mitocondrias. Esto reduce el daño inducido por estrés oxidativo en la estructura y función mitocondrial, mantiene la estabilidad del potencial de membrana mitocondrial y la eficiencia de la fosforilación oxidativa, mitigando así la lesión celular renal inducida por altas concentraciones de glucosa y retrasando la progresión de la DN38. Además, la disminución de la expresión de CAT provoca una eliminación insuficiente de las ERO mitocondriales, agravando la fragmentación mitocondrial y la alteración de las crestas. Esto inhibe la fusión mitocondrial mientras promueve la fisión, lo que desestabiliza aún más la dinámica mitocondrial. Como consecuencia, células intrínsecas como las células mesangiales y los podocitos desarrollan trastornos metabólicos, acelerando así la fibrosis del tejido renal39.
FABP1, como miembro de la familia de proteínas fijadoras de ácidos grasos, participa principalmente en el transporte, metabolismo y señalización intracelular de ácidos grasos de cadena larga. Se ha demostrado que su expresión anormal está estrechamente asociada con diversas enfermedades metabólicas y lesión renal, desempeñando un papel regulador crucial en el desarrollo y progresión de la nefropatía diabética (ND)40. La investigación indica que FABP1 modula la progresión de la ND al alterar el metabolismo lipídico. En la diabetes, la expresión anormal de FABP1 interrumpe el transporte y metabolismo de ácidos grasos. Se acumulan excesos de ácidos grasos libres y sus metabolitos en el tejido renal, dañando directamente las células endoteliales glomerulares y las células epiteliales tubulares, lo que agrava la inflamación y fibrosis renal41. Al mismo tiempo, FABP1 agrava la lesión del tejido renal al mediar el estrés oxidativo y los daños inducidos por hipoxia. Su excreción urinaria puede aumentar antes de que se presenten niveles anormales de albúmina urinaria, lo que ofrece un nuevo objetivo para la detección y diagnóstico temprano de la ND41,42. Además, FABP1 desempeña un papel regulador central en el metabolismo mitocondrial de ácidos grasos43. Estudios indican que la sobreexpresión de FABP1 mejora significativamente la eficiencia del transporte de ácidos grasos hacia las mitocondrias, aumenta la actividad de la β-oxidación mitocondrial y la actividad de las enzimas del ciclo del ácido tricarboxílico, mejorando así el metabolismo energético celular44. Sin embargo, el mecanismo mediante el cual FABP1 influye en la patogénesis de la ND a través de su participación en procesos relacionados con las mitocondrias aún no está claro. En otras condiciones relacionadas con la ND, MAOB y MAOA, como enzimas involucradas en el metabolismo de neurotransmisores, se han asociado con la progresión de la ND, contribuyendo a un desequilibrio en el estado redox del tejido. Este estudio confirma además el papel fundamental de estos cuatro biomarcadores candidatos en la ND, cuyos niveles de expresión disminuyen en el grupo con ND. Se hipotetiza que la modulación de la expresión de estos biomarcadores candidatos podría ayudar a reducir la inflamación y el estrés oxidativo en la ND.
Según el análisis de enriquecimiento mediante GSEA, cuatro biomarcadores candidatos —CAT, FABP1, MAOB y MAOA— mostraron enriquecimiento en múltiples vías, incluyendo la vía de señalización de quimioquinas, la interacción citocina-receptor de citocina y las vías de peroxisoma. Las quimioquinas son componentes clave de la respuesta inmune y promueven la inflamación. La vía de peroxidasa (POD) está asociada al estrés oxidativo45. Se ha reportado que la baicalina alivia la DN al reducir el estrés oxidativo y la inflamación, posiblemente mediante la activación de la vía de señalización antioxidante mediada por NrF2 y la inhibición de la vía inflamatoria mediada por MAPK45. Además, la desregulación de FABP1 en el metabolismo de lípidos podría contribuir a la esclerosis glomerular y a la fibrosis intersticial en la DN9. Estos hallazgos sugieren que los biomarcadores candidatos desempeñan un papel fundamental en los procesos inflamatorios y de estrés oxidativo en la DN. Dirigir terapias hacia estos biomarcadores candidatos para modular las vías que influyen podría mitigar la inflamación y el estrés oxidativo asociados con la DN, reduciendo así su progresión.
El análisis bioinformático mostró que los niveles de infiltración de subpoblaciones inmunitarias, como las células T CD8+, en el tejido renal de la DN cambiaron significativamente, y que el aumento de las células T CD8+ se correlacionó de forma significativa y negativa con la expresión de cuatro biomarcadores candidatos relacionados con las mitocondrias (CAT, FABP1, MAOB, MAOA). Estas predicciones computacionales son coherentes con los resultados de observaciones patológicas de experimentos en animales: secciones teñidas con HE de riñones de ratones en el grupo modelo de DN mostraron infiltración evidente de células inflamatorias alrededor de los glomérulos; tras la intervención con LLF, la infiltración de células inflamatorias renales en el grupo de tratamiento se redujo significativamente y el daño patológico mejoró. Esto sugiere que la mayor infiltración de células inflamatorias es una característica clave de la lesión renal en la DN, y que LLF podría desempeñar un papel protector mediante la regulación de la infiltración inmunitaria. Este hallazgo concuerda con estudios previos: la infiltración de células T CD8+ se asocia con el desarrollo de la DN, y la inhibición de su respuesta puede aliviar la enfermedad46, lo cual también agrava la lesión renal en la nefropatía por adriamicina47. Además, diversos tipos de células inmunitarias, como células B, macrófagos M1/M2 y células NK, presentan alteraciones en la patología de la DN48. El biomarcador CAT podría afectar la función de las células inmunitarias en la DN49, y MAOA también podría influir en el microambiente inmunitario mediante la regulación de la polarización de macrófagos. Estos resultados indican que el efecto protector renal de LLF está estrechamente relacionado con su capacidad para regular la infiltración inmunitaria anómala, incluidas las células T CD8+, reduciendo así el daño inflamatorio. Las correlaciones negativas entre los cuatro biomarcadores candidatos y las células T CD8+ y las células mastocitarias activadas sugieren que estos genes podrían modular el microambiente inmunitario renal. Se ha relacionado la expresión de CAT con la polarización de macrófagos y la actividad de las células T en tejidos metabólicos. Sin embargo, nuestras estimaciones mediante CIBERSORT se derivan de transcriptomas de tejido renal total, lo que no permite distinguir entre subtipos de células inmunitarias que infiltran los compartimentos glomerulares frente a los tubulointersticiales. Las correlaciones observadas deben interpretarse como asociaciones que generan hipótesis, y no como evidencia de una regulación inmunitaria causal. Se requieren estudios futuros que utilicen inmunohistoquímica múltiple o secuenciación de ARN a nivel de célula individual (single-cell RNA-seq) para localizar estas interacciones entre biomarcadores e inmunidad.
Estudios previos han informado biomarcadores relacionados con las mitocondrias en la DN, incluyendo OPA1, MFN2, DRP1, PGC-1α y SOD2. Nuestros hallazgos sobre CAT y MAOA complementan esta literatura existente al destacar las vías peroxisomales y de monoamino oxidasa que han recibido menos atención en el contexto mitocondrial de la DN. Nótese que, aunque SOD2 y GPX1 son enzimas clásicas que eliminan las ERO, CAT actúa específicamente sobre el H2O2 peroxisomal, lo que sugiere un compartimento subcelular distinto en la regulación del estrés oxidativo.
Como un flavonoide natural, se ha demostrado que la taxifolina (TA) reduce significativamente los niveles de glucosa en sangre, ácido úrico, creatinina e insulina sérica en ratas diabéticas, además de mitigar los cambios renales patológicos en estos animales50. El β-sitosterol podría mejorar la DN indirectamente al regular el equilibrio lipídico y ejercer efectos antiinflamatorios. Los componentes de β-sitosterol en la decocción Huangqi Gegen (HGD) participan en vías relacionadas con la DN, dirigiéndose a moléculas como el factor de crecimiento del endotelio vascular A (VEGFA) y la interleucina-6 (IL-6). Estos efectos incluyen acciones antiinflamatorias, antiapoptóticas, antioxidantes y autofágicas, que reducen la fibrosis renal y el daño cortical renal, y mejoran la función renal, retrasando así la progresión de la DN51. La eriodictiol, otro flavonoide natural, ha demostrado proteger contra el accidente cerebrovascular isquémico (ACV) al equilibrar el estrés oxidativo y la inflamación52. Aunque existen pocos estudios sobre la eriodictiol en el contexto de la DN, dada la asociación de esta enfermedad con la inflamación y el estrés oxidativo, se hipotetiza que podría aliviar la DN mediante mecanismos similares. Las predicciones farmacológicas en este estudio también sugieren que la taxifolina, el β-sitosterol y la eriodictiol tienen efectos terapéuticos potenciales en la DN. La simulación molecular predice posibles conformaciones y afinidades de unión, pero no establece la interacción con el blanco in vivo, la biodisponibilidad ni la actividad farmacológica. Estos resultados deben interpretarse como generadores de hipótesis y no como confirmatorios.
Estudios previos de farmacología de redes sobre la nefropatía diabética (DN) se han centrado principalmente en vías de señalización individuales (por ejemplo, AGE-RAGE, PI3K-AKT y MAPK) y no han considerado la disfunción mitocondrial ni han empleado aprendizaje automático multimodelo para priorizar biomarcadores. Nuestro estudio introduce tres avances metodológicos y biológ游戏副本
La falta de cambios estadísticamente significativos en la expresión de MaoB y Fabp1 en el riñón de ratón podría deberse a varios factores. En primer lugar, los dos conjuntos de datos del Gene Expression Omnibus (GEO) utilizados para la priorización de candidatos se obtuvieron de muestras de riñón humano (riñón completo y glomérulo, respectivamente), mientras que nuestro experimento con animales utilizó tejido renal de ratón. Las diferencias específicas de especie en la regulación génica pueden afectar los niveles basales de expresión y la respuesta a fármacos. En segundo lugar, el tamaño relativamente pequeño de la muestra (n = 6 por grupo) pudo haber limitado el poder estadístico para detectar efectos de magnitud moderada. En tercer lugar, el tejido se recolectó 8 semanas después del tratamiento, lo cual puede no haber capturado la ventana óptima para detectar cambios transcripcionales en MaoB y Fabp1, ya que estos genes podrían regularse a nivel de proteína o de actividad en lugar de a nivel de ARNm. En cuarto lugar, la heterogeneidad del tejido—entre el riñón completo y compartimentos específicos—puede contribuir a las discrepancias. Se justifica una investigación adicional sobre estas posibilidades.
Este estudio utilizó un enfoque integrador de bioinformática y aprendizaje automático para identificar CAT, FABP1, MAOA y MAOB como genes candidatos mitocondriales potenciales para LLF en la DN. Experimentos in vivo confirmaron que LLF regula significativamente hacia arriba CAT y MAOA en tejido renal, lo que sugiere que estos genes son dianas prometedoras para investigaciones mecanicistas y terapéuticas adicionales. En contraste, MAOB y FABP1 mostraron tendencias no significativas en la misma dirección, lo que subraya la importancia de la validación experimental al priorizar predicciones computacionales. Estos hallazgos proporcionan una justificación para futuros estudios que exploren estrategias terapéuticas relacionadas con las mitocondrias en la DN.
Divulgaciones
Los autores no tienen conflictos de intereses que declarar.
Agradecimientos
Deseamos expresar nuestro sincero agradecimiento a todas las personas y organizaciones que nos apoyaron y asistieron durante esta investigación. Este estudio fue financiado por la Fundación Nacional de Ciencias Naturales de China (No.81973486 y 82173974), los proyectos de investigación de la Administración de Medicina Tradicional China de la provincia de Shanxi (No.2024ZYYA021), el Proyecto de Disciplina de la Universidad de Medicina China de Shanxi (No.2026XK24) y el Proyecto del Fondo de Investigación Científica de la Universidad de Medicina China de Shandong (No. KYZK2024Q13). Agradecemos a Qinqing Li, Profesor Asociado de la Universidad de Medicina China de Shanxi, quien autentificó el material botánico.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Solución fijadora de tejidos al 4% de paraformaldehído | Saiyin Biotechnology Co., Ltd. | 71033600 | |
| Etileno absoluto | Sinopharm Chemical Reagent Co., Ltd. | 10009218 | |
| Glucómetro | Sinocare Inc. | GA-3 | |
| Kit de ensayo de nitrógeno ureico en sangre (BUN) | Instituto de Bioingeniería Nanjing Jianwei | C03-2-1 | |
| Ratones C57BLKS/J db/db | Changzhou Cavens Experimental Animal Co., Ltd. | SCXK (Su) 2021-0013 | |
| Ratones C57BLKS/J db/m | Changzhou Cavens Experimental Animal Co., Ltd. | SCXK (Su) 2021-0013 | |
| Centrífuga | Hunan Xiangyi Laboratory Instrument Development Co., Ltd. | HI650 | |
| Hidrato de cloral | Shanghai Aladdin Biochemical Technology Co., Ltd. | 302-17-0 | |
| Cytoscape (v3.9.0) | https://cytoscape.org | ||
| Base de datos para predicción de modificaciones m6A | http://www.cuilab.cn/sramp/ | ||
| Base de datos de ingredientes activos en medicina tradicional china | http://sm.nwsuaf.edu.cn/lsp/tcmsp.php | ||
| ENCORI / Starbase | https://starbase.sysu.edu.cn/ | ||
| Gene Expression Omnibus (GEO) | https://www.ncbi.nlm.nih.gov/geo/ | ||
| Kit de tinción de hematoxilina y eosina (HE) | Servicebio | C0105S | |
| Centrífuga de alta velocidad | Labnet, USA | C2500-R-230V | |
| Herramienta de análisis de infiltración inmune | https://cibersort.stanford.edu/ | ||
| Fructus Ligustri Lucidi | Sichuan Quanyirun Biotechnology Co., Ltd. | 20240506 | |
| Agitador magnético | Fábrica de Instrumentos Jintan Zhongtian, Jiangsu | T8-1 | |
| Microscopio | Olympus | BX53 | |
| Microtomo | Leica, Alemania | RM 2016 | |
| Espetrofotómetro de microvolumen | Hangzhou Aosheng Instrument Co., Ltd. | Nano-300 | |
| miRNet | https://www.mirnet.ca | ||
| MitoCarta 3.0 | https://www.broadinstitute.org/mitocarta | ||
| Paquete R para interpretación de modelos | https://cran.r-project.org/package=DALEX | ||
| Plataforma de acoplamiento molecular | http://clab.labshare.cn/cb-dock/ | ||
| Kit ELISA para microalbuminuria en ratón | Fine Test | EM0632 | |
| Cinta reactiva para microalbuminuria en ratón | Guangzhou Huadu Gaoerbao Biotechnology Co., Ltd. | 20211203 | |
| Kit ELISA para creatinina sérica en ratón | Abmart | AB5990A | |
| MSigDB | https://www.gsea-msigdb.org/gsea/msigdb/ | ||
| Ciclador térmico PCR | Roche | Roche LightCycler 480 | |
| Software R (v4.2.2) + paquetes R | https://www.r-project.org / CRAN/Bioconductor | ||
| RCSB PDB | https://www.rcsb.org | ||
| Kit de extracción de ARN | Beijing Jumei Biotech Co., Ltd. | MF-036-01 | |
| RPISeq | http://pridb.gdcb.iastate.edu/RPISeq/ | ||
| Kit RT-qPCR | Beijing Jumei Biotech Co., Ltd. | MF949-T | |
| Salidroside | Sichuan Quanyirun Biotechnology Co., Ltd. | 20211009 | |
| Kit de ensayo de creatinina sérica | Instituto de Bioingeniería Nanjing Jianwei | C011-2-1 | |
| Instalación animal SPF | Universidad de Medicina Tradicional China de Shanxi | ||
| SRAMP | http://www.cuilab.cn/sramp/ | ||
| STRING | https://cn.string-db.org/ | ||
| SwissTargetPrediction | http://www.swisstargetprediction.ch/ | ||
| TCMSP | http://sm.nwsuaf.edu.cn/lsp/tcmsp.php | ||
| Tezhi Pigan | Sichuan Quanyirun Biotechnology Co., Ltd. | 20210602 | |
| Baño flotador de tejidos | Wuhan Junjie | JK-6 |
Referencias
- Thipsawat S. Early detection of diabetic nephropathy in patient with type 2 diabetes mellitus: a review of the literature. Diabetes Vasc Dis Res. 2021;18(6):14791641211058856.
- Kanwar YS, Sun L, Xie P, Liu FY, Chen S. A glimpse of various pathogenetic mechanisms of diabetic nephropathy. Annu Rev Pathol. 2011;6:395-423.
- Santulli G, et al. Prediabetes increases the risk of frailty in prefrail older adults with hypertension: beneficial effects of metformin. Hypertension. 2024;81(7):1637-43.
- Jin Q, et al. Oxidative stress and inflammation in diabetic nephropathy: role of polyphenols. Front Immunol. 2023;14:1185317.
- Alicic RZ, Rooney MT, Tuttle KR. Diabetic kidney disease: challenges, progress, and possibilities. Clin J Am Soc Nephrol. 2017;12(12):2032-45.
- Harrington JS, et al. Mitochondria in health, disease, and aging. Physiol Rev. 2023;103(4):2349-422.
- Peña FJ, et al. An integrated overview on the regulation of sperm metabolism (glycolysis-Krebs cycle-oxidative phosphorylation). Anim Reprod Sci. 2022;246:106805.
- de Mello AH, Costa AB, Engel JDG, Rezin GT. Mitochondrial dysfunction in obesity. Life Sci. 2018;192:26-32.
- Shen Y, et al. Notoginsenoside Fc, a novel renoprotective agent, ameliorates glomerular endothelial cells pyroptosis and mitochondrial dysfunction in diabetic nephropathy through regulating HMGCS2 pathway. Phytomedicine. 2024;126:155445.
- Zhang PN, et al. Mitochondrial dysfunction and diabetic nephropathy: nontraditional therapeutic opportunities. J Diabetes Res. 2021;2021:1010268.
- Zhang JL, et al. Structural characterization and protective effect against renal fibrosis of polysaccharide from Ligustrum lucidum Ait. J Ethnopharmacol. 2023;302(Pt A):115898.
- Luan R, et al. The protective effect of ethyl acetate and n-butanol fractions of wine-steamed Ligustri Lucidi Fructus on diabetic nephropathy in rats. Evid Based Complement Alternat Med. 2021;2021:6512242.
- Luan R, et al. Pharmacodynamics, pharmacokinetics, and kidney distribution of raw and wine-steamed Ligustri Lucidi Fructus extracts in diabetic nephropathy rats. Molecules. 2023;28(2):791.
- Seo HL, et al. Liqustri lucidi Fructus inhibits hepatic injury and functions as an antioxidant by activation of AMP-activated protein kinase in vivo and in vitro. Chem Biol Interact. 2017;262:57-68.
- Yan M, et al. Identification of pyroptosis-related genes and potential drugs in diabetic nephropathy. J Transl Med. 2023;21(1):490.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47.
- Gustavsson EK, et al. ggtranscript: an R package for the visualization and interpretation of transcript isoforms using ggplot2. Bioinformatics. 2022;38(15):3844-6.
- Gu Z, Eils R, Schlesner M. Complex heatmaps reveal patterns and correlations in multidimensional genomic data. Bioinformatics. 2016;32(18):2847-9.
- Shannon P, et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome Res. 2003;13(11):2498-504.
- Wu T, et al. clusterProfiler 4.0: a universal enrichment tool for interpreting omics data. Innovation (Camb). 2021;2(3):100141.
- Dong H, et al. Identification through machine learning of potential immune-related gene biomarkers associated with immune cell infiltration in myocardial infarction. BMC Cardiovasc Disord. 2023;23(1):163.
- Pei B, et al. The development of prediction model for cuffed tracheal tube size from the middle finger in pediatrics: a concise and feasible approach. Transl Pediatr. 2023;12(12):2222-31.
- Robin X, et al. pROC: an open-source package for R and S+ to analyze and compare ROC curves. BMC Bioinformatics. 2011;12:77.
- Robles-Jimenez LE, et al. Worldwide traceability of antibiotic residues from livestock in wastewater and soil: a systematic review. Animals (Basel). 2021;12(1):60.
- Wang Y, et al. Bioinformatics analysis combined with clinical sample screening reveals that leptin may be a biomarker of preeclampsia. Front Physiol. 2022;13:1031950.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2^−ΔΔCT method. Methods. 2001;25(4):402-8.
- Klejborowska G, et al. Synthesis, anticancer activity and molecular docking studies of N-deacetylthiocolchicine and 4-iodo-N-deacetylthiocolchicine derivatives. Bioorg Med Chem. 2021;32:116014.
- Reagan-Shaw S, Nihal M, Ahmad N. Dose translation from animal to human studies revisited. FASEB J. 2008;22(3):659-61.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Mazzieri A, Porcellati F, Timio F, Reboldi G. Molecular targets of novel therapeutics for diabetic kidney disease: a new era of nephroprotection. Int J Mol Sci. 2024;25(7):3969.
- Breyer MD, Susztak K. The next generation of therapeutics for chronic kidney disease. Nat Rev Drug Discov. 2016;15(8):568-88.
- Leoncini G, et al. Blood pressure reduction and RAAS inhibition in diabetic kidney disease: therapeutic potentials and limitations. J Nephrol. 2020;33(5):949-63.
- Pofi R, et al. Diabetic nephropathy: focus on current and future therapeutic strategies. Curr Drug Metab. 2016;17(5):497-502.
- Arellano Buendía AS, et al. Immunomodulatory effects of the nutraceutical garlic derivative allicin in the progression of diabetic nephropathy. Int J Mol Sci. 2018;19(10):3107.
- Zhang X, Agborbesong E, Li X. The role of mitochondria in acute kidney injury and chronic kidney disease and its therapeutic potential. Int J Mol Sci. 2021;22(20):11253.
- Liu Y, et al. DsbA-L interacting with catalase in peroxisome improves tubular oxidative damage in diabetic nephropathy. Redox Biol. 2023;66:102855.
- Zhong Y, et al. Jujuboside A ameliorates high fat diet and streptozotocin induced diabetic nephropathy via suppressing oxidative stress, apoptosis, and enhancing autophagy. Food Chem Toxicol. 2022;159:112697.
- Zhong Y, et al. Dioscin relieves diabetic nephropathy via suppressing oxidative stress and apoptosis, and improving mitochondrial quality and quantity control. Food Funct. 2022;13(6):3660-73.
- Issac PK, et al. Protective effect of morin by targeting mitochondrial reactive oxygen species induced by hydrogen peroxide demonstrated at a molecular level in MDCK epithelial cells. Mol Biol Rep. 2022;49(6):4269-79.
- Abo El-Asrar M, Ismail EAR, Elnhrawy AM, Thabet RA. Fatty acid binding protein 1 (FABP1) and fatty acid binding protein 2 (FABP2) as a link between diabetic nephropathy and subclinical atherosclerosis in children and adolescents with type 1 diabetes. J Diabetes Complications. 2023;37(3):108414.
- Gholaminejad A, Fathalipour M, Roointan A. Comprehensive analysis of diabetic nephropathy expression profile based on weighted gene co-expression network analysis algorithm. BMC Nephrol. 2021;22(1):245.
- Tanaka M, et al. Urinary fatty acid-binding protein 4 is a promising biomarker for glomerular damage in patients with diabetes mellitus. J Diabetes Investig. 2025;16(4):670-9.
- Liu Y, et al. Gastric cancer adapts high lipid microenvironment via suppressing PPARG-FABP1 axis after arriving in the lymph node. Redox Biol. 2025;85:103759.
- Borús DL, et al. Fatty acid binding protein 1 (FABP1) depletion promotes an oxidative metabolic shift in Caco-2 colorectal cancer cells. Biochim Biophys Acta Mol Cell Biol Lipids. 2025;1870(7):159661.
- Chu Y, et al. Glutathione peroxidase-1 overexpression reduces oxidative stress, and improves pathology and proteome remodeling in the kidneys of old mice. Aging Cell. 2020;19(6):e13154.
- Zhang F, et al. Mesenchymal stem cells alleviate rat diabetic nephropathy by suppressing CD103+ DCs-mediated CD8+ T cell responses. J Cell Mol Med. 2020;24(10):5817-31.
- Cao Q, et al. Renal F4/80+ CD11c+ mononuclear phagocytes display phenotypic and functional characteristics of macrophages in health and in adriamycin nephropathy. J Am Soc Nephrol. 2015;26(2):349-63.
- Zhou W, et al. The landscape of immune cell infiltration in the glomerulus of diabetic nephropathy: evidence based on bioinformatics. BMC Nephrol. 2022;23(1):303.
- Bloch K, Shichman E, Vorobeychik M, Bloch D, Vardi P. Catalase expression in pancreatic alpha cells of diabetic and non-diabetic mice. Histochem Cell Biol. 2007;127(2):227-32.
- Zhao Y, et al. Taxifolin attenuates diabetic nephropathy in streptozotocin-induced diabetic rats. Am J Transl Res. 2018;10(4):1205-10.
- Ding S, Wang W, Song X, Ma H. Based on network pharmacology and molecular docking to explore the underlying mechanism of Huangqi Gegen Decoction for treating diabetic nephropathy. Evid Based Complement Alternat Med. 2021;2021:9928282.
- Guo S, et al. Correction: Eriodictyol: a review of its pharmacological activities and molecular mechanisms related to ischemic stroke. Food Funct. 2023;14(10):4949.