La inmunotransferencia con LC3 es un método ampliamente utilizado para monitorear la autofagia, pero requiere una optimización cuidadosa. Este protocolo describe un enfoque robusto para la detección y cuantificación de LC3-II en células de cáncer pancreático derivadas de KPC, incluyendo consideraciones técnicas clave y un flujo de trabajo estandarizado para el análisis densitométrico mediante Fiji.
Artículo de método
Análisis por Western Blot de la proteína asociada a microtúbulos cadena ligera 3 para monitorear la dinámica autofagosómica en células de cáncer pancreático derivadas de ratón
En este artículo
Resumen
Resumen
La autofagia desempeña un papel complejo en el adenocarcinoma ductal pancreático (PDAC), contribuyendo a la progresión tumoral, la adaptación al estrés y la resistencia a la terapia. Por lo tanto, la evaluación precisa de la dinámica autofagosómica es esencial para los estudios de biología del cáncer. Entre los métodos disponibles, la inmunodetección por transferencia de proteínas (inmunoblot) de la proteína asociada a microtúbulos de cadena ligera 3 (LC3) se utiliza ampliamente para monitorear la dinámica autofagosómica, distinguiendo entre la forma citosólica (LC3-I) y la forma lipidada asociada al autofagosome (LC3-II). Sin embargo, el bajo peso molecular de LC3 y la mínima diferencia en la movilidad electroforética entre estos isoformos presentan desafíos técnicos que requieren una optimización cuidadosa. A continuación se presenta un protocolo reproducible para el análisis semicuantitativo de los niveles de LC3-II mediante inmunoblot tipo Western en células murinas de cáncer pancreático derivadas de KPC. El método incorpora condiciones optimizadas para la lisis celular, electroforesis, transferencia de proteínas y detección basada en anticuerpos, para garantizar una separación y detección confiables de los isoformos de LC3. Además, se proporciona un flujo de trabajo estandarizado para el análisis densitométrico de las bandas de LC3-II utilizando Fiji (ImageJ). La sensibilidad del método se demuestra mediante la detección de niveles aumentados de LC3-II en condiciones de inducción de la autofagia (tratamiento con gemcitabina) y de flujo autofágico alterado (silenciamiento de VMP1). También se examinan parámetros técnicos críticos que influyen en la interpretación de los datos, incluida la composición del tampón de lisis y la especificidad del anticuerpo, junto con errores experimentales comunes. Aunque la inmunodetección de LC3 por sí sola no es suficiente para definir completamente el flujo autofágico, cuando se combina con ensayos complementarios proporciona un enfoque robusto y accesible para monitorear la actividad autofágica. El protocolo puede adaptarse a otros contextos experimentales, facilitando estudios mecanicistas de la autofagia en modelos de cáncer.
Introducción
La macroautofagia (en lo sucesivo denominada autofagia) es una vía de degradación regulada mediante la cual las células degradan material citoplasmático, incluyendo proteínas y orgánulos disfuncionales. Un rasgo distintivo de la autofagia es la formación de una estructura de doble membrana conocida como autofagosoma, que aísla la carga celular y posteriormente la transporta a los lisosomas para su degradación1,2,3. En células normales, la autofagia contribuye al recambio controlado de proteínas y orgánulos, limitando así el estrés oxidativo y reduciendo el riesgo de desarrollo tumoral. En células cancerosas, sin embargo, este proceso puede ser aprovechado para favorecer la supervivencia en condiciones de alta demanda metabólica, privación de nutrientes e hipoxia. Al facilitar la adaptación a un microambiente hostil, la autofagia también contribuye a la resistencia a la quimioterapia, en parte al mitigar el daño celular inducido por el tratamiento4,5.
El cáncer de páncreas ocupa el tercer lugar como causa de mortalidad relacionada con el cáncer en Estados Unidos. Aproximadamente el 90 % de los cánceres de páncreas se clasifican como adenocarcinoma ductal pancreático (PDAC). A diferencia de varias otras malignidades, para las cuales la detección temprana y los avances terapéuticos han mejorado la supervivencia del paciente, el PDAC se diagnostica en una etapa avanzada en más del 80 % de los casos. Esta presentación en estadio tardío, combinada con una biología tumoral agresiva y una marcada resistencia a la terapia, resulta en una tasa de supervivencia general a 5 años de aproximadamente el 11 %6.
El modelo de ratón KPC, basado en la activación específica del páncreas de Kras oncogénico y en la eliminación condicional de Trp53 inducida por recombinasa Cre, es uno de los modelos de adenocarcinoma ductal pancreático genéticamente modificados más utilizados. Estos ratones desarrollan espontáneamente tumores que se asemejan estrechamente a la enfermedad humana, progresando desde neoplasia intraepitelial pancreática (PanIN) hasta carcinoma invasivo. Es importante destacar que este modelo reproduce características clave del cáncer de páncreas, incluyendo un estroma desmoplásico denso y un microambiente tumoral inmunosupresor. Las células tumorales aisladas de ratones KPC (células derivadas de KPC) proporcionan un sistema complementario in vitro que conserva muchas de las características genéticas y fenotípicas de los tumores originales, permitiendo estudios mecanicistas y la evaluación controlada de las respuestas terapéuticas7,8.
VMP1 es una proteína esencial relacionada con la autofagia que inicia la autofagia mediante su interacción con Beclin-1 y la reclutación del complejo PI3KC39,10. Más allá de la iniciación, VMP1 participa en múltiples etapas de la autofagia, incluyendo la formación del autofagosoma10, el cierre11 y procesos selectivos como la mitofagia12 y la zimofagia13. VMP1 permanece involucrada durante todo el flujo autofágico y podría desempeñar funciones adicionales como una scramblasa de fosfolípidos14. En el páncreas, la expresión de VMP1 es típicamente baja, pero se induce fuertemente bajo condiciones de estrés, incluyendo pancreatitis y transformación oncogénica, donde promueve la autofagia en pasos posteriores a la señalización del KRAS mutante15,16. VMP1 está sobreexpresado en el cáncer de páncreas17, y modelos experimentales en ratón han demostrado que la autofagia dependiente de VMP1 coopera con KRAS para promover la iniciación tumoral y la formación de PanIN18. Además, VMP1 contribuye a la resistencia a la quimioterapia porque su regulación positiva por agentes como la gemcitabina19 estimula la autofagia19 y favorece la supervivencia de las células tumorales17, destacando así su papel protumorigénico15.
Los autofagosomas se caracterizan por la presencia de la proteína relacionada con la autofagia, la proteína ligada a microtúbulos 3 de cadena ligera (LC3)20. En condiciones basales, LC3 se encuentra predominantemente en una forma soluble (LC3-I) distribuida en todo el citoplasma y el núcleo. Tras la activación de la autofagia, LC3 sufre una lipidación mediante la conjugación con fosfatidiletanolamina, generando así la forma asociada a membranas LC3-II1,21. Aunque LC3-II tiene un peso molecular mayor que LC3-I debido a esta modificación, migra más rápidamente durante la electroforesis en SDS-PAGE, probablemente por su mayor hidrofobicidad. En consecuencia, la conversión de LC3-I a LC3-II refleja la lipidación y no un procesamiento proteolítico, siendo LC3-I detectado típicamente en aproximadamente 16 kDa y LC3-II en aproximadamente 14 kDa. Dado que los niveles de LC3-II se correlacionan con la abundancia de autofagosomas, la inmunodetección de LC3 se utiliza ampliamente para monitorear la actividad autofágica22. Por lo tanto, la evaluación precisa de la dinámica de LC3 es esencial para interpretar hallazgos experimentales relacionados con la autofagia.
Este estudio describe la estandarización y la optimización técnica de un protocolo clásico de inmunotransferencia para LC3 en una línea celular de cáncer de páncreas derivada de KPC. La optimización es particularmente importante porque LC3 es una proteína de bajo peso molecular, las formas LC3-I y LC3-II difieren únicamente en ~2 kDa en movilidad electroforética, y LC3-II es una especie lipídica21,22. Por consiguiente, variaciones menores en el procedimiento pueden comprometer la detección de LC3 y conducir a resultados subóptimos. Además, el origen de la especie de las muestras representa un factor importante para lograr una inmunorreactividad óptima. El protocolo optimizado es suficientemente sensible para detectar aumentos en los niveles de LC3-II tras el tratamiento con el agente quimioterapéutico gemcitabina y tras la inhibición de VMP1, condiciones que se sabe estimulan la autofagia y alteran el flujo autofágico, respectivamente. Finalmente, se destacan dos problemas técnicos potenciales para demostrar su impacto en la calidad de los datos y en la interpretación de los resultados. En Figura 1 se ilustra un resumen de este flujo experimental.
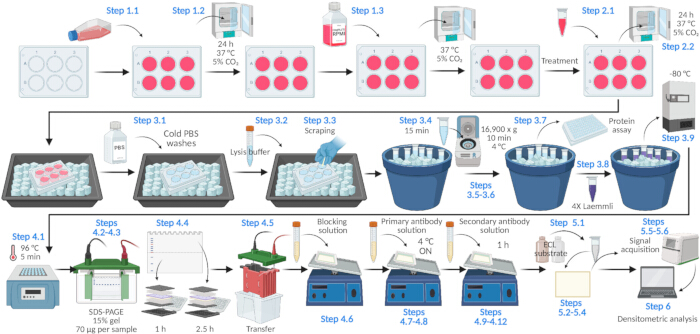
Figura 1: Representación esquemática del protocolo de inmunotransferencia de LC3 en células derivadas de KPC. Descripción general esquemática del protocolo utilizado para detectar y cuantificar los niveles de LC3-II mediante inmunotransferencia. Las células de cáncer pancreático derivadas de KPC se cultivan y someten a tratamientos experimentales, seguidos de lisis celular, cuantificación de proteínas, electroforesis en gel de poliacrilamida con SDS (SDS-PAGE), transferencia a membrana, detección por anticuerpos de LC3, adquisición de señal quimioluminiscente y análisis densitométrico de las bandas de LC3-II normalizadas respecto a un control de carga. El flujo de trabajo destaca los pasos procedimentales principales y las etapas críticas necesarias para evaluar de forma confiable la dinámica de LC3. Creado con BioRender.com. Haga clic aquí para ver una versión más grande de esta figura.
Protocolo
Todos los procedimientos que involucraron animales se realizaron de acuerdo con las directrices institucionales y fueron aprobados por el Comité Institucional de Cuidado y Uso de Animales (IACUC) del Hospital General de Massachusetts bajo el protocolo #2019N000111. La línea celular de cáncer de páncreas derivada de KPC utilizada en este estudio fue establecida previamente en el laboratorio Mostoslavsky bajo este protocolo aprobado. La lista de reactivos, productos químicos e información de equipo se proporciona en la Tabla de Materiales.
1. Preparación de células
- Siembre células tumorales pancreáticas derivadas de KrasG12D; Trp53f/+; p48-Cre (en adelante denominadas KPC) en una placa de 6 pocillos utilizando medio Roswell Park Memorial Institute (RPMI 1640) que contenga 10% de suero bovino fetal, 100 U/mL de penicilina y 100 µg/mL de estreptomicina. Ajuste la densidad de siembra para obtener una confluencia del 70%–90% el día de la lisis.
NOTA: Una densidad de siembra de 3,5 × 10⁵ células por pocillo dio como resultado una confluencia de aproximadamente el 80% tras 72 h. Dado que el crecimiento puede variar entre laboratorios y modelos KPC, determine empíricamente la densidad de siembra óptima antes de realizar el experimento.
NOTA: Para generar líneas celulares estables con silenciamiento de VMP1, produzca partículas lentivirales mediante la co-transfección de células HEK293T con plásmidos de empaquetamiento y el vector lentiviral respectivo utilizando polietilenimina (PEI). Recoga los sobrenadantes lentivirales 72 h después de la transfección, centrifugue a 300 × g durante 10 min a 4 °C para eliminar restos celulares y filtre a través de un filtro de jeringa de 0,45 µm. Someta las células KPC a una única ronda de transducción con los sobrenadantes virales recolectados. Seleccione las células transducidas de forma estable mediante tratamiento con 2,5 µg/mL de puromicina (dilución 1:4.000 a partir de una solución madre de 10 mg/mL) durante 72 h. - Cultive las células a 37 °C en un incubador humedecido con 5% de dióxido de carbono (CO₂).
- Reemplace el medio por medio fresco y continúe la incubación en las mismas condiciones.
2. Tratamiento con gemcitabina 20 µM
- Prepare una solución de gemcitabina 10 mM en medio RPMI un día antes de la lisis. Trate cada pocillo con 4 µL de la solución 10 mM para obtener una concentración final de 20 µM.
- Incube las células durante 24 h a 37 °C en un incubador humedecido con 5% de dióxido de carbono (CO₂).
3. Lisados celulares
- Coloque la placa sobre hielo y lávela tres veces con solución salina tamponada con fosfato fría (PBS; 137 mM NaCl, 2.7 mM KCl, 8 mM Na₂HPO₄ y 2 mM KH₂PO₄).
- Añada 80 µL de tampón de lisis (50 mM Tris-HCl, pH 8.0, 150 mM NaCl, 1% Triton X-100 y 0.1% SDS) suplementado con inhibidores de proteasas.
NOTA: Si se observan diferentes niveles de confluencia entre los pocillos, ajuste el volumen del tampón de lisis para obtener concentraciones de proteína comparables. Como referencia, utilice ~10 µL de tampón de lisis por cada 10% de confluencia (por ejemplo, 70 µL para 70% de confluencia y 90 µL para 90% de confluencia). - Utilizando el extremo ancho (proximal) de la punta de una pipeta P200, raspe completamente toda la superficie de cada pocillo para desprender y recolectar las células en el tampón de lisis.
- Recoja el lisado en un tubo de microcentrífuga y manténgalo en hielo durante 15 min.
- Centrifugue las muestras a 16.900 × g a 4 °C durante 10 min.
- Transfiera el sobrenadante a un tubo de microcentrífuga limpio.
- Retire una alícuota para la cuantificación de proteína y manténgala en hielo hasta el análisis.
NOTA: Para la cuantificación de proteína, diluya 2,5 µL de lisado en 7,5 µL de tampón de lisis y mezcle con 200 µL del reactivo de ácido bicinconínico. También pueden utilizarse otros métodos alternativos de cuantificación de proteína. - Añada tampón de muestra 4× de Laemmli (250 mM Tris-HCl, pH 6.8, 8% SDS, 40% glicerol, 0,04% azul de bromofenol y 20% β-mercaptoetanol) a los lisados y mezcle completamente. Para 77,5 µL de lisado, añada 25,8 µL de tampón de muestra de Laemmli.
- Almacene las muestras a −80 °C.
NOTA: El protocolo puede interrumpirse en este paso. Las muestras pueden almacenarse a −80 °C durante hasta dos semanas antes de la SDS-PAGE.
4. Electroforesis en gel de poliacrilamida con dodecil sulfato sódico e inmunotransferencia
- Calentar las muestras a 96 °C durante 5 min.
- Cargar 70 µg de cada muestra en un gel de SDS-PAGE al 15 % (espesor de 1,5 mm) y realizar la electroforesis a 90 V hasta que el frente de colorante entre en el gel de resolución. Utilizar un gel de resolución de poliacrilamida al 15 % preparado en casa que contenga acrilamida/bis-acrilamida al 15 %, Tris-HCl 375 mM (pH 8,8) y 0,1 % de SDS.
- Aumentar el voltaje a 120 V y continuar la electroforesis hasta que el frente de colorante alcance o salga por el fondo del gel. Detener la corrida antes de que el marcador de 10 kDa de la escalera de peso molecular salga del gel.
- Cortar el gel aproximadamente en 25 kDa para separar las porciones superior e inferior.
- Transferir las proteínas a una membrana de PVDF de 0,2 µm previamente activada con metanol en tampón de transferencia (25 mM de Tris base, 192 mM de glicina y 20 % [v/v] de metanol) a 200 mA durante 1 h para la porción inferior del gel (<25 kDa) y 2,5 h para la porción superior del gel (>25 kDa).
- Bloquear la membrana durante 1 h en tampón de bloqueo con agitación suave.
- Preparar una solución de anticuerpo primario anti-LC3 a 1:1.000 en tampón de bloqueo que contenga 0,1 % de Tween-20.
NOTA: El anticuerpo primario anti-LC3 se utilizó en una dilución de 1:1.000, y el anticuerpo de control de carga anti-actina se utilizó en una dilución de 1:4.000. - Incubar la membrana durante la noche a 4 °C con el anticuerpo primario anti-LC3 bajo agitación suave.
- Lavar la membrana cuatro veces durante 5 min con TBS-T (0,1 % de Tween-20 en TBS; 20 mM Tris-HCl, pH 7,6, y 150 mM NaCl).
- Preparar una solución de anticuerpo secundario conjugado con peroxidasa de rábano picante a 1:2.000 en tampón de bloqueo.
- Incubar la membrana con el anticuerpo secundario durante 1 h a temperatura ambiente bajo agitación suave.
- Lavar la membrana cuatro veces durante 5 min con TBS-T.
- Lavar la membrana dos veces con TBS.
5. Detección quimioluminiscente
- Prepare el sustrato quimioluminiscente mejorado de dos componentes mezclando volúmenes iguales del reactivo A (solución de luminol/mejorador) y el reactivo B (solución de peróxido) inmediatamente antes de usarlo.
- Retire suavemente el exceso de líquido de la membrana utilizando una toalla de laboratorio.
- Coloque la membrana dentro de una caja opaca.
- Agregue la solución quimioluminiscente mejorada a la membrana, cierre la caja e incube durante 5 min.
- Deje que escurra el exceso de solución de la membrana y coloque la membrana en el sistema de imagen para la detección de la señal.
- Adquiera las imágenes según las instrucciones del fabricante para el sistema de imagen.
6. Análisis densitométrico utilizando Fiji
- Arrastre y suelte el archivo de imagen en la ventana de Fiji para abrirla.
- Convierta la imagen a escala de grises de 8 bits (Imagen → Tipo → 8 bits).
- Si es necesario, gire la imagen para alinear las bandas horizontalmente (Imagen → Transformar → Girar).
- Habilite la vista previa y configure la cuadrícula con un número adecuado de líneas (por ejemplo, 20).
- Ajuste el ángulo de rotación hasta que las bandas estén correctamente alineadas.
- Utilice la herramienta de selección rectangular para definir una región de interés (ROI) alrededor de la primera banda, incluyendo únicamente la banda correspondiente a LC3-II.
NOTA: La selección no debe tener un ancho superior al doble de su altura. Utilice las mismas dimensiones de ROI para todas las bandas incluidas en el análisis. - Seleccione Analizar → Geles → Seleccionar primera banda.
- Mueva la misma ROI a la siguiente banda y colóquela alrededor de la banda correspondiente.
- Seleccione Analizar → Geles → Seleccionar banda siguiente.
- Repita los pasos 6.6 y 6.7 hasta seleccionar la banda final.
- Genere los perfiles de intensidad (Analizar → Geles → Trazar bandas).
- Utilice la herramienta de línea recta para definir la línea base de cada pico y cuantifique la intensidad de la banda usando la herramienta de varita mágica.
- Normalice los valores respecto a un control de carga.
Resultados
Este protocolo describe la técnica de inmunotransferencia para monitorear la dinámica de LC3 en una línea celular de cáncer pancreático derivada de KPC bajo diferentes condiciones experimentales. El protocolo genera imágenes quimioluminiscentes de LC3 y de un control de carga. En este estudio, se utilizó actina como control de carga.
Se muestran dos aplicaciones representativas del protocolo. Primero, se compararon células KPC de control con células KPC tratadas con gemcitabina. La gemcitabina es un agente quimioterapéutico que previamente se ha informado que induce autofagia en células de cáncer pancreático19. Figura 2A muestra una inmunotinción representativa de LC3 con actina utilizada como control de carga. La cuantificación obtenida mediante análisis densitométrico en Fiji se presenta en la Figura 2B. Los niveles de LC3-II se normalizaron respecto a la actina. Se observó un aumento significativo del 59 % en los niveles de LC3-II en las células tratadas con gemcitabina, lo cual es consistente con la inducción de autofagia.
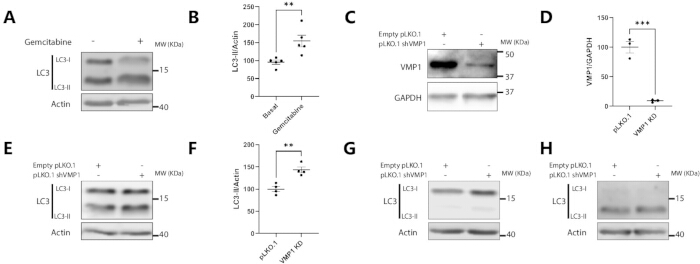
Figura 2: Análisis por inmunotransferencia de LC3 en células de cáncer pancreático derivadas de KPC: (A-B) efectos de la gemcitabina, (C-F) reducción de VMP1 y (G-H) condiciones técnicas subóptimas. (A–B) Niveles de LC3 en condiciones basales y tras tratamiento con gemcitabina. Las células de cáncer pancreático derivadas de KPC fueron tratadas con 20 µM de gemcitabina durante 24 h o dejadas sin tratar. Los lisados celulares fueron inmunomarcados para LC3 y actina como control de carga. (A) Se muestran imágenes representativas de inmunotransferencia de LC3 y actina. (B) El gráfico muestra la cuantificación de la densitometría de la banda LC3-II normalizada respecto a actina. Los datos se presentan como media ± EE. **p < 0,01 mediante la prueba t de Student no pareada. n = 4 por condición. (C–D) Validación del silenciamiento de VMP1 mediado por shRNA. Se lisaron y analizaron células que expresaban constitutivamente un plásmido pLKO.1 vacío (pLKO.1) o un plásmido pLKO.1 que codifica un shRNA dirigido contra la secuencia de VMP1 de ratón (VMP1 KD). (C) Imagen representativa de un inmunotransferencia de VMP1, con GAPDH como control de carga. (D) Cuantificación de los niveles de expresión de VMP1 que muestra una reducción de ~90 % en las células VMP1 KD. Los datos se presentan como media ± EE. ***p < 0,001 mediante la prueba t de Student no pareada. n=3 por condición. (E–F) Efecto de la reducción de VMP1 en la acumulación de LC3-II. Se lisaron células de cáncer pancreático derivadas de KPC que expresaban constitutivamente el plásmido pLKO.1 vacío o plásmidos shVMP1, y se inmunomarcaron para LC3 y actina como control de carga. (E) Se muestran imágenes representativas de inmunotransferencia de LC3 y actina. (F) El gráfico muestra la cuantificación de la densitometría de la banda LC3-II normalizada respecto a actina. Los datos se presentan como media ± EE. **p < 0,01 mediante la prueba t de Student no pareada. n = 5 por condición. (G-H). Experimentos subóptimos. Se lisaron células de cáncer pancreático derivadas de KPC que expresaban constitutivamente un plásmido pLKO.1 vacío o un plásmido shVMP1, y se inmunomarcaron para LC3 y actina como control de carga. (G) Imágenes representativas de inmunotransferencia de LC3 y actina obtenidas a partir de lisados preparados utilizando un tampón de lisis con baja concentración de detergente. (H) Imágenes representativas de inmunotransferencia de LC3 y actina, en las que LC3 fue detectado utilizando un anticuerpo primario que no garantiza reactividad con ratón. Haga clic aquí para ver una versión ampliada de esta figura.
Se realizó un segundo experimento utilizando células de cáncer pancreático derivadas de KPC que expresaban constitutivamente ya sea un plásmido pLKO.1 vacío (pLKO.1) o un plásmido pLKO.1 que codifica un shRNA dirigido contra la secuencia de VMP1 de ratón (VMP1 KD). Primero se verificó con éxito la reducción de VMP1. La figura 2C muestra un inmunoblot representativo de VMP1 con GAPDH como control de carga, y la figura 2D cuantifica una reducción del 90 % en la expresión de VMP1 en las células VMP1 KD. Luego se evaluaron los niveles de LC3-II en estas células. Se esperaba un aumento en la acumulación de LC3-II porque VMP1 es necesario para la formación del autofagossoma. Aunque la disminución de VMP1 no impide la conversión de LC3-I a LC3-II, altera la formación del autofagossoma y la posterior degradación del material transportado, lo que resulta en la acumulación de LC3-II11,15. En la figura 2E se muestran inmunoblot representativos de LC3 y actina, y en la figura 2F se presenta la cuantificación de la relación LC3-II/actina. Se observó un aumento significativo del 43 % en los niveles de LC3-II en las células VMP1 KD en comparación con los controles pLKO.1.
Estos resultados demuestran que el protocolo permite la detección y cuantificación confiable de los niveles de LC3-II en un modelo de células cancerosas pancreáticas derivadas de KPC. Sin embargo, desviaciones menores del protocolo pueden llevar a resultados subóptimos.
Dado que LC3-II es la forma lipidada de LC3, la extracción eficiente requiere un tampón de lisis que contenga una concentración adecuada de detergentes. La figura 2G muestra inmunotransferencias representativas de LC3 y actina obtenidas del mismo modelo experimental descrito en figura 2E–F (pLKO.1 versus VMP1 KD), pero utilizando un tampón de lisis con baja concentración de detergente (50 mM Tris-HCl, pH 7.4, 250 mM NaCl, 25 mM NaF, 2 mM EDTA y 0,1 % de Triton X-100). Aunque la señal de actina se mantuvo aceptable, la señal de LC3 fue subóptima. Solo la banda LC3-I fue claramente visible, mientras que la banda LC3-II fue apenas detectable y notablemente reducida en comparación con LC3-I.
Otra variable importante en la inmunotransferencia de LC3 es la selección del anticuerpo primario. Las inmunotransferencias mostradas en las Figuras 2A, 2B, 2E, 2F, y 2G se generaron utilizando un anticuerpo primario que produjo una detección robusta de LC3 en este sistema experimental. En contraste, la Figura 2H muestra una inmunotransferencia de LC3 generada con un anticuerpo primario diferente, que dio resultados subóptimos. Bajo estas condiciones, LC3-I fue apenas detectable, y la señal de LC3-II fue sustancialmente más débil que la obtenida con el anticuerpo utilizado en los experimentos anteriores.
Discusión
Este artículo describe la optimización técnica y la estandarización de un protocolo clásico de inmunodetección de LC3 en células de cáncer de páncreas derivadas de KPC. Dado el papel cada vez más reconocido de la autofagia y de las proteínas relacionadas con la autofagia en el desarrollo y progresión del cáncer de páncreas23, este flujo de trabajo estandarizado proporciona un enfoque confiable para monitorear la dinámica de LC3. El protocolo puede aplicarse para evaluar el depósito de autofagosomas bajo diversas condiciones experimentales, incluyendo quimioterapia, estrés oxidativo, hipoxia, estrés del retículo endoplásmico y manipulaciones genéticas como sobreexpresión génica, silenciamiento, eliminación génica o mutación. Además de evaluar la dinámica de LC3, el protocolo puede adaptarse para investigar interacciones directas o indirectas entre LC3 y proteínas de interés. Por ejemplo, puede realizarse la inmunoprecipitación de una proteína diana seguida de la detección de LC3 en el eluido utilizando este flujo de trabajo. Asimismo, la inmunodetección de LC3 puede aplicarse al análisis de vesículas extracelulares en el contexto de la autofagia secretora, un campo emergente con relevancia creciente en el adenocarcinoma ductal pancreático24,25.
Como se ilustra en la Figura 2G–H, varios pasos críticos deben controlarse cuidadosamente porque desviaciones menores pueden dar lugar a resultados subóptimos. Una de las consideraciones más importantes es la composición del tampón de lisis. La extracción eficiente de LC3-II requiere un tampón con una concentración relativamente alta de detergente, como el tampón RIPA o una formulación similar. Los tampones con menor contenido de detergente, comúnmente utilizados en protocolos de inmunoprecipitación para preservar las interacciones proteína-proteína, pueden no solubilizar adecuadamente LC3-II. En estas condiciones, LC3-I puede permanecer detectable, mientras que LC3-II se vuelve difícil o imposible de detectar, lo que compromete la interpretación de los datos.
Otro factor crítico es la selección de un anticuerpo primario validado para el sistema experimental en estudio. La evaluación técnica presentada aquí se limitó a la comparación de dos anticuerpos del mismo fabricante y no constituye una validación exhaustiva entre múltiples clones o proveedores. No obstante, los hallazgos ilustran cómo el rendimiento del anticuerpo puede variar considerablemente entre sistemas experimentales. Aunque no se pueden extraer conclusiones definitivas sobre la especificidad de especie a partir de esta comparación limitada, el rendimiento subóptimo del anticuerpo alternativo evaluado en este modelo resalta la importancia de la validación empírica frente a la dependencia de la reactividad cruzada predicha. Según la hoja técnica del fabricante, este anticuerpo está validado para muestras humanas, mientras que la reactividad en ratón se predice en base a la homología de secuencia. Aunque se observó una detección débil de LC3 en células de ratón (Figura 2H), el mismo anticuerpo previamente no generó señales detectables en tejido de páncreas de rata ni en células AR42J derivadas de rata (datos no mostrados). Estas observaciones subrayan la importancia de validar el rendimiento del anticuerpo dentro del modelo biológico específico que se investiga.
Otros parámetros que requieren optimización incluyen la composición del gel y las condiciones de electroforesis. Un gel de separación al 15 % proporciona una separación adecuada de LC3-I y LC3-II cuando la electroforesis se detiene entre el momento en que el frente de colorante alcanza la parte inferior del gel y antes de que el marcador de peso molecular de 10 kDa migre fuera del gel. En contraste, geles de porcentaje más bajo, como los geles al 7 %, no ofrecen una resolución suficiente. Las condiciones de transferencia son igualmente importantes porque LC3 es una proteína de bajo peso molecular. Un tiempo o corriente de transferencia insuficientes pueden reducir la eficiencia de transferencia, mientras que un tiempo o corriente excesivos pueden provocar pérdida de proteína a través de la membrana. El uso de membranas con tamaños de poro más grandes puede aumentar aún más este riesgo.
Pueden ser aceptables varias modificaciones al protocolo. Durante la recolección de células, se pueden usar raspadores celulares comerciales en lugar de puntas de pipeta P200. Las muestras pueden procesarse inmediatamente después de la lisis en lugar de congelarse, siempre que se mantengan sobre hielo. También pueden utilizarse geles de poliacrilamida comerciales, incluidos geles con gradiente del 4–20%. Se pueden usar reactivos alternativos para bloqueo, como leche de grado de laboratorio o BSA al 1% en TBS-T, para sustituir la solución de bloqueo descrita aquí. Asimismo, pueden emplearse buffers alternativos para la incubación de anticuerpos, siempre que se excluya el azida sódica de las soluciones que contienen anticuerpos secundarios conjugados con peroxidasa de rábano picante, ya que inhibe la actividad de la peroxidasa.
El protocolo también puede adaptarse a otros sistemas experimentales, incluyendo líneas celulares derivadas de diferentes tejidos y lisados de tejidos. Sin embargo, dado que el procedimiento fue optimizado principalmente en células de cáncer pancreático derivadas de KPC, su aplicabilidad más amplia debe considerarse cuidadosamente. Diferencias en el tipo celular, niveles basales de autofagia, perfiles de expresión proteica y composición de la muestra pueden afectar significativamente la detección de LC3. Por consiguiente, la adaptación a sistemas alternativos probablemente requerirá una optimización adicional, y siempre debe verificarse la compatibilidad del anticuerpo con la especie en estudio.
También debe enfatizarse una limitación fundamental del inmunotransferencia con LC3. La acumulación de LC3-II por sí sola no es suficiente para determinar de manera definitiva el estado de autofagia ni para distinguir entre una mayor inducción de la autofagia y una eliminación deficiente de los autofagosomas. Aunque la LC3-II se genera durante la inducción de la autofagia, también se degrada dentro de los lisosomas como parte del proceso autofágico. En consecuencia, tanto una autofagia potenciada como un flujo autofágico alterado en etapas posteriores a la conjugación de LC3 pueden provocar la acumulación de LC3-II26.
Esta limitación se ilustra con los experimentos mostrados en la Figura 2A, B y la Figura 2E, F, en los que se observaron niveles elevados de LC3-II en condiciones biológicamente distintas. En células tratadas con gemcitabina, la acumulación de LC3-II refleja la inducción activa de autofagia asociada con el aumento de la expresión de VMP1 y una conversión mejorada de LC3-I a LC3-II11,19. En contraste, la inhibición de VMP1 altera la maduración y eliminación del autofagosoma. En estas condiciones, la lipidación de LC3 permanece intacta, pero la degradación de LC3-II se ve comprometida debido a un flujo autofágico deficiente, lo que provoca la acumulación de LC3-II a pesar del deterioro en la progresión autofágica22. Dado que estos estados biológicos distintos no pueden diferenciarse únicamente mediante inmunotransferencia de LC3, se requieren enfoques complementarios, como el análisis de SQSTM1/p62 y ensayos de inhibición lisosomal, para una evaluación rigurosa del flujo autofágico26.
Cuando se combina con estos enfoques complementarios, el inmunoblot de LC3 sigue siendo uno de los métodos más accesibles e informativos para monitorear la autofagia. Las técnicas alternativas también presentan limitaciones. La cuantificación de puntos de LC3 mediante inmunofluorescencia27 no puede distinguir de manera confiable un aumento de la autofagia de un flujo alterado y puede resultar difícil de estandarizar y automatizar. Sin embargo, la inmunofluorescencia requiere menos material biológico y, por lo tanto, puede ser ventajosa para muestras clínicas limitadas, como biopsias humanas. Además, el inmunoblot de LC3 no requiere sistemas de reportero basados en transfección, evitando así artefactos asociados con la sobreexpresión de proteínas. Por último, la citometría de flujo convencional carece de resolución suficiente para distinguir LC3-I de LC3-II, lo que limita su utilidad para evaluar la actividad autofágica.
Divulgaciones
Los autores declaran que no existen conflictos de interés.
Agradecimientos
This work was supported by grants from the Consejo Nacional de Investigaciones Científicas y Técnicas (CONICET) [PIP 2021–2023 GI-11220200101549CO], the Agencia Nacional de Promoción de la Investigación, el Desarrollo Tecnológico y la Innovación (Agencia I+D+i) [PICT-2021-I-A-00328], the Universidad de Buenos Aires [UBACyT 2023–2025, 20020220300232BA], and the Fundación Norberto Quirno, Ciudad de Buenos Aires.
The authors gratefully acknowledge The Company of Biologists for financial support through a Traveling Fellowship awarded by Disease Models & Mechanisms. This support contributed to the work arising from the funded visit. Further information about the charity is available at https://www.biologists.com/.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Escáner C-DiGit Blot | LI-COR BioScience | 3600 | Utilizado para la detección quimioluminiscente en el paso 5.6 |
| Solución salina tamponada con fosfato 10x (PBS) | Corning | 46-013-CM | Utilizada para preparar PBS 1x estéril para lavar las células antes del paseo en el paso 1.1. |
| 2-Mercaptoetanol (β-mercaptoetanol) | Sigma-Aldrich (Merck) | M3148 | Utilizado para preparar el tampón de muestra Laemmli 4× para la preparación de muestras para SDS-PAGE en el paso 3.8. |
| Agitador 3D | DLAB | SK-D1807-E | Utilizado para incubar las membranas en soluciones de bloqueo, anticuerpos primarios y secundarios, así como durante los pasos de lavado (pasos 4.6, 4.8, 4.9, 4.11, 4.12 y 4.13). |
| Placa de cultivo celular de 6 pocillos | SORFA | SCP-11-006 | Utilizada para sembrar células en el paso 1.1. |
| Acrilamida | Sigma-Aldrich (Merck) | A8887 | Utilizada para preparar el gel de SDS-PAGE al 15 % necesario para los pasos 4.2–4.5. |
| Anti-gliceraldehído-3-fosfato deshidrogenasa, monoclonal de ratón, clon 6C5 | Merck Millipore | MAB374 | RRID:AB_2107445 Reactividad: humano, felino, cerdo, ratón, conejo, pez, canino, rata. Utilizado como control de carga para evaluar la eficiencia de silenciamiento (Figuras 2C y 2D). |
| Anticuerpo secundario anti-IgG de ratón, conjugado con HRP | Cell Signaling Technology | 7076 | RRID: AB_330924. Utilizado para preparar la solución de anticuerpo secundario en el paso 4.10. |
| Anticuerpo secundario anti-IgG de conejo, conjugado con HRP | Cell Signaling Technology | 7074 | RRID: AB_2099233. Utilizado para preparar la solución de anticuerpo secundario en el paso 4.10. |
| Anticuerpo anti-β-actina (ACTB), monoclonal de ratón, AC-15 | Sigma-Aldrich (Merck) | A1978 | RRID:AB_476744 Reactividad: oveja, carpa, felino, pollo, rata, ratón, Hirudo medicinalis, conejo, canino, cerdo, humano, bovino, cobaya. Utilizado como control de carga en las Figuras 2A, 2B, 2E, 2F, 2G y 2H. |
| Azul de bromofenol | Sigma-Aldrich (Merck) | B0126 | Utilizado para preparar el tampón de muestra Laemmli 4× para la preparación de muestras para SDS-PAGE en el paso 3.8. |
| Ácido etilendiaminotetraacético (EDTA) | Sigma-Aldrich (Merck) | E9884 | Utilizado para preparar el tampón de lisis con bajo contenido de detergente (Figuras 2G y 2H). |
| Suero bovino fetal | NATOCOR | Lintc-634 | Utilizado para preparar el medio completo para el cultivo celular (pasos 1 y 2). |
| Fiji | Software de código abierto | N/A | Software para análisis de imágenes |
| Glicerol | Sigma-Aldrich (Merck) | G5516 | Utilizado para preparar el tampón de muestra Laemmli 4× para la preparación de muestras para SDS-PAGE en el paso 3.8. |
| Glicina | Sigma-Aldrich (Merck) | G7126 | Utilizada para preparar el tampón de transferencia en el paso 4.5. |
| Membrana PVDF Immun-Blot, rollo, 0,2 µm, 26 cm x 3,3 m | Bio-Rad | 1620177 | Utilizada para la transferencia en el paso 4.5. |
| Tampón de bloqueo Intercept (TBS) | LI-COR BioScience | 927-60001 | Utilizado para el bloqueo en el paso 4.6, y para preparar las soluciones de anticuerpos primarios y secundarios en los pasos 4.7 y 4.10. |
| Anticuerpo monoclonal de conejo LC3 A/B (D3U4C) | Cell Signaling Technology | 12741 | RRID: AB_2617131 Reactividad: humano, ratón, conejo. Utilizado para preparar la solución de anticuerpo primario en el paso 4.7. |
| Anticuerpo monoclonal de conejo LC3B (D11) | Cell Signaling Technology | 3868S | RRID: AB_2137707 Reactividad: Humano. Utilizado como anticuerpo primario LC3 en la Figura 2H. |
| Metanol | Anedra | 6197 | Utilizado para activar la membrana PVDF y preparar el tampón de transferencia en el paso 4.5. |
| Unidad de filtro de jeringa Millex-HV, PVDF 0,45 μm | Merck Millipore | SLHV033RS | Utilizada para filtrar el medio que contiene lentivirus (paso 1.1). |
| Baño seco digital mini | Labnet International, Inc. | D 5060075 | Utilizado para calentar las muestras en el paso 4.1. |
| Sistema de electroforesis Mini-PROTEAN Tetra | Bio-Rad | 1658025FC | Utilizado para SDS-PAGE y transferencia en los pasos 4.2, 4.3 y 4.5. |
| MISSION shRNA dirigida contra Vmp1 de ratón (TRCN0000279038) | Sigma-Aldrich (Merck) | SHCLND-NM_029478 | Utilizada para generar líneas celulares estables con silenciamiento de VMP1 (paso 1.1). |
| N,N'-Metilenbisacrilamida (Bis-acrilamida) | Sigma-Aldrich (Merck) | M7279 | Utilizada para preparar el gel de SDS-PAGE al 15 % necesario para los pasos 4.2–4.5. |
| Nabigem 1g Gemcitabina | Microsules Argentina | M3060584-3 | Utilizada para el tratamiento con gemcitabina en el paso 2. |
| Solución Pen-Estrepto (Pen-Strep) | Sartorius | 03-031-1B | Utilizada para preparar el medio completo para el cultivo celular (pasos 1 y 2). |
| Kit Pierce para ensayo de proteína BCA | Thermo Fisher Scientific | 23227 | Utilizado para la cuantificación de proteínas (paso 3.7). |
| Tabletas Pierce de inhibidores de proteasas | Thermo Fisher Scientific | A32953 | Utilizadas para preparar el tampón de lisis en el paso 3.2. |
| Clorhidrato de polietilenimina MAX, lineal (PEI MAX), PM 40.000 | Polysciences | 24765-1 | Utilizado para la transfección con plásmidos lentivirales (paso 1.1). |
| Cloruro de potasio (KCl) | Sigma-Aldrich (Merck) | P9333 | Utilizado para preparar PBS en el paso 3.1. |
| Fosfato monobásico de potasio (KH2PO4) | Sigma-Aldrich (Merck) | P5655 | Utilizado para preparar PBS en el paso 3.1. |
| Fuente de alimentación PowerPac Basic | Bio-Rad | 1645050 | Utilizada para SDS-PAGE y transferencia en los pasos 4.2, 4.3 y 4.5. |
| Escala de proteínas preteñida | Genbiotech | PM201 | Utilizada para SDS-PAGE en los pasos 4.2 - 4.4. |
| Puromicina (solución 10 mg/mL) | InvivoGen | ant-pr-1 | Utilizada para la selección de células transducidas de forma estable (paso 1.1). |
| RPMI 1640 | Genbiotech | MC2012L | Utilizado para preparar el medio completo para el cultivo celular (pasos 1 y 2). |
| Cloruro de sodio (NaCl) | Sigma-Aldrich (Merck) | S9888 | Utilizado para preparar PBS en el paso 3.1, los tampones de lisis en el paso 3.2 y TBS en el paso 4.9. |
| Dodecilsulfato de sodio (SDS) | Sigma-Aldrich (Merck) | L3771 | Utilizado para preparar el tampón de lisis en el paso 3.2 y el gel de SDS-PAGE al 15 % necesario para los pasos 4.2–4.5. |
| Fluoruro de sodio (NaF) | Sigma-Aldrich (Merck) | S7920 | Utilizado para preparar el tampón de lisis con bajo contenido de detergente (Figuras 2G y 2H). |
| Fosfato dibásico de sodio (Na2HPO4) | Sigma-Aldrich (Merck) | S9763 | Utilizado para preparar PBS en el paso 3.1. |
| Centrífuga Sorval ST 16R | Thermo Fisher Scientific | 75004380 | Utilizada para centrifugar células en el paso 1.1 y lisados en el paso 3.5. |
| Sustrato quimioluminiscente SuperSignal West Pico PLUS | Thermo Fisher Scientific | 34577 | Utilizado para la detección quimioluminiscente en el paso 5.1. |
| Cabina de seguridad biológica Thermo Scientific 1300 Series A2, Tipo A2 | Thermo Fisher Scientific | 1386 | Utilizada para el manejo estéril de cultivos celulares en los pasos 1.1, 1.3 y 2.1. |
| Incubadora de CO2 Thermo Scientific BB 150 | Thermo Fisher Scientific | BB150-2TCS-L | Utilizada para el cultivo celular en los pasos 1.2 y 2.2. |
| Anticuerpo monoclonal de conejo TMEM49/VMP1 (D1Y3E) | Cell Signaling Technology | 12929 | RRID: AB_2714018 Reactividad: humano, ratón, rata. Utilizado como anticuerpo primario para verificar la eficiencia de silenciamiento de VMP1 en las Figuras 2C y 2D. |
| Tris base | Sigma-Aldrich (Merck) | T1503 | Utilizado para preparar el tampón de transferencia en el paso 4.5. |
| Clorhidrato de Tris (Tris-HCl) | Sigma-Aldrich (Merck) | T3253 | Utilizado para preparar los tampones de lisis en el paso 3.2, el tampón de muestra Laemmli 4× en el paso 3.8, el gel de SDS-PAGE al 15 % necesario para los pasos 4.2–4.5, y TBS en el paso 4.9. |
| Tritón X-100 | Sigma-Aldrich (Merck) | T8787 | Utilizado para preparar los tampones de lisis en el paso 3.2. |
| Tripsina EDTA | Gibco | 11570626 | Utilizada para el paseo celular en el paso 1.1. |
Referencias
- Grasso D, Renna FJ, Vaccaro MI. Initial steps in mammalian autophagosome biogenesis. Front Cell Dev Biol. 2018;6:146.
- Galluzzi L, et al. Molecular definitions of autophagy and related processes. EMBO J. 2017;36(13):1811–1836.
- Wang Q, Sun Y, Li TY, Auwerx J. Mitophagy in the pathogenesis and management of disease. Cell Res. 2026;36(1):11–37.
- Debnath J, Gammoh N, Ryan KM. Autophagy and autophagy-related pathways in cancer. Nat Rev Mol Cell Biol. 2023;24(8):560–575.
- Altalbawy FMA, et al. Deciphering autophagy signaling in cancer: A paradigm shift from molecular classifications to clinical innovations. Semin Oncol. 2025;52(5):152397.
- Stoffel EM, Brand RE, Goggins M. Pancreatic cancer: Changing epidemiology and new approaches to risk assessment, early detection, and prevention. Gastroenterology. 2023;164(5):752–765.
- Kugel S, et al. SIRT6 suppresses pancreatic cancer through control of Lin28b. Cell. 2016;165(6):1401–1415.
- Hingorani SR, et al. Trp53R172H and KrasG12D cooperate to promote chromosomal instability and widely metastatic pancreatic ductal adenocarcinoma in mice. Cancer Cell. 2005;7(5):469–483.
- Molejon MI, Ropolo A, Re AL, Boggio V, Vaccaro MI. The VMP1-Beclin 1 interaction regulates autophagy induction. Sci Rep. 2013;3:1055.
- Ropolo A, et al. The pancreatitis-induced vacuole membrane protein 1 triggers autophagy in mammalian cells. J Biol Chem. 2007;282(51):37124–37133.
- Zhao YG, et al. The ER-localized transmembrane protein EPG-3/VMP1 regulates SERCA activity to control ER-isolation membrane contacts for autophagosome formation. Mol Cell. 2017;67(6):974–989.e6.
- Vanasco V, Ropolo A, Grasso D, Alvarez S, Vaccaro MI. VMP1-dependent selective mitophagy and mitochondrial fragmentation are protective cellular mechanisms in pancreatitis. Pancreatology. 2018;18(4 Suppl):S86–S87.
- Grasso D, et al. Zymophagy, a novel selective autophagy pathway mediated by VMP1-USP9x-p62, prevents pancreatic cell death. J Biol Chem. 2011;286(10):8308–8324.
- Ghanbarpour A, Valverde DP, Melia TJ, Reinisch KM. A model for a partnership of lipid transfer proteins and scramblases in membrane expansion and organelle biogenesis. Proc Natl Acad Sci U S A. 2021;118(16):e2101562118.
- Renna FJ, Gonzalez CD, Vaccaro MI. Decoding the versatile landscape of autophagic protein VMP1 in cancer: A comprehensive review across tissue types and regulatory mechanisms. Int J Mol Sci. 2024;25(7):3758.
- Lo Ré AE, et al. Novel AKT1-GLI3-VMP1 pathway mediates KRAS oncogene-induced autophagy in cancer cells. J Biol Chem. 2012;287(30):25325–25334.
- Gilabert M, et al. Novel role of VMP1 as modifier of the pancreatic tumor cell response to chemotherapeutic drugs. J Cell Physiol. 2013;228(9):1834–1843.
- Loncle C, et al. The pancreatitis-associated protein VMP1, a key regulator of inducible autophagy, promotes Kras(G12D)-mediated pancreatic cancer initiation. Cell Death Dis. 2016;7(7):e2295.
- Ropolo A, et al. A novel E2F1-EP300-VMP1 pathway mediates gemcitabine-induced autophagy in pancreatic cancer cells carrying oncogenic KRAS. Front Endocrinol (Lausanne). 2020;11:411.
- Tanida I, Ueno T, Kominami E. LC3 and autophagy. Methods Mol Biol. 2008;445:77–88.
- Kabeya Y, et al. LC3, a mammalian homologue of yeast Apg8p, is localized in autophagosome membranes after processing. EMBO J. 2000;19(21):5720–5728.
- Mizushima N, Yoshimori T. How to interpret LC3 immunoblotting. Autophagy. 2007;3(6):542–545.
- Li J, Chen X, Kang R, Zeh HJ, Klionsky DJ, Tang D. Regulation and function of autophagy in pancreatic cancer. Autophagy. 2021;17(11):3275–3296.
- Moresco P, et al. Signal peptide-independent secretion of keratin-19 by pancreatic cancer cells. Proc Natl Acad Sci U S A. 2025;122(27):e2426218122.
- Gonzalez CD, Resnik R, Vaccaro MI. Secretory autophagy and its relevance in metabolic and degenerative disease. Front Endocrinol (Lausanne). 2020;11:266.
- Klionsky DJ, et al. Guidelines for the use and interpretation of assays for monitoring autophagy (4th edition). Autophagy. 2021;17(1):1–382.
- Renna FJ, Herrera Lopez M, Manifava M, Ktistakis NT, Vaccaro MI. Evaluating autophagy levels in two different pancreatic cell models using LC3 immunofluorescence. J Vis Exp. 2023;(194):e65005. doi:10.3791/65005.
Reimpresiones y permisos
Este artículo ha sido publicado
Video próximamente