Este protocolo describe el aislamiento, purificación y cultivo de células mieloides/microglía humanas altamente puras a partir de tejido cerebral post mortem obtenido mediante autopsia rápida de personas con y sin virus de inmunodeficiencia humana tipo 1 (VIH-1). Proporciona una plataforma ex vivo robusta para investigar la biología de las células mieloides/microgliales, los reservorios cerebrales de VIH, la neuroinflamación y las estrategias de cura del VIH.
Artículo de método
Aislamiento de microglia cerebral para estudiar la persistencia del virus de la inmunodeficiencia humana 1
* These authors contributed equally
En este artículo
Resumen
Resumen
Hemos establecido y optimizado un protocolo robusto para aislar, cultivar y estudiar células mieloides cerebrales humanas primarias (BrMCs) a partir de tejidos cerebrales post mortem obtenidos mediante autopsia rápida de personas con o sin VIH-1 (HIV), en el cual >El 97,3 % de las BrMC son microglía cerebral (MG). Por lo tanto, nos referimos a estas BrMC aisladas como MG o BrMC/MG para representar mejor las poblaciones celulares. Este método permite un análisis exhaustivo ex vivo investigación de la biología de la microglía, incluyendo sus funciones en el mantenimiento de reservorios de VIH en el cerebro, la mediación de la neuroinflamación y la contribución al daño neuronal, así como la evaluación de estrategias de cura del VIH.
Para preservar la viabilidad celular y la integridad del ARN y las proteínas, los tejidos cerebrales se obtuvieron dentro de las 6 h posteriores a la muerte, tras una autopsia de investigación rápida. Varias regiones, incluidas las cortezas frontal, parietal y occipital, el hipocampo y los ganglios basales, se procesaron mediante digestión enzimática y disociación mecánica controlada, seguidas de centrifugación en gradiente de densidad para generar suspensiones celulares individuales viables con eliminación eficiente de restos de mielina y lisis de eritrocitos. Luego, los BrMC/MG se purificaron utilizando un enfoque de aislamiento en dos pasos, que consiste en el agotamiento de linfocitos T CD3⁺ seguido del enriquecimiento con perlas magnéticas CD11b⁺ para garantizar pureza y especificidad.
Las células mieloides purificadas se cultivaron en condiciones definidas suplementadas con M-CSF para mantener la viabilidad y la integridad funcional durante cultivos prolongados ex vivo. Esta plataforma optimizada proporciona un sistema confiable y escalable para análisis moleculares, inmunológicos y virológicos posteriores de los reservorios cerebrales de VIH y los mecanismos relacionados en BrMCs/MG.
Introducción
Las células mieloides cerebrales (BrMC) o microglía son las principales células inmunitarias innatas del sistema nervioso central (SNC)1,2,3. En condiciones sanas, monitorean constantemente el cerebro y ayudan en tareas como la poda sináptica, la eliminación de desechos y el soporte a las neuronas4,5,6. Cuando existe una enfermedad, la microglía se activa inmunológicamente, lo que provoca neuroinflamación, un proceso que desempeña un papel esencial en la neurodegeneración en diversas enfermedades del SNC7,8,9. Durante la infección por VIH-1 (VIH), las BrMC o microglía constituyen el principal reservorio del VIH en el cerebro, junto con las células T del SNC y posiblemente los astrocitos; estos últimos probablemente tienen un papel menor como reservorios del VIH en el SNC. La microglía alberga ADN proviral del VIH integrado y latente, pero mantiene una expresión baja de ARN del VIH, a pesar de una terapia antirretroviral (TAR) efectiva10,11,12. La infección persistente por VIH en las BrMC o microglía conduce a inflamación crónica y se asocia con el trastorno neurocognitivo asociado al VIH (HAND), incluso bajo la TAR moderna, evidenciado por síntomas cognitivos, conductuales y motores en hasta el 50 % de las personas con VIH (PVIH)13,14,15,16. Por lo tanto, comprender la función de la microglía persistentemente infectada por el VIH es una de las claves para conocer el mecanismo molecular de la infección y latencia del VIH, la comunicación entre la microglía y los astrocitos y otras células del SNC, el daño neuronal y el proceso de la enfermedad HAND, lo cual es fundamental para identificar dianas terapéuticas contra el neuroVIH11,12,17.
Sin embargo, existen desafíos técnicos al estudiar las microglías utilizando tejido cerebral humano post mortem. Un alto contenido de mielina, especialmente en la sustancia blanca, puede atrapar células y obstruir los filtros, lo que reduce el rendimiento celular a menos que la mielina se elimine antes de la selección inmunomagnética18,19. Después de la muerte del paciente con VIH, los marcadores de superficie celular, como TMEM119 y P2RY12, pueden degradarse, dificultando así la identificación precisa de las microglías20,21. Además, las células mieloides en cerebros infectados por el VIH incluyen monocitos periféricos y macrófagos residentes en tejidos que comparten algunos marcadores comunes con las microglías; por lo tanto, se requieren pasos adicionales para enriquecer la población pura de BrMCs, particularmente microglías22,23.
Los enfoques actuales para aislar microglía humana no funcionan bien con tejidos post mortem infectados por VIH. La clasificación de células activada por fluorescencia ofrece resultados exhaustivos, pero requiere equipos costosos, lleva más tiempo y produce un bajo rendimiento celular a partir de pequeñas cantidades de valiosos tejidos cerebrales humanos24,25. La inmunopanning es específica, pero no puede procesar muestras de muchas regiones cerebrales simultáneamente y requiere un tiempo prolongado de incubación, lo cual no es adecuado para tejidos post mortem que necesitan un procesamiento rápido tras un envío nocturno26,27. Además, ninguno de estos métodos permite recuperar tanto linfocitos T como células mieloides a partir de la misma muestra, lo cual es necesario para obtener un perfil inmunitario completo de las células del SNC infectadas por VIH17,28.
Este protocolo proporciona un enfoque reproducible, confiable y eficiente para el aislamiento y enriquecimiento de microglía y otras células inmunitarias del SNC a partir de tejidos cerebrales humanos postmortem infectados con VIH. La disociación mecánica controlada combinada con digestión enzimática suave (por ejemplo, TrypLE Express y DNasa I) puede preservar en gran medida los antígenos de superficie y minimizar la agregación celular29,30. La mielina se elimina mediante centrifugación en gradiente de densidad de Percoll, seguida de separación inmunomagnética de células T CD3⁺ y células mieloides CD11b⁺31,32. Es importante destacar que el uso de condiciones enzimáticas suaves preserva marcadores mieloides clave, incluidos CD11b y CD68, así como biomarcadores específicos de microglía como TMEM119 y P2RY12, lo que nos permite caracterizar con precisión las células del SNC y realizar análisis de vías de señalización posteriores33. El enfoque de selección en dos pasos también genera una fracción altamente pura de células T CD3⁺ adecuada para estudios virológicos e inmunológicos, lo cual es particularmente relevante para la NeuroVIH, dada la participación de las células T en el reservorio viral del SNC y en la lesión neurológica asociada al VIH tras la infiltración de células T en el cerebro34,35.
En general, este enfoque secuencial en dos pasos —la eliminación inicial de células T CD3⁺ seguida del enriquecimiento de células mieloides CD11b⁺ a partir de la fracción negativa para CD3— mejora tanto la pureza celular como el rendimiento de células del SNC, al tiempo que maximiza el uso de estas muestras tisulares valiosas, limitadas y preciadas. Las células aisladas son adecuadas para una amplia gama de aplicaciones posteriores, incluidas secuenciación de ARN a nivel masivo y a nivel de célula individual, citometría de flujo, ensayos funcionales y análisis virológicos, incluida la cuantificación de ADN/ARN del VIH y ensayos de brote viral para determinar los reservorios virales con capacidad de replicación dentro de las células inmunitarias residentes en el SNC17,36,37.
Este protocolo es compatible con laboratorios equipados para el procesamiento de tejido cerebral postmortem bajo condiciones BSL-2+, ya que muchas personas con VIH (PWH) están bajo supresión con terapia antirretroviral (ART) o presentan solo una interrupción a corto plazo de la ART al final de la vida. Además, solo requiere plataformas estándar de separación inmunomagnética y citometría de flujo para validar la especificidad de las células monocíticas cerebrales (BrMC)/microglia tras el aislamiento. Con modificaciones menores, también puede adaptarse al estudio de enfermedades del sistema nervioso central como la enfermedad de Alzheimer, la esclerosis múltiple, el COVID prolongado y la lesión cerebral traumática38,39,40. Este protocolo también se ha optimizado para aislar células cerebrales de primates no humanos (NHP) infectados con SIVmac251 o SIVmac23912,41, así como de modelos de ratones humanizados de infección o latencia por VIH, proporcionando un modelo fisiológicamente relevante de la infección por VIH en el cerebro. A diferencia de los cerebros humanos, estos modelos animales son más accesibles y ofrecen un recurso complementario valioso para estudios mecanicistas y traslacionales de la infección por VIH, la latencia del VIH y el neuroVIH asociado.
Protocolo
NOTA: Manipule todos los tejidos humanos y de primates no humanos bajo condiciones de BSL-2. Utilice equipo de protección personal adecuado, incluyendo bata, guantes, mascarilla y protector facial, durante el tratamiento con Percoll, tampón ACK y DMSO. Deseche los residuos químicos y biológicos según las directrices institucionales. Enjuague todo el equipo desechable utilizado durante la disociación del tejido, como escalpelos, pipetas y placas de Petri, con lejía al 10 % antes de desecharlos en bolsas para residuos biológicos. Enjuague el equipo reutilizable, como pinzas y tijeras, con SDS al 10 % antes de lavarlo y autoclavarlo.
1. Recolección del tejido cerebral
- Muestras humanas
NOTA: Las muestras de tejido humano utilizadas en este estudio se obtuvieron bajo protocolos aprobados por el Comité de Revisión Institucional (IRB) de la Universidad de California, San Diego (UCSD; IRB No. 160563)12. Los donantes humanos eran personas que vivían con VIH y que recibían terapia antirretroviral (TAR). Las características clave de los donantes, incluyendo edad, sexo, intervalo post mortem (IPM) y estado respecto a la TAR, se resumen brevemente aquí, y estas características han sido descritas detalladamente en una publicación previa12.- Recolectar los tejidos dentro de las ≤6 h posteriores a la muerte para preservar la viabilidad celular y la integridad del ARN, y enviarlos al laboratorio de procesamiento dentro de las 24 h.
- Muestras de primates no humanos (PNH)
NOTA: Los macacos rhesus (Macaca mulatta) fueron alojados en el Centro Nacional de Investigación sobre Primates de Emory (ENPRC, PROTO201700286) o en el Centro Nacional de Investigación sobre Primates de California (CNPRC, UCD IACUC #22832). El cuidado de los animales y los procedimientos experimentales se llevaron a cabo de acuerdo con las regulaciones de los respectivos Comités Institucionales para el Cuidado y Uso de Animales de Laboratorio (IACUC) y cumplieron con las directrices institucionales y federales. Todas las instalaciones para el cuidado de animales están acreditadas por el Departamento de Agricultura de los Estados Unidos y por la Asociación para la Evaluación y Acreditación del Cuidado de Animales de Laboratorio Internacional (AAALAC).- Recolectar los tejidos inmediatamente después de la necropsia12.
- Recolección de tejidos
NOTA: Realizar todo el manejo en barquillas previamente enfriadas colocadas sobre hielo.- Recolectar de 2 a 20 g por región cerebral (por ejemplo, corteza frontal, parietal, occipital, hipocampo, ganglios basales), dependiendo de la disponibilidad del tejido.
- Colocar los tejidos en DMEM/F12 frío suplementado con TAR: 100 nM Nevirapina, 200 nM Raltegravir, 25 nM Darunavir. Mantener los tejidos a 4 °C.
- Condiciones de transporte
- Almacenar las muestras en tubos sellados a 4 °C sobre hielo.
- Que personal certificado transporte los tubos bajo las regulaciones UN3373 Categoría B12. Enviar por mensajería nocturna sobre hielo al laboratorio de procesamiento.
2. Preparación del tejido
- Transfiera el tejido a tubos de 50 mL. Lave el tejido 10–15 veces invirtiendo suavemente los tubos con 20–40 mL de HBSS frío con DNasa (10 U/mL) hasta que el sobrenadante esté claro.
NOTA: Esto elimina sangre, restos celulares y contaminantes; asegúrese de que el volumen sea suficiente para que los fragmentos de tejido se muevan libremente durante el lavado. - Retire y deseche las meninges y los vasos grandes utilizando fórceps estériles.
- Transfiera el tejido a una nueva placa de Petri y registre el peso del tejido (excluyendo el recipiente) por región cerebral.
- Desgarre el tejido en fragmentos de ~1–2 mm con un par de fórceps estéril en ~10 mL de HBSS + DNasa I (10 U/mL).
NOTA: La picadura puede realizarse en la placa de Petri utilizando un bisturí.
3. Digestión enzimática
- Prepare la mezcla de digestión mezclando 10 mL de enzima recombinante de disociación celular y DNasa I (10 U/mL final).
- Caliente previamente el agitador rotatorio a 37 °C y la enzima recombinante de disociación celular con DNasa I (10 U/mL final) en un incubador a 37 °C.
- Transfiera el tejido en la mezcla de digestión del paso 3.1 a matraces (T150 para volúmenes > 50 mL; matraces más pequeños si <50 mL) e incube en agitadores rotatorios a: 37 °C, 150 rpm, 30 min.
- Triture suavemente usando pipetas de 10 mL y luego de 5 mL para aspirar y dispensar.
NOTA: Evite pipetear con fuerza. - Incube durante 5 min a temperatura ambiente para permitir que el tejido se sedimente.
- Recolección de células
- Recoja el sobrenadante en un tubo de 50 mL; esta es la Recolección n.º 1. Añada 10 % de FBS al sobrenadante recolectado para inhibir la actividad enzimática.
- Resuspenda el tejido restante en HBSS + DNasa I (10 U/mL) + 10 % de FBS (10 mL/g de tejido). Triture suavemente y filtre a través de tamices de 70–100 µm.
NOTA: Si la digestión enzimática es adecuada, todo el tejido pasará a través del tamiz. - Centrifugue a 500 × g, a temperatura ambiente, durante 10 min; esta es la Recolección n.º 2.
NOTA: Para maximizar el rendimiento, permita que la suspensión se sedimente y transfiera únicamente el sobrenadante a un tubo nuevo.
- Procesamiento final
- Centrifugue las recolecciones (C1 y C2) a 500 × g durante 10 min.
- Deseche los sobrenadantes. Combine los pellets celulares de C1 y C2 en un solo tubo.
4. Eliminación de restos de mielina (gradiente de Percoll)
- Prepare Percoll isotónico (SIP) mezclando 9 partes de Percoll con 1 parte de HBSS 10x. Prepare suficiente para tener aproximadamente 2,5 mL/g de tejido.
- Prepare una solución de trabajo de Percoll al 35 % mezclando 3,5 mL de SIP con 5,5 mL de HBSS 1x. Prepare suficiente para tener aproximadamente 4,5 mL/g de tejido.
- Separación por densidad
- Reuspenda el pellet celular obtenido en el paso 3.7.2 en Percoll al 35 %. Utilice aproximadamente 4,5 mL de Percoll al 35 % por gramo del peso original del tejido (es decir, el peso del tejido medido antes de la disociación).
- NOTA: Re suspenda las células con Percoll al 35 % en un tubo de 50 mL (máximo 30 mL por tubo). Si los tejidos son grandes, divida las células en varios tubos de 50 mL.
- Superponga cuidadosamente cada tubo con 10 mL de HBSS 1x. Incube durante 5 min en hielo o a 4 °C.
- Centrifugue a 800 × g, 45 min, 4 °C (sin freno durante la desaceleración).
- Recuperación de capas
- Descarte cuidadosamente el sobrenadante y la capa de mielina sin perturbar la interfase inferior.
- Recoja el pellet y la interfase (por debajo de la capa de mielina, que contiene células cerebrales mixtas y la fracción de Percoll) en un nuevo tubo cónico de 50 mL para evitar la transferencia de residuos.
- Dilución y lavado
- Añada HBSS en una proporción de 3:1 (por ejemplo, 30 mL de HBSS por cada 10 mL de suspensión recolectada) para diluir el Percoll (dilución ~3x).
- Centrifugue a 1.000 × g, 10 min a 4 °C (utilice freno y aceleración completos).
- Elimine completamente el sobrenadante.
- Lisis de glóbulos rojos y conteo celular
- Trate el pellet celular del paso 4.5.3 con tampón ACK (5 mL, 10 min, 37 °C).
- CUente las células viables utilizando azul de tripano.
- NOTA: Rendimiento esperado: ~0,1–1 × 10⁶ células del SNC/g de tejido, dependiendo del estado de los tejidos.
- Añada 10 mL de PBS para inactivar el tampón de lisis ACK. Centrifugue a 500 × g durante 5 min.
NOTA: Punto de parada opcional: Las células pueden cultivarse durante la noche antes de la clasificación a una densidad de 0,5–1 × 10⁶ células/mL de medio (DMEM/F-12, suplemento de glutamina con piruvato sódico (500 mL), 10 % de SFB inactivado por calor, solución tampón HEPES 1x, Antibiótico-Antimicótico 1x (5,5 mL de stock 100x), 10 ng/mL de MCSF (stock 1.000x).
Tras completar los pasos descritos anteriormente de disociación del tejido, lisis de glóbulos rojos, conteo celular y cultivo opcional durante la noche, las poblaciones de células CD3+ y CD11b+ se aislaron utilizando kits comerciales de aislamiento celular según las instrucciones del fabricante. La información detallada sobre los kits, reactivos y el procedimiento completo de aislamiento se proporciona en la Tabla de materiales, con una breve descripción general del flujo de trabajo de aislamiento que se ofrece a continuación.
5. Aislamiento de linfocitos T CD3⁺ (selección positiva)
NOTA: Aísle los CD3+ de la suspensión de células individuales preparada primero, utilizando un kit de selección positiva inmunomagnética en formato de liberación para CD3 (consulte la Tabla de materiales). Guarde tanto las fracciones CD3+ como CD3- obtenidas en este paso. La fracción CD3- es necesaria para el paso 6.
- Preparar el tampón de liberación.
- Preparar el tampón de liberación 1x diluyendo el concentrado de tampón de liberación 40x en tampón de separación celular el día de uso y mantenerlo a 4–6 °C o sobre hielo.
NOTA: Preparar 2,5 mL de tampón de liberación 1x por cada muestra que se procese.
- Preparar el tampón de liberación 1x diluyendo el concentrado de tampón de liberación 40x en tampón de separación celular el día de uso y mantenerlo a 4–6 °C o sobre hielo.
- Preparar la muestra celular y etiquetarla con el cóctel de selección.
- ReSuspender el sedimento celular del paso 4.6.3 a 1 × 10⁸ células/mL en tampón de separación celular en un tubo de poliestireno redondo de 5 mL.
- Añadir el cóctel de selección CD3 a la muestra a razón de 100 µL por mL de muestra. Mezclar suavemente la muestra e incubar durante 3 min a temperatura ambiente.
- Etiquetar la muestra con partículas magnéticas.
- Vortexar las partículas magnéticas durante 30 s inmediatamente antes de su uso. Añadir las partículas magnéticas a la muestra a razón de 100 µL por mL por muestra. Mezclar suavemente la muestra e incubar durante 3 min a temperatura ambiente.
- Llevar la muestra a un volumen final de 2 mL con tampón de separación celular y mezclar pipeteando suavemente la suspensión hacia arriba y hacia abajo dos o tres veces.
- Aislar la reacción CD3+ mediante separación magnética.
- Colocar el tubo de muestra sin tapar en el separador celular magnético e incubar durante 5 min a temperatura ambiente.
- NOTA: Las células unidas a las partículas magnéticas constituyen la fracción CD3+ y permanecen adheridas a la pared del tubo dentro del campo magnético; el sobrenadante no unido constituye la fracción CD3-.
- Sin retirar el tubo del separador magnético, pipetear el sobrenadante hacia un tubo cónico limpio de 15 mL, etiquetado para la fracción CD3-.
- Retirar el tubo del separador magnético y resuspender suavemente las células retenidas en 2 mL de tampón de separación celular.
- Repetir los pasos 5.4.1 a 5.4.3 para un total de tres separaciones magnéticas de 5 min, agrupando todos los sobrenadantes en el mismo tubo de fracción CD3-.
- Liberar la fracción CD3+ de las partículas magnéticas.
- Añadir 2,5 mL de tampón de liberación 1x (preparado en el paso 5.1.2) a las células retenidas y mezclar pipeteando suavemente la suspensión hacia arriba y hacia abajo dos o tres veces. Incubar la suspensión durante 3 min a temperatura ambiente.
- Colocar el tubo sin tapar en el separador celular magnético e incubar durante 5 min a temperatura ambiente.
- Sin retirar el tubo del separador magnético, pipetear el sobrenadante hacia un tubo cónico limpio de 15 mL, etiquetado para la fracción CD3+.
NOTA: El tampón de liberación separa las partículas magnéticas de las células etiquetadas: el sobrenadante resultante es la fracción CD3+ purificada, mientras que las partículas magnéticas residuales permanecen unidas a la pared del tubo en el campo magnético y se descartan.
- Recuento celular y criopreservación
- Contar las células y almacenar la alícuota CD3+ mediante congelación rápida en -80 °C después de criopreservar las células restantes en una mezcla crioprotectora (90% de SFB + 10% de DMSO) durante 24 h en un medio de congelación basado en isopropanol, y luego transferir la muestra a nitrógeno líquido.
6. Aislamiento de células mieloides CD11b⁺ (a partir de la fracción CD3⁻)
NOTA: La fracción CD3- retenida del paso 5.4.4 se procesó mediante un segundo paso de selección positiva inmunomagnética para aislar células mieloides CD11b+ utilizando microperlas magnéticas anti-CD11b y un separador magnético en formato de columna (ver la Tabla de materiales).
- Preparar el tampón de separación y determinar el número de células.
- Prepare el tampón de separación al 1x basado en BSA diluyendo la concentración 20x en solución isotónica de lavado y mantenga el tampón preparado frío (4–8 °C) hasta su uso.
- Determine el número total de células en la fracción CD3 utilizando un hemocitómetro o un contador automático de células.
- Etiquetar las células con microesferas magnéticas anti-CD11b.
- Centrifugue la suspensión celular a 300 × g durante 10 min y aspire completamente el sobrenadante.
- Resuspenda el sedimento celular en 80 µL de tampón de separación al 1x basado en BSA por cada 1 × 10⁷ células totales.
- Añada 20 µL de microesferas magnéticas anti-CD11b por cada 1 × 10⁷ células totales, mezcle bien e incube durante 15 min a 4–8 °C.
- NOTA: Incubar sobre hielo húmedo en lugar de en refrigerador puede requerir un tiempo de incubación más largo. Incubar a temperaturas más altas o durante más tiempo del recomendado puede aumentar el riesgo de etiquetado celular no específico.
- Lave las células etiquetadas añadiendo 1 mL de tampón de separación al 1x por cada 1 × 10⁷ células, centrifugue a 300 × g durante 10 min y aspire completamente el sobrenadante.
- Resuspenda hasta 1 × 10⁸ células totales en 500 µL de tampón de separación.
- Realizar la separación magnética con columna.
- Coloque una columna de separación magnética en el separador magnético y equilibre la columna lavándola con 500 µL de tampón de separación al 1x para columnas de pequeño volumen o con 1 mL de tampón de separación al 1x para columnas de gran volumen; deseche el eluyente del lavado.
NOTA: Utilice una columna de pequeño volumen cuando la muestra contenga un número bajo de células totales. Utilice una columna de gran volumen para muestras con un número elevado de células totales, como preparaciones derivadas del bazo o preparaciones inmunitarias combinadas. - Coloque un tubo de poliestireno redondo y limpio de 5 mL debajo de la columna equilibrada y aplique la suspensión de células etiquetadas (500 µL para columna de pequeño volumen o 1 mL para columna de gran volumen) en la parte superior de la columna.
- Una vez que la muestra haya entrado completamente en la columna, lave la columna tres veces, añadiendo 500 µL de tampón de separación al 1x por cada lavado en columnas de pequeño volumen o 1 mL por cada lavado en columnas de gran volumen. Añada cada lavado subsiguiente solo después de que el depósito de la columna se haya vaciado.
NOTA: El eluyente combinado recogido en los pasos 6.3.2 y 6.3.3 constituye la fracción no etiquetada, CD11b-. - Retire la columna del separador magnético y colóquela sobre un tubo de poliestireno limpio y etiquetado de 5 mL destinado a la fracción CD11b+.
- Pipetee 1 mL (columna de pequeño volumen) o 2 mL (columna de gran volumen) de tampón de separación al 1x sobre la parte superior de la columna y expulse inmediatamente las células etiquetadas al tubo de recolección presionando firmemente el émbolo suministrado con la columna.
- Coloque una columna de separación magnética en el separador magnético y equilibre la columna lavándola con 500 µL de tampón de separación al 1x para columnas de pequeño volumen o con 1 mL de tampón de separación al 1x para columnas de gran volumen; deseche el eluyente del lavado.
- Cuantificación y procesamiento posterior de las fracciones CD11b+
- Cuente las células de ambas fracciones (CD11b+ y CD11b-) y almacene la alícuota CD11b- mediante congelación rápida a -80 °C tras criopreservar las células restantes en una mezcla crioprotectora (90% FBS + 10% DMSO) durante 24 h en un medio de congelación basado en isopropanol, y luego transfiera la muestra a nitrógeno líquido.
- Utilice las células CD11b+ para experimentos posteriores.
Resultados
El flujo de trabajo optimizado descrito en este protocolo permite el aislamiento reproducible de linfocitos T viables y altamente enriquecidos, así como de BrMC/microglía a partir de tejidos cerebrales humanos post mortem infectados con VIH. La ejecución exitosa del protocolo se confirma mediante una serie de puntos de control de calidad, incluyendo la evaluación de viabilidad celular, la cuantificación del rendimiento y la caracterización inmunofenotípica en etapas clave. A continuación se describen los resultados representativos de un experimento exitoso.
Disociación del tejido y recuperación de células
Como se describe en la Figura 1A, tras la disociación mecánica y la centrifugación en gradiente de densidad, una muestra bien procesada debe producir un sedimento visualmente claro con restos mínimos de debris mielínico tras la centrifugación en Percoll. En experimentos representativos utilizando tejidos cerebrales de autopsia rápida de personas que viven con VIH (PWH), el rendimiento total de células antes de la selección inmunomagnética suele oscilar entre 8,0 × 10⁴ y 1,0 × 10⁶ células por gramo de tejido cerebral, lo cual es considerablemente menor que el rendimiento obtenido a partir de tejidos de bazo (~5 × 10⁷ células/g) (Tabla 1), reflejando diferencias biológicas inherentes entre estos tejidos.
Rendimientos más bajos o viabilidad reducida suelen asociarse con intervalos post mortem prolongados (>24 h), condiciones subóptimas de almacenamiento del tejido o fuerza mecánica excesiva durante la homogenización. En tales casos, la capa de mielina tras la centrifugación en Percoll aparece más gruesa y difusa, y la interfase que contiene células del SNC está menos definida. La eliminación incompleta de la capa de mielina (paso 4.4 del protocolo) puede provocar contaminación con restos de mielina, que podrían identificarse erróneamente como células muertas durante el recuento por exclusión de azul de tripano. Esta contaminación también puede dificultar la marcación con anticuerpos en pasos posteriores, comprometiendo así la eficiencia de la separación magnética. Si se sospecha arrastre de mielina, se recomienda un paso adicional de centrifugación en gradiente de Percoll antes de la selección inmunomagnética.
Facción de linfocitos T CD3+
El paso de selección positiva de linfocitos T CD3⁺ tiene una doble finalidad: enriquecer la fracción de linfocitos T para análisis paralelos de células del SNC, al mismo tiempo que se agotan los linfocitos T infiltrantes de la fracción enriquecida en mieloideos, con el fin de excluir una posible contaminación por linfocitos T en las células mieloides aisladas. En experimentos representativos, la fracción CD3⁺ representó aproximadamente del 2 al 8 % del total de células aisladas (aproximadamente 1 × 10⁴ células/g de tejido) (Tabla 1), lo cual es consistente con informes previos que indican niveles limitados y bajos de infiltración de linfocitos T en tejidos del SNC infectados por VIH.
Enriquecimiento, caracterización y cultivo ex vivo de BrMC CD11b⁺
Tras el agotamiento de CD3⁺, la fracción CD3⁻ se sometió a selección de CD11b⁺ mediante microesferas magnéticas. Como se informó previamente(12), este procedimiento nos permitió enriquecer los BrMCs CD11b⁺ hasta un 95,2 %, en comparación con el 28,4 % en la fracción previa a la selección. La RT-qPCR altamente sensible para el marcador de linaje de células T CD3E (capaz de detectar una célula T entre un millón de BrMCs) no mostró células T detectables en los BrMCs/microglia aislados(12), lo que confirma su alta pureza y descarta cualquier contaminación con células T.
Luego, los BrMC purificados CD11b⁺ se cultivaron en medio para células microgliales durante hasta 2 semanas para permitir la recuperación celular y la adhesión, iniciando así el crecimiento celular. Como se muestra en Figura 1B, los BrMC humanos aislados formaron una monocapa tan pronto como el día 5 posterior al aislamiento y exhibieron una morfología bipolar. Estas células ya están listas para mediciones ex vivo, caracterización y ensayos funcionales posteriores. En la Figura 2A se muestra un análisis representativo de pureza basado en citometría de flujo de la fracción CD11b⁺ aislada del cerebro de primates no humanos (NHP), lo que demuestra que el 97,3 % de las células expresaron conjuntamente CD11b y TMEM119. La pureza de las preparaciones de BrMC tanto humanos como de otros NHP ha sido descrita previamente12. En esos análisis, la fracción CD11b⁺ se enriqueció del 28,4 % al 95,5 %, con células TMEM119⁺ que representaron hasta el 95,9 % de la población aislada en muestras humanas. Nos referimos a estas células como microglía, aunque una pequeña proporción podría representar otras poblaciones de células mieloides residentes en el cerebro.
Un procedimiento similar también puede aplicarse para aislar células T CD3⁺ del bazo y células mieloides CD11b⁺ (SMCs) (Tabla 1). La evaluación de pureza mostró aproximadamente un 98,9 % de células CD3+ y un 99,3 % de células CD11b+ (Figura 2B,C). Estas poblaciones de células viables (Figura 2E,F) podrían mantenerse en cultivo, permitiendo análisis comparativos emparejados con células del SNC aisladas (Figura 2D).
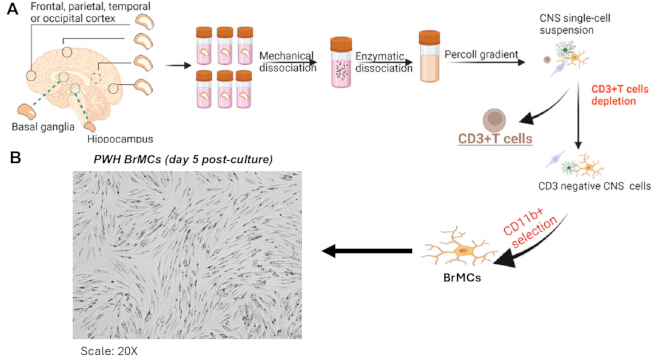
Figura 1. Un procedimiento de aislamiento secuencial en dos pasos para purificar BrMCs. (A) Esquema del procedimiento de aislamiento celular del SNC en dos pasos para purificar BrMCs CD11b⁺. (B) La morfología de las BrMCs (aumento de 100x) después de 5 días en cultivo muestra la correcta adhesión de las MG al recipiente. Abreviaturas: BrMCs = células mieloides cerebrales; SNC = sistema nervioso central; MG = microglía. Haga clic aquí para ver una versión más grande de esta figura.
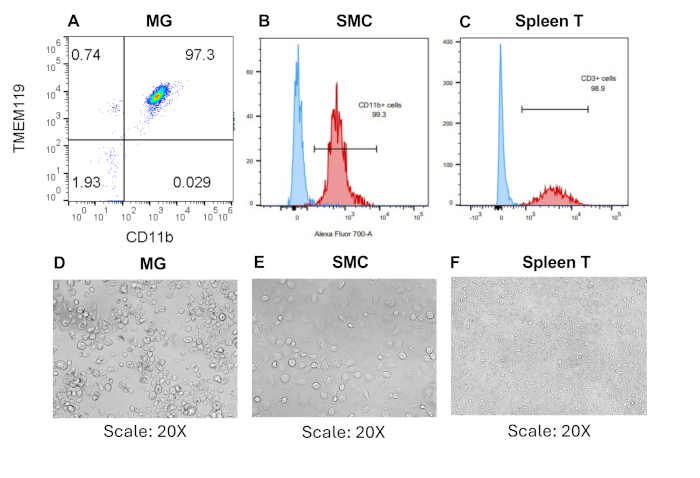
Figura 2. Aislamiento exitoso de células T y células mieloides del bazo. (A-C) Análisis por citometría de flujo de fracciones CD3⁺ y CD11b⁺ utilizando los anticuerpos indicados. (D-F) Imágenes representativas (abajo) muestran microglía, células T CD3⁺ y células mieloides esplénicas 7 días después del cultivo tras su aislamiento del cerebro y el bazo (Escala: 20x). Abreviaturas: SMCs = células mieloides del bazo; MG = microglía. Haga clic aquí para ver una versión más grande de esta figura.
| Región | Peso del tejido (g) | Pre-aislamiento | Células T CD3+ | BrMCs/SMC CD11b+ | |||
| PWH | células viables | células/g de tejido | células viables | células/g de tejido | células viables | células/g de tejido | |
| FCP | 18.25 | 8.82E+06 | 4.83E+05 | 7.30E+05 | 1.33E+04 | 2.82E+06 | 1.55E+05 |
| PCT | 4.1 | 3.53E+05 | 8.61E+04 | 1.20E+05 | 2.93E+04 | ||
| TCX | 16 | 4.15E+06 | 2.59E+05 | 2.79E+06 | 1.74E+05 | ||
| OCC | 4.24 | 1.75E+06 | 4.13E+05 | 4.50E+05 | 1.06E+05 | ||
| CRB | 11.4 | 4.15E+06 | 3.64E+05 | 2.64E+06 | 2.32E+05 | ||
| H | 1 | 1.23E+06 | 1.23E+06 | 6.00E+04 | 6.00E+04 | ||
| SPL | 5.25 | 2.82E+08 | 5.37E+07 | 2.98E+07 | 5.68E+06 | 9.60E+06 | 1.83E+06 |
Tabla 1: Rendimiento de cada tipo celular tras el aislamiento en dos pasos de células del SNC.
Discusión
Para obtener datos reproducibles con este protocolo, es importante seguir cuidadosamente cada paso. Omitir o acelerar cualquier parte puede reducir el rendimiento, la viabilidad y la pureza celular. El factor más crítico antes del análisis es la rapidez con que se procesan los tejidos después de la muerte42. El tejido cerebral humano debe manipularse lo antes posible, idealmente dentro de las 6–12 h. Esperar más tiempo provoca la degradación de antígenos de superficie de las microglías, como TMEM119 y P2RY12, y reduce la viabilidad celular20. Para evitar esto, es fundamental asegurarse de que los tejidos se transfieran rápidamente y se almacenen inmediatamente a 4 °C en HBSS con DNasa I.
La disociación mecánica debe ajustarse cuidadosamente43. Una homogenización excesiva rompe las células y libera ADN, lo que provoca agregación y reduce tanto el rendimiento como la eficiencia de la columna44. Si los tejidos no se homogenizan suficientemente, las células vivas permanecerán atrapadas dentro de los fragmentos de tejido. La adición de DNasa I al medio de disociación ayuda a prevenir la agregación45. Utilizar de tres a cuatro ciclos de molienda con lavados intermedios suele funcionar bien. Para la centrifugación en gradiente de densidad de Percoll, es importante seguir exactamente los parámetros del centrifugador y no usar el freno, ya que esto mezclaría las capas y arruinaría la separación de las células45. Al agregar HBSS a la suspensión de Percoll, el HBSS debe vertirse lentamente por la pared del tubo para mantener separadas las capas. Si los investigadores son nuevos en esta técnica, es recomendable practicar con soluciones coloreadas antes de usar tejido valioso. Durante la separación magnética en columna con CD11b+, las células y todos los tampones deben mantenerse a 4–8 °C. Si la temperatura aumenta por encima de este rango durante la incubación con microperlas, puede provocar marcado inespecífico, capuchón de anticuerpos y captación de perlas, lo cual reducirá significativamente la pureza y la eficiencia de selección33.
Este protocolo puede ajustarse para adaptarse a diferentes tipos de tejidos o configuraciones de laboratorio. Si el tejido contiene muchas células rojas, como cuando la perfusión cardíaca es incompleta, se puede añadir un paso de lisis con ACK antes de la centrifugación en gradiente de Percoll para eliminarlas y mejorar la separación46. La incubación con ACK no debe prolongarse demasiado, ya que podría comprometer la viabilidad de los leucocitos47. Si los rendimientos siguen siendo bajos, se debe examinar el residuo retenido en el filtro bajo un microscopio estereoscópico. Si queda tejido viable en cantidad considerable, puede aumentarse el número de ciclos de molienda o pueden cortarse fragmentos de tejido más pequeños de 0,5 g por filtro. Al recuperar la muestra del gradiente de Percoll, es preferible dejar una pequeña cantidad de Percoll por encima del precipitado, en lugar de arriesgarse a perder la interfase. Si la columna se obstruye durante la separación MACS, esto generalmente indica que se cargó demasiadas células o que aún queda material residual en la suspensión.
Aunque este protocolo está diseñado para tejidos cerebrales humanos infectados con VIH, existen algunas limitaciones importantes que deben considerarse al interpretar los resultados. La disociación mecánica siempre induce estrés celular, lo que podría alterar temporalmente la expresión génica de las microglías y activar vías inflamatorias33,48. Otra limitación es el uso de CD11b como marcador principal de selección. CD11b se encuentra en muchas células mieloides del SNC, no solo en microglías, y también está presente en monocitos y macrófagos infiltrantes, que son más comunes en tejidos infectados con VIH debido a la neuroinflamación49. Para distinguir las microglías residentes de las células infiltrantes, se requiere un análisis adicional mediante marcadores específicos de microglía, como TMEM119, P2RY12 y SALL120,50. Una tercera limitación es la disponibilidad del tejido y las diferencias entre donantes. Las muestras cerebrales humanas post mortem no pueden reemplazarse, lo que hace extremadamente difícil optimizar el protocolo utilizando réplicas técnicas del mismo donante. Además, existen variaciones entre los tejidos en cuanto al rendimiento, viabilidad y activación de las microglías, especialmente en personas con VIH, en quienes el estado neurocognitivo, el historial de TAR, y otros problemas de salud varían ampliamente. Estas diferencias deben registrarse y controlarse cuidadosamente en los experimentos.
En comparación con otros métodos, el aislamiento basado en FACS mediante anticuerpos contra CD11b, CD45, TMEM119 o P2RY12 logra una alta pureza, pero requiere equipos costosos, es lento y aumenta el estrés celular33,51. Además, produce una recuperación celular menor que los métodos basados en microperlas magnéticas52. La inmunopanning es muy específica, pero también lenta, requiere preparación especializada del sustrato y no se escala bien para procesar tejido de múltiples regiones53. Los kits comerciales de disociación enzimática pueden mejorar el rendimiento de células individuales y reducir el estrés mecánico, pero son más costosos y pueden alterar los marcadores de superficie celular mediante la actividad de proteasas, reduciendo así la eficiencia de marcado en pasos posteriores de inmunomagnetismo o citometría de flujo54,55. Por lo tanto, este protocolo incluye una digestión enzimática suave durante el paso principal de disociación para preservar los antígenos de superficie, lo cual es especialmente importante para marcadores sensibles como CD11b, CD68 y TMEM119. El enfoque escalonado de inmunomagnetismo por agotamiento y enriquecimiento utilizado aquí, con agotamiento de células T CD3+ seguido de selección positiva de CD11b+, ofrece una ventaja real en el flujo de trabajo frente a protocolos de un solo paso. Permite la recuperación de células T para estudios inmunológicos paralelos, al tiempo que maximiza la pureza de la fracción mieloide. Esta doble recuperación es especialmente útil en la investigación del reservorio del VIH, donde tanto las células T como las células mieloides en el SNC son importantes de estudiar.
Las células CD11b+ aisladas pueden utilizarse para diversas aplicaciones de investigación. Para estudiar los reservorios virales, esta fracción es adecuada para medir el antígeno p24 del VIH, el número de copias de ADN/ARN del VIH mediante PCR digital por gotas y ensayos de producción viral ex vivo56,57. Todos estos requieren células mieloides viables y enriquecidas, y son importantes para comprender el reservorio del SNC que persiste a pesar de la TAR58. Para estudios transcriptómicos, las células preparadas con este protocolo son adecuadas tanto para secuenciación de ARN en masa como a nivel de célula individual59,60. Esto permite a los investigadores estudiar la activación de la microglía, las firmas de microglía relacionadas con enfermedades y las respuestas de la microglía a la infección por VIH a nivel de célula individual61. Con pequeños cambios, como el uso de diferentes kits de selección y el ajuste de los volúmenes del gradiente, este procedimiento puede aplicarse a otras enfermedades neurológicas, incluyendo el Alzheimer, la esclerosis múltiple, el COVID prolongado y el traumatismo craneoencefálico, en las que también se requiere el análisis de la microglía en tejido post mortem49,62.
En resumen, este protocolo proporciona un método confiable, escalable, flexible y reproducible para aislar células mieloides/microglía de tejidos cerebrales humanos y animales. Dado que funciona con múltiples plataformas posteriores y permite la recuperación de varios tipos de células inmunitarias a partir de una sola muestra de tejido, constituye una herramienta valiosa para investigadores en neuroinmunología, virología y neuropatología.
Divulgaciones
Los autores no tienen conflictos de intereses que declarar.
Agradecimientos
We thank Dr. Sara Gianella from the “Last Gift” cohort at UC San Diego for collecting human tissues. We also thank Dr. Ann Chahroudi at the Emory National Primate Research Center, Dr. Afam Okoye at Oregon Health & Science University, and Dr. Satya Dandekar at the University of California, Davis, for providing rhesus macaque tissues. This work was supported by R21MH128034, R01MH136852, R21AI167709, R01MH139446, and R01AI186609. The funders had no role in study design, data collection and analysis, decision to publish, or preparation of the manuscript.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| jeringas de 10 mL | VWR | Cat. nº 76837-040 | |
| Pipetas serológicas de 25 mL | VWR | Cat. nº 76201-710 | |
| buffer de lisis ACK | Thermo Fisher Scientific | Cat# A1049201 | |
| Antibiótico-antimicótico (100x) | Thermo Fisher Scientific | Cat# 15240112 | |
| Solución de lavado autoMACS | Miltenyi Biotec | Cat. nº 130-091-222 | |
| Cabina de seguridad biológica (NBL-2) | |||
| Microperlas CD11b, humano y murino – liriofilizado | Miltenyi Biotec | Cat. nº 130-097-142 | |
| Microperlas CD11b, primate no humano | Miltenyi Biotec | Cat. nº 130-091-100 | |
| Kit MicroBead CD3, primate no humano | Miltenyi Biotec | Cat. nº 130-092-012 | |
| Láminas para conteo celular | Thermo Fisher Countess | Cat# C10312 | Alternativa VWR, N.º de catálogo 10228-0050 |
| Clorox lejía germicida | Essendant | Cat. nº 50371500 | |
| Placas de cultivo no tratadas Corning | Thermo Fisher Scientific | Cat# 08-772-32 | |
| M-CSF de mono cynomolgus | Kingfisher Biotech | Cat# RP1612Y-100 | |
| Jeringas desechables con puntas Luer-Lok | BD | Cat# 14-829-45 | |
| DMEM/F-12 | Thermo Fisher Scientific | Cat. nº 11320082 | |
| DNasa I, recombinante, libre de RNasas | Roche | Cat. nº 4716728001 | |
| EasySep Buffer | STEMCELL Technologies | Cat. nº 20144 | |
| EasySep Kit de Selección Positiva FITC II | STEMCELL Technologies | Cat. nº 17682 | |
| EasySep Release Human CD3 Positive Selection Kit | STEMCELL Technologies | Cat. nº 17751 | |
| Filtros celulares Falcon, 70 µm y 100 µm | Corning | Cat. nº 21008-950 | |
| Suero bovino fetal (SBF) | VWR | Cat#97068-091 | |
| Pinzas curvas finas | VWR | Cat. nº 82027-410 | |
| Gentamicina | Thermo Fisher Scientific | Cat. nº 15750060 | |
| Gibco RPMI 1640 | Thermo Fisher Scientific | Cat. nº 11875-119 | |
| HBSS, 1x sin calcio, magnesio y rojo de fenol | Thermo Fisher Scientific | Cat. nº 14175103 | |
| HBSS, 10x con calcio, magnesio, rojo de fenol | Thermo Fisher Scientific | Cat# 14060040 | |
| Hemocitómetro o contador automático de células | |||
| M-CSF humano | PeproTech | Cat. nº 300-25 | n.º de cat. alternativo 78057 |
| Solución isotónica para enjuague/dilución en separación magnética | Miltenyi Biotec | 130-091-222 | |
| L-glutamina (200 mM) | Thermo Fisher Scientific | Cat. nº 25030-061 | |
| Solución stock de BSA MACS (20x) | Miltenyi Biotec | Cat. nº 130-091-376 | |
| Sistema de separación magnética | EasySep o MACS | ||
| Columnas MS | Miltenyi Biotec | Cat. nº 130-042-201 | |
| Penicilina-Estrepomicina | Thermo Fisher Scientific | Cat. nº 15140122 | |
| Percoll | Cytiva/GE Healthcare, | Cat. nº GE17-0891-01 | |
| Batas protectoras | Kappler ProVent | Cat. nº 17-988-497B | |
| Centrífuga refrigerada | |||
| Piruvato de sodio (100 mM) | Thermo Fisher Scientific | Cat. nº 11360070 | |
| Pinzas para especímenes | VWR | Cat. nº 82027-440 | Cat# alternativo 82027-438 |
| Bisturíes desechables estériles | Cardinal Health | Cat# 11213-237 | Alternativa VWR N.º de catálogo 89140-800 |
| TrypLE Express Enzima (1x), rojo de fenol | ThermoFisher | Cat# 1250510 |
Referencias
- Prinz M, Masuda T, Wheeler MA, Quintana FJ. Microglia and central nervous system-associated macrophages: from origin to disease modulation. Annu Rev Immunol. 2021;39:251-77.
- Labzin LI, Heneka MT, Latz E. Innate immunity and neurodegeneration. Annu Rev Med. 2018;69:437-49.
- Thompson KK, Tsirka SE. The diverse roles of microglia in the neurodegenerative aspects of central nervous system (CNS) autoimmunity. Int J Mol Sci. 2017;18(3):504.
- Cornell J, Salinas S, Huang HY, Zhou M. Microglia regulation of synaptic plasticity and learning and memory. Neural Regen Res. 2022;17(4):705-16.
- Konishi H, Kiyama H, Ueno M. Dual functions of microglia in the formation and refinement of neural circuits during development. Int J Dev Neurosci. 2019;77:18-25.
- Fujita Y, Yamashita T. Neuroprotective function of microglia in the developing brain. Neuronal Signal. 2021;5(1):NS20200024.
- Gao C, Jiang J, Tan Y, Chen S. Microglia in neurodegenerative diseases: mechanism and potential therapeutic targets. Signal Transduct Target Ther. 2023;8(1):359.
- Leng F, Edison P. Neuroinflammation and microglial activation in Alzheimer disease: where do we go from here? Nat Rev Neurol. 2021;17(3):157-72.
- Hickman S, et al. Microglia in neurodegeneration. Nat Neurosci. 2018;21(10):1359-69.
- Donoso M, et al. Identification, quantification, and characterization of HIV-1 reservoirs in the human brain. Cells. 2022;11(15):2379.
- Asahchop EL, et al. Reduced antiretroviral drug efficacy and concentration in HIV-infected microglia contributes to viral persistence in brain. Retrovirology. 2017;14(1):47.
- Tang Y, et al. Brain microglia serve as a persistent HIV reservoir despite durable antiretroviral therapy. J Clin Invest. 2023;133(12):e167417.
- Thompson LJP, et al. HIV-associated neurocognitive disorder: a look into cellular and molecular pathology. Int J Mol Sci. 2024;25(9):4697.
- Olivier IS, Cacabelos R, Naidoo V. Risk factors and pathogenesis of HIV-associated neurocognitive disorder: the role of host genetics. Int J Mol Sci. 2018;19(11):3594.
- Eggers C, et al. HIV-1-associated neurocognitive disorder: epidemiology, pathogenesis, diagnosis, and treatment. J Neurol. 2017;264(8):1715-27.
- Prates GS, et al. HIV expression persists in the cerebrospinal fluid of HIV-associated neurocognitive disorders despite effective ART. Emerg Microbes Infect. 2026;15(1):2616945.
- Ash MK, Al-Harthi L, Schneider JR. HIV in the brain: identifying viral reservoirs and addressing the challenges of an HIV cure. Vaccines (Basel). 2021;9(8):867.
- Andersen ND, Srinivas S, Piñero G, Monje PV. A rapid and versatile method for the isolation, purification and cryogenic storage of Schwann cells from adult rodent nerves. Sci Rep. 2016;6(1):31781.
- Flores-Obando RE, Freidin MM, Abrams CK. Rapid and specific immunomagnetic isolation of mouse primary oligodendrocytes. J Vis Exp. 2018;(135):e57543.
- Van Wageningen TA, et al. Regulation of microglial TMEM119 and P2RY12 immunoreactivity in multiple sclerosis white and grey matter lesions is dependent on their inflammatory environment. Acta Neuropathol Commun. 2019;7(1):206.
- Honarpisheh P, et al. Potential caveats of putative microglia-specific markers for assessment of age-related cerebrovascular neuroinflammation. J Neuroinflammation. 2020;17(1):366.
- Rai MA, et al. Comparative analysis of human microglial models for studies of HIV replication and pathogenesis. Retrovirology. 2020;17(1):35.
- Gumbs SB, et al. Human microglial models to study HIV infection and neuropathogenesis: a literature overview and comparative analyses. J Neurovirol. 2022;28(1):64-91.
- Ma Z, Zhou Y, Collins DJ, Ai Y. Fluorescence activated cell sorting via a focused traveling surface acoustic beam. Lab Chip. 2017;17(18):3176-85.
- Sutermaster BA, Darling EM. Considerations for high-yield, high-throughput cell enrichment: fluorescence versus magnetic sorting. Sci Rep. 2019;9(1):227.
- Simon M, et al. Loss of perivascular aquaporin-4 localization impairs glymphatic exchange and promotes amyloid β plaque formation in mice. Alzheimers Res Ther. 2022;14(1):59.
- Olah M, et al. A transcriptomic atlas of aged human microglia. Nat Commun. 2018;9(1):539.
- Nühn MM, et al. Shock and kill within the CNS: a promising HIV eradication approach? J Leukoc Biol. 2022;112(5):1297-315.
- Donlin LT, et al. Methods for high-dimensional analysis of cells dissociated from cryopreserved synovial tissue. Arthritis Res Ther. 2018;20(1):139.
- Montanari M, et al. Automated-mechanical procedure compared to gentle enzymatic tissue dissociation in cell function studies. Biomolecules. 2022;12(5):701.
- Galatro TF, et al. Isolation of microglia and immune infiltrates from mouse and primate central nervous system. In: Clausen BE, Laman JD, editors. Inflammation: Methods and Protocols. New York: Humana Press; 2017. p. 333-42.
- Grabert K, McColl BW. Isolation and phenotyping of adult mouse microglial cells. In: Rousselet G, editor. Macrophages: Methods and Protocols. New York: Humana Press; 2018. p. 77-86.
- Ocañas SR, et al. Minimizing the ex vivo confounds of cell-isolation techniques on transcriptomic and translatomic profiles of purified microglia. eNeuro. 2022;9(2):ENEURO.0348-21.2022.
- Subra C, Trautmann L. Role of T lymphocytes in HIV neuropathogenesis. Curr HIV/AIDS Rep. 2019;16(3):236-43.
- Farhadian SF, et al. HIV viral transcription and immune perturbations in the CNS of people with HIV despite ART. JCI Insight. 2022;7(13):e160267.
- Marsh SE, et al. Dissection of artifactual and confounding glial signatures by single-cell sequencing of mouse and human brain. Nat Neurosci. 2022;25(3):306-16.
- Jolly S, et al. Single-cell quantification of mRNA expression in the human brain. Sci Rep. 2019;9(1):12353.
- Schroeter CB, et al. One brain-all cells: a comprehensive protocol to isolate all principal CNS-resident cell types from brain and spinal cord of adult healthy and EAE mice. Cells. 2021;10(3):651.
- Swartzlander DB, et al. Concurrent cell type-specific isolation and profiling of mouse brains in inflammation and Alzheimer's disease. JCI Insight. 2018;3(13):e121109.
- Zhao J, et al. Single-cell RNA sequencing reveals the heterogeneity of liver-resident immune cells in human. Cell Discov. 2020;6(1):22.
- Li X, et al. Histone decrotonylation plays a distinct role in HIV latency. Sci Adv. 2026;12(15):eaec0149.
- Heng Y, et al. The effects of postmortem delay on mouse and human microglia gene expression. Glia. 2021;69(4):1053-60.
- Trujillo M, et al. Combined mechanical and enzymatic dissociation of mouse brain hippocampal tissue. J Vis Exp. 2021;(176):e63007.
- Herron S, Delpech JC, Madore C, Ikezu T. Using mechanical homogenization to isolate microglia from mouse brain tissue to preserve transcriptomic integrity. STAR Protoc. 2022;3(4):101670.
- STEMCELL Technologies. How to prepare a single cell suspension from a frozen cell sample. protocols.io. 2019. doi:10.17504/protocols.io.4umgwu6.
- Volovitz I, et al. A non-aggressive, highly efficient, enzymatic method for dissociation of human brain tumors and brain tissues to viable single cells. BMC Neurosci. 2016;17(1):30.
- Manglani M, Gossa S, McGavern DB. Leukocyte isolation from brain, spinal cord, and meninges for flow cytometric analysis. Curr Protoc Immunol. 2018;121(1):e44.
- Bakina O, et al. In situ Patch-seq analysis of microglia reveals a lack of stress genes as found in FACS-isolated microglia. PLoS One. 2024;19(7):e0302376.
- Narasipura SD, et al. Inflammatory responses revealed through HIV infection of microglia-containing cerebral organoids. J Neuroinflammation. 2025;22(1):36.
- Haage V, et al. Comprehensive gene expression meta-analysis identifies signature genes that distinguish microglia from peripheral monocytes/macrophages in health and glioma. Acta Neuropathol Commun. 2019;7(1):20.
- Pan J, Wan J. Methodological comparison of FACS and MACS isolation of enriched microglia and astrocytes from mouse brain. J Immunol Methods. 2020;486:112834.
- Bordt EA, et al. Isolation of microglia from mouse or human tissue. STAR Protoc. 2020;1(1):100035.
- Bohlen CJ, Bennett FC, Bennett ML. Isolation and culture of microglia. Curr Protoc Immunol. 2019;125(1):e70.
- MacMullan MA, et al. An enzyme-free, cold-process acoustic method for gentle and effective tissue dissociation. bioRxiv. 2023:2023.10.03.560704. doi:10.1101/2023.10.03.560704.
- Mattei D, et al. Enzymatic dissociation induces transcriptional and proteotype bias in brain cell populations. Int J Mol Sci. 2020;21(21):7944.
- Kuzmichev YV, et al. Application of ultrasensitive digital ELISA for p24 enables improved evaluation of HIV-1 reservoir diversity and growth kinetics in viral outgrowth assays. Sci Rep. 2023;13(1):10958.
- Ferreira EA, Clements JE, Veenhuis RT. HIV-1 myeloid reservoirs: contributors to viral persistence and pathogenesis. Curr HIV/AIDS Rep. 2024;21(2):62-74.
- León-Rivera R, et al. Central nervous system viral seeding by mature monocytes and potential therapies to reduce CNS viral reservoirs in the cART era. mBio. 2021;12(2):e03633-20.
- Alyaqoobi Z, He Y, Wang X. Single-cell and bulk transcriptome analysis reveals the impact of inflammatory microglia on prognosis and immunotherapy response in primary glioblastoma. Clin Transl Oncol. 2026;28(6):2314-34.
- Farhadian SF, et al. Single-cell RNA sequencing reveals microglia-like cells in cerebrospinal fluid during virologically suppressed HIV. JCI Insight. 2018;3(18):e121718.
- Spurgat MS, Tang SJ. Single-cell RNA-sequencing: astrocyte and microglial heterogeneity in health and disease. Cells. 2022;11(13):2021.
- Marsh SE, et al. Multi-modal analysis and modeling of human neurodegenerative disease to reveal disease mechanisms and biomarkers. Alzheimers Dement. 2022;18:e061905.