Las leguminosas forman asociaciones con el suelo bacterias, formando nódulos radiculares en los cuales las bacterias fijan el nitrógeno atmosférico para uso de la planta. La microtomografía computarizada (MicroCT) permite la obtención de imágenes tridimensionales no destructivas de la organización del tejido, las zonas de bacteroides y los haces vasculares de este tejido opaco y duro de los nódulos radiculares, ofreciendo ventajas frente a las técnicas tradicionales de imagen que requieren el corte histológico de los nódulos.
Artículo de método
Imagen tridimensional con micro-TC de nódulos radiculares de Medicago sativa
* These authors contributed equally
En este artículo
Resumen
Resumen
La relación simbiótica entre la leguminosa Medicago sativa y la bacteria del suelo Sinorhizobium meliloti da lugar a la formación de nódulos radiculares fijadores de nitrógeno. Se han aplicado métodos destructivos tradicionales, como el corte en parafina, el corte con vibrátomo y el corte por criosección, para visualizar cómo las bacterias colonizan el nódulo, lo que hace extremadamente difícil obtener información tridimensional confiable. Estos enfoques suelen combinarse con marcado fluorescente o tinciones, lo que puede introducir estrés adicional que afecta el crecimiento de la planta y la formación de nódulos. La microtomografía computarizada (microCT) ha surgido como una herramienta relativamente rápida, sencilla y robusta en biología vegetal que permite visualizar de forma no destructiva las características histológicas de las plantas en tres dimensiones (3D), evitando así artefactos destructivos durante la preparación de muestras y garantizando una reconstrucción 3D de alta fidelidad. Aunque la microCT se ha aplicado a nódulos radiculares de leguminosas, aún falta un protocolo detallado y establecido que documente el proceso desde la cosecha de la planta y la preparación de la muestra hasta el escaneo y la visualización mediante software.
En este estudio, se muestra un protocolo paso a paso de microCT utilizando Medicago sativa como modelo. El protocolo incluye la extirpación de nódulos de las raíces, fijación, mejora del contraste, montaje, escaneo y reconstrucción tridimensional. Se destacan los parámetros críticos que afectan elementos como la calidad de la imagen, la preservación del tejido y el contraste. Mediante este enfoque, es posible visualizar la organización general del tejido, las células infectadas por bacteroides y los haces vasculares en tres dimensiones sin seccionar físicamente los nódulos. La metodología descrita aquí proporciona un método reproducible para obtener imágenes no destructivas y de alta resolución de nódulos radiculares nativos, y probablemente puede adaptarse a otras especies de leguminosas, ofreciendo a los investigadores una herramienta práctica para estudiar la estructura de los nódulos y la organización bacteriana dentro de ellos en 3D.
Introducción
Las plantas de la familia Leguminosae (o Fabaceae), como Medicago sativa (alfalfa), establecen una relación simbiótica con bacterias del suelo fijadoras de nitrógeno pertenecientes a la familia Rhizobiaceae, tales como Sinorhizobium meliloti, lo que da lugar al desarrollo de nódulos radiculares. La planta libera flavonoides para atraer a las bacterias en condiciones de limitación de nitrógeno. Esto activa la expresión de los factores Nod en las bacterias simbióticas, lo que desencadena el enrollamiento de los pelos radicales y la formación subsiguiente de una cámara de infección que rodea a las bacterias1,2,3,4. A partir de una sección debilitada de la pared de la cámara se forma un hilo de infección, creando un tubo alargado que transporta a las bacterias a través de la célula del pelo radical5. Cuando el hilo de infección alcanza el córtex interno, una serie de divisiones celulares inicia la formación de un órgano radical especializado denominado nódulo radicular1,2,5. Las bacterias luego infectan la célula del nódulo y viven intracelularmente, rodeadas por la membrana del simbiosoma dentro de la célula. En este lugar, la planta proporciona carbono y otros nutrientes a las bacterias. A cambio, las bacterias fijan nitrógeno para la planta, convirtiendo el nitrógeno atmosférico no utilizable en amoníaco, una forma aprovechable por la planta2,3,4. Así, el nódulo radicular funciona como una fábrica biológica esencial para la fijación de nitrógeno, sosteniendo el crecimiento vegetal incluso en ausencia de fertilizantes nitrogenados sintéticos. Este proceso de fijación biológica de nitrógeno es importante desde el punto de vista económico y ambiental, ya que permite a las leguminosas crecer sin necesidad de fertilizantes sintéticos6. Además, algunas leguminosas forman nódulos indeterminados que presentan zonas distintas en las cuales las bacterias se diferencian y fijan nitrógeno de manera más eficiente4. Por lo tanto, es fundamental visualizar tanto el exterior como el interior del nódulo (donde las bacterias ocupan físicamente las células vegetales dentro del nódulo) para estudiar en detalle la fijación biológica de nitrógeno. Sin embargo, se trata de un órgano opaco lleno de la proteína vegetal de color rojo llamada leghemoglobina, lo que dificulta los métodos tradicionales de imagen.
Las técnicas de obtención de imágenes utilizadas en el pasado han sido destructivas. Se han empleado cortes en parafina, cortes con vibrátomo y cortes criostáticos para producir secciones de tejido, pero estos procedimientos alteran el estado nativo del tejido e introducen artefactos que complican la reconstrucción tridimensional (3D)6,7,8,9,10. Se ha logrado completar la reconstrucción a partir de secciones de tejido de nódulos embebidos en parafina, pero este método utiliza muestras deshidratadas y requiere más de 200 secciones individuales8. En secciones individuales, pueden observarse porciones del sistema vascular, pero no cómo los haces se ramifican y envuelven el nódulo. Se han aplicado diversas técnicas de marcado y tinción fluorescente sobre secciones de tejido antes de la microscopía confocal, pero estas tienden a presentar los siguientes problemas8,9,10: (i) el tejido de nódulos vegetales es altamente autofluorescente, (ii) muchos métodos requieren un aclaramiento del tejido previo a la obtención de imágenes, (iii) la tinción fluorescente puede dañar el tejido del nódulo, (iv) la inoculación de plantas con bacterias marcadas con proteína verde fluorescente (GFP) introduce estrés que afecta tanto el crecimiento de la planta como la formación de nódulos, y (v) los nódulos nativos son demasiado grandes para seccionar fácilmente toda la muestra5,11.
Utilizada comúnmente en entornos médicos, la imagenología por tomografía computarizada (CT) se emplea con fines tanto diagnósticos como terapéuticos12,13. Una versión más pequeña de esta técnica, la microtomografía de rayos X (MicroCT), es un método de imagen que permite la visualización tridimensional (3D) no destructiva de especímenes pequeños. Mientras que en la CT se rota la máquina alrededor de un espécimen más grande, en la microCT se rota el espécimen más pequeño cerca de la fuente de rayos X. Esto permite una resolución mucho mayor. La microCT se ha aplicado a la biología del desarrollo animal, pero también ha surgido como una herramienta prometedora en biología vegetal6,10,14,15,16,17,18,19. Es importante destacar que la microCT y la tomografía de rayos X basada en sincrotrón se han utilizado ampliamente en fisiología vegetal para investigar la embolia del xilema y para contrastar estimaciones basadas en imágenes con mediciones hidráulicas convencionales20,21,22. Dado que permite obtener imágenes de órganos intactos a escalas sin necesidad de seccionamiento físico, la microCT preserva las relaciones espaciales en todo el nódulo. Con agentes de contraste adecuados, resuelve estructuras a nivel de tejido, como haces vasculares y zonas de infección, y puede penetrar más allá del límite impuesto por la dispersión de la luz en los enfoques ópticos convencionales, lo cual es particularmente valioso para nódulos opacos y autofluorescentes. Las muestras también pueden volver a escanearse, incorporarse a flujos de trabajo correlativos posteriores tras el procesamiento para microscopía óptica o electrónica, o archivarse para análisis futuros. Aunque algunos estudios han utilizado la microCT y la CT de rayos X basada en sincrotrón para investigar nódulos radiculares de soya, no existe un registro detallado que abarque todo el proceso, desde la recolección y tinción de nódulos hasta la obtención de imágenes y su reconstrucción, especialmente para nódulos más pequeños, como los del alfalfa6,14. El contraste en rayos X depende de la densidad del tejido, y la mayoría de los tejidos vegetales tienen baja densidad y atenúan mal los rayos X. Sin un agente de contraste, los nódulos no pueden distinguirse del fondo en un equipo convencional de microCT de banco. Utilizamos ácido fosfotúngstico (PTA), un colorante no específico que se une a proteínas y otras biomoléculas y que se ha demostrado que produce alto contraste en tejidos vegetales14.
Este estudio proporciona un protocolo detallado, paso a paso, para la obtención de imágenes mediante microCT de nódulos radiculares de leguminosas utilizando alfalfa como modelo, en un sistema convencional basado en laboratorio que ofrece una alternativa más accesible a la microscopía de rayos X (XRM) y a las plataformas basadas en sincrotrón6,14. Este flujo de trabajo incluye instrucciones específicas para la recolección de nódulos de la raíz, fijación, tinción, mejora del contraste, montaje, escaneo, reconstrucción tridimensional y análisis (Figura 1). Entre estos pasos, proporcionamos parámetros detallados para garantizar un montaje estable, la retención de humedad y un buen contraste. En definitiva, esta metodología de microCT es un método reproducible que permite la visualización no destructiva y de alta resolución de características histológicas tridimensionales, incluyendo la organización general de los tejidos, la colonización bacteriana de las células vegetales, las zonas distintas de fijación de nitrógeno y los haces vasculares de nódulos radiculares completos de alfalfa en su estado nativo. Consideramos que este protocolo será adaptable a otras especies de leguminosas, ofreciendo a los investigadores un método práctico para visualizar intacta la estructura y organización tridimensional de este órgano radical tan importante.
Protocolo
1. Cosecha y fijación de nódulos
- Utilice un escalpelo (Vea la Tabla de Materiales) para hacer un corte recto a través de la raíz a ambos lados del nódulo de interés, dejando el nódulo unido a la raíz (Figura 2).
- Transfiera de ocho a doce nódulos a un vial de vidrio de 20 mL con 10 mL de etanol al 70% (v/v) (Vea la Tabla de Materiales).
2. Tinción de nódulos
- Prepare una solución de PTA al 1% (p/v) en etanol al 70% añadiendo 2 g de polvo de PTA a 200 mL de etanol al 70% en un frasco cuadrado de boca ancha de 200 mL (consulte la Tabla de Materiales). Agite hasta que se disuelva completamente y luego almacénelo a 4 °C. Prepare la tinción un día antes de su uso.
- Retire el etanol al 70% utilizado durante la fijación y sustitúyalo por 10 mL de solución de PTA al 1% (consulte la Tabla de Materiales).
- Coloque el vial de vidrio en un agitador orbital a temperatura ambiente y 80 rpm durante 4 semanas. Reemplace semanalmente la solución de tinción con 10 mL de PTA fresca al 1% (consulte la Tabla de Materiales, Figura 2).
3. Montaje del nódulo
- Derrita parafina utilizando una placa calefactora a 100 °C en un vaso de vidrio abierto de 100 mL (ver Tabla de Materiales).
- Seleccione puntas de pipeta de 200 µL para la inclusión de muestras. Selle las puntas por el extremo estrecho sumergiéndolas ligeramente (1–2 mm) en parafina fundida (ver Tabla de Materiales).
- Lave la muestra con 2 mL de etanol al 70 % en una placa de micropocillos de 35 mm durante 5 min (ver Tabla de Materiales).
- Agregue 0,2 g de agarosa de punto de fusión bajo en un matraz Erlenmeyer de 25 mL y mézclelo con 20 mL de agua desmineralizada para obtener una solución de agarosa al 1 % (p/v) de punto de fusión bajo. Caliente en una placa calefactora a 50 °C y agite varias veces hasta que se disuelva completamente. Luego coloque el matraz en un baño de agua ajustado a 40 °C (ver Tabla de Materiales).
- Agregue aproximadamente 25 µL de agarosa al 1 % de punto de fusión bajo en las puntas de pipeta selladas colocadas boca abajo y espere 1 min para que se enfríe (ver Tabla de Materiales).
- Tome un nódulo y transfiéralo dentro de la punta de pipeta utilizando pinzas finas para inmovilizarlo en la agarosa al 1 % de punto de fusión bajo. Utilice una punta para carga de geles para mover el nódulo lo más cerca posible del lado sellado con parafina de la punta de pipeta, sin dañar el nódulo radicular (ver Tabla de Materiales).
- Coloque las puntas con los nódulos radiculares en un portapuntas para permitir que la agarosa de punto de fusión bajo solidifique. Una vez solidificada, selle el extremo abierto de las puntas de pipeta con Parafilm para retener la humedad (ver Tabla de Materiales). Almacene la muestra en el refrigerador a 4 °C y escanee las muestras incluidas dentro de una semana.
4. Imagen por microCT
- Monte las puntas de pipeta boca abajo en un soporte de muestra del tamaño adecuado para permitir la colocación más cercana posible a la fuente de rayos X y garantizar una correcta centración de la muestra (ver Tabla de Materiales).
- Abra el software de tomografía computarizada. Enrosque firmemente la muestra en el soporte sobre la plataforma de rotación del microTC (ver Tabla de Materiales, Figura 3, Figura Suplementaria 1).
- Encienda la vista de la cámara y la fuente de rayos X, luego active la pantalla de visualización continua de rayos X (Figura Suplementaria 1).
- Ajuste verticalmente la altura de la muestra para colocar la región de interés en el centro de la pantalla continua de rayos X. Anote esta altura para su uso posterior en el paso 4.10 (Figura Suplementaria 1).
- Con la binarización en 512 × 512, ajuste el tamaño del píxel (ver Tabla Suplementaria 1) de modo que la muestra ocupe la mayor parte del campo de visión de la vista continua de rayos X, dejando algo de espacio vacío en cada lado (Figura Suplementaria 1).
- Centre la muestra en la pantalla de visualización continua de rayos X rotando cada 45° y ajustando al centro (Figura Suplementaria 1).
- Cambie la binarización a 2048 × 2048 (ver Tabla Suplementaria 1, Figura Suplementaria 1).
- Seleccione sin filtro y establezca el voltaje en 50 kV y la corriente en 40 µA en el menú Modos de Escaneo (ver Tabla Suplementaria 1, Figura Suplementaria 1).
- Realice una corrección de campo plano moviendo la muestra hacia abajo hasta 68 mm para que no esté dentro del campo de visión de la pantalla continua de rayos X. Desactive Corrección de Campo Plano y ajuste el Tiempo de Exposición para que la transmisión promedio de rayos X sea del 55 %. Vuelva a activar Corrección de Campo Plano (ver Tabla Suplementaria 1, Figura Suplementaria 1).
- Devuelva la muestra a la altura determinada en el paso 4.4 (Figura Suplementaria 1).
- En Opciones de Escaneo, establezca el nombre del archivo y la ubicación de la carpeta (Figura Suplementaria 1).
- Establezca el paso de rotación en 0,200°. Configure el Promedio de Cuadros en 3 y el Movimiento Aleatorio en 30. Seleccione escaneo de 360° (ver Tabla Suplementaria 1, Figura Suplementaria 1).
- Si lo desea, ajuste el Ancho Parcial para excluir espacio vacío excesivo y reducir el tamaño de los datos (Figura Suplementaria 1).
- Haga clic en Escaneo para iniciar el proceso (Figura Suplementaria 1).
5. Reconstrucción de imágenes
- Abra el software de reconstrucción de imágenes y cargue todas las proyecciones 2D provenientes del escaneo (consulte la Tabla de Materiales, Fig. 4).
- Haga clic en Vista previa para visualizar los resultados de la reconstrucción en la ubicación de la línea verde (Figura Suplementaria 2).
- Ajuste el histograma en la pestaña Salida. Recorte el área plana en el lado derecho y mantenga el valor en 0 o ligeramente inferior a 0 en el lado izquierdo (Figura Suplementaria 2).
- En la pestaña Inicio, haga clic en Ajuste fino para el posalineamiento. Comience con el paso de Parámetro en uno y el Número de intentos en cinco. Haga clic en Iniciar y luego en Aceptar. Cuando los resultados aparezcan en la pestaña Salida, haga clic en la ventana prv y use las flechas para revisar los resultados y elegir el mejor alineamiento. Déjela en la imagen óptima (Figura Suplementaria 2).
- Active la ROI en la pestaña Salida haciendo clic en la casilla junto a Usar ROI. Elija círculo como forma de la ROI. Ajuste el tamaño de la ROI al tamaño de la muestra a través del volumen de datos regresando a la pestaña Inicio y moviendo la línea verde para previsualizar diferentes ubicaciones. Deje un espacio vacío alrededor de la muestra (Figura Suplementaria 2).
- Regrese a la pestaña Inicio. Mueva las líneas rojas en la parte superior e inferior para recortar las áreas no necesarias en los datos de reconstrucción. Verifique si se han excluido datos importantes moviendo la línea verde cerca de las líneas rojas y previsualizando las reconstrucciones en la pestaña Salida (Figura Suplementaria 2).
- En la pestaña Salida, guarde la reconstrucción como imágenes TIFF (16 bits) en la ubicación deseada (Figura Suplementaria 2).
- Regrese a la pestaña Inicio y haga clic en Iniciar (Figura Suplementaria 2).
6. Visualización 3D
- Abra el software Dragonfly (consulte la Tabla de materiales).
NOTA: Para obtener información adicional sobre Dragonfly y sus capacidades, visite https://dragonfly.comet.tech/ - Importe las imágenes TIFF reconstruidas.
- Seleccione todas las imágenes y confirme que el espaciado de las imágenes sea igual al Tamaño de píxel de la imagen escalada en el archivo de texto de escaneo (Figura suplementaria 3).
- Ajuste el nivel de ventana para obtener una vista 3D con buen contraste (Figura suplementaria 3).
- Desplácese a través de los diferentes planos de corte 2D (XY, transversal; XZ, coronal; YZ, sagital) (Figura suplementaria 3).
- Haga clic derecho en la imagen y exporte una captura de pantalla de la vista para guardar las imágenes de corte según sea necesario (Figura 4).
Resultados
Se recolectaron dos nódulos radiculares de cada una de tres plantas de M. sativa. Dos nódulos se utilizaron para comparaciones de duración de tinción, y cuatro se imagaron tras la tinción completa de 28 días con PTA al 1 % en etanol al 70 % para mejorar el contraste. Al utilizar agarosa al 1 % de punto de fusión bajo como medio de montaje en las puntas de pipeta, se logró un entorno de montaje con baja densidad de rayos X alrededor de la muestra. La solución de tinción aumentó con éxito el contraste del tejido vegetal (Figura 5A,B, Figura suplementaria 4). La señal de la muestra se separó fácilmente del fondo y de la punta de la pipeta mediante el histograma de datos, permitiendo una visualización tridimensional sin obstáculos de la estructura externa e interna de todo el nódulo radicular (Figura 5A,B).
La epidermis exterior es visible, pero muestra menos contraste que los otros tejidos (Figura 5C–E). Por otro lado, los haces vasculares son claros y están bien conectados desde la base hasta la parte superior de la muestra (Figura 5A,B). En secciones transversales, podemos ver claramente el número y la división de estos haces (Figura 5C). Además, el tejido interno muestra un buen contraste, lo que permite la identificación del cortex y de las vacuolas vegetales (Figura 5C–E). El alto contraste también facilita el reconocimiento de las células infectadas y no infectadas (Figura 5C–E). Las secciones coronal y sagital revelan la distribución de las zonas meristemática, de infección y de diferenciación (Figura 5D). Video Suplementario 1 muestra una vista de 360° de un nódulo reconstruido en 3D.
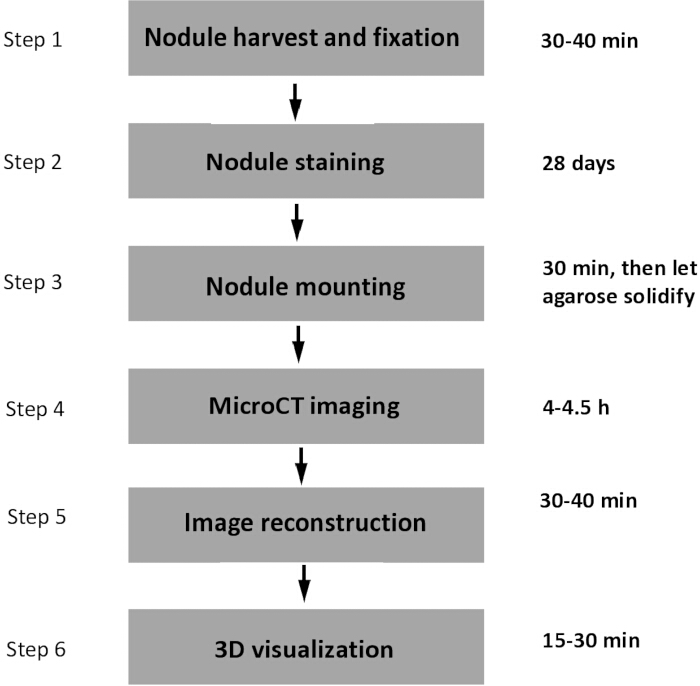
Figura 1: Flujo del protocolo. Descripción general del flujo de trabajo para utilizar microTC para obtener imágenes de nódulos radiculares de leguminosas y el tiempo requerido para cada paso. Haga clic aquí para ver una versión más grande de esta figura.
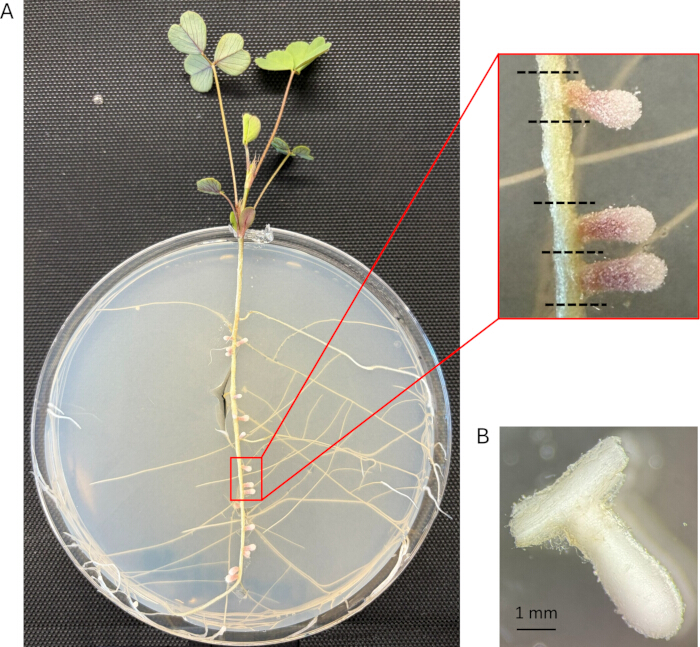
Figura 2: Nódulos radiculares de M. sativa para este protocolo. (A) Planta de M. sativa a los 28 días después de ser inoculada con bacterias S. meliloti (28 dpi). Las líneas punteadas negras representan las líneas de corte sugeridas para la extirpación de los nódulos mostrados. Se extirparon dos nódulos por planta de tres plantas, y se escanearon cuatro muestras. (B) Nódulo de M. sativa a los 28 dpi después de 4 semanas de tinción con PTA. Haga clic aquí para ver una versión más grande de esta figura.
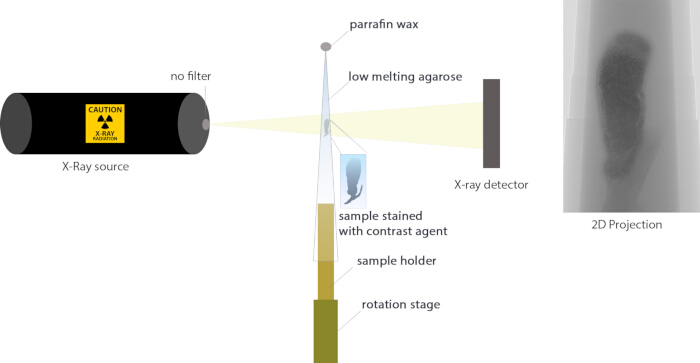
Figura 3: Vista general del montaje de la muestra para microTC. El nódulo radicular teñido con un agente de contraste se estabiliza en agarosa de punto de fusión bajo dentro de la punta de una micropipeta. Un extremo de la punta de la micropipeta se sella con cera de parafina y se fija en la plataforma de rotación dentro de la máquina de microTC. La fuente de rayos X (sin filtro) se encuentra en un lado de la máquina, y los rayos atraviesan la muestra para alcanzar el detector de rayos X situado en el otro lado. El escaneo genera una proyección 2D basada en la densidad del tejido. Haga clic aquí para ver una versión más grande de esta figura.
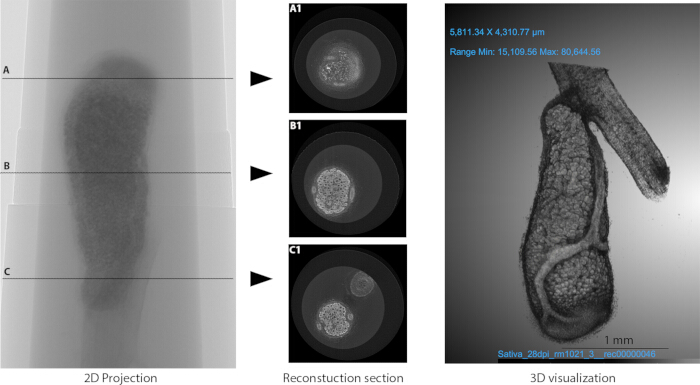
Figura 4: Ejemplo de reconstrucción de imagen y visualización 3D. (Izquierda) Proyección 2D. (Centro) Sección reconstruida. A1, B1 y C1 muestran secciones transversales reconstruidas en las ubicaciones A, B y C de la proyección 2D de microTC. (Derecha) Una visualización 3D del nódulo radicular generada a partir de imágenes reconstruidas. Haga clic aquí para ver una versión más grande de esta figura.
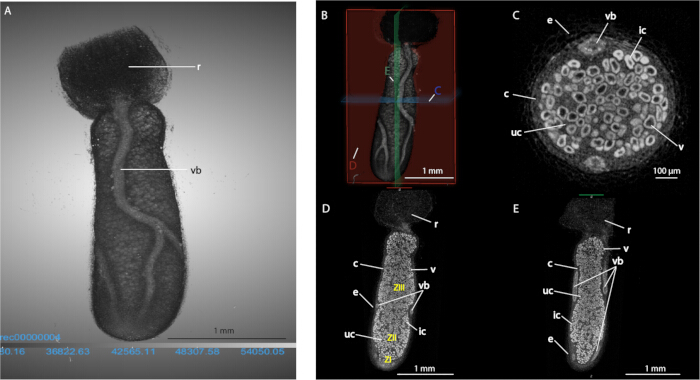
Figura 5: Imágenes representativas anotadas. (A) Anotado visualización 3D de M. sativa nódulo radicular.B) Contornos rojos, azules y verdes en una imagen 3D que muestran el plano transversal (C), coronal (D) y sagital (E) planos, respectivamente. Transversal anotado (C), coronal (D) y sagital (E) secciones de M. sativa nódulo radicular. Abreviaturas: c – córtex; e – epidermis; ic – célula infectada; r – raíz; uc – célula no infectada; v – vacuola; vb – haz vascular; ZI – Zona I (meristemática); ZII – Zona II (infección); ZIII – Zona III (diferenciación). Haga clic aquí para ver una versión más grande de esta figura.
Figura suplementaria 1. Capturas de pantalla del software para imágenes de microTC. (A1) Abrir y cerrar la puerta del escenario. (A2) Activar la vista de la cámara. (A3) Encender la fuente de rayos X. (A4) Activar la vista continua de rayos X. (A5) Ajustar la altura de la muestra. (A6) Ajustar el tamaño del píxel. (A7) Rotar la muestra. (A8) Cambiar la agrupación (binning). (A9) Cambiar el filtro. (A10) Opciones para acceder a los modos de escaneo. (A11) Establecer el voltaje y la corriente de la fuente de rayos X. (A12) Doble clic para desactivar la corrección de campo plano. (A13) Opciones de escaneo. (B1) Corrección de campo plano desactivada. (B2) Opciones para acceder a los modos de escaneo. (B3) Transmisión promedio de rayos X. (B4) Ajustar el tiempo de exposición. (B5) Actualizar los campos planos. (C1) Nombrar el archivo y elegir dónde guardar los datos. (C2) Establecer el paso de rotación, promediado de cuadros, movimiento aleatorio y escaneo de 360 grados. (C3) Ajustar el ancho parcial. (C4) Iniciar el escaneo.Haga clic aquí para descargar este archivo.
Figura suplementaria 2. Capturas de pantalla del software para la reconstrucción de imágenes. (A1) Elija dónde previsualizar la muestra. (A2) Previsualización de la muestra. (A3) Ajuste fino de parámetros. (A4) Establezca el número de ensayos y el paso del parámetro para el alineamiento posterior. (A5-6) Parte superior e inferior del área de reconstrucción. (A7) Iniciar la reconstrucción. (B1) Ajustar el contraste. (B2) Ver y navegar a través de los resultados del alineamiento posterior. (B3) Crear una ROI circular. (B4) Elija el formato de archivo y dónde guardar los datos.Haga clic aquí para descargar este archivo.
Figura suplementaria 3. Capturas de pantalla del software para visualización 3D. (A) Información sobre el espaciado de la imagen. (B) Herramientas de selección, rotación y zoom (arriba). Ajuste de nivel de ventana para el contraste (abajo). (C) Barra de escala de visualización (arriba). Cambiar el color de fondo (abajo). Haga clic aquí para descargar este archivo.
Figura suplementaria 4. Reconstrucción mediante microTC tras la tinción con PTA durante 14, 17 y 28 días. (A) Sección reconstruida de M. sativa tras 14 d de tinción con PTA muestra ruido en la capa externa (n = 1). (B) Sección reconstruida de M. sativa tras 17 d de tinción con PTA muestra mayor contraste en la capa externa, pero menor claridad en el interior en comparación con (A) (n = 1). (C) Sección reconstruida de M. sativa tras 28 d de tinción con PTA muestra mayor contraste tanto en las capas externa como interna en comparación con (A) y (B) (n = 4).Haga clic aquí para descargar este archivo.
Tabla suplementaria 1: Parámetros para la imagenología por microCT.Haga clic aquí para descargar este archivo.
Vídeo suplementario 1: Vídeo del nódulo en 3D.Haga clic aquí para descargar este archivo.
Discusión
A continuación se presentan algunas recomendaciones sobre la preparación y tinción de muestras. Durante la preparación de muestras para imágenes de microTC, la escisión cuidadosa de los nódulos es esencial para preservar la integridad estructural. Se recomienda conservar un pequeño segmento de la raíz a ambos lados del punto de inserción del nódulo para mantener el contexto espacial y minimizar el daño tisular. El uso de un agente de contraste es fundamental para aumentar la atenuación de rayos X y visualizar las características anatómicas internas14. Un estudio previo que utilizó tinción con ácido fosfotúngstico (PTA) ha demostrado que se requiere un período mínimo de tinción de 14 días para lograr un contraste suficiente en diferentes especies vegetales y tipos de tejido, sin evidencia de sobretinción14. En dicho estudio, nódulos radiculares de soya inducidos por Bradyrhizobium (fijados a los 14 días postinfección) fueron teñidos durante 35 días14. Utilizando este rango (14–35 días) como referencia, realizamos ensayos preliminares de tinción en nuestras propias muestras de nódulos en varios puntos temporales (14, 17 y 28 días) y comparamos el contraste de imagen resultante. Se seleccionó un período de tinción de 28 días para este protocolo, ya que proporcionó un mejor contraste, límites celulares más definidos y una tinción más uniforme en comparación con tiempos más cortos (Figura suplementaria 4). Cabe señalar que las reconstrucciones a los 14 y 17 días provienen de un solo nódulo y no de un estudio sistemático con réplicas, mientras que la condición a los 28 días incluye los cuatro nódulos escaneados, y la duración de la tinción debe ajustarse según la resolución necesaria para el estudio. Un período de 28 días de tinción tampoco es breve. Como se ha sugerido en estudios previos, la tinción asistida por microondas puede ayudar a acelerar la penetración del PTA y, por tanto, reducir la duración necesaria de la tinción14. También se utilizan agentes a base de yodo, como la solución de Lugol, para mejorar el contraste en tejidos vegetales23,24. Seleccionamos el PTA en función de su desempeño demostrado en tejido de nódulos y no comparamos diferentes agentes de tinción, ya que el objetivo principal de este estudio fue establecer un único protocolo reproducible14. Estudios futuros deberían evaluar otros colorantes en diferentes especies vegetales y tipos de tejido.
La inclusión adecuada es igualmente importante. La muestra debe permanecer completamente cubierta con agarosa de punto de fusión bajo para evitar la deshidratación y mantener su morfología natural. Tras la inclusión, las muestras deben almacenarse durante la noche a 4 °C para asegurar la solidificación de la agarosa y mantener la estabilidad durante el escaneo. La muestra montada debe fijarse firmemente al soporte de escaneo para evitar derivas o artefactos por vibración durante la adquisición de datos.
La microCT permite la visualización tridimensional no destructiva de tejido completo del nódulo con una resolución más gruesa que la microscopía óptica y electrónica. Tanto la microtomografía de rayos X (XRM) como la tomografía computarizada de rayos X basada en sincrotrón generalmente proporcionan imágenes de mayor calidad y resolución que la microCT convencional. La tomografía de rayos X basada en sincrotrón también puede permitir escanear directamente muestras frescas y sin tinción, ya que el alto flujo de fotones y la coherencia del haz permiten una adquisición rápida y contraste suficiente sin agentes de realce de contraste6. La comparación directa con Duncan et al. (2022)14 y Nakhforoosh et al. (2024)6 se ve limitada por diferencias en el diseño del estudio: especie (soja frente a Medicago sativa), tipo de nódulo (determinado frente a indeterminado) y modalidad de imagen (XRM y tomografía de rayos X basada en sincrotrón frente a microCT convencional). No obstante, el tamaño nominal del píxel de nuestras reconstrucciones del nódulo es aproximadamente 1,75 µm, más fino que el escaneo del nódulo en Duncan et al. (2022)14 (2,2 µm, Figura 4A), aunque sus reconstrucciones aún muestran mayor claridad que las nuestras. Esto probablemente refleja que la resolución efectiva depende de más que el tamaño nominal del píxel; la magnificación óptica de las lentes objetivas del XRM, la sensibilidad del detector, la estabilidad de la fuente, la calidad de la cámara y los métodos de reconstrucción contribuyen todos. Aunque las estructuras grandes y de baja densidad, como las vacuolas, son fácilmente distinguibles, como se muestra aquí, no es posible discernir la ocupación de células individuales por bacteroides ni orgánulos más pequeños o menos densos, y los procesos biológicos dinámicos no pueden capturarse en tiempo real. Los agentes de contraste basados en ácido fosfotúngstico (PTA) y yodo son no específicos y no pueden informar sobre la identidad molecular. Las preguntas a nivel subcelular seguirán requiriendo microscopía de fluorescencia o microscopía electrónica. Estos enfoques de imagen son complementarios, siendo la microCT especialmente adecuada para la morfología de órganos completos y la arquitectura tisular tridimensional, proporcionando contexto para la microscopía óptica y electrónica, que abordan detalles estructurales y moleculares más finos.
Hemos replicado con éxito este protocolo con nódulos en puntos temporales y estadios de desarrollo similares procedentes de M. sativa inoculada con otras cepas de S. meliloti, así como de M. truncatula y Trigonella foenum-graecum inoculadas con varias cepas diferentes de S. meliloti (datos no publicados). No probamos nódulos de diferentes estadios de desarrollo, ya que nuestro objetivo fue caracterizar y proporcionar un protocolo reproducible para nódulos maduros con capacidad de fijación de nitrógeno. Aun así, el protocolo debería ser aplicable a nódulos en distintos estadios de desarrollo, ya que la limitación más relevante es el tamaño del nódulo. Los nódulos que escaneamos tenían aproximadamente 2,5 mm de longitud (Tabla Suplementaria 1). En el microTC utilizado en este estudio, el tamaño mínimo recomendado es de 1 mm de longitud. El tamaño que puede ser imagenado dependerá del equipo utilizado, ya que los aumentos pueden variar.
Evidencia reciente sugiere que la colonización dentro del nódulo es un parámetro importante que se correlaciona directamente con la eficiencia de la fijación de nitrógeno. Se ha demostrado que los nódulos con una mayor proporción de células infectadas fijan mejor el nitrógeno que aquellos en los que menos células están ocupadas por bacterias25. Además, la salud del nódulo depende del grado de vascularización, y una vascularización interrumpida o limitada indica nódulos defectuosos y una salud vegetal reducida26. Dada la posibilidad de visualizar la colonización y la arquitectura vascular, la microTC cubre un vacío importante en el campo de la fijación de nitrógeno. Este flujo de trabajo hace accesible de forma rutinaria la visualización no destructiva de las estructuras internas y externas de los nódulos radiculares, estructuras que son determinantes directos de la eficiencia de fijación que impulsa el suministro simbiótico de nitrógeno a los cultivos.
Divulgaciones
Los autores no tienen nada que revelar.
Agradecimientos
Queremos agradecer a Stephanie Sage por su ayuda con la preparación de las plantas. Xia Zhao ayudó con la inclusión de muestras. Estamos agradecidos con Madi Mitchell por la discusión inicial del proyecto. Queremos agradecer a Tom Kleist y Kexi Yi por sus consejos sobre la interpretación de datos. También agradecemos a Keith Duncan (Centro de Ciencias de Plantas Donald Danforth) por sus consejos sobre el protocolo. Este proyecto es financiado por el Instituto de Investigación Médica Stowers.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Vial de vidrio de 20 mL | Sigma-Aldrich | Z190527 | Se utiliza para contener nódulos durante la fijación y tinción. |
| Puntas de pipeta de 200 µL | Fisherbrand | 02-717-144 | Se utilizan para contener nódulos durante la obtención de imágenes. |
| Placa de cultivo con micropozo de 35 mm | Fisher Scientific | 507532924 | Se utiliza para lavar los nódulos después de la tinción. |
| Software Dragonfly | Comet Technologies Canada Inc. | V2022.2 | Se utiliza para visualizar y manipular reconstrucciones 2D en una vista 3D. |
| Etileno | Decon Labs | V1001 | Se utiliza para fijar y lavar los nódulos. |
| Pinzas finas | Dumont | AA-Inox-E | Se utilizan para ajustar los nódulos dentro de la punta de la pipeta. |
| Punta para carga de geles | Corning (Costar) | 4853 | Se utiliza para manipular el nódulo dentro del agarosa en el interior de la punta de la pipeta. |
| Placa calefactora | Mirak | SP72725 | Se utiliza para fundir parafina y disolver agarosa de baja fusión. |
| Agarosa de baja fusión | GeneMate | 490001-602 | Se utiliza para el embebido de nódulos radiculares para mantener la orientación y la humedad. |
| MicroCT | Bruker | Bruker SkyScan 1272 | Se utiliza para escanear el nódulo. |
| Software NRecon | Bruker | V2.2.0.6 | Se utiliza para la reconstrucción de proyecciones 2D. |
| Agitador orbital | VWR | 77591-858 | Se utiliza para agitar el nódulo radicular y acelerar la penetración del colorante. |
| Parafina | McCormick Scientific | 39503002 | Se utiliza para sellar el extremo estrecho de la punta de la pipeta. |
| Parafilm | Alkali Scientific | PM996 | Se utiliza para sellar las puntas de la pipeta y evitar que la muestra se seque. |
| Ácido fosfotúngstico | Electron Microscopy Science (EMS) | 19500 | Se utiliza para la tinción de nódulos. |
| Soporte de muestra - L 3,4 cm D 0,63 mm | Bruker | Set from Bruker with machine | Se utiliza para sostener la punta de la pipeta y la muestra durante la obtención de imágenes. |
| Cúter | Fisher Scientific | S07890 | Se utiliza para recolectar nódulos radiculares. |
| Software Skyscan | Bruker | v1.5.1.0 | Se utiliza para manipular el MicroCT. |
| Baño de agua | Boekel Grant | 640013001 | Se utiliza para mantener el agarosa en estado líquido durante el embebido de los nódulos. |
Referencias
- Oldroyd GED, Murray JD, Poole PS, Downie JA. The rules of engagement in the legume-rhizobial symbiosis. Annu Rev Genet. 2011;45:119-44.
- Gibson KE, Kobayashi H, Walker GC. Molecular determinants of a symbiotic chronic infection. Annu Rev Genet. 2008;42:413-41.
- Porter SS, et al. Host-imposed control mechanisms in legume-rhizobia symbiosis. Nat Microbiol. 2024;9:1929-39.
- Guerra-García FJ, Sankari S. NCR peptides in plant-bacterial symbiosis: applications and importance. Trends Microbiol. 2025;33(2):147-50.
- Rae AE, Rolland V, White RG, Mathesius U. New methods for confocal imaging of infection threads in crop and model legumes. Plant Methods. 2021;17:24.
- Nakhforoosh A, et al. Visualization and quantitative evaluation of functional structures of soybean root nodules via synchrotron X-ray imaging. Plant Phenomics. 2024;6.
- Nierenberger M, Rémond Y, Ahzi S, Choquet P. Assessing the three-dimensional collagen network in soft tissues using contrast agents and high resolution micro-CT: Application to porcine iliac veins. C R Biol. 2015;338(7):425-33.
- Livingston D, Tuong T, Nogueira M, Sinclair T. Three-dimensional reconstruction of soybean nodules provides an update on vascular structure. Am J Bot. 2019;106(3):507-13.
- Warner CA, et al. An optical clearing technique for plant tissues, allowing deep imaging and compatible with fluorescence microscopy. Plant Physiol. 2014;166(4):1684-7.
- Indore NS, Karunakaran C, Jayas DS. Synchrotron tomography applications in agriculture and food sciences research: a review. Plant Methods. 2022;18:101.
- Novák K. Determination of symbiotic nodule occupancy in the model Vicia tetrasperma using a fluorescence scanner. Ann Bot. 2011;107(4):709-15.
- Martin L, et al. Cancer cachexia in the age of obesity: Skeletal muscle depletion is a powerful prognostic factor, independent of body mass index. J Clin Oncol. 2013;31(12):1539-47.
- Liguori C, et al. Emerging clinical applications of computed tomography. Med Devices (Auckl). 2015;8:265-78.
- Duncan KE, et al. X-ray microscopy enables multiscale high-resolution 3D imaging of plant cells, tissues, and organs. Plant Physiol. 2022;188(2):831-45.
- Wang J, et al. A deep learning-based micro-CT image analysis pipeline for nondestructive quantification of the maize kernel internal structure. Plant Phenomics. 2025;7(1).
- Brackin R, Atkinson BS, Sturrock CJ, Rasmussen A. Roots-eye view: Using microdialysis and microCT to non-destructively map root nutrient depletion and accumulation zones. Plant Cell Environ. 2017;40(12):3135-42.
- Brodersen CR, Roddy AB. New frontiers in the three-dimensional visualization of plant structure and function. Am J Bot. 2016;103(2):184-8.
- Schoborg TA, et al. Micro-computed tomography as a platform for exploring Drosophila development. Development. 2019;146(23).
- Wang M, et al. Nanoplastics causes extensive congenital malformations during embryonic development by passively targeting neural crest cells. Environ Int. 2023;173.
- Brodersen CR, et al. The dynamics of embolism repair in xylem: In vivo visualizations using high-resolution computed tomography. Plant Physiol. 2010;154(3):1088-95.
- Brodersen CR, et al. In vivo visualizations of drought-induced embolism spread in Vitis vinifera. Plant Physiol. 2013;161(4):1820-9.
- Nolf M, et al. Visualization of xylem embolism by X-ray microtomography: a direct test against hydraulic measurements. New Phytol. 2017;214(2):890-8.
- Karahara I, Yamauchi D, Uesugi K, Mineyuki Y. Three-dimensional visualization of plant tissues and organs by X-ray micro-computed tomography. Microscopy (Oxf). 2023;72(4):310-25.
- Staedler YM, Masson D, Schönenberger J. Plant tissues in 3D via X-ray tomography: simple contrasting methods allow high resolution imaging. PLoS One. 2013;8(9).
- Sánchez-Cañizares C, et al. Developmental fates and N2-fixing efficiency of terminally-differentiated versus undifferentiated bacteroids from legume nodules. Plant Physiol. 2026;200(3).
- Pepper AN, Morse AP, Guinel FC. Abnormal root and nodule vasculature in R50 (sym16), a pea nodulation mutant which accumulates cytokinins. Ann Bot. 2007;99(4):765-76.
Reimpresiones y permisos
Este artículo ha sido publicado
Video próximamente