Este protocolo describe procedimientos paso a paso para evaluar la resistencia del organismo completo al estrés térmico, estrés oxidativo, estrés del retículo endoplásmico y estrés mitocondrial. También proporciona métodos para evaluar si las neuronas desempeñan un papel en la resistencia al estrés.
Artículo de método
Métodos para Medir la Resistencia a Múltiples Estrés en Caenorhabditis elegans
En este artículo
Resumen
Resumen
Los organismos están expuestos a una variedad de factores de estrés ambientales y celulares a lo largo de sus vidas. La capacidad para resistir diferentes factores de estrés se correlaciona estrechamente con el período de buena salud y la longevidad de los organismos. Caenorhabditis elegans (C. eleganses un organismo modelo ideal para la medición de la resistencia al estrés, lo que facilita la investigación de los mecanismos moleculares conservados que subyacen a dicha resistencia. C. elegans también posee un sistema nervioso simplificado fundamental para comprender la base neural de la resistencia al estrés. Aquí, presentamos métodos para medir la resistencia al estrés de C. elegans bajo cuatro condiciones de estrés diferentes: estrés térmico, estrés del retículo endoplasmático (RE), estrés mitocondrial y estrés oxidativo. Los grupos de gusanos se colocan en placas de agar sólido y se exponen a temperaturas desafiantes para inducir estrés térmico, o a agar que contiene diferentes concentraciones de compuestos que inducen estrés del RE, mitocondrial u oxidativo. Hemos establecido concentraciones crecientes de cada tipo de estrés y determinado la dosis óptima para evaluar las diferencias en resistencia al estrés en una cepa con neuronas RIC ablacionadas en comparación con una cepa silvestre, como ejemplo. Bajo condiciones de estrés, C. elegans la supervivencia se monitorea por horas o diariamente, y se trazan y comparan curvas de supervivencia para identificar diferentes capacidades de resistencia al estrés en distintos C. elegans cepas. Estos proporcionan un enfoque reproducible para evaluar la resistencia a múltiples factores de estrés en una variedad de dosis y escalas de tiempo en C. elegans de cepas de tipo salvaje, mutantes o con neuronas manipuladas, y también ayudar a descubrir los mecanismos moleculares y neuronales subyacentes a múltiples factores de estrés.
Introducción
Los organismos experimentan una variedad de estrés ambiental a lo largo de sus vidas. La mayoría de los agentes estresantes, incluyendo calor, hipoxia, radiación, estrés oxidativo, estrés osmótico y estrés patógeno, provocan disfunción celular y desequilibrios en la homeostasis que activan respuestas intracelulares al estrés. Los organismos desarrollan vías altamente conservadas de respuesta al estrés para hacer frente a desafíos y agentes estresantes ambientales dinámicos. Estas vías conservadas de respuesta al estrés incluyen la respuesta al choque térmico (HSR)1, la respuesta a proteínas desdobladas (UPR) en el retículo endoplasmático (ER) y en las mitocondrias2, y la respuesta al estrés oxidativo3. Los reguladores maestros de diferentes vías de respuesta al estrés, generalmente factores de transcripción, inducen la expresión de genes responsivos para restaurar la proteostasis y promover la supervivencia celular4. Estas respuestas incluyen la síntesis de chaperonas que repliegan proteínas mal plegadas y la eliminación de proteínas dañadas mediante degradación proteica4. El fracaso en activar las respuestas al estrés resulta en la acumulación de proteínas dañadas en el citoplasma o en orgánulos, lo que conduce a disfunción celular y tisular. Se ha asociado el desequilibrio en la respuesta celular al estrés con una variedad de enfermedades crónicas, que van desde la neurodegeneración hasta el síndrome metabólico5,6. En contraste, la activación adecuada de las vías de respuesta al estrés conduce a una mejora en el período de buena salud y una extensión sustancial de la longevidad7. Por lo tanto, es importante investigar los mecanismos moleculares de la resistencia al estrés para aprovechar la respuesta protectora al estrés con fines de mejora de la salud. Así pues, es necesario establecer métodos y técnicas reproducibles para cuantificar con precisión la resistencia al estrés en animales vivos.
Los descubrimientos de los últimos 15 años han demostrado un papel de la señalización neural en la mejora de la resistencia al estrés en múltiples especies8. Los hallazgos iniciales mostraron que la RSH y la RUPR del RE en las neuronas son suficientes para activar la respuesta al estrés en tejidos no neuronales, estableciendo así el concepto de regulación no autónoma celular de la resistencia al estrés8,9,10. Desde este descubrimiento inicial, una creciente evidencia ha demostrado que múltiples vías de resistencia al estrés responden a señales ambientales y promueven la resistencia al estrés mediante la señalización neural. En particular, la RSH10,11, la RUPR del RE12,13, la respuesta de proteínas mal plegadas mitocondriales (RUPRmt)14,15 y la respuesta al estrés oxidativo3 promueven cada una la resistencia al estrés de forma no autónoma celular a través de las neuronas. El mecanismo de regulación no autónoma celular de la resistencia al estrés está conservado en organismos como la mosca del vinagre D. melanogaster16,17,18,19 y los ratones20,21.
Para facilitar la investigación sobre el papel de las neuronas en la resistencia al estrés bajo múltiples factores de estrés, aquí presentamos un protocolo sistemático para evaluar la resistencia frente a cuatro tipos de estrés regulados neuronalmente: estrés térmico, estrés del retículo endoplásmico, estrés mitocondrial y estrés oxidativo. Se utilizó C. elegans, un organismo modelo manejable, para medir la resistencia al estrés frente a estos cuatro factores. El uso de C. elegans en ensayos de resistencia al estrés permite no solo estudiar la activación de las respuestas al estrés a nivel celular, sino también a nivel del organismo completo.
Las vías de respuesta al estrés activadas por el estrés térmico, el estrés del retículo endoplásmico, el estrés mitocondrial y el estrés oxidativo están conservadas y son funcionalmente importantes en organismos como los humanos22,23,24,25. El estrés térmico provoca el mal plegamiento y la agregación de proteínas, y activa la respuesta al choque térmico, que es fundamental para mantener la homeostasis proteica26. La temperatura ambiental fisiológica para C. elegans es de 20 °C, y temperaturas más cálidas superiores a 25 °C inducen estrés térmico en C. elegans27. Inducimos estrés térmico a tres temperaturas elevadas y desafiantes: 30 °C, 35 °C y 37 °C.
El RE es el sitio principal para la síntesis y plegamiento de proteínas28. La acumulación de proteínas desdobladas o mal plegadas dentro de la luz del RE activa respuestas a proteínas desdobladas para restablecer la proteostasis29. El estrés del RE puede inducirse mediante un compuesto químico, la tunicamicina, que bloquea la glicosilación N-vinculada y provoca la acumulación de proteínas mal plegadas en la luz del RE30. Un aumento en la resistencia al estrés por mal plegamiento de proteínas en la luz del RE indica una mayor supervivencia12. Exponemos gusanos a diferentes dosis de tunicamicina (25–200 µg/mL) y evaluamos su sensibilidad midiendo su supervivencia.
Las mitocondrias son el centro metabólico celular y las «centrales energéticas» de la célula. Las especies reactivas de oxígeno (ROS) y las proteínas desdobladas en las mitocondrias desencadenan respuestas mitocondriales a proteínas desdobladas e inducen estrés mitocondrial31. El estrés mitocondrial puede inducirse mediante antimicina A, un inhibidor del complejo III mitocondrial que bloquea la transferencia de electrones y provoca la producción de ROS32. Utilizamos diferentes dosis de antimicina A (5–80 µg/mL) para identificar una dosis óptima para el ensayo de resistencia al estrés mitocondrial.
El estrés oxidativo generalmente es inducido por toxinas ambientales y radicales libres celulares producidos por el metabolismo. El estrés oxidativo causa daño a proteínas, lípidos y ADN en todos los organismos33. La paraquat, un compuesto herbicida que transfiere electrones al oxígeno y genera cantidades excesivas de radicales superóxido, es un potente inductor del estrés oxidativo34. Aplicamos cuatro dosis crecientes de paraquat (2,5–20 mM) y mostramos un rango de supervivencia máxima que abarca de 3 a 12 días en C. elegans.
Estas cuatro condiciones de estrés son sencillas de producir y permiten obtener resultados altamente reproducibles de resistencia al estrés en C. elegans. Los métodos de resistencia al estrés ya han sido descritos previamente35,36,37,38,39,40. En comparación con una revisión publicada anteriormente que resume distintos agentes de estrés y análisis de supervivencia35, este artículo establece protocolos detallados y factibles paso a paso para realizar ensayos de estrés reproducibles y consistentes. Varios protocolos publicados previamente se centraron en un ensayo específico de estrés, como el choque térmico36 o el estrés oxidativo38; mientras que este protocolo demuestra los cuatro ensayos diferentes de estrés: térmico, del retículo endoplásmico, mitocondrial y oxidativo. Los protocolos de ensayo de estrés publicados anteriormente también incluyen un ensayo final diferente con reporteros fluorescentes, tales como reporteros transcripcionales fluorescentes específicos para vías del estrés del retículo endoplásmico, mitocondrial y oxidativo40, o la respuesta al choque térmico39; mientras que este protocolo utiliza ensayos de supervivencia para medir eficazmente la salud general de C. elegans. Es importante destacar que este protocolo presenta una titulación de dosis en los cuatro ensayos, proporcionando referencias del rango de dosis efectivo que puede seleccionarse para los ensayos de estrés; este protocolo optimizó la escala de tiempo (desde horas hasta días) en los diferentes ensayos de estrés; además, presentamos un nuevo papel de una neurona regulando múltiples respuestas al estrés, como ejemplo para probar si las neuronas regulan la resistencia al estrés.
El desarrollo de un ensayo de resistencia al estrés requiere la selección de un agente de estrés adecuado y una métrica de evaluación confiable. Los ensayos de supervivencia en C. elegans han sido herramientas poderosas para medir procesos fisiológicos, incluyendo la longevidad, la resistencia al estrés y las infecciones patológicas. Una ventaja clave del uso de C. elegans en ensayos de supervivencia es que es sencillo preparar y analizar gusanos sincronizados de la misma edad, gracias a su autofecundación, su gran tamaño de camada y su ciclo de desarrollo corto de tres días desde los huevos hasta adultos jóvenes. Los machos son raros en poblaciones naturales de C. elegans cultivados y, por lo tanto, generalmente no se utilizan en ensayos de supervivencia, incluido este protocolo, y se emplean principalmente en cruces genéticos35. En comparación con otros métodos de evaluación final (por ejemplo, reporteros fluorescentes, acumulación de proteínas y lípidos), los ensayos de supervivencia son eficaces para medir la salud general de C. elegans y requieren relativamente poco tiempo para completarse, generalmente desde horas hasta varias semanas, dependiendo de la dosis de los agentes de estrés. Utilizamos las tasas de supervivencia como indicador principal de resistencia al estrés en diferentes cepas de C. elegans. La supervivencia se determina mediante la motilidad y la respuesta a una estimulación mecánica suave; la ausencia de respuesta a la estimulación se utiliza para definir la mortalidad en los ensayos de estrés en C. elegans. Los ensayos de supervivencia en C. elegans pueden realizarse en medios sólidos o líquidos con alimento bacteriano35. Sin embargo, el medio líquido no es el hábitat natural de los gusanos, y estos se ven obligados a agitarse constantemente en el cultivo líquido, lo que conduce a una curva de supervivencia más corta41. Aquí, utilizamos el medio sólido para evaluar los efectos de diferentes concentraciones de agentes de estrés sobre la supervivencia de gusanos mutantes de tipo silvestre y con ablación neuronal. Estos datos de titulación por concentración pueden servir de guía para otros investigadores que realicen ensayos comparables de resistencia al estrés.
Protocolo
Los experimentos que involucraron a C. elegans se realizaron en la Universidad Estatal de Kansas, Manhattan, KS, EE. UU., de acuerdo con las directrices institucionales de bioseguridad y de laboratorio. Dado que C. elegans es un organismo modelo invertebrado, no se requirió la aprobación del comité de ética para animales vertebrados para este estudio. Los detalles de todos los reactivos, equipos, software y cepas utilizados se enumeran en la Tabla de Materiales.
1. Preparar placas de medio de crecimiento para nematodos (NGM) y preparar Escherichia coli OP50
- Preparar placas de NGM
- Pese 3 g de NaCl, 17 g de Agar (en polvo) y 2,5 g de Peptona, añada 900 mL de agua desionizada ultrapura (dd) H2O y llevarlo a un volumen final de 1 L, y esterilizar por autoclave. Enfriar el medio hasta aproximadamente 60 °C en un 60 °C baño de agua
- Añada 1 mL de CaCl₂ 1 M2 (preparado en ddH₂O)2O y esterilizado por filtración), 1 mL de colesterol al 5 mg/mL (preparado en etanol y esterilizado por filtración), 1 mL de MgSO4 1 M (preparado en ddH2O y esterilizado por filtración), y 25 mL de tampón KP 1 M.
Para preparar el tampón KP, mezcle 130 mL de K2HPO4 con 870 mL de KH 1 M2PO4 preparado en ddH₂O2O. Después de mezclar bien, ajustar el pH a 6,0. Tras la preparación, el pH medido generalmente es cercano a 6,0 y no se requiere ningún ajuste adicional. El rango de pH aceptable para el tampón KP es de 5,8–6,2, con un pH objetivo de 6,0. Verificar que el pH final sea aproximadamente 6,0 antes de usarlo. Si es necesario, ajustar a pH 6,0 utilizando K 1 M2HPO4 o KH 1 M2PO4. - Mezcle bien y vierta el medio (NGM) en placas (placas de Petri). Para placas de 60 mm, vierta 10 mL de medio NGM por placa; para placas de 35 mm, verter 3 mL de medio NGM por placa. Dejar las placas de agar NGM a temperatura ambiente (22–25 °C) sobre un banco plano durante al menos 24 h antes de sembrar el alimento bacteriano.
PRECAUCIÓN: Al preparar y verter agar NGM fundido, utilice guantes resistentes al calor y el equipo de protección personal (EPP) adecuado para prevenir quemaduras y exposición a líquidos calientes.
- Preparar Escherichia coli alimento bacteriano OP50 para Caenorhabditis elegans
- Raya Escherichia coli bacterias OP50 en una placa de agar Luria-Bertani (LB) e incubar a 37 °C durante la noche (placas de agar LB: añadir 1 g de NaCl, 1 g de triptona, 0,5 g de extracto de levadura y 1,5-2,0 g de agar en polvo a 100 mL de H₂O dd)2O, esterilice en autoclave durante 20 min y enfríe a 50-60 °C y verter el medio en las placas. Colocar sobre una superficie limpia y plana y dejar secar.
- Inocular una colonia individual en 100 mL de medio líquido LB (medio LB: añadir 1 g de NaCl, 1 g de triptona y 0,5 g de extracto de levadura a 100 mL de H₂O dd)2O, esterilice en autoclave durante 20 min. Enfríe por debajo de 37 °C antes de la inoculación).
- Cultivar las bacterias en un 37 °C incubadora con agitación hasta que la suspensión bacteriana alcance una densidad óptica a 600 nm (OD600) de aproximadamente 0,3 en una dilución 1:10 de la suspensión bacteriana (100 µL de mezcla de suspensión bacteriana con 900 µL de medio LB). Recoger y almacenar la suspensión bacteriana a 4 °C. El alimento bacteriano se puede almacenar hasta una semana antes de sembrarlo en una placa de NGM40.
- Utilice un pipeteador repetidor para sembrar bacterias OP50 en las placas de NGM. Siembre 200 µL para placas de agar de 60 mm, y 100 µL para placas de agar de 35 mm. Deje las placas de NGM sembradas a temperatura ambiente (~22–25 °C) sobre un banco plano durante al menos 24 h antes de su uso. No deje las placas a temperatura ambiente por más de 48 h. Organice las placas sembradas en una caja de plástico limpia y almacénelas a 4 °C.
NOTA: Si se utilizan placas no ventiladas, es posible que el OP50 sembrado necesite más tiempo para secarse.
PRECAUCIÓN: Manipular E. coli Cultivos OP50 utilizando prácticas microbiológicas adecuadas y use una bata de laboratorio, guantes y protección ocular. Desinfecte las superficies de trabajo y deseche los desechos bacterianos según los procedimientos institucionales de bioseguridad.
2. Mantenimiento y sincronización de C. elegans
El flujo de trabajo de esta sección se resume en la Figura 1A.
- Mantenga los gusanos a 20 °C en placas de NGM sembradas con OP50, transfiriendo adultos a nuevas placas de NGM sembradas con OP50 dos veces por semana para evitar que los gusanos sufran hambre. Coloque 20–40 gusanos adultos grávidos en una placa fresca de NGM sembrada con OP50 utilizando un asa de alambre de platino, y elimine cualquier larva y huevos que se hayan transferido junto con los adultos grávidos desde la placa original. Utilizar un número conocido de gusanos grávidos facilita un registro preciso y asegura su eliminación completa en una etapa posterior (sección 1.2).
NOTA: Un total de 20–40 gusanos grávidos es suficiente para producir 80–120 huevos en 2 h, basado en las condiciones de una cepa de tipo silvestre (N2). La puesta de huevos se encuentra en su ventana óptima cuando los adultos grávidos están en el primer día (día 1) de edad adulta. Para cepas con fecundidad menor o mayor, ajuste el número de gusanos grávidos en consecuencia. El objetivo de este paso es obtener suficientes huevos que se desarrollarán en gusanos sincronizados para los ensayos de estrés posteriores. - Después de aproximadamente 2 h, retire los gusanos grávidos de la placa. Cuente el número de gusanos grávidos que se retiran en este paso y confirme que se han eliminado todos los 20–40 gusanos grávidos colocados en la placa.
- Incube las placas que contienen huevos a 20 °C hasta que los gusanos alcancen la etapa L4 tardía para los ensayos de estrés. Sincronice los gusanos en la etapa L4 para minimizar la variabilidad introducida por diferencias en la edad adulta y el estado reproductivo12,35,37,38,40,42,43. A 20 °C, los gusanos alcanzan la etapa L4 tardía uniformemente sincronizada aproximadamente entre 54 y 58 h después de que los huevos fueron puestos en placas de agar sólido en la cepa de tipo silvestre (nuestra observación y 36,40).
NOTA: Para cepas con desarrollo retrasado, ajuste el momento de sincronización a la etapa L4 tardía de acuerdo con sus tasas de desarrollo específicas.
ADVERTENCIA: Manipule C. elegans utilizando prácticas microbiológicas adecuadas y use bata de laboratorio y guantes para minimizar la exposición a material biológico y prevenir la contaminación.
3. Condición de estrés y recopilación de datos
- Ensayo de estrés térmico
El flujo de trabajo de esta sección se resume en Figura 1B.- Sincronice los gusanos hasta la etapa tardía L4 (sección 2) y manténgalos a 20 °C. Transfiera los gusanos sincronizados en etapa L4 a placas NGM de 35 mm sembradas con OP50 (sección 1), utilizando 4 placas por grupo como réplicas técnicas, con 30–35 gusanos por placa. Consulte la sección 4 para el diseño de réplicas biológicas.
- Coloque las placas con gusanos en etapa L4 tardía en una incubadora a 30, 35 o 37 °C. Asegúrese de que la incubadora alcance la temperatura establecida antes de colocar dentro las placas con los gusanos ensayados. La supervivencia media de gusanos de tipo salvaje bajo 30, 35 o 37 °C oscila entre aproximadamente 4 h y 3 días (Figura 2B–D) en comparación con una supervivencia media fisiológicamente no estresada de aproximadamente 20 días (Figura 2A).
PASO CRÍTICO: Coloque todas las placas del ensayo con la cara del agar hacia abajo como una sola capa en la incubadora a 35 °C para permitir una equilibración térmica rápida y uniforme.
NOTA: Durante los ensayos de estrés térmico a 30, 35 o 37 °C, la mayoría de los gusanos no ponen huevos. En los raros casos en que se ponen huevos, ninguno de ellos eclosiona. Por lo tanto, no es necesario transferir los gusanos a placas nuevas. - Registre el número de gusanos muertos en cada punto temporal de cada placa de réplica técnica y anote el número en una hoja de datos. La supervivencia de los gusanos se registra cada hora bajo estrés térmico de 35 °C o 37 °C, y una vez al día bajo estrés térmico de 30 °C. El registro se realiza bajo un microscopio estereoscópico a temperatura ambiente. Durante el registro, retire únicamente la placa que se está examinando de la incubadora; todas las demás placas deben permanecer a la temperatura designada de estrés térmico para minimizar interrupciones en la exposición. Esta práctica ayuda a mantener condiciones experimentales consistentes en todas las muestras.
PASO CRÍTICO: Para minimizar la interrupción de la exposición al estrés térmico, mantenga cada placa fuera de la incubadora durante no más de 3 min en cada sesión de registro. Dependiendo de la supervivencia de los gusanos en diferentes puntos temporales durante el ensayo de estrés, registrar una placa a temperatura ambiente generalmente toma aproximadamente entre 30 s y 3 min. El orden del registro es importante considerando el tiempo empleado en el registro manual. Recomendamos un orden en el que se registre una réplica técnica de cada condición hasta completar todas las réplicas técnicas en todas las condiciones. Por ejemplo, en tres condiciones/grupos (A, B y C) con 4 placas de réplica técnica, organice el orden de registro como: A1, B1, C1 → A2, B2, C2 → A3, B3, C3 → A4, B4, C4. - Evalue la supervivencia de los gusanos según si se observa alguna respuesta de movimiento a una estimulación física suave. Los gusanos que se mueven activamente se consideran vivos, y no se requiere estimulación física. Para los gusanos que no muestran movimiento espontáneo, estimúlelos suavemente tocando dos veces la región posterior del cuerpo con una aguja de platino. La ausencia de respuesta motora se registra como muerte y el gusano muerto se retira de la placa tras anotarlo. Una observación de aproximadamente 2 s después de cada toque es suficiente para determinar si hay respuesta de movimiento. Se recomienda usar un contador manual para registrar el número de gusanos vivos y muertos durante el conteo y reducir errores. Para asegurar que todos los gusanos se cuenten una sola vez y no repetidamente, coloque una lámina plástica transparente con cuadrícula debajo de la placa, o dibuje una cuadrícula en la parte inferior de la placa para dividirla en secciones para el conteo.
NOTA: Devuelva inmediatamente las placas a la incubadora con la condición de calor después del registro. - Monitoree la supervivencia de los gusanos a intervalos regulares hasta que todos los animales mueran o sean censurados según los criterios predefinidos. Compile los datos de supervivencia registrados y úselos para generar curvas de supervivencia para el análisis posterior.
- Ensayo de estrés del retículo endoplásmico (ER)
El flujo de trabajo de esta sección se resume en Figura 1C.- Prepare placas de medio para el ensayo de estrés del ER. Añada solución stock de tunicamicina (10 mg/mL en dimetilsulfóxido (DMSO), almacenada a –20 °C) al medio NGM líquido (de la sección 1.1.2) hasta una concentración final de 25, 50, 100 o 200 µg/mL. Por ejemplo, para 1 L de medio para ensayo de estrés del ER, añada 2,5, 5, 10 o 20 mL de solución stock de tunicamicina (10 mg/mL en DMSO) para alcanzar una concentración final de 25, 50, 100 o 200 µg/mL de tunicamicina en las placas de medio. Si se incluye un control no tratado en el ensayo, añada la misma cantidad de DMSO (2,5, 5, 10 o 20 mL) al medio de control correspondiente.
PASO CRÍTICO: Enfríe el medio NGM autoclavado hasta aproximadamente 55 °C mientras agita y añada la tunicamicina hasta la concentración final deseada. Mezcle bien antes de verter 3 mL del medio NGM con tunicamicina en cada placa de 35 mm. Siembre cada placa de agar de 35 mm con 100 µL de bacterias OP50 (sección 1.2). Las placas NGM sembradas con OP50 y tunicamicina pueden almacenarse a 4 °C hasta una semana antes de su uso.
ADVERTENCIA: La tunicamicina es peligrosa y debe manipularse en una campana extractora de gases, usando bata de laboratorio, guantes y protección ocular. Evite la inhalación y el contacto con la piel o los ojos. - Sincronice los gusanos hasta la etapa tardía L4 (sección 2) y manténgalos a 20 °C. Transfiera los gusanos sincronizados en etapa L4 a placas NGM de 35 mm sembradas con OP50 que contengan tunicamicina, utilizando 4 placas por grupo como réplicas técnicas, con 30–35 gusanos por placa. Consulte la sección 4 para el diseño de réplicas biológicas.
- Incube todas las placas a 20 °C. Registre diariamente el número de gusanos muertos. La supervivencia media de gusanos de tipo salvaje bajo 25, 50, 100 o 200 µg/mL de tunicamicina oscila entre aproximadamente 8 y 11 días (Figura 2E,F) en comparación con una supervivencia media fisiológicamente no estresada de aproximadamente 20 días (Figura 2A).
NOTA: En el ensayo de estrés del ER inducido por tunicamicina, se ponen huevos, pero no eclosionan en placas de agar que contienen tunicamicina. Por lo tanto, no es necesario transferir los gusanos a placas nuevas. - Registre diariamente el número de gusanos muertos en cada placa de réplica técnica y anote el número en una hoja de datos. El registro se realiza manualmente bajo un microscopio estereoscópico en la bancada a temperatura ambiente. Los gusanos que se mueven activamente se consideran vivos y no se requiere estimulación física. Para los gusanos que no muestran movimiento espontáneo, estimúlelos suavemente tocando dos veces la región posterior del cuerpo con una aguja de platino. La ausencia de respuesta se registra como muerte y el gusano muerto se retira de la placa tras anotarlo. Se recomienda un contador manual para asegurar un conteo preciso. Para garantizar que todos los gusanos se cuenten una vez y no repetidamente, coloque una lámina plástica transparente con cuadrícula debajo de la placa, o dibuje una cuadrícula en la parte inferior de la placa para dividirla en secciones para el conteo.
NOTA: Devuelva inmediatamente las placas a la incubadora después del registro. Mantenga los gusanos en la incubadora durante aproximadamente 24 h antes del próximo registro. - Monitoree la supervivencia de los gusanos diariamente hasta que todos los animales mueran o sean censurados según los criterios predefinidos. Compile los datos de supervivencia registrados y úselos para generar curvas de supervivencia para el análisis posterior.
- Prepare placas de medio para el ensayo de estrés del ER. Añada solución stock de tunicamicina (10 mg/mL en dimetilsulfóxido (DMSO), almacenada a –20 °C) al medio NGM líquido (de la sección 1.1.2) hasta una concentración final de 25, 50, 100 o 200 µg/mL. Por ejemplo, para 1 L de medio para ensayo de estrés del ER, añada 2,5, 5, 10 o 20 mL de solución stock de tunicamicina (10 mg/mL en DMSO) para alcanzar una concentración final de 25, 50, 100 o 200 µg/mL de tunicamicina en las placas de medio. Si se incluye un control no tratado en el ensayo, añada la misma cantidad de DMSO (2,5, 5, 10 o 20 mL) al medio de control correspondiente.
- Ensayo de estrés mitocondrial
El flujo de trabajo de esta sección se resume en Figura 1D.- Prepare placas de medio para el ensayo de estrés mitocondrial. Añada solución stock de antimicina A (5 mg/mL en DMSO, almacenada a –20 °C) al medio NGM líquido (de la sección 1.1.2) hasta una concentración final de 5, 10, 20, 40 o 80 µg/mL. Por ejemplo, para 1 L de medio para ensayo de estrés mitocondrial, añada 1, 2, 4, 8 o 16 mL de solución stock de antimicina A (5 mg/mL en DMSO) para alcanzar una concentración final de 5, 10, 20, 40 o 80 µg/mL de antimicina A en las placas de medio. Si se incluye un control no tratado en el ensayo, añada la misma cantidad de DMSO (1, 2, 4, 8 o 16 mL) al medio de control correspondiente.
PASO CRÍTICO: Enfríe el medio NGM autoclavado hasta aproximadamente 55 °C mientras agita y añada la antimicina A hasta la concentración final deseada. Mezcle bien antes de verter 3 mL del medio NGM con antimicina A en cada placa de 35 mm. Siembre cada placa de agar de 35 mm con 100 µL de bacterias OP50 (sección 1.2). Las placas NGM sembradas con OP50 y antimicina A pueden almacenarse a 4 °C hasta una semana antes de su uso.
ADVERTENCIA: La antimicina A es peligrosa y debe manipularse en una campana extractora de gases, usando bata de laboratorio, guantes adecuados y protección ocular. Evite la inhalación y el contacto con la piel o los ojos. - Sincronice los gusanos hasta la etapa tardía L4 (sección 2) y manténgalos a 20 °C. Transfiera los gusanos sincronizados en etapa L4 a placas NGM de 35 mm sembradas con OP50 que contengan antimicina A, utilizando 4 placas por grupo como réplicas técnicas, con 30–35 gusanos por placa. Consulte la sección 4 para el diseño de réplicas biológicas.
- Incube todas las placas a 20 °C. Registre diariamente el número de gusanos muertos.
PASO CRÍTICO: Debido a problemas con la eclosión de huevos y el desarrollo de larvas, transfiera los gusanos a placas nuevas cada dos días durante los primeros 10 días. Deje de transferir cuando ya no se observen nuevas larvas ni huevos en la placa. Todas las réplicas técnicas deben someterse al mismo número de transferencias. Por ejemplo, cuando solo una placa requiera transferencia, todas las placas de esta réplica biológica deben transferirse al mismo tiempo. La supervivencia media de gusanos de tipo salvaje bajo 5, 10, 20, 40 o 80 µg/mL de antimicina A oscila entre aproximadamente 1,5 y 5 días (Figura 2G,H) en comparación con una supervivencia media fisiológicamente no estresada de aproximadamente 20 días (Figura 2A).
NOTA: El ensayo de estrés mitocondrial inducido por antimicina A requiere la transferencia de gusanos a placas nuevas cada dos días durante los primeros 10 días. Esta transferencia se realiza para prevenir el hacinamiento y la desnutrición, y para distinguir los gusanos experimentales de su progenie. - Registre diariamente el número de gusanos muertos en cada placa de réplica técnica y anote el número en una hoja de datos. El registro se realiza manualmente bajo un microscopio estereoscópico en la bancada a temperatura ambiente. Los gusanos que se mueven activamente se consideran vivos y no se requiere estimulación física. Para los gusanos que no muestran movimiento espontáneo, estimúlelos suavemente tocando dos veces la región posterior del cuerpo con una aguja de platino. La ausencia de respuesta se registra como muerte y el gusano muerto se retira de la placa tras anotarlo. Se recomienda un contador manual para asegurar un conteo preciso. Para garantizar que todos los gusanos se cuenten una vez y no repetidamente, coloque una lámina plástica transparente con cuadrícula debajo de la placa, o dibuje una cuadrícula en la parte inferior de la placa para dividirla en secciones para el conteo.
NOTA: Devuelva inmediatamente los gusanos a la incubadora después del registro. Mantenga los gusanos en la incubadora durante aproximadamente 24 h antes del próximo registro. - Monitoree la supervivencia de los gusanos diariamente hasta que todos los animales mueran o sean censurados según los criterios predefinidos. Compile los datos de supervivencia registrados y úselos para generar curvas de supervivencia para el análisis posterior.
- Prepare placas de medio para el ensayo de estrés mitocondrial. Añada solución stock de antimicina A (5 mg/mL en DMSO, almacenada a –20 °C) al medio NGM líquido (de la sección 1.1.2) hasta una concentración final de 5, 10, 20, 40 o 80 µg/mL. Por ejemplo, para 1 L de medio para ensayo de estrés mitocondrial, añada 1, 2, 4, 8 o 16 mL de solución stock de antimicina A (5 mg/mL en DMSO) para alcanzar una concentración final de 5, 10, 20, 40 o 80 µg/mL de antimicina A en las placas de medio. Si se incluye un control no tratado en el ensayo, añada la misma cantidad de DMSO (1, 2, 4, 8 o 16 mL) al medio de control correspondiente.
- Ensayo de estrés oxidativo
El flujo de trabajo de esta sección se resume en Figura 1E.- Prepare placas de medio para el ensayo de estrés oxidativo. Añada solución stock de paraquat (0,5 M en ddH2O, almacenada a –20 °C) al medio NGM líquido (de la sección 1.1.2) hasta una concentración final de 2,5, 5, 10 o 20 mM.
PASO CRÍTICO: Enfríe el medio NGM autoclavado hasta aproximadamente 55 °C mientras agita y añada el paraquat hasta la concentración final deseada. Mezcle bien antes de verter 3 mL del medio NGM con paraquat en placas de 35 mm. Siembre cada placa de agar de 35 mm con 100 µL de bacterias OP50 (sección 1.2). Las bacterias OP50 pueden sembrarse 2–3 días antes del ensayo. Las placas NGM sembradas con OP50 y paraquat pueden almacenarse a 4 °C hasta una semana antes de su uso.
ADVERTENCIA: El paraquat es altamente tóxico y debe manipularse en una campana extractora de gases con guantes adecuados, bata de laboratorio y protección ocular. Evite la inhalación, ingestión y contacto con la piel o los ojos. - Sincronice los gusanos hasta la etapa tardía L4 (sección 2) y manténgalos a 20 °C. Transfiera los gusanos sincronizados en etapa L4 a placas NGM de 35 mm sembradas con OP50 que contengan paraquat, utilizando 4 placas por grupo como réplicas técnicas, con 30–35 gusanos por placa. Consulte la sección 4 para el diseño de réplicas biológicas.
- Incube todas las placas a 20 °C. Registre diariamente el número de gusanos muertos. La supervivencia media de gusanos de tipo salvaje bajo 2,5, 5, 10 o 20 mM de paraquat oscila entre aproximadamente 2,5 y 5 días (Figura 2I,J), en comparación con una supervivencia media fisiológicamente no estresada de aproximadamente 20 días (Figura 2A).
NOTA: En el ensayo de estrés oxidativo inducido por paraquat, no es necesario transferir los gusanos a placas nuevas. Un número limitado de larvas está presente en las placas con paraquat y se detienen en su desarrollo en la etapa L2 o antes durante todo el ensayo. No interfieren con la identificación de cohortes sincronizadas ni causan desnutrición. Dado el estrés físico que podría introducirse mediante la transferencia de gusanos, no se recomienda transferirlos durante el ensayo. - Registre diariamente el número de gusanos muertos en cada placa de réplica técnica y anote el número en una hoja de datos. El registro se realiza manualmente bajo un microscopio estereoscópico en la bancada a temperatura ambiente. Los gusanos que se mueven activamente se consideran vivos y no se requiere estimulación física. Para los gusanos que no muestran movimiento espontáneo, estimúlelos suavemente tocando dos veces la región posterior del cuerpo con una aguja de platino. La ausencia de respuesta se registra como muerte y el gusano muerto se retira de la placa tras anotarlo. Se recomienda un contador manual para asegurar un conteo preciso. Para garantizar que todos los gusanos se cuenten una vez y no repetidamente, coloque una lámina plástica transparente con cuadrícula debajo de la placa, o dibuje una cuadrícula en la parte inferior de la placa para dividirla en secciones para el conteo.
NOTA: Devuelva inmediatamente los gusanos a la incubadora después del registro. Mantenga los gusanos en la incubadora durante aproximadamente 24 h antes del próximo registro. - Monitoree la supervivencia de los gusanos diariamente hasta que todos los animales mueran o sean censurados según los criterios predefinidos. Compile los datos de supervivencia registrados y úselos para generar curvas de supervivencia para el análisis posterior.
- Prepare placas de medio para el ensayo de estrés oxidativo. Añada solución stock de paraquat (0,5 M en ddH2O, almacenada a –20 °C) al medio NGM líquido (de la sección 1.1.2) hasta una concentración final de 2,5, 5, 10 o 20 mM.
4. Análisis de datos
- Registre el número de gusanos muertos en cada placa de réplica técnica en cada punto de tiempo. Los datos de mortalidad se anotan en una hoja de puntuación organizada por punto de tiempo (horas o días posteriores al inicio de la condición de estrés), grupo experimental (diferentes cepas o diferentes condiciones de tratamiento) y réplica técnica (placa 1, 2, 3 o 4). En cada intervalo de puntuación (por hora o por día, según el ensayo), el número de gusanos muertos se registra por separado para cada placa, y se realiza un seguimiento de la mortalidad acumulada hasta que finalice el ensayo.
- Introduzca los datos de mortalidad de cada punto temporal de puntuación en OASIS 2 (aplicación en línea para análisis de supervivencia 2)44 para la generación de curvas de supervivencia de Kaplan-Meier y análisis estadístico de log-rango. Alternativamente, la mortalidad puede calcularse como el porcentaje de gusanos muertos en puntos de tiempo individuales y compararse entre grupos utilizando una prueba t de Student no pareada de dos colas prueba t (para dos grupos) o ANOVA de un factor seguido de la prueba de comparaciones múltiples de Tukey (para tres o más grupos).
NOTA: Los gusanos que presentan rotura o eclosión matricida (formación de bolsa) se consideran muertos en el momento en que se observan, para reflejar la supervivencia general. Los gusanos rotos y los gusanos con cría interna (bagged) se incluyeron en las curvas de supervivencia reportadas en los resultados representativos a continuación. Se registraron los números de gusanos censurados provenientes de diferentes condiciones en Tabla suplementaria 1. Los gusanos que escapan de la placa de ensayo, se deshidratan en la pared de la placa o están ausentes durante la puntuación se consideran observaciones censuradas y se excluyen del análisis subsiguiente de supervivencia. Los animales que presentan movimiento deteriorado pero muestran respuesta al tacto suave se registran como vivos. Los gusanos que presentan defectos en la puesta de huevos antes del inicio del ensayo se excluyen del análisis de supervivencia. - Realice todos los ensayos de estrés con al menos tres réplicas biológicas independientes realizadas en días diferentes. Cada réplica biológica consta de cuatro placas con gusanos como réplicas técnicas. Los datos de las réplicas técnicas dentro de una réplica biológica se agrupan para generar una única curva de supervivencia. Las réplicas biológicas independientes se analizan por separado y se presentan como conjuntos de datos individuales, no agrupados. Cada réplica biológica se realiza utilizando medios preparados independientemente y nuevos lotes de compuestos inductores de estrés. Los protocolos descritos anteriormente corresponden a los pasos para generar una réplica biológica por cada ensayo de estrés. En este protocolo se excluyen los machos y solo se incluyen y analizan hermafroditas.
NOTA: La humedad de las incubadoras en este protocolo no está controlada, mientras que la temperatura de la incubadora se controla estrictamente a la temperatura experimental. Los experimentos descritos aquí no se realizaron bajo condiciones de cegamiento, y el experimentador conocía el genotipo y las condiciones de tratamiento durante la evaluación. Se recomienda el cegamiento del genotipo y de las condiciones de tratamiento cuando sea factible, con el fin de minimizar posibles sesgos en la evaluación.
Resultados
Utilizando los protocolos descritos anteriormente, primero empleamos gusanos silvestres (WT) N2 para examinar la supervivencia de los gusanos bajo una serie de dosis crecientes de los cuatro tipos de estrés: calor, estrés del retículo endoplásmico, mitocondrial y oxidativo. A continuación, utilizamos una cepa con ablación neuronal para evaluar el papel de la interneurona RIC en la resistencia al estrés en comparación con los gusanos WT.
Titulación de la dosis de estrés térmico y comparación de la resistencia al estrés térmico en la cepa con ablación de RIC
A la temperatura fisiológica de 20 °C, los gusanos silvestres (WT) presentan una longevidad media de 20,67 días (Figura 2A). Siguiendo los pasos del ensayo de estrés térmico descritos en la sección 3.1, se midió la supervivencia de los WT a temperaturas elevadas de 30, 35 y 37 °C como dosis crecientes de estrés térmico. Los datos mostraron que los gusanos WT presentan una longevidad media de 3,11 días a 30 °C (Figura 2B); y los gusanos WT sobreviven un promedio de 5,36 h a 35 °C y 4,89 h a 37 °C (Figura 2C). Estos resultados indicaron una disminución significativa de la supervivencia a temperaturas más altas. Los análisis estadísticos y los valores de P se presentan con detalle en la Tabla Suplementaria 2 y en las leyendas de las figuras. Estos datos proporcionan información confiable para que los investigadores elijan una temperatura de estrés y una escala de tiempo óptimas al diseñar un ensayo de estrés térmico. Los investigadores pueden utilizar 30 °C para examinar la supervivencia de los gusanos durante varios días, mientras que pueden usar 35 °C o 37 °C para obtener una evaluación más rápida de la supervivencia dentro de varias horas.
A continuación, utilizamos 35 °C como condición de estrés térmico para evaluar el efecto de la ablación de neuronas RIC sobre la supervivencia en comparación con animales WT. Esta temperatura proporciona un nivel intermedio de estrés térmico, evitando la severidad extrema de 37 °C mientras produce una respuesta más robusta que 30 °C, y da como resultado un ensayo completo de supervivencia en aproximadamente 12 h.
Las neuronas RIC son un par de interneuronas octopaminérgicas ubicadas en la región de la cabeza de C. elegans9,10. La cepa con ablación de neuronas RIC se generó mediante la expresión del gen caspasa-3 controlado por el promotor del gen tbh-1 y se ha utilizado previamente45. En resumen, el promotor tbh-1 se insertó en los plásmidos donadores mec-18p::caspase-3 (p12)::nz y mec-18p cz::caspase-3 (p17) para reemplazar al promotor mec-18. Tres constructos, tbh-1p::caspase-3(p12)::nz (20 ng/µL), tbh-1p::cz::caspase-3(p17) (20 ng/µL) y tbh-1p::GFP (20 ng/µL, como marcador de las neuronas RIC para indicar si estas han sido ablatadas), se inyectaron conjuntamente con el marcador fluorescente de coinyección myo-3p::GFP (5 ng/µL) en la cepa silvestre N2 para generar cepas genéticas con ablación de las neuronas RIC. Tres líneas independientes obtenidas por inyección se mantuvieron como cepa con ablación de neuronas RIC. Las líneas transgénicas se mantuvieron seleccionando los gusanos que presentaban el marcador fluorescente myo-3p::GFP. Los resultados de cada ensayo de estrés se validaron mediante dos o tres líneas independientes. La ablación exitosa de las neuronas RIC se verificó por la ausencia de fluorescencia de tbh-1p::GFP en la cepa con ablación de neuronas RIC, mientras que la expresión de GFP se observó en las neuronas RIC de la cepa control con el reportero tbh-1p::GFP (Figura Suplementaria 1).
Mediante los pasos del ensayo de estrés térmico presentados en la sección 3.1, examinamos la supervivencia de las cepas silvestres y con ablación de neuronas RIC bajo estrés térmico a 35 °C (Figura 2D). Utilizando los pasos del análisis de datos presentados en las secciones 4.1–4.3, los resultados mostraron que no se encontró diferencia significativa entre la cepa con ablación de neuronas RIC y el grupo control silvestre N2 bajo estrés térmico a 35 °C (Figura 2D).
Todos los resultados representativos de los ensayos de estrés térmico se realizaron con tres réplicas biológicas independientes llevadas a cabo en diferentes días (Supplementary Figure 2). El número de animales (valor de n indicado en las leyendas de las figuras) que contribuye a la curva de supervivencia mostrada en los resultados representativos y en las figuras suplementarias corresponde al número agrupado proveniente de las cuatro réplicas técnicas dentro de una sola réplica biológica.
Titración de la dosis de estrés del RE y comparación de la resistencia al estrés del RE en la cepa con ablación de RIC
Mediante los pasos del ensayo de estrés del RE presentados en la sección 3.2, medimos la supervivencia del tipo silvestre bajo concentraciones crecientes de estrés del RE de 25, 50, 100 o 200 µg/mL de tunicamicina (Figura 2E). En comparación con una supervivencia media de aproximadamente 20 días en condiciones fisiológicas no estresantes (Figura 2A), la supervivencia media de los gusanos de tipo silvestre fue de 10,74 días a 25 µg/mL, 9,13 días a 50 µg/mL, 9,3 días a 100 µg/mL y 8,93 días a 200 µg/mL de tunicamicina (Figura 2E). El aumento de la dosis de tunicamicina no modificó significativamente la supervivencia bajo estas concentraciones. Los análisis estadísticos y los valores de P se presentan en detalle en la Tabla Suplementaria 2 y en las leyendas de las figuras. Estos datos proporcionan información confiable para que los investigadores elijan una dosis óptima de tunicamicina en un ensayo de estrés del RE.
A continuación, utilizamos tunicamicina al 50 µg/mL, una dosis intermedia entre las dosis probadas, como condición de estrés del retículo endoplásmico para evaluar el efecto de la ablación de neuronas RIC sobre la supervivencia en comparación con los animales WT. Siguiendo los pasos del ensayo de estrés del retículo endoplásmico presentados en la sección 3.2, examinamos la supervivencia de ambas cepas, WT y con ablación de neuronas RIC, bajo estrés del retículo endoplásmico inducido por tunicamicina al 50 µg/mL (Figura 2F). Mediante los pasos de análisis de datos presentados en las secciones 4.1–4.3, la curva de supervivencia de la cepa con ablación de neuronas RIC mostró un desplazamiento significativo hacia la derecha en comparación con el control WT N2, lo que indica una supervivencia prolongada bajo estrés del retículo endoplásmico. Este resultado sugiere que la ablación de neuronas RIC mejora la resistencia al estrés del retículo endoplásmico (Figura 2F).
Todos los resultados representativos de los ensayos de estrés del RE se realizaron con tres réplicas biológicas independientes llevadas a cabo en diferentes días (Figura Suplementaria 3). El número de animales (valor de n indicado en las leyendas de las figuras) que contribuyó a la curva de supervivencia mostrada en los resultados representativos y en las figuras suplementarias corresponde al número agrupado proveniente de las cuatro réplicas técnicas dentro de una sola réplica biológica.
Titración de la dosis de estrés mitocondrial y comparación de la resistencia al estrés mitocondrial en la cepa con ablación de RIC
Mediante los pasos del ensayo de estrés mitocondrial presentados en la sección 3.3, medimos la supervivencia del tipo salvaje bajo concentraciones crecientes de estrés mitocondrial de 5, 10, 20, 40 u 80 µg/mL de antimicina A (Figura 2G). Las curvas de supervivencia de los gusanos de tipo salvaje mostraron cambios significativos de manera dependiente de la dosis. En comparación con una supervivencia media fisiológicamente no estresada de aproximadamente 20 días (Figura 2A), la supervivencia media de los gusanos de tipo salvaje fue de 4,96 días a 5 µg/mL, 3,77 días a 10 µg/mL, 2,68 días a 20 µg/mL, 1,65 días a 40 µg/mL y 1,4 días a 80 µg/mL de antimicina A (Figura 2G). Los análisis estadísticos y los valores de P se presentan con detalle en la Tabla Suplementaria 2 y en las leyendas de las figuras. Estos datos proporcionan información confiable para que los investigadores elijan una dosis óptima de antimicina A y una escala temporal adecuada al diseñar un ensayo de estrés mitocondrial. Los investigadores pueden optar por 5 µg/mL para evaluar la supervivencia de los gusanos durante aproximadamente 10 días, o utilizar concentraciones más altas de antimicina A para obtener resultados de supervivencia en cuestión de días. Téngase en cuenta que las concentraciones más altas aceleran la mortalidad, mientras que las concentraciones más bajas producen una disminución más gradual de la supervivencia, lo que permite distinguir con mayor facilidad las diferencias sutiles entre cepas.
A continuación, utilizamos 5 µg/mL de antimicina A, que produjo una disminución más gradual en la supervivencia entre las dosis evaluadas, como condición de estrés mitocondrial para evaluar el efecto de la ablación de neuronas RIC sobre la supervivencia en comparación con animales WT. Siguiendo los pasos del ensayo de estrés mitocondrial presentados en la sección 3.3, examinamos la supervivencia tanto de cepas WT como de cepas con ablación de RIC bajo estrés mitocondrial inducido por 5 µg/mL de antimicina A (Figura 2H). Aplicando los pasos de análisis de datos presentados en las secciones 4.1–4.3, la curva de supervivencia de la cepa con ablación de neuronas RIC mostró un desplazamiento significativo hacia la derecha en comparación con el control WT N2, lo que indica una supervivencia prolongada bajo estrés mitocondrial. Este resultado sugiere que la ablación de neuronas RIC mejora la resistencia al estrés mitocondrial (Figura 2H).
Todos los resultados representativos de los ensayos de estrés mitocondrial se realizaron con tres réplicas biológicas independientes llevadas a cabo en diferentes días (Figura Suplementaria 4). El número de animales (valor de n indicado en las leyendas de las figuras) que contribuyó a la curva de supervivencia mostrada en los resultados representativos y en las figuras suplementarias corresponde al número agrupado proveniente de las cuatro réplicas técnicas dentro de una sola réplica biológica.
Titración de la dosis de estrés oxidativo y comparación de la resistencia al estrés oxidativo en la cepa con ablación de RIC
Mediante los pasos del ensayo de estrés oxidativo presentados en la sección 3.4, medimos la supervivencia del tipo silvestre (WT) bajo concentraciones crecientes de estrés oxidativo de 2,5, 5, 10 o 20 mM de paraquat (Figura 2I). Las curvas de supervivencia de los gusanos WT mostraron cambios significativos de manera dependiente de la dosis. En comparación con una supervivencia media fisiológicamente no estresada de aproximadamente 20 días (Figura 2A), la supervivencia media de los gusanos de tipo silvestre fue de 4,92 días a 2,5 mM, 3,81 días a 5 mM, 2,93 días a 10 mM y 2,81 días a 20 mM de paraquat (Figura 2I). Los análisis estadísticos y los valores de P se presentan en detalle en la Tabla Suplementaria 2 y en las leyendas de las figuras. Estos datos proporcionan información confiable para que los investigadores elijan una dosis óptima de paraquat y una escala temporal adecuada al diseñar un ensayo de estrés oxidativo. Los investigadores pueden optar por 2,5 mM para evaluar la supervivencia de los gusanos durante aproximadamente 10 días, o usar concentraciones más altas de paraquat para obtener resultados de supervivencia en varios días. Téngase en cuenta que las concentraciones más altas (10 mM y 20 mM) aceleran la mortalidad, mientras que las concentraciones intermedias y bajas (2,5 mM y 5 mM) producen una disminución más gradual de la supervivencia, lo que permite distinguir con mayor facilidad diferencias sutiles entre cepas.
A continuación, utilizamos paraquat a 5 mM, una dosis intermedia entre las dosis ensayadas, como condición de estrés oxidativo para evaluar el efecto de la ablación de neuronas RIC sobre la supervivencia en comparación con los animales WT. Siguiendo los pasos del ensayo de estrés oxidativo presentados en la sección 3.4, examinamos la supervivencia tanto de cepas WT como de cepas con neuronas RIC abladas bajo estrés oxidativo inducido por paraquat 5 mM (Figura 2J). Mediante los pasos de análisis de datos presentados en las secciones 4.1–4.3, los resultados mostraron que no se encontró diferencia significativa entre la cepa con neuronas RIC abladas y el grupo control N2 de tipo silvestre bajo estrés oxidativo inducido por paraquat 5 mM (Figura 2J).
Todos los resultados representativos de los ensayos de estrés oxidativo se realizaron con tres réplicas biológicas independientes llevadas a cabo en días diferentes (Figura Suplementaria 5). El número de animales (valor de n indicado en las leyendas de las figuras) que contribuyeron a la curva de supervivencia mostrada en los resultados representativos y en las figuras suplementarias corresponde al número combinado de las cuatro réplicas técnicas dentro de una sola réplica biológica.
Solución de problemas
Un problema recurrente en los ensayos de estrés oxidativo inducido por paraquat es que los gusanos escapan de las placas de agar, lo que provoca pérdida de animales y una reducción en el número de gusanos disponibles para el análisis. Se puede añadir una barrera de ácido palmítico u otra «valla» a las placas del ensayo para suprimir parcialmente este comportamiento de escape46,47, aunque la mejora es moderada y no elimina completamente el problema. No se observó diferencia significativa en la salud ni en la longevidad de C. elegans tras el tratamiento con ácido palmítico48. La barrera de ácido palmítico actúa como una «valla» repelente en las placas NGM para impedir que C. elegans huya debido al estrés, inanición o patógenos. Para minimizar la fuga de gusanos, aplique 30 µL de ácido palmítico al 10 mg/mL en etanol (añada 0,5 g de ácido palmítico a 50 mL de EtOH al 100 %) al borde de la placa de ensayo de 35 mm y gire suavemente la placa para formar un anillo continuo. Una vez que el etanol ha evaporado, el anillo de ácido palmítico actúa como una barrera física y química para reducir la fuga de gusanos. Los gusanos que mueren en contacto con el anillo de ácido palmítico se censuran y excluyen del análisis de supervivencia.
PRECAUCIÓN: El ácido palmítico y sus soluciones deben manipularse con el equipo de protección personal (EPP) adecuado para el laboratorio, incluyendo guantes, bata de laboratorio y protección ocular, y debe tenerse cuidado de evitar el contacto con la piel y los ojos.
DISPONIBILIDAD DE LOS DATOS
Los datos de supervivencia que sustentan la Figura 2 y las figuras suplementarias, incluyendo los datos de todos los réplicas biológicos y los resultados estadísticos, se encuentran en la Figura Suplementaria 1–5, Tabla Suplementaria 1–2 y Archivo Suplementario 1.
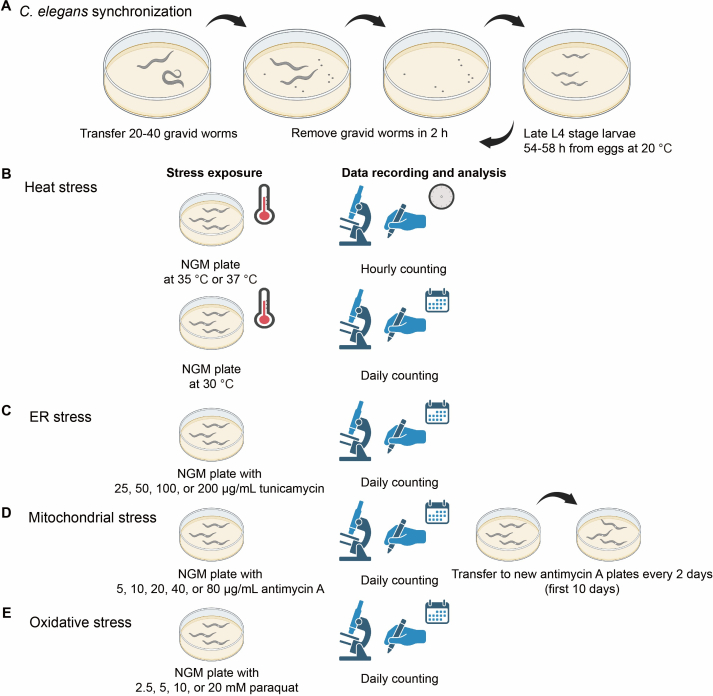
Figura 1: Flujo de trabajo de los ensayos de estrés. (A) Se obtienen gusanos sincronizados recolectando huevos puestos dentro de un período de 2 h a partir de gusanos grávidos. Los gusanos sincronizados se utilizan en todos los ensayos de estrés y se transfieren a placas o condiciones de estrés en la etapa tardía L4, tras 54-58 h de desarrollo desde los huevos a 20 °C. (B) En el ensayo de estrés térmico, los gusanos sincronizados se transfieren a placas de NGM en un incubador a 35 °C o 37 °C, y se registra la cantidad de gusanos muertos cada hora. Para el ensayo de estrés térmico en un incubador a 30 °C, los gusanos muertos se registran diariamente. (C) En el ensayo de estrés del RE, los gusanos sincronizados se transfieren a placas de NGM que contienen 25, 50, 100 u 200 µg/mL de tunicamicina. Los gusanos muertos se registran diariamente. (D) En el ensayo de estrés mitocondrial, los gusanos sincronizados se transfieren a placas de NGM que contienen 5, 10, 20, 40 u 80 µg/mL de antimicina A, y la supervivencia se evalúa mediante puntuaciones diarias. Para evitar interferencias por la descendencia, los gusanos se transfieren a placas frescas con antimicina A cada dos días durante los primeros 10 días del ensayo. (E) En el ensayo de estrés oxidativo, los gusanos sincronizados se transfieren a placas de NGM que contienen 2,5, 5, 10 ó 20 mM de paraquat, y la supervivencia se evalúa mediante puntuaciones diarias. La resistencia al estrés se evalúa comparando las curvas de supervivencia de Kaplan-Meier generadas a partir de cada ensayo. Haga clic aquí para ver una versión más grande de esta figura.
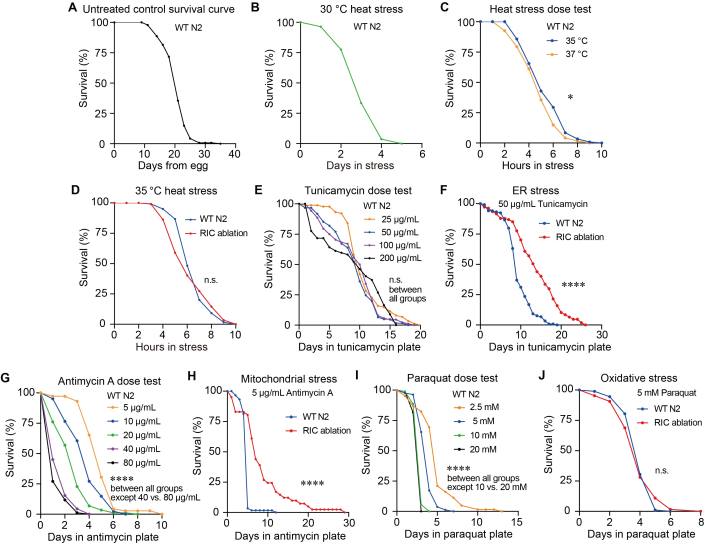
Figura 2: Titulación de la dosis de calor, estrés del retículo endoplásmico, mitocondrial y oxidativo, y comparación de la resistencia al estrés en la neurona RIC con ablación cepa (A) Curva representativa de supervivencia de Kaplan-Meier de la cepa WT N2 en condiciones sin estrés (n = 141, supervivencia media = 20,67 días). (B) Representativo Curva de supervivencia de Kaplan-Meier de la cepa WT N2 bajo 30 °C estrés térmico (n = 111, supervivencia media = 3,11 días). (C) Curva representativa de supervivencia de Kaplan-Meier de la cepa WT N2 bajo 35 °C y 37 °C estrés por calor (n = 119, 121); prueba de log-rank, P = 0,0244, * indica P < 0.05. (D) Curva representativa de supervivencia de Kaplan-Meier de la cepa N2 WT y la cepa con ablación de neuronas RIC 35 °C estrés térmico (n = 117, 120); prueba log-rank, P = 0,4972, n.s. indica diferencia no significativa. Se utilizó WT N2 como control. (E) Curvas de supervivencia dosis-respuesta de la cepa WT N2 bajo concentraciones crecientes de tratamiento con tunicamicina (n = 88, 61, 88, 67); prueba log-rank, P = 0.6472 (25 µg/mL v.s. 100 µg/mL), P = 0.1473 (25 µg/mL v.s. 50 µg/mL), P = 0.6581 (50 µg/mL v.s. 200 µg/mL), P = 1 (25 µg/mL v.s. 200 µg/mL; 50 µg/mL v.s. 100 µg/mL; 100 µg/mL v.s. 200 µg/mL), n.s. indica diferencia no significativa. (FCurva representativa de supervivencia de Kaplan-Meier de WT N2 y RIC cepa con neuronas abladas bajo 50 µg/mL estrés del RE inducido por tunicamicina (n = 119, 107); prueba log-rank, **** indica P < 0.0001. (G) Curvas representativas de supervivencia de Kaplan-Meier de la cepa WT N2 tratada con concentraciones crecientes de antimicina A (n = 72, 81, 88, 91, 85); prueba de log-rango, P = 0.000038 (5 µg/mL v.s. 10 µg/mL), P = 0.00002 (10 µg/mL v.s. 20 µg/mL), P = 1.60 × 10⁻8 (20 µg/mL v.s. 40 µg/mL), P < 0.0001 (5 µg/mL vs. 20 µg/mL; 5 µg/mL v.s. 40 µg/mL; 5 µg/mL v.s. 80 µg/mL; 10 µg/mL v.s. 40 µg/mL; 10 µg/mL v.s. 80 µg/mL; o 20 µg/mL v.s. 80 µg/mL), P = 0.189 (40 µg/mL v.s. 80 µg/mL), **** indica P < 0.0001. (HCurva representativa de supervivencia de Kaplan-Meier de la cepa WT N2 y la cepa con neuronas RIC abladas 5 µg/mL estrés mitocondrial inducido por antimicina A (n = 59, 41); prueba de log-rank, P = 3,2 × 10⁻9, **** indica P < 0.0001. (ICurvas representativas de supervivencia de Kaplan-Meier para la cepa WT N2 sometida a diferentes dosis de paraquat (n = 62, 81, 88, 93); prueba log-rank, P = 1.80 × 10⁻7 (2,5 mM frente a 5 mM), P < 0,0001 (2,5 mM v.s. 10 mM; 2,5 mM v.s. 20 mM; 5 mM v.s. 10 mM; 5 mM v.s. 20 mM) P = 0,1445 (10 mM vs. 20 mM), **** indica P < 0.0001. (J) Curvas representativas de supervivencia de Kaplan-Meier de la cepa N2 WT y la cepa con ablación de neuronas RIC bajo estrés oxidativo inducido por paraquat 5 mM (n = 92, 64); prueba log-rank, P = 0,9817, n.s. indica que no hay diferencia significativa. Todos los experimentos se realizaron con tres réplicas biológicas independientes. En esta figura se muestran resultados representativos de una réplica biológica. Cada réplica biológica consiste en cuatro placas con réplicas técnicas que contienen gusanos. Número de animales (n) que contribuyen al curva de supervivencia en esta figura corresponde al número agrupado de los cuatro réplicas técnicas dentro de una única réplica biológica. Las réplicas biológicas independientes fueron analizadas por separado en lugar de ser agrupadas, y se presentan como conjuntos de datos individuales en las Figuras Suplementarias 2–5. La significancia se evaluó mediante una prueba de log-rank para comparar las distribuciones de supervivencia. Estadísticas detalladas P valores, supervivencia media y error estándar entre réplicas técnicas se incluyen en la Tabla Suplementaria 2. Haga clic aquí para ver una versión más grande de esta figura.
Figura suplementaria 1: Ausencia de fluorescencia tbh-1p::GFP en la cepa con neuronas RIC abladas, mientras que se observó expresión de GFP en las neuronas RIC de la cepa control con el reportero tbh-1p::GFP. (A) Imágenes fluorescentes de la cepa con neuronas RIC abladas tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP y una cepa control con el reportero tbh-1p::GFP OH16150 tbh-1p::GFP; tdc-1p::mCherry. Se capturaron imágenes de gusanos en estadio L4 tardío utilizando excitación a 488 nm con un tiempo de exposición de 800 ms para el canal GFP y un tiempo de exposición de 176 ms para el canal de campo brillante. Las flechas amarillas indican la ubicación de las neuronas RIC en la cepa control con el reportero tbh-1p::GFP o la ubicación esperada de las neuronas RIC, que está ausente en la cepa con neuronas RIC abladas. No se detectó señal tbh-1p::GFP en la ubicación de las neuronas RIC en la cepa con neuronas RIC abladas, mientras que la señal tbh-1p::GFP se observó en las neuronas RIC de la cepa control con el reportero tbh-1p::GFP OH16150. La fluorescencia en los músculos de la pared corporal en la cepa con neuronas RIC abladas proviene de myo-3p::GFP, un marcador de coinyección. (A) n = 14 para OH16150; n = 20 para la cepa con neuronas RIC abladas. (B, C) Resultados representativos de otros dos réplicas biológicas. Se capturaron imágenes de gusanos en estadio L4 tardío utilizando excitación a 488 nm con un tiempo de exposición de 1007 ms (B) o 1998 ms (C) para el canal GFP y un tiempo de exposición de 176 ms (B y C) para el canal de campo brillante. (B) n = 8 para OH16150; n = 17 para la cepa con neuronas RIC abladas. (C) n = 14 para OH16150; n = 13 para la cepa con neuronas RIC abladas. Haga clic aquí para descargar este archivo.
Figura suplementaria 2: Réplicas biológicas de curvas de supervivencia en condiciones sin estrés o con estrés térmico. (A, B) Curvas de supervivencia de Kaplan-Meier provenientes de dos réplicas biológicas independientes en condiciones sin estrés. (A) n = 123, supervivencia media = 20,52 días; (B) n = 130, supervivencia media = 22,74 días. (C, D) Curvas de supervivencia de Kaplan-Meier de la cepa WT N2 bajo estrés térmico a 30 °C. Los datos provienen de dos réplicas biológicas independientes. (C) n = 130, supervivencia media = 3,72 días. (D) n = 98, supervivencia media = 3,77 días. (E, F) Curvas de supervivencia de Kaplan-Meier bajo condiciones de estrés térmico a 35 °C o 37 °C. Los datos provienen de dos réplicas biológicas independientes. (E) n = 118, 121; prueba de log-rango, P = 0,0409, * indica P < 0,05. (F) n = 122, 120; prueba de log-rango, P = 0,0251, * indica P < 0,05. (G, H) Curvas de supervivencia de Kaplan-Meier de las cepas WT N2 y con neuronas RIC abladas bajo condiciones de estrés térmico a 35 °C. Los datos provienen de dos réplicas biológicas independientes. (G) n = 79, 76; prueba de log-rango, P = 0,2217, n.s. indica que no hay diferencia significativa. (H) n = 77, 81; prueba de log-rango, P = 0,1881, n.s. indica que no hay diferencia significativa. La significancia se evaluó mediante la prueba de log-rango para comparar las distribuciones de supervivencia. Los valores detallados de P, la supervivencia media y el error estándar (S. E.) entre réplicas técnicas se incluyen en la Tabla suplementaria 2. Haga clic aquí para descargar este archivo.
Figura suplementaria 3: Réplicas biológicas de las curvas de supervivencia bajo condiciones de estrés del retículo endoplásmico. (A, B) Curvas de supervivencia de Kaplan-Meier de la cepa WT N2 bajo diferentes concentraciones de tratamiento con tunicamicina. Los datos provienen de dos réplicas biológicas independientes. (A) n = 110, 102, 100, 96; (B) n = 88, 77, 75, 69. Estadístico P valores entre diferentes grupos (A y B) se indican en la Tabla suplementaria 2. (C, D) Curvas de supervivencia de Kaplan-Meier de la cepa N2 WT y la cepa con neuronas RIC abladas 50 µg/mL condiciones de estrés del RE inducidas por tunicamicina. Los datos provienen de dos réplicas biológicas independientes. (C) n = 104, 55; prueba de log-rango, P = 0,012, * indica P < 0.05, (D) n = 85, 109; prueba log-rank, P = 0,0001, *** indica P < 0.001. La significación se evaluó mediante una prueba de log-rango para comparar las distribuciones de supervivencia. Estadística detallada P valores, supervivencia media y error estándar entre réplicas técnicas se incluyen en la Tabla Suplementaria 2. Haga clic aquí para descargar este archivo.
Figura suplementaria 4: Réplicas biológicas de curvas de supervivencia bajo condiciones de estrés mitocondrial. (A, B) Curvas de supervivencia de Kaplan-Meier de la cepa WT N2 bajo diferentes concentraciones de tratamiento con antimicina A. Los datos provienen de dos réplicas biológicas independientes. (A) n = 71, 80, 81, 88, 90. (B) n = 71, 85, 83, 88, 87. Los valores de P estadísticos entre los diferentes grupos (A y B) se indican en la Tabla suplementaria 2. (C, D) Curvas de supervivencia de Kaplan-Meier de la cepa WT N2 y de la cepa con ablación de neuronas RIC bajo estrés mitocondrial inducido por antimicina A. Los datos provienen de dos réplicas biológicas independientes. (C) n = 105, 78; prueba de log-rango, P = 0,000004, **** indica P < 0,0001. (D) n = 89, 73; prueba de log-rango, **** indica P < 0,0001. La significancia se evaluó mediante una prueba de log-rango para comparar las distribuciones de supervivencia. Los valores detallados de P estadísticos, la supervivencia media y el E.E. entre réplicas técnicas se incluyen en la Tabla suplementaria 2. Haga clic aquí para descargar este archivo.
Figura suplementaria 5: Réplicas biológicas de las curvas de supervivencia bajo condiciones de estrés oxidativo. (A, BCurvas de supervivencia de Kaplan-Meier de la cepa WT N2 bajo diferentes concentraciones de tratamiento con paraquat. Los datos provienen de dos réplicas biológicas independientes.A) n = 38, 63, 60, 31. (B) n = 55, 77, 86, 107. Estadístico P valores entre diferentes grupos (A y B) se indican en la Tabla Suplementaria 2. (C, DCurvas de supervivencia de Kaplan-Meier de la cepa N2 WT y la cepa con neuronas RIC abladas bajo condiciones de estrés oxidativo inducido por paraquat 5 mM. Los datos provienen de dos réplicas biológicas independientes.C) n = 87, 82; prueba de log-rango, P = 0,2629, n.s. indica diferencia no significativa. (D) n = 116, 118; prueba log-rank, P = 0,1184, n.s. indica diferencia no significativa. La significancia se evaluó mediante una prueba de log-rango para comparar las distribuciones de supervivencia. Análisis estadístico detallado P valores, la supervivencia media y el E. E. entre réplicas técnicas se incluyen en la Tabla suplementaria 2. Haga clic aquí para descargar este archivo.
Tabla suplementaria 1: Resumen del número de gusanos incluidos en todas las curvas de supervivencia. La tabla resume el número inicial de gusanos y las cantidades de gusanos rotos, encapsulados y censurados. Haga clic aquí para descargar este archivo.
Tabla suplementaria 2: Analyses estadísticas detalladas de todas las curvas de supervivencia, incluidos los valores de P, la supervivencia media y el E. E. Haga clic aquí para descargar este archivo.
Archivo Suplementario 1: Datos que respaldan los hallazgos de este estudio.
Incluye la verificación de la ablación exitosa de las neuronas RIC y los resultados de todos los replicados biológicos que sustentan los datos presentados en las figuras principales. Haga clic aquí para descargar este archivo.
Discusión
Aquí hemos descrito pasos estandarizados para ensayos de estrés reproducibles bajo condiciones de estrés térmico, del retículo endoplásmico, mitocondrial y oxidativo en C. elegans (Figura 1). Examinamos una serie de dosis crecientes de los cuatro agentes de estrés sobre la supervivencia de gusanos WT (Figura 2). También presentamos un ejemplo de la investigación del papel de una interneurona en la resistencia al estrés frente a los cuatro agentes de estrés, utilizando una cepa con ablación neuronal (Figura 2).
Para emplear con éxito el protocolo de ensayo de estrés presentado aquí, es necesario tener en cuenta varias consideraciones clave durante el proceso. Debido a la variabilidad entre laboratorios causada por diferencias en el polvo de agar, el medio, la temperatura ambiente y la humedad, se recomienda titular cada concentración de agente de estrés o compuesto inductor de estrés siguiendo la titulación y los pasos descritos en las secciones de Protocolo y Resultados. Una condición adecuada de estrés debe producir una respuesta de supervivencia intermedia y reproducible en los gusanos de tipo salvaje utilizados como control, lo que permite un rango dinámico suficiente para detectar tanto un aumento como una disminución en la resistencia al estrés. Deben evitarse las condiciones que produzcan una supervivencia casi completa o una letalidad casi total. A continuación, es fundamental asegurarse de que los gusanos estén sincronizados al mismo estadio de desarrollo en todos los réplicas biológicos y técnicos. La sincronización de los gusanos puede lograrse mediante el procedimiento descrito en las secciones 2.1–2.3. Se recomienda la sincronización en el estadio L4 tardío. Comenzar los ensayos de estrés en el estadio L4 es una práctica bien establecida en el campo de investigación de la respuesta al estrés en C. elegans, y numerosos estudios han utilizado animales sincronizados en el estadio L4 para ensayos de resistencia al estrés oxidativo42, térmico40,43 y otros tipos de estrés35. Iniciar el ensayo en el estadio L4 garantiza la sincronización del desarrollo, al tiempo que minimiza la variabilidad introducida por diferencias en la edad adulta y el estado reproductivo, incluyendo el inicio de la producción de huevos y la retención de embriones, factores que pueden influir en las mediciones de resistencia al estrés12,37,38,40. Dado que todos los grupos experimentales en nuestro estudio fueron sincronizados y tratados de manera idéntica, este enfoque proporciona una base consistente y adecuada para comparar la resistencia al estrés. Finalmente, si los gusanos han estado en ayunas o sometidos a estrés antes de que comience el ensayo, sus descendientes deben recuperarse durante varias generaciones bajo condiciones de alimentación sin estrés antes de utilizarlos como gusanos grávidos para generar progenie sincronizada destinada a los ensayos de estrés.
La variabilidad entre experimentos independientes realizados con réplicas biológicas puede deberse a diferencias en la preparación y almacenamiento de las placas, incluyendo la duración del almacenamiento de las placas que contienen compuestos inductores de estrés a 4 °C y el momento del siembra bacteriana con OP50. Para mejorar la reproducibilidad entre experimentos realizados en diferentes días, deben estandarizarse los pasos críticos de preparación de placas siguiendo el protocolo descrito para la elaboración de placas de NGM en la sección 1.1, placas de estrés del retículo endoplásmico inducido por tunicamicina en la sección 3.2.1, placas de estrés mitocondrial inducido por antimicina A en la sección 3.3.1 y placas de estrés oxidativo inducido por paraquat en la sección 3.4.1. Específicamente, las placas de agar deben secarse a temperatura ambiente durante aproximadamente 24 h después de verterlas y luego sembrarse con OP50 una vez que el agar se haya solidificado completamente. Las placas de NGM sembradas con OP50 deben dejarse secar adicionalmente a temperatura ambiente durante 24 h antes de almacenarlas a 4 °C. El tiempo óptimo de secado puede variar dependiendo del uso de placas con o sin ventilación y de las condiciones ambientales locales, como la temperatura y la humedad. Por lo tanto, cada laboratorio debe optimizar este paso según sus propias condiciones y mantener un tiempo de secado consistente en todas las réplicas biológicas independientes para garantizar la reproducibilidad. Las placas para los ensayos de estrés deben utilizarse dentro de la primera semana tras su preparación para minimizar la degradación de los compuestos inductores de estrés y el crecimiento excesivo de bacterias, factores que podrían afectar la consistencia del ensayo.
Este protocolo también mostró un ejemplo de investigación del papel de una interneurona en la respuesta al estrés frente a los cuatro estresores utilizando una cepa con ablación neuronal (Figura 2). El promotor de un gen expresado específicamente en una neurona puede utilizarse para inducir la expresión de caspasa-3 y ablar la neurona diana. Aquí empleamos el promotor tbh-1, que dirige la expresión génica específicamente en las neuronas RIC, para la ablación de estas neuronas. El promotor tbh-1 ha sido ampliamente validado para la manipulación genética dirigida a las neuronas RIC y se utiliza rutinariamente para expresión celular específica, rescate, imágenes de calcio y silenciamiento neuronal45,49,50. En consonancia con la caracterización previamente reportada de tbh-1, observamos expresión de tbh-1p::GFP restringida a las neuronas RIC, sin detectar fluorescencia en otros tejidos (Figura suplementaria 1). No examinamos específicamente el tamaño de la descendencia ni la morfología de la línea germinal en la cepa con ablación de las neuronas RIC; sin embargo, no observamos defectos fisiológicos evidentes en esta cepa. Se ha reportado que el sistema de reportero tbh-1 presenta expresión adicional en las células somáticas de la túnica gonadal, que son células somáticas del sistema reproductivo51,52. Aunque no podemos excluir completamente la posibilidad de expresión a bajo nivel fuera de las neuronas RIC, consideramos improbable que la expresión de tbh-1 en células no-RIC explique la mayor resistencia al estrés observada en los animales con ablación de las neuronas RIC. Aunque este método está bien establecido49,50, presenta la limitación de una posible expresión en células ajenas a la neurona diana. Se requieren otras metodologías para confirmar el papel de una neurona, por ejemplo, monitorear la actividad neuronal en respuesta a los estresores o evaluar el papel de los neurotransmisores liberados por esta neurona en ensayos de estrés.
Los ensayos de supervivencia en C. elegans son herramientas potentes para medir la resistencia al estrés debido a la corta esperanza de vida de los gusanos (aproximadamente de 20 a 30 días, Figura 2) y a la rápida mortalidad inducida por múltiples agentes estresantes, que generalmente ocurre en cuestión de horas a días (Figura 2). Sin embargo, una limitación de los ensayos de supervivencia es que utilizan un punto final binario vivo/muerto y, por lo tanto, no capturan la declinación fisiológica progresiva que ocurre durante la exposición al estrés. Ensayos complementarios, como los ensayos de agitación o las mediciones automatizadas de locomoción (velocidad) realizadas en múltiples puntos temporales, pueden proporcionar información adicional sobre la pérdida gradual de la función neuromuscular durante el estrés. Otra limitación es que la muerte se determina por la ausencia de respuesta a una estimulación física suave, lo cual puede subestimar la viabilidad en animales con locomoción gravemente afectada. Además, la puntuación manual introduce variabilidad dependiente del observador y posibles sesgos. Para minimizar estos efectos, toda la puntuación dentro de un réplica biológica independiente debe realizarse por el mismo investigador, quien debe estar cegado respecto al genotipo y a las condiciones experimentales. También es importante mantener condiciones de puntuación consistentes, incluido el uso del mismo aumento del microscopio y configuraciones de iluminación en cada punto temporal, con el fin de reducir la variabilidad entre placas y entre experimentos. En los resultados representativos, presentamos un ejemplo en el que una cepa con ablación de las neuronas RIC mostró mayor resistencia al estrés del RE y mitocondrial, pero no al estrés térmico ni oxidativo, en comparación con gusanos de tipo salvaje (Figura 2). Una diferencia en la supervivencia bajo dos de cuatro agentes estresantes no establece por sí sola un papel específico de la vía para la neurona; la conclusión biológica de este manuscrito se ofrece como una demostración del método y de la observación, más que como una afirmación mecanicista.
Más allá de los ensayos de supervivencia bajo estrés descritos aquí, se han desarrollado varias plataformas automatizadas para medir la supervivencia de C. elegans. La puntuación automatizada aumenta considerablemente el rendimiento, permite un monitoreo continuo o de alta frecuencia y reduce el sesgo dependiente del observador y la mano de obra asociada con la puntuación manual53,54,55. Estos sistemas son particularmente ventajosos para cribados genéticos o químicos a gran escala. Sin embargo, la mayoría de los métodos automatizados infieren la muerte a partir de la cesación del movimiento, lo que puede provocar la clasificación errónea de gusanos que están en estado de quiescencia o que presentan una locomoción gravemente afectada bajo estrés, dependiendo del algoritmo de imagen y del umbral de detección. La detección automatizada también puede verse afectada por factores ambientales, como la temperatura, la condensación, la contaminación fúngica o bacteriana y las variaciones en las condiciones de cultivo, todos los cuales pueden interferir con la detección de los gusanos y afectar las mediciones de supervivencia. En contraste, la puntuación manual permite al investigador identificar fenotipos anormales, como el fenómeno de «bagging», eclosión interna o animales rotos, que podrían requerir criterios específicos de puntuación o censura. Aunque la puntuación manual es más laboriosa y está sujeta a variabilidad relacionada con el observador, estas limitaciones pueden minimizarse mediante una puntuación ciega, criterios de puntuación estandarizados y una evaluación consistente por parte del mismo investigador. Por consiguiente, los ensayos manuales y automatizados de supervivencia tienen ventajas y limitaciones distintas, y la elección del método debe basarse en los objetivos experimentales, el rendimiento requerido y la naturaleza del paradigma de estrés.
En conjunto, los métodos descritos aquí proporcionan un marco estandarizado y reproducible para evaluar las respuestas de C. elegans frente a múltiples factores de estrés ambiental, incluyendo estrés térmico, mitocondrial, del retículo endoplásmico y oxidativo. Evaluar la resistencia a diversos agentes de estrés es esencial porque perturbaciones genéticas o fisiológicas pueden aumentar la resistencia a un tipo de estrés mientras incrementan la susceptibilidad a otro, revelando así mecanismos tanto específicos para cada agente de estrés como compartidos en la adaptación al estrés. Estos ensayos permiten comparaciones cuantitativas de la resistencia al estrés entre diferentes genotipos y condiciones experimentales, y pueden aplicarse fácilmente para investigar los roles de genes, neuronas y vías metabólicas en el mantenimiento de la resistencia al estrés y la homeostasis fisiológica. Más ampliamente, estos métodos ofrecen una plataforma robusta para identificar mecanismos que promuevan la salud y la supervivencia del organismo bajo condiciones ambientales adversas.
Divulgaciones
Los autores no tienen conflictos de intereses que declarar.
Agradecimientos
La investigación descrita en esta publicación recibió apoyo del Kansas Idea Network of Biomedical Research Excellence (K-INBRE, P20 GM103418), del Center of Biomedical Research Excellence (COBRE, P20 GM113109) y del Johnson Cancer Research Center de la Universidad Estatal de Kansas (Premio de Expansión en Investigación del Cáncer) a S.H. para financiamiento.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Tunicamicina | Sigma-Aldrich | T7765 | inductor del estrés del retículo endoplásmico |
| Antimicina A | Sigma-Aldrich | A8674 | Inductor del estrés mitocondrial |
| Clorhidrato de dicloruro de metilviologeno (paraquat) | Sigma-Aldrich | 856177 | Inductor del estrés oxidativo |
| Ácido palmítico | MP Biomedicals, LLC | 100905 | Suprimir C. elegans escape comportamiento |
| Colesterol | MP Biomedicals, LLC | 101382 | Para NGM |
| Cloruro de calcio | Thermo Fisher Scientific Inc. | C79-500 | Para NGM |
| Sulfato de magnesio anhidro | Mallinckrodt Pharmaceuticals plc | 6070 | Para NGM |
| Agar | Apex Chemicals Co., Ltd | 20-273 | Para NGM |
| Peptona | Apex Chemicals Co., Ltd | 20-260 | Para NGM |
| Fosfato monobásico de potasio | Thermo Fisher Scientific Inc. | P285-3 | Para NGM |
| Cloruro de sodio | Thermo Fisher Scientific Inc. | S640-3 | Para NGM |
| Fosfato dipotásico | Allied Chemical, División General Chemical | Código 2131 | Para NGM |
| Placas de Petri (35 mm) | Genesee Scientific, LLC | 32-103 | Placas para ensayos de estrés |
| Placas de Petri (60 mm) | Genesee Scientific, LLC | 32-105 | Mantener C. elegans |
| mec-18p cz::caspasa-3 (p17) | Addgene | TU#814 | |
| mec-18p::caspasa-3 (p12)::nz | Addgene | TU#813 | |
| New Brunswick Scientific (Eppendorf) C24KC Agitador-incubador refrigerado | Eppendorf / New Brunswick Scientific | C24KC | 37 °C incubadora |
| DigiTherm® Incubadora calefactora/refrigerante de 38 litros | Tritech Research Inc. | DT2-MP-47L | 35 °C incubadora |
| Incubadora de baja temperatura Fisher Scientific Isotemp | Fisher Scientific | 146E | 30 °C incubadora |
| SHELab SRI20P Incubadora refrigerada | Sheldon Manufacturing Inc. | SRI20P | 20 °C incubadora |
| Microscopio estereoscópico Leica M165 FC para investigación | Leica Microsystems | M165 FC | Microscopio para obtención de imágenes |
| Microscopio estereoscópico de zoom ACCU-SCOPE 3075-DIA | ACCU-SCOPE Inc. | 3075-DIA | Microscopio para el manejo y puntuación de gusanos |
| Microsoft Excel 2019 | Microsoft Corporation | Representación gráfica de datos brutos | |
| GraphPad Prism 8.0.2 | GraphPad Software Inc. | Visualización de datos | |
| OASIS 2 | POSTECH, PMID: 27528229 | Análisis estadístico | |
| BioRender | Science Suite Inc. | Ilustración esquemática | |
| ImageJ | Institutos Nacionales de la Salud (NIH) | Procesamiento de imágenes | |
| Adobe Illustrator 2021 | Adobe Inc. | Ensamblaje de la figura diseño | |
| tipo silvestre | Centro de Genética Caenorhabditis, CGC | N2 | |
| tbh-1p::caspasa-3(p12)::nz; tbh-1p::cz::caspasa-3(p17); tbh-1p::GFP; myo-3p::GFP | hecho en casa | Ablación de RIC | |
| nIs107 [tbh-1::GFP] III. zfIs10 [tdc-1::mCherry] IV. Las neuronas RIC están marcadas con GFP y mCherry | Centro de Genética Caenorhabditis, CGC | OH16150 |
Referencias
- Morimoto RI, Santoro MG. Stress-inducible responses and heat shock proteins: new pharmacologic targets for cytoprotection. Nat Biotechnol. 1998;16(9):833-838.
- Hetz C, Chevet E, Oakes SA. Proteostasis control by the unfolded protein response. Nat Cell Biol. 2015;17(7):829-838.
- Blackwell TK, et al. SKN-1/Nrf, stress responses, and aging in Caenorhabditis elegans. Free Radic Biol Med. 2015;88(Pt B):290-301.
- Lamech LT, Haynes CM. The unpredictability of prolonged activation of stress response pathways. J Cell Biol. 2015;209(6):781-787.
- Balch WE, Morimoto RI, Dillin A, Kelly JW. Adapting proteostasis for disease intervention. Science. 2008;319(5865):916-919.
- Powers ET, et al. Biological and chemical approaches to diseases of proteostasis deficiency. Annu Rev Biochem. 2009;78:959-991.
- Soo SK, et al. Biological resilience and aging: activation of stress response pathways contributes to lifespan extension. Ageing Res Rev. 2023;88:101941.
- Ma Z, et al. The integrated stress response protects against ER stress but is not required for altered translation and lifespan from dietary restriction in Caenorhabditis elegans. Front Cell Dev Biol. 2023;11:1263344.
- Horikawa M, Sakamoto K. Fatty-acid metabolism is involved in stress-resistance mechanisms of Caenorhabditis elegans. Biochem Biophys Res Commun. 2009;390(4):1402-1407.
- Prahlad V, Cornelius T, Morimoto RI. Regulation of the cellular heat shock response in Caenorhabditis elegans by thermosensory neurons. Science. 2008;320(5877):811-814.
- Prahlad V, Morimoto RI. Neuronal circuitry regulates the response of Caenorhabditis elegans to misfolded proteins. Proc Natl Acad Sci U S A. 2011;108(34):14204-14209.
- Taylor RC, Dillin A. XBP-1 is a cell-nonautonomous regulator of stress resistance and longevity. Cell. 2013;153(7):1435-1447.
- Ozbey NP, et al. Tyramine acts downstream of neuronal XBP-1s to coordinate inter-tissue UPR(ER) activation and behavior in C. elegans. Dev Cell. 2020;55(6):754-770.e6.
- Durieux J, Wolff S, Dillin A. The cell-non-autonomous nature of electron transport chain-mediated longevity. Cell. 2011;144(1):79-91.
- Berendzen KM, et al. Neuroendocrine coordination of mitochondrial stress signaling and proteostasis. Cell. 2016;166(6):1553-1563.e10.
- Shaposhnikov M, et al. Lifespan and stress resistance in Drosophila with overexpressed DNA repair genes. Sci Rep. 2015;5:15299.
- Jia J, et al. A pair of dopamine neurons mediate chronic stress signals to induce learning deficit in Drosophila melanogaster. Proc Natl Acad Sci U S A. 2021;118(42):e2023674118.
- Solovev I, et al. Neuron-specific overexpression of core clock genes improves stress-resistance and extends lifespan of Drosophila melanogaster. Exp Gerontol. 2019;117:61-71.
- Shuai Y, Zhang Y, Gao L, Zhong Y. Stress resistance conferred by neuronal expression of dominant-negative Rac in adult Drosophila melanogaster. J Neurogenet. 2011;25(1-2):35-39.
- Williams KW, et al. Xbp1s in Pomc neurons connects ER stress with energy balance and glucose homeostasis. Cell Metab. 2014;20(3):471-482.
- Kim JG, Ea JY, Yoon BJ. Orexinergic neurons modulate stress coping responses in mice. Front Mol Neurosci. 2023;16:1140672.
- Jovaisaite V, Mouchiroud L, Auwerx J. The mitochondrial unfolded protein response, a conserved stress response pathway with implications in health and disease. J Exp Biol. 2014;217(Pt 1):137-143.
- Richter K, Haslbeck M, Buchner J. The heat shock response: life on the verge of death. Mol Cell. 2010;40(2):253-266.
- Hetz C, Zhang K, Kaufman RJ. Mechanisms, regulation and functions of the unfolded protein response. Nat Rev Mol Cell Biol. 2020;21(8):421-438.
- Finkel T. Signal transduction by reactive oxygen species. J Cell Biol. 2011;194(1):7-15.
- Hu C, et al. Heat shock proteins: biological functions, pathological roles, and therapeutic opportunities. MedComm (2020). 2022;3(3):e161.
- Lithgow GJ, White TM, Hinerfeld DA, Johnson TE. Thermotolerance of a long-lived mutant of Caenorhabditis elegans. J Gerontol. 1994;49(6):B270-6.
- Krshnan L, van de Weijer ML, Carvalho P. Endoplasmic reticulum-associated protein degradation. Cold Spring Harb Perspect Biol. 2022;14(12):a041247.
- Naidoo N. ER and aging-protein folding and the ER stress response. Ageing Res Rev. 2009;8(3):150-159.
- Heifetz A, Keenan RW, Elbein AD. Mechanism of action of tunicamycin on the UDP-GlcNAc:dolichyl-phosphate Glc-NAc-1-phosphate transferase. Biochemistry. 1979;18(11):2186-2192.
- Guo Y, et al. Mitochondrial dysfunction in aging. Ageing Res Rev. 2023;88:101955.
- Murphy MP. How mitochondria produce reactive oxygen species. Biochem J. 2009;417(1):1-13.
- Xu X, Pang Y, Fan X. Mitochondria in oxidative stress, inflammation and aging: from mechanisms to therapeutic advances. Signal Transduct Target Ther. 2025;10(1):190.
- Bus JS, Gibson JE. Paraquat: model for oxidant-initiated toxicity. Environ Health Perspect. 1984;55:37-46.
- Park HH, Jung Y, Lee SV. Survival assays using Caenorhabditis elegans. Mol Cells. 2017;40(2):90-99.
- Zevian SC, Yanowitz JL. Methodological considerations for heat shock of the nematode Caenorhabditis elegans. . 2014;68(3):450-457.
- Keith SA, Amrit FR, Ratnappan R, Ghazi A. The C. elegans healthspan and stress-resistance assay toolkit. . 2014;68(3):476-486.
- Senchuk MM, Dues DJ, Van Raamsdonk JM. Measuring oxidative stress in Caenorhabditis elegans: paraquat and juglone sensitivity assays. Bio Protoc. 2017;7(1):e2086.
- Golden NL, Plagens RN, Kim Guisbert KS, Guisbert E. Standardized for measuring induction of the heat shock response in Caenorhabditis elegans. J Vis Exp. 2020;(161):e61030.
- Bar-Ziv R, et al. Measurements of physiological stress responses in C. elegans. J Vis Exp. 2020;(159):e61001.
- Rahman M, et al. NemaLife chip: a micropillar-based microfluidic culture device optimized for aging studies in crawling C. elegans. Sci Rep. 2020;10(1):16190.
- Rafikova A, Hu Q, Kubiseski TJ. The SEM-4 transcription factor is required for regulation of the oxidative stress response in Caenorhabditis elegans. G3 (Bethesda). 2020;10(9):3379-3385.
- Liang J, et al. Chloride intracellular channel proteins respond to heat stress in Caenorhabditis elegans. PLoS One. 2017;12(9):e0184308.
- Han SK, et al. OASIS 2: online application for survival analysis 2 with features for the analysis of maximal lifespan and healthspan in aging research. Oncotarget. 2016;7(35):56147-56152.
- Kitto ES, et al. The hypoxic response extends lifespan through a bioaminergic and peptidergic neural circuit. eLife. 2025;14:RP107651.
- Miller DL, Roth MB. C. elegans are protected from lethal hypoxia by an embryonic diapause. Curr Biol. 2009;19(14):1233-1237.
- Miller HA, et al. Serotonin and dopamine modulate aging in response to food odor and availability. Nat Commun. 2022;13(1):3271.
- Beydoun S, Sridhar A, Bhandari M, Kitto ES, Leiser SF. Polyethylene glycol as an improved barrier to prevent fleeing in C. elegans. MicroPubl Biol. 2024.
- Sellegounder D, et al. Octopaminergic signaling mediates neural regulation of innate immunity in Caenorhabditis elegans. mBio. 2018;9(5):e01645-18.
- Wang X, et al. Dimorphic neural network architecture prioritizes sexual-related behaviors in male Caenorhabditis elegans. eLife. 2026;14:RP102309.
- Alkema MJ, Hunter-Ensor M, Ringstad N, Horvitz HR. Tyramine functions independently of octopamine in the Caenorhabditis elegans nervous system. Neuron. 2005;46(2):247-260.
- Wang C, et al. A neurotransmitter atlas of C. elegans males and hermaphrodites. eLife. 2024;13:RP95402.
- Stroustrup N, et al. The Caenorhabditis elegans lifespan machine. Nat. 2013;10(7):665-670.
- Felker DP, Robbins CE, McCormick MA. Automation of C. elegans lifespan measurement. Transl Med Aging. 2020;4:1-10.
- Banse SA, et al. Automated lifespan determination across Caenorhabditis strains and species reveals assay-specific effects of chemical interventions. Geroscience. 2019;41(6):945-960.
Reimpresiones y permisos
Este artículo ha sido publicado
Video próximamente