Se describen dos enfoques de co-cultivo sin contacto para la evaluación cualitativa y cuantitativa de las respuestas morfológicas fúngicas durante interacciones entre especies. El protocolo demuestra cómo los factores intrínsecos influyen en el crecimiento de hifas, utilizando un ensayo entre especies de Candida como ejemplo. Estos métodos pueden adaptarse fácilmente para investigar la comunicación microbiana entre especies en diversos organismos.
Artículo de método
Ensayos de cocultivo sin contacto para estudios morfométricos durante las interacciones entre especies en hongos
En este artículo
Resumen
Resumen
El comportamiento y la morfología celulares suelen estar influenciados por diversos factores intra y extracelulares en una comunidad microbiana. Los diferentes enfoques disponibles para estudiar la comunicación microbiana pueden ser tediosos y/o requerir instalaciones y conocimientos especializados. Aquí se describen dos enfoques complementarios de co-cultivo sin contacto: el ensayo de co-cultivo en placas de pozo con insertos de membrana y el ensayo basado en el sobrenadante libre de células (CFS), que se fundamentan en la transición morfológica como respuesta medible para investigar el papel de diversos factores en una interacción inter-específica determinada. El sistema de placa de pozo con inserto de membrana, aunque permite la difusión de moléculas extracelulares, posibilita la interacción en tiempo real entre especies físicamente separadas. En comparación, el ensayo basado en CFS ofrece un enfoque simplificado y escalable para evaluar las respuestas a medios acondicionados. El protocolo presentado aquí incluye procedimientos estandarizados para la preparación de cultivos, la generación de sobrenadantes acondicionados, el montaje del ensayo, microscopía, adquisición de imágenes, análisis morfométrico cuantitativo mediante Fiji y evaluación estadística. Esto se ha demostrado con un ejemplo de la respuesta morfológica fúngica a factores intrínsecos y extrínsecos. Los métodos aquí presentados ofrecen herramientas alternativas accesibles y adaptables para estudiar nuevas interacciones microbianas en una comunidad, y podrían extenderse fácilmente para investigar los mecanismos subyacentes a la coexistencia de múltiples especies en una comunidad.
Introducción
En ecosistemas naturales y clínicos, los microorganismos suelen residir dentro de comunidades polimicrobianas estructuradas, gobernadas por redes complejas de interacciones intra- y interespecífico comunicación1. Estos consorcios utilizan diversas señales químicas, incluyendo moléculas de quorum-sensing, compuestos orgánicos volátiles y péptidos y proteínas secretorios, para coordinar comportamientos a nivel de población2. Mapear estas dinámicas de comunicación es fundamental, ya que las interacciones en el nicho de tipo cooperativo, competitivo o depredador alteran significativamente el metabolismo microbiano, la arquitectura espacial y la adaptación al estrés3Clínicamente, estas redes polimicrobianas (como consorcios bacteriano-fúngicos de doble especie o fúngico-fúngicos entre especies) frecuentemente presentan virulencia sinérgica, colonización acelerada de los tejidos y resistencia antimicrobiana elevada, en comparación con cultivos monoclonales.4,5. Por lo tanto, descifrar los determinantes moleculares de las comunicaciones microbianas es fundamental para superar los modelos tradicionales y desarrollar estrategias antiinfecciosas innovadoras que interrumpan la estabilidad de las comunidades6.
Para diseccionar modos específicos de comunicación microbiana, los investigadores utilizan diversas configuraciones experimentales, empleadas principalmente en biología celular de mamíferos, inmunología y oncología7,8,9. Por ejemplo, los modelos de co-cultivo con contacto directo sirven como estándar para investigar la señalización juxtacrina y las interacciones físicas célula a célula10. Configuraciones similares, con modificaciones, también se utilizan para estudiar interacciones físicas entre microorganismos, comprendiendo la inhibición cruzada microbiana o la respuesta a fármacos9,11,12. Sin embargo, es difícil distinguir los mecanismos subyacentes, ya que tanto las señales dependientes del contacto como las difusibles contribuyen a la respuesta observada. Aunque los ensayos tradicionales basados en contacto pueden ofrecer información espacial, son laboriosos y/o requieren etiquetado específico de cepas, lo cual puede resultar tedioso en organismos no modelo. Por el contrario, los ensayos con Transwell (placas de pozo con insertos de membrana) se utilizan, principalmente en estudios con mamíferos, para diferenciar las contribuciones de las señales dependientes del contacto y las difusibles13,14,15,16. Este método es particularmente útil cuando la comunicación celular está mediada por moléculas secretadas, permitiendo el análisis en tiempo real de la dinámica de señalización entre poblaciones celulares17. Además, los ensayos sin contacto ofrecen la ventaja de una separación mediante membrana que también puede integrarse con modelos computacionales para rastrear dinámicamente microorganismos que los métodos tradicionales pasan por alto18. Este enfoque se utiliza ocasionalmente para estudiar simultáneamente la cinética del desarrollo de diferentes especies bacterianas19.
Una alternativa más económica y de alto rendimiento al ensayo con placas de pocillos con insertos de membrana es el ensayo basado en sobrenadante libre de células (CFS) o en medio condicionado. Se sabe que este ensayo se utiliza en medicina regenerativa y biología vascular para aislar secretomas necesarios para comprender la reparación tisular mediada por células madre y/o la angiogénesis inducida por tumores20. De manera similar, en estudios microbianos, los marcos basados en CFS han sido útiles para descifrar la competencia polimicrobiana. Por ejemplo, se han utilizado filtrados bacterianos (como Pseudomonas aeruginosa acetil-homoserina lactonas o Lactobacillus metabolitos) para modular la maduración del biofilm fúngico21,22. Más recientemente, las plataformas microfluídicas han permitido una biomímica fisiológica de alta fidelidad mediante tecnologías de órganos-en-un-chip23,24. Aunque los sistemas microfluídicos se han implementado para la detección simultánea de la respuesta de la comunidad microbiana frente a sus secretomas, requieren instrumentación y experiencia especializadas y pueden no implementarse fácilmente en todos los entornos25,26,27. Por lo tanto, los ensayos con placas de pocillos con insertos de membrana y los basados en CFS prometen ser los métodos de elección en la mayoría de los casos. La elección entre estos dos ensayos dependerá de la naturaleza de la molécula secretora. Si la molécula secretora es inestable, es decir, tiene una vida media corta, y requiere medir actividad en tiempo real, el ensayo con placa de pocillos con inserto de membrana es más adecuado. Por el contrario, si la molécula secretora es estable y el experimento es a gran escala, un ensayo basado en CFS sería más económico.
El objetivo principal de este protocolo es presentar una metodología cualitativa y cuantitativa paso a paso para el seguimiento de características morfológicas, utilizando placas de pozo con insertos de membrana y plataformas CFS (Figura 1). Aquí, se ha demostrado con la comunicación inducida por factores secretados entre Candida albicans y Candida glabrata como ejemplo. Además, estas herramientas también pueden cuantificar los efectos de variables genéticas intrínsecas (ploidía y estado del locus de apareamiento) en la alteración del desarrollo geométrico absoluto (longitud, volumen y diámetro) de los filamentos de C. albicans , cuando están expuestos a moléculas señalizadoras secretoras. Este protocolo establecido proporciona una plataforma sencilla, asequible y sin contacto, adecuada para estudiar la dinámica de señalización entre especies.
Protocolo
Tanto C. albicans como C. glabrata se clasifican como patógenos oportunistas humanos de Nivel de Bioseguridad 2 (BSL-2). Todos los pasos experimentales deben realizarse dentro de cabinas de bioseguridad certificadas, cumpliendo estrictamente las Buenas Prácticas Microbiológicas (GMP) y los procedimientos institucionales de contención. Debe usarse equipo de protección personal (EPP), incluyendo bata de laboratorio, doble guante y protección ocular, durante todo el procedimiento. Todos los materiales desechables contaminados, utensilios de plástico y cultivos líquidos deben someterse a autoclave validado (121 °C, 15 psi, durante 20 min) o desinfección química con una solución recién preparada de hipoclorito de sodio al 10 % antes de su eliminación final (Recomendado: Guía para la Eliminación de Residuos de los Institutos Nacionales de Salud (NIH) 2022). Todos los reactivos estándar, productos químicos de grado analítico y equipos utilizados en esta metodología se describen en la Tabla de Materiales. Las propiedades de las cepas fúngicas y los genotipos de referencia se detallan en la Tabla 1. La lista de medios empleados en este estudio, junto con sus composiciones, se proporciona en el Archivo Suplementario 1.
1. Preparación del sobrenadante libre de células (SLC)
- Inicio y cultivo del cultivo
- Utilizando un asa plástica estéril, seleccionar una colonia aislada individual de C. glabrata CBS138 cultivada recientemente en una placa de agar de Medio Mínimo con Glucosa (GMM) 28. Inocular la colonia en un tubo de vidrio estéril que contenga 10 mL de caldo estándar de Levadura-Peptona-Dextrosa (YPD) (1% p/v extracto de levadura, 2% p/v peptona, 2% p/v D-glucosa)29.
- Fijar el tubo dentro de un incubador con agitación orbital. Incubar el cultivo a una temperatura constante de 37 °C con agitación continua a 200 rpm durante 18 h.
- Verificar que el cultivo haya entrado uniformemente en la fase estacionaria tardía comprobando que la densidad óptica (OD600) se encuentre dentro de un rango estable entre 12,0 y 14,0. Observar las células al microscopio para asegurarse de que estén en forma de levadura y libres de contaminación. Esta ventana de desarrollo es necesaria para garantizar la acumulación óptima de componentes estables del secretoma extracelular.
- Separación celular y filtración
- Transferir asépticamente el cultivo líquido de C. glabrata de 18 h a un tubo cónico de centrífuga de polipropileno estéril de 15 mL.
- Equilibrar los tubos y centrifugar el cultivo a 5.000 x g durante exactamente 5 min a una temperatura ambiente controlada de 25 °C para comprimir la biomasa en un sedimento compacto.
- Verter cuidadosamente el sobrenadante líquido crudo en una jeringa plástica estéril limpia de 20 mL. Colocar cuidadosamente la jeringa en un filtro estéril de membrana de poliéter sulfona (PES) con baja unión a proteínas de 0,22 µm.
- Aplicar presión mecánica constante para hacer pasar el líquido a través del filtro de PES hacia un tubo de recolección estéril de 15 mL, obteniendo así el Sobrenadante Libre de Células (CFS) de trabajo. Si se siente resistencia durante la filtración, no aplicar presión excesiva, ya que podría provocar la ruptura de la membrana. En tales casos, utilizar un filtro de membrana nuevo.
NOTA: No someter el CFS recién obtenido a ciclos rápidos de congelación-descongelación ni a temperaturas de almacenamiento inferiores a 4 °C antes de preparar el ensayo, ya que la precipitación por frío puede desestabilizar factores proteicos de baja abundancia. - Conservar el sedimento celular comprimido en el tubo inicial de recolección si se va a proceder directamente al experimento complementario de co-cultivo en placa de pocillos con insertos de membrana (Paso 4).
2. Preparación del inóculo de Candida albicans para ensayos de inducción de hifas
- Preparación y mantenimiento del inóculo
- Recuperar las cepas objetivo de C. albicans (consultar la Tabla 1 para conocer los genotipos) directamente de los stocks maestros de glicerol almacenados a -80 °C. Sembrar las células en placas sólidas de GMM (0,67 % p/v de base de nitrógeno para levadura sin aminoácidos, 2 % p/v de D-glucosa, 2 % p/v de agar) para obtener colonias de trabajo.
- Para cepas diploides (SC5314, RBY1132, RBY1133): inocular una colonia individual en 5 mL de caldo líquido GMM. Incubar el tubo durante 12 h a 37 °C con agitación constante a 200 rpm.
NOTA: Es fundamental utilizar medio mínimo (GMM) para la preparación nocturna de células diploides con el fin de suprimir la autofilamentación espontánea que suele ocurrir en medios ricos en nutrientes. - Para cepas haploides (GZY896, GZY803): inocular una colonia aislada en 5 mL de caldo YPD suplementado con 0,1 mg/mL de uridina (YPDU). Incubar el tubo durante 12 h a 37 °C con agitación continua a 200 rpm.
- Para preservar la estabilidad morfológica y garantizar la consistencia, limitar el número de subcultivos líquidos consecutivos a un máximo de tres pasajes. Si la autofilamentación o la formación de agregados pseudohifales supera el 2 % en el grupo control inicial, desechar la cepa y reactivar células frescas a partir de los stocks congelados maestros.
- Normalización
- Aliquotar 1 mL de los cultivos líquidos nocturnos en cubetas estériles. Medir la absorbancia exacta a 600 nm (OD600) utilizando un espectrofotómetro UV-Visible calibrado, empleando caldo GMM o YPDU fresco como control de blanco.
NOTA: La OD600 (densidad celular) de los cultivos líquidos nocturnos, especialmente aquellos crecidos en YPDU, superaría el rango de sensibilidad del espectrofotómetro. En tales casos, diluir adecuadamente los cultivos (10–20 veces) antes de realizar las mediciones. - Calcular el volumen de cultivo denso necesario para generar una suspensión estandarizada. Diluir las células con GMM líquido precalentado (37 °C) en un tubo estéril para obtener un inóculo de trabajo de 1 mL ajustado a una OD600 final absoluta = 0,1.
- Aliquotar 1 mL de los cultivos líquidos nocturnos en cubetas estériles. Medir la absorbancia exacta a 600 nm (OD600) utilizando un espectrofotómetro UV-Visible calibrado, empleando caldo GMM o YPDU fresco como control de blanco.
3. Ensayo de inducción de hifas basado en CFS (formato de placa de 96 pocillos)
- Configuración del ensayo
- Tome una placa de microtitulación estéril de poliestireno de 96 pocillos con fondo plano y ópticamente transparente.
- Configuración de los pocillos de prueba: Añada 45 µL del CFS filtrado recientemente de C. glabrata (del Paso 1.2.4) directamente en los pocillos designados para prueba. Añada 45 µL de caldo GMM estéril (o caldo YPDU si se evalúan cepas diana haploides).
- Controles negativos de medio: Añada 90 µL de caldo GMM en los pocillos de control. Adicionalmente, en un pocillo separado, mezcle 45 µL de caldo GMM estéril con 45 µL de caldo YPD sin inocular para monitorear los componentes básicos del medio.
- Controles positivos de inducción: Añada 80 µL de caldo GMM combinado con 10 µL de suero bovino fetal (FBS; concentración final del 10% v/v).
- Inoculación: Añada exactamente 10 µL del inóculo de trabajo normalizado con OD600 = 0.1 de C. albicans (del Paso 2.2.2) en 90 µL del medio apropiado en todos los pocillos experimentales y de control.
- Incubación y recopilación de datos
- Cubra la placa de 96 pocillos con su tapa de plástico ajustada para minimizar la evaporación. Coloque la placa en un incubador estático mantenido a 37 °C durante exactamente 3 h. Evite mover o agitar la placa durante este periodo para permitir una filamentación estable.
- Tras la incubación, coloque la placa de múltiples pocillos en posición vertical sobre la platina de un microscopio invertido equipado con óptica de campo claro y un módulo integrado de cámara digital CCD.
- Capture sistemáticamente imágenes automáticas o manuales en al menos cinco campos de visión distintos por pocillo.
- Realice esta configuración del ensayo con duplicados técnicos claros por cada condición, en al menos tres réplicas biológicas completamente independientes preparadas en días diferentes.
4. Ensayo de cultivo celular en placa de pozo con inserto de membrana
- Configuración del compartimento abluminal (inferior)
- Tome una placa estéril de cultivo celular de 24 pocillos.
- Dispense exactamente 1,0 mL de la suspensión celular normalizada de C. albicans con OD600 = 0,1 (del paso 2.2.2) en los compartimentos inferiores abluminales.
- Configuración del compartimento luminal (superior)
- Recupere el pellet celular de C. glabrata reservado durante el paso 1.2.5. Re_suspenda el pellet en 1 mL de caldo GMM estéril, centrifugue a 5000 x g durante 3 min y deseche el sobrenadante. Repita este lavado dos veces para eliminar componentes nutricionales residuales o elementos del medio antiguo.
- Re_suspenda el pellet final lavado en caldo GMM fresco y ajuste la densidad óptica final a un valor altamente concentrado de OD600 = 5,0.
- Utilizando fórceps estériles, tome un inserto de membrana estéril con una membrana de policarbonato de poro 0,4 µm fabricada por técnica de grabado por trazas. Introduzca suavemente el cuerpo del inserto en el pocillo ocupado de la placa de 24 pocillos, asegurando sus lengüetas superiores en las posiciones de las muescas centrales.
- Dispense exactamente 750 µL de la cultura concentrada de C. glabrata con OD600 = 5,0 en el compartimento superior luminal del inserto.
NOTA: Mantener una relación inicial de células de aproximadamente 1:50 (C. albicans frente a C. glabrata) a través de la barrera de membrana proporciona una acumulación suficiente de ligandos señalizadores, evitando al mismo tiempo artefactos de retroalimentación localizados.
- Incubación y adquisición de imágenes
- Cubra el conjunto ensamblado de la placa con insertos de membrana e incube estáticamente o con agitación orbital suave (30 rpm) a 37 °C durante exactamente 3 h.
- Tras la incubación, utilice fórceps estériles para levantar y extraer cuidadosamente el inserto luminal superior de cada pocillo. Deseche los insertos en residuos biopeligrosos.
NOTA: La eliminación completa del inserto superior con membrana antes de la adquisición de imágenes es necesaria para evitar sombras refractivas, patrones de dispersión de la luz y artefactos de fondo de rejilla durante el análisis microscópico de alta resolución. - Coloque la placa de 24 pocillos sobre la platina del microscopio invertido para la evaluación morfológica. En este estudio, se ha utilizado un microscopio invertido equipado con objetivos de 10x/0,30NA, 20x/0,50NA o 40x/0,60NA con distancia de trabajo extra larga, junto con un filtro de contraste de interferencia diferencial (DIC).
5. Microscopía de alta resolución y análisis digital de imágenes
- Adquisición de imágenes digitales
- Escanea los fondos de las placas utilizando un objetivo de baja potencia de 10x para verificar una distribución uniforme de las células y marcar cualquier error localizado de seguimiento o agrupamiento celular anómalo.
- Captura un mínimo de 10 campos de visión separados utilizando un objetivo calibrado de 20x. Esta imagen constituye el conjunto de datos principal para el seguimiento del número estándar de filamentos y las distribuciones poblacionales.
- Para un análisis fenotípico detallado y mediciones precisas de los límites celulares, captura micrografías con una configuración de objetivo de 40x con distancia de trabajo extra larga. Guarda todos los archivos de imagen en bruto.
- Secuencia de fenotipado cuantitativo (Fiji)
- Inicia el software de procesamiento Fiji (versión 1.54p o superior). Abre la micrografía objetivo navegando a Archivo > Abrir o arrastrando el archivo directamente al panel de control de Fiji.
- Seguimiento de la longitud del hifa (L): Haz clic derecho en el icono de selección de línea en la barra de herramientas principal de Fiji y selecciona la Herramienta de Línea Segmentada en el menú desplegable. Coloca el cursor en el punto exacto de unión donde el filamento en movimiento emerge del límite de la pared celular de la levadura madre.
- Haz clic izquierdo continuamente para trazar a lo largo del eje longitudinal central del hifa, colocando puntos de anclaje para ajustar cualquier curva o doblez, y termina la línea en su punta apical absoluta. Haz clic en Medir para registrar la longitud en micrómetros (µm). Presiona Ctrl+M (Windows) o Cmd+M (Mac OS) para registrar la longitud total (L) en micrómetros (µm) dentro de la ventana de Resultados.
- Para evitar mediciones duplicadas del mismo filamento, utiliza la herramienta de ‘Pincel’ integrada para resaltar cada célula completada.
- Perfilado de la célula madre de levadura: Localiza el cuerpo de la célula madre de levadura asociado al filamento hifal previamente rastreado. Usa la Herramienta de Línea Segmentada para trazar una línea recta a través del eje longitudinal máximo del cuerpo celular y medir su eje longitudinal máximo (eje mayor, definido como la variable ‘a’) y ejecuta el comando Medir.
- Dibuja una línea secundaria estrictamente perpendicular al eje mayor a través del tramo transversal más ancho del cuerpo celular para medir su eje transversal correspondiente (eje menor, definido como la variable ‘b’) y ejecuta el comando Medir.
- Calcula el volumen total de la célula madre de levadura (CV, expresado en micrómetros cúbicos, µm3) aplicando el modelo geométrico estándar para un esferoide prolato utilizando las variables registradas de ‘a’ y ‘b’: CV = 4/3 π ab2.
- Grosor estructural del hifa (d): Selecciona la Herramienta de Línea Segmentada. Mide la distancia de pared exterior a pared exterior es decir, una línea trazada perpendicular al eje de longitud. Realiza estas mediciones en tres puntos distintos y equidistantes a lo largo de la longitud del filamento para tener en cuenta las variaciones estructurales naturales, registrando cada medición mediante el comando Medir.
- Calcula la media aritmética de estos tres puntos de datos distintos para determinar un valor preciso de grosor promedio (d). Divide este valor de diámetro promedio calculado entre dos para determinar el radio estructural (r = d/2).
- Calcula el volumen total del filamento hifal (HV, expresado en µm3) tratando el filamento como un cilindro geométrico regular sin ramificaciones. Aplica la longitud del filamento rastreada (L) y el radio estructural derivado (r) al siguiente modelo de cálculo: HV = π r2 L.
6. Diseño estadístico
- Réplicas biológicas
- Realice todos los diseños de pruebas individuales en al menos tres réplicas biológicas independientes utilizando cultivos iniciales frescos y preparados por separado.
- En cada ensayo biológico, asigne un mínimo de dos pocillos técnicos idénticos por condición para tener en cuenta los efectos locales en los bordes de los pocillos o las variaciones en la pipetación.
- Definición de la unidad experimental: Para garantizar la validez estadística y evitar artefactos, incluya un mínimo de tres repeticiones técnicas para cada experimento. Las células individuales medidas dentro de un mismo pocillo constituyen submuestras técnicas; de manera similar, tres de estos pocillos corresponderían a tres réplicas técnicas. Asimismo, se recomiendan tres réplicas biológicas (experimentos independientes) para cada muestra (N = 3).
- Para cada condición distinta dentro de un experimento biológico, mida aleatoriamente entre 50 y 100 células individuales en varios campos de visión. Para cada réplica biológica, calcule el valor medio o mediano de estas mediciones celulares. Utilice estos valores medios o medianos provenientes de las réplicas biológicas para todas las pruebas estadísticas comparativas posteriores.
- Perfilado de distribución y prueba de hipótesis
- Someter los conjuntos de datos de réplicas biológicas a una evaluación de normalidad utilizando las pruebas de Shapiro-Wilk o D’Agostino-Pearson antes de aplicar métodos paramétricos (por ejemplo, comparación de medias).
- Comparaciones entre dos grupos: Al comparar un único grupo experimental directamente con un único grupo de control (por ejemplo, tipo silvestre) C. albicans crecimiento en medio puro frente a crecimiento en aislado C. glabrata CFS), aplicar una prueba t de Student no pareada, de dos colas prueba t, siempre que el conjunto de datos siga una distribución normal.
- Si los datos se desvían significativamente de una distribución normal, utilice una alternativa no paramétrica, como la prueba U de Mann-Whitney (prueba de suma de rangos de Wilcoxon), que compara los valores medianos de datos ordenados por rangos y no depende de los valores absolutos de los datos. Se sabe que las pruebas no paramétricas también son insesgadas respecto a los valores atípicos.
- Evaluaciones con múltiples grupos: Al evaluar tres o más líneas genéticas o combinaciones de tratamientos simultáneamente (por ejemplo, rastreando variaciones morfológicas a lo largo de) MATa/a, MATα/α, y MATa/α cepas), realice un análisis de varianza estándar de un solo factor (ANOVA) seguido de la prueba post hoc de Tukey para comparaciones pareadas múltiples. Si no se cumple la prueba de normalidad, sustituya el marco paramétrico por una prueba no paramétrica de Kruskal-Wallis seguida del análisis post hoc de comparaciones múltiples de Dunn.
- Representación gráfica y visualización de datos: Realice todos los análisis estadísticos y representaciones gráficas utilizando software estadístico y de graficación.
NOTA: Puede utilizarse software equivalente para realizar análisis estadísticos y preparar representaciones gráficas. Los datos procedentes de la placa de pozo con insertos de membrana y los ensayos de CFS pueden representarse mediante gráficos de columnas con dispersión, gráficos violín con dispersión o gráficos de caja con dispersión, que muestran la mediana (línea central) y el IC del 95 % (utilizado en este estudio), o bien la mediana (línea central) y los cuartiles primero y tercero (líneas superior e inferior, respectivamente). - Establecer el umbral de significación estadística formal en un nivel alfa de p < 0.05. Mantenga configuraciones convencionales de notación en todas las figuras y tablas generadas con los datos. Por ejemplo: ns: p > 0.05; *: p < 0.05; **: p < 0.01; ***: p < 0.001; ****: p < 0.0001.
Resultados
Ensayos de co-cultivo sin contacto para explorar interacciones entre especies
Las moléculas señalizadoras extracelulares solubles y de baja abundancia suelen mediar eventos clave de comunicación durante la convivencia microbiana mixta. Se evaluaron tales dinámicas mediante dos configuraciones celulares sin contacto, diseñadas para analizar los patrones de interacción entre C. albicans y C. glabrata, al tiempo que se evitaba el contacto físico directo entre células. La primera configuración utilizó un sistema de cultivo en placa de pozo con inserto de membrana integrado, en el que las dos poblaciones estaban físicamente separadas por una membrana de policarbonato inerte y porosa de 0,4 µm, lo que permitía la difusión bidireccional sin obstáculos de las moléculas secretadas a través de la barrera. La segunda configuración monitoreó el crecimiento de células de levadura de C. albicans cultivadas directamente en placas de microtitulación que contenían sobrenadante libre de células obtenido de cultivos de C. glabrata en fase estacionaria (CgCFS).
Consistente con las pantallas previas30, las células diploides heterocigotas de tipo salvaje de C. albicans (SC5314) desarrollaron fácilmente hifas verdaderas en respuesta a las células de C. glabrata separadas por la barrera del inserto de membrana o al CgCFS filtrado. Por el contrario, las células mantenidas en medio de control negativo puro (GMM o YPD) permanecieron predominantemente en forma de levadura gemante y pseudohifal (Figura 2A). Los análisis comparativos demostraron consistencia entre los dos montajes del ensayo. Ambos ensayos arrojaron valores comparables en todas las métricas estructurales, incluyendo longitud, volumen y grosor del filamento (Figura 2). Se consideró que la diferencia en los parámetros morfológicos era significativa si el valor de p proveniente de las pruebas estadísticas apropiadas, seguidas de pruebas post hoc para comparaciones múltiples, cumplía con el criterio de 0.05. Estas observaciones mostraron que no hubo diferencia significativa en la longitud de las hifas verdaderas en las células de C. albicans, inducidas por las células de C. glabrata dentro del sistema de placa de pozo con inserto de membrana (39,66 µm ± 6,81 µm) o cuando se expusieron al CgCFS filtrado (37,13 µm ± 6,50 µm; Figura 2B). De manera similar, los volúmenes de estos filamentos inducidos en el sistema de placa de pozo con inserto de membrana (112,10 µm3 ± 22,59 µm3) tampoco fueron significativamente diferentes de los observados en el medio acondicionado con CgCFS (109,78 µm3 ± 34,69 µm3; Figura 2C). Además, las mediciones del diámetro del filamento confirmaron que el grosor promedio de las hifas se mantuvo constante entre los dos montajes, con valores de 1,89 ± 0,10 µm para la configuración de placa de pozo con inserto de membrana y de 1,92 µm ± 0,23 µm para el tratamiento con CgCFS (Figura 2D).
Los estados de ploidía y las configuraciones del tipo de apareamiento alteran las dimensiones morfológicas in vitro
Se han establecido los roles de los niveles de ploidía y las arquitecturas del locus de apareamiento en la regulación de las transiciones dimórficas en diferentes sistemas modelo de hongos. Aquí, se aplicó una tubería analítica de seguimiento para cuantificar métricas de filamentación, específicamente la longitud de los hifas, el volumen estructural, el grosor y el volumen correspondiente de la célula madre en levadura, en un conjunto de cepas haploides (MATa o MATα) y diploides (MATa/a, MATα/α o MATa/α) de C. albicans.
El perfilado estructural reveló que tras la exposición al secretoma inductivo de CgCFS o al control positivo de suero, la cepa diploide homocigota alfa (MATα/α) formó filamentos con ejes significativamente más largos (45,56 µm ± 9,24 µm y 46,62 µm ± 9,07 µm) y mayor volumen (125,24 µm3 ± 39,94 µm3 y 119,45 µm3 ± 37,32 µm3), en comparación con la cepa diploide homocigota MATa/a (Figura 3A,C). Aunque los aislados clínicos estándar de C. albicans existen predominantemente como diploides heterocigotos, la cepa de referencia MATa/α exhibió filamentos más largos y volúmenes mayores en relación con la cepa MATa/a tras la inducción (especialmente con suero). Sin embargo, estos fueron significativamente menores que los de la cepa homocigota MATα/α (Figura 3B,D).
Al mismo tiempo, las cepas haploides mostraron un patrón inverso, en el que la cepa haploide MATa presentó un aumento significativo en la longitud de hifas en comparación con la cepa haploide MATα bajo ambas condiciones de inducción (CgCFS: 22,06 µm ± 5,41 µm frente a 17,58 µm ± 4,12 µm; Suero: 23,71 µm ± 6,59 µm frente a 21,00 µm ± 5,29 µm; Figura 4A). Curiosamente, este aumento en longitud dentro del fondo haploide se tradujo en un incremento del volumen de hifas (38,84 µm3 ± 19,58 µm3 frente a 34,25 µm3 ± 19,62 µm3) solo en respuesta al CgCFS (Figura 4B). Estas mediciones iniciales in vitro sugieren una interacción compleja entre los estados de ploidía y las configuraciones del locus de tipo de apareamiento, lo que indica que los loci MATa y MATα probablemente contribuyen de manera diferente a la dinámica de filamentación.
Para estudiar las relaciones estadísticas entre estas métricas estructurales en los conjuntos de datos combinados, se realizaron análisis de correlación por rangos de Spearman (ρ) y regresión lineal de Pearson (R2), que incluyeron todas las variantes de ploidía y tipo de apareamiento evaluadas. Se observaron correlaciones positivas en todos los pares analizados: longitud del hifa frente a volumen del hifa, longitud del hifa frente a grosor del hifa, longitud del hifa frente a volumen de la célula madre y volumen total del hifa frente a volumen de la célula madre en forma de levadura (Figura 5, Tabla suplementaria 1 y Tabla suplementaria 2).
La relación más fuerte se observó entre la longitud del hifa y el volumen fúngico calculado (ρ = 0.91; Figura 5A). Por el contrario, la correlación más débil fue entre el volumen inicial de la célula madre de levadura y el volumen del hifa emergente (ρ = 0.63; Figura 5C). Además, el grosor del hifa no se correlacionó tan fuertemente con la longitud del hifa como lo hizo el volumen del hifa (Figura 5A,D). El volumen de la célula madre, la longitud del hifa y el grosor del hifa no presentaron diferencias estadísticamente significativas en sus correlaciones (Figura 5B,D). Estas distribuciones geométricas sugieren que un volumen inicial mayor de la célula madre de levadura no necesariamente da lugar a hifas más largas o a un volumen mayor.
En resumen, estos resultados demuestran la utilidad de la placa de pocillos con insertos de membrana y de los ensayos basados en CFS para visualizar y cuantificar variaciones morfogenéticas en C. albicans sin ningún contacto físico. Los datos generados mediante este protocolo revelan diferentes características morfológicas en cepas con distintos fondos de ploidía y configuraciones de tipo de apareamiento. Estos ensayos sin contacto ofrecen una metodología flexible y escalable que puede adaptarse para investigar la dinámica de señalización interespecífica en diversas combinaciones microbianas.
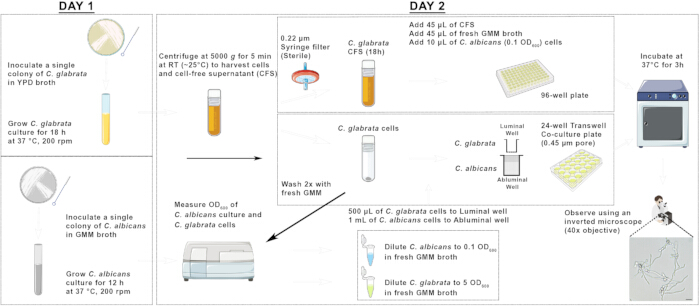
Figura 1: Una representación esquemática de los ensayos de co-cultivo en placa de pozo con inserto de membrana y de inducción de hifas basados en CFS con especies de Candida. Haga clic aquí para ver una versión más grande de esta figura.
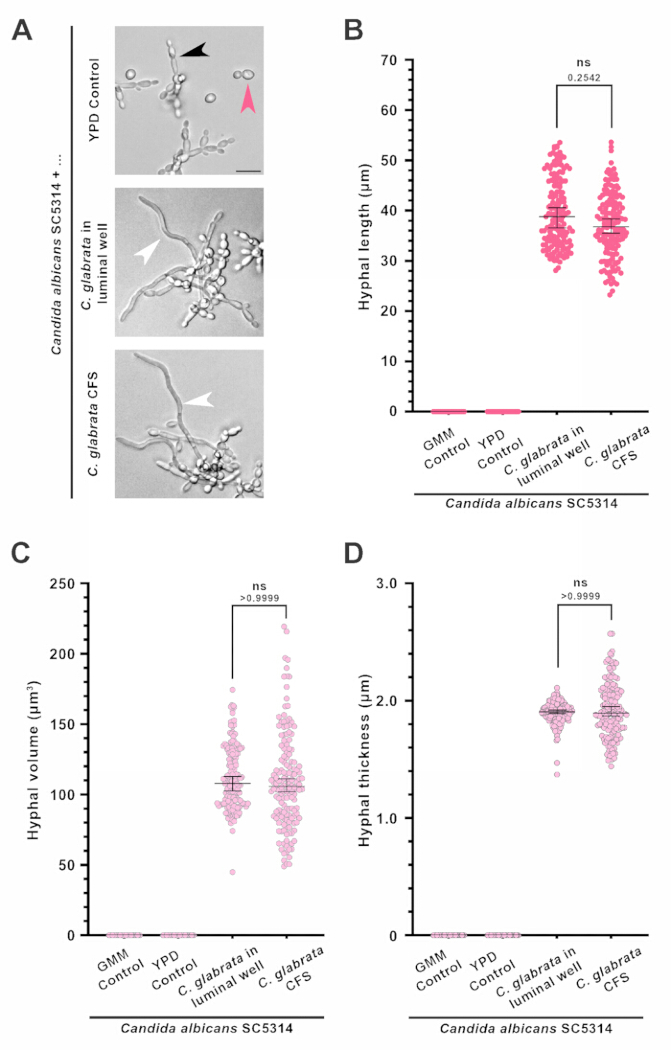
Figura 2: Comparación de las morfologías de hifas observadas entre el ensayo con placa de pocillos con inserto de membrana y los ensayos sin contacto basados en CFS. (A) Micrografías representativas de campo brillante que muestran la respuesta morfológica de C. albicans frente a YPD (control), C. glabrata en un sistema de placa de pocillos con inserto de membrana, o al medio acondicionado con el sobrenadante libre de células de C. glabrata (CFS). Las flechas rosadas, negras y blancas indican levaduras, pseudohifas y hifas verdaderas, respectivamente. Barra de escala, 10 µm. Longitudes de las hifas (B), volúmenes de las hifas (C) y grosor de las hifas (D) de una cepa diploide heterocigótica de C. albicans (SC5314) observadas en respuesta a células de C. glabrata en un sistema de placa de pocillos con inserto de membrana o al CFS de C. glabrata. Los datos representan la mediana ± intervalos de confianza del 95%, provenientes de tres experimentos biológicos independientes, con n = 50 células. ns, no significativo: p > 0,05. Haga clic aquí para ver una versión más grande de esta figura.
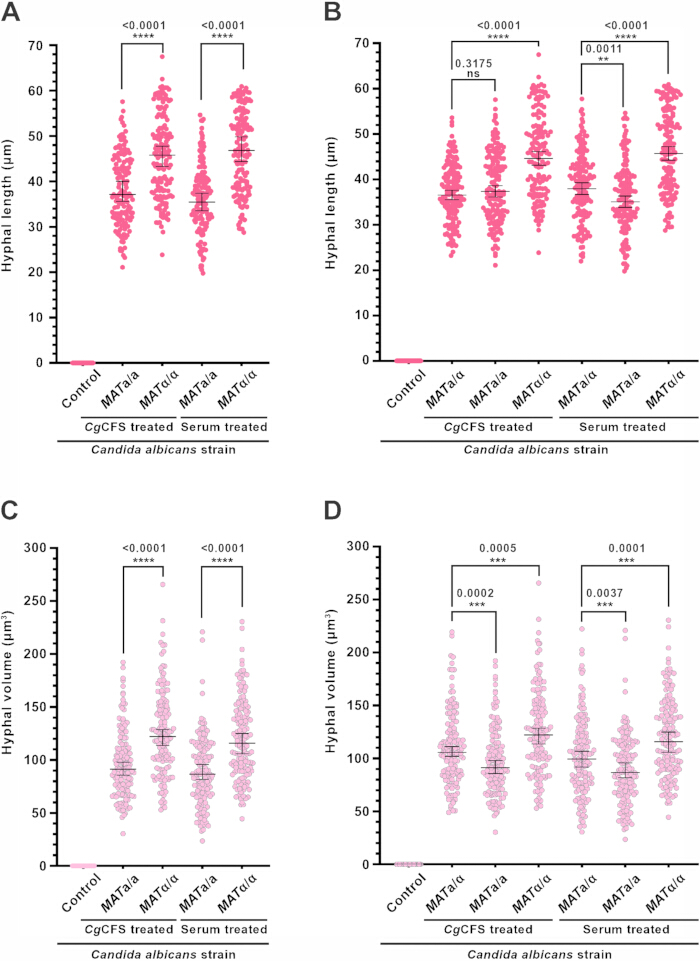
Figura 3: El tipo de apareamiento y la zigocidad tienen efectos significativos sobre la morfología de las hifas en C. albicans diploide. Gráficos que muestran longitudes comparativas de hifas, en respuesta a la molécula inductora indicada, entre diploides homocigotos (A) y entre diploides heterocigotos y homocigotos (B) de C. albicans. De manera similar, se muestran los volúmenes comparativos de hifas, en respuesta a las moléculas inductoras mencionadas, entre diploides homocigotos (C) y entre diploides heterocigotos y homocigotos (D). Control: YPD, medio de control que no induce formación de hifas. Los datos representan la mediana ± intervalos de confianza del 95 %, provenientes de tres experimentos biológicos independientes, con n = 50 células. Los números indicados en la parte superior del gráfico corresponden a valores de p, determinados mediante comparaciones con la prueba de suma de rangos de Wilcoxon. **: p < 0,01, ***: p < 0,001, ****: p < 0,0001, estadísticamente significativo; ns, no significativo: p > 0,05. Haga clic aquí para ver una versión más grande de esta figura.
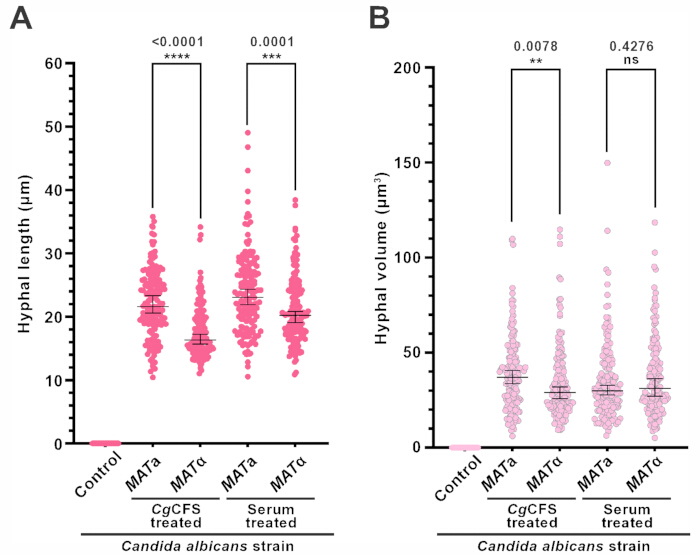
Figura 4: Características de las hifas en cepas haploides de C. albicans en respuesta a diferentes inductores moleculares. Los gráficos muestran las longitudes de las hifas (A) y los volúmenes de las hifas (B) en cepas haploides de C. albicans, en respuesta al inductor indicado. Control: YPD, medio de control que no induce la formación de hifas. Los datos representan la mediana ± intervalos de confianza del 95%, provenientes de tres experimentos biológicos independientes, con n = 50 células. Los números indicados denotan valores de p, determinados mediante la prueba de suma de rangos de Wilcoxon. **: p < 0,01, ***: p < 0,001, ****: p < 0,0001, estadísticamente significativo; ns, no significativo: p > 0,05. Haga clic aquí para ver una versión más grande de esta figura.
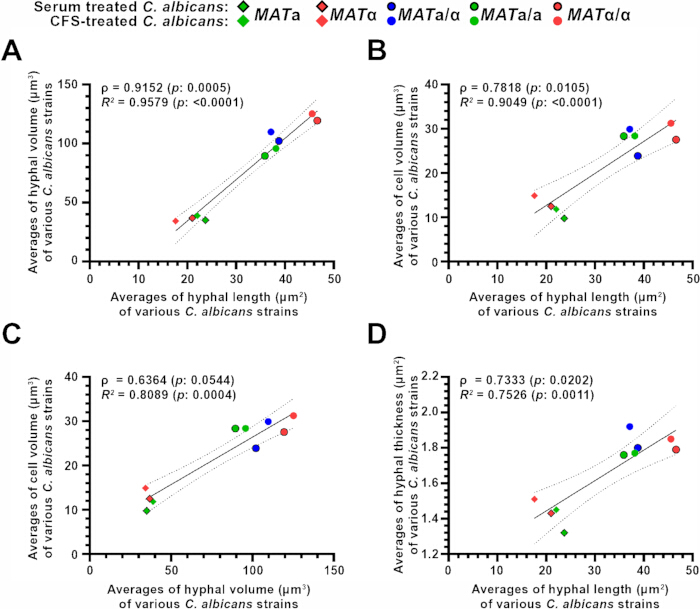
Figura 5: Correlación entre los parámetros morfológicos correspondientes con la ploidía de C. albicans. Los gráficos muestran la correlación de Spearman y la regresión lineal entre los parámetros morfológicos utilizados en este estudio, es decir, volumen de hifas y longitud de hifas (A), volumen celular y longitud de hifas (B), volumen celular y volumen de hifas (C), y grosor de hifas y longitud de hifas (D). ρ: coeficiente de correlación de Spearman; R2: coeficiente de determinación obtenido del análisis de regresión lineal; p: valor p. Haga clic aquí para ver una versión más grande de esta figura.
| Estirpe | Especie | Ploidía | Genotipo | Origen |
| CBS138 | Candida glabrata | Haploide (1n) | MATα | ATCC 2001 |
| SC5314 | Candida albicans | Diploide (2n) | Heterocigoto (MATa/α) | ATCC MYA-2876 |
| RBY1132 | Candida albicans | Diploide (2n) | Homocigoto (MATa/a); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | Schaefer, D., Côte, P., Whiteway, M., Bennett, R.J. Barrier Activity in Candida albicans Mediates Pheromone Degradation and Promotes Mating. Eukaryotic Cell. 6 (6), 907–918, doi: 10.1128/ec.00090-07 (2007). |
| RBY1133 | Candida albicans | Diploide (2n) | Homocigoto (MATα/α); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | |
| GZY896 | Candida albicans | Haploide (1n) | Homocigoto (MATa); ura3∆::imm434 his4 gal1∆::ura3∆::HIS4 | Hickman, M.A. et al. The ‘obligate diploid’ Candida albicans forms mating-competent haploids. Nature. 494 (7435), 55–59, doi: 10.1038/nature11865 (2013). |
| GZY803 | Candida albicans | Haploide (1n) | Homocigoto (MATα); his4 ura3Δ::HIS4 |
Tabla 1: Cepas de Candida albicans y Candida glabrata utilizadas en este estudio. La tabla describe las denominaciones, genotipos explícitos, estados de ploidía y la zigocidad del tipo de apareamiento de las cepas fúngicas evaluadas en los ensayos de co-cultivo en placas de pozo con insertos de membrana sin contacto y basados en sobrenadantes libres de células (CFS).
Tabla suplementaria 1: Datos de los análisis estadísticos realizados sobre diversos parámetros morfológicos de C. albicans. Haga clic aquí para descargar este archivo.
Tabla suplementaria 2: Valores brutos de todas las réplicas biológicas de diversos parámetros morfológicos de C. albicans evaluados en este estudio.Haga clic aquí para descargar este archivo.
Archivo suplementario 1: Lista de medios utilizados en este estudio con sus composiciones.Haga clic aquí para descargar este archivo.
Discusión
Un informe previo, que utilizó una placa de pozo con inserto de membrana y un ensayo basado en CFS, mostró que C. albicans desarrolla hifas en respuesta a células de C. glabrata o su CFS. Sin embargo, esta respuesta no fue inducida por otras levaduras, como Saccharomyces cerevisiae y Candida dubliniensis30. Además, esta respuesta hifal no se limitó únicamente a la cepa de referencia de laboratorio C. albicans SC5314, sino que también ocurrió en otros contextos genómicos, incluido el aislado clínico WUM5A30. En este protocolo, se estableció un flujo de trabajo estandarizado basado en estos hallazgos para cuantificar tres métricas morfológicas: longitud hifal, volumen hifal y grosor hifal. Asimismo, estos factores morfológicos se utilizaron para evaluar cómo las variaciones en la ploidía y el estado del locus del tipo de apareamiento afectan las características morfológicas de C. albicans en respuesta a una molécula inductora secretada.
Las metodologías sin contacto descritas aquí proporcionan un marco experimental sencillo para visualizar y analizar los resultados morfométricos de las señales solubles entre especies. Mientras que la placa de pocillos con inserto de membrana permite la difusión bidireccional entre cultivos activos, el ensayo basado en SFC ofrece un formato escalable porque los componentes inductores necesarios se obtienen independientemente del cultivo diana posterior. Es necesario mantener una proporción de aproximadamente 1:50 (C. albicans a C. glabrata) en el montaje de la placa de pocillos con inserto de membrana para garantizar la consistencia del ensayo. Este gradiente de concentración asegura un flujo adecuado de las moléculas inductoras solubles a través de la barrera de membrana, al tiempo que se mantiene por debajo de los umbrales de acumulación de inhibidores endógenos de la detección de cuórum, como el farnesol, que puede suprimir la cinética de filamentación de C. albicans31,32. De manera similar, un paso crítico en el ensayo basado en SFC es el período de incubación de 18 h necesario para que el cultivo fuente de C. glabrata alcance uniformemente la fase estacionaria tardía de crecimiento. Si el período de incubación del cultivo de C. glabrata es inferior a 12 h o superior a 24 h, es menos probable que el SFC recolectado tenga una concentración óptima de la molécula inductora específica estudiada aquí, lo que conduce a una inducción subóptima de hifas. El estadio de crecimiento adecuado para recolectar el SFC o la proporción de cultivos debe estandarizarse para cualquier nuevo objetivo experimental y/o nuevas combinaciones de especies microbianas.
Para maximizar la reproducibilidad del ensayo en diferentes entornos de laboratorio, se recomiendan las siguientes mejoras procedimentales clave. Se recomienda el uso de medio mínimo con glucosa (GMM) para el cultivo nocturno de todas las cepas diploides de C. albicans. El uso de GMM suprime la autofilamentación de fondo frecuentemente observada en el medio rico en nutrientes YPD. Dicha autofilamentación también se ha observado en otros estudios, aunque el mecanismo subyacente aún no está claro33. Asimismo, se recomienda la eliminación física completa del inserto de membrana de policarbonato antes de la adquisición de imágenes, para eliminar la dispersión de la luz y las aberraciones ópticas que podrían interferir durante la microscopía de campo claro con alto aumento.
Si bien estas configuraciones sin contacto ayudan a separar los roles de los componentes solubles de la señalización, presentan desafíos experimentales específicos. Por ejemplo, los ensayos sin contacto son propensos a riesgos menores, como la ruptura de la membrana debido a un manejo inadecuado y, por lo tanto, al cruce microbiano. Por ello, se debe prestar atención al colocar las puntas de pipeta, teniendo cuidado de que las puntas toquen las paredes de la cámara de los insertos y no la membrana durante el muestreo. Además, puede ocurrir contaminación cruzada física entre compartimentos debido a tamaños de poro incorrectos (más grandes), lo cual puede resolverse fácilmente utilizando insertos con un tamaño de poro de membrana adecuado. El crecimiento excesivo de hongos o la deposición extensa de biopelículas puede cubrir la membrana porosa. Esto se evita limitando las inóculaciones iniciales a una DO600 = 0,1 y no incubando más allá de 12 h. Asimismo, los microorganismos pueden no distribuirse homogéneamente dentro de los pocillos del dispositivo, a menudo agrupándose o adherirse cerca de la membrana, lo que puede provocar sesgos inesperados en las mediciones de densidad óptica. Además, dado que estos sistemas separan físicamente las dos poblaciones, no pueden replicar ni evaluar interacciones que dependan del contacto físico directo entre células. Por ejemplo, la maduración de biopelículas de especies mixtas, la coagregación mecánica o la señalización mediada por adhesinas de la pared celular ancladas en la superficie. Aunque estos ensayos basados en placas proporcionan una instantánea efectiva del punto final de la cinética temprana de filamentación (a las 3 h), no capturan la dinámica de crecimiento a largo plazo ni el comportamiento espacial. Para investigadores que requieran un seguimiento continuo en tiempo real durante períodos prolongados, los canales de perfusión microfluídicos especializados o las cámaras de imagen automatizadas para células vivas pueden ofrecer una alternativa más adecuada.
La geometría celular está fundamentalmente relacionada con la eficiencia metabólica, siendo la relación entre área de superficie y volumen (SA/V) un factor clave para la adquisición de nutrientes y el transporte intracelular. En los hongos dimórficos y filamentosos, la transición hacia un morfotipo hifal alargado funciona como una adaptación estructural para mantener una relación SA/V optimizada. Esto permite una absorción distribuida de nutrientes a lo largo de la pared del filamento alargado, al tiempo que se sostienen los procesos metabólicos dirigidos al ápice hifal34,35,36,37. Sin embargo, nuestro estudio muestra que la escala morfométrica no es uniformemente proporcional en diferentes estados de ploidía y configuraciones del locus del tipo de apareamiento.
Los conjuntos de datos morfométricos generados mediante este protocolo de seguimiento revelan tendencias claras de escala estructural correlacionadas con la ploidía, ya que las líneas haploides exhiben consistentemente valores absolutos menores en todas las métricas geométricas en comparación con las cepas diploides correspondientes (Figura 5). Dentro del fondo diploide, la configuración homocigótica MATα/α mostró una cinética de filamentación mejorada (longitud y volumen) en comparación con las cepas MATa/a o MATa/α bajo estas condiciones in vitro. Dado que una mayor filamentación se asocia frecuentemente con una capacidad de penetración incrementada, no está claro por qué los aislados clínicos de C. albicans se obtienen predominantemente como diploides heterocigotos (MATa/α). Es posible que, dentro de un huésped inmunocompetente, el estado heterocigoto proporcione una ventaja de aptitud más amplia para la colonización comensal a largo plazo. En otras palabras, las características estructurales del morfotipo MATa/α están optimizadas para la supervivencia frente a la vigilancia inmunitaria del huésped. Por lo tanto, futuras investigaciones deberían aprovechar estos sistemas estandarizados de cultivo conjunto para evaluar sistemáticamente la aptitud comparativa de diferentes homocigotos de tipo de apareamiento bajo distintas presiones selectivas.
Estudios previos han documentado que la morfología vacuolar, la dinámica de fisión y fusión, y la expansión estructural desempeñan funciones importantes en la regulación del volumen interno y de la presión de turgencia en los filamentos fúngicos en alargamiento. Por ejemplo, en el patógeno del tizón del arroz Magnaporthe oryzae, las transiciones distintas entre hifas vegetativas delgadas y estructuras invasivas bulbosas están estrechamente coordinadas con cambios en la organización vacuolar38,39,40. Sin embargo, el presente protocolo no monitoreó directamente la dinámica vacuolar durante la filamentación de C. albicans; rastrear estos cambios en los orgánulos internos en relación con el volumen estructural total representa una vía informativa para investigaciones futuras. Además, se requiere más investigación para determinar por qué ciertos componentes específicos del secretoma de origen fúngico inducen cinéticas diferentes de escalamiento morfológico en comparación con los inductores químicos de origen hospedador, como el suero.
Los métodos de co-cultivo sin contacto detallados en este protocolo pueden adaptarse para investigar interacciones entre especies y entre reinos, como la dinámica de señalización entre poblaciones bacterianas oportunistas y hongos dimórficos. Además, debido a que estos formatos de 96 y 24 pocillos son escalables, esta plataforma cuantitativa puede utilizarse para cribados químicos. Ejemplos de ello incluyen la identificación de inhibidores de moléculas pequeñas o compuestos antifúngicos novedosos que interrumpan selectivamente las vías de filamentación estimuladas por el secretoma, sin afectar directamente la viabilidad celular basal.
Divulgaciones
Los autores declaran que no tienen intereses competidores ni conflictivos.
Agradecimientos
Este trabajo fue apoyado por la Beca Intermedia DBT-Wellcome Trust India Alliance (IA/I/19/1/504294) otorgada a RNP. KBSS recibió apoyo del Subsidio Especial de Investigación de la Universidad de Ahmedabad (AU/SRG/SAS/20-21/07_KS_03.25) y del Subsidio de Investigación Fundamental del SERB (URBSASE23A6/SERB/23-24/KS_02.27). Los iconos utilizados en la Figura 1 se adaptaron de Servier Medical Art (https://smart.servier.com/), bajo licencia CC BY 4.0 (https://creativecommons.org/licenses/by/4.0/), y de BioArt Source, NIAID, NIH.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Filtro de jeringa de PES de 0,22 μm | Millipore (Merck) | SLGPR33RS | |
| Agar-agar | HiMedia | GRM666 | |
| Glucosa | HiMedia | GRM016 | |
| Placa portadora Nunc de 24 pocillos con insertos para cultivo celular (0,4 μm) | Thermo Scientific | 141002 | |
| Nunc BioLite Multicaja de 96 pocillos, tratada para cultivo celular, fondo plano | Thermo Scientific | 130188 | |
| Proteosa peptona | HiMedia | RM005 | |
| Uridina | Sigma | U6381 | |
| Extracto de levadura | HiMedia | RM027 | |
| Base de nitrógeno para levadura, con sulfato de amonio, sin aminoácidos | HiMedia | M878 |
Referencias
- Peleg AY, Hogan DA, Mylonakis E. Medically important bacterial-fungal interactions. Nat Rev Microbiol. 2010;8(5):340-349.
- Waters CM, Bassler BL. Quorum sensing: cell-to-cell communication in bacteria. Annu Rev Cell Dev Biol. 2005;21:319-346.
- Foster KR, Bell T. Competition, not cooperation, dominates interactions among culturable microbial species. Curr Biol. 2012;22(19):1845-1850.
- Carolus H, Van Dyck K, Van Dijck P. Candida albicans and Staphylococcus species: a threatening twosome. Front Microbiol. 2019;10:2162.
- Pasman R, et al. Candida albicans and Staphylococcus aureus reciprocally promote their virulence factor secretion and pro-inflammatory effects. Front Cell Infect Microbiol. 2025;15:1629373.
- Grandclément C, Tannières M, Moréra S, Dessaux Y, Faure D. Quorum quenching: role in nature and applied developments. FEMS Microbiol Rev. 2016;40(1):86-116.
- Goers L, Freemont P, Polizzi KM. Co-culture systems and technologies: taking synthetic biology to the next level. J R Soc Interface. 2014;11(96):20140065.
- Burmeister A, Grünberger A. Microfluidic cultivation and analysis tools for interaction studies of microbial co-cultures. Curr Opin Biotechnol. 2020;62:106-115.
- Kapoore RV, Padmaperuma G, Maneein S, Vaidyanathan S. Co-culturing microbial consortia: approaches for applications in biomanufacturing and bioprocessing. Crit Rev Biotechnol. 2022;42(1):46-72.
- Kalluri R. The biology and function of fibroblasts in cancer. Nat Rev Cancer. 2016;16(9):582-598.
- Deveau A, et al. Bacterial-fungal interactions: ecology, mechanisms and challenges. FEMS Microbiol Rev. 2018;42(3):335-352.
- Temkin MI, Carlson CM, Stubbendieck AL, Currie CR, Stubbendieck RM. High throughput co-culture assays for the investigation of microbial interactions. J Vis Exp. 2019;(152). doi:10.3791/60275.
- Cecchelli R, et al. A stable and reproducible human blood-brain barrier model derived from hematopoietic stem cells. PLoS One. 2014;9(6):e99733.
- Wodzanowski KA, Cassel SE, Grimes CL, Kloxin AM. Tools for probing host-bacteria interactions in the gut microenvironment: from molecular to cellular levels. Bioorg Med Chem Lett. 2020;30(10):127116.
- Luo Y, McAuley DF, Fulton CR, Pessoa JS, McMullan R, Lundy FT. Targeting Candida albicans in dual-species biofilms with antifungal treatment reduces Staphylococcus aureus and MRSA in vitro. PLoS One. 2021;16(4):e0249547.
- Justus CR, Marie MA, Sanderlin EJ, Yang LV. Transwell in vitro cell migration and invasion assays. Methods Mol Biol. 2023;2644:349-359.
- McCarty NS, Ledesma-Amaro R. Synthetic biology tools to engineer microbial communities for biotechnology. Trends Biotechnol. 2019;37(2):181-197.
- Virgo M, Mostowy S, Ho BT. Emerging models to study competitive interactions within bacterial communities. Trends Microbiol. 2025;33(6):688-700.
- Moutinho TJ, Panagides JC, Biggs MB, Medlock GL, Kolling GL, Papin JA. Novel co-culture plate enables growth dynamic-based assessment of contact-independent microbial interactions. PLoS One. 2017;12(8):e0182163.
- Gnecchi M, Zhang Z, Ni A, Dzau VJ. Paracrine mechanisms in adult stem cell signaling and therapy. Circ Res. 2008;103(11):1204-1219.
- Hogan DA, Vik Å, Kolter R. A Pseudomonas aeruginosa quorum-sensing molecule influences Candida albicans morphology. Mol Microbiol. 2004;54(5):1212-1223.
- Poon Y, Hui M. Inhibitory effect of lactobacilli supernatants on biofilm and filamentation of Candida albicans, Candida tropicalis, and Candida parapsilosis. Front Microbiol. 2023;14. doi:10.3389/fmicb.2023.1105949.
- Huh D, Matthews BD, Mammoto A, Montoya-Zavala M, Hsin HY, Ingber DE. Reconstituting organ-level lung functions on a chip. Science. 2010;328(5986):1662-1668.
- Huh D, et al. Microfabrication of human organs-on-chips. Nat Protoc. 2013;8(11):2135-2157.
- Bhatia SN, Ingber DE. Microfluidic organs-on-chips. Nat Biotechnol. 2014;32(8):760-772.
- Itani A, Shida Y, Ogasawara W. A microfluidic device for simultaneous detection of enzyme secretion and elongation of a single hypha. Front Microbiol. 2023;14:1125760.
- Beneyton T, Thomas S, Griffiths AD, Nicaud JM, Drevelle A, Rossignol T. Droplet-based microfluidic high-throughput screening of heterologous enzymes secreted by the yeast Yarrowia lipolytica. Microb Cell Fact. 2017;16:18.
- Xu XL, et al. Bacterial peptidoglycan triggers Candida albicans hyphal growth by directly activating the adenylyl cyclase Cyr1p. Cell Host Microbe. 2008;4(1):28-39.
- Yeast extract-peptone-dextrose (YPD) medium (liquid or solid). Cold Spring Harb Protoc. 2017;2017(8):pdb.rec090563.
- Parnandi VA, Trivedi PM, Panchal H, Suryawanshi G, Patkar RN. A small Candida glabrata protein promotes hyphal growth in C. albicans during mixed-species invasive candidiasis. Curr Biol. 2026;36(1):1-15.e9.
- Davis-Hanna A, Piispanen AE, Stateva LI, Hogan DA. Farnesol and dodecanol effects on the Candida albicans Ras1-cAMP signalling pathway and the regulation of morphogenesis. Mol Microbiol. 2008;67(1):47-62.
- Polke M, et al. A functional link between hyphal maintenance and quorum sensing in Candida albicans. Mol Microbiol. 2017;103(4):595-617.
- Su C, Yu J, Sun Q, Liu Q, Lu Y. Hyphal induction under the condition without inoculation in Candida albicans is triggered by Brg1-mediated removal of NRG1 inhibition. Mol Microbiol. 2018;108(4):410-423.
- Senesi N, Wilkinson KJ. Biophysical Chemistry of Fractal Structures and Processes in Environmental Systems. Chichester: John Wiley & Sons; 2008: ISBN: 978-0-470-01474-5.
- Bayry J, Aimanianda V, Guijarro JI, Sunde M, Latgé JP. Hydrophobins—unique fungal proteins. PLoS Pathog. 2012;8(5):e1002700.
- Ojkic N, Serbanescu D, Banerjee S. Surface-to-volume scaling and aspect ratio preservation in rod-shaped bacteria. eLife. 2019;8:e47033.
- Li X, de Souza RA, Heinemann M. The rate of glucose metabolism sets the cell morphology across yeast strains and species. Curr Biol. 2025;35(4):788-798.e4.
- Mochizuki S, Minami E, Nishizawa Y. Live-cell imaging of rice cytological changes reveals the importance of host vacuole maintenance for biotrophic invasion by blast fungus, Magnaporthe oryzae. MicrobiologyOpen. 2015;4(6):952-966.
- Fernandez J, Orth K. Rise of a cereal killer: the biology of Magnaporthe oryzae biotrophic growth. Trends Microbiol. 2018;26(7):582-597.
- Wengler MR, Talbot NJ. Mechanisms of regulated cell death during plant infection by the rice blast fungus Magnaporthe oryzae. Cell Death Differ. 2025;32(5):793-801.
Reimpresiones y permisos
