Esta revisión sintetiza evidencia sobre el control de calidad mitocondrial (biogénesis, dinámica y mitofagia) en las etapas de la espermatogénesis, relacionando los cambios metabólicos y la remodelación estructural con la infertilidad masculina e identificando lagunas metodológicas para orientar investigaciones futuras.
Artículo de revisión
Control de calidad mitocondrial: un regulador de la espermatogénesis
En este artículo
Resumen
Resumen
La infertilidad masculina está aumentando a nivel mundial. La espermatogénesis requiere una elevada energía y está estrechamente vinculada al control de calidad mitocondrial (MQC), que incluye la biogénesis, la dinámica de fusión-división y la mitofagia. Aquí sintetizamos las evidencias actuales en las distintas etapas del desarrollo de las células germinales, destacando los cambios específicos por etapa, desde la producción de ATP apoyada por glucólisis hasta un metabolismo dominado por la fosforilación oxidativa (OXPHOS) y la remodelación de la arquitectura mitocondrial en la vaina de la pieza intermedia. Resumimos datos genéticos y funcionales que implican a OPA1/MFN1-2 en la fusión de las membranas interna y externa, a DRP1/FIS1/MFF en la fisión y la organización de la vaina, así como los roles de la mitofagia dependiente e independiente de PINK1-Parkin en el control de calidad mitocondrial, aunque reconocemos que la eliminación del citoplasma y el mantenimiento del acrosoma durante la espermiogénesis podrían implicar autofagia general y no específicamente mitofagia. La disfunción mitocondrial—exceso de especies reactivas de oxígeno (ROS), colapso del potencial de membrana mitocondrial (MMP), dinámica desregulada o mitofagia defectuosa—perjudica la espermatogénesis y la función espermática. Asimismo, identificamos lagunas metodológicas que limitan la traslación, particularmente la falta de fenotipificación estandarizada y evidencia genética humana. Aclarar la causalidad y la capacidad de intervención farmacológica del MQC podría apoyar futuras investigaciones diagnósticas o terapéuticas en la infertilidad masculina.
Introducción
La calidad del esperma está disminuyendo a nivel mundial, y la incidencia de infertilidad masculina causada por una calidad espermática anormal está aumentando1. Un metaanálisis reciente mostró que entre 1973 y 2011, los conteos de espermatozoides en hombres de América del Norte, Europa, Australia y Nueva Zelanda disminuyeron entre un 50 y un 60 %2, y esta disminución se ha acelerado desde el año 20003. La disminución acelerada de la calidad del esperma se ha reportado en todo el mundo2,3,4,5,6. Las razones de esta disminución requieren estudios adicionales y medidas específicas para proteger la fertilidad masculina.
La espermatogénesis ocurre en los túbulos seminíferos del testículo. Es un proceso ondulatorio que implica combinaciones específicas de células espermatogénicas a lo largo del eje longitudinal de los túbulos seminíferos, conduciendo finalmente a que las células madre espermatogoniales (CME) se proliferen y diferencien en espermatozoides7. La espermatogénesis en los mamíferos es uno de los procesos de diferenciación más complejos y prolongados en la biología. En los seres humanos, un ciclo completo de espermatogénesis abarca entre 64 y 74 días, con cada ciclo del epitelio seminífero durando 16 días. Este proceso intrincado implica cambios significativos en la forma, el número y la distribución de las mitocondrias8.
El control de calidad mitocondrial (MQC), los procesos coordinados de biogénesis mitocondrial, fusión, fisión y mitofagia selectiva, mantiene la integridad del orgánulo bajo demandas bioenergéticas variables8,9. En los testículos, el MQC es específico de la etapa y apoya la transición desde espermatogonias proliferativas hasta la meiosis y la espermiogénesis, culminando en el ensamblaje de una vaina mitocondrial estrechamente empaquetada en la pieza media del espermatozoide9. Figura 1 presenta el mecanismo del MQC durante la espermatogénesis. La alteración de los componentes del MQC puede provocar una espermatogénesis defectuosa y subfertilidad en organismos modelo y humanos. Esta revisión integra conocimientos mecanicistas actuales y describe oportunidades de traslación.
Revisión y perspectiva
Espermatogénesis y metabolismo energético mitocondrial
La espermatogénesis comprende tres etapas secuenciales: proliferación mitótica, meiosis y espermiogénesis, que implican la proliferación de espermatogonias, su diferenciación en espermatocitos, la división meiótica, la maduración de espermátidas y la espermación hacia la luz de los túbulos seminíferos. Las espermatogonias se clasifican en tipos de reserva y renovadores. Algunas espermatogonias se mantienen como células madre, mientras que otras participan en la espermatogénesis mediante diferenciación. Además, algunas experimentan muerte celular programada, como la apoptosis. Los espermatocitos primarios diploides realizan dos rondas de división meiótica para diferenciarse en espermátidas haploides. Durante la espermiogénesis, las espermátidas redondas dejan de dividirse y se transforman en espermátidas altamente alargadas, que finalmente se desarrollan en espermatozoides maduros.
La espermatogénesis requiere interacciones coordinadas entre las células germinales (incluyendo espermatogonias, espermatocitos, espermátidas y espermatozoides) y las células de Sertoli de sostén, así como el mantenimiento de la integridad de la barrera hematotesticular10,11. La barrera hematotesticular, formada por uniones estrechas entre células de Sertoli adyacentes, divide el epitelio seminífero en compartimentos basal y adluminal, creando y manteniendo así un microambiente especializado esencial para el desarrollo de las células germinales11,12. Por consiguiente, la espermatogénesis—desde las células madre espermatogoniales hasta los espermatozoides maduros—ocurre dentro de este microambiente testicular único. El proceso de producción de espermatozoides depende en gran medida de la función mitocondrial13. Como centro del metabolismo energético en las células eucariotas, se considera que las mitocondrias son esenciales para la producción de espermatozoides. La generación de espermatozoides depende altamente del suministro de energía y de las funciones de señalización de las mitocondrias. En las células germinales en desarrollo, las mitocondrias no solo proporcionan ATP esencial para la espermatogénesis, sino que también influyen en el proceso al participar en la señalización intracelular, la regulación del ciclo celular y la muerte celular programada13. En las células de Leydig, las mitocondrias desempeñan un papel crucial en la producción de hormonas esteroides, y la síntesis mitocondrial de ATP es necesaria para la producción de testosterona en estas células intersticiales del testículo14. Además, al ser el único orgánulo con ADN independiente, el ADN mitocondrial está estrechamente relacionado con la calidad del espermatozoide. Por lo tanto, comprender el estado mitocondrial y sus mecanismos reguladores es importante para revelar el proceso de la espermatogénesis y mantener la fertilidad masculina.
El metabolismo energético es crucial para la espermatogénesis, proceso que requiere una cantidad significativa de ATP. Las dos vías principales para la producción de ATP son la fosforilación oxidativa mitocondrial (OXPHOS) y la glucólisis. El suministro de ATP depende de la etapa; mientras que la OXPHOS adquiere mayor importancia durante la meiosis y la formación del pieza media, la glucólisis contribuye sustancialmente a la producción de ATP, particularmente en espermatozoides maduros. La glucólisis también favorece la maduración, la motilidad y el paso a través del tracto reproductivo femenino al proporcionar un suministro energético flexible y rápido.
Sin embargo, en espermatogonias y espermatocitos tempranos, las mitocondrias son relativamente pequeñas y presentan una actividad limitada de la fosforilación oxidativa (OXPHOS). A medida que la espermatogénesis avanza hacia etapas posteriores, como espermatocitos, espermátidas y espermatozoides, las mitocondrias experimentan un remodelado y su actividad de OXPHOS se vuelve más concentrada espacialmente y más eficiente. Además, debido a la barrera hematotesticular, los sustratos disponibles varían según las etapas. Las espermatogonias, ubicadas en el compartimento basal del epitelio seminífero, pueden acceder a la glucosa circulante y producir energía mediante la glucólisis. En contraste, los espermatocitos y las espermátidas en el compartimento adluminal están separados de la sangre y del intersticio por la barrera hematotesticular y dependen de las células de Sertoli para absorber glucosa mediante transportadores de glucosa (GLUT), convirtiéndola en piruvato a través de la glucólisis. El piruvato luego se convierte en lactato por la lactato deshidrogenasa (LDH). El lactato es transportado a los espermatocitos mediante transportadores de monocarboxilatos (MCT), donde es convertido nuevamente en piruvato por la LDH, el cual puede transformarse entonces en acetil-CoA mediante la piruvato deshidrogenasa (PDH) para ingresar al ciclo del ácido tricarboxílico (TCA). Finalmente, el piruvato es transportado a las mitocondrias mediante el transportador mitocondrial de piruvato para promover la OXPHOS.
Alteración de la espermatogénesis por disfunción mitocondrial
Durante la espermiación, los espermatozoides maduros son liberados desde las células de Sertoli hacia la luz de los túbulos seminíferos, seguido por el transporte hacia el epidídimo. Este proceso requiere un suministro energético considerable proveniente de las mitocondrias. Cuando la función mitocondrial está comprometida, la espermatogénesis se ve dificultada. Los signos clave de disfunción mitocondrial incluyen la producción excesiva de especies reactivas de oxígeno (ROS), cambios en el potencial de la membrana mitocondrial (MMP), desequilibrios en la dinámica de fisión y fusión mitocondrial, biogénesis mitocondrial deficiente, mitofagia defectuosa y alteración de la homeostasis del ion calcio.
El proceso mediante el cual las mitocondrias producen ATP a través de la OXPHOS también va acompañado de la producción de ERO. Las mitocondrias son la principal fuente de ERO, que se generan principalmente en los complejos respiratorios I y III de la cadena de transporte de electrones mitocondrial (ETC)15. Bajo condiciones fisiológicas normales, niveles adecuados de ERO participan en vías de señalización que regulan la espermatogénesis. Sin embargo, un exceso de ERO puede provocar un desequilibrio redox, causando estrés oxidativo e interfiriendo con la espermatogénesis. Por lo tanto, el equilibrio entre el metabolismo energético mitocondrial y la producción de ERO es un factor clave para garantizar la espermatogénesis.
La OXPHOS mitocondrial eficiente requiere la entrada de sustratos respiratorios de carbono (por ejemplo, piruvato, ácidos grasos) a través de la membrana mitocondrial externa hacia el espacio intermembranal. Luego, estos sustratos son transportados a la matriz mediante transportadores ubicados en la membrana mitocondrial interna, donde participan en el ciclo del ácido tricarboxílico (TCA). En el ciclo TCA, estos sustratos de carbono experimentan una degradación oxidativa, produciendo dinucleótido de nicotinamida y adenina (NADH) y dinucleótido de flavina y adenina (FADH2). Estos productos donan electrones a la cadena de transporte de electrones (ETC) y impulsan la OXPHOS para la síntesis de ATP a partir de ADP y fosfato inorgánico (Pi). Las interrupciones en el ciclo TCA o en las vías de la ETC pueden afectar la producción de espermatozoides16. El potencial de membrana mitocondrial (MMP), como indicador del estado energético celular y de la función mitocondrial, se ha asociado con la motilidad espermática17 y la capacidad fertilizante general18.
Bajo estrés mitocondrial, la fisión puede segregar segmentos mitocondriales dañados, mientras que la fusión puede promover la mezcla de contenidos y la complementación funcional. Las mitocondrias dañadas o en exceso pueden entonces degradarse y reciclarse mediante la mitofagia. Juntos, la biogénesis mitocondrial, la fisión, la fusión y la mitofagia constituyen el control de calidad mitocondrial (MQC), que apoya la función y remodelación mitocondrial19.
La espermatogénesis implica la diferenciación de los espermatogonios en espermatozoides, lo que no solo provoca cambios significativos en la morfología celular, sino que también requiere el apoyo y la regulación del metabolismo energético. Dado que las mitocondrias son las centrales energéticas de la célula, desempeñan un papel fundamental en aspectos clave de la espermatogénesis, como el suministro de energía, la transducción de señales y la muerte celular programada. Durante la espermatogénesis, las demandas metabólicas de las células germinales varían en las distintas etapas del desarrollo. El número y la morfología mitocondriales experimentan cambios significativos durante este proceso. En la formación del espermatozoide, muchas mitocondrias son eliminadas, mientras que las mitocondrias retenidas se organizan en la pieza intermedia del espermatozoide para formar una vaina mitocondrial alrededor del axonema y las estructuras asociadas del flagelo. Por lo tanto, durante la espermatogénesis, las mitocondrias en diversas células testiculares experimentan continuamente procesos de fusión y fisión, lo que requiere un mecanismo eficiente y preciso de control de calidad mitocondrial (MQC) para garantizar su funcionamiento normal y satisfacer las elevadas demandas energéticas del proceso. A medida que se producen los espermatozoides, tanto la morfología como el número de mitocondrias sufren cambios importantes, y el control de calidad mitocondrial desempeña un papel crítico en este proceso. Las proteínas diana clave implicadas en el control de calidad mitocondrial se enumeran en la Tabla 1.
Espermiogénesis y dinámica mitocondrial
Las mitocondrias son orgánulos altamente dinámicos cuya morfología, tamaño y distribución subcelular se remodelan continuamente mediante la fusión y fisión coordinadas, un proceso denominado colectivamente dinámica mitocondrial. Bajo condiciones fisiológicas normales, la fusión y la fisión existen en un equilibrio dinámico que mantiene la homeostasis mitocondrial, facilita la complementación funcional y asegura la herencia mitocondrial adecuada durante la división celular. La alteración de este equilibrio, ya sea por ablación genética, defectos en modificaciones postraduccionales o estrés patológico, deteriora la función mitocondrial, compromete la producción de energía y, en última instancia, obstaculiza la espermatogénesis. La regulación precisa de la dinámica mitocondrial es particularmente crítica en las células germinales, ya que la espermatogénesis implica cambios metabólicos drásticos y una remodelación morfológica extensa que exigen adaptaciones específicas de la arquitectura y actividad mitocondriales según la etapa.
La fusión mitocondrial está mediada por MFN1 y MFN2 en la membrana mitocondrial externa y por OPA1 en la membrana interna, lo que facilita la mezcla de contenidos, la complementación funcional y el mantenimiento de la integridad del ADN mitocondrial. La fusión no es simplemente una respuesta defensiva, sino un mecanismo dependiente del contexto que favorece la herencia mitocondrial y la adaptación metabólica durante la diferenciación de las células germinales. Durante la diferenciación de los espermatogonios, la expresión de MFN aumenta, y la pérdida de MFN1 o MFN2 conduce a la oxidación del ADN y a la apoptosis en espermatogonios y espermatocitos, lo que resulta en infertilidad masculina20,21. Las mutaciones en MFN1 causan atrofia testicular en ratones, con una reducción notable de espermatocitos y una producción deficiente de espermatozoides, mientras que los espermatogonios indiferenciados permanecen sin afectar, lo que sugiere que MFN1 es necesario para la progresión meiótica20. MFN2, en cambio, regula tanto las funciones mitocondriales como las del retículo endoplasmático, desempeñando un papel distinto en la espermatogénesis21.
La fisión mitocondrial está regulada por DRP1, que es reclutado a la membrana mitocondrial externa mediante proteínas adaptadoras como FIS1, MFF, MID49 y MID51. Tras su reclutamiento, DRP1 se ensambla en oligómeros con forma de anillo que constriñen y dividen las mitocondrias de manera dependiente de GTP. El proceso comprende tres pasos principales: activación de DRP1 mediante fosforilación, reclutamiento a la membrana externa mediante interacciones con FIS1, MFF, MID49 y MID51, y ensamblaje en una estructura anular que rodea y constriñe las mitocondrias, consumiendo GTP y generando dos orgánulos separados. La fisión no es simplemente un mecanismo para eliminar mitocondrias despolariadas o satisfacer demandas energéticas aumentadas; más bien, es un proceso coordinado que regula la distribución mitocondrial, la segregación de componentes dañados, la herencia durante la división celular y la remodelación de la arquitectura mitocondrial. Los ratones deficientes en DRP1 son letales en etapa embrionaria22,23; los ratones deficientes en MFF presentan fertilidad reducida y recuento espermático disminuido, lo que proporciona un modelo valioso para estudiar la fisión mitocondrial en el desarrollo de las células germinales masculinas24. La fisión mitocondrial es esencial para la formación adecuada de la vaina mitocondrial durante la espermiogénesis.
La espermatogénesis requiere una gran demanda energética, dependiendo principalmente de la glucólisis en los espermatogonios y de la OXPHOS en los espermatocitos y espermátidas. La OXPHOS es particularmente crítica durante la meiosis, y su eficiencia depende de la dinámica mitocondrial intacta25,26. Tras la meiosis, MFF y otras proteínas de fisión regulan la fisión mitocondrial y participan en la formación de la vaina mitocondrial del espermatozoide24. Durante la espermiogénesis, algunas mitocondrias se conservan selectivamente y se remodelan para formar la vaina, mientras que las mitocondrias en exceso y los componentes citoplasmáticos se eliminan mediante autofagia27. Proteínas como OPA1, DRP1 y MFF podrían representar objetivos de investigación prometedores para mejorar la función espermática, aunque su relevancia terapéutica requiere una validación adicional. Una mayor investigación sobre el control de calidad mitocondrial (MQC) en la espermatogénesis humana podría facilitar futuras investigaciones diagnósticas o terapéuticas en la infertilidad masculina.
Espermatogénesis y autofagia mitocondrial
La mitofagia desempeña un papel fundamental en la espermatogénesis28. La mitofagia implica principalmente la englobación de mitocondrias dañadas por autofagosomas. Los autofagosomas que contienen mitocondrias dañadas se fusionan luego con lisosomas, y las mitocondrias se degradan mediante la acción lisosómica, eliminando así las mitocondrias dañadas y logrando un control de calidad. La vía clásica de la autofagia mitocondrial es la vía PINK1/Parkin, y también se han descrito vías independientes de PINK1/Parkin29.
La autofagia ayuda a mantener la integridad del acrosoma, la polarización de los espermátidos y la degradación de los componentes citoplasmáticos durante la espermatogénesis, aunque estos procesos reflejan una autofagia general más que una mitofagia selectiva, a menos que se demuestre específicamente la eliminación mitocondrial. Se ha encontrado que la mitofagia está estrechamente relacionada con la dinámica mitocondrial, y la fisión mitocondrial podría facilitar la mitofagia para eliminar mitocondrias en exceso o dañadas30. FIS1, aunque es una proteína de fisión mitocondrial, también participa en la mitofagia durante la espermatogénesis31. RAB7A interviene en la formación del mitofagosoma y en la maduración del autofagosoma32. FIS1 interactúa con la proteína activadora de GTPasa mitocondrial TBC1D1533,34. TBC1D15 regula la actividad de RAB7A, que participa en la fusión de vesículas y lisosomas y en la maduración de los autofagosomas34,35. Cuando FIS1 se inactiva, RAB7A puede permanecer activa en la superficie mitocondrial, lo que lleva a un crecimiento y tubulación desregulados de la membrana del autofagosoma; la agregación de LC3 puede observarse mediante microscopía óptica35. La mitofagia también puede ocurrir independientemente de la fisión mitocondrial mediada por DRP1, por lo que la fisión no debe considerarse obligatoria para la eliminación mitocondrial35.
Durante la espermiogénesis, los espermátidas se despojan de componentes celulares en exceso, y estudios han encontrado que los autofagosomas son más abundantes en los espermátidas36. El gen esencial de autofagia Atg7 se ha relacionado con la polarización de los espermátidas y la eliminación del citoplasma durante la espermatogénesis; sin embargo, los tipos de células germinales tempranas parecen verse menos afectados en este contexto27,36. Además, la mitofagia se intensifica en modelos testiculares dañados, incluyendo células de Leydig29, células madre/progenitoras espermatogoniales37,38, células de Sertoli39 y testículos inmaduros de rata expuestos a tóxicos40. En la espermatogénesis, la autofagia mitocondrial está asociada con la apoptosis y otros tipos de muerte celular programada, afectando así la producción de espermatozoides en el testículo41,42.
Contexto bibliométrico
Se realizó un análisis bibliométrico enfocado de la Colección Principal de Web of Science desde 1970 hasta 2023 utilizando los términos de búsqueda «spermatogenesis» y «MQC»; se excluyeron estudios no mamíferos y registros irrelevantes, y se utilizó VOSviewer 1.6.20 para la visualización43. Tras el cribado, se conservaron 1.019 artículos de 1.217 instituciones en 66 países y 5.705 autores. Las publicaciones aumentaron de forma constante (Figura 2A). Estados Unidos y China contribuyeron con el mayor número de artículos (212 y 196, respectivamente), y Estados Unidos tuvo el mayor número de citas (12.295; Figura 2B). Las redes institucionales y de autores se resumen en las Figuras 2C y 2D.
El análisis de co-ocurrencia de palabras clave (frecuencia > 7) indicó un énfasis en la motilidad espermática, el estrés oxidativo, la apoptosis/muerte celular programada, el daño al ADN, la peroxidación de lípidos y la calidad espermática (Figura 3). Estos patrones bibliométricos respaldan, pero no sustituyen, la revisión mecanicista: el campo está concentrado en torno a los resultados del daño oxidativo y la motilidad, mientras que la evidencia humana directa que vincula las vías de control de calidad mitocondrial específicas de cada etapa con la infertilidad sigue siendo limitada.
Conclusiones
Con el avance de la biotecnología, la investigación sobre la fertilidad masculina ha pasado de la morfología descriptiva y la motilidad hacia los mecanismos moleculares y celulares de la espermatogénesis. Las mitocondrias son centrales en este proceso: generan ATP, apoyan la remodelación durante la meiosis y la espermiogénesis, y son altamente sensibles a los daños oxidativos y ambientales44. Para mantener su funcionalidad bajo tales condiciones de estrés, las mitocondrias dependen del control de calidad mitocondrial (MQC), que integra la biogénesis, la dinámica de fusión y fisión, y la mitofagia. La alteración de estas vías afecta el desarrollo de las células germinales, la arquitectura de la pieza intermedia del espermatozoide y, en última instancia, la fertilidad. En conclusión, las evidencias disponibles respaldan un modelo específico por etapas, en el que la dinámica mitocondrial y la mitofagia ayudan a coordinar la producción de energía, la remodelación de orgánulos y la eliminación de componentes dañados durante la espermatogénesis. Sin embargo, las evidencias directas en humanos y la fenotipificación estandarizada siguen siendo limitadas; por tanto, las proteínas relacionadas con el MQC deben considerarse como objetivos de investigación candidatos que requieren mayor validación, más que como dianas terapéuticas establecidas.
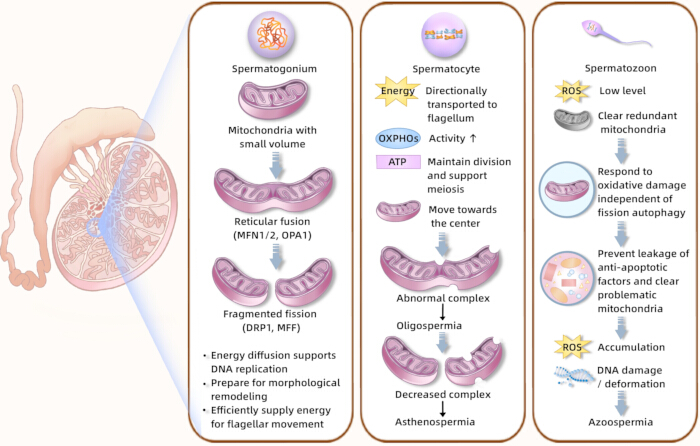
Figura 1. El mecanismo de control de calidad mitocondrial durante la espermatogénesis. Metabolismo energético y remodelación mitocondrial resueltos por etapas en la espermatogénesis. El esquema muestra el acoplamiento metabólico entre células de Sertoli y células germinales, los transportadores de glucosa, los transportadores de monocarboxilatos, la producción de ATP, la transición del metabolismo sostenido por glucólisis a la fosforilación oxidativa durante la meiosis y la espermiogénesis, y el daño mitocondrial relacionado con las especies reactivas de oxígeno. Abreviaturas: ATP = adenosina trifosfato; OXPHOS = fosforilación oxidativa; ROS = especies reactivas de oxígeno. Haga clic aquí para ver una versión más grande de esta figura.
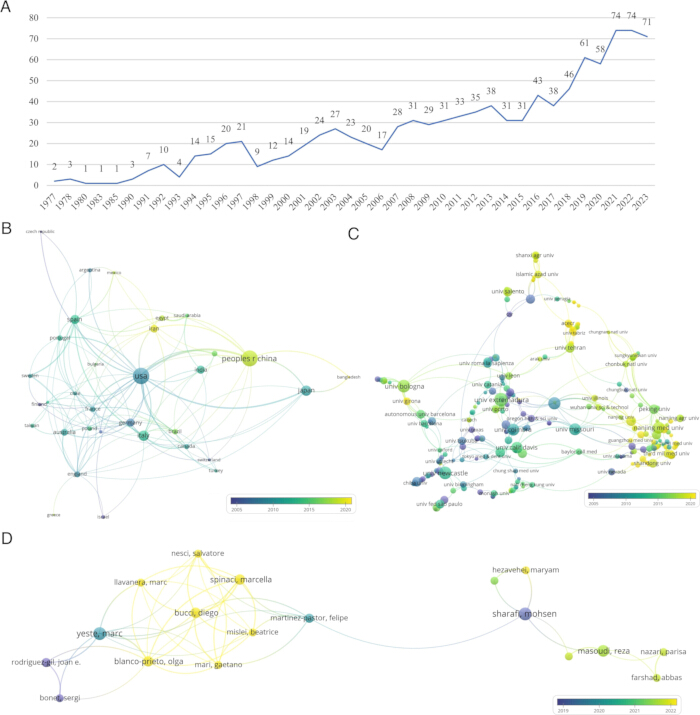
Figura 2. Análisis nacional, institucional, de publicaciones por autor y colaborativo. (A) Número anual de publicaciones en el campo de la espermatogénesis y el MQC. (B) Mapa de distribución temporal de publicaciones colaborativas internacionales en el campo de la espermatogénesis y el MQC. (C) Mapa de distribución temporal de colaboraciones institucionales en el campo de la espermatogénesis y el MQC. (D) Mapa de distribución temporal de publicaciones por autor en el campo de la espermatogénesis y el MQC. Los nodos indican el número de publicaciones; el color de los nodos indica el momento de publicación, desde más temprano hasta más reciente; y las líneas representan relaciones colaborativas, siendo más gruesas las líneas que indican una colaboración más estrecha. Abreviatura: MQC = control de calidad mitocondrial. Haga clic aquí para ver una versión más grande de esta figura.
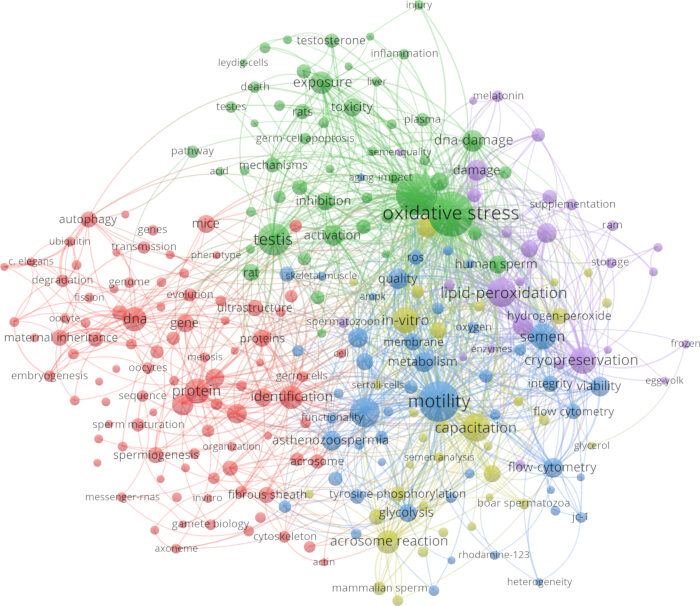
Figura 3. Gráfico de coocurrencia de palabras clave de alta frecuencia. Los nodos representan palabras clave de alta frecuencia; el tamaño del nodo indica la frecuencia; el color del nodo indica agrupamiento, siendo los colores iguales indicativos de temas más estrechamente relacionados; y las líneas representan relaciones entre palabras clave, siendo más gruesas las líneas que indican relaciones más estrechas. Haga clic aquí para ver una versión más grande de esta figura.
| Proceso de control de calidad mitocondrial (MQC) | Proteína diana |
| Fusión mitocondrial | Optic atrophy 1 (OPA1) |
| Mitofusina 1 (MFN1) | |
| Mitofusina 2 (MFN2) | |
| Fisión mitocondrial | Proteína relacionada con la dinamina 1 (DRP1) |
| Proteína mitocondrial de fisión 1 (FIS1) | |
| Factor de fisión mitocondrial (MFF) | |
| Mitoautofagia | Cinasa 1 inducida por PTEN (PINK1) |
| Ubiquitina-proteína ligasa Parkin (ligasa de ubiquitina-proteína E3 Parkin) |
Tabla 1: Proteínas diana clave en el control de calidad mitocondrial. La tabla enumera proteínas representativas implicadas en la fusión mitocondrial, la fisión mitocondrial y la mitofagia durante la espermatogénesis.
Divulgaciones
Los autores no tienen conflictos de intereses que declarar.
Agradecimientos
Este trabajo fue apoyado por el Proyecto de la Fundación de Ciencias Naturales de Ningxia (2025AAC030481, 2024AAC03715), la Fundación Nacional de Ciencias Naturales de China (82560939, 82505601), el Programa Clave de Investigación y Desarrollo de Ningxia (2025FRG05005, 2025BEG2008), la Fundación de Ciencias Naturales de Beijing (7254520), la Fundación China de Ciencias para el Posdoctorado (2025T181076), el Programa de Patrocinio para Científicos Jóvenes Destacados de la Asociación China para la Ciencia y la Tecnología (YESS20240193), el Programa de Apoyo a Jóvenes Talentos de la Asociación China de Medicina Tradicional China (CACM-2024-QNRC2-B17) y el Proyecto de Construcción de una Disciplina Clave de Alto Nivel en Medicina Tradicional China de la Administración Nacional de Medicina Tradicional China (zyyzdxk-2023238).
Referencias
- Esteves SC. Evolution of the World Health Organization semen analysis manual: where are we? Nat Rev Urol. 2022;19(7):439-46.
- Levine H, et al. Temporal trends in sperm count: a systematic review and meta-regression analysis of samples collected globally in the 20th and 21st centuries. Hum Reprod Update. 2023;29(2):157-76.
- Cipriani S, et al. Trend of change of sperm count and concentration over the last two decades: a systematic review and meta-regression analysis. Andrology. 2023;11(6):997-1008.
- Lv MQ, et al. Temporal trends in semen concentration and count among 327 373 Chinese healthy men from 1981 to 2019: a systematic review. Hum Reprod. 2021;36(7):1751-75.
- Li Y, et al. Trends in sperm quality by computer-assisted sperm analysis of 49 189 men during 2015-2021 in a fertility center from China. Front Endocrinol (Lausanne). 2023;14:1194455.
- Bonde JP, te Velde ER. Male factor infertility: declining sperm counts: the never-ending story. Nat Rev Urol. 2017;14(11):645-6.
- Hermo L, Pelletier RM, Cyr DG, Smith CE. Surfing the wave, cycle, life history, and genes/proteins expressed by testicular germ cells. Part 1: background to spermatogenesis, spermatogonia, and spermatocytes. Microsc Res Tech. 2010;73(4):241-78.
- Costa J, et al. Mitochondria quality control and male fertility. Biology (Basel). 2023;12(6):827.
- Varuzhanyan G, Chan DC. Mitochondrial dynamics during spermatogenesis. J Cell Sci. 2020;133(14):jcs235937.
- Wu S, Yan M, Ge R, Cheng CY. Crosstalk between Sertoli and germ cells in male fertility. Trends Mol Med. 2020;26(2):215-31.
- Mruk DD, Cheng CY. The mammalian blood-testis barrier: its biology and regulation. Endocr Rev. 2015;36(5):564-91.
- Ma Y, Ma QW, Sun Y, Chen XF. The emerging role of extracellular vesicles in the testis. Hum Reprod. 2023;38(3):334-51.
- Vertika S, Singh KK, Rajender S. Mitochondria, spermatogenesis, and male infertility: an update. Mitochondrion. 2020;54:26-40.
- Midzak A, et al. Mitochondrial protein import and the genesis of steroidogenic mitochondria. Mol Cell Endocrinol. 2011;336(1-2):70-9.
- Brand MD. Mitochondrial generation of superoxide and hydrogen peroxide as the source of mitochondrial redox signaling. Free Radic Biol Med. 2016;100:14-31.
- Boguenet M, et al. Mitochondria: their role in spermatozoa and in male infertility. Hum Reprod Update. 2021;27(4):697-719.
- Barbagallo F, et al. Evaluation of sperm mitochondrial function: a key organelle for sperm motility. J Clin Med. 2020;9(2):363.
- Gallon F, Marchetti C, Jouy N, Marchetti P. The functionality of mitochondria differentiates human spermatozoa with high and low fertilizing capability. Fertil Steril. 2006;86(5):1526-30.
- Gan Z, Fu T, Kelly DP, Vega RB. Skeletal muscle mitochondrial remodeling in exercise and diseases. Cell Res. 2018;28(10):969-80.
- Zhang J, et al. GASZ and mitofusin-mediated mitochondrial functions are crucial for spermatogenesis. EMBO Rep. 2016;17(2):220-34.
- Chen W, et al. MFN2 plays a distinct role from MFN1 in regulating spermatogonial differentiation. Stem Cell Reports. 2020;14(5):803-17.
- Ishihara N, et al. Mitochondrial fission factor Drp1 is essential for embryonic development and synapse formation in mice. Nat Cell Biol. 2009;11(8):958-66.
- Wakabayashi J, et al. The dynamin-related GTPase Drp1 is required for embryonic and brain development in mice. J Cell Biol. 2009;186(6):805-16.
- Varuzhanyan G, et al. Mitochondrial fission factor (Mff) is required for organization of the mitochondrial sheath in spermatids. Biochim Biophys Acta Gen Subj. 2021;1865(5):129845.
- Miao J, et al. MFN1 and MFN2 are dispensable for sperm development and functions in mice. Int J Mol Sci. 2021;22(24):13507.
- Arslan NP, Keles ON, Gonul-Baltaci N. Effect of titanium dioxide and silver nanoparticles on mitochondrial dynamics in mouse testis tissue. Biol Trace Elem Res. 2022;200(4):1650-8.
- Shang Y, et al. Autophagy regulates spermatid differentiation via degradation of PDLIM1. Autophagy. 2016;12(9):1575-92.
- Vargas JNS, et al. The mechanisms and roles of selective autophagy in mammals. Nat Rev Mol Cell Biol. 2023;24(3):167-85.
- Yi L, et al. Cadmium-induced apoptosis of Leydig cells is mediated by excessive mitochondrial fission and inhibition of mitophagy. Cell Death Dis. 2022;13(11):928.
- Losón OC, Song Z, Chen H, Chan DC. Fis1, Mff, MiD49, and MiD51 mediate Drp1 recruitment in mitochondrial fission. Mol Biol Cell. 2013;24(5):659-67.
- Varuzhanyan G, et al. Fis1 ablation in the male germline disrupts mitochondrial morphology and mitophagy, and arrests spermatid maturation. Development. 2021;148(16):dev199686.
- Tan EHN, Tang BL. Rab7a and mitophagosome formation. Cells. 2019;8(3):224.
- Onoue K, et al. Fis1 acts as a mitochondrial recruitment factor for TBC1D15 that is involved in regulation of mitochondrial morphology. J Cell Sci. 2013;126(1):176-85.
- Yamano K, et al. Mitochondrial Rab GAPs govern autophagosome biogenesis during mitophagy. Elife. 2014;3:e01612.
- Yamashita SI, et al. Mitochondrial division occurs concurrently with autophagosome formation but independently of Drp1 during mitophagy. J Cell Biol. 2016;215(5):649-65.
- Yang P, et al. In vivo autophagy and biogenesis of autophagosomes within male haploid cells during spermiogenesis. Oncotarget. 2017;8(34):56791-801.
- Li T, et al. YTHDF2 controls hexavalent chromium-induced mitophagy through modulating Hif1α and Bnip3 decay via the m6A/mRNA pathway in spermatogonial stem cells/progenitors. Toxicol Lett. 2023;377:38-50.
- Lv Y, et al. Melatonin attenuates chromium (VI)-induced spermatogonial stem cell/progenitor mitophagy by restoration of METTL3-mediated RNA N6-methyladenosine modification. Front Cell Dev Biol. 2021;9:684398.
- Eid N, Ito Y, Otsuki Y. Enhanced mitophagy in Sertoli cells of ethanol-treated rats: morphological evidence and clinical relevance. J Mol Histol. 2012;43(1):71-80.
- Hong Y, et al. X-box binding protein 1 caused an imbalance in pyroptosis and mitophagy in immature rats with di-(2-ethylhexyl) phthalate-induced testis toxicity. Genes Dis. 2024;11(2):935-51.
- Su Y, et al. Mutual promotion of apoptosis and autophagy in prepubertal rat testes induced by joint exposure of bisphenol A and nonylphenol. Environ Pollut. 2018;243:693-702.
- Quan C, et al. Prenatal bisphenol A exposure leads to reproductive hazards on male offspring via the Akt/mTOR and mitochondrial apoptosis pathways. Environ Toxicol. 2017;32(3):1007-23.
- Chen C, Song M. Visualizing a field of research: a methodology of systematic scientometric reviews. PLoS One. 2019;14(10):e0223994.
- Yang M, et al. Melatonin promotes male reproductive performance and increases testosterone synthesis in mammalian Leydig cells. Biol Reprod. 2021;104(6):1322-36.