Describimos las canalizaciones de imagen y seguimiento confocales aplicadas a dos estrategias de reporteros: organoides mosaico para resolver el comportamiento celular individual y organoides reportadores de destino para monitorizar transiciones de tipos celulares en organoides intestinales humanos y murinos.
Artículo de método
Imagen de células vivas y seguimiento de células individuales para monitorizar la dinámica clonal y las transiciones de destino en organoides intestinales humanos y murinos
* These authors contributed equally
En este artículo
Resumen
Resumen
El epitelio intestinal experimenta una rápida autorrenovación mediante la división de células madre, la diferenciación celular y la migración. Comprender cómo las células individuales se comprometen a destinos específicos y cómo emergen las dinámicas clonales dentro de este tejido requiere métodos que capturen el comportamiento celular en tiempo real y con resolución de una sola célula. Los organoides intestinales recapitulan características clave de la autoorganización epitelial y la diversidad de tipos celulares, convirtiéndolos en un sistema poderoso para estudiar estos procesos en un entorno controlado. Aquí presentamos un protocolo para la imagen confocal a largo plazo de células vivas confocales (hasta 72 horas) y el seguimiento de células individuales en organoides intestinales humanos y murinos, basado en dos estrategias complementarias de reporteros. En primer lugar, describimos la generación de organoides mosaico combinando poblaciones celulares diferencialmente marcadas, permitiendo la resolución unicelular de reporteros localizados en membrana y citoesqueléticos que de otro modo no pueden atribuirse a células individuales en un epitelio denso. En segundo lugar, utilizamos reporteros de destino específicos por tipo celular (MUC2 para las células caliciformes y DEFA5 para las células de Paneth) para monitorizar en tiempo real las transiciones de tipo celular secretor. El protocolo abarca el cultivo de organoides, la formación de organoides en mosaico, la preparación de muestras con estrategias para minimizar la fototoxicidad, la adquisición de imágenes durante varios días y el seguimiento semi-automatizado de células individuales utilizando OrganoidTracker, que reconstruye trayectorias y linajes celulares a lo largo del tiempo. Aunque demostrado en organoides intestinales, este marco es fácilmente adaptable a otros sistemas organoides epiteliales, incluidos modelos gástricos, pancreáticos y de colon, ampliando su utilidad para estudios de biología epitelial, homeostasis y enfermedades.
Introducción
El epitelio intestinal es uno de los tejidos que se auto-regeneran más rápidamente en el cuerpo, con la mayoría de las células reemplazadas en un plazo de tres a cinco días. Este recambio continuo se mantiene gracias a células madre positivas para receptores acoplados a proteínas G 5 (Lgr5) ricas en leucina y que contienen repeticiones, que residen en la base de las criptas intestinales, las cuales dan lugar a progenitores amplificadores de tránsito que se diferencian en los tipos celulares especializados del revestimiento intestinal al migrar hacia la punta de lavellosidad 1. Las principales líneas diferenciadas incluyen enterocitos absorbentes, células caliciformes secretoras de mucosidad, células enteroendocrinas productoras de hormonas y células de Panethantimicrobianas 2. Cómo las células individuales se comprometen con destinos específicos, cómo el comportamiento colectivo de las células surge de la dinámica celular individual y cómo se logra la coordinación a nivel de tejido siguen siendo cuestiones fundamentales en la biología intestinal. Responder a estas preguntas requiere enfoques experimentales que capturen el comportamiento celular a resolución de una sola célula, en tiempo real y a lo largo de escalas temporales relevantes para la diferenciación ymigración 3.
Los organoides intestinales, estructuras tridimensionales (3D) autoorganizadas crecidas a partir de células madre individuales o fragmentos de tejido, recapitulan aspectos clave de la arquitectura epitelial, la autoorganización y la diversidad de tiposcelulares 4,5,6. Desde su desarrollo, los organoides se han convertido en una herramienta indispensable para estudiar la biología intestinal, la modelización de enfermedades y las respuestas a fármacos. Tanto organoides intestinales murinos como humanos pueden mantenerse a largo plazo en cultivo, modificarse genéticamente mediante enfoques basados en repeticiones palindrómicas cortas agrupadas regularmente interespaciadas (CRISPR), y combinarse en estructuras de mosaico mezclando células individuales disociadas de diferentes genotipos o fondos reporteros antes de volver a incrustarse en el extracto de membranabasal 7,8,9. Los organoides mosaico combinan células de fondos genéticos o fluorescentes distintos dentro de una sola estructura, de modo que las poblaciones experimentan señales nicho idénticas y contexto mecánico y pueden compararse con controles internos incorporados. Esta tratabilidad genética los hace especialmente adecuados para estudios de imagen en vivo que requieren un marcado preciso de poblaciones celularesespecíficas 6,10,11,12. Los reporteros que marcan células de forma esporádica, como marcadores de destino específicos de cada tipo celular, producen células fluorescentes aisladas que pueden ser rastreadas y analizadas individualmente mediante métodos de seguimiento de células individuales. Sin embargo, surge un desafío persistente cuando proteínas localizadas en membrana y del citoesqueleto, como las uniones celulares o la miosina cortical-II, se marcan uniformemente a lo largo del epitelio. Sus señales no pueden asignarse a células individuales porque las células vecinas comparten sus límites a la resolución de la microscopía confocal. Los organoides mosaico superan esta limitación: cuando una célula que expresa un reportero fluorescente está rodeada de vecinos no marcados, sus señales de membrana y citoesqueleto pueden atribuirse sin ambigüedad a esa célula individual, revelando cómo remodela su citoesqueleto durante la migración, división oextrusión 9,13. Ajustar la relación de etiquetado invierte esta vista, permitiendo capturar la respuesta del vecindario alrededor de una celda no etiquetada. Los reporteros nucleares H2B histonses como H2B-mCherry o H2B-iRFP sirven como herramientas para identificar el patrón de mosaico y localizar constelaciones celulares informativas para su análisis. Más allá de la resolución de una sola célula, los organoides mosaico también permiten comparaciones directas de aptitud entre genotipos: dado que ambas poblaciones comparten el mismo nicho, las diferencias en la vida útil celular o en la tasa de extrusión proporcionan una lectura controlada internamente de la aptitudcompetitiva 9,14,15.
Sin embargo, la imagen de células vivas de organoides presenta desafíos técnicos específicos. Su geometría 3D requiere microscopía confocal o de lámina para la secciónóptica 16,17,18,19. La captura de procesos lentos como la diferenciación y migración requiere duraciones de imagen de 24 horas o más, con una optimización cuidadosa de la potencia láser, el tiempo de exposición y los intervalos de imagen para limitar lafototoxicidad 16,18. La matriz de incrustación y el medio de cultivo deben mantener la salud organoide sin perder la compatibilidad con la óptica del microscopio. Además, extraer información cuantitativa de una sola célula a partir de densos conjuntos de datos 3D de lapsos de tiempo requiere herramientas computacionales dedicadas para detectar y enlazar celdas a través de cientos de puntos temporales. Más allá de la microscopía confocal y la microscopía de láminas, la microscopía multifotónica y la microscopía de imagen por vida útil de fluorescencia (FLIM) ofrecen capacidades adicionales como una fototoxicidad reducida y lecturas metabólicas sin etiqueta20,21, aunque la microscopía confocal sigue siendo la plataforma más accesible y versátil para la imagen en vivo multicolor de organoides marcados con fluorescencia.
Se han desarrollado varios enfoques para el seguimiento de células en organoides, que van desde la anotación manual hasta pipelines basados en aprendizaje profundo semiautomatizadosy totalmente automatizados 22. OrganoidTracker es una herramienta de software semiautomatizada que utiliza redes neuronales para detectar núcleos en pilas confocales 3D y enlaza detecciones entre puntos temporales para reconstruir trayectorias celulares y árboles delinaje 3,23. Ha sido validado para rastrear cientos de células durante varios días en organoides intestinales y proporciona un marco flexible para cuantificar eventos de división, migración, diferenciación y extrusión celular. Su soporte para imágenes multicanal lo hace directamente compatible tanto con organoides de mosaico que portan reporteros nucleares espectralmente distintos como con organoides que expresan marcadores de destino específicos de tipo celular.
En este protocolo, describimos un flujo de trabajo modular que integra la imagen confocal de células vivas y el seguimiento de células individuales con dos estrategias complementarias de reporteros en organoides intestinales humanos y murinos. La primera estrategia utiliza organoides murinos mosaico generados por la mezcla de dos poblaciones celulares que portan reporteros nucleares distintos de H2B (H2B-mCherry y H2B-iRFP) en proporciones definidas (Figura 1A). Una población además lleva un reportero de interés coexpresado, como la Miosin-II-mNeonGreen, cuya señal localizada en membrana puede atribuirse sin ambigüevocidad a células individuales cuando están rodeadas de vecinos que solo portan la segunda marca nuclear. Esto permite observar directamente cómo una célula remodela su citoesqueleto durante la migración, división o extrusión dentro de un tejido que de otro modo estaría intacto. La segunda estrategia utiliza reporteros de destino específicos por tipo celular en organoides intestinales humanos, Mucin 2 (MUC2) para marcar células caliciformes y Defensin Alpha 5 (DEFA5) para marcar células de Paneth, permitiendo el monitoreo en tiempo real de las transiciones de tipo celular secretor (Figura 1B). Juntos, estos dos sistemas ilustran cómo una cadena compartida de imágenes y seguimiento puede adaptarse a diversas cuestiones biológicas simplemente intercambiando la estrategia del reportero (Figura 1C,D). Las secciones que siguen proporcionan todos los pasos necesarios para implementar este flujo de trabajo, desde el cultivo de organoides hasta la generación de mosaicos, la adquisición de imágenes y el análisis cuantitativo de células individuales.
Protocolo
Todos los experimentos con animales se realizaron en cumplimiento de las directrices institucionales aprobadas por el Comité Central de Experimentación Animal (CCD) del gobierno neerlandés y el Organismo de Bienestar Animal (IvD) del Instituto KNAW/Hubrecht. Se generaron organoides intestinales humanos a partir de tejido del paciente obtenidos en el Centro Médico Universitario de Utrecht (UMCU) con el consentimiento informado. El estudio fue aprobado por el comité ético de la UMCU (Utrecht, Países Bajos) y realizado de acuerdo con la Declaración de Helsinki y la legislación neerlandesa.
1. Cultivo y mantenimiento de organoides
- Preparar el factor de crecimiento epidérmico, el medio de crecimiento Noggin y R-spondin (ENR) para organoides intestinales murinos (Tabla 1).
- Preparar el medio de expansión (Tabla 2), el medio de patrón (Tabla 3) y el medio de maduración (Tabla 4) para organoides intestinales humanos.
- Descongela un vial de extracto de membrana basal (BME) con factor de crecimiento reducido sobre hielo durante la noche antes de su uso.
- Siempre mantén la BME en hielo para evitar la gelificación prematura.
- Cultivar organoides intestinales murinos en medio ENR incrustado en BME, pasando cada 7 días con una relación dividida de 1:4 a 1:8 por disociaciónmecánica 4.
- Cultivar organoides intestinales humanos en medio de expansión incrustado en BME, pasando cada 7–10 días5.
NOTA: Para la expansión o recuperación de organoides murinos tras la disociación unicelular, se cultiva en medio ENR suplementado con medio condicionado por Wnt (suplementado con 10 mM de nicotinamida y 10 μM de Y-27632 dihidrocloruro) durante los primeros 2–3 días para promover el crecimiento y la viabilidad de los organoides. - Para inducir la diferenciación de organoides intestinales humanos, cultivar secuencialmente los organoides en medio de patrón durante 14 días, seguido por medio de maduración durante 7–10 días6.
NOTA: Para protocolos detallados para el establecimiento y cultivo de organoides, consulte Sato et al.4 para organoides intestinales murinos, Sato et al.5 y He etal 6 para organoides intestinales humanos.
2. Generación de organoides intestinales transgénicos
- Organoides de paso para asegurar la proliferación activa de cultivos en el momento de la electroporación: tres días antes de la electroporación para organoides murinos y de cinco a siete días para organoides humanos. Para cada reacción de electroporación, se utilizan organoides de 4–8 pozos de una placa de 24 pozos (aproximadamente 200–400 μL de organoides que contienen BME, produciendo aproximadamente entre 500 y 1.000 organoides). Disociar organoides a células individuales usando reactivo recombinante de disociación tipo tripsina durante 5–10 minutos a 37 °C.
- Generar líneas organoides de reporteros nucleares coelectroporando un constructo de expresión basado en transposones (p2T-H2B-mCherry-IRES-BlastR o p2T-H2B-iRFP-IRES-PuroR; 5 μg cada uno) junto con un vector transposasa (p2T-CAG-mT2TP; 5 μg) en las células disociadas mediante un sistema de electroporación siguiendo los protocolosestablecidos 24.
NOTA: Las cantidades de ADN plasmídico especificadas en el paso 2.2 (5 μg por construcción) están optimizadas para aproximadamente 500–1.000 organoides por reacción de electroporación. Durante la electroporación, comprueba que la impedancia medida por el electroporador esté entre 25 y 55 Ω. Una impedancia inferior a 25 Ω indica densidad celular excesiva o problemas de conductividad del tampón; Impedancia superior a 55 Ω indica número de celdas insuficiente o pobre viabilidad de celdas. Ajusta la concentración de la celda o reemplaza el buffer de electroporación si la impedancia queda fuera de este rango. - Tras la electroporación, cultivar células en un medio condicionado con Wnt suplementaron con 10 μM de Y-27632 dihidrocloruro durante 3 días para apoyar la recuperación celular y la reforma de organoides.
- Comenzar la selección antibiótica para los constructos de sobreexpresión (puromicina (2 μg/mL) para líneas H2B-iRFP o blasticidina (10 μg/mL) para líneas H2B-mCherry) una semana después de la electroporación para permitir una recuperación suficiente antes de la presión de selección.
- Mantén una selección continua durante dos semanas.
- Elige clones organoides fluorescentes bajo un microscopio estereoscópico equipado con epifluorescencia usando los filtros adecuados.
- Disociar clones seleccionados en células individuales usando un reactivo de disociación recombinante tipo tripsina y expandirse en un medio condicionado por Wnt durante dos semanas antes de pasar a un medio ENR.
- Validar las líneas reporteras confirmando la localización nuclear uniforme de la señal fluorescente y la expresión estable a través de los pasajes.
- Verifica que la introducción de reporteros no altere la tasa de crecimiento organoide, la morfología o la capacidad de diferenciación comparando con líneas parentales no etiquetadas.
- Para permitir lecturas de proteínas localizadas en membranas o del citoesqueleto, coexpresa un reportero fluorescente de interés (por ejemplo, Miosina-II marcado con mNeonGreen) en la misma línea organoide que el reportero nuclear H2B.
NOTA: Las líneas organoides H2B reportadoras establecidas pueden ampliarse y criopreservarse. Estas líneas sirven como una base versátil para experimentos de mosaico posteriores: se pueden introducir reporteros adicionales o mutaciones genéticas en el mismo fondo etiquetado con H2B, generando una biblioteca de líneas compatible con el flujo de trabajo de mosaico descrito en la Sección 4.
3. Generación de organoides intestinales humanos reportadores de destino endógeno
- Generar el reportero fluorescente knock-in MUC2 en organoides intestinales humanos utilizando integración dirigida independiente de homología mediada por CRISPR (CRISPR-HOT), tal como se describe en Artegiani et al.7
- Generar el reportero fluorescente DEFA5 knock-in en organoides intestinales humanos mediante reparación dirigida por homología (HDR) como se describe en He et al.6
NOTA: CRISPR-CALIENTE (paso 3.1) y HDR (paso 3.2) producen reporteros endógenos knock-in. - Validar la expresión de ambos reporteros confirmando la colocalización de la señal fluorescente con la tinción por anticuerpos para MUC2 y DEFA5, respectivamente.
- Verifica que la introducción de reporteros no altere el crecimiento, la morfología o la capacidad de diferenciación de los organoides.
NOTA: El enfoque CRISPR-HOT es ampliamente aplicable más allá de los marcadores del destino y puede utilizarse para generar reporteros fluorescentes endógenos para proteínas localizadas en membranas y del citoesqueleto como Miosina-II, E-cadherina o ZO-1 tanto en organoides humanos como murinos.
4. Generación de organoides mosaicos
- Tres días antes de la generación del organoide mosaicoide, pasar ambas líneas organoides a un medio condicionado por Wnt para promover la expansión de las células madre y maximizar la viabilidad celular durante la disociación.
- El día de la generación del mosaico, recubre cada pozo de una placa de 48 pozos con 20 μL de 5% de BME en DMEM para proporcionar una capa adhesiva fina para la fijación de las celdas. Incubar a 37 °C durante 1 hora.
- Disolver el BME añadiendo medio base helado y recoger organoides de cada línea por centrifugación a 300 × g durante 5 minutos a 4 °C. Disociar organoides a células individuales incubándolos en una solución enzimática de desprendimiento celular durante 5–7 minutos en un baño maria a 37 °C. Pipetee repetidamente la suspensión usando una pipeta P1000 para ayudar en la disociación mecánica. Monitorizar la disociación con un microscopio de campo claro y detener la reacción añadiendo un exceso de medio base helado cuando sean visibles predominantemente células individuales o pequeños fragmentos organoides de 2–10 células.
- Centrifugar las celdas por centrifugación a 300 × g durante 5 minutos a 4 °C. OPCIONAL: Filtrar cada suspensión de celda mediante un colador de 40 μm para eliminar grumos residuales, restos celulares y fragmentos de gel BME.
NOTA: Esto garantiza una suspensión celular limpia, mejora la homogeneidad del mosaico y reduce el riesgo de que surjan grandes parches clonales a partir de grupos celulares preformados. Para crear límites más amplios entre poblaciones celulares, no se recomienda el filtrado. - Evalúa la viabilidad celular y cuenta las células viables usando la exclusión de azul de tripán. Combinar las dos poblaciones celulares en la proporción deseada (por ejemplo, 1:1, 1:3 o 1:9) para un total de 300.000 células en 500 μL de medio condicionado en Wnt suplementado con 10 μM de Y-27632 dihidrocloruro. Mezcla bien con pipeteo suave.
NOTA: La relación de mezcla determina el tipo de análisis: una baja proporción de reportero respecto a no marcada (por ejemplo, 1:9) aísla células individuales marcadas entre vecinos no marcados, permitiendo la atribución inequívoca de señales de membrana y citoesqueleto a células individuales. Una alta fracción de celdas reporteras (por ejemplo, 9:1) invierte esta visión, permitiendo capturar la respuesta de vecindad alrededor de una celda no etiquetada. - Siembra la suspensión de la celda en la placa recubierta de 48 pozos. Centrifugar la placa a 200 × g durante 5 minutos a temperatura ambiente e incubar a 37 °C.
- Tras 24 horas, desprende mecánicamente la capa de celda raspando con una punta de pipeta P200 y enjuagando bien con medio base helado o usando un raspador de celdas. Recoger los áridos desprendidos mediante centrifugación a 300 × g durante 3 minutos a 4 °C sin cizallamiento mecánico adicional. Resuspender los agregados en BME y plasmar en portadores de muestra compatibles con imagen. Cultura en medio ENR.
NOTA: El paso de agregación 2D sin BME es fundamental para generar organoides de mosaico bien mezclados con una distribución de sal y pimienta de las dos poblaciones celulares. - Para organoides de mosaico humano, sustituir el medio condicionado Wnt y el ENR por el Medio de Expansión humano (Tabla 2); todos los demás pasos permanecen sin cambios.
5. Preparación de muestras para imagen confocal de células vivas
- Utiliza cámaras de imagen con fondo de vidrio (por ejemplo, placa de fondo de vidrio de 24 pozos con cobertura de borosilicato #1.5 de alto rendimiento y deslizamiento) para asegurar la compatibilidad óptica con objetivos confocales de alta apertura numérica (NA).
- Placar la suspensión organoide-BME como una delgada cúpula (≤30 μL por pozo) cerca del centro del fondo del vidrio. Antes de transferir a 37 °C, incubar la placa a 4 °C durante 5–10 minutos para permitir que los organoides se hundan hacia el fondo del vidrio por gravedad antes de la gelificación del BME.
NOTA: Esto reduce la distancia de trabajo entre el organoide y el cobertor, maximizando la calidad de imagen con microscopios invertidos. - Transfiere a 37 °C y deja solidificar el BME durante 20–30 minutos. Luego añade 500 μL de medio de crecimiento precalentado por cada 24 pozos. Permitir que los organoides se recuperen y establezcan su morfología durante al menos 24 horas después del blindaje antes de comenzar la imagen en vivo.
- Para minimizar la evaporación durante la imagen a largo plazo, se utiliza una cámara de incubación humidificada en la parte superior de la etapa. Coloque la muestra en la etapa del microscopio 1–2 horas antes de la imagen para permitir el equilibrio térmico y minimizar la deriva Z durante la adquisición.
- Asegúrese de que la incubadora en la parte superior mantenga 37 °C y un 5% de CO₂ durante la imagen.
- Selecciona organoides situados cerca del fondo del vidrio (≤50 μm del engobe de cubierta) con morfología saludable: arquitectura clara de cripta en el caso de organoides murinos o estructura quística/geminante para organoides humanos. Evita organoides situados en profundidad en el BME, ya que la calidad de la señal y la precisión del seguimiento se degradan significativamente con la profundidad de imagen.
NOTA: La presencia de rojo de fenol tanto en la BME como en el medio de cultivo no causa artefactos significativos de autofluorescencia ni de imagen, ya que los reporteros fluorescentes utilizados en este protocolo (H2B-mCherry, H2B-iRFP, MUC2-mNeonGreen y DEFA5-dsRed) producen una relación señal-ruido suficiente para una detección nuclear fiable y un seguimiento de células únicas. Sin embargo, para experimentos que utilizan reporteros más débiles o canales fluorescentes adicionales, cambiar a BME libre de fenol rojo y medio de cultivo puede ser beneficioso.
6. Adquisición de imágenes confocales
- Utilice un microscopio confocal de escaneo láser equipado con una incubadora en la parte superior del escenario (37 °C, 5% CO₂), accionamiento motor en Z y líneas láser adecuadas para los fluoróforos utilizados.
- Selecciona el objetivo según el requisito experimental. Utiliza el objetivo de inmersión en agua de 40×/1,10 NA con una distancia de trabajo de 0,62 mm para obtener imágenes más profundas en la BME. Utiliza el objetivo de aire de 20×/0,75 NA con una distancia de trabajo de 0,62 mm para adquisición multiorganoide o de gran campo de visión.
NOTA: Un mayor NA mejora la recogida de luz, la resolución y la sección óptica, por lo que el objetivo de inmersión en agua 40×/1.10 resuelve detalles finos más profundos dentro del BME, mientras que su mayor aumento restringe el campo a uno o pocos organoides. El objetivo de aire de 20×/0,75 recoge menos luz y secciones menos compactas, pero su campo más amplio captura muchos organoides en una sola adquisición, lo que lo convierte en la mejor opción para imágenes a escala poblacional o multiposición. - Dejar que la muestra y el medio de inmersión se equilibren térmicamente en el escenario del microscopio durante al menos 1–2 horas antes de comenzar la adquisición (paso 5.8).
- Verifica el enfoque en todas las posiciones durante los primeros puntos de tiempo y corrige manualmente cualquier posición que muestre deriva antes de que se acumule.
NOTA: La pérdida de enfoque y la deriva de imagen son desafíos comunes durante las adquisiciones confocales a largo plazo y deben gestionarse activamente. Para objetivos de inmersión en agua, se utiliza un aceite de inmersión con un índice de refracción coincidido con el agua (n = 1,333) en lugar del agua en sí, eliminando la evaporación y manteniendo las propiedades ópticas de la inmersión en agua. - Configura los ajustes de excitación y emisión para cada fluoróforo. Para minimizar el sangrado cruzado, adquiere canales de fluorescencia secuencialmente en lugar de simultáneamente, asegurando que solo una línea láser esté activa a la vez. Utiliza escaneo secuencial bidireccional para reducir el tiempo total de adquisición por punto temporal, manteniendo la separación de canales.
NOTA: Incluir organoides de control de color único que expresen solo un reportero para cuantificar el sangrado cruzado residual y aplicar correcciones espectrales de desmezclas si es necesario. - Para organoides mosaico murino de dos colores, se utiliza excitación de 561 nm para H2B-mCherry y 638 nm para H2B-iRFP670 con filtros de emisión apropiados para minimizar el sangrado espectral. Para los organoides intestinales humanos, utiliza excitación de 488 nm para MUC2-mNeonGreen y 561 nm para DEFA5-dsRed.
NOTA: Los colorantes nucleares vivos como Hoechst 33342 o un colorante de ADN fluorescente de rojo lejano pueden sustituir un marcador nuclear genético, ya que la cadena de detección funciona con señal nuclear en lugar de con un fluoróforo específico. Cabe señalar que los tintes que se unen al ADN pueden volverse fototóxicos y antiproliferativos bajo iluminación repetida, especialmente el Hoechst, que tiene una excitación de ~400 nm, por lo que mantienen las concentraciones bajas y favorecen tintes rojo lejano de baja fototoxicidad para imágenes en vivo prolongadas. - Configura el pila Z en 25–35 secciones ópticas a intervalos de 2 μm. Establezca un intervalo de tiempo de 5–10 minutos para organoides intestinales murinos y 15–30 minutos para organoides humanos.
NOTA: Para una detección nuclear fiable usando OrganoidTracker, recomendamos los siguientes ajustes como punto de partida: objetivo de agua 40x, velocidad de escaneo 600 Hz, factor de zoom 0,75×, resultando en un tamaño de píxel de 0,38 μm en XY. Estos ajustes proporcionan suficiente muestreo espacial para resolver núcleos individuales, manteniendo el tiempo de adquisición por pila z dentro de límites aceptables para la imagen a largo plazo de múltiples posiciones. - Mantén la potencia láser lo más baja posible, pero aumenta hasta que los núcleos estén claramente resueltos. Comienza la adquisición en time-lapse de múltiples posiciones. Asegúrese de que el tiempo total de adquisición por punto temporal en todas las posiciones no supere el 90% del intervalo de tiempo establecido para acomodar el movimiento del escenario y los ajustes de enfoque automático. Imagen de 12–72 horas, dependiendo de las preguntas biológicas.
NOTA: Antes de comenzar una larga partida con OrganoidTracker, adquiere una sola pila z y prueba la identificación. Una identificación fiable con pocas detecciones fallidas o falsas confirma que los ajustes son adecuados. De lo contrario, ajusta la potencia del láser, la ganancia del detector o el z-step antes de continuar. La captura de eventos de diferenciación como la aparición de células caliciformes positivas para MUC2 o células de Paneth positivas para DEFA5 suele requerir entre 48 y 72 horas. Dinámicas a corto plazo, como la extrusión celular, pueden captarse en un plazo de 12–24 horas. La fototoxicidad es el principal factor limitante para la imagen a largo plazo. Los signos incluyen división celular ralentizada, apoptosis, condensación nuclear y colapso organoide (Figura 2). Se recomienda incluir organoides de control no imaginados como referencia interna. Si se observa, reduce la potencia del láser o aumenta el intervalo de tiempo.
7. Seguimiento de células individuales y reconstrucción de linaje utilizando una herramienta de software semiautomatizada de seguimiento celular organoide como OrganoidTracker
- Instala OrganoidTracker siguiendo las instrucciones de https://github.com/jvzonlab/OrganoidTracker.
NOTA: El software requiere Python 3.8 o posterior con numpy, scipy, matplotlib y tensorflow. - Carga el conjunto de datos de time-lapse en OrganoidTracker. Los formatos de archivo aceptados incluyen pilas TIFF, ND2 y LIF. Ejecuta la detección de núcleos basada en redes neuronales en el canal nuclear (H2B-mCherry o H2B-iRFP para organoides murinos).
NOTA: El modelo preentrenado proporcionado con el software está optimizado para núcleos organoides intestinales marcados con H2B y no puede aplicarse directamente para identificar automáticamente células MUC2-mNeonGreen- o DEFA5-dsRed-positivas. - Revisa y corrige manualmente las detecciones automáticas, centrándose en falsos positivos (detecciones en escombros, material autofluorescente o cifras mitóticas contadas dos veces), falsos negativos (núcleos perdidos en regiones densas o en la periferia del organoide) y interruptores de identidad (asignaciones incorrectas de identidad celular cuando dos células pasan cerca).
- Ejecuta el algoritmo de enlace para conectar las detecciones entre puntos temporales y reconstruir las trayectorias de las células. Revisa los enlaces manualmente, prestando especial atención a los eventos de división celular (una pista dividiéndose en dos pistas hijas) y a los eventos de extrusión celular (terminación de la pista cuando una célula sale del epitelio).
NOTA: Para organoides mosaicoides, realice detección y seguimiento en el canal nuclear primario, y luego clasifique cada célula rastreada como perteneciente a la población A o B basándose en la relación de intensidad de fluorescencia entre los dos canales nucleares. - Utiliza la opción de "Seguimiento manual" en el software para rastrear a los organoides reporteros del destino humano. Cuantifiquen la fluorescencia del reportero midiendo la intensidad media de la señal dentro de un ROI definido alrededor de la posición del centro celular insertada durante el seguimiento manual. El momento en que la intensidad del reportero supera un umbral definido marca el compromiso con el destino. El inicio de la señal MUC2-mNeonGreen define el compromiso de la célula goblet, mientras que el inicio de la señal DEFA5-dsRed define el compromiso de la célula Paneth.
- Guarda el proyecto de seguimiento regularmente usando la función de guardado incremental del software, que permite pausar y reanudar el proceso de corrección. Exportar datos de seguimiento (incluyendo posiciones de celdas, árboles de linaje y clasificaciones de celdas) para análisis posteriores en Python o R.
8. Cuantificación de las transiciones de destino celular y comportamiento de una sola célula
- Para cuantificar las transiciones de tipo celular, se identifica el momento en que cada célula DEFA5-dsRed negativa se convierte por primera vez en DEFA5-dsRed positiva (compromiso de la célula de Paneth) en función de la intensidad del canal reportero en el seguimiento. Para cada célula rastreada, extrae la intensidad de fluorescencia tanto de los canales MUC2-mNeonGreen como DEFA5-dsRed a lo largo del tiempo para monitorizar la relación temporal entre ambos reporteros. Grafica trazas de intensidad de doble canal para células individuales para identificar dinámicas correlacionadas de reporteros.
NOTA: Monitorizar ambos canales simultáneamente en células rastreadas individuales es esencial para distinguir el compromiso de las células caliciformes (activación sostenida de MUC2-mNeonGreen) del compromiso de las células Paneth (activación transitoria de MUC2-mNeonGreen seguida de inicio de DEFA5-dsRed). El análisis de canal único por sí solo es insuficiente para captar esta dinámica y puede llevar a una mala clasificación de precursores tempranos de células de Paneth como células calicip. - En organoides mosaicoides, extrae métricas de comportamiento por célula para cada célula seguida, incluyendo la vida útil de la célula (tiempo desde la última división hasta la extrusión o el final de la imagen), la tasa de división y la velocidad de migración. Cuando haya un reportero de interés coexpresado, cuantifique su intensidad de fluorescencia a lo largo del tiempo para capturar cambios dinámicos durante eventos específicos como división, migración o extrusión. Relaciona estas mediciones con el contexto local de vecindad de la célula comparando el comportamiento de la celda etiquetada con sus vecinas inmediatas no etiquetadas.
NOTA: Cuando dos genotipos se mezclan en el mismo organoide, diferencias sistemáticas en cualquiera de estas métricas entre las dos poblaciones pueden indicar una ventaja competitiva de un genotipo sobre el otro. - Realizar análisis estadísticos utilizando pruebas adecuadas. Para comparar el momento del compromiso del destino o métricas por célula como la vida útil, la velocidad de migración y la tasa de división entre dos grupos, utilice la prueba Mann-Whitney U. Para comparar la dinámica de intensidad de los reporteros a lo largo del tiempo, se utiliza un modelo lineal de efectos mixtos para tener en cuenta mediciones repetidas dentro de la misma célula.
NOTA: Todas las cuantificaciones deben realizarse sobre datos de seguimiento corregidos manualmente. Los conjuntos de datos no corregidos o parcialmente corregidos introducen errores sistemáticos en el momento del compromiso del destino, asignaciones espaciales y cálculos de métricas conductuales. Reservar tiempo suficiente para la corrección manual antes de proceder a la cuantificación (véase la Sección 7).
Resultados
Siguiendo el protocolo descrito en la Sección 4, se forman organoides mosaico que contienen poblaciones celulares marcadas con H2B-mCherry y H2B-iRFP en un plazo de 48 horas tras la siembra. La formación exitosa del mosaico se caracteriza por una distribución sal y pimienta o por límites definidos entre las dos poblaciones, dependiendo del grado de disociación utilizado. Una distribución de sal y pimienta se refiere a una mezcla aleatoria de una sola célula entre las dos poblaciones, en la que las células de cada población se intercalan a nivel de célula única, sin grandes dominios clonales. Los límites definidos, en cambio, resultan en parches coherentes de cada población celular dentro del mismo organoide. El grado de dispersión celular está controlado por la duración del paso de disociación y el vigor del pipeteo: la disociación completa de una sola célula produce mosaicos de sal y pimienta, mientras que la fragmentación suave preserva pequeños cúmulos clonales (Figura 3A).
El marcado en mosaico permite el análisis de células individuales de procesos que no pueden resolverse en tejidos marcados uniformemente. Cuando una célula individual que coexpresa un reportero de interés (por ejemplo, un reportero fluorescente de Miosina-II) está rodeada de vecinos no marcados, su dinámica citoesquelética durante la migración, división o extrusión puede atribuirse sin ambigüevocidad a esa célula (Figura 3B). Los reporteros nucleares de H2B facilitan la identificación de constelaciones celulares informativas dentro del mosaico, y se pueden extraer mediciones por célula, como la vida útil, la tasa de división y la dinámica de intensidad del reportero, a partir de los datos de seguimiento (Figura 3C). Cuando se mezclan dos genotipos, estas métricas por célula pueden compararse entre poblaciones para evaluar las diferencias de aptitud competitiva.
En organoides intestinales humanos que portan los reporteros del destino MUC2-mNeonGreen y DEFA5-dsRed, el compromiso con el destino de las células secretoras es evidente como un aumento gradual de la fluorescencia del reportero durante días. Los organoides cultivados en medio de maduración se transfirieron a placas de fondo de vidrio en el día 7 y se fotografiaron mediante microscopía confocal de células vivas (Figura 4A). La imagen en lapso de tiempo revela dos dinámicas reporteras distintas: las células goblet activan y mantienen una alta expresión de MUC2-mNeonGreen durante todo el periodo de imagen, mientras que las células de Paneth muestran una activación inicial de MUC2-mNeonGreen seguida de una disminución progresiva de la señal y una posterior activación de DEFA5-dsRed6 (Figura 4A). La cuantificación de célula única confirma esta transición secuencial a nivel de células individuales (Figura 4B), lo que sugiere que el compromiso de la célula de Paneth se realiza a través de un estado intermedio transitorio que expresa MUC2 en lugar de proceder directamente de un progenitor no etiquetado. Las curvas de intensidad promediadas entre múltiples células rastreadas confirman que este patrón es consistente a nivel poblacional, con precursores de células de Paneth mostrando una relación inversa característica entre las señales MUC2-mNeonGreen y DEFA5-dsRed (Figura 4C). En conjunto, estos datos demuestran que el sistema de reporteros duales resuelve trayectorias de destino secretorio distintas a resolución de célula única.
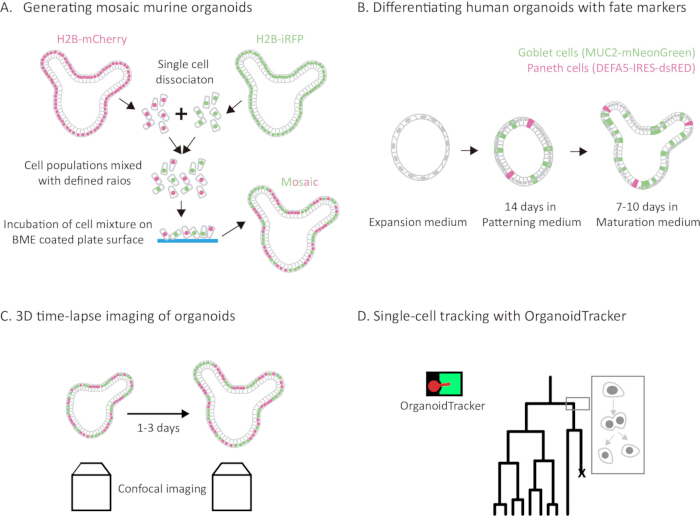
Figura 1: El flujo de trabajo que integra la imagen confocal de células vivas y el seguimiento de célula única con dos estrategias complementarias de reporteros en organoides intestinales humanos y murinos. (A) Visión esquemática del flujo de trabajo de generación de organoides mosaicos. Los organoides intestinales murinos que expresan H2B-mCherry (magenta) o H2B-iRFP (verde) se disocian en células individuales, se mezclan en proporciones definidas y se siembran en una placa recubierta de BME para la formación de agregados durante 24 horas antes de volver a incrustarse en BME. (B) Visión esquemática de la diferenciación de organoides intestinales humanos. Los organoides humanos que expresan reporteros endógenos knock-in MUC2-mNeonGreen (células calicip, verdes) y DEFA5-dsRed (células de Paneth, magenta) se diferencian mediante un protocolo de dos pasos. Los organoides se cultivan primero en medio de patrón durante 14 días, seguido por medio de maduración durante 7–10 días. Durante la diferenciación, los organoides pasan de una morfología quística y esférica a una estructura extensamente geminada que alberga los principales tipos celulares intestinales, incluyendo células caliciformes MUC2-mNeonGreen-positivas y células Paneth DEFA5-dsRed-positivas. (C) Imagen confocal en time-lapse 3D de un organoide intestinal de mosaico murino que expresa reporteros nucleares. (D) Seguimiento de células individuales y reconstrucción de linaje utilizando una herramienta de software semiautomatizada para el seguimiento de células organoides. Los núcleos detectados se vinculan a través de puntos temporales para reconstruir trayectorias celulares y árboles de linaje, permitiendo cuantificar eventos de división celular, migración y extrusión. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
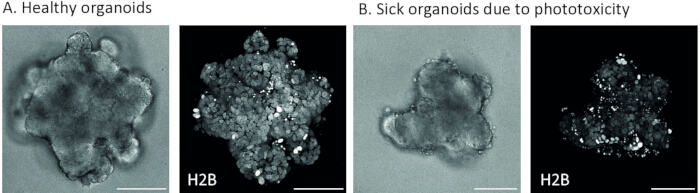
Figura 2: Comparación de organoides intestinales humanos sanos y fototóxicos durante imágenes confocales vivas. (A) Imágenes representativas de campo claro y fluorescencia de un organoide intestinal humano sano. Los organoides sanos muestran una morfología quística o en brotación clara, sin restos celulares en el medio circundante. (B) Imágenes representativas de campo brillante y fluorescencia de un organoide intestinal humano que muestran daños fototóxicos. Los signos de fototoxicidad incluyen acumulación de restos celulares en el medio circundante, condensación nuclear y división celular detenida. Las imágenes de fluorescencia H2B-mCherry se muestran como proyecciones de máxima intensidad. Barras de escala, 100 μm. Por favor, haga clic aquí para ver una versión ampliada de esta figura.
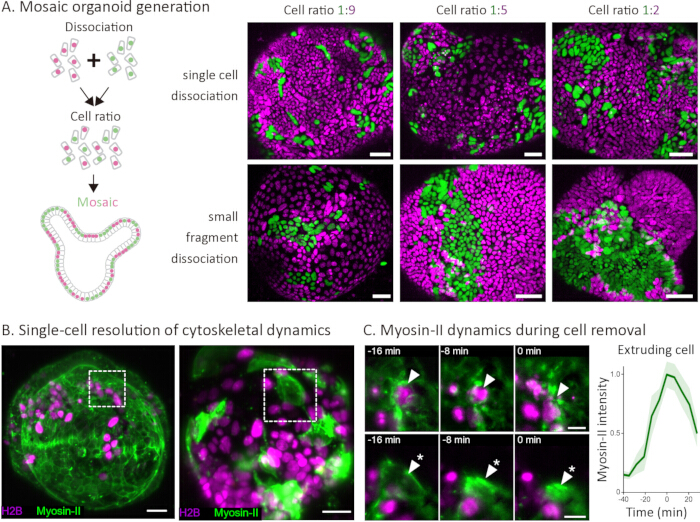
Figura 3: Generación de organoides mosaico y resolución unicelular de la dinámica del citoesqueleto en organoides intestinales murinos. (A) Esquema de la generación de organoides mosaico por disociación, mezcla en proporciones definidas y reagregación. Imágenes confocales representativas de organoides mosaico generadas en proporciones celulares de 1:9, 1:5 y 1:2 (H2B-mCherry, verde; H2B-iRFP, magenta) usando disociación de células individuales (fila superior) o disociación de fragmentos pequeños (fila inferior). La disociación de células individuales produce un patrón de mezcla sal y pimienta, mientras que la disociación de fragmentos pequeños da lugar a parches clonales más grandes. Barras de escala, 50 μm. (B) Imágenes confocales de organoides mosaico en las que una población densa (izquierda) o escasa (derecha) expresa Miosina-II-mNeonGreen (verde), mientras que la otra población expresa solo H2B-iRFP (magenta). Los recuadros discontinuos indican las regiones ampliadas en (C). Barras de escala, 20 μm. (C) Serie de lapsos de tiempo que muestran la extrusión de las celdas a intervalos de 8 minutos, alineadas con el momento de retirada de la celda (t = 0 minutos). Fila superior (puntas de flecha): extrusión de una celda sin etiquetar rodeada por vecinos que expresan Miosina-II-mNeonGreen, revelando la respuesta del vecindario. Fila inferior (asteriscos): extrusión de una célula individual que expresa Miosina-II-mNeonGreen rodeada de vecinos no etiquetados, permitiendo la atribución inequívoca de la dinámica cortical-miosina a la célula extruida. Barras de escala, 10 μm. Derecha: intensidad de fluorescencia normalizada de Miosina-II-mNeonGreen a lo largo del tiempo para células extruidas, alineada con el momento de extracción celular (t = 0 min). La miosina II se acumula progresivamente en los minutos previos a la extrusión, alcanzando su pico en el momento de la extracción. El área sombreada indica desviación estándar. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
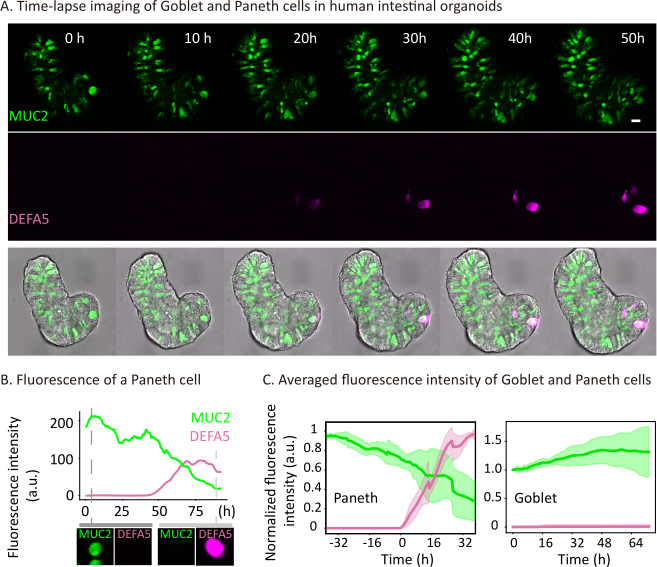
Figura 4: Monitorización en tiempo real de las transiciones del destino de las células secretoras en organoides intestinales humanos utilizando reporteros del destino MUC2-mNeonGreen y DEFA5-dsRed. Por favor, haga clic aquí para ver una versión ampliada de esta figura.
(A) Imágenes confocales representativas en time-lapse de un organoide intestinal humano cultivado en medio de maduración e imágenes desde el día 7 de maduración. MUC2-mNeonGreen (verde) marca las células de cáliz y DEFA5-dsRed (magenta) marca las células de Paneth. Barra de escala, 20 μm. (B) Cuantificación de célula única de la intensidad de fluorescencia MUC2-mNeonGreen (verde) y DEFA5-dsRed (magenta) a lo largo del tiempo para una célula de Paneth representativa, mostrando activación inicial de MUC2-mNeonGreen seguida de disminución progresiva de la señal y posterior inicio de DEFA5-dsRed. La intensidad de fluorescencia se muestra en unidades arbitrarias (u.a.). (C) Curvas promediadas de intensidad de fluorescencia para células caliciformes (n = 7 celdas) y precursores de células de Paneth (n = 8 celdas) que muestran la dinámica de señales MUC2-mNeonGreen (verde) y DEFA5-dsRed (magenta) a lo largo deltiempo 6. Para los precursores de células de Paneth, el tiempo se alinea con la primera aparición de la señal DEFA5-dsRed (t = 0 h). Las células caliciformes mantienen una intensidad consistentemente alta de MUC2-mNeonGreen a lo largo del tiempo, mientras que los precursores de las células de Paneth muestran una relación inversa característica entre las señales MUC2-mNeonGreen y DEFA5-dsRed. Las áreas sombreadas indican desviación estándar.
| Componente | Concentración de stock | Concentración final |
| Advanced Dulbecco's Modified Eagle Medium/F12 (DMEM avanzado/F12) | Medio base | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| Suplemento N2 | 100x | 1x |
| Suplemento de B27 | 50x | 1x |
| N-acetilcisteína | 500mM | 1mM |
| Penicilina/Estreptomicina | 10000U/ml, 10000ug/ml | 100U/ml, 100ug/ml |
| EGF murino recombinante | 50 ng/ml | |
| Noggin murino recombinante | 100ng/ml | |
| R-spondin humano recombinante 1 | 500ng/ml |
Tabla 1: Medio de crecimiento para organoides intestinales murinos.
| Componente | Concentración de stock | Concentración final |
| Advanced Dulbecco's Modified Eagle Medium/F12 (DMEM avanzado/F12) | Medio base | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| Suplemento de B27 | 50x | 1x |
| Penicilina/Estreptomicina | 10000U/ml, 10000ug/ml | 100U/ml, 100ug/ml |
| Primocin | 50mg/ml | 100ug/ml |
| Medio acondicionado con R-spondin (U-Protein Express) | 2% | |
| Medio acondicionado con Noggin (U-Protein Express) | 2% | |
| N-acetilcisteína | 500mM | 1mM |
| Nicotinamida | 1M | 10mM |
| EGF recombinante humano | 500ug/ml | 50 ng/ml |
| A83-01 | 5mM | 500nM |
| SB202190 (inhibidor de p38) | 30mM | 3uM |
| Prostaglandina E2 | 10mM | 1uM |
| Sustituto Wnt | 1000x |
Tabla 2: Medio de expansión para organoides intestinales humanos.
| Componente | Concentración de stock | Concentración final |
| Advanced Dulbecco's Modified Eagle Medium/F12 (DMEM avanzado/F12) | Medio base | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| Suplemento de B27 | 50x | 1x |
| Penicilina/Estreptomicina | 10000U/ml, 10000ug/ml | 100U/ml, 100ug/ml |
| Primocin | 50mg/ml | 100ug/ml |
| Medio acondicionado con R-spondin (U-Protein Express) | 2% | |
| Medio acondicionado con Noggin (U-Protein Express) | 2% | |
| N-acetilcisteína | 500mM | 1mM |
| EGF recombinante humano | 500ug/ml | 50 ng/ml |
| A83-01 | 5mM | 500nM |
| Sustituto Wnt | 1000x | |
| CHIR99021 | 3mM | 3uM |
| IL-22 humana recombinante | 10 ug/ml | 2ng/ml |
Tabla 3: Medio de patrón para organoides intestinales humanos.
| Componente | Concentración de stock | Concentración final |
| Advanced Dulbecco's Modified Eagle Medium/F12 (DMEM avanzado/F12) | Medio base | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| Suplemento de B27 | 50x | 1x |
| Penicilina/Estreptomicina | 10000U/ml, 10000U/ml | 100U/ml, 100U/ml |
| Primocin | 50mg/ml | 100ug/ml |
| Medio acondicionado con R-spondin (U-Protein Express) | 2% | |
| Medio acondicionado con Noggin (U-Protein Express) | 2% | |
| N-acetilcisteína | 500mM | 1mM |
| EGF recombinante humano | 500ug/ml | 50 ng/ml |
| A83-01 | 5mM | 500nM |
| Sustituto Wnt | 30000x | |
| IL-22 humana recombinante | 10 ug/ml | 2ng/ml |
Tabla 4: Medio de maduración para organoides intestinales humanos.
Discusión
Este protocolo proporciona un flujo de trabajo paso a paso para la imagen confocal de células vivas y el seguimiento de células individuales en organoides intestinales humanos y murinos, construido en torno a dos sistemas experimentales complementarios: organoides mosaico que resuelven el comportamiento celular individual dentro de un epitelio denso, y organoides reportadores de destino que expresan MUC2-mNeonGreen y DEFA5-dsRed para monitorizar en tiempo real las transiciones de tipos celulares secretores.
En comparación con métodos de puntos temporales fijos como la inmunofluorescencia o la secuenciación de ARN unicelular, la imagen en vivo captura la dinámica de las transiciones en lugar de instantáneas. En comparación con el rastreo de linaje basado en Cre, proporciona la resolución temporal para identificar decisiones individuales sobre el destino. El enfoque mosaico añade comparaciones controladas internamente dentro del mismo contexto tisular, evitando la variabilidad confusa de organoide a organoide.
Varios pasos del protocolo son fundamentales para el éxito. Para un mosaico con distribución sal y pimienta, la disociación de organoides a células individuales debe ser profunda pero suave: la disociación incompleta produce grandes parches clonales, mientras que la disociación excesiva reduce la viabilidad (Sección 4.3). El paso de agregación de 24 horas sobre una superficie plana antes de volver a incrustarse en BME es necesario para una mezcla adecuada de ambas poblaciones; omitirlo resulta en mosaicos mal integrados (Secciones 4.6–4.8). El manejo de la fototoxicidad durante la imagen requiere una calibración cuidadosa, comenzando con ajustes láser conservadores y aumentando solo si el software de seguimiento produce falsos negativos excesivos (Sección 6.8).
Las principales limitaciones están relacionadas con las limitaciones inherentes de los sistemas organoides y la imagen en vivo. Los organoides carecen de componentes estromales, vasculares e inmunitarios que puedan influir en el comportamiento celular in vivo. En microscopía confocal, la profundidad de imagen está limitada a aproximadamente 100 μm desde el cobertizo, más allá de lo cual la dispersión de luz degrada la calidad de la señal y la precisión del seguimiento. La microscopía multifotónica y de lámina de luz puede ampliar sustancialmente este rango de profundidad a costa de una instrumentación adicional y adaptación de protocolos. El enfoque de seguimiento semi-automatizado, aunque sustancialmente más eficiente que la anotación manual, sigue requiriendo un tiempo de corrección considerable, especialmente en tejidos densos (Sección 7.4).
Ambas estrategias son fácilmente extensibles. Variando el reportero coexpresado con el marcador nuclear, se pueden examinar diferentes aspectos del comportamiento unicelular, desde la miosina-II cortical para dinámica mecánica hasta la E-cadherina unional para la remodelación de adherencias, biosensores de calcio como tq-Ca-FLITS y ColBD-Twitch, o biosensores metabólicos como SoNar para el estado redox celular NAD+/NADH, permitiendo la lectura simultánea de la identidad celular, el linaje y el estado fisiológico dentro del mismoorganoide 9. 25, 26, 27. Ajustar la relación de mezcla ajusta el análisis: las células escasas etiquetadas permiten la atribución de señales de membrana por una sola célula, mientras que las células escasas sin etiquetar revelan respuestas vecinales. La estrategia del reporte de destino es extensible a cualquier locus endógeno susceptible de etiquetado basado en CRISPR-HOT o HDR. Combinar ambos enfoques dentro del mismo organoide permitiría el seguimiento simultáneo del compromiso de linaje y la dinámica de una sola célula.
De forma más amplia, la línea de imagen y análisis es aplicable a organoides derivados de otros tejidos epiteliales, incluyendo modelos gástricos, colónicos, hepáticos y pancreáticos. Los organoides derivados de células madre pluripotentes inducidas (iPSC) son una extensión prometedora, ya que el marcaje nuclear basado en H2B y la generación de mosaicos mediante mezcla celular son directamente transferibles, y esta cadena puede permitir estudios específicos de pacientes sobre el destino celular y la dinámica competitiva. Los modelos de embriones sintéticos como los gastruloides y embrioniles derivados de células madre también son susceptibles de rastreo de células individuales, aunque su geometría más compleja y mayor densidad nuclear pueden requerir reentrenamiento de una herramienta semiautomatizada de seguimiento de células organoides modelo de redes neuronales y adaptación de parámetros de imagen. Los organoides cerebrales presentan desafíos adicionales debido a su gran tamaño y densidad óptica, que limitan la profundidad de imagen confocal. Además, los organoides cerebrales requieren semanas o meses de diferenciación antes de poder realizar experimentos de imagen significativos, lo que aumenta considerablemente los plazos experimentales en comparación con los organoides intestinales. Algunos protocolos organoides cerebrales también dependen del cultivo en suspensión en lugar de la incrustación BME, lo cual es incompatible con el enfoque de preparación de muestras descrito aquí y requeriría adaptación a formatos incrustados en matriz o en superficie antes de la imagen. La microscopía de láminas, que ofrece una fototoxicidad reducida y una mayor profundidad de imagen, puede ser más adecuada para estossistemas 13. En conjunto, estas extensiones ponen de manifiesto el amplio potencial de la cadena a través de diversos sistemas de modelos 3D más allá de los organoides epiteliales descritos aquí.
Divulgaciones
H.C. es inventor de patentes relacionadas con la tecnología organoide. Todos los demás autores declaran no tener intereses en competencia.
Agradecimientos
Esta investigación está financiada por el Ministerio de Educación, Cultura y Ciencia del Gobierno de los Países Bajos a través del proyecto NWO Gravitation Material Driven Regeneration (024.003.013 ZWK MDR) y por el Consejo Europeo de Investigación a través de la subvención ERC Advanced Grant GutHormones (nr 101020405)
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| A83-01 | Tocris | 2939 | |
| Accutase Cell Detachment Solution | Innovative Cell Technologies | AT104-500 | |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | Invitrogen | 12634-010 | |
| B27 supplement | Thermo Fisher | 17504044 | |
| Blasticidin | InvivoGen | ant-bl-05 | |
| Cell strainer (40um) | Greiner Bio-one | 542140 | |
| CHIR99021 | Stemgent | 04-0004-base | |
| Confocal microscope | Leica | SP8 | con control climático para temperatura y CO2 |
| Cultrex Basement Membrane Extract (BME) | R&D Systems, Bio-Techne | 3533-001-02 | |
| Fiji | open source | open source https://imagej.net/software/fiji/ | |
| Glass bottom plates | CellVis | P24-1.5H-N | |
| Glutamax | Gibco | 35050-061 | |
| HEPES | Gibco | 15630-080 | |
| N2 supplement | Thermo Fisher | 17502048 | |
| N-acetylcysteine | Sigma-Aldrich | A9165 | |
| NEPA electroporation system | NEPAGENE | NEPA21 | |
| Nicotinamide | Sigma-Aldrich | N0636 | |
| NucSpot Live | tinta nuclear para células vivas de color rojo lejano | ||
| Noggin conditioned medium (U-Protein Express) | IPA Therapeutics | N002 | |
| OrganoidTracker | open source | open source https://organoidtracker.org/ | |
| p2T-CAG-mT2TP | hechas en casa | protocolo para generar el plásmido DOI: 10.1126/science.adr8753 | |
| p2T-H2B-iRFP-IRES-PuroR | hechas en casa | protocolo para generar el plásmido DOI: 10.1126/science.adr8753 | |
| p2T-H2B-mCherry-IRES-BlastR | hechas en casa | protocolo para generar el plásmido DOI: 10.1126/science.adr8753 | |
| Penicillin/Streptomycin | Gibco | 11548876 | |
| Primocin | InvivoGen | ant-pm-05 | |
| Prostaglandin E2 | Tocris | 2296 | |
| puromycin | InvivoGen | ant-pr | |
| Recombinant human EGF | Peprotech | AF-100-15 | |
| Recombinant Human IL-22 | Peprotech | 200-22 | |
| Recombinant human R-spondin 1 | Thermo Fisher | 120-38-5UG | |
| Recombinant murine EGF | Thermo Fisher | 315-09-500UG | |
| Recombinant murine Noggin | Thermo Fisher | 250-38-100UG | |
| R-spondin conditioned medium (U-Protein Express) | IPA Therapeutics | R001 | |
| SiR-DNA | tinta para ADN de células vivas de color rojo lejano | ||
| SB202190 (p38 inhibitor) | Sigma-Aldrich | S7076 | |
| Suspension plate for organoid culture | Greiner | 665102 | |
| Trypan blue | Gibco | 15250061 | |
| TrypLE | Gibco | 12605-010 | |
| Wnt surrogate | U-Protein Express | pedido personalizado | |
| Wnt3A conditioned medium | hechas en casa | La producción de Wnt3A conditioned medium se puede encontrar aquí: https://doi.org/10.1002/cpim.106 | |
| Y-27632 dihydrochloride | Abmole Bioscience | M1817 |
Reimpresiones y permisos
Este artículo ha sido publicado
Video próximamente