Este estudio evalúa el tratamiento con Qi-fu-yin (QFY) en ratones 5xFAD. Los hallazgos muestran que la administración de QFY se asocia con un mejor rendimiento en el aprendizaje y la memoria, una reducción del depósito cerebral de Aβ y de la senescencia celular, y una atenuación del daño estructural sináptico en la corteza cerebral.
Artículo de investigación
Efectos de Qi-fu-yin en la mejora del deterioro cognitivo y la reducción de la senescencia celular en los cerebros de ratones 5xFAD
* These authors contributed equally
En este artículo
Resumen
Resumen
Aunque el mecanismo de Qi-fu-yin (QFY), una fórmula de medicina tradicional china, aún no se comprende completamente, ha mostrado potencial terapéutico en la enfermedad de Alzheimer (EA). Este estudio tuvo como objetivo investigar la asociación entre el tratamiento con QFY y el deterioro cognitivo en ratones 5xFAD. Utilizamos la fuerza de agarre, la marcha, el anidamiento en colonia, la caja de condicionamiento activo, la prueba del laberinto acuático de Morris y ELISA para evaluar los niveles de la proteína amiloide-β 1-42 (Aβ1-42), Aβ1-40, la proteína asociada al crecimiento 43 (GAP-43), la sinaptofisina (SYN) y la proteína de densidad postsináptica 95 (PSD-95) en los cerebros de ratones 5xFAD. El análisis de citocinas mediante Luminex se utilizó para cuantificar los niveles del fenotipo secretor asociado a la senescencia (SASP) en la corteza. La cantidad de β-galactosidasa asociada a la senescencia (SA-β-Gal), la deposición de Aβ y las espinas dendríticas en los cerebros de los animales se midió mediante tinción de SA-β-Gal, inmunohistoquímica y tinción de Golgi-Cox, respectivamente. El tratamiento con QFY redujo drásticamente la carga de placas de Aβ en la corteza y disminuyó la expresión de p21 en ratones 5xFAD, según pruebas de inmunofluorescencia. En ratones 5xFAD, la terapia con QFY mejoró notablemente el aprendizaje y el rendimiento de la memoria, alivió el envejecimiento y aumentó las cantidades de las proteínas GAP-43, PSD-95 y SYN en la corteza de los ratones. Tras el tratamiento con QFY, se observó una disminución significativa de la actividad de la placa de Aβ y de SA-β-Gal en el cerebro, así como de los niveles de Aβ1-42 y de la relación Aβ1-42/Aβ1-40 en el hipocampo. Los niveles de IL-1α, IL-1β, IL-6, IL-17A e IFN-γ se redujeron considerablemente en la corteza de los ratones 5xFAD. Los análisis de componentes principales (PCA) y de correlación de Pearson demostraron una fuerte asociación negativa entre las citocinas SASP y los niveles de proteínas sinápticas. Estos hallazgos sugieren una asociación entre el tratamiento con QFY y mejoras en el deterioro cognitivo relacionado con la edad y los fenotipos de senescencia celular en ratones 5xFAD, junto con una reducción del daño estructural sináptico. Estos resultados respaldan la investigación adicional de QFY como un posible candidato terapéutico para la enfermedad de Alzheimer.
Introducción
Alzheimer's disease (AD)1 is the most prevalent form of dementia, characterized by amyloid-β protein (Aβ), hyperphosphorylated tau proteins (P-Tau), synaptic loss, and chronic inflammation. Currently available medications for AD have a number of side effects and are unable to stop the disease's progression2,3,4,5.
Senescence, which manifests as organism-wide disruptions across cellular and interstitial microenvironments rather than localized organ-specific alterations, is a key risk factor in AD pathogenesis. This systemic dysregulation distinguishes AD progression from single tissue-pathology models by fundamentally changing homeostatic mechanisms across biological systems6,7. Although cellular senescence initially serves as a homeostatic regulatory mechanism, the accumulation of senescent cells eventually causes progressive tissue degradation and persistent inflammatory cascades, fundamentally disrupting physiological homeostasis8. The ensuing inflammation may harm synapses and impair cognitive function9,10.
Cellular senescence is a complex cellular stress response characterized by telomere shortening, permanent cell-cycle arrest, and altered secretory activity11. Additional hallmarks include enlarged, flattened cell morphology, positive senescence-associated β-galactosidase (SA-β-Gal) staining, lipofuscin accumulation, and secretion of SASP factors12. Memory formation is affected by the notable decline in the levels of proteins associated with synaptic plasticity of axons and dendrites, which occurs with cellular senescence13,14. Because synaptic plasticity is essential for learning and memory, disruptions in synaptic proteins contribute to cognitive impairment. These proteins include GAP-43, SYN, and PSD-95. Undoubtedly, synaptic function is affected by reductions in dendritic numbers and functional abnormalities in the brains of the elderly15.
QFY is a traditional Chinese medicine formula derived from Jing Yue Quan Shu. It is composed of Panax ginseng C.A.Mey (Araliaceae), Polygala tenuifolia Willd (Polygalaceae), Rehmannia glutinosa (Gaertn.) Libosch. ex Fisch. & C. A. Mey (Orobanchaceae), Angelica sinensis (Oliv.) Diels (Apiaceae), Glycyrrhiza uralensis Fisch. ex DC. (Fabaceae), Atractylodes macrocephala Koidz (Asteraceae), Ziziphus jujuba Mill. var. spinosa (Bunge) Hu ex H.F. Chou (Rhamnaceae). Research has demonstrated that QFY significantly ameliorates cognitive dysfunction in rats with diabetes-induced brain injury16. Our previous study found that QFY could improve cognitive learning and memory functions impairment in 5xFAD and APP/PS1 mice. In addition, QFY demonstrated high safety in non-clinical studies, and no obvious acute, subacute, or long-term toxic reactions were observed17,18,19. Analysis of the clinical therapeutic effect of QFY showed that AD patients experienced a significant increase in their capacity for activities of daily living and MMSE scores after QFY treatment20. Following three consecutive days of QFY administration in male Sprague-Dawley rats, ten prototype QFY-derived components, including butylidenephthalide, butylphthalide, 20(S)-ginsenoside Rh1, 20(R)-ginsenoside Rh1, and zingibroside R1, were detected in cerebrospinal fluid21,22. However, the therapeutic mechanism of QFY in AD is still unclear. In this study, we investigated the association between QFY treatment, cellular senescence, and AD-related pathological changes in 5xFAD mice.
Although previous studies have demonstrated the neuroprotective effects of QFY in AD models, the specific involvement of cellular senescence in mediating these effects remains unexplored. Moreover, whether QFY confers cognitive benefits through senescence‑associated synaptic preservation, rather than solely through amyloid‑β reduction, has not been addressed. The present study was therefore designed to investigate whether QFY treatment attenuates cellular senescence and whether this attenuation is associated with improved synaptic plasticity in 5xFAD mice.
Protocolo
Todos los experimentos con animales fueron aprobados por el Comité de Ética de Bienestar Animal Experimental de la Universidad de Medicina Tradicional China de Shandong (SDUTCM20221101001).
Fármacos
El polvo seco en crema de gránulos QFY fue preparado y evaluado por el Centro de Investigación y Desarrollo Houpu de Lunan Pharmaceutical. Donepecil y Memantina fueron adquiridos de Shanghai Yuanye Technology. En este estudio se utilizaron ratones machos 5xFAD con un peso corporal inicial entre 19 y 27 g. La dosis de QFY se derivó de la dosis clínica humana de 43 g/día, lo que equivale a 16,297 g/día después de ajustar por el polvo seco en crema de gránulos QFY. La dosis media para el presente experimento se calculó a partir de la dosis humana clínica (16,297 g/70 kg × 9,1 = 2,11861 g/kg/día). La dosis alta se estableció en el doble de la dosis media (4,24 g/kg/día), y la dosis baja en la mitad de la dosis media (1,06 g/kg/día). Todas las soluciones de fármacos se administraron en un volumen de 0,1 mL por cada 10 g de peso corporal.
Como control positivo, se empleó la administración combinada de donepecil y clorhidrato de memantina. Las dosis se determinaron en referencia a las dosis actuales de uso clínico (10 mg/día y 20 mg/día, respectivamente) y a datos previos de nuestro grupo de investigación, lo que resultó en un régimen de 1,0 mg/kg/día de donepecil más 2,8 mg/kg/día de memantina, obteniendo una dosis combinada total de 3,8 mg/kg/día. La concentración final de la mezcla de donepecil y memantina se preparó como 0,38 mg/mL, calculada como 3,8 mg/kg dividido entre el volumen de administración de 0,1 mL por cada 10 g de peso corporal.
Las soluciones de QFY en dosis baja, media y alta se prepararon de la siguiente manera: 5,3 g, 10,6 g y 21,2 g de polvo seco de QFY se colocaron por separado en vasos de precipitados de 100 mL, se mezclaron con 30 mL de agua purificada con agitación completa, se transfirieron a cilindros graduados y se ajustaron a un volumen final de 50 mL con agua purificada, obteniéndose concentraciones finales de masa de 0,106 g/mL, 0,212 g/mL y 0,424 g/mL, respectivamente. Para el control positivo, se disolvieron 5 mg de donepecil y 14 mg de memantina en agua purificada y se ajustó a un volumen final de 50 mL. A los animales de cada grupo se les administró la solución correspondiente una vez al día mediante gavaje oral.
Animales
Se criaron ratones transgénicos 5xFAD [B6. Cg-Tg (APPSwFlLon, PSEN1* M146L* L286V)6799Vas/Mmjax] en el laboratorio. Todos los animales se mantuvieron en un entorno SPF en la Universidad de Medicina Tradicional China de Shandong, con una temperatura de 22–24 oC, una humedad del 50–60 % y un ciclo luz-oscuridad de 12 h. Se proporcionó alimento y agua a los animales en todo momento.
A la edad de 2,5 meses, ratones macho 5xFAD fueron asignados aleatoriamente a cinco grupos: 5xFAD sin tratamiento, donepecil más memantina, dosis baja de QFY, dosis media de QFY y dosis alta de QFY. Camadas de ratones macho salvajes (WT) emparejados por edad sirvieron como grupo control WT. Los tratamientos se administraron una vez al día durante 220 días. (Figura 1).
Pruebas conductuales
Prueba de fuerza de prehensión
La fuerza del músculo esquelético del miembro anterior de los ratones se midió utilizando un medidor de fuerza de prehensión23. Durante el experimento, el dispositivo de prueba se colocó en posición horizontal, asegurando que el ratón permaneciera paralelo a la superficie de la mesa. Después de encender el dispositivo, el ratón se colocó suavemente sobre la placa de prehensión. Cuando el ratón había agarrado firmemente la placa, se tiró de su cola hacia atrás con una fuerza constante hasta que soltó la placa. Se registró la fuerza máxima de prehensión. Esta medición se repitió tres veces, y el promedio de estos valores se utilizó para determinar la fuerza de prehensión del ratón.
Prueba de marcha
La regularidad de la marcha de los ratones se midió utilizando CatWalk XT. El experimento se dividió en un período de entrenamiento y un período de prueba24. Un día antes, los ratones experimentales se trasladaron a la sala experimental para permitirles adaptarse al nuevo entorno. Durante el período de entrenamiento, los ratones se colocaron en el punto de partida y corrieron a lo largo del canal hasta el punto final. Cada ratón se entrenó tres veces al día. Tras 3 días de entrenamiento (hasta que cada ratón pudiera atravesar rápidamente el canal), los ratones se devolvieron a la jaula. El período de prueba fue igual que el período de entrenamiento, y el software del ordenador analizaba automáticamente cada trayectoria de movimiento. Se mostraban puntos verdes si la trayectoria era válida, puntos naranjas si no lo era, y al menos tres puntos verdes eran necesarios para que cada ratón fuera considerado válido, los cuales fueron analizados mediante el software CatWalkXT 10.0.
Prueba de caja de traslado
La prueba de la caja de transferencia se utilizó para evaluar la capacidad de evitación activa condicional en ratones25. El aparato consistía en una caja de transferencia (18 cm x 18 cm) ubicada dentro de una cámara atenuadora del sonido. El experimento constó de un período de aprendizaje de 4 días seguido por un período de prueba de 1 día. En cada día de aprendizaje, se permitió a los ratones un período de adaptación de 120 s en la caja de transferencia antes de comenzar el entrenamiento. Cada ensayo comenzaba con un estímulo condicionado de 6 s (tono de 70 dB y 1000 Hz combinado con una luz de 500 lux), seguido por una descarga eléctrica en las patas de 3 s y 0,3 mA administrada a través del piso de rejilla, y concluía con un intervalo interensayo de 12 s. Si el ratón pasaba al compartimento opuesto durante el estímulo condicionado, se omitía la descarga y la respuesta se registraba como evitación activa. Si el ratón no cruzaba durante el estímulo condicionado, pero lo hacía durante la descarga eléctrica, se registraba como una respuesta de evitación pasiva. Si el ratón no cruzaba en ningún momento durante el ensayo, se registraba como un fracaso de escape. El entrenamiento se repitió durante 4 días consecutivos con 30 ensayos por día. Durante el período de prueba (día 5), se omitió la descarga eléctrica mientras que todos los demás parámetros permanecieron iguales que en el período de aprendizaje. El número de respuestas de evitación activa se registró como la medida principal del aprendizaje y la memoria.
Laberinto acuático de Morris
La prueba del laberinto acuático de Morris se utilizó para evaluar las capacidades de aprendizaje espacial y memoria de los animales experimentales26. El experimento se realizó en un tanque con un diámetro de 120 cm y una profundidad de 50 cm. El tanque se llenó con agua blanca turbia, y la temperatura se mantuvo a 21 °C. Se instaló una plataforma con un diámetro de 10 cm a 1 cm por debajo de la superficie del agua en uno de los cuadrantes. Alrededor de la piscina se colocaron pistas visuales como puntos de referencia espaciales para los ratones. El proceso de aprendizaje se llevó a cabo durante cuatro días consecutivos, comenzando cada sesión diaria en uno de tres cuadrantes. Las posiciones iniciales variaron de forma pseudoaleatoria entre los cuatro puntos cardinales. En cada ensayo, el procedimiento finalizaba cuando el animal alcanzaba con éxito la plataforma. Se estableció una duración máxima del ensayo de 60 s; si el animal no lograba localizar la plataforma dentro de este tiempo, se le guiaba cuidadosamente hacia ella. Tras alcanzar la plataforma, al animal se le concedía un breve descanso de 10 s antes de devolverlo a su jaula de alojamiento. Una vez finalizado el período de aprendizaje, el período de prueba comienza 24 h después. El día 5, los ratones se colocan desde el cuadrante opuesto a la plataforma. Se registró la latencia de escape durante el período de prueba, el tiempo de movimiento en el cuadrante objetivo y el número de cruces sobre la zona original de la plataforma sumergida.
Prueba de anidación en colonia
Las actividades diarias de los animales experimentales se evaluaron mediante la prueba de anidación en colonia27. El experimento duró 24 h, con tres animales por grupo. Después de la administración del fármaco el mismo día, se prepararon jaulas nuevas forradas con 6 g de papel suave para anidación, y se tomaron fotografías a las 6 h, 12 h y 24 h. Al final del experimento, el papel estaba disperso por toda la jaula, sin mordeduras: 1 punto. Los trozos de papel estaban agrupados hacia un lado de la jaula, pero de forma suelta, sin nidos formados ni desgarros ni dobleces evidentes: 2 puntos; los trozos de papel reunidos y doblados en un nido formado pero relativamente plano, sin desgarros evidentes: 3 puntos; un nido profundo con papel ampliamente desmenuzado recibió una puntuación de 4. Al final del experimento, se recogió cuidadosamente el tejido sin desgarrar (definido como fragmentos de papel que pesaban >0,1 g y que no estaban desmenuzados ni incorporados al nido), se secó al aire y se pesó utilizando una balanza electrónica (precisión: 0,01 g).
Muestreo y recolección de muestras
Solo se recolectaron muestras de los grupos WT, 5xFAD y QFY (2,12 g/kg/d). Tras la asfixia con CO2, se separaron las cabezas, se abrió rápidamente el hemisferio derecho para aislar el hipocampo y la corteza, se enjuagaron con solución salina tamponada con fosfato (PBS) y se colocaron en tubos congelados de 1,5 mL en nitrógeno líquido. Se almacenaron a -80 oC para pruebas bioquímicas. El hemisferio izquierdo se fijó mediante inmersión en paraformaldehído al 4 % durante 24 h, se deshidrató mediante inmersión en etanol absoluto, se incluyó en parafina, se seccionó a 5 µm y se desparafinó para la detección inmunohistoquímica.
Ensayo por inmunoabsorción ligado a enzimas (ELISA)
Se realizaron ELISA para cuantificar los niveles de proteína diana en tejidos cerebrales. Los contenidos de Aβ1–40 y Aβ1–42 en homogenizados de hipocampo se midieron utilizando kits comerciales, mientras que los niveles corticales de GAP-43, PSD-95 y SYN se determinaron mediante kits adquiridos de Jiangsu Enzyme Immunoassay Industry. Todos los procedimientos se llevaron a cabo estrictamente según los protocolos de los fabricantes. Se prepararon series estándar mediante dilución seriada siguiendo las instrucciones del kit. El diseño de la microplaca incluyó pozos en blanco, pozos estándar, pozos de muestras 5xFAD, pozos de muestras tratadas con QFY‑t (2.12 g/kg/d) y pozos de tipo silvestre. Antes de la carga, todas las muestras se diluyeron al doble con el diluyente proporcionado. Los reactivos se añadieron manteniendo la punta de la pipeta perpendicular al fondo del pozo y luego se agitaron suavemente para asegurar una mezcla completa.
Después del sellado de la placa, la incubación inicial se realizó a 37 °C durante 30 min. Durante este periodo, el tampón de lavado se preparó diluyendo el stock concentrado con agua ultrapura en una proporción de 1:29 (1 mL de concentrado por 29 mL de agua). Tras la incubación, se retiró la película de sellado, se descartó el líquido y se secó la placa por absorción. Cada pocillo se llenó entonces con 200 µL de tampón de lavado, se dejó reposar durante 30 s y se vació; el ciclo se repitió 5 veces. Posteriormente, se añadieron 50 µL del reactivo marcado con enzima a todos los pocillos excepto a los blancos, se volvió a sellar la placa y se incubó nuevamente a 37 °C durante 30 min, seguido de un paso de lavado idéntico de cinco ciclos.
Para el desarrollo del color, se añadieron 50 µL de la solución cromógena A a cada pocillo, seguidos de 50 µL de la solución cromógena B, mezclando suavemente tras cada adición. La placa se incubó a 37 °C en la oscuridad durante 10 min. La reacción enzimática se detuvo añadiendo 50 µL de solución de parada por pocillo, lo que convirtió rápidamente el color azul en amarillo. Se midió la absorbancia (densidad óptica) a 450 nm utilizando un lector de microplacas, tomando como referencia los pocillos en blanco; todas las lecturas se realizaron dentro de los 15 min posteriores a la interrupción de la reacción.
Luminex
Los niveles corticales de los factores SASP se midieron utilizando el kit Bio‑Plex Pro Mouse Cytokine 23‑plex Assay, siguiendo todos los procedimientos según las instrucciones del fabricante. Los reactivos se retiraron del almacenamiento a 4 °C y se dejaron equilibrar a temperatura ambiente durante 30 min antes de su uso. Las soluciones patrón se diluyeron en serie para generar una curva patrón de siete puntos, más un pozo en blanco, según el protocolo del kit. Las perlas magnéticas se mezclaron previamente y se diluyeron a la concentración de trabajo recomendada; los anticuerpos de detección se prepararon como soluciones de trabajo; y el concentrado del tampón de lavado se diluyó a 1x con agua desionizada. El conjugado PE‑estreptavidina también se diluyó a 1x utilizando el tampón de dilución suministrado.
Para el ensayo, se añadieron secuencialmente 50 µL de suspensión de perlas, estándares, controles de calidad y muestras de tejido diluidas (5,6 µg/µL) a los pozos designados según el diseño de la placa. Luego, la placa se selló e incubó durante la noche a 4 °C con agitación orbital a 800 rpm. Tras la incubación, las perlas se lavaron tres veces con 200 µL de tampón de lavado por pozo. Posteriormente, se añadieron 50 µL del anticuerpo de detección preparado a cada pozo, y la placa se incubó a temperatura ambiente durante 1 h con agitación a 800 rpm. Después de otros tres ciclos de lavado, se añadieron 50 µL de la solución de trabajo de estreptavidina-PE, y la placa se incubó durante 30 min adicionales a temperatura ambiente en las mismas condiciones de agitación. Se realizó un paso final de lavado (tres veces con 200 µL de tampón de lavado), tras lo cual se añadieron 150 µL de tampón de lavado a cada pozo, y la placa se agitó a temperatura ambiente durante 2 min a 800 rpm antes de leerse en el instrumento Bio-Plex.
Tinción con SA-β-Gal e inmunohistoquímica
La tinción de SA-β-Gal se realizó según las instrucciones del Kit de Tinción de β-Galactosidasa de Senescencia. Tras la tinción de SA-β-Gal, las secciones se sometieron a recuperación de antígenos mediante calentamiento en tampón citrato (pH 6,0). La actividad de peroxidasa endógena se bloqueó incubando las secciones en una solución bloqueadora de peroxidasa durante 10 min a temperatura ambiente. Luego, las secciones se incubaron con un anticuerpo monoclonal de conejo anti‑Aβ₁-₄₂ (1:400) a 4 °C durante la noche. Después del lavado, las secciones se incubaron con un anticuerpo secundario IgG anti-conejo/ratón durante 20 min a temperatura ambiente. Tras un nuevo lavado, la inmunorreactividad se visualizó con DAB durante 2 min. Finalmente, las secciones se deshidrataron, aclararon y montaron con resina neutra para su examen microscópico.
Inmunofluorescencia
Para la tinción por inmunofluorescencia, los cortes en parafina se desparafinizaron en xileno (3 × 15 min) y se rehidrataron mediante una serie de etanol de concentración decreciente (100 %, 95 % y 75 %; 2 × 5 min cada uno). La recuperación de antígenos se realizó sumergiendo los cortes en tampón 1x de citrato sódico a 95 °C durante 30 min, seguido de enfriamiento gradual hasta temperatura ambiente. Tras tres lavados con solución salina tamponada con fosfato y Tween 20 (PBST) (5 min cada uno), los cortes se permeabilizaron y bloquearon con suero normal de cabra al 10 % que contenía Triton X‑100 al 0,3 % durante 90 min a temperatura ambiente. A continuación, los cortes se incubaron con anticuerpos primarios contra p21/CIP1/CDKN1A (1:200) y Aβ₁‑₄₂ (1:400) a 37 °C durante 2 h. Tras cuatro lavados con PBST (5 min cada uno), los cortes se incubaron con anticuerpos secundarios conjugados con Alexa Fluor, compatibles con la especie (1:500), a 37 °C durante 2 h en la oscuridad. Después de lavados adicionales (4 × 5 min en PBST), los cortes se montaron con un medio de montaje antifade que contenía DAPI y se observaron mediante microscopía de fluorescencia.
Tinción de Golgi-Cox
La tinción de Golgi-Cox se realizó utilizando un kit comercial según las instrucciones del fabricante. Las Soluciones A y B se mezclaron 24 h antes del experimento. Después de que los ratones fueron sacrificados, los tejidos cerebrales se extrajeron rápidamente, se enjuagaron con PBS e inmersos en la mezcla de las Soluciones A y B. Los tejidos se almacenaron a temperatura ambiente en la oscuridad durante 6 h, tras lo cual la solución de impregnación se reemplazó con solución fresca y la incubación continuó durante 2 semanas adicionales a temperatura ambiente en la oscuridad (al menos 2 mL de solución de impregnación por tejido cerebral). Luego, los tejidos se transfirieron a la Solución C y se incubaron durante 24 h, después se reemplazó con Solución C fresca y se incubaron durante 7 días adicionales a temperatura ambiente en la oscuridad. Los tejidos cerebrales se seccionaron con un vibrátomo a un grosor de 100 µm. Las secciones se montaron sobre portaobjetos recubiertos con gelatina y se dejaron secar a temperatura ambiente durante 3 días. Los portaobjetos se enjuagaron dos veces con agua destilada (5 min cada vez), luego se sumergieron en una mezcla de Solución D, Solución E y agua destilada (en proporción 1:1:2) durante 15 min. Tras dos enjuagues adicionales con agua destilada (5 min cada uno), las secciones se deshidrataron mediante soluciones alcohólicas graduadas (50%, 75% y 95%; 5 min cada una), seguidas de cuatro enjuagues en etanol absoluto (4 min cada uno) y tres enjuagues en xileno (5 min cada uno). Finalmente, las secciones se cubrieron con medio de montaje. Las imágenes se capturaron con un microscopio y la densidad de espinas dendríticas se cuantificó utilizando ImageJ.
Análisis estadístico
Todos los resultados se expresaron como media ± DE. Los datos se analizaron y representaron gráficamente utilizando GraphPad Prism 8.1.0. Se utilizó la prueba t de Student para comparar dos grupos. Para comparaciones que involucraban múltiples grupos, se utilizó un ANOVA de un solo factor, con comparaciones por pares realizadas mediante la prueba de Dunnett. La significancia estadística se estableció en p < 0,05.
Análisis multivariante y de correlación
Se realizó un análisis de componentes principales (PCA) utilizando GraphPad Prism 8.0.1 para visualizar la agrupación por grupos de los factores SASP (IL-1α, IL-1β, IL-6, IL-17A, IFN-γ, CCL3, CCL4 y CCL5) entre los grupos WT, 5xFAD y QFY (2,12 g/kg/día) (n = 8 por grupo). El gráfico de puntuaciones se generó en función de los dos primeros componentes principales. No se aplicó ninguna transformación de datos antes del PCA. Se realizó un análisis de correlación de Pearson para evaluar las relaciones lineales entre los factores SASP y las proteínas sinápticas (PSD-95, GAP-43 y SYN), así como entre Aβ₁₋₄₀, Aβ₁₋₄₂ y la relación Aβ₁₋₄₂/Aβ₁₋₄₀. El análisis se llevó a cabo utilizando GraphPad Prism, con un umbral de significancia bilateral de p < 0,05. Se generaron matrices de correlación y un mapa de calor para visualizar la intensidad y dirección de las asociaciones.
Resultados
Administration of QFY enhances learning and memory in 5xFAD mice
After QFY administration, a shuttle box test was conducted to assess the conditional active avoidance response of mice (Figure 2A–C). The results showed the number of active avoidances on days 1-4 (Figure 2A, p < 0.05) and the area under the curve (AUC) of active avoidance (Figure 2B, p < 0.01) during the learning period, and the number of active avoidances (Figure 2C, p < 0.05) during the test period were significantly reduced in 5xFAD mice compared with WT mice. The administration of donepezil and memantine significantly increased the number of active avoidances on day 2 during the learning period in 5xFAD mice (Figure 2A, p < 0.05). The administration of QFY significantly increased the number of active avoidances on days 3 and 4 (Figure 2A, p < 0.05), and the AUC of active avoidance (Figure 2B, p < 0.01 in QFY high-dose group) during the learning period, and the number of active avoidances (Figure 2C, p < 0.05 in QFY low-dose group) during the test period. This data indicates that the ability to perform an active avoidance response was impaired in 5xFAD mice, whereas QFY administration improved it.
We used the Morris water maze to evaluate spatial learning and memory in mice. The results showed (Figure 2D–I) that the escape latency on the first day (Figure 2D, p < 0.05) and AUC of escape latency (Figure 2E, p < 0.01) during learning period, escape latency in testing period (Figure 2F, p < 0.05) were obviously increased in 5xFAD mice compared with WT mice, the number of platform crossings (Figure 2H, p < 0.05) was reduced significantly in 5xFAD mice compared with WT mice. The administration of donepezil and memantine significantly reduced the AUC of escape latency during the learning period (Figure 2E, p < 0.05) and during the testing period (Figure 2F, p < 0.01). The treatment of QFY significantly reduced the AUC of escape latency during the learning period (Figure 2E, p < 0.05 in QFY low-dose and high-dose groups, p < 0.01 in QFY medium-dose group) and escape latency (Figure 2F, p < 0.01 in three QFY groups) during the testing period, and also prolonged the time in the target quadrant (Figure 2G, p < 0.05 in low-dose QFY group), increased the number of crossings (Figure 2H, p < 0.05 in low-dose QFY), evidently. These results indicate spatial learning and memory deficits in 5xFAD mice and that QFY treatment ameliorated these deficits.
Administration of QFY alleviates aging in 5xFAD mice
After QFY administration, gait, grip strength, and colony nesting tests were used to evaluate mouse aging. The results (Figure 3A) showed that, compared with WT mice, run duration, run maximum variation, and the step sequence regularity index decreased significantly in 5xFAD mice (p < 0.05). Run average speed (Figure 3A, p < 0.05), right forelimb (RF) stand index (Figure 3A, p < 0.01), left hindlimb (LH) stand index (Figure 3A, p < 0.05), RF max contact (Figure 3A, p < 0.01), right hindlimb (RH) swing speed (Figure 3A, p < 0.05), LH swing speed (Figure 3A, p < 0.01) and duty cycle (FIGURE 3A, p < 0.05) in 5xFAD was significant increased. The treatment of donepezil and memantine increased RH, stand index left forelimb (LF) stand index (Figure 3A, p < 0.05) and decreased LH duty cycle (Figure 3A, p < 0.01), also reduced RH initial dual stance (Figure 3A, p < 0.05) and LH terminal dual stance (Figure 3A, p < 0.01) of 5xFAD mice. The administration of QFY reduced LH duty cycle (Figure 3A, p < 0.05 in QFY low- and p < 0.01 in medium-dose group), RH initial dual stance (Figure 3A, p < 0.05 in QFY low-dose and high-dose group, p < 0.01 in QFY medium-dose group) and LH terminal dual stance (Figure 3A, p < 0.05 in QFY low-dose group, p < 0.01, in QFY medium- and high-dose group), also increased the run duration (Figure 3A, p < 0.05 in QFY low-and medium-dose group), run maximum variation (Figure 3A, p < 0.05 in QFY low- and medium-dose group), step sequence regularity index (Figure 3A, p < 0.01 in QFY low- and medium-dose group), LF stand index (Figure 3A, p < 0.05 in QFY low-dose group) and LH stand index (Figure 3A, p < 0.05 in QFY low-dose group) of 5xFAD mice. These results indicate that 5xFAD mice exhibited an abnormal gait, which QFY treatment restored.
After QFY administration, a grip-strength test was conducted to assess forelimb strength. The experimental data (Figure 3B) show that the forelimb strength of the 5xFAD mice was significantly weaker than that of WT mice (p < 0.01). The administration of donepezil and memantine (Figure 3B, p < 0.01), QFY (Figure 3B, p < 0.01, in QFY low-dose and high-dose groups) significantly increased the grip strength of the 5xFAD mice. These studies suggest that forelimb strength in 5xFAD mice has been enhanced by QFY treatment.
The results of colony nesting test showed (Figure 3C–G) that the nesting score of the 5xFAD mice were significantly lower than the WT mice at 6 h (Figure 3C, p < 0.05), 12 h and 24 h after the start of colony nesting (Figure 3DE, p < 0.01), and the untorn tissue weight was significantly higher of 5xFAD mice (Figure 3F, p < 0.01). Administration with donepezil and memantine just decreases the untorn tissue weight (Figure 3F, p < 0.01). The treatment with QFY increased nesting scores at 12 h (Figure 3D; QFY p < 0.05 in the QFY medium-dose group) and 24 h (Figure 3E; QFY p < 0.05 in the QFY low- and medium-dose groups). Moreover, the untorn tissue weight was significantly lower in the QFY low- and medium-dose groups (Figure 3F, p < 0.01) and in the QFY high-dose group (Figure 3F, p < 0.05). These results indicated that QFY treatment enhanced daily activity in 5xFAD mice.
Treatment of QFY reduces the synaptic structure damage in the cerebral cortex of 5xFAD mice
After QFY treatment, the cerebral cortex of mice was collected to measure the protein levels of GAP-43, PSD-95, and SYN by ELISA. The results (Figure 4A–C) showed that the contents of GAP-43 (Figure 4A, p < 0.05), PSD-95 (Figure 4B, p < 0.01), and SYN (Figure 4C, p < 0.01) in the cerebral cortex of the 5xFAD mice were significantly lower than those in WT mice. The protein content of GAP-43 (Figure 4A, p < 0.05), PSD-95 (Figure 4B, p < 0.01), and SYN (Figure 4C, p < 0.01) significantly increased after the treatment of QFY. The results of Golgi-Cox staining (Figure 4D) showed that the length of dendrites in the cerebral cortex of the 5xFAD mice was shorter (Figure 4G, p < 0.05) than that of WT mice. The treatment with QFY tended to increase the length, number, and density of dendritic spines.
Treatment of QFY reduced Aβ deposition and cellular senescence in the brains of 5xFAD mice
Aβ deposition and cellular senescence play important roles in AD pathogenesis. We used a combination of SA-β-Gal staining and Aβ immunohistochemistry to assess co-localization between SA-β-Gal and Aβ plaques. The result showed there was a large amount of SA-β-Gal aggregation and Aβ plaque deposition in the cerebral cortex of 5xFAD mice (Figure 5A), while only a few SA-β-Gal aggregations and Aβ plaque depositions were found after QFY treatment (Figure 5A). In addition, there was co-localization of SA-β-Gal and Aβ plaque.
Immunofluorescence assays revealed that 5xFAD mice brains were heavily laden with both Aβ plaques and p21-positive cells (Figure 5B,C). Administration of QFY significantly curtailed cortical Aβ plaque and attenuated p21 expression in these animals (Figure 5B,C). The results of ELISA showed that compared with WT mice, the content of Aβ1-42 and the ratio of Aβ1-42/ AΒ1-40 was significantly increased in the hippocampus of 5xFAD mice (Figure 5D,F, p < 0.01), while the treatment of QFY reduced them obviously (Figure 5D, p < 0.01; Figure 5F, p < 0.05, respectively).
Senescent cells typically secrete large amounts of SASP factors. The results of Luminex analysis showed the contents of IL-1α (Figure 5G, p < 0.05), IL-1β (Figure 5H, p < 0.01), IL-17A (Figure 5J, p < 0.05), CCL3 (Figure 5K, p < 0.01), CCL4 (Figure 5L, p < 0.01), CCL5 (Figure 5M, p < 0.01) and IFN-γ (Figure 5N, p < 0.01) were significantly increased in cortex of 5xFAD mice. QFY treatment decreased the contents of IL-1α (Figure 5G, p < 0.05), IL-1β (Figure 5H, p < 0.05), IL-6 (Figure 5I, p < 0.05), IL-17A (Figure 5J, p < 0.05), and IFN-γ (Figure 5N, p < 0.01) in the cortex significantly.
These data indicate that cellular senescence appeared in the brain of 5xFAD mice, while the treatment of QFY reduced cellular senescence in 5xFAD mice.
Effects of QFY ameliorating cognitive impairment and reducing the aging of brain cells in 5xFAD mice correlated with synaptic damage
Principal component analysis (PCA) was performed to assess the overall SASP expression profiles (IL‑1α, IL‑1β, IL‑6, IL‑17A, CCL3, CCL4, CCL5, and IFN‑γ) among WT, 5xFAD, and QFY‑treated groups (Figure 6A). The first two principal components accounted for 44.11% and 23.46% of the total variance, respectively. As shown in the PCA score plot (Figure 6A), the WT group was clearly separated from the 5xFAD group. Notably, the QFY‑treated group showed an intermediate position, clustering more closely with the WT group than with the 5xFAD group, suggesting partial normalization of the SASP profile after QFY treatment. Statistical analysis of PC1 scores (Figure 6B) revealed that the 5xFAD group exhibited significantly higher PC1 values than the WT group. PC2 scores (Figure 6C) also showed significant differences between the 5xFAD and WT groups. Loading plot analysis (Figure 6D) indicated that IL‑1α, IL‑1β, and IFN‑γ were the major contributors to PC1, whereas IL‑6 and CCL3 contributed more substantially to PC2.
We performed Pearson correlation analyses between IL-1α, IL-1β, and IFN-γ and the contents of PSD-95, GAP-43, and SYN in the cortex, as well as the contents of Aβ1-40 and Aβ1-42 and the ratio of Aβ1-42/Aβ1-40 in the hippocampus, and developed heatmaps to visualize the interplay between synaptic-associated protein and SASP function. IL-1α, IL-1β, and IFN-γ levels positively correlated with the contents of Aβ1-40 and Aβ1-42 and the ratio of Aβ1-42/Aβ1-40 (Figure 6E, p < 0.05), and negatively correlated with the content of SYN protein. The levels of IL-1α and IFN-γ were negatively correlated with the content of GAP-43 protein, and IL-1β was negatively correlated with PSD-95 protein (Figure 6E, p < 0.05). These data suggest that IL-1α, IL-1β, and IFN-γ are major contributors to synaptic dysfunction.
Data Availability:
All raw data supporting the findings of this study have been deposited in Figshare and are accessible via the private reviewer link: https://doi.org/10.6084/m9.figshare.33208029.
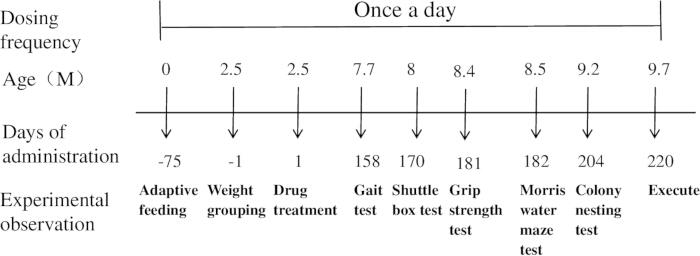
Figure 1: Schematic diagram of the experimental procedure. Please click here to view a larger version of this figure.
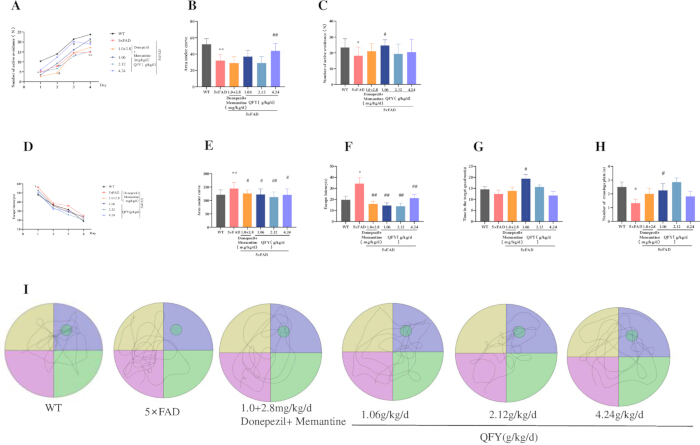
Figure 2: QFY administration improves learning and memory performance in 5xFAD mice. (A–C) Shuttle box test: (A) Number of active avoidance responses during the learning period. (B) Area under the curve (AUC) for active avoidance responses during the learning period. (C) Number of active avoidance responses during the test period. (D–I) Morris water maze test: (D) Escape latency during the learning period. (E) AUC for escape latency during the learning period. (F) Escape latency during the test period. (G) Time spent in the target quadrant. (H) Number of platform crossings. (I) Movement trajectories during the test period. Mean ± SD, n = 11–20 per group, with exact n indicated in each bar. * = p < 0.05, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5xFAD; One-way ANOVA followed by Dunnett's multiple comparisons test. Please click here to view a larger version of this figure.
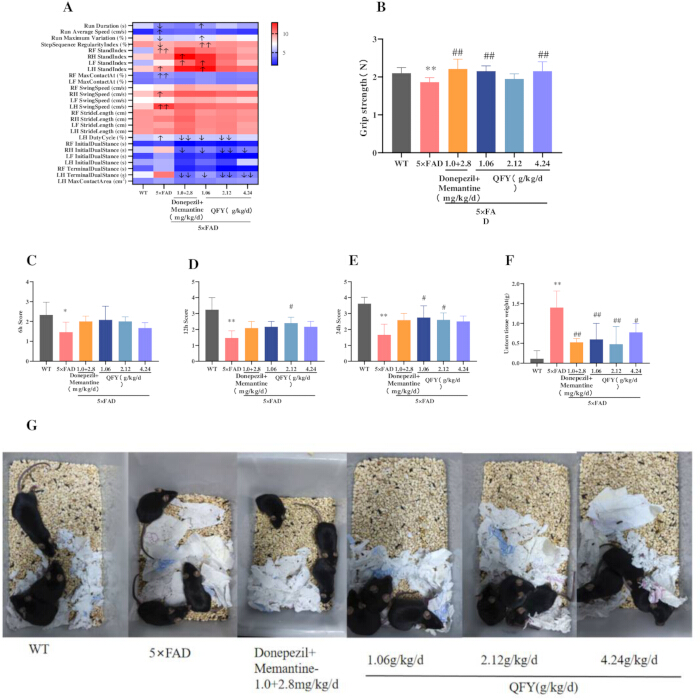
Figure 3: Effects of QFY administration on aging-associated functional measures in 5xFAD mice. (A) Gait heat map. The color scale is based on row‑wise Z‑score normalization, where red indicates values above the group mean, blue indicates values below the group mean, and white represents the mean level. (B) Grip strength test. (C–G) Colony nesting test: (C) Nesting score 6 h, (D) Nesting score at 12 h. (E) Nesting score at 24 h. (F) Untorn tissue weight. (G) Representative images of nests at 24 h. Mean ± SD, n = 3 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5x FAD, One-way ANOVA followed by Dunnett's multiple comparisons test. Please click here to view a larger version of this figure.
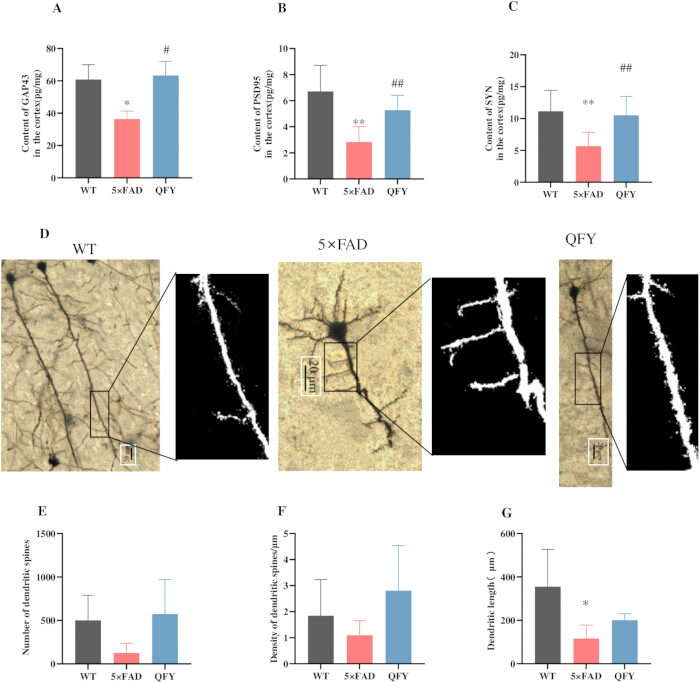
Figure 4: QFY attenuates synaptic structural alterations in the cerebral cortex of 5xFAD mice. (A) Content of GAP-43 in the cortex. (B) Content of PSD-95 in the cortex. (C) Content of SYN in the cortex. (D) Golgi-Cox staining. (E) Number of dendritic spines. (F) Density of dendritic spines. (G) Dendritic length. Mean ± SD, n = 3–14 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5xFAD, Student`s t-test. Please click here to view a larger version of this figure.
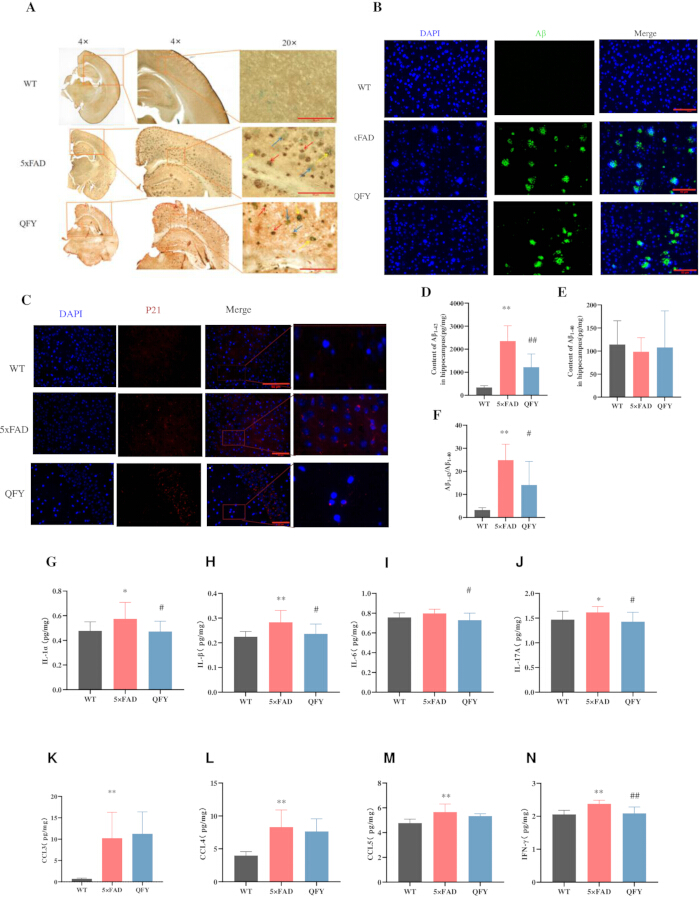
Figure 5: QFY reduced Aβ deposition and cell senescence in the brains of 5xFAD mice. (A) Combined SA-β-Gal staining and Aβ immunohistochemistry, SA-β-Gal (green, blue arrow), Aβ (brown, red arrow), SA-β-Gal + Aβ (yellow arrow), n = 3, Scale bar = 10 µm, 20x objective. (B) Immunofluorescence images showing Aβ in the cerebral cortex after treatment of QFY, n = 3, Scale bar = 50 µm, 40x objective. (C) Immunofluorescence images showing p21in the cerebral cortex after treatment of QFY. n = 1, Scale bar = 50 µm, 40x objective. (D–F) ELISA. (D) Content of Aβ1-42 in the hippocampus. (E) Content of Aβ1-40 in the hippocampus. (F) Aβ1-42/ Aβ1-40. (G–N) Luminex cytokine analysis. (G) Content of IL-1α in the cortex. (H) Content of IL-1β in the cortex. (I) Content of IL-6 in the cortex. (J) Content of IL-17A in the cortex. (K) Content of CCL3 in the cortex. (L) Content of CCL4 in the cortex. (M) Content of CCL5 in the cortex. (N) Content of IFN-γ in the cortex. Mean ± SD, n = 8–14 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student’s t-test; # = p < 0.05 ## = p < 0.01, vs 5xFAD, Student’s t-test. Please click here to view a larger version of this figure.
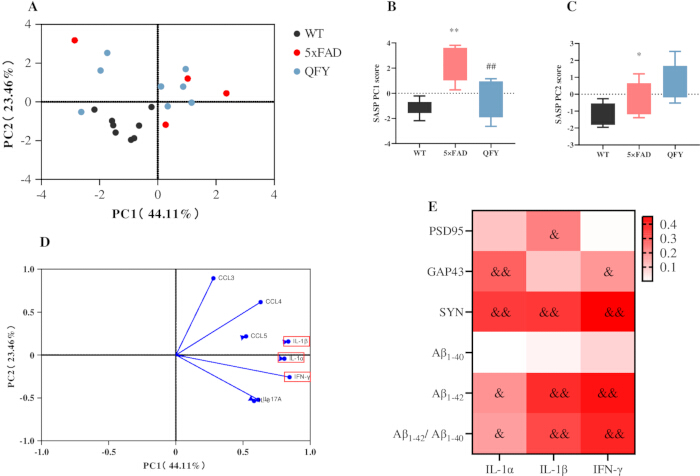
Figure 6: Principal component and correlation analyses of SASP factors, synaptic proteins, and Aβ levels in 5xFAD mice following QFY treatment. (A–D) Principal component analysis (PCA) of SASP factors. (A) PCA score plot. (B) PC1 scores. (C) PC2 scores. (D) PCA loading plot. (E) Heatmap generated from the correlation analysis between the SASP and PSD-95, GAP-43, SYN, Aβ1-40, Aβ1-42, and the ratio of Aβ1-42/Aβ1-40. Colors closer to red indicate higher R-values, while colors closer to white indicate lower R-values. Mean ± SD; n = 8 per group. * = p < 0.05, ** = p < 0.01,vs WT; ## = p < 0.01, vs 5xFAD, & = p < 0.05, && = p < 0.01, indicates a significant correlation. Pearson correlation analysis was used to assess associations between variables. Please click here to view a larger version of this figure.
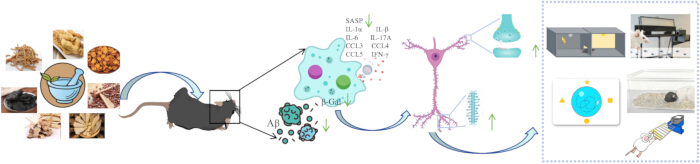
Figure 7: Proposed model of the effects of QFY on age-related cognitive decline and cellular senescence-associated phenotypes in 5xFAD mice. Please click here to view a larger version of this figure.
Discusión
La plasticidad sináptica neuronal desempeña un papel clave en la función cognitiva. En los cerebros de pacientes con AD, los depósitos de Aβ se extienden a través de diferentes regiones, causando directamente daño estructural sináptico, pérdida de sinapsis excitadoras y deterioro cognitivo28. La GAP-43 (una proteína de membrana presináptica)29, la PSD-95 (una proteína de andamiaje ubicada en la membrana postsináptica)30 y la SYN (una fosfoproteína asociada a vesículas sinápticas)31 desempeñan un papel importante en la plasticidad estructural sináptica y en la patogénesis del AD32. El presente estudio encontró que el tratamiento con QFY mejoró el aprendizaje y la memoria, redujo la carga de placas de Aβ y restauró la estructura sináptica al aumentar el número de espinas dendríticas y los niveles proteicos de GAP-43, PSD-95 y SYN en los cerebros de ratones 5xFAD.
El envejecimiento es un factor de riesgo crucial en el desarrollo de la EA y promueve la producción de Aβ. El sello distintivo del envejecimiento incluye la disminución de la fuerza muscular, el desequilibrio en la marcha y la alteración de las actividades básicas de la vida diaria33,34. Se ha informado que la senescencia celular, caracterizada por la SA-β-Gal, se asocia con el envejecimiento y con el inicio de enfermedades relacionadas con la edad, como la EA11,35. La eliminación selectiva de las células senescentes prolonga la longevidad saludable y retrasa las enfermedades relacionadas con la edad36. La eliminación de células senescentes mediante enfoques genéticos o farmacológicos mejoró la deposición de Aβ y mejoró la función de aprendizaje y memoria en ratones modelo de EA37. La terapia combinada con Dasatinib y Quercetina (D+Q) reduce la senescencia de las células progenitoras de oligodendrocitos, alivia la neuroinflamación, disminuye la actividad de las placas de Aβ y de la SA-β-Gal, previene la acumulación de Aβ y el deterioro cognitivo en ratones APP/PS137. El tratamiento con memantina redujo significativamente la actividad de la SA-β-Gal en los cerebros de ratones SAMP8 y mejoró el aprendizaje y la memoria espacial; el mismo efecto se observó con la combinación de memantina y donepezilo38. El presente estudio encontró que el tratamiento con QFY mejoró la marcha, fortaleció los músculos de las extremidades anteriores y mejoró las capacidades en las actividades básicas de la vida diaria, particularmente al aliviar la senescencia celular, tal como se indica mediante la tinción de SA-β-Gal en los cerebros de ratones 5xFAD.
Tanto los pacientes con AD como los modelos animales exhiben astrocitos, microglía, células endoteliales y neuronas senescentes39,40. La secreción del SASP, que incluye quimioquinas y citoquinas inflamatorias, es una característica distintiva de la senescencia celular; una secreción excesiva de SASP puede provocar inflamación crónica, lo que resulta en daño tisular y senescencia celular41. La secreción continua del SASP, que incluye IL-1α, IL-1β, IL-6, IL-8, IFN-γ, CCL2, CCL3, CCL4, CCL5, CXCL1, etc., promueve la inflamación crónica, la senescencia paracrina de células normales, cambios en el metabolismo celular y la regulación epigenética, y la producción continua de Aβ42,43,44,45. Los niveles de IL-1α, IL-1β, IL-6, IL-17A e IFN-γ están significativamente aumentados en los cerebros de pacientes con AD y modelos de AD46. Estudios han demostrado que D+Q puede inhibir la secreción de factores inflamatorios, incluyendo IL-1α e IFN-γ, y reducir las placas de Aβ y la actividad de SA-β-Gal en ratones APP/PS137. El estudio encontró que QFY redujo la expresión de varios factores del SASP, incluyendo IL-1α, IL-1β, IL-6, IL-17A e IFN-γ, atenuando así el fenotipo inflamatorio senescente.
p21 pertenece a la familia CIP/KIP de inhibidores de la quinasa dependiente de ciclina y actúa como un freno proximal en los complejos ciclina-CDK2/4, induciendo así la detención en G1/G2 cuando ocurren estrés celular, daño en el ADN y envejecimiento. Un aumento sostenido en la abundancia de p21 se interpreta ampliamente como la entrada en un programa senescente estable47,48. Datos emergentes revelan que los ratones 5xFAD albergan una carga cerebral inusualmente alta de p21, la cual se atenúa notablemente tras el tratamiento conjunto con D+Q49. En consonancia con esto, el presente estudio encontró que la administración de QFY redujo significativamente las placas corticales de Aβ y atenuó la expresión de p21 en estos animales.
En conjunto, estos hallazgos sugieren una asociación entre el tratamiento con QFY y mejoras en el deterioro cognitivo relacionado con la edad y en los fenotipos de senescencia celular en ratones 5xFAD, junto con una reducción del daño estructural sináptico (Figura 7).
Se deben reconocer varias limitaciones de este estudio. En primer lugar, solo se utilizaron ratones 5xFAD macho, y aún queda por determinar si los efectos observados dependen del sexo. En segundo lugar, aunque los datos actuales demuestran fuertes asociaciones entre la atenuación de fenotipos relacionados con la senescencia y la mejora cognitiva, no realizamos experimentos de intervención mecanicista directos para establecer causalidad. En tercer lugar, la relevancia traslacional de los hallazgos a la enfermedad de Alzheimer humana está limitada por las diferencias entre especies y la falta de datos clínicos de farmacocinética. Se justifican estudios futuros que incluyan animales hembra, intervenciones específicas para la senescencia y ensayos clínicos bien diseñados para ampliar estos hallazgos.
Divulgaciones
Los autores no tienen conflictos de intereses que declarar.
Agradecimientos
Este trabajo fue apoyado por subvenciones de la Fundación Nacional de Ciencias Naturales de China (82205078, 82374062), la Fundación de Ciencias Naturales de la Provincia de Shandong (ZR2026MS1293, ZR2021QH157), el Proyecto de Ciencia y Tecnología de la Medicina Tradicional China de la Provincia de Shandong (M20251730), los Proyectos de Ciencia y Tecnología de la Región Autónoma de Xizang, China (XZ202601ZY0167), y el Programa de Orientación para la Innovación Tecnológica de la Provincia de Shandong (Fondo para el Desarrollo Científico y Tecnológico Local Guiado por el Gobierno Central) (YDZX2023137), con el proyecto titulado «Desarrollo e Investigación de la Industrialización de las Cápsulas Recubiertas Entéricas Tongli como Medicina Tradicional China Nueva de Clase 1».
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Fármacos | |||
| Donepezil | Shanghai Yuanye Technology | lot.J15HB188725 | |
| Memantina | Shanghai Yuanye Technology | lote. J21HB189391 | |
| Qi-fu-yin | Centro de Investigación y Desarrollo Houpu de Lunan Pharmaceutical | lote. 2209001 | |
| Pruebas conductuales | |||
| CatWalk XT | Noldus | software CatWalkXT 10.0 | |
| Medidor de fuerza de prensión | Bileadbiosci | BLD-ZL-20 | |
| Laberinto acuático de Morris | Shanghai Xinruan Information Technology Co., Ltd | 120 cm | |
| Caja de tránsito | Shanghai Xinruan Information Technology Co., Ltd | XR-XC404 | |
| Anticuerpos | |||
| Anti-Aβ1-42 anticuerpo | Abcam | Cat# ab201061 | |
| Anticuerpo anti-p21/CIP1/CDKN1A | Novus Biologicals | Cat# NBP3-15661 | |
| Kits de ensayo | |||
| Aβ1-40 kit de ELISA | Thermo Fisher Scientific | Cat. nº KHB3482 | |
| Aβ1-42 kit de ELISA | Thermo Fisher Scientific | Cat. nº KHB3442 | |
| Kit de ensayo Bio-Plex Pro Mouse Cytokine 23-plex | R&Sistemas D | Cat# LXLBM23-1 | |
| kit ELISA de GAP-43 | Jiangsu Enzyme Immunoassay Industry | Cat# MM-47506M1 | |
| Kit de tinción Golgi-Cox | BeiJing Biolead Biology Sci & Tech Co | Cat. nº PK401 | |
| Kit ELISA de PSD-95 | Industria Jiangsu de Inmunoensayo Enzimático | Cat# MM-45953M1 | |
| Senescencia β-Kit de tinción de galactosidasa | Beyotime | Cat. nº C0602 | |
| Kit ELISA de sínaptofisina (SYN) | Industria Jiangsu de Inmunoensayo Enzimático | Cat# MM-46504M1 | |
| Productos químicos & Reactivos | |||
| Anticuerpos IgG anti-conejo y anti-ratón (anticuerpo secundario) | Inicio | Cat# S0C1001 | |
| cromógeno de DAB | Inicio | Cat# S0C1001 | |
| Software | |||
| CatWalk XT | Noldus Information Technology | Versión 10.0 | |
| ImageJ | Institutos Nacionales de la Salud (NIH) | Versión 1.53 |
Referencias
- Joe E, Ringman JM. Cognitive symptoms of Alzheimer's disease: clinical management and prevention. BMJ. 2019;367:l6217.
- Scheff SW, et al. Synaptic alterations in CA1 in mild Alzheimer disease and mild cognitive impairment. Neurology. 2007;68(18):1501-8.
- Muralidar S, et al. Role of tau protein in Alzheimer's disease: the prime pathological player. Int J Biol Macromol. 2020;163:1599-617.
- Hardy JA, Higgins GA. Alzheimer's disease: the amyloid cascade hypothesis. Science. 1992;256(5054):184-5.
- Calsolaro V, Edison P. Neuroinflammation in Alzheimer's disease: current evidence and future directions. Alzheimers Dement. 2016;12(6):719-32.
- Campisi J. Senescent cells, tumor suppression, and organismal aging: good citizens, bad neighbors. Cell. 2005;120(4):513-22.
- Yao R. An in-silico assessment suggests the potential effects of goji (fruit of Lycium barbarum L.) against aging-related diseases. Food Med Homol. 2025;2(2):9420036.
- Campisi J, d'Adda di Fagagna F. Cellular senescence: when bad things happen to good cells. Nat Rev Mol Cell Biol. 2007;8(9):729-40.
- Salminen A, Kaarniranta K, Kauppinen A. ER stress activates immunosuppressive network: implications for aging and Alzheimer's disease. J Mol Med (Berl). 2020;98(5):633-50.
- Mirabella F, et al. Prenatal interleukin 6 elevation increases glutamatergic synapse density and disrupts hippocampal connectivity in offspring. Immunity. 2021;54(11):2611-31.e8.
- Baker DJ, Petersen RC. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. J Clin Invest. 2018;128(4):1208-16.
- Lucas V, Cavadas C, Aveleira CA, Hook V. Cellular senescence: from mechanisms to current biomarkers and senotherapies. Pharmacol Rev. 2023;75(4):675-713.
- Bloss EB, et al. Evidence for reduced experience-dependent dendritic spine plasticity in the aging prefrontal cortex. J Neurosci. 2011;31(21):7831-9.
- Ye XS, et al. The food and medicine homologous Chinese medicine from Leguminosae species: a comprehensive review on bioactive constituents with neuroprotective effects on nervous system. Food Med Homol. 2025;2(2):9420033.
- Dickstein DL, Weaver CM, Luebke JI, Hof PR. Dendritic spine changes associated with normal aging. Neuroscience. 2013;251:21-32.
- Wang SY, et al. Qifu-Yin attenuates AGEs-induced Alzheimer-like pathophysiological changes through the RAGE/NF-kappaB pathway. Chin J Nat Med. 2014;12(12):920-8.
- Yang X, et al. Qi-fu-yin attenuated cognitive disorders in 5xFAD mice of Alzheimer's disease animal model by regulating immunity. Front Neurol. 2023;14:1183764.
- Xiao QY, et al. Effects of Qi-Fu-Yin on aging of APP/PS1 transgenic mice by regulating the intestinal microbiome. Front Cell Infect Microbiol. 2023;12:1048513.
- Chen K, et al. Safety and toxicity of Qi-Fu Yin, a classical traditional Chinese medicine prescription: a nonclinical research. J Appl Toxicol. 2025;45(9):1811-38.
- Wang L, Qiao P, Yue L, Sun R. Is Qi Fu Yin effective in clinical treatment of dementia? A meta-analysis of 697 patients. Medicine (Baltimore). 2021;100(5):e24526.
- Li H, et al. Identification of chemical components of Qi-Fu-Yin and its prototype components and metabolites in rat plasma and cerebrospinal fluid via UPLC-Q-TOF-MS. Evid Based Complement Alternat Med. 2021;2021:1995766.
- Lei X, et al. Integrating network pharmacology and component analysis to study the potential mechanisms of Qi-Fu-Yin Decoction in treating Alzheimer's disease. Drug Des Devel Ther. 2023;17:2841-58. doi:10.2147/DDDT.S402624.
- Takeshita H, et al. Modified forelimb grip strength test detects aging-associated physiological decline in skeletal muscle function in male mice. Sci Rep. 2017;7:42323.
- Caggiano V, et al. Midbrain circuits that set locomotor speed and gait selection. Nature. 2018;553(7689):455-60.
- Ehret B, et al. Population-level coding of avoidance learning in medial prefrontal cortex. Nat Neurosci. 2024;27(9):1805-15.
- Curdt N, et al. Search strategy analysis of Tg4-42 Alzheimer mice in the Morris water maze reveals early spatial navigation deficits. Sci Rep. 2022;12:5451.
- Deacon RMJ. Assessing nest building in mice. Nat Protoc. 2006;1(3):1117-9.
- Tu S, Okamoto SI, Lipton SA, Xu H. Oligomeric Aβ-induced synaptic dysfunction in Alzheimer's disease. Mol Neurodegener. 2014;9:48.
- Benowitz LI, Routtenberg A. GAP-43: an intrinsic determinant of neuronal development and plasticity. Trends Neurosci. 1997;20(2):84-91.
- Dore K, et al. PSD-95 protects synapses from β-amyloid. Cell Rep. 2021;35(9):109194.
- Kokotos AC, et al. Synaptophysin sustains presynaptic performance by preserving vesicular synaptobrevin-II levels. J Neurochem. 2019;151(1):28-37.
- Martin SB, et al. Synaptophysin and Synaptojanin-1 in Down syndrome are differentially affected by Alzheimer's disease. J Alzheimers Dis. 2014;42(3):767-75.
- Namioka N, et al. Oxidative stress and inflammation are associated with physical frailty in patients with Alzheimer's disease. Geriatr Gerontol Int. 2016;17(6):913-8.
- Kojima G, Liljas A, Iliffe S, Walters K. Prevalence of frailty in mild to moderate Alzheimer's disease: a systematic review and meta-analysis. Curr Alzheimer Res. 2017;14(12):1256-63.
- Dimri GP, et al. A biomarker that identifies senescent human cells in culture and in aging skin in vivo. Proc Natl Acad Sci U S A. 1995;92(20):9363-7.
- Baker DJ, et al. Naturally occurring p16Ink4a-positive cells shorten healthy lifespan. Nature. 2016;530(7589):184-9.
- Zhang P, et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nat Neurosci. 2019;22(5):719-28.
- Ota H, Ogawa S, Ouchi Y, Akishita M. Protective effects of NMDA receptor antagonist, memantine, against senescence of PC12 cells: a possible role of nNOS and combined effects with donepezil. Exp Gerontol. 2015;72:109-16.
- Herdy JR, et al. Increased post-mitotic senescence in aged human neurons is a pathological feature of Alzheimer's disease. Cell Stem Cell. 2022;29(12):1637-52.e6.
- Hu Y, et al. Replicative senescence dictates the emergence of disease-associated microglia and contributes to Abeta pathology. Cell Rep. 2021;35(10):109228.
- Tchkonia T, et al. Cellular senescence and the senescent secretory phenotype: therapeutic opportunities. J Clin Invest. 2013;123(3):966-72.
- Guerrero A, De Strooper B, Arancibia-Cárcamo IL. Cellular senescence at the crossroads of inflammation and Alzheimer's disease. Trends Neurosci. 2021;44(9):714-27.
- Acosta JC, et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nat Cell Biol. 2013;15(8):978-90.
- Wang B, Han J, Elisseeff JH, Demaria M. The senescence-associated secretory phenotype and its physiological and pathological implications. Nat Rev Mol Cell Biol. 2024;25(12):958-78.
- Gaikwad S, Senapati S, Haque MA, Kayed R. Senescence, brain inflammation, and oligomeric tau drive cognitive decline in Alzheimer's disease: evidence from clinical and preclinical studies. Alzheimers Dement. 2024;20(1):709-27.
- Si Z, Sun L, Wang X. Evidence and perspectives of cell senescence in neurodegenerative diseases. Biomed Pharmacother. 2021;137:111327.
- Chen X, et al. Senescence-like changes induced by expression of p21Waf1/Cip1 in NIH3T3 cell line. Cell Res. 2002;12(3-4):229-33.
- Engeland K. Cell cycle regulation: p53-p21-RB signaling. Cell Death Differ. 2022;29(5):946-60.
- Choi I, et al. Autophagy enables microglia to engage amyloid plaques and prevents microglial senescence. Nat Cell Biol. 2023;25(7):963-74.