Este protocolo describe el registro electrofisiológico extracelular de señales de marcapasos para el nado evocadas visualmente a partir del ropalio aislado de la medusa cubo Tripedalia cystophora, proporcionando una lectura cuantitativa del comportamiento de evitación de obstáculos para una investigación precisa del procesamiento de la información visual y la integración sensoriomotora.
Artículo de método
Grabación electrofisiológica extracelular de señales de pausas de nado evocadas visualmente a partir del rópalio aislado de Tripedalia cystophora
En este artículo
Resumen
Resumen
La medusa caja Tripedalia cystophora combina ojos con lentes formadores de imagen y comportamientos guiados visualmente bien caracterizados con un sistema nervioso rópalo manejable de aproximadamente 1000 neuronas, lo que la convierte en un modelo emergente para la investigación a nivel de sistemas del procesamiento de información visual y la integración sensoriomotora. Las neuronas marcapasos natatorias generan comandos motores que controlan directamente las contracciones de la campana, y estas señales pueden registrarse extracelularmente del nervio del tallo epidérmico de un rópalo aislado, proporcionando un indicador cuantitativo de la salida motora inducida visualmente. La intensidad de la respuesta del marcapasos, cuantificada como actividad neuronal estandarizada derivada del número de señales del marcapasos y de la frecuencia instantánea, aumenta con el contraste del estímulo por encima del umbral de transición de decisión (DTT), permitiendo una evaluación graduada de la integración sensoriomotora inducida visualmente. En este protocolo, se describe la fabricación de electrodos de succión extracelulares, el aislamiento de los rópalos, la configuración de la cámara de registro, la presentación del estímulo visual al ojo con lente inferior, la verificación del cronograma del estímulo a nivel de hardware, la colocación del electrodo en el nervio del tallo epidérmico y la adquisición sincronizada de datos electrofisiológicos y de estímulo utilizando hardware de laboratorio estándar.
Introducción
Comprender cómo los sistemas nerviosos procesan la información sensorial y la traducen en comportamientos adaptativos es un desafío central en la neurociencia. Se han logrado avances sustanciales en organismos modelo grandes y complejos, como Drosophila melanogaster, cuyo cerebro de aproximadamente 200.000 neuronas ha permitido un detallado análisis de la organización de los circuitos neuronales1, entre otros modelos genéticamente accesibles con herramientas sofisticadas de imagen y mapeo de circuitos. Sin embargo, la misma complejidad de estos sistemas dificulta alcanzar una comprensión completa, a nivel de sistema, de la relación entre la entrada sensorial, el cálculo neuronal y la salida conductual. En el extremo opuesto del espectro de complejidad, los sistemas pequeños completamente mapeados, como el de Caenorhabditis elegans, que consta de 302 neuronas2, entre otros modelos con un número mínimo de neuronas, ofrecen un tamaño manejable, pero carecen de ojos formadores de imágenes y de los comportamientos guiados por la visión que dependen de ellos.
Tripedalia cystophora, la medusa cuboide del Caribe (Figura 1A), está emergiendo como un sistema modelo para el procesamiento visual de la información a nivel de sistemas y la integración sensoriomotora, ocupando una posición distintiva entre estos extremos3. El protocolo descrito aquí (Figura 1) está diseñado para hacer accesible al amplio comunidad de neurociencias el potencial experimental completo de este animal.
T. cystophora posee un sistema visual de una sofisticación notable para un animal de su complejidad neural. Cada una de las cuatro estructuras sensoriales denominadas rópalos lleva seis ojos, incluyendo dos ojos con lentes que forman imágenes: el ojo con lente superior (ULE) y el ojo con lente inferior (LLE)4 (Figura 1B). Estos no son órganos fotorreceptores simples; están equipados con una lente de índice de refracción graduado del tipo Matthiessen, un diseño de lente también presente en los ojos de los vertebrados, y una retina evaginada en la que aproximadamente 600 fotorreceptores en el LLE y 400 en el ULE se articulan directamente con neuronas de segundo orden5,6,7. La composición molecular del aparato fotorreceptor, incluyendo opsinas cnidops homólogas a las c-opsinas de los vertebrados y los componentes asociados de la fototransducción8,9,10, sugiere firmemente que se trata de fotorreceptores hiperpolarizantes, lo que sitúa al sistema visual de T. cystophora dentro de la misma categoría funcional general que el ojo de los vertebrados, a pesar de su origen evolutivo independiente.
Crucialmente, estas inversiones ópticas van acompañadas de conductas elaboradas, caracterizables experimentalmente y guiadas por la vista. T. cystophora se desplaza por el hábitat ópticamente complejo del mangle utilizando la navegación de larga distancia y la detección de haces de luz para mantener su posición dentro del hábitat11,12, así como conductas de evasión de obstáculos para sortear las raíces aéreas sumergidas12,13,14. El marco neuroetológico subyacente a este trabajo sostiene que la conducta es el único indicador válido del procesamiento sensorial en animales sin lenguaje. Dado que no podemos preguntar a los animales qué perciben, el diseño experimental debe adaptarse a los estímulos que el animal puede detectar y comprender, y a las conductas que el animal es capaz de realizar. Esto implica que las preguntas experimentales deben formularse en términos del animal, no del investigador. La conducta de evasión de obstáculos de T. cystophora ejemplifica este principio. El epitelio del medusozoide tiene solo un espesor de una capa celular, por lo que una colisión con una raíz aérea sumergida podría ser fatal debido al daño en su cuerpo frágil. Dado que la integración inter-rhopalial ocurre únicamente aguas abajo a través del nervio anular15, ningún sistema nervioso rhopalial (RNS) recibe la entrada binocular solapada necesaria para calcular la profundidad a partir de la disparidad estereoscópica. En cambio, el animal aprovecha una propiedad fundamental de la óptica subacuática: el contraste entre un objeto y el agua circundante se disipa rápidamente a medida que aumenta la distancia. Un obstáculo de alto contraste es, por tanto, un obstáculo cercano, que representa una amenaza inmediata, mientras que un obstáculo de bajo contraste está lejos y aún no supone una amenaza. El animal utiliza el contraste como un indicador indirecto de la distancia16. En animales con comportamiento libre, la conducta de evasión de obstáculos (OAB) se basa en una decisión de ir o no ir; se desencadena un evento cuando el animal detecta un obstáculo subacuático cuyo contraste supera el umbral de transición de decisión (DTT), es decir, el umbral a partir del cual el obstáculo está lo suficientemente cerca como para constituir una amenaza, e inicia la respuesta de «ir»: 3–5 contracciones rápidas de la campana, un giro de 120–180° y una natación rápida alejándose del obstáculo14 (Figura 1C). La respuesta escalonada del marcapasos por encima del DTT refleja la urgencia progresiva de la amenaza16. Así, la OAB proporciona un ensayo conductual altamente manejable para la integración sensoriomotora: un único parámetro visual bien definido (el contraste) controla una respuesta motora estereotipada y cuantificable, lo que la convierte en un sistema ideal para investigar la base neural de la toma de decisiones guiada por la vista.
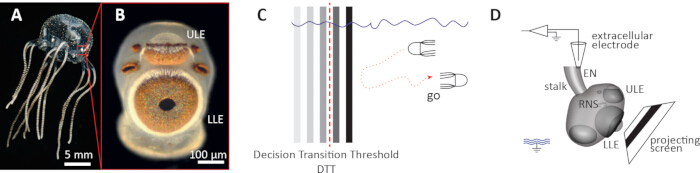
Figura 1: Vista general de la preparación del rópalo aislado de Tripedalia cystophora para grabación electrofisiológica extracelular. (A) Medusa adulta de T. cystophora. Barra de escala: 5 mm. El cuadro rojo indica la posición de un rópalo en el margen de la campana. (B) Vista ampliada de un rópalo aislado. El ojo con lente superior (ULE) y el ojo con lente inferior (LLE) son ojos formadores de imágenes. Barra de escala: 100 µm. Imagen cortesía de Dan-Eric Nilsson, reproducida con permiso. (C) Ilustración esquemática del comportamiento de evitación de obstáculos (OAB). Por debajo del umbral de transición de decisión (DTT, línea discontinua roja), el animal continúa nadando hacia el obstáculo (no ir). Por encima del DTT, se inicia el comportamiento de evitación de obstáculos (ir). (D) Esquema de la preparación de electrofisiología del rópalo aislado. El rópalo se coloca mirando hacia la pantalla de proyección inclinada. El electrodo extracelular registra las señales del marcapasos de nado desde el nervio del tallo epidérmico (EN). RNS: sistema nervioso rópalo; ULE: ojo con lente superior; LLE: ojo con lente inferior; EN: nervio del tallo epidérmico. El símbolo de tierra indica el electrodo de referencia del baño. Haga clic aquí para ver una versión más grande de esta figura.
El sustrato neural que media este procesamiento visual es el SNC, compuesto por aproximadamente 1000 neuronas por rópalio17. A pesar de este número limitado de neuronas, el SNC es arquitectónicamente sofisticado. Evidencia inmunohistoquímica sugiere que está organizado en grupos discretos de neuronas que expresan perfiles distintos de neuropéptidos18, lo cual es consistente con una arquitectura de procesamiento compartimentalizada. Se ha propuesto que la información visual se procesa a través de grupos oscilatorios subordinados (GOS), cada uno asociado con un ojo específico en el rópalio, los cuales convergen en un grupo oscilatorio terminal (GOT), que se sugiere corresponde a la población de células marcapasos que genera la señal de salida motora que controla las contracciones de la campana3. Proponemos que el GOT integra la información sensorial procesada proveniente de los GOS y genera la señal marcapasos de nado que impulsa la salida motora del comportamiento, y que la sincronización entre los GOS y el GOT subyace a la transformación de la entrada visual en una salida de control conductual3 (Figura 2).
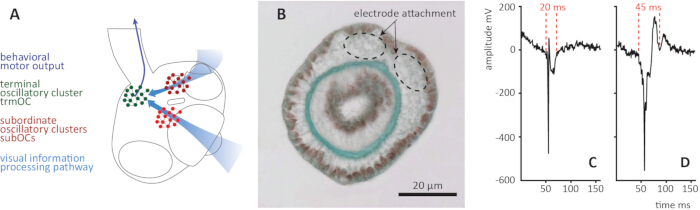
Figura 2: Origen del circuito neural e identificación electrofisiológica de la señal del marcapasos de nado en Tripedalia cystophora. (A) Esquema del sistema nervioso rupal. La información visual se procesa a través de agrupaciones oscilatorias subordinadas (subOCs, rojo) asociadas con los ojos individuales, y converge hacia la agrupación oscilatoria terminal (trmOC, verde). Se propone que la trmOC integra la información sensorial procesada proveniente de las subOCs y genera la señal del marcapasos de nado que impulsa la salida motora del comportamiento. Las flechas azul claro indican la vía de procesamiento de la información visual; la flecha azul oscuro indica la salida motora del comportamiento. (B) Micrografía electrónica de transmisión (TEM) de la superficie transeccionada del tallo epidérmico. Los círculos discontinuos indican los dos puntos de fijación del nervio bifurcado del tallo epidérmico sobre la superficie adoral del tallo, correspondientes a los sitios de colocación de los electrodos de registro. (C) Señal similar a un potencial de acción. La forma de onda se caracteriza por una desviación aguda y estrecha con una duración de aproximadamente 20 ms (indicada por líneas discontinuas rojas). (D) Señal del marcapasos de nado originada en la trmOC. La forma de onda es más amplia, con una duración característica de aproximadamente 45 ms (indicada por líneas discontinuas rojas), y presenta una morfología compuesta que refleja la actividad sumada de múltiples neuronas de la trmOC. Aunque las amplitudes de la señal son comparables entre ambos tipos de señal, la duración y la morfología de la forma de onda son los criterios fiables para la discriminación en el análisis posterior. Todos los valores electrofisiológicos están posteriores a la amplificación (×1000). Modificado con permiso de Bielecki et al.24. Haga clic aquí para ver una versión más grande de esta figura.
Esta arquitectura crea una oportunidad experimental excepcional. La señal del marcapasos natatorio generada por el trmOC induce contracciones de la campana de manera estrictamente uno a uno19 y puede registrarse extracelularmente del nervio del tallo epidérmico de un rópalio aislado13,20. Esto significa que los comandos motores evocados visualmente, y por extensión, las respuestas conductuales guiadas por la vista, pueden monitorizarse mediante métodos electrofisiológicos en una preparación de la cual se han eliminado por completo los efectores motores14. El rópalio aislado ocupa así un punto intermedio metodológico difícil de lograr en otros sistemas: ofrece el control experimental de una preparación reducida, incluyendo la especificación precisa de estímulos visuales espacio-temporales, al tiempo que conserva una lectura directa y cuantitativa de la actividad neural relacionada con el comportamiento. En condiciones no perturbadas, las señales del marcapasos ocurren a 0,5–1 Hz; las respuestas evocadas visualmente de evasión de obstáculos se caracterizan por aumentos hasta 2–3 Hz, proporcionando una ventana de señal clara para el análisis14 (Figura 1D).
Esta combinación de propiedades hace que la preparación aislada del rópalo de T. cystophora sea muy adecuada para investigar a nivel de sistemas el procesamiento visual y la integración sensoriomotora. Esta preparación es apropiada para investigadores que deseen estudiar el procesamiento visual, la integración sensoriomotora o la dinámica oscilatoria de redes en un sistema nervioso accesible que posee ojos formadores de imágenes y comportamientos guiados por la vista bien caracterizados4. Requiere equipo estándar de electrofisiología, un proyector comercial modificado y un microscopio de disección, y puede establecerse en un laboratorio sin necesidad de infraestructura especializada. El paradigma de aprendizaje mecanovisual asociativo —el emparejamiento asociativo de estímulos visuales y mecanosensoriales simultáneos— descrito previamente para esta preparación14 puede implementarse como una extensión del protocolo básico de grabación descrito aquí.
Protocolo
No se requirió la aprobación de ética animal para este estudio. Los cnidarios, incluyendo Tripedalia cystophora, quedan fuera del alcance de la Directiva 2010/63/UE sobre la protección de los animales utilizados con fines científicos, la cual se aplica únicamente a cefalópodos y vertebrados. Los animales utilizados en este estudio fueron recolectados de arroyos de manglar cerca de La Parguera, Puerto Rico, EE. UU., que no es parte del Protocolo de Nagoya sobre Acceso a los Recursos Genéticos y Participación en los Beneficios; por lo tanto, no se requirió consentimiento previo informado ni acuerdo de acceso y participación en beneficios. Tripedalia cystophora no está incluida en la lista de especies en peligro de extinción ni protegidas según CITES ni ninguna legislación nacional de conservación aplicable.
1. Configuración del escenario y de la cadena de señal
NOTA: Todos los componentes del hardware y sus conexiones se ilustran en la Figura 3. Consulte la Figura 3 a lo largo de esta sección. Todos los pasos de esta sección deben completarse antes de manipular al animal. En esta etapa, la cámara de registro no se llena con agua de mar.
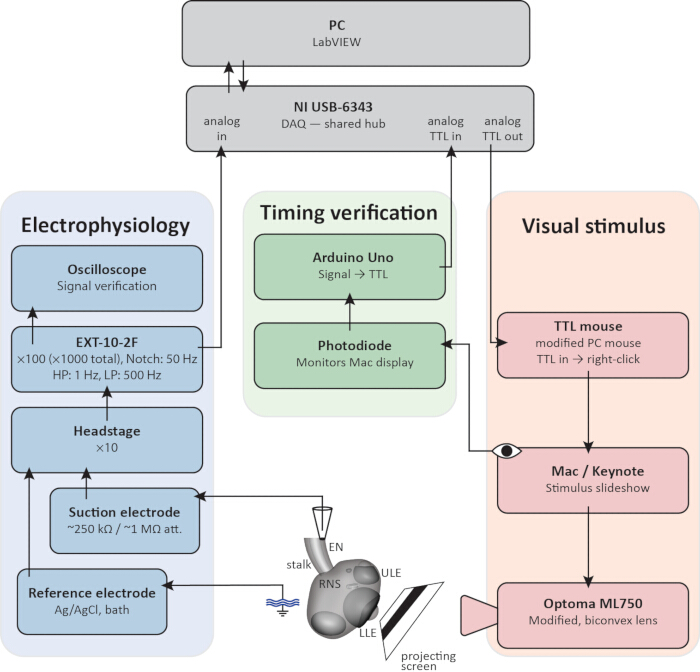
Figura 3: Diagrama de conexiones para el registro extracelular de rópalio aislado. El PC que ejecuta VI y el DAQ (arriba, gris) actúan como centro de integración compartido para las tres cadenas de señal. Cadena de electrofisiología (azul): las señales del marcapasos de nado se registran desde el nervio del tallo epidérmico (EN) mediante un electrodo de succión (~250 kΩ punta libre, ~1 MΩ conectado) y un electrodo de referencia de pellet Ag/AgCl aplicado al baño, amplificadas por el cabezal EXT-10-2F (×10) y el amplificador principal (×100, total ×1000), con filtro pasa-banda (HP: 1 Hz, LP: 500 Hz) y filtro rechaza-banda de 50/60 Hz, monitoreadas en el osciloscopio y adquiridas por el DAQ. Cadena del estímulo visual (rojo): un pulso TTL del DAQ avanza la presentación de diapositivas del estímulo mediante un ratón de PC modificado (ratón TTL), que activa el proyector DLP (modificado, lente biconvexa) para proyectar el estímulo sobre la pared inclinada de la pantalla de la cámara de registro frente al ojo de lente inferior (LLE). Cadena de verificación de temporización (verde): un fotodiodo monitorea el cuadrado indicador blanco y negro en la pantalla del ordenador que cambia de blanco a negro al inicio del estímulo y vuelve a blanco al finalizar; un Arduino Uno convierte esta señal en un pulso TTL que es registrado por el DAQ como la ventana de estímulo verificada. RNS: sistema nervioso rópalial; ULE: ojo de lente superior; LLE: ojo de lente inferior; EN: nervio del tallo epidérmico. Todos los valores de amplitud son posteriores a la amplificación (×1000). Haga clic aquí para ver una versión más grande de esta figura.
- Construcción de la cámara de registro
- Diseñe o imprima en 3D una cámara de registro con dimensiones internas suficientes para acomodar la preparación, la punta de la micropipeta de sujeción y la punta del electrodo de registro.
NOTA: Las características funcionales críticas del diseño son el borde para cubreobjetos, que posiciona el rópalio en el borde del cubreobjetos a 2 mm de la pantalla de proyección, y las dimensiones de la pantalla (16 mm × 12 mm, inclinada a 60°), que conjuntamente determinan el ángulo subtendido del estímulo visual en el ojo con lente inferior. La cámara descrita aquí tiene una base de 30 mm × 30 mm y un grosor de pared de aproximadamente 5 mm. Los dibujos técnicos se proporcionan en Figura 4. - Coloque el cubreobjetos del hemocitómetro Roth de 20 mm × 26 mm sobre los bordes para cubreobjetos de la cámara de registro. El cubreobjetos se mantiene en su lugar por flotabilidad negativa y no requiere fijación adhesiva.
- Monte la cámara de registro sobre la platina del microscopio utilizando los orificios pasantes M6. Se recomienda una platina translacional en x-y-z, ya que facilita el alineado fino de la imagen proyectada sobre la pared de la pantalla de proyección de la cámara de registro.
- Conecte los puertos de entrada y salida de los canales de flujo continuo de la cámara de registro (Figura 4A) a un baño de agua con control de temperatura que circule agua a 28 °C.
NOTA: La temperatura de la cámara de registro debe mantenerse entre 28 y 30 °C durante todo el experimento.
- Diseñe o imprima en 3D una cámara de registro con dimensiones internas suficientes para acomodar la preparación, la punta de la micropipeta de sujeción y la punta del electrodo de registro.
- Configuración óptica (Figura 3, cadena de estímulo visual)
ADVERTENCIA: No observe directamente la salida del proyector, especialmente antes de instalar los filtros de densidad neutra (Sección 4). La eliminación del sistema de lentes del fabricante elimina la atenuación de luz incorporada y puede causar lesiones oculares.- Retire el sistema de lentes del fabricante del proyector.
- Monte una lente biconvexa única (f = 30 mm) frente a la abertura de salida del proyector para enfocar la imagen proyectada sobre la pared de la pantalla de proyección de la cámara de registro.
- Alinee el proyector de modo que la imagen proyectada esté enfocada sobre la pared de la pantalla de proyección de la cámara de registro y llene completamente las dimensiones de la pantalla (16 mm × 12 mm).
NOTA: En esta etapa no se insertan filtros de densidad neutra. La intensidad adecuada del filtro se determina empíricamente durante la calibración biológica en la Sección 4.
- Montaje de la cadena de señal (Figura 3, cadenas de electrofisiología y verificación de temporización)
- Conecte el soporte del electrodo al brazo de cabezal suministrado con el amplificador EXT-10-2F y asegure el brazo de cabezal en un micromanipulador MM33.
- Conecte el cabezal al amplificador principal. La ganancia del cabezal es ×10. Establezca la ganancia del amplificador principal en ×100, lo que produce una amplificación total de ×1000.
- Conecte la salida del amplificador a un canal de entrada analógica de un convertidor analógico-digital (DAQ).
- Conecte el DAQ al PC que ejecuta LabVIEW (versión 2018 o similar) mediante USB.
- Conecte la salida TTL de Arduino Uno a un canal de entrada analógica dedicado del DAQ.
- Coloque el fotodiodo sobre el cuadrado indicador blanco y negro en la pantalla del ordenador (paso 1.4.2). Conecte el terminal positivo del fotodiodo al pin de entrada analógica A0 de Arduino Uno y el terminal negativo a tierra. El sketch de Arduino que implementa la lógica de monitoreo del fotodiodo y el umbral de salida TTL se proporciona como material suplementario (Archivo Suplementario 1).
- Diseño de la geometría del estímulo (Figura 3, cadena de estímulo visual)
- Diseñe el estímulo visual en el software de presentación como una barra vertical gris en movimiento sobre un fondo blanco, imitando un obstáculo como la raíz aérea de un mangle. Establezca el fondo en blanco máximo.
NOTA: El nivel de gris de la barra en relación con el fondo blanco determina el contraste del estímulo y se establece durante la caracterización de irradiancia en la Sección 4. La barra debe subtender 30° de ángulo visual del ojo con lente inferior (medido en el centro del campo visual) y moverse a 10° s-1 a través del ancho total del campo visual, permaneciendo siempre dentro del campo visual. El ángulo visual de un obstáculo proyectado puede determinarse mediante:
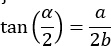
donde α es el ángulo visual, a es el ancho de la característica de la imagen y b es la distancia desde el ojo con lente inferior hasta la pantalla. El movimiento de la barra se implementa como una animación continua única del objeto (por ejemplo, la función "Mover" de Keynote) aplicada al objeto barra dentro de una sola diapositiva, en lugar de como una secuencia de diapositivas discretas. Se proporciona como material suplementario un archivo de estímulo representativo que implementa esta animación (Archivo Suplementario 2). Dado que el ancho y la velocidad de la barra se especifican en ángulo visual y no en unidades físicas, ambos deben convertirse a milímetros y mm/s utilizando la ecuación anterior, basándose en la distancia de trabajo específica y las dimensiones de la pantalla de la cámara de registro, antes de introducirlos como tamaño del objeto y duración de la animación en el software de presentación. - Incluya un pequeño cuadrado indicador blanco y negro en una esquina de la diapositiva que cambie de blanco a negro coincidiendo con el inicio del movimiento de la barra y regrese a blanco al finalizar el estímulo. Monitoree este cuadrado en la pantalla del ordenador mediante el fotodiodo para verificar la temporización del estímulo en el paso 3.3.
NOTA: El cuadrado indicador blanco y negro aparece necesariamente dentro de la imagen proyectada sobre la pantalla de la cámara de registro, ya que debe formar parte de la diapositiva para aparecer en la pantalla del ordenador durante la presentación. Sin embargo, el tamaño del cuadrado se ajusta para llenar únicamente el área receptiva del fotodiodo en la pantalla del ordenador. Cuando se proyecta sobre la pantalla de la cámara, es suficientemente pequeño como para no ser resuelto como una característica visual distinta por el ojo con lente inferior, y su contribución a la luminancia total de la pantalla es despreciable y no inicia respuestas de encendido/apagado de la luz4,13,20. - Avance las diapositivas del software de presentación mediante un disparador automático o manual.
- Opción A (automática): Construya un ratón con lógica transistor-transistor (TTL) modificando un ratón estándar de PC de modo que un breve pulso TTL de 5 V recibido desde la salida del DAQ reemplace la señal de clic derecho. Conecte el ratón TTL al ordenador de presentación mediante USB. Configure el software de presentación para avanzar las diapositivas con una entrada de clic derecho.
- Opción B (manual): Active manualmente el avance de diapositivas en el momento previsto para el inicio del estímulo. Dado que para el análisis (paso 6.2.1) se utiliza la ventana de estímulo verificada por Arduino (Canal 3), y no la señal de disparo en sí, el disparo manual no compromete la precisión temporal, aunque requiere una temporización precisa por parte del operador durante la adquisición y es menos conveniente que la opción automática.
- Diseñe el estímulo visual en el software de presentación como una barra vertical gris en movimiento sobre un fondo blanco, imitando un obstáculo como la raíz aérea de un mangle. Establezca el fondo en blanco máximo.
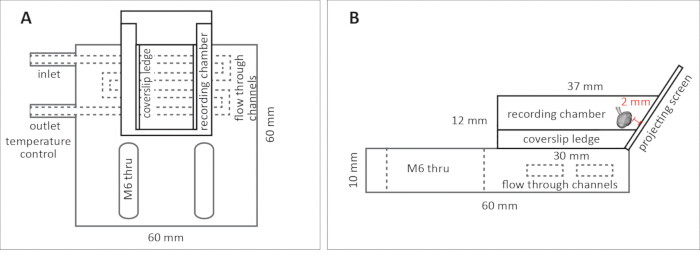
Figura 4: Cámara de registro para la preparación aislada del rópalio. (A) Esquema de vista superior. La cámara de registro está flanqueada por canales de flujo continuo para el control de temperatura mediante camisa de agua, con puertos de entrada y salida (OD 4,2 mm, ID 2,5 mm) indicados. Los salientes para cubreobjetos se extienden longitudinalmente a lo largo de ambas paredes internas de la cámara, sosteniendo el cubreobjetos del hemocitómetro a la mitad de la altura de la cámara. Los orificios pasantes M6 proporcionan puntos de montaje para fijar la cámara al portaobjetos del microscopio. Dimensiones generales: 60 mm × 60 mm. (B) Esquema de vista lateral con dimensiones. La cámara de registro tiene una altura interna de 12 mm y un ancho superior de 37 mm. Una de las paredes de la cámara forma la pantalla de proyección, inclinada 60° con respecto a la vertical para alinearse con el eje óptico del ojo con lente inferior. El saliente para cubreobjetos coloca el rópalio en el borde del cubreobjetos frente a la pantalla de proyección. La distancia de trabajo de 2 mm mostrada refleja la configuración específica de esta cámara, pantalla y proyector descrita en este protocolo; los lectores que adapten este diseño a hardware diferente deben recalcular una distancia de trabajo adecuada para su propio montaje utilizando la ecuación del paso 1.4.1. Los canales de flujo continuo para el control de temperatura se encuentran dentro de la base de la cámara de registro y no entran en contacto con la preparación. Haga clic aquí para ver una versión más grande de esta figura.
2. Fabricación de electrodos
NOTA: Los electrodos de succión extracelulares consisten en tubos de capilar de vidrio con puntas cónicas estiradas para crear una abertura adecuada para la adhesión por succión y la grabación de potenciales eléctricos. El capilar de vidrio actúa como aislante eléctrico, asegurando que solo se registren los potenciales en la punta. Un alambre de plata insertado en el capilar se conecta al amplificador. Esta configuración permite grabaciones multiunitarias, captando potenciales eléctricos de grupos de células marcapasos en la punta del electrodo, medidos frente a un electrodo de referencia aplicado al baño. Los electrodos deben fabricarse el día de su uso, antes de la sesión de grabación. Los electrodos almacenados son propensos a la obstrucción de la punta, lo que impide que el agua de mar sea aspirada hacia el interior del capilar y hace que el electrodo deje de funcionar. Las capilares de vidrio estiradas tienen puntas afiladas y frágiles. Manipúlelas con cuidado durante su fabricación para evitar lesiones por punción, y deseche las capilares rotas, rechazadas o usadas en un contenedor designado para objetos punzantes.
- Tracción del tubo capilar de vidrio
- Cargue un tubo capilar de vidrio borosilicatado (1,16 mm de diámetro interno × 2,00 mm de diámetro externo × 80 mm de longitud) en el tirador de micropipetas.
- Ejecute el siguiente programa de tracción: Línea 1 (×1): calor 535, tracción 0, velocidad 12, tiempo 200, presión 600, rampa 540. Líneas 2–4 (×3): calor 532, tracción 0, velocidad 12, tiempo 100.
NOTA: Estos parámetros son específicos del instrumento, el vidrio y el filamento utilizados, y pueden requerir ajustes en otro equipo o tras el desgaste del filamento; trátelos como un punto de partida y no como una especificación fija. - Retire con cuidado la microelectrodo traccionada y guárdela con la punta hacia arriba para evitar daños mecánicos.
- Pulido de la punta del electrodo
- Pulir la punta para crear una superficie lisa y hermética al vacío, perpendicular al eje del capilar. Consulte las dos opciones que se indican a continuación; se recomienda la Opción A (microhorno).
- Opción A: Pulido con microhorno (recomendado)
- Monte la microelectrodo traccionada en un microhorno.
- Bajo un aumento de 600× (objetivo de 40×, ocular de 15×), coloque la punta cerca del filamento calefactor.
- Caliente y pulse la punta hasta que la abertura presente una resistencia de aproximadamente 250 kΩ (equivalente a ~1 MΩ cuando está en contacto con el tejido). A un aumento de 600×, esto corresponde aproximadamente a tres divisiones en la escala del retículo ocular.
NOTA: Para medir la resistencia del electrodo, conecte un multímetro entre el núcleo BNC (conectado al alambre de plata del electrodo) y el electrodo de referencia del baño (pelete Ag/AgCl), una vez que el electrodo haya sido llenado con agua de mar. La medición de la resistencia eléctrica no es necesaria para grabaciones visualmente evocadas estándar, donde la calidad de la señal es el criterio principal de adecuación del electrodo (paso 6.1.5); se vuelve necesaria cuando esta preparación se utiliza en un paradigma de aprendizaje asociativo que requiere la entrega calculada de corriente, lo cual queda fuera del alcance de este protocolo14. - Deje que el electrodo se enfríe completamente antes de retirarlo del microhorno.
- Opción B: Pulido manual sin microhorno
ADVERTENCIA: Este paso utiliza una llama abierta (quemador de etanol). Mantenga los materiales inflamables alejados de la llama y siga las precauciones estándar para el uso de llamas abiertas en el laboratorio.- Sostenga brevemente la punta del capilar traccionado en la llama de un quemador de etanol hasta que el vidrio se derrita y selle la punta formando una pequeña gota.
- Deje que la punta sellada se enfríe completamente.
- Coloque una gota de agua desionizada sobre una hoja de papel de lija fino (grano 1200) y sostenga el capilar perpendicular a la superficie del papel.
- Lije la punta realizando pequeños movimientos circulares, alternando entre direcciones horarias y antihorarias.
- Continúe lijando con cuidado hasta que una pequeña cantidad de agua cargada con partículas de vidrio sea aspirada hacia el interior de la punta por acción capilar.
- Conecte un tubo de goma al extremo opuesto del capilar y úselo para conectarlo a una jeringa.
- Aplique succión suave para hacer pasar agua desionizada a través de la punta, eliminando los residuos de vidrio.
- Si los residuos no se eliminan, lije suavemente durante un breve periodo adicional y repita el paso de lavado.
NOTA: El caudal objetivo a través de la punta terminada es aproximadamente 1 cm de columna de agua por cada 10 s bajo succión suave. El éxito en la fabricación de la punta se define por el resultado de la grabación (señal de bajo ruido y alta amplitud), no por la apariencia de la punta. Aproximadamente entre el 40 % y el 50 % de los electrodos fabricados con cualquiera de los métodos de pulido producen grabaciones adecuadas, aunque el factor limitante difiere entre ambos. En el pulido con microhorno (Opción A), el fallo más común se debe a una geometría de poro irregular generada durante el paso de tracción (paso 2.1), que el pulido térmico posterior no puede corregir completamente. En el pulido manual (Opción B), el éxito depende principalmente de la habilidad del operador; el fallo más común es un poro demasiado grande debido a un lijado excesivo. Un poro liso, de tamaño correcto y redondo aumenta considerablemente la probabilidad de obtener una grabación de alta calidad, pero no la garantiza: el resultado funcional es el único criterio definitivo.
- Ensamblaje del electrodo
- Introduzca el tubo capilar pulido en el porta-electrodo, asegurándose de que el alambre Ag/AgCl (plata/cloruro de plata) esté extendido y sin dobleces dentro del capilar de vidrio, y monte el conjunto en el brazo de cabezal provisto con el amplificador EXT-10-2F. Fije firmemente el brazo de cabezal en el micromanipulador MM33.
NOTA: Si el alambre de plata no está clorurado, clorúrelo electroquímicamente sumergiendo tanto el alambre de plata del electrodo como un electrodo de plata sólido separado en una solución de KCl 2 M, conectados mediante cables aislados a una fuente de corriente continua de 12 V. Aplique la corriente en intervalos de aproximadamente 2 minutos, inspeccionando visualmente el alambre entre cada intervalo; el alambre estará suficientemente clorurado cuando se oscurezca visiblemente, generalmente en un total de 5 minutos. Enjuague bien con agua desionizada tras la cloruración. Un alambre no clorurado puede introducir un desplazamiento de continua (DC) grande e inestable.
ADVERTENCIA: La cloruración electrolítica en solución de KCl genera gas cloro e hidrógeno. Realice este procedimiento en un área bien ventilada. Deseche la solución usada de cloruración de KCl de acuerdo con las normativas institucionales para residuos peligrosos. - Llene el electrodo inmediatamente antes de la grabación, aspirando agua de mar directamente desde la cámara de grabación llena hacia el capilar, hasta que la solución interna alcance la mitad del alambre de plata. Consulte el paso 3.1 para el procedimiento de llenado.
NOTA: Los micropipetas de sujeción no requieren las especificaciones ópticas ni eléctricas de los electrodos de grabación. Los electrodos descartados durante la fabricación (paso 2.2) debido a un diámetro excesivo de la punta (resistencia inferior a 250 kΩ) o a una geometría descentrada de la punta son adecuados para este propósito y deben conservarse. No es necesario fabricar micropipetas de sujeción específicas.
- Introduzca el tubo capilar pulido en el porta-electrodo, asegurándose de que el alambre Ag/AgCl (plata/cloruro de plata) esté extendido y sin dobleces dentro del capilar de vidrio, y monte el conjunto en el brazo de cabezal provisto con el amplificador EXT-10-2F. Fije firmemente el brazo de cabezal en el micromanipulador MM33.
3. Validación del sistema
Esta sección verifica que todo el sistema de registro —electrodo, cadena de señal, entrega del estímulo y verificación del temporizado— funcione correctamente antes de introducir la preparación experimental. La cadena completa de señal se ilustra en la Figura 3. Verifique que todas las conexiones estén en su lugar antes de continuar.
- Llenado de la cámara y preparación del electrodo
- Llene la cámara de registro con agua de mar filtrada a 0,20 µm procedente del tanque de cultivo. Esto asegura la continuidad en la composición química entre el entorno de cultivo y la cámara de registro, evitando la exposición del rópalio a compuestos extraños o cambios en la química del agua que podrían afectar la actividad del marcapasos o la viabilidad del preparado.
- Llene el electrodo de succión de registro aspirando agua de mar directamente desde la cámara de registro hacia el capilar hasta que la solución interna alcance la mitad del alambre de plata. Llene la micropipeta de sujeción con suficiente agua de mar de la cámara de registro para permitir la adhesión por succión al cristal.
- Coloque un electrodo de pellet sinterizado de Ag/AgCl (plata/cloruro de plata) en el baño de registro y conéctelo a la entrada de referencia del cabezal amplificador.
- Puesta a tierra y verificación del ruido
ADVERTENCIA: Esta configuración opera equipos eléctricos en proximidad cercana al agua de mar. Mantenga todas las conexiones eléctricas y equipos alejados de la cámara y de cualquier derrame, y siga las prácticas institucionales de seguridad eléctrica para trabajos en entornos húmedos.- Ponga a tierra todos los instrumentos a un único punto común de tierra (configuración de puesta a tierra en estrella) para evitar bucles de tierra.
- Monitoree la señal en el osciloscopio. Verifique que la línea base esté limpia y libre de ruido antes de continuar.
NOTA: En nuestro laboratorio generalmente no se utilizan jaulas de Faraday para grabaciones extracelulares, ya que la puesta a tierra rigurosa en estrella demuestra ser más efectiva que el blindaje físico para eliminar el ruido eléctrico (50/60 Hz).
- Cadena de verificación de temporización
- Ejecute el instrumento virtual (VI) de LabVIEW (suministrado como material suplementario, Archivo Suplementario 3). Ejecute el VI durante la validación del sistema. Esto envía un pulso TTL al ratón TTL para desencadenar la generación del estímulo y genera un archivo de salida .txt que permite verificar que todos los canales — señal electrofisiológica, TTL de LabVIEW y TTL de Arduino — se adquieran correctamente antes de introducir el preparado experimental.
NOTA: El retardo entre el comando TTL registrado por LabVIEW y el inicio del estímulo verificado por Arduino varía de forma impredecible entre grabaciones y no se resuelve en esta etapa; en cambio, se determina y corrige individualmente en cada grabación durante el análisis (paso 7.2.1). - Verifique que el pulso TTL del DAQ active correctamente la generación del estímulo y que el estímulo visual se proyecte en la pantalla según lo diseñado.
- Verifique que el Arduino Uno detecte el cambio en el cuadrado indicador blanco y negro en la pantalla del ordenador y envíe un pulso TTL al DAQ.
NOTA: El Arduino Uno muestrea el voltaje del fotodiodo mediante analogRead(A0). Cuando el valor muestreado cae por debajo de un umbral determinado empíricamente (61 dentro del rango de 0 a 1023 de analogRead en esta configuración), el pin de salida digital 5 se establece en 5 V (TTL alto); cuando el valor vuelve a superar el umbral, la salida regresa a 0 V. Este umbral depende de la configuración y debe recalibrarse para cada pantalla y configuración de iluminación ambiental. - Confirme que el pulso TTL de la ventana de estímulo del Arduino Uno se registre correctamente en el archivo .txt generado por el VI de LabVIEW, junto con el canal electrofisiológico y el canal digital TTL del VI.
NOTA: La señal del fotodiodo no se registra directamente por el DAQ, ya que la salida cruda del fotodiodo es demasiado ruidosa para una detección fiable del estímulo en la entrada del DAQ. La conversión a un pulso TTL limpio por parte del Arduino Uno garantiza una señal de temporización fiable y de bajo ruido. El sketch de Arduino que implementa el monitoreo del fotodiodo y la salida TTL se proporciona como material suplementario (Archivo Suplementario 1). La frecuencia de actualización de Arduino de 1 kHz coincide con la frecuencia de muestreo del DAQ, asegurando que no se pierda información de temporización. - Una vez verificados todos los canales, vacíe la cámara de registro y retire el electrodo de la cámara en preparación para la Sección 4.
- Ejecute el instrumento virtual (VI) de LabVIEW (suministrado como material suplementario, Archivo Suplementario 3). Ejecute el VI durante la validación del sistema. Esto envía un pulso TTL al ratón TTL para desencadenar la generación del estímulo y genera un archivo de salida .txt que permite verificar que todos los canales — señal electrofisiológica, TTL de LabVIEW y TTL de Arduino — se adquieran correctamente antes de introducir el preparado experimental.
4. Calibración de la luz y determinación del contraste
NOTA: Esta sección establece la configuración óptica correcta para la estimulación visual del ojo de lente inferior y determina los valores de irradiancia necesarios para los cálculos de contraste. Se utiliza un rópalio de sacrificio para el paso de calibración biológica. La caracterización de la irradiancia se realiza sin ninguna preparación en la cámara. Esta sección requiere mucho tiempo. La calibración biológica, la caracterización de la irradiancia en todos los niveles de gris y los cálculos de contraste pueden necesitar una sesión dedicada antes del día de grabación. El rópalio utilizado para la calibración biológica debe descartarse después de esta sección y no puede utilizarse para grabaciones.
- Calibración biológica
- Llene la cámara de registro con agua de mar filtrada a 0,20 µm del tanque de cultivo.
- Aísle un rópalo y transfiéralo a la cámara de registro siguiendo el procedimiento descrito en la Sección 5.
- Coloque el rópalo en el borde de la cubreobjetivo, orientado hacia la pantalla de proyección, utilizando la micropipeta de sujeción (Figura 1D).
NOTA: Colocar el rópalo en el borde de la cubreobjetivo en lugar de sobre su superficie cumple dos propósitos: primero, el borde de la cubreobjetivo puede colocarse a una distancia fija y reproducible de la pantalla de proyección, asegurando una distancia de trabajo constante en todas las grabaciones; segundo, el ojo con lente inferior no necesita mirar a través del vidrio de la cubreobjetivo para ver la pantalla, evitando así la distorsión angular del estímulo visual. La distancia entre el borde de la cubreobjetivo y la pantalla de proyección determina la extensión angular de todos los estímulos proyectados en el ojo con lente inferior y debe mantenerse constante en todas las grabaciones. En la cámara descrita en este protocolo, esta distancia es de 2 mm. - Conecte el electrodo de registro al nervio del pedúnculo epidérmico siguiendo el procedimiento descrito en el paso 6.1.
- Presente un obstáculo de contraste máximo (c ≈ 1,0, barra negra sobre fondo blanco) que se desplace a lo ancho completo del campo visual y evalúe la respuesta del señal del marcapasos (Figura 1C; Figura 5).
NOTA: La medición fotométrica confirmó un contraste máximo alcanzable de c ≈ 0,99 entre los niveles de gris más claro y más oscuro del sistema de proyección utilizado, lo que refleja una luminancia residual en el punto negro del proyector y no una limitación del diseño del estímulo; esto es la base de la notación aproximada (c ≈ 1,0) utilizada en todo este protocolo para estímulos de contraste máximo.
NOTA: (CRÍTICO) Una respuesta satisfactoria consiste en un aumento robusto de la frecuencia de la señal del marcapasos por encima de 2 Hz, que ocurre como una ráfaga breve y sincronizada en el tiempo cuando el borde delantero del obstáculo alcanza el centro del campo visual, en lugar de mantenerse durante toda la presentación del estímulo, con aproximadamente entre 5 y 15 señales del marcapasos durante esta ráfaga (Figura 5B). La intensidad de la respuesta, tanto en frecuencia como en número de señales, aumenta con el contraste del estímulo; por lo tanto, la respuesta a un estímulo de contraste máximo (c ≈ 1,0) debe ser tan fuerte como sea posible, ya que esto refleja una orientación correcta del ojo con lente inferior, una conexión adecuada del electrodo y una calibración precisa del proyector, y asegura un rango dinámico suficiente para distinguir respuestas a niveles de contraste más bajos. Esto confirma que los fotorreceptores están operando dentro de su rango dinámico y no están saturados por una irradiancia excesiva. Si no se observa modulación de la frecuencia del marcapasos a pesar de que la preparación es saludable y muestra actividad espontánea del marcapasos entre 0,5 y 1 Hz, se debe sospechar saturación de los fotorreceptores por irradiancia excesiva. Inserte un filtro de densidad neutra (por ejemplo, Thorlabs NE01A, densidad óptica = 0,1, según sea necesario) en el conjunto de la lente y repita la calibración. Aumente la atenuación progresivamente hasta obtener una respuesta robusta de la frecuencia del marcapasos. Todas las grabaciones posteriores deben realizarse con esta configuración de filtro. - Una vez obtenida una respuesta biológica satisfactoria, registre la configuración del filtro de densidad neutra. Esta configuración es fija para todas las grabaciones posteriores con este sistema óptico.
- Retire el rópalo de la cámara de registro y deséchelo. El rópalo utilizado para la calibración biológica no puede usarse para grabaciones debido al tiempo transcurrido durante el procedimiento de calibración.
- Caracterización de la irradiancia
- Vacíe la cámara de registro y asegúrese de que la superficie de la pantalla de proyección esté seca. Coloque la fibra del espectrómetro directamente sobre la superficie de la pantalla y perpendicularmente a ella.
NOTA: La mayoría de las fibras ópticas de los espectrómetros no son impermeables. La cámara debe estar vacía y la superficie de la pantalla seca antes de colocar la fibra sobre ella. - Utilizando el software de presentación, ilumine uniformemente la pantalla de proyección con cada nivel de gris que se vaya a medir y registre la irradiancia (350–700 nm) utilizando el espectrómetro.
NOTA: Se recomienda trabajar desde el nivel de gris máximo hasta el mínimo (blanco a negro), ya que el espectrómetro tiene mayor probabilidad de saturarse en niveles altos de irradiancia. Puede ser necesario recalcular el tiempo de integración en diferentes puntos del rango de niveles de gris para evitar tanto la sobreexposición como la subexposición. Este proceso, a través de todos los niveles de gris, es lento y debe planificarse en consecuencia. - Corrija cada valor medido de irradiancia según el espectro de absorción de la opsina de 500 nm de T. cystophora presente en el ojo con lente inferior21,22.
NOTA: La corrección por opsina se realiza multiplicando la irradiancia medida en cada longitud de onda por el coeficiente de receptancia correspondiente de la plantilla de pigmento visual de Govardovskii para una λmáx de 500 nm21, y luego sumando los valores a través del rango de longitudes de onda medido para obtener un único valor de irradiancia corregido por opsina. Este cálculo puede realizarse en cualquier software estándar de hojas de cálculo una vez que se hayan obtenido los datos brutos de irradiancia espectral. - Calcule el contraste de cada nivel de gris utilizando los valores de irradiancia corregidos:

donde Iw es la irradiancia corregida por opsina del fondo blanco y Ig es la irradiancia corregida por opsina de la barra gris o negra. Los valores de contraste varían entre 0 (barra indistinguible del fondo) y 1 (contraste máximo, barra negra sobre fondo blanco). - A partir de los valores de contraste calculados, identifique los niveles de gris correspondientes a los niveles de contraste requeridos para el protocolo experimental. Actualice la presentación del software con estos niveles de gris.
NOTA: El contraste es una razón entre valores de irradiancia y, por lo tanto, es insensible a cambios uniformes en la salida absoluta de la lámpara en todos los niveles de gris. La caracterización de irradiancia no necesita repetirse entre sesiones de grabación, siempre que la configuración óptica permanezca sin cambios. Sin embargo, se recomienda verificar la estabilidad de la irradiancia si se observan cambios inesperados en la respuesta al estímulo entre sesiones.
- Vacíe la cámara de registro y asegúrese de que la superficie de la pantalla de proyección esté seca. Coloque la fibra del espectrómetro directamente sobre la superficie de la pantalla y perpendicularmente a ella.
<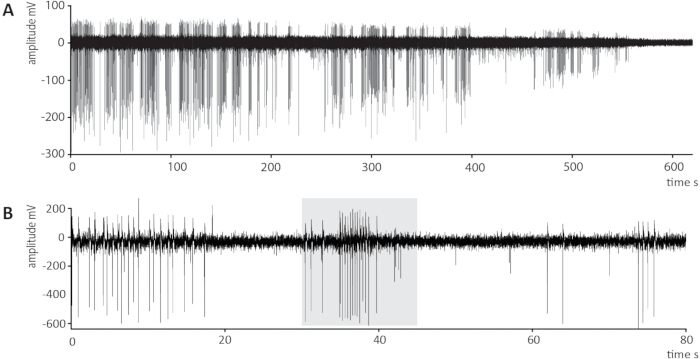
Figura 5: Grabaciones extracelulares representativas de señales de marcapasos de nado desde el rópalio aislado de Tripedalia cystophora. (A) Ejemplo de pérdida progresiva del sello del electrodo durante una sesión prolongada de grabación. La amplitud de la señal del marcapasos comienza a disminuir aproximadamente entre los 200 y 250 s, lo que refleja un deterioro del contacto eléctrico entre la punta del electrodo y el nervio del pedúnculo epidérmico, y la señal se pierde completamente alrededor de los 580–600 s. Tanto la amplitud de la señal como el ruido de fondo disminuyen en paralelo, lo cual es la firma característica de la pérdida del sello. (B) Grabación representativa de una respuesta de evitación de obstáculos evocada visualmente por encima del DTT. El área sombreada en gris indica la ventana de estímulo, definida por la señal TTL de Arduino, durante la cual una barra vertical de alto contraste (c = 0.80) se movió a través de todo el ancho del campo visual del ojo de la lente inferior. La frecuencia de la señal del marcapasos aumenta notablemente durante la ventana de estímulo, lo que concuerda con una respuesta de evitación de obstáculos evocada visualmente, y regresa hacia la frecuencia basal tras la finalización del estímulo. Se esperan señales espontáneas del marcapasos fuera de la ventana de estímulo, y estas no constituyen respuestas evocadas visualmente. Obsérvese que la diferencia en la escala del eje Y entre los paneles refleja la distinta calidad de grabación mostrada y no implica una diferencia en la intensidad de la señal; en electrofisiología extracelular, la amplitud de la señal depende de la calidad del sello del electrodo y no de la magnitud de la respuesta fisiológica. Todos los valores están posteriores a la amplificación (×1000). Haga clic aquí para ver una versión más grande de esta figura.
5. Aislamiento y transferencia del rópalio
NOTA: Este procedimiento se realiza cada vez que se requiere un rópalo: una vez con un rópalo de sacrificio para la calibración biológica en la Sección 4, y posteriormente para cada rópalo experimental utilizado en la Sección 6. En cada ocasión, todos los componentes de hardware deben montarse y verificarse completamente antes de manipular al animal. El número de rópalos experimentales lo determina el diseño experimental.
- Utilizando una pipeta plástica desechable con la punta cortada para obtener una abertura de aproximadamente 8 mm de diámetro, transfiera un solo animal desde el tanque de cultivo a una placa de Petri de 35 mm que contenga agua de mar filtrada a 0,20 µm procedente del tanque de cultivo.
- Elimine el exceso de agua de mar hasta que el animal quede aplanado contra la placa y inmóvil, pero sin desecarse.
- Utilizando tijeras finas (tijeras de Vannas, hoja de 0,025 mm × 0,015 mm), corte el tallo que conecta el rópalo con la campana aproximadamente a dos tercios de la longitud del tallo, medida desde la inserción del rópalo (es decir, distal al rópalo). Inmediatamente después del corte, rellene la placa de Petri con agua de mar filtrada a 0,20 µm procedente del tanque de cultivo.
ADVERTENCIA: Las tijeras de Vannas son extremadamente afiladas. Manipúlelas con cuidado durante la disección para evitar lesiones.
NOTA: El rópalo puede retraerse dentro del nicho rópalo tras el corte. Rellenar la placa de Petri con agua de mar filtrada, en la mayoría de los casos, desalojará el rópalo. Si no fuera así, utilice una pipeta de Pasteur para extraerlo suavemente.
Utilizando una pipeta de Pasteur (150 mm), transfiera el rópalo aislado a la cámara de registro de electrofisiología colocada sobre la platina del microscopio. (CRÍTICO) Asegúrese de que el rópalo permanezca sumergido en agua de mar en todo momento durante y después de la transferencia. La exposición al aire dañará irreversiblemente la preparación. - Utilizando una pipeta de transferencia, devuelva el animal al tanque de cultivo.
NOTA: La pérdida de un solo rópalo no afecta significativamente el comportamiento normal de la medusa cubo; los animales que conservan tan solo un rópalo continúan mostrando comportamientos normales de alimentación e interacción con haces de luz. Además, los rópalos se regeneran completamente, incluyendo la restauración de la señalización del marcapasos y respuestas normales de los fotorreceptores, en un plazo de dos semanas tras su eliminación23. El animal puede utilizarse nuevamente en sesiones posteriores hasta que no queden rópalos. Una vez que se han eliminado los cuatro rópalos, el animal ya no es capaz de generar señales de marcapasos para nadar ni contracciones de la campana, y se descarta de forma humanitaria mediante el desecho estándar en el fregadero del laboratorio, de acuerdo con el procedimiento de eliminación del tejido rópalo (paso 6.2.5).
6. Grabación
- Posicionamiento del rópalo y fijación del electrodo
- Llene el electrodo de succión de registro aspirando agua de mar directamente desde la cámara de registro hacia el capilar, hasta que la solución interna alcance la mitad del alambre de plata. Llene la micropipeta de sujeción con suficiente agua de mar de la cámara de registro para permitir la adherencia por succión al cristal.
- Coloque la micropipeta de sujeción en un micromanipulador. Fije la punta de la micropipeta de sujeción al cristal de sulfato de calcio (CaSO₄) en el extremo distal del rópalo aplicando una succión suave mediante una jeringa Luer-lock acoplada. El cristal proporciona un punto de anclaje mecánico robusto sin dañar el tejido nervioso.
- Utilizando la micropipeta de sujeción, coloque el rópalo en el borde del cubreobjetos, orientado hacia la pantalla de proyección (Figura 1D).
NOTA: (CRÍTICO) Debe medirse y registrarse la distancia entre el ojo con lente inferior y la pantalla de proyección, ya que es necesaria para calcular la extensión angular (ángulo de aceptación) de las características de la imagen proyectada en el ojo con lente inferior mediante:
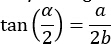
donde α es el ángulo visual, a es el ancho de la característica de la imagen, y b es la distancia desde el ojo con lente inferior hasta la pantalla. A una distancia de trabajo de 2 mm, una imagen proyectada de 16 mm × 12 mm (a × h) abarca aproximadamente 150° horizontalmente y 120° verticalmente del campo visual circular de 170° del ojo con lente inferior. La distancia de trabajo debe mantenerse constante en todos los registros, ya que cualquier desviación invalida los cálculos angulares de los estímulos presentados y evita la comparación directa entre registros. - Manteniendo la posición del rópalo con la micropipeta de sujeción, avance el electrodo de registro hacia la superficie seccionada del tallo utilizando un segundo micromanipulador.
NOTA: El nervio del tallo epidérmico discurre longitudinalmente a lo largo de toda la longitud del tallo, desde el punto de inserción del rópalo hasta el nervio anular15. En la superficie seccionada, las terminaciones nerviosas del nervio del tallo epidérmico bifurcado están expuestas y disponibles para el contacto con el electrodo en la superficie adoral del tallo —el lado orientado hacia los ojos con lente (Figura 2B). - Aplique una succión suave mediante la jeringa Luer-lock hasta que se establezca una señal estable.
NOTA: Las terminaciones nerviosas no siempre son visualmente distinguibles en la superficie seccionada. Coloque la punta del electrodo sobre la región donde se espera que se encuentre el nervio del tallo epidérmico según los puntos anatómicos de referencia y aplique una succión suave. Una fijación adecuada del electrodo se indica por la aparición de señales de marcapasos grandes, claramente resueltas, con una forma de onda consistente y a la frecuencia esperada de 0,5–1 Hz (Figura 5). Las señales de marcapasos se distinguen de las señales similares a potenciales de acción por la duración y morfología de la forma de onda (Figura 2C,D)13,20,24. La aparición de señales de marcapasos estables es el criterio definitivo para una colocación correcta del electrodo, no la confirmación visual del contacto nervioso. Si no se obtiene señal, libere la succión, reposicione ligeramente la punta del electrodo sobre la superficie seccionada y vuelva a aplicarla. Una succión excesiva puede obstruir la punta con restos de tejido o dañar mecánicamente la terminación nerviosa. La pérdida progresiva de la amplitud de la señal y el ruido de fondo durante el registro indican una pérdida del sello del electrodo (Figura 5A). - Permita que la preparación se aclimate durante un mínimo de 10 minutos tras la fijación del electrodo antes de comenzar los registros. Durante este periodo, mantenga la pantalla de proyección iluminada con un fondo blanco y la barra gris posicionada de forma estacionaria en un lateral del campo visual, fuera del centro.
NOTA: Antes de iniciar la aclimatación, confirme la respuesta de la preparación presentando un único estímulo de contraste máximo (c ≈ 1,0); los rópalos que no respondan se excluyen del conjunto de datos. El periodo de aclimatación permite que la preparación se estabilice tras la perturbación mecánica de la fijación del electrodo. Mantener la pantalla blanca con una barra estacionaria asegura que los fotorreceptores estén adaptados a la luz en las condiciones básicas que prevalecerán durante la estimulación visual, y que la frecuencia basal inicial del marcapasos sea estable antes de presentar el primer estímulo. Esta es una ventaja práctica adicional del uso de software de presentación para el control de estímulos. El contenido de la pantalla durante la aclimatación y entre registros es directamente visible y completamente controlable sin programación adicional. - Una vez establecida una señal de marcapasos estable, optimice los ajustes del filtro de paso de banda en el amplificador extracelular para maximizar la relación señal-ruido y preservar la amplitud y morfología de la forma de onda, monitoreando el efecto en la pantalla del osciloscopio. Utilice los siguientes ajustes iniciales: paso alto a 1 Hz y paso bajo a 500 Hz; active el filtro de muesca de 50/60 Hz (EXT-10-2F integrado como complemento). Ajuste según sea necesario en función de la señal observada.
NOTA: Elevar el corte del paso alto por encima de 1 Hz atenuará progresivamente los componentes de baja frecuencia de la señal de marcapasos, reduciendo su amplitud y posiblemente comprometiendo la detección de la señal. La amplitud de señal objetivo tras la amplificación para señales de marcapasos limpias y fácilmente identificables es de 400–600 mV, con un máximo de aproximadamente 1 V.
- Adquisición de datos
- Configure el VI (suministrado como material suplementario, Archivo Suplementario 3) para adquirir simultáneamente los siguientes canales mediante el DAQ a una frecuencia de muestreo de 1 kHz:
Canal 1: Señal electrofisiológica (señal de marcapasos amplificada y filtrada del EXT-10-2F)
Canal 2: Salida analógica TTL generada por LabVIEW hacia el ratón TTL
Canal 3: Marca de tiempo analógica TTL del Arduino Uno (registra la ventana de estímulo verificada —inicio definido por el pulso TTL alto, finalización definida por el retorno del TTL a bajo— tal como es detectado por el fotodiodo que monitorea el cuadrado indicador blanco y negro en la pantalla del ordenador).
NOTA: El Canal 2 registra el momento previsto de entrega del estímulo, y el Canal 3 registra la ventana de estímulo real verificada. El Canal 3 debe utilizarse como registro definitivo de la temporización del estímulo para todos los análisis. - Establezca la duración del registro según el protocolo experimental. Para una secuencia estándar de presentación de estímulos que consta de una línea base de 30 s previa al estímulo, aproximadamente 15 s de estimulación visual y un periodo de 35 s posterior al estímulo, fije la duración total del registro en 80 s.
NOTA: Este protocolo suele utilizar 10 réplicas biológicas (rópalos), preferiblemente obtenidas de 10 animales diferentes, para evaluar la intensidad de la respuesta, en concordancia con Bielecki et al. (2023)14. En una única preparación, el mismo rópalo aislado recibe todo el protocolo de estímulo visual, presentado secuencialmente desde el contraste más bajo al más alto; este orden evita que el animal se habitúe a la ausencia de consecuencias aversivas a alto contraste, lo que podría reducir la respuesta a estímulos posteriores de bajo contraste. Las grabaciones sucesivas se inician a intervalos fijos de 2 minutos, lo que proporciona un intervalo de 105 s entre el final de un periodo de estímulo y el inicio del siguiente (suficiente para que la frecuencia del marcapasos regrese a la línea base antes del siguiente estímulo). No se realizan réplicas técnicas; cada rópalo recibe una única presentación por nivel de contraste dentro de su secuencia de estímulos. - El VI de LabVIEW (suministrado como material suplementario, Archivo Suplementario 3) genera automáticamente un pulso TTL desde el DAQ hacia el ratón TTL en el momento adecuado dentro de la secuencia de registro, avanzando la diapositiva e iniciando el inicio del estímulo visual. Guarde los datos adquiridos como un archivo .txt delimitado por tabulaciones. Al utilizar el VI proporcionado, los metadatos del registro se codifican manualmente en el nombre del archivo al momento de guardarlo.
NOTA: Se recomienda a los usuarios establecer una convención consistente de nomenclatura de archivos antes de comenzar los registros. Un identificador de preparación es un código único (por ejemplo, un número de animal o de sesión) que permite rastrear un registro determinado hasta el rópalo específico y la sesión experimental de origen. El esquema exacto de nomenclatura queda a elección del investigador, siempre que sea sistemático y permita el rastreo inequívoco de cualquier registro a su preparación correspondiente; por ejemplo, un nombre de archivo podría combinar la fecha y hora del registro con los parámetros relevantes del estímulo (por ejemplo, nivel de contraste, dimensiones de la barra y velocidad). - Tras completar todos los registros para un rópalo determinado, deseche el tejido del rópalo mediante el desecho estándar por el fregadero del laboratorio.
NOTA: Se recomienda a los usuarios establecer una convención consistente de nomenclatura de archivos antes de comenzar los registros. Un nombre de archivo sistemático que incluya fecha, identificador de preparación y condición de estímulo es suficiente para el análisis posterior. El software de presentación es preferible a los estímulos visuales generados por LabVIEW por dos razones prácticas: primero, asegura que la imagen proyectada sobre el ojo con lente inferior entre registros sea conocida y controlada en todo momento, evitando la estimulación visual no intencionada por interfaces de software o pantallas del sistema; segundo, elimina el riesgo de apagado de pantalla entre sesiones de registro, lo que provocaría una respuesta de luz-OFF en los fotorreceptores e introduciría actividad espuria del marcapasos en el periodo basal subsiguiente. El tamaño angular percibido y la velocidad de la barra variarán de forma no lineal a través del campo visual debido a la geometría del ojo con lente. Esta no linealidad no se corrige por dos razones: primero, los animales que nadan libremente no se acercan a los obstáculos con velocidad o dirección constantes, lo que hace que la corrección angular tenga una relevancia naturalista limitada; segundo, corregir el tamaño angular requeriría cambios en la luminancia total de la pantalla, lo que activaría la respuesta de luz ON/OFF implicada en la detección de haces de luz de mangle.
- Configure el VI (suministrado como material suplementario, Archivo Suplementario 3) para adquirir simultáneamente los siguientes canales mediante el DAQ a una frecuencia de muestreo de 1 kHz:
7. Análisis de datos
- Discriminación de señales de marcapasos en Igor Pro
NOTA: Las señales de marcapasos de nado se discriminan de las señales similares a potenciales de acción en el trazado electrofisiológico crudo antes del análisis de frecuencia. Ambos tipos de señal pueden ocurrir simultáneamente en el registro y deben distinguirse antes de extraer los datos temporales del marcapasos. Se proporcionan ejemplos representativos de ambos tipos de señal y sus características de forma de onda distintivas en la Figura 2C,D.- Importe el archivo de datos .txt a Igor Pro (versión 6.37 o posterior) utilizando el complemento Neuromatic (versión 2.00).
- Discrimine las señales de marcapasos de nado de las señales similares a potenciales de acción basándose en la duración de la señal y en la morfología de la forma de onda.
NOTA: Las señales de marcapasos de nado tienen una duración característica de aproximadamente 45 ms y una morfología de forma de onda compuesta que refleja la actividad sumada de múltiples neuronas marcapasos. Las señales similares a potenciales de acción tienen una duración más corta de aproximadamente 10 ms y una forma de onda más aguda y unitaria. La amplitud de la señal por sí sola no es un criterio fiable de discriminación, ya que ambos tipos de señal pueden alcanzar amplitudes comparables24 (Figura 2C,D). Se incluye una figura representativa que ilustra las características distintivas de la forma de onda de las señales de marcapasos de nado y de las señales similares a potenciales de acción (Figura 2C,D). Se recomienda a los usuarios familiarizarse con ambos tipos de señal antes del análisis, ya que una identificación errónea introduciría errores en la estimación de la frecuencia del marcapasos. Las características de la forma de onda son consistentes dentro de una preparación determinada, pero pueden variar ligeramente entre preparaciones; por lo tanto, los criterios de discriminación deben evaluarse individualmente para cada preparación, utilizando las características de forma de onda descritas anteriormente como una guía general en lugar de umbrales universales fijos. Para formas de onda ambiguas o intermedias que no puedan clasificarse con confianza, resuelva la ambigüedad en la dirección opuesta al resultado esperado o hipotetizado: por ejemplo, excluya un evento ambiguo si un mayor número de señales respaldaría la hipótesis que se está probando, o inclúyalo si un número menor la respaldaría, con el fin de evitar exagerar la fuerza aparente del resultado. - Extraiga la marca de tiempo de cada señal de marcapasos de nado identificada para obtener una serie temporal de eventos del marcapasos para cada registro, y exporte estas marcas de tiempo (por ejemplo, a una hoja de cálculo o archivo .csv) para su análisis estadístico posterior.
- Análisis de frecuencia
- Calcule la frecuencia de la señal de marcapasos como el inverso del intervalo entre señales a lo largo del registro.
- Evalue el efecto del estímulo visual comparando la frecuencia del marcapasos durante el período basal previo al estímulo, el período del estímulo y el período post-estímulo, utilizando las marcas de tiempo de las señales de marcapasos corregidas por el retraso entre el comando TTL registrado por LabVIEW (Canal 2) y el inicio del estímulo verificado por Arduino (Canal 3).
NOTA: El ojo de la lente inferior responde al estímulo según el momento del TTL verificado, no del comando registrado por software, por lo que el tiempo de inicio verificado de cada registro se exporta junto con las marcas de tiempo crudas del marcapasos y del TTL a una hoja de cálculo (Tabla Suplementaria 1) y se utiliza directamente por el script de análisis SAS para clasificar cada señal de marcapasos en su ventana previa al estímulo, durante el estímulo o post-estímulo (Figura 6); no se modifican valores de marcas de tiempo en la etapa de hoja de cálculo. Bajo condiciones basales sin perturbaciones, la frecuencia de la señal de marcapasos es de 0,5–1 Hz. Las respuestas evocadas visualmente de evasión de obstáculos por encima del DTT se caracterizan por un aumento en la frecuencia del marcapasos a 2–3 Hz. El máximo fisiológico es aproximadamente 4 Hz, lo que corresponde a un intervalo mínimo entre señales de 250–280 ms25. Dado que la frecuencia basal del marcapasos varía entre preparaciones, los valores de frecuencia para cada registro se estandarizan en relación con la frecuencia media de ese registro, calculada a partir de los períodos previo y post-estímulo (excluyendo el período del estímulo en sí). Esta normalización permite comparar la magnitud de la respuesta entre preparaciones independientemente de las diferencias en la tasa basal del marcapasos. Los procedimientos estadísticos completos para evaluar la significancia de la respuesta, incluyendo el modelo no lineal utilizado para comparar los períodos basal, de estímulo y post-estímulo, se describen en Bielecki et al. (2023)14; el código de análisis SAS correspondiente está disponible en doi: 10.17632/csgymw8kjk.1. Se proporciona un flujo de trabajo de análisis representativo, desde la señal cruda hasta la discriminación, cálculo de frecuencia, estandarización y métrica final de respuesta, en la Figura 7.
- Evalue el efecto del estímulo visual comparando la frecuencia del marcapasos durante el período basal previo al estímulo, el período del estímulo y el período post-estímulo, utilizando las marcas de tiempo de las señales de marcapasos corregidas por el retraso entre el comando TTL registrado por LabVIEW (Canal 2) y el inicio del estímulo verificado por Arduino (Canal 3).
- Calcule la frecuencia de la señal de marcapasos como el inverso del intervalo entre señales a lo largo del registro.
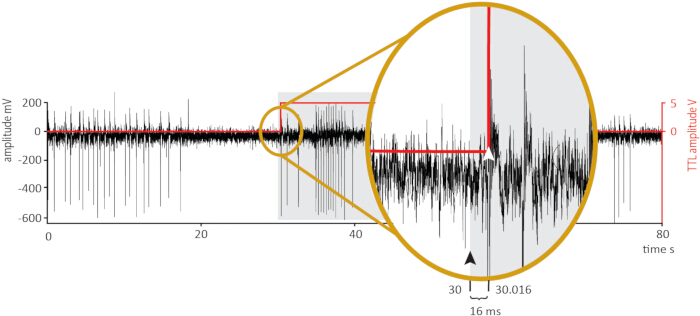
Figura 6: Demostración representativa de la corrección del marcador de tiempo del marcapasos para la temporización verificada mediante estímulo. Grabación de ejemplo que ilustra el retraso entre el comando TTL registrado por el VI y el inicio del estímulo verificado por Arduino, verificado individualmente para cada grabación mediante la cadena de temporización Arduino/fotodiodo y exportado a una hoja de cálculo (Tabla Suplementaria 1) para su uso directo por el script de análisis SAS al clasificar cada marcador de tiempo de la señal del marcapasos en su ventana preestímulo, de estímulo o postestímulo. Trazo negro (eje Y izquierdo): señal electropisiológica (mV). Trazo rojo (eje Y derecho): amplitud TTL (V). La región sombreada en gris marca la ventana de estimulación nominal según el marcador de tiempo del comando TTL registrado por el software. Inset: vista ampliada del inicio del TTL. La punta de flecha negra indica el momento registrado por LabVIEW del envío del TTL (t = 30.000 s, Canal 2); la punta de flecha blanca indica el inicio del estímulo verificado detectado mediante la cadena Arduino/fotodiodo (t = 30.016 s, Canal 3). El intervalo de 16 ms mostrado es un ejemplo representativo dentro del rango de <20 ms reportado para el desencadenamiento automático TTL-mouse (Resultados). Dado que este retraso es constante dentro de una grabación determinada, la transición correspondiente por compensación no se ilustra independientemente. Haga clic aquí para ver una versión más grande de esta figura.
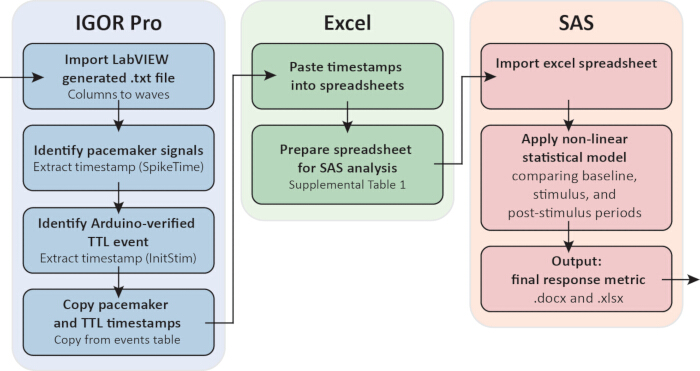
Figura 7: Flujo de trabajo representativo de análisis, desde la grabación cruda hasta la métrica final de respuesta. La señal marcapasos y las marcas de tiempo TTL se extraen de la tabla de eventos de Igor Pro/Neuromatic: los eventos de la señal marcapasos se identifican por su duración y morfología de la forma de onda (paso 7.1.2), y el inicio del estímulo verificado por Arduino (InitStim, Canal 3) se extrae para cada grabación como una marca de tiempo absoluta, no como un retraso calculado. Estas marcas de tiempo se copian en una hoja de cálculo (Tabla Suplementaria 1), que se prepara para el análisis en SAS mediante el cálculo del intervalo entre picos (Intval) y la marca de tiempo del punto medio (MidTime) para cada evento de la señal marcapasos. SAS importa la hoja de cálculo preparada y aplica un modelo estadístico no lineal (Bielecki et al., 202314) que compara la frecuencia del marcapasos durante los periodos preestímulo, estímulo y postestímulo, clasificados en relación con el inicio del estímulo verificado en cada grabación, para generar la métrica final de respuesta (resumen en formato .docx, tablas de datos en formato .xlsx). Haga clic aquí para ver una versión ampliada de esta figura.
Resultados
Calidad de la señal y actividad marcapasos espontánea
Tras la correcta colocación del electrodo en el nervio del pedículo epidérmico seccionado, deben observarse inmediatamente señales espontáneas del marcapasos en el osciloscopio. Una grabación de alta calidad se caracteriza por señales del marcapasos grandes y bien definidas, con una amplitud postamplificación de 400–600 mV, que ocurren a una frecuencia espontánea estable de 0,5–1 Hz, sobre una línea base de bajo ruido (desviación pico de aproximadamente 10–15 mV a cada lado del cero, lo que corresponde a una relación señal-ruido de aproximadamente 27–40:1 dentro del rango de amplitud objetivo) (Figura 5B). Pueden analizarse grabaciones con amplitudes de señal tan bajas como 100 mV, pero aumentan considerablemente el tiempo de discriminación de la señal en Igor Pro y no se recomiendan, especialmente para operadores inexpertos. La morfología de la forma de onda compuesta de la señal del marcapasos, que refleja la actividad sumada de múltiples neuronas trmOC, la distingue de las señales más cortas y agudas, similares a potenciales de acción, que también pueden estar presentes en la grabación24 (Figura 2C,D). Como se describe en el paso 7.1, estos dos tipos de señal deben discriminarse antes del análisis basándose en la duración de la señal (~45 ms para las señales del marcapasos frente a ~10 ms para las señales similares a potenciales de acción) y en la morfología de la forma de onda. La amplitud por sí sola no es un criterio fiable para la discriminación. La discriminación de señales en este protocolo fue realizada por un único operador experimentado; por lo tanto, no se calcularon estadísticas formales de fiabilidad interevaluadores (véase la sección Discusión, Limitaciones).
Respuesta de marcapasos evocada visualmente
En una preparación sana y receptiva, la presentación de un estímulo de barra vertical en movimiento por encima del DTT al ojo de la lente inferior produce una respuesta clara y sincronizada con el tiempo del marcapasos. La frecuencia de la señal del marcapasos aumenta a 2–3 Hz, coincidiendo con el paso del borde delantero del obstáculo a través del centro del campo visual, y regresa hacia la frecuencia basal tras la finalización del estímulo14 (Figura 5B). El momento de inicio del estímulo se verificó utilizando la cadena de temporización de Arduino/fotodiodo (paso 3.3), en lugar de confiar en la marca de tiempo informada por LabVIEW. Al usar el ratón TTL para avanzar el software de presentación, el rango verificado es <20 ms; al usar activación manual (un operador hace clic con un ratón sin modificar sincronizado con el inicio deseado), el rango verificado es de 100–150 ms. Dado que el análisis de la respuesta utiliza el inicio verificado (canal 3) en lugar del disparador informado por el software (canal 2), este rango no afecta la cuantificación de la respuesta, independientemente del método de activación. Este aumento de frecuencia constituye el correlato electrofisiológico del comportamiento de evasión de obstáculos observado en animales que nadan libremente, y su presencia confirma tanto la viabilidad de la preparación como la correcta alineación óptica del ojo de la lente inferior con la pantalla de proyección.
La magnitud de la respuesta del marcapasos se evalúa mediante la frecuencia instantánea de la señal, calculada como la inversa del intervalo entre señales consecutivas del marcapasos. Este enfoque requiere al menos dos señales del marcapasos consecutivas para establecer un valor de frecuencia, lo que proporciona una protección inherente contra la detección de falsos positivos derivados de señales aisladas únicas.
El contraste del estímulo de barra en movimiento determina la magnitud de la respuesta evocada. En Bielecki et al. (2023)14, se utilizaron tres niveles de contraste (c = 0,20, 0,40 y 0,80), espaciados un f-stop entre sí. Estos valores específicos de contraste se seleccionaron para mantener la duración total del protocolo dentro de la ventana de grabación viable de aproximadamente 1 h. Los investigadores que estudien los límites de sensibilidad al contraste del ojo de lente inferior u otras propiedades específicas de la respuesta visual deben elegir niveles de contraste adecuados a su pregunta experimental, en lugar de adoptar estos valores de forma prescriptiva.
Grabaciones subóptimas y modos de fallo
En la práctica, aproximadamente el 90 % (9 de 10) de las preparaciones que cumplen con el criterio de viabilidad de aclimatación (paso 6.1.6) logran generar actividad espontánea estable y una respuesta evocada visual medible; esta proporción depende en gran medida de la experiencia del operador. Las preparaciones restantes suelen fallar por una de las siguientes razones: el modo de fallo más común es la pérdida progresiva del sello del electrodo durante la sesión de registro. Esto se manifiesta como una reducción gradual tanto de la amplitud de la señal del marcapasos como del nivel de ruido de fondo, lo que refleja un deterioro del contacto eléctrico entre la punta del electrodo y la terminación nerviosa (Figura 5A). Si se observa este patrón, se debe liberar la succión y reaplicarla después de reposicionar ligeramente la punta del electrodo sobre la superficie del tallo seccionado. Si la amplitud de la señal no se recupera, se debe evaluar la viabilidad de la preparación comprobando la presencia de actividad marcapasos espontánea. La ausencia total de señal tras intentos de reacoplamiento, en una preparación que ha estado aislada durante más de 1 h, probablemente refleje un deterioro de la preparación más que un fallo del electrodo, por lo que debe utilizarse una preparación fresca.
Un segundo modo de fallo es la ausencia de una respuesta evocada visual a pesar de una actividad espontánea estable del marcapasos. Esto debería llevar a una reevaluación de la configuración óptica antes de concluir que el preparado no responde. Las causas más comunes son el desalineamiento del ojo con la lente inferior respecto a la pantalla de proyección y la saturación de los fotorreceptores debido a una irradiancia excesiva. Debe repetirse el procedimiento de calibración biológica descrito en el paso 4.1.5, y aumentarse, si es necesario, la atenuación del filtro de densidad neutra. También debe verificarse que el estímulo de la barra en movimiento permanezca dentro del campo visual durante todo su desplazamiento, ya que la salida del estímulo del campo visual provocaría una respuesta de apagado de la luz y podría introducir actividad espuria del marcapasos en el registro.
Un tercer patrón — un ruido de fondo elevado que oculta las señales del marcapasos — refleja comúnmente un problema de conexión a tierra o interferencias de la red eléctrica. Debe verificarse la configuración de conexión a tierra en estrella descrita en el paso 3.2.1, y confirmarse que el filtro de muesca de 50/60 Hz esté activado.
Archivo suplementario 1: Programa Arduino. Implementa la detección del inicio del estímulo basada en un fotodiodo: el Arduino Uno muestrea el fotodiodo, monitoreando el cuadrado indicador blanco y negro en la pantalla de presentación (paso 1.4.2) a 1 kHz, convierte la señal analógica cruda en un pulso digital TTL limpio mediante comparación con un umbral y emite este pulso como la señal verificada de temporización del estímulo (canal 3, paso 6.2.1).Haga clic aquí para descargar este archivo.
Archivo suplementario 2: Archivo de estímulo representativo. Ejemplo de archivo de software de presentación (Keynote) que implementa el estímulo visual de barra en movimiento como una animación continua de un solo objeto y el cuadrado indicador en blanco y negro para la verificación del cronograma (paso 1.4). Los lectores que diseñen sus propias secuencias de estímulos deben asegurarse de que la pantalla permanezca estable durante un período adecuado de acomodación antes de cada inicio de estímulo; el bucle de retroalimentación con fotodiodo/Arduino (paso 3.3) verifica el cronograma real del estímulo independientemente del software de presentación específico o del diseño de diapositivas utilizado.Haga clic aquí para descargar este archivo.
Archivo suplementario 3: Instrumento virtual (VI) de LabVIEW. Configure el dispositivo DAQ NI USB-6343 con dos canales de entrada analógica — AI0 (señal electrofisiológica del amplificador) y AI1 (TTL de inicio del estímulo verificado por Arduino, la señal de retroalimentación del fotodiodo) — y un canal de salida analógica, AO0, que envía un pulso TTL al ratón TTL en el momento programado del estímulo para avanzar la diapositiva del software de presentación. El archivo de salida .txt resultante registra tres columnas: la señal electrofisiológica (AI0), la marca de tiempo registrada por LabVIEW del comando de activación AO0 (un registro de software, no una señal readquirida) y el TTL verificado por Arduino (AI1).Haga clic aquí para descargar este archivo.
Tabla suplementaria 1: Formato de archivo de entrada para SAS. Definiciones de columnas y un ejemplo desarrollado para la hoja de cálculo cargada en SAS para el análisis estadístico (paso 7.2.1). Cuatro marcas de tiempo consecutivas del señal del marcapasos provenientes de una grabación representativa ilustran el cálculo del intervalo entre picos (Intval) y la marca de tiempo del punto medio (MidTime) utilizados en el cálculo de la frecuencia; el último evento listado no tiene valor de Intval/MidTime, ya que no existe una marca de tiempo posterior para completar el intervalo.Haga clic aquí para descargar este archivo.
Discusión
Varios pasos en este protocolo son fundamentales para obtener grabaciones confiables. El más importante es la fabricación y preparación del electrodo de succión. Aunque cualquier electrodo que optimice la relación señal-ruido es aceptable para grabaciones estándar del marcapasos evocado visualmente, una resistencia conectada de aproximadamente 1 MΩ se vuelve específicamente crítica cuando el preparado se utiliza para la administración de un estímulo eléctrico incondicionado, ya que es necesaria para calcular la corriente administrada14. Únicamente con fines de grabación, el criterio principal es la calidad de la señal y no un valor específico de resistencia.
Igualmente crítico es la calibración biológica del sistema óptico antes de comenzar las grabaciones (paso 4.1.5). Dado que la salida del proyector, la configuración del lente y la reflectancia de la pantalla interactúan para determinar la irradiancia efectiva en el ojo con lente inferior, no puede especificarse un valor de irradiancia universalmente aplicable. La calibración biológica (utilizando la respuesta de frecuencia del marcapasos a un estímulo de contraste máximo como criterio para el rango dinámico del fotorreceptor) proporciona un método autoválido e independiente del hardware para establecer la intensidad adecuada del estímulo. Este paso no debe omitirse, ya que la saturación del fotorreceptor por una irradiancia excesiva abolirá las respuestas del marcapasos evocadas visualmente y podría confundirse con una preparación no receptiva.
Mantener la sumersión del rópalio durante todo el proceso de aislamiento y transferencia es fundamental. El sistema nervioso rópalio es extremadamente sensible a la desecación, y una exposición breve al aire puede dañar irreversiblemente la preparación. Todos los pasos de transferencia deben realizarse con agua de mar presente, y la cámara de registro debe llenarse con agua de mar del tanque de cultivo filtrada a 0,20 µm antes de introducir el rópalio.
Finalmente, la colocación de los electrodos sobre la superficie del tallo seccionado requiere paciencia. Los terminales nerviosos epidérmicos del tallo no siempre son visualmente identificables, y la colocación correcta debe confirmarse mediante la aparición de señales espontáneas de marcapasos en el osciloscopio.
La causa más común de fallo en la grabación es la pérdida del sello del electrodo durante la sesión. Para minimizar este riesgo, todos los protocolos deben completarse dentro de una hora tras el aislamiento del rópalio. El límite de una hora recomendado aquí es una elección práctica conservadora, que refleja la expectativa general de que una preparación neural aislada, desconectada del resto del animal, no puede considerarse que permanezca completamente representativa de la función fisiológica intacta indefinidamente, incluso cuando persiste la actividad marcapasos. Los rópalios aislados permanecen viables, en el sentido de generar señales marcapasos detectables, durante un tiempo considerablemente mayor que la ventana de grabación utilizada en este protocolo, hasta aproximadamente 5 h tras el aislamiento; sin embargo, no se ha caracterizado sistemáticamente si las respuestas registradas al final de esta ventana siguen siendo completamente representativas de una preparación intacta, y se utiliza el límite de 1 h como un margen conservador en lugar de un umbral precisamente definido. La pérdida progresiva del sello del electrodo es un modo de fallo técnico independiente y fácilmente identificable, y es la causa más común de pérdida de señal dentro de una sola sesión de grabación (véase más abajo), pero esto no descarta una contribución del estado de la preparación a cambios más sutiles en la respuesta a lo largo del tiempo. Si ocurre una pérdida del sello durante una grabación, se puede liberar la succión, reposicionar el electrodo sobre la superficie del pedúnculo seccionado y reaplicar la succión. Sin embargo, si la preparación ha estado aislada durante más de una hora, es recomendable comenzar con una preparación nueva en lugar de invertir tiempo en solucionar problemas de una preparación en declive.
La configuración de los filtros debe considerarse como puntos de partida, no como parámetros fijos. Los valores de los filtros de banda especificados en este protocolo (filtro pasa-altos de 1 Hz, filtro pasa-bajos de 500 Hz, filtro de muesca de 50/60 Hz) son los que optimizan la relación señal-ruido en el entorno de grabación de los autores. Los laboratorios con niveles diferentes de interferencia eléctrica, o que utilicen modelos distintos de amplificadores, podrían necesitar ajustar empíricamente estos parámetros mediante los controles del amplificador, mientras monitorean la señal en la pantalla del osciloscopio al comienzo de cada sesión.
Si no hay actividad marcapasos espontánea tras la colocación del electrodo, se debe evaluar el preparado antes de comenzar a solucionar problemas con el electrodo. Un rópalo aislado saludable mostrará señales marcapasos espontáneas a 0,5–1 Hz en cuestión de minutos tras la colocación del electrodo. La ausencia de actividad espontánea generalmente refleja daño del preparado durante el aislamiento o la transferencia, más que un fallo del electrodo. Por el contrario, si hay actividad espontánea pero no se obtiene ninguna respuesta evocada visualmente, se debe repetir la calibración óptica antes de concluir que el preparado no responde.
Para laboratorios que adapten este protocolo a diferentes equipos, la cadena de verificación de temporización con el ratón TTL y el Arduino Uno descrita en el paso 3.3 puede sustituirse por cualquier sistema que proporcione un registro de ventana de estímulo a nivel de hardware, independiente del software y adquirido de forma sincrónica con el trazado electrofisiológico. La implementación específica descrita aquí fue desarrollada para conectar el entorno de adquisición LabVIEW en una PC con el software de presentación en un ordenador separado, y representa una solución técnica práctica a un desafío común de integración entre plataformas. El principio fundamental de que los disparadores de software por sí solos son insuficientes para un análisis preciso del tiempo entre estímulo y respuesta es válido independientemente de la plataforma de hardware utilizada.
La limitación principal de la preparación de rópalos aislados es que registra de un único rópalo en aislamiento. En el animal intacto, los cuatro rópalos están conectados mediante el nervio anular15 y sus salidas se integran para producir un comportamiento coordinado de nado. La comunicación entre rópalos no es accesible en esta preparación. Sin embargo, con el fin de investigar el procesamiento de la información visual dentro de un sistema nervioso rópalo individual, este aislamiento constituye una ventaja más que una debilidad. Elimina la influencia confundente de las entradas provenientes de otros rópalos y permite caracterizar completamente las propiedades de respuesta visual de un único SNR.
El aislamiento del rópalio también excluye el contexto sensorial multimodal más allá del propio rópalio; los quimiorreceptores putativos descritos anatómicamente en su superficie17 no se han relacionado funcionalmente con la respuesta del marcapasos, por lo que la señal puede interpretarse razonablemente como una lectura del procesamiento visual, en gran parte independiente de entradas no visuales. Una limitación más fundamental es que el registro extracelular del nervio del tallo capta únicamente la señal integrada de salida motora trmOC. Las contribuciones individuales de las subOC al procesamiento visual no pueden resolverse electrofisiológicamente; esto requiere enfoques de imágenes in vivo con resolución espacial. Por lo tanto, el método electrofisiológico descrito aquí mide el comando motor integrado final, no los pasos intermedios del procesamiento dentro del SNC.
Esto tiene una importante consecuencia práctica: el protocolo de electrofisiología de rópalos aislados no es un método independiente. Es imprescindible realizar un análisis del comportamiento del animal completo antes de diseñar experimentos con rópalos aislados, con el fin de determinar qué estímulos visuales inducen comportamientos que alteran la frecuencia de contracción del campanario. Los comportamientos que no producen un cambio en la frecuencia del señal del marcapasos no pueden evaluarse mediante este enfoque. La lectura electrofisiológica es específicamente una medida de la salida motora de natación, y los diseños experimentales deben basarse en una caracterización conductual previa para asegurar que los estímulos elegidos afecten esta salida.
El éxito del registro y la clasificación de las señales dependen ambos de la experiencia del operador. Aproximadamente el 90 % de las preparaciones que cumplen con el criterio de viabilidad de aclimatación (paso 6.1.6) producen actividad espontánea estable y una respuesta evocada visualmente medible en manos de un operador experimentado; se espera que esta proporción sea menor en las etapas iniciales de la curva de aprendizaje. La discriminación de señales entre formas de onda similares a las del marcapasos y a los potenciales de acción (paso 7.1.2) fue realizada por un único operador experimentado en este estudio; dado que la evaluación formal de la fiabilidad interobservador requiere múltiples observadores independientes, no fue posible calcular un estadístico de acuerdo interobservador. En su lugar, se mantuvo la consistencia interna comparando las formas de onda ambiguas con una señal de identidad conocida dentro del mismo registro, típicamente una respuesta evocada al contraste máximo.
Las elecciones de hardware y software en este protocolo —una lente de proyector modificada, un ratón TTL personalizado, la cadena de temporización con Arduino y LabVIEW/Igor Pro/SAS— reflejan equipos y conocimientos ya disponibles en el laboratorio de los autores, y no un requisito del método. La lente del proyector fue modificada porque la configuración estándar no cumplía con los requisitos del montaje. El ratón TTL conecta la computadora de estímulo con la computadora de adquisición: LabVIEW envía un pulso TTL al ratón y registra el momento del envío (canal 2), y el clic del ratón desencadena la generación del estímulo mediante USB. Dado que el retraso entre este disparador registrado y el cambio real en la pantalla es variable, una cadena independiente de fotodiodo/Arduino verifica el inicio real del estímulo y envía un segundo TTL de regreso al DAQ (canal 3); podría existir una alternativa comercial al ratón, pero los autores no la conocen. Ninguno de estos componentes de hardware requiere habilidades especializadas de fabricación ni tiene un costo elevado, y cualquier sistema de adquisición sustituto solo necesita cumplir con el mismo requisito de muestreo sincronizado multicanal a 1 kHz, más las competencias en electrónica o programación que esto implique. Con una excepción: personalizar un amplificador analógico adecuado requiere experiencia en diseño de circuitos de bajo ruido, conocimiento que no se presupone en el lector.
T. cystophora combina la sofisticación visual de sistemas genéticamente accesibles como Drosophila y el pez cebra con la accesibilidad a nivel de circuitos de sistemas numéricamente simples como C. elegans: el sistema nervioso rupal comprende aproximadamente 1000 neuronas, en comparación con alrededor de 200.000 en el cerebro de Drosophila1 y 302 en todo el sistema nervioso de C. elegans2. Una ventaja adicional de este sistema es su jerarquía sensorial: T. cystophora posee múltiples modalidades sensoriales, incluyendo mecanorrecepción (implicada funcionalmente en el aprendizaje asociativo14) y quimiorrecepción putativa (descrita anatómicamente pero no demostrada funcionalmente17), además de la visión. Sin embargo, en el preparado aislado de rópalo, solo se ha demostrado funcionalmente que la visión impulse la respuesta del marcapasos evaluada mediante este protocolo, lo que permite interpretar la señal como una lectura comparativamente libre de interferencias del procesamiento visual, sin la complejidad interpretativa que surge cuando múltiples sentidos activos simultáneos moldean conjuntamente una respuesta conductual. Los estímulos visuales pueden especificarse con precisión en espacio, tiempo y contraste, mientras que la señal del marcapasos puede utilizarse como un indicador cuantitativo de la salida motora inducida por la visión, relevante para el comportamiento del animal completo14.
Más allá de la electrofisiología visual, la preparación aislada del rópalo se ha aplicado con éxito a la investigación farmacológica del SNC mediante ensayos de neurotransmisores y neuromoduladores aplicados al baño, lo que permite identificar los sistemas de transmisores que modulan la actividad del marcapasos24. La preparación también es adecuada para técnicas de imagen de calcio y voltaje. Trabajos preliminares no publicados en el laboratorio de los autores, que utilizan un indicador de calcio permeable a la célula, respaldan la viabilidad de la imagen de calcio en esta preparación; la imagen de voltaje aún no se ha probado. Estas técnicas podrían probar directamente la arquitectura de la red subOC–trmOC, que sigue siendo un modelo operativo, y ofrecerían la resolución espacial necesaria para analizar por separado la actividad de subOC y trmOC durante la estimulación visual, una capacidad que el registro extracelular por sí solo no puede proporcionar. En conjunto, estos enfoques complementarios sitúan al rópalo aislado de T. cystophora como una preparación altamente manejable para investigaciones a nivel de sistemas del procesamiento visual y la integración sensoriomotora en un sistema nervioso de complejidad definida y limitada.
Divulgaciones
Los autores declaran que no tienen intereses competidores.
Agradecimientos
Los autores agradecen a Dan-eric Nilsson el uso de la imagen del rópalio (Figura 1B), la asistencia técnica brindada por Mathias Hoppe, Ingo Klein, Olaf Wendt y Holger Voigt (Universidad de Kiel) y la ayuda de los miembros del Grupo de Biología Sensorial (Universidad de Copenhague) en el mantenimiento de los cultivos. Financiado por la Deutsche Forschungsgemeinschaft (DFG, Fundación Alemana para la Investigación) – ID del proyecto 567357102 (J.B.)
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Placa de Petri de 35 mm | Nunc | 153066 | Cualquier placa de Petri equivalente adecuada |
| Arduino Uno | Arduino | — | Convierte la señal del fotodiodo en TTL para verificar el momento del estímulo; frecuencia de actualización de 1 kHz |
| Lente biconvexa f = 30 mm | Linos | G063-022-000 | Sustituye la lente del fabricante; enfoca la imagen en la pared de la pantalla de proyección de la cámara de registro |
| Tubo capilar de vidrio borosilicatado, 1.16 mm DI × 2.00 mm DE × 80 mm L | Science Products | GB200-8P | Para la fabricación del electrodo de succión |
| Pipeta desechable de transferencia | Sarstedt | 86.1171 | Punta cortada a una abertura de ~8 mm para la transferencia del animal |
| Soporte de electrodo PPH-OP-BNCPC | ALA Scientific Instruments | PPH-OP-BNCPC | Soporte tipo BNC con puerto de succión; suministrado con hilo de Ag de ~0.25 mm |
| Amplificador extracelular EXT-10-2F | NPI Electronic | — | Amplificador diferencial con acoplamiento AC; preamplificador ×10, amplificador principal ×100, ganancia total ×1000; filtro pasa banda integrado: paso alto 1 Hz, paso bajo 500 Hz; filtro supresor de 50/60 Hz activado; suministrado con brazo del preamplificador |
| Cubreobjetos para hematocitómetro de 20 mm × 26 mm | Carl Roth | L 189 | Descansa sobre los salientes del cubreobjetos por flotación negativa; más resistente que los cubreobjetos estándar |
| Igor Pro 6.37 | WaveMetrics Inc. | Version 6.37 | Lake Oswego, OR, EE. UU.; para el análisis de la señal del marcapasos |
| LabVIEW 2016 | National Instruments | Version 2016 | Software de adquisición y control de estímulos; VI suministrado como material suplementario |
| Jeringa con cierre Luer-lock | — | — | Genérica; cualquier jeringa de laboratorio estándar con cierre Luer-lock adecuada |
| Microforjador MF-2 | Narishige | — | Para el pulido de la punta del electrodo (Opción A) |
| Micromanipulador MM33 | Märzhäuser Wetzlar | 00-42-101-0000 (derecho) / 00-42-102-0000 (izquierdo) | Manual, tres ejes; se requieren dos (para pipeta de sujeción y electrodo de registro) |
| Traccionador de micropipetas, Flaming/Brown P-1000 | Sutter Instrument | P-1000 | Programa de tracción: Línea 1×1: calor 535, tracción 0, vel 12, tiempo 200, presión 600, rampa 540; Líneas 2–4 × 3: calor 532, tracción 0, vel 12, tiempo 100 |
| Complemento Neuromatic v2.00 | — | Version 2.00 | Para Igor Pro; discriminación de la señal del marcapasos y extracción de marcas de tiempo |
| Filtro de densidad neutra | Thorlabs | NE10A | Transmisión del 10 %; la atenuación debe validarse empíricamente mediante calibración biológica (paso 4.1) |
| DAQ NI USB-6343 | National Instruments | 781438-01 | DAQ multifunción de 16 bits; adquisición de electrofisiología, entrega de estímulo TTL para ratón, entrada TTL para Arduino; frecuencia de muestreo de 1 kHz |
| Proyector DLP Optoma ML750 | Optoma | ML750 | Sistema de lentes del fabricante eliminado; sustituido por una lente biconvexa única f = 30 mm |
| Osciloscopio DS1102E | Rigol | DS1102E | Para monitoreo en tiempo real de la señal durante la colocación del electrodo y la optimización del filtro |
| Pipeta Pasteur de 150 mm | Carl Roth | 4518 | Para la transferencia del rópalio |
| Fotodiodo BRW21 | OSRAM | BRW21 | Fotodiodo de silicio; monitorea el cuadrado indicador blanco y negro en la pantalla del ordenador |
| SAS | SAS Institute Inc. | doi: 10.17632/csgymw8kjk.1 | Cary, NC, EE. UU.; análisis estadístico de la respuesta del marcapasos; código disponible en doi: 10.17632/csgymw8kjk.1 |
| Tubo de silicona | Erich Eydam KG | 9205000 | Para la conexión de succión entre el soporte del electrodo y la jeringa |
| Filtro de jeringa Filtropur S, 0.20 µm PES | Sarstedt | 83.1826.001 | Para filtrar el agua de mar del tanque de cultivo destinada a la cámara de registro y los recipientes de preparación |
| Tijeras de Vannas | World Precision Instruments | 500086 | Cuchilla de 0.025 mm × 0.015 mm; para la sección del tallo rópalial |
| WTE var 3185 | Assistent | — | Controlador de temperatura de baño de agua |
Referencias
- Raji JI, Potter CJ. The number of neurons in Drosophila and mosquito brains. PLoS ONE. 2021;16(5):e0250381.
- Sasakura H, Mori I. Behavioral plasticity, learning, and memory in C. elegans. Curr Opin Neurobiol. 2013;23(1):92-99.
- Bielecki J, et al. Pattern recognition in the box jellyfish rhopalial nervous system mimicked by an ensemble of pulsed coupled oscillators. Springer Series on Bio- and Neurosystems. Springer, Cham, 2024.
- Bielecki J, Garm A. Vision made easy: Cubozoans can advance our understanding of systems-level visual information processing. Marine organisms as model systems in biology and medicine. Springer, Cham, 2018.
- Nilsson D-E, Gislén L, Coates MM, Skogh C, Garm A. Advanced optics in a jellyfish eye. Nature. 2005;435(7039):201-205.
- Yatsu N. Notes on the physiology of Charybdea rastonii. J Coll Sci Imp Univ Tokyo. 1917;40:1-12.
- Bielecki J, et al. Ocular and extraocular expression of opsins in the rhopalium of Tripedalia cystophora (Cnidaria: Cubozoa). PLoS One. 2014;9(6):e98870.
- Plachetzki DC, Degnan BM, Oakley TH. The origins of novel protein interactions during animal opsin evolution. PLoS One. 2007;2(10):e1054.
- Koyanagi M, et al. Jellyfish vision starts with cAMP signaling mediated by opsin-Gs cascade. Proc Natl Acad Sci U S A. 2008;105(40):15576-15580.
- Kozmik Z, et al. Assembly of the cnidarian camera-type eye from vertebrate-like components. Proc Natl Acad Sci U S A. 2008;105(26):8989-8993.
- Garm A, Oskarsson M, Nilsson D-E. Box jellyfish use terrestrial visual cues for navigation. Curr Biol. 2011;21(9):798-803.
- Buskey E. Behavioral adaptations of the cubozoan medusa Tripedalia cystophora for feeding on copepod (Dioithona oculata) swarms. Mar Biol. 2003;142(2):225-232.
- Garm A, Mori S. Multiple photoreceptor systems control the swim pacemaker activity in box jellyfish. J Exp Biol. 2009;212(24):3951.
- Bielecki J, Dam Nielsen SK, Nachman G, Garm A. Associative learning in the box jellyfish Tripedalia cystophora. Curr Biol. 2023;33(19):4150-4159.e5.
- Garm A, Poussart Y, Parkefelt L, Ekström P, Nilsson D-E. The ring nerve of the box jellyfish Tripedalia cystophora. Cell Tissue Res. 2007;329(1):147-157.
- Garm A, Hedal I, Islin M, Gurska D. Pattern- and contrast-dependent visual response in the box jellyfish Tripedalia cystophora. J Exp Biol. 2013;216(24):4520-4529.
- Skogh C, Garm A, Nilsson D-E, Ekström P. Bilaterally symmetrical rhopalial nervous system of the box jellyfish Tripedalia cystophora. J Morphol. 2006;267(12):1391-1405.
- Nielsen SKD, Koch TL, Wiisbye SH, Grimmelikhuijzen CJP, Garm A. Neuropeptide expression in the box jellyfish Tripedalia cystophora—new insights into the complexity of a "simple" nervous system. J Comp Neurol. 2021;529(11):2865-2882.
- Satterlie RA, Spencer AN. Swimming control in a cubomedusan jellyfish. Nature. 1979;281(5727):141-142.
- Garm A, Bielecki J. Swim pacemakers in box jellyfish are modulated by the visual input. J Comp Physiol A. 2008;194(7):641.
- Govardovskii VI, Fyhrquist N, Reuter T, Kuzmin DG, Donner K. In search of the visual pigment template. Vis Neurosci. 2000;17(4):509-528.
- Garm A, Coates MM, Gad R, Seymour J, Nilsson D-E. The lens eyes of the box jellyfish Tripedalia cystophora and Chiropsalmus sp. are slow and color-blind. J Comp Physiol A. 2007;193(5):547-557.
- Stamatis S-A, Worsaae K, Garm A. Regeneration of the rhopalium and the rhopalial nervous system in the box jellyfish Tripedalia cystophora. Biol Bull. 2018;234(1):22-36.
- Bielecki J, Nachman G, Garm A. Swim pacemaker response to bath applied neurotransmitters in the cubozoan Tripedalia cystophora. J Comp Physiol A. 2013;199(9):785-797.
- Bielecki J, Høeg JT, Garm A. Fixational eye movements in the earliest stage of metazoan evolution. PLoS ONE. 2013;8(6):e66442.