Análisis integrados de bioinformática y experimentales identificaron a LINC01871 como un predictor potencial de la sensibilidad a los inhibidores de la quinasa dependiente de ciclina 4/6 y mostraron que la sobreexpresión de LINC01871 suprime la proliferación del cáncer de mama y se asocia con una señalización reducida de NF-κB.
Artículo de investigación
Sensibilidad a los inhibidores de las quinasas dependientes de ciclina 4/6 mediada por LINC01871 en el cáncer de mama humano
En este artículo
Resumen
Resumen
El cáncer de mama sigue siendo la malignidad más frecuentemente diagnosticada en mujeres, y la resistencia a los inhibidores de la cinasa dependiente de ciclina 4 y 6 (CDK4/6) limita la eficacia del tratamiento a largo plazo. Este estudio tuvo como objetivo identificar ARN largos no codificantes (lncARN) asociados con la sensibilidad predicha a los inhibidores de CDK4/6 e investigar sus funciones biológicas en el cáncer de mama. Se integraron datos transcriptómicos del Atlas del Genoma del Cáncer (TCGA) y datos de sensibilidad a fármacos de la base de datos Genómica de la Sensibilidad a Fármacos en el Cáncer 2 (GDSC2), y se predijo la sensibilidad a fármacos mediante el algoritmo oncoPredict. Los lncARN candidatos se identificaron mediante análisis de expresión diferencial, análisis de red de coexpresión génica ponderada, análisis pronóstico y aprendizaje automático. Posteriormente, se evaluaron las funciones biológicas de LINC01871 mediante experimentos in vitro e in vivo. Se identificaron 62 lncARN asociados con la sensibilidad predicha a ribociclib y palbociclib, y se seleccionaron seis lncARN centrales. LINC01871 mostró el mayor desempeño discriminatorio para la sensibilidad predicha al fármaco. La sobreexpresión de LINC01871 se asoció con un aumento en la sensibilidad de las células de cáncer de mama al ribociclib y al palbociclib, la inhibición de la proliferación celular, la promoción de la apoptosis y la supresión de la señalización del factor nuclear kappa B (NF-κB). El análisis transcriptómico a nivel de célula individual demostró una alta expresión de LINC01871 en linfocitos T y células asesinas naturales (células NK), mientras que los análisis de infiltración inmunitaria basados en el transcriptoma mostraron que una alta expresión de LINC01871 se asociaba con un mayor grado de infiltración inmunitaria. Estos hallazgos identifican a LINC01871 como un biomarcador candidato de sensibilidad a los inhibidores de CDK4/6 y demuestran sus efectos supresores tumorales en el cáncer de mama. Se requieren estudios clínicos y mecanicistas adicionales para validar su valor predictivo y su relevancia terapéutica.
Introducción
El cáncer de mama sigue siendo una causa importante de mortalidad por cáncer entre las mujeres en todo el mundo, a pesar de los continuos avances en su manejo clínico1,2. El tratamiento ha ido ampliándose progresivamente más allá de la terapia endocrina y la quimioterapia para incluir enfoques dirigidos molecularmente3. Entre estos, los inhibidores de las quinasas dependientes de ciclina 4 y 6 (CDK4/6), como la ribociclib, la palbociclib y la abemaciclib, han producido beneficios clínicos sustanciales en el cáncer de mama positivo para el receptor de estrógenos y/o para el receptor de progesterona4,5,6. No obstante, un tratamiento prolongado puede ir acompañado de resistencia adquirida, lo que limita la duración del beneficio terapéutico7.
La inhibición de CDK4/6 actúa principalmente a través del eje regulador del ciclo celular Rb–E2F. La inhibición de la actividad de CDK4/6–ciclina D disminuye la fosforilación de la proteína del retinoblastoma (Rb), permitiendo que Rb hipofosforilada restrinja la transcripción dependiente de E2F y, en consecuencia, promueva el arresto en la fase G1 y limite la proliferación de células tumorales8. Aunque se han caracterizado varios mecanismos que contribuyen a la resistencia a los inhibidores de CDK4/6, estos no explican completamente las diferencias en la respuesta al tratamiento. Estos mecanismos incluyen la activación aberrante de la vía fosfatidilinositol 3-cinasa/proteína cinasa B/blanco mamífero de la rapamicina (PI3K/AKT/mTOR) y el aumento en la expresión de complejos ciclina–CDK9,10. Es importante destacar que los componentes de la vía PI3K/AKT/mTOR son en sí mismos objetivos terapéuticos en enfermedades avanzadas11. En conjunto, estas observaciones indican que aún quedan por identificar determinantes moleculares adicionales de la sensibilidad y resistencia a los inhibidores de CDK4/6. La relevancia clínica de los biomarcadores predictivos se ilustra mediante estrategias emergentes guiadas por biomarcadores en el cáncer de mama metastásico positivo para receptores hormonales. Por ejemplo, el análisis seriado del ADN tumoral circulante (ctDNA) puede detectar la aparición de mutaciones en ESR1 durante el tratamiento basado en inhibidores de CDK4/6. Los estudios PADA-1 y SERENA-6 mostraron que dicha detección molecular puede orientar un cambio temprano en la terapia endocrina mientras se mantiene la inhibición de CDK4/612,13. Sin embargo, las mutaciones en ESR1 representan solo un determinante de la respuesta terapéutica y no pueden explicar todos los casos de sensibilidad o resistencia. Esta limitación tiene una relevancia clínica creciente, ya que los pacientes con cáncer de mama metastásico positivo para receptores hormonales y negativo para HER2 que progresan durante el tratamiento basado en inhibidores de CDK4/6 ahora tienen varias opciones terapéuticas posteriores, incluyendo degradadores orales selectivos del receptor de estrógeno, inhibidores de la vía PI3K/AKT y conjugados anticuerpo–fármaco. Por lo tanto, la identificación de biomarcadores candidatos adicionales asociados con diferencias en la sensibilidad a los inhibidores de CDK4/6 podría ayudar a distinguir a los pacientes con mayor probabilidad de beneficiarse de estas terapias de aquellos que podrían requerir una adaptación terapéutica más temprana.
Los ARN no codificantes largos (lncARN) son transcritos sin capacidad de codificación proteica que participan en la regulación de numerosos procesos biológicos. Varios lncARN se han relacionado con la progresión del cáncer y la respuesta al tratamiento. En el carcinoma de células escamosas orales, se ha informado que LOC100506114 promueve la proliferación y la migración mediante su interacción con el factor de transcripción RUNX y la consiguiente regulación de la expresión génica downstream14. En el cáncer de mama, HISLA se ha asociado con un aumento de la glucólisis y una resistencia mejorada a la apoptosis15, mientras que LINC02568 contribuye a la resistencia endocrina mediante la regulación de ESR1 y CA1216. A pesar del reconocido papel de los lncARN en la biología del cáncer, su relación con la resistencia a los inhibidores de CDK4/6 sigue siendo insuficientemente caracterizada. En este estudio, se utilizó una estrategia integrada de multi-ómica y aprendizaje automático para identificar lncARN asociados con la sensibilidad predicha a ribociclib y palbociclib, a partir de la cual LINC01871 surgió como un candidato. Posteriormente, examinamos la asociación de LINC01871 con la sensibilidad a ambos fármacos y evaluamos sus efectos sobre la proliferación de células de cáncer de mama mediante enfoques experimentales in vitro e in vivo.
Protocolo
All procedures involving animals were performed under institutional animal-welfare requirements and received approval from the Animal Ethical and Welfare Committee of Fujian Cancer Hospital & Fujian Medical University Cancer Hospital (Approval No. SQ2021-159-01).
Data acquisition
Bulk transcriptomic profiles were downloaded from TCGA in January 2025 and converted to transcripts per million (TPM) before downstream analysis. Single-cell RNA-sequencing data were obtained from the Gene Expression Omnibus (GEO), using dataset GSE161529.
Drug sensitivity estimation of ribociclib and palbociclib
GDSC2 data were used to train the drug-response prediction model, and TCGA-BRCA transcriptomic profiles were used as the test dataset. Clinical information required for the subgroup analysis was retrieved from the TCGA Pan-Cancer Atlas Clinical with Follow-up dataset. Four clinical variables were considered: ER status (breast_carcinoma_estrogen_receptor_status), PR status (breast_carcinoma_progesterone_receptor_status), HER2 status determined by IHC (lab_proc_her2_neu_immunohistochemistry_receptor_status), and HER2 status determined by FISH (lab_procedure_her2_neu_in_situ_hybrid_outcome_type). A tumor was classified as HR-positive if either ER or PR was annotated as “Positive.” A tumor was classified as HER2-negative when at least one of the HER2 IHC or FISH results was negative and neither test had a positive result. Cases for which HR or HER2 status could not be definitively determined were excluded. Using these criteria, 601 patients were identified as HR-positive/HER2-negative. Among them, 599 had corresponding records in both the Pan-Cancer clinical dataset and the TCGA-BRCA expression matrix and were included in the subgroup analysis. Ribociclib and palbociclib IC₅₀ values were estimated with the oncoPredict R package (version 1.2) using default parameters. Scatter plots generated with ggplot2 were used to display the distribution of predicted IC₅₀ values among patients. Patients within the highest 25% of predicted IC₅₀ values were designated as resistant, whereas those within the lowest 25% were designated as sensitive.
Identification of CDK4/6 inhibitor resistance–related genes
Differential expression between the predicted sensitive and resistant groups was assessed using the limma package, and the resulting gene-expression patterns were displayed as volcano plots with ggplot2. Weighted gene co-expression network analysis (WGCNA) was then conducted with the WGCNA package to identify expression modules associated with resistance to both CDK4/6 inhibitors. Genes shared across the four resulting datasets were identified and illustrated using the VennDiagram package. The intersecting genes were subsequently evaluated by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer packages, with corresponding survival curves generated for visualization. Genes reaching statistical significance in both survival analyses were entered into LASSO regression with the glmnet package to select core prognostic factors. The ability of the selected genes to discriminate predicted drug resistance was then assessed by ROC analysis using pROC, with performance quantified by the area under the ROC curve. AUC values for the different drugs were compared graphically using bar plots generated with ggplot2.
Single-gene analysis of LINC01871
LINC01871 expression was first compared between tumor and normal tissues by differential expression analysis. Its prognostic association across multiple cancer types was subsequently examined by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer R packages. Differences in LINC01871 expression among clinicopathological groups were assessed with the Wilcoxon rank-sum test and displayed as boxplots using ggpubr. For the single-cell RNA-sequencing analysis, data preprocessing and downstream analysis were carried out with Seurat. Inter-batch variation was corrected using Harmony with its default parameter settings. Following batch correction, the resulting cell clusters were represented in a UMAP embedding. Cell identities were then assigned automatically with SingleR using reference transcriptomic profiles.
Functional enrichment analysis
Genes showing differential expression between the high- and low-LINC01871 groups were determined with the limma package. In parallel, Pearson correlation analysis was used to identify mRNAs whose expression levels were correlated with LINC01871 expression. GO and KEGG enrichment analyses were subsequently conducted with clusterProfiler. The resulting enrichment profiles were presented as bar and bubble plots generated using ggplot2.
Immune infiltration analysis
Immune cell infiltration was initially characterized using CIBERSORT with the LM22 signature matrix, which was applied to estimate the relative distribution of 22 immune cell populations. Differences in these estimates between the high- and low-LINC01871 expression groups were visualized using ggpubr. Stromal, immune, and ESTIMATE scores were then calculated for individual samples with the estimate package and displayed as violin plots. In addition, single-sample gene set enrichment analysis (ssGSEA) was performed using the GSVA package to estimate the relative abundance of immune cell populations in each sample. Differences in the resulting immune infiltration estimates between the two LINC01871 expression groups were evaluated and visualized with ggpubr.
Cell culture
MDA-MB-231, MCF-10A, and HEK293T cell lines were used in this study. MDA-MB-231 and HEK293T cells were grown in DMEM containing 10% fetal bovine serum, whereas MCF-10A cells were maintained in medium specifically formulated for this cell line. Cultures were kept at 37°C under humidified conditions with 5% CO₂. To establish LINC01871-overexpressing cells, the LINC01871 overexpression construct and lentiviral packaging plasmids were co-transfected into HEK293T cells for lentiviral production. Virus-containing supernatant was subsequently harvested and used to transduce MDA-MB-231 cells. Transduced cells were selected with 1 μg/mL puromycin. Wild-type control and transduced cells were both subjected to puromycin treatment, and selection was terminated after 3–4 days once all wild-type control cells had died.
Reverse transcription quantitative polymerase chain reaction (RT-qPCR)
Cellular RNA was isolated using RNAiso Plus reagent, and RNA concentrations were adjusted to equivalent levels before reverse transcription. Complementary DNA (cDNA) was generated with a reverse transcription kit following the manufacturer’s protocol. RT-qPCR amplification began with denaturation at 95°C for 30 s and was followed by 40 cycles consisting of 95°C for 5 s, 60°C for 30 s, and 72°C for 30 s. Transcript abundance was determined by the 2−ΔΔCt method using GAPDH for normalization. Primer sequences used for the analysis are listed in Supplementary Table 1.
Cell proliferation and cytotoxicity assays
For assessment of drug cytotoxicity, 8,000 cells per well were plated in 96-well plates and allowed to grow for 24 h. The culture medium was subsequently exchanged for fresh medium containing the indicated drug concentrations, followed by a further 24 h of incubation. CCK-8 reagent was then applied, and the plates were maintained in the dark for 2 h before absorbance was recorded at 450 nm. These measurements were used to construct drug dose–response curves and determine IC₅₀ values. For proliferation measurements, cells were prepared at a density of 1,000 cells/mL, and 100 μL of the cell suspension was added to each well of a 96-well plate. CCK-8 measurements were performed at 24 h intervals. At each time point, the reagent was added and the plates were incubated in the dark for 2 h before absorbance was measured at 450 nm to assess cell proliferation.
Colony formation assay
For colony formation experiments, 1,000 cells were plated per well in 6-well plates, with three replicates included for each experimental group. Cells were maintained for 1–2 weeks to permit visible colony development. The medium was then discarded, and the cells were fixed in 4% paraformaldehyde, rinsed with PBS, and subsequently stained with 1% crystal violet.
5-Ethynyl-2′-deoxyuridine incorporation assay
Cells from each experimental group were plated in 12-well plates and maintained overnight. The following day, cells were exposed to the EdU working solution for 2 h. After fixation and permeabilization, EdU labeling was carried out, followed by nuclear counterstaining with Hoechst. Fluorescence microscopy was then used to acquire images for evaluation of EdU incorporation.
Western blot
Cells were lysed in RIPA buffer supplemented with protease and phosphatase inhibitors to obtain total protein. Protein concentrations were quantified by BCA assay. Following addition of loading buffer, the protein samples were denatured at 95°C and resolved by SDS–PAGE before transfer to PVDF membranes. The membranes were blocked at room temperature for 1 h and subsequently incubated with the designated primary antibodies at 4°C overnight (Supplementary Table 2). After three TBST washes, the corresponding secondary antibodies were applied for 45 min at room temperature. Protein signals were detected by enhanced chemiluminescence (ECL) and subsequently imaged. GAPDH or β-actin served as the loading control.
Flow cytometry analysis
For cell-cycle assessment, cells were collected by trypsinization, rinsed with PBS, and fixed overnight in 70% ethanol at 4°C. The fixed cells were washed again with PBS and incubated with a cell-cycle detection reagent before flow cytometric measurement. For apoptosis assessment, harvested cells were washed with PBS and suspended in binding buffer. The cell suspension was stained with Annexin V and propidium iodide (PI) for 10–15 min at room temperature under light-protected conditions. Flow cytometry was subsequently performed to quantify the apoptotic cell populations.
Xenograft mouse models
In vivo experiments were conducted using five-week-old NOD/ShiLtJGpt immunodeficient mice. Animals were maintained in a specific pathogen-free (SPF) facility on a 12 h light/dark schedule, with no more than four animals housed in each cage. Before tumor-cell implantation, mice were anesthetized by inhaled isoflurane. Following confirmation of adequate anesthesia, the animals were allocated to two groups and received abdominal fat-pad injections of either control or LINC01871-overexpressing MDA-MB-231 cells. Tumor growth was designated as the primary outcome. Tumor dimensions were recorded with calipers at intervals of 3–4 days. Tumor volume was determined as V = ( L x W2 ) / 2', where L denotes the longest tumor diameter and W the shortest, with volume expressed in mm3. The study was terminated before any tumor reached a maximum diameter of 1.5 cm or a volume of 2,000 mm3. At the experimental endpoint, mice were anesthetized with isoflurane, and cervical dislocation was performed only after deep anesthesia had been confirmed. Animals were euthanized before the scheduled endpoint if substantial signs of distress were observed, including lethargy, weight loss, hunched posture, or inability to eat or drink. At study completion, tumors were removed and subsequently weighed and imaged.
Statistical analysis
Data analyses were conducted using GraphPad Prism version 10.3.1 and R version 4.3.1. The statistical method applied to each comparison was selected according to the study design and distribution of the corresponding data. As appropriate, analyses included Student’s t-test, paired t-test, Wilcoxon signed-rank test, Mann–Whitney U test, one-way or two-way analysis of variance (ANOVA), Kaplan–Meier analysis with the log-rank test, univariate Cox proportional hazards regression, and Pearson or Spearman correlation analysis. Statistical significance was defined using a two-sided P value <0.05.
Resultados
LINC01871 está estrechamente asociado con la sensibilidad a ribociclib y palbociclib
Se estimaron los valores de IC50 predichos para ribociclib y palbociclib en pacientes de la cohorte TCGA-BRCA utilizando datos de GDSC2 y se ordenaron de forma ascendente. Los pacientes dentro del cuartil más bajo de los valores de IC50 predichos se asignaron al grupo sensible, mientras que aquellos dentro del cuartil más alto se asignaron al grupo resistente (Figura 1A,B). La comparación de estos grupos identificó lncARN diferencialmente expresados para cada fármaco (Figura suplementaria 1A,B). El análisis WGCNA identificó además módulos de lncARN significativamente asociados con la sensibilidad predicha a ribociclib y palbociclib (Figura 1C,D; Figura suplementaria 1C,D). La integración de los cuatro conjuntos de genes resultantes arrojó 62 lncARN compartidos (Figura 1E), de los cuales 18 mostraron asociación significativa con el pronóstico tanto en el análisis de regresión de Cox univariante como en los análisis de supervivencia de Kaplan-Meier. Posteriormente, se aplicó una regresión LASSO para refinar aún más este conjunto, obteniéndose seis lncARN con relevancia pronóstica: ANKRD44-AS1, AC083837.1, AC242842.1, DBH-AS1, LINC00926 y LINC01871 (Figura 1F,G; Figura suplementaria 2A). Su capacidad para discriminar la resistencia al fármaco predicha se comparó posteriormente mediante análisis de AUC. Entre los seis candidatos, LINC01871 presentó el AUC promedio más alto para ribociclib y palbociclib (Figura 1H–J; Figura suplementaria 2B,C).
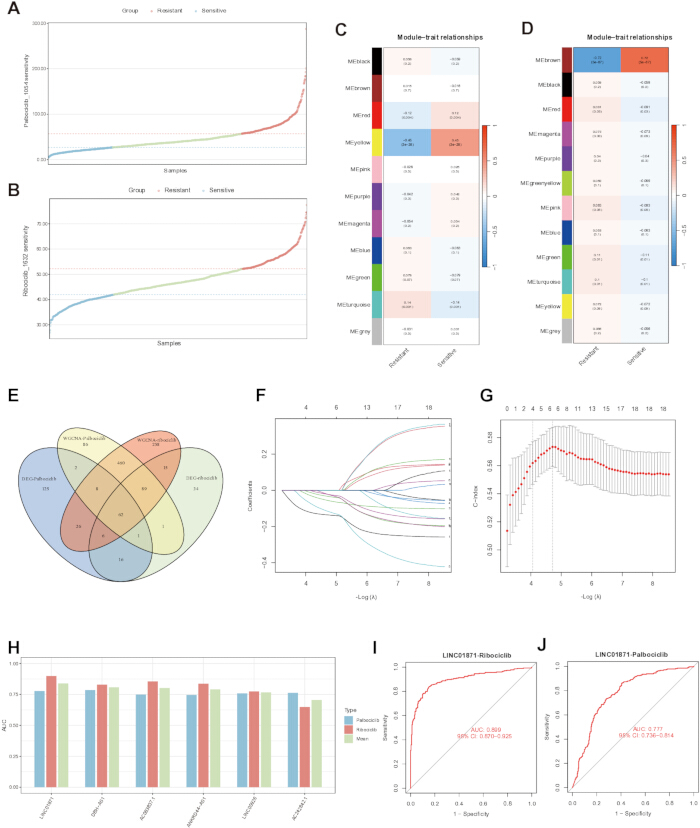
Figura 1. Identificación de ARN no codificantes largos asociados con la sensibilidad predicha a ribociclib y palbociclib.
(A,B) Distribución de los valores predichos de la concentración inhibitoria media (IC50) para palbociclib (A) y ribociclib (B) en la cohorte de carcinoma invasivo de mama del Atlas del Genoma del Cáncer (TCGA-BRCA), estimada utilizando el conjunto de datos Genómica de la Sensibilidad a Fármacos en el Cáncer 2 (GDSC2). (C,D) Análisis de red de coexpresión génica ponderado (WGCNA) que muestra las asociaciones entre módulos y rasgos para palbociclib (C) y ribociclib (D). (E) Diagrama de Venn que ilustra los genes compartidos entre los conjuntos de genes diferencialmente expresados y los conjuntos de genes derivados del WGCNA asociados con los dos fármacos. (F,G) Regresión mediante el operador de contracción y selección por mínimos absolutos (LASSO) para la selección de ARN no codificantes largos (lncRNA) con relevancia pronóstica. (H) Comparación de los valores del área bajo la curva característica de operación del receptor (AUC) para los seis lncRNA seleccionados por LASSO. (I,J) Curvas características de operación del receptor (ROC) para evaluar la capacidad de LINC01871 para discriminar la sensibilidad predicha a ribociclib (I) y palbociclib (J). Haga clic aquí para ver una versión más grande de esta figura.
La sobreexpresión de LINC01871 aumentó la sensibilidad a fármacos en células de cáncer de mama
Dentro de la cohorte TCGA-BRCA, una mayor expresión de LINC01871 se asoció con valores predichos más bajos de IC50 tanto para ribociclib como para palbociclib (Figura 2A,B). Esta relación se examinó además en el subgrupo clínicamente relevante de receptores hormonales positivos y HER2 negativos (n = 599). En este subgrupo, los valores predichos de IC50 para ambos fármacos fueron significativamente más bajos entre los pacientes con alta expresión de LINC01871 en comparación con aquellos con baja expresión. Además, la expresión de LINC01871 mostró una correlación inversa con los valores predichos de IC50 de ribociclib y palbociclib (Figura suplementaria 3A,B). Posteriormente, se evaluó experimentalmente la asociación computacional. Los ensayos de citotoxicidad demostraron una mayor sensibilidad tanto a ribociclib como a palbociclib en células de cáncer de mama que sobreexpresaban LINC01871 en comparación con las células control con vector (Figura 2C,D). La citometría de flujo mostró una proporción mayor de células en fase G1 y una proporción menor en fase S tras la sobreexpresión de LINC01871, lo cual es consistente con un mayor arresto en la fase G1 (Figura 2E). En los ensayos de formación de colonias, concentraciones crecientes de ribociclib o palbociclib redujeron progresivamente la formación de colonias (Figura 2F,G). A concentraciones equivalentes de fármaco, la capacidad de formación de colonias fue significativamente menor en las células que sobreexpresaban LINC01871 en comparación con las células control con vector. El análisis por inmunotransferencia reveló además niveles más bajos de CDK4, CDK6 y ciclina D1, junto con una reducción en la fosforilación de RB, en células que sobreexpresaban LINC01871 (Figura 2H). Estos cambios moleculares fueron consistentes con el mayor arresto en la fase G1 observado tras la sobreexpresión de LINC01871.
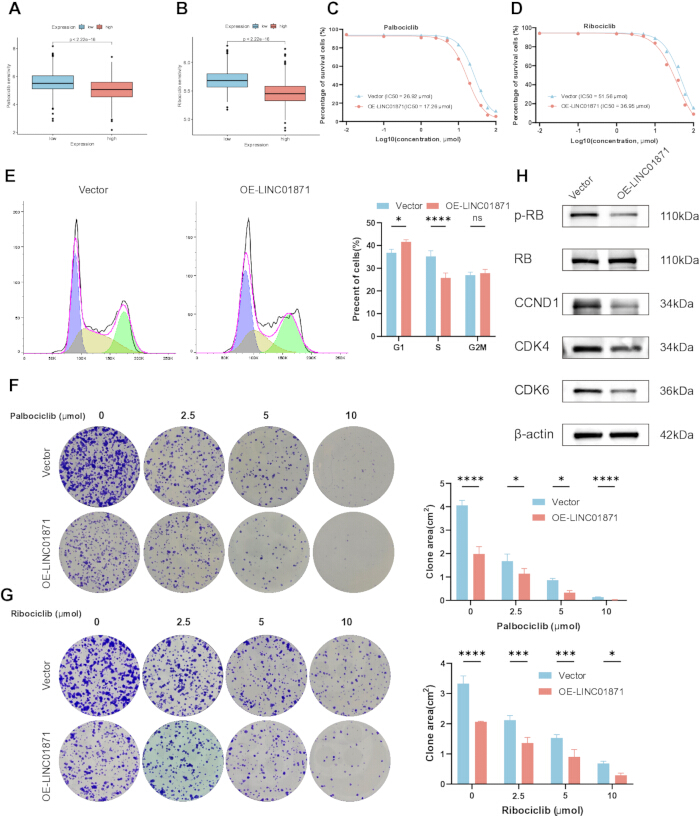
Figura 2. Asociación de la sobreexpresión de LINC01871 con la sensibilidad a los inhibidores de la quinasa dependiente de ciclina 4/6 en células de cáncer de mama. (A,B) Sensibilidad predicha a palbociclib (A) y ribociclib (B) según niveles bajos o altos de expresión de LINC01871. (C,D) Curvas de respuesta-dosis del fármaco para palbociclib (C) y ribociclib (D) en células control con vector y células que sobreexpresan LINC01871, con los valores correspondientes de la concentración inhibitoria media (IC50) indicados en cada panel. (E) Evaluación mediante citometría de flujo de la distribución del ciclo celular en células control con vector y células que sobreexpresan LINC01871. (F,G) Formación de colonias tras el tratamiento con concentraciones crecientes de palbociclib (F) y ribociclib (G). (H) Análisis por inmunotransferencia de la quinasa dependiente de ciclina 4 (CDK4), quinasa dependiente de ciclina 6 (CDK6), ciclina D1 (CCND1), proteína del retinoblastoma (RB) y RB fosforilada (p-RB), utilizando β-actina como control de carga. OE-LINC01871, sobreexpresión de LINC01871; ns, no significativo. Todos los experimentos se realizaron independientemente por triplicado. Los datos se presentan como media ± DE. Los valores de IC50 se determinaron mediante regresión no lineal. Los datos de distribución del ciclo celular y formación de colonias se analizaron mediante ANOVA de dos vías. *P < 0,05, **P < 0,01, ***P < 0,001 y ****P < 0,0001; ns, no significativo. Haga clic aquí para ver una versión más grande de esta figura.
Los pacientes con alta expresión de LINC01871 tendían a tener resultados clínicos favorables
Se examinó más a fondo la asociación pronóstica de LINC01871 en la cohorte TCGA-BRCA. Los análisis de Kaplan-Meier indicaron que una expresión más alta de LINC01871 se asociaba generalmente con una mayor supervivencia general y un intervalo libre de progresión más largo (Figura 3A; Figura suplementaria 3C). Las comparaciones de muestras pareadas y no pareadas también revelaron una expresión significativamente menor de LINC01871 en tejidos tumorales que en tejidos normales (Figura 3B,C). A continuación, examinamos la relación entre la expresión de LINC01871 y las características clínico-patológicas. La expresión más baja de LINC01871 tendía a asociarse con un tamaño tumoral mayor y se observó en pacientes registrados como fallecidos en comparación con aquellos registrados como vivos (Figura 3D,E). Entre los pacientes que recibieron radioterapia, el análisis por subgrupos mostró además resultados de supervivencia significativamente más favorables en aquellos con alta expresión de LINC01871 (Figura suplementaria 3D). Posteriormente, se desarrolló un nomograma pronóstico que incorporó la expresión de LINC01871 junto con múltiples características clínicas (Figura suplementaria 3E). El análisis de calibración mostró una estrecha concordancia entre las probabilidades de supervivencia estimadas por el nomograma y los resultados observados (Figura suplementaria 3F).
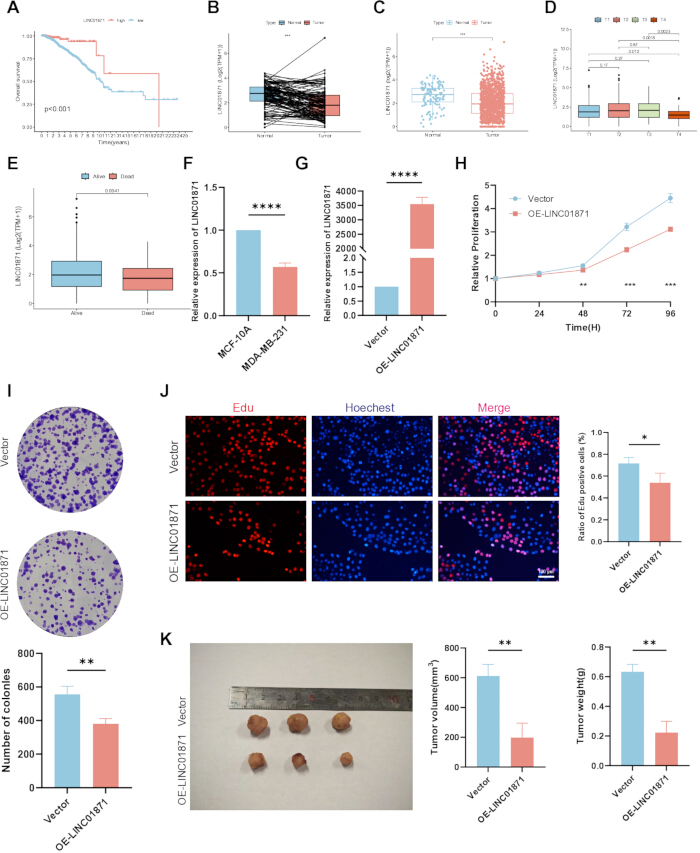
Figura 3. Expresión de LINC01871, asociaciones pronósticas y supresión de la proliferación del cáncer de mama.
(A) Análisis de Kaplan-Meier de la supervivencia global estratificada según la expresión de LINC01871. (B,C) Análisis pareados (B) y no pareados (C) que comparan la expresión de LINC01871 entre tejidos normales y tumorales. (D,E) Expresión de LINC01871 en relación con la categoría T del tumor (D) y el estado de supervivencia (E). (F) Comparación de la expresión relativa de LINC01871 entre células MCF-10A y MDA-MB-231. (G) Confirmación mediante reacción en cadena de la polimerasa cuantitativa de transcripción inversa de la sobreexpresión de LINC01871 en células MDA-MB-231. (H–J) Evaluación de la proliferación celular mediante el ensayo con el kit de recuento celular-8 (CCK-8) (H), el ensayo de formación de colonias (I) y el ensayo de incorporación de 5-etinil-2′-desoxiuridina (EdU) (J). La barra de escala en el panel J representa 100 μm. (K) Apariencia, volumen y peso del tumor xenoinjertado en los grupos control con vector y con sobreexpresión de LINC01871. TPM, transcritos por millón; OE-LINC01871, sobreexpresión de LINC01871. La supervivencia global se evaluó mediante análisis de Kaplan-Meier con la prueba de log-rango. Las comparaciones pareadas entre tejidos tumorales y normales se evaluaron utilizando la prueba de rangos con signo de Wilcoxon. Para las restantes comparaciones entre dos grupos, se seleccionó una prueba t de Student no pareada o una prueba U de Mann-Whitney tras evaluar la normalidad con la prueba de Shapiro-Wilk. Las mediciones del CCK-8 se analizaron mediante análisis de varianza de dos vías. Los experimentos in vitro comprendieron tres réplicas biológicas independientes, mientras que los experimentos de xenoinjerto incluyeron tres ratones en cada grupo. Los datos se presentan como media ± desviación estándar. *P < 0,05, **P < 0,01, ***P < 0,001 y ****P < 0,0001; ns, no significativo. Haga clic aquí para ver una versión más grande de esta figura.
La sobreexpresión de LINC01871 suprime la proliferación de células tumorales y se asocia con una señalización reducida de NF-κB
Se examinó más a fondo el efecto inhibitorio de LINC01871 sobre la proliferación de células tumorales mediante modelos in vitro e in vivo. La expresión de LINC01871 fue significativamente mayor en la línea celular epitelial mamaria normal que en la línea celular de cáncer de mama (Figura 3F). Se confirmó el establecimiento exitoso del modelo de sobreexpresión de LINC01871 mediante RT-qPCR, que mostró una expresión de LINC01871 marcadamente elevada en comparación con el grupo control vectorial (Figura 3G). Los ensayos CCK-8 revelaron posteriormente una capacidad proliferativa significativamente reducida en las células que sobreexpresan LINC01871 (Figura 3H). En consonancia con este hallazgo, la sobreexpresión de LINC01871 disminuyó la capacidad de formación de colonias (Figura 3I) y redujo la proporción de células positivas para EdU (Figura 3J). En el modelo de xenoinjerto, los tumores derivados de células que sobreexpresan LINC01871 fueron significativamente más pequeños que aquellos derivados de células control vectoriales (Figura 3K).
Para explorar posibles mecanismos subyacentes a estos efectos, se realizaron análisis de enriquecimiento funcional utilizando dos conjuntos de genes: los genes expresados diferencialmente entre los grupos de alta y baja expresión de LINC01871 y los genes identificados como coexpresados con LINC01871 mediante análisis de correlación de Pearson. El análisis GO de estos conjuntos de genes reveló asociaciones con diversas funciones relacionadas con la inmunidad, incluyendo unión al receptor de células T, unión al complejo proteico del complejo mayor de histocompatibilidad (MHC), regulación positiva de la activación de leucocitos y actividad de receptores inmunitarios (Figura 4A,C). De manera similar, el análisis KEGG identificó vías asociadas con la inmunidad, como la señalización del receptor de células T y la vía del punto de control de expresión de la proteína ligando de muerte programada 1 (PD-L1) y proteína de muerte celular programada 1 (PD-1) en el cáncer. También se observó enriquecimiento en las vías de señalización de Janus cinasa/transportador de señales y activador de la transcripción (JAK-STAT) y NF-κB (Figura 4B,D). Dado que la señalización de NF-κB fue identificada en ambos análisis de enriquecimiento, su actividad se examinó más detalladamente mediante inmunotransferencia. La fosforilación de p65 fue notablemente menor en las células que sobreexpresaban LINC01871 en comparación con el grupo control (Figura 4E), un hallazgo consistente con una activación reducida de la vía de NF-κB. Asimismo, se evaluó la relación entre la sobreexpresión de LINC01871 y la apoptosis. La inmunotransferencia mostró un aumento en la expresión de la proteína proapoptótica Bax y una disminución en la expresión de la proteína antiapoptótica Bcl-2 tras la sobreexpresión de LINC01871 (Figura 4F). La citometría de flujo reveló además una proporción significativamente mayor de células apoptóticas en el grupo con sobreexpresión de LINC01871 en comparación con el grupo control con vector (Figura 4G).
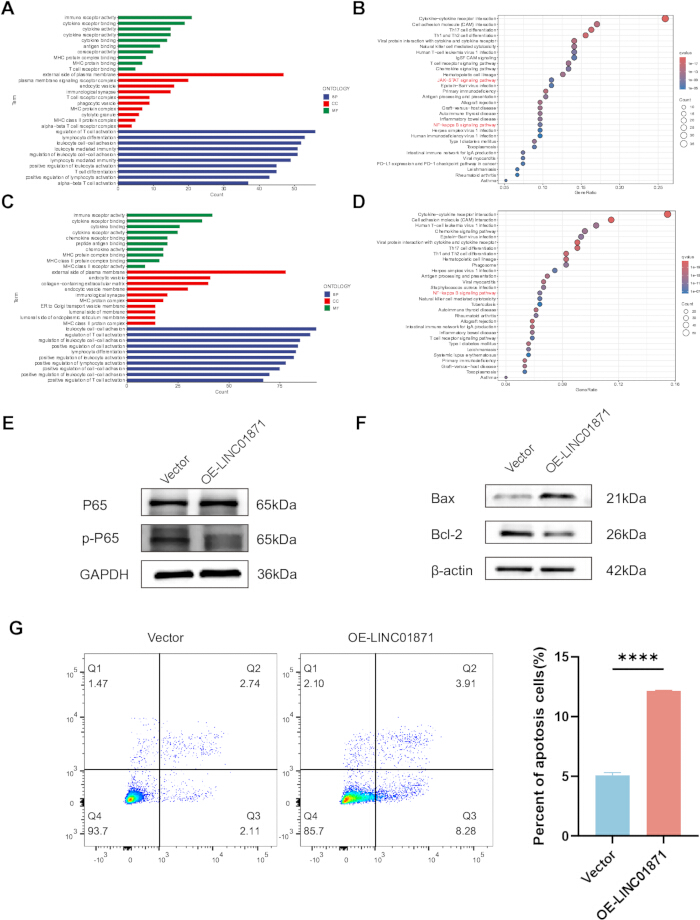
Figura 4Asociación de LINC01871 con la señalización del factor nuclear kappa B y la apoptosis
(A,B) Análisis de enriquecimiento de Ontología Genética (GO) (A) y de la Enciclopedia de Kioto de Genes y Genomas (KEGG) (B) de los genes que muestran expresión diferencial entre los grupos de alta y baja expresión de LINC01871. (C,D) Análisis de enriquecimiento de GO (C) y KEGG (D) de los genes coexpresados con LINC01871. (E) Evaluación mediante inmunotransferencia de la proteína nuclear factor kappa B (NF-κB) proteínas de la vía P65 y P65 fosforilada (p-P65), utilizando la gliceraldehído-3-fosfato deshidrogenasa (GAPDH) como control de carga. (F) Evaluación mediante inmunotransferencia de las proteínas relacionadas con la apoptosis Bcl-2 (linfoma de células B 2) y proteína asociada a Bcl-2 X (Bax), utilizando β-actina como control de carga. (G) Evaluación y cuantificación por citometría de flujo de la apoptosis en células con control vectorial y células que sobreexpresan LINC01871. Todos los experimentos in vitro incluyeron tres réplicas biológicas independientes. Las imágenes de inmunotransferencia mostradas son representativas de tres experimentos biológicos independientes. Los datos se presentan como media ± SD. Las comparaciones entre células con control vectorial y células que sobreexpresan LINC01871 se realizaron utilizando una prueba t de Student no pareada tprueba t o prueba U de Mann-Whitney tras la evaluación de la normalidad con la prueba de Shapiro-Wilk. *P < 0.05, **P < 0,01, ***P < 0.001 y ****P < 0,0001; ns, no significativo. Haga clic aquí para ver una versión más grande de esta figura.
Análisis pancancero de LINC01871
Dadas las características supresoras de tumores asociadas con LINC01871 en el cáncer de mama, ampliamos el análisis a múltiples tipos de cáncer para caracterizar su expresión y sus asociaciones pronósticas. Se observó expresión diferencial de LINC01871 en varias malignidades además del cáncer de mama (Figura 5A). En adenocarcinoma de colon (COAD), carcinoma de células claras del riñón (KIRC), carcinoma papilar del riñón (KIRP), carcinoma de células escamosas de pulmón (LUSC) y carcinoma de tiroides (THCA), se detectaron diferencias significativas entre tejidos tumorales y normales tanto en comparaciones pareadas como no pareadas (Figura 5B). Los análisis de supervivencia identificaron además asociaciones pronósticas significativas para LINC01871 en carcinoma de células escamosas de cabeza y cuello (HNSC), KIRC, glioma de bajo grado del cerebro (LGG), adenocarcinoma del recto (READ), melanoma cutáneo de piel (SKCM), carcinoma endometrial del cuerpo uterino (UCEC), carcinoma de células uroteliales de vejiga (BLCA), carcinoma hepatocelular de hígado (LIHC) y adenocarcinoma de próstata (PRAD) (Figura 5C–E).
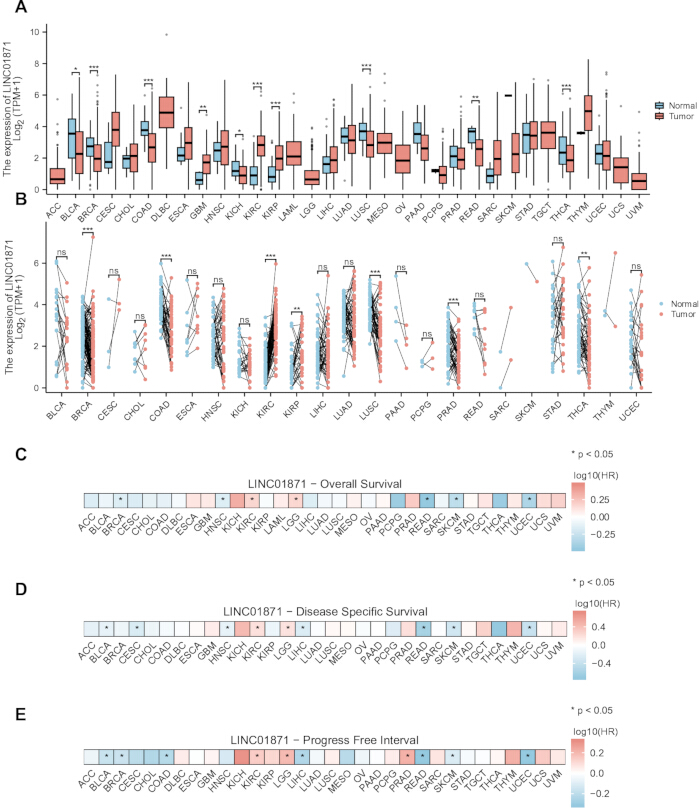
Figura 5. Análisis pancancero de la expresión y pronóstico de LINC01871.
(A,B) Comparación de la expresión de LINC01871 entre tejidos tumorales y normales en múltiples tipos de cáncer mediante análisis no apareados (A) y apareados (B). (C–E) Asociaciones pronósticas de LINC01871 que muestran las razones de riesgo transformadas logarítmicamente para la supervivencia global (C), la supervivencia específica para la enfermedad (D) y el intervalo libre de progresión (E). HR, razón de riesgo; TPM, transcritos por millón; ns, no significativo. Las abreviaturas de los tipos de cáncer se basan en la nomenclatura del Atlas del Genoma del Cáncer. Los datos no apareados de tumor–normal se evaluaron mediante la prueba U de Mann–Whitney (A), mientras que los datos apareados de tumor–normal se evaluaron mediante la prueba de rangos con signo de Wilcoxon (B). Las asociaciones con la supervivencia global, la supervivencia específica para la enfermedad y el intervalo libre de progresión se examinaron mediante regresión univariada de riesgos proporcionales de Cox (C–E). *P < 0,05, **P < 0,01, ***P < 0,001 y ****P < 0,0001; ns, no significativo. Haga clic aquí para ver una versión más grande de esta figura.
Correlación entre la expresión de LINC01871 y la infiltración de células inmunitarias
A continuación, caracterizamos la distribución celular de LINC01871 utilizando datos de secuenciación de ARN a nivel de célula individual procedentes de muestras de cáncer de mama (GSE161529). Tras el control de calidad, corrección de efectos de lote, agrupamiento y anotación de tipos celulares, las poblaciones identificadas incluyeron células epiteliales, células T CD8⁺, células T, macrófagos, fibroblastos, células asesinas naturales (NK) y células B (Figura 6A). Entre estas poblaciones, la expresión de LINC01871 fue más destacada en células T y células NK (Figura 6B,C). Por lo tanto, examinamos más detenidamente la relación entre LINC01871 y el microentorno inmunitario utilizando estimaciones de infiltración basadas en el transcriptoma. El análisis mediante CIBERSORT indicó que el grupo con alta expresión de LINC01871 presentaba proporciones estimadas más elevadas de varias poblaciones inmunitarias, incluyendo células T CD8⁺, células NK y macrófagos M1, junto con proporciones estimadas más bajas de células T reguladoras (Treg) y macrófagos M2 (Figura 6D). De manera similar, los puntajes inmunitarios derivados del método ESTIMATE fueron más altos en las muestras con alta expresión de LINC01871 (Figura 6E). El análisis mediante ssGSEA, utilizando genes marcadores de células inmunitarias previamente reportados, produjo patrones ampliamente consistentes (Figura 6F). La extensión de este análisis a diferentes tipos de cáncer mostró correlaciones significativas entre la expresión de LINC01871 y la abundancia estimada de múltiples poblaciones de células inmunitarias (Figura 6G).
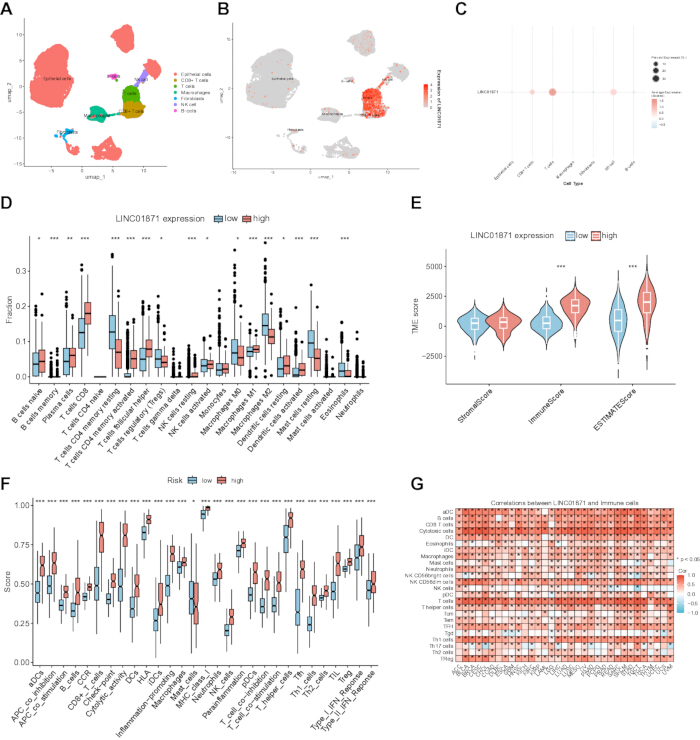
Figura 6. Análisis de la expresión a nivel de célula individual y de la infiltración inmunitaria de LINC01871.
(A) Representación mediante Aproximación y Proyección de Variedad Uniforme (UMAP) de las poblaciones celulares anotadas identificadas a partir de datos de secuenciación de ARN a nivel de célula individual. (B) Gráfico de características UMAP que muestra la distribución de la expresión de LINC01871 entre las poblaciones celulares anotadas. (C) Gráfico de puntos que muestra la proporción de células que expresan LINC01871 y la expresión promedio escalada para cada tipo celular. (D) Proporciones relativas de 22 poblaciones de células inmunitarias en los grupos de expresión baja y alta de LINC01871, estimadas mediante la identificación de tipos celulares mediante la estimación de subconjuntos relativos de transcritos de ARN (CIBERSORT). (E) Puntajes de estroma, inmunitarios y del microentorno tumoral derivados mediante la estimación de células estromales e inmunitarias en tejidos tumorales malignos usando datos de expresión (ESTIMATE). (F) Puntajes relacionados con la inmunidad obtenidos mediante análisis de enriquecimiento de conjuntos de genes a partir de una sola muestra (ssGSEA) en los grupos de expresión baja y alta de LINC01871. (G) Asociaciones pan-cáncer entre la expresión de LINC01871 y la infiltración de células inmunitarias estimadas mediante ssGSEA. NK, célula asesina natural; TME, microentorno tumoral. Las abreviaturas de tipos de cáncer se basan en la nomenclatura del Atlas del Genoma del Cáncer. Las diferencias entre los grupos de expresión baja y alta de LINC01871 se evaluaron mediante la prueba U de Mann-Whitney (D–F). Las asociaciones pan-cáncer entre la expresión de LINC01871 y la infiltración de células inmunitarias se evaluaron mediante análisis de correlación de Spearman (G). *P < 0,05, **P < 0,01, ***P < 0,001 y ****P < 0,0001; ns, no significativo. Haga clic aquí para ver una versión ampliada de esta figura.
Disponibilidad de los datos:
Los conjuntos de datos analizados en este estudio están disponibles públicamente en The Cancer Genome Atlas (TCGA; https://portal.gdc.cancer.gov) y en el Gene Expression Omnibus (GEO; https://www.ncbi.nlm.nih.gov/geo/). Los conjuntos de datos utilizados incluyen la cohorte TCGA-BRCA y GSE161529 (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE161529). Figuras Suplementarias 1–3 proporcionan análisis bioinformáticos y pronósticos adicionales. Tabla Suplementaria 1 enumera las secuencias de cebadores utilizadas para la reacción en cadena de la polimerasa cuantitativa de transcripción inversa (RT-qPCR), y Tabla Suplementaria 2 enumera los anticuerpos primarios y secundarios utilizados para el análisis de inmunotransferencia (western blot). Los scripts de R utilizados para los análisis bioinformáticos y estadísticos se proporcionan como Archivo Suplementario 1.
Figura suplementaria 1. Identificación de genes diferencialmente expresados y módulos de la red de coexpresión génica ponderada asociados con la sensibilidad predicha a los inhibidores de CDK4/6.
(A,B) Gráficos de dispersión tipo volcán que muestran los genes diferencialmente expresados entre los grupos predichos como resistentes y predichos como sensibles a ribociclib (A) y palbociclib (B). (C,D) Dendrogramas de agrupamiento generados mediante WGCNA que muestran la agrupación de genes y la asignación de módulos para ribociclib (C) y palbociclib (D). Se definieron como genes diferencialmente expresados aquellos con un cambio absoluto en el log2 de ≥0,5 y un valor P ajustado de <0,05. Haga clic aquí para descargar este archivo.
Figura suplementaria 2. Rendimiento pronóstico y predictivo de cinco lncARN candidatos adicionales.
(A) Análisis de supervivencia de Kaplan-Meier de cinco lncARN candidatos adicionales identificados mediante regresión LASSO. (B,C) Análisis de curvas ROC que muestran el rendimiento diagnóstico de estos cinco lncARN para predecir resistencia a ribociclib (B) y palbociclib (C). Los análisis correspondientes de LINC01871 se presentan en las Figuras 1 y 3. Haga clic aquí para descargar este archivo.
Figura suplementaria 3. Evaluación pronóstica de LINC01871 en el cáncer de mama.
(A) Valores predichos de la concentración inhibitoria media (IC50) para ribociclib y palbociclib en los grupos de expresión alta y baja de LINC01871 dentro del subgrupo positivo para receptores hormonales/negativo para receptor 2 del factor de crecimiento epidérmico humano (HR-positivo/HER2-negativo). (B) Análisis de correlación de Spearman entre la expresión de LINC01871 y los valores predichos de IC50 para ribociclib y palbociclib en el subgrupo HR-positivo/HER2-negativo. (C) Análisis de supervivencia de Kaplan-Meier del intervalo libre de progresión (PFI) según la expresión de LINC01871. (D) Análisis de supervivencia de Kaplan-Meier de pacientes que recibieron radioterapia estratificados según la expresión de LINC01871. (E) Nomograma que integra la expresión de LINC01871 y características clínico-patológicas para predecir la supervivencia global en la cohorte completa de TCGA-BRCA. (F) Curvas de calibración que evalúan la concordancia entre las probabilidades de supervivencia predichas y observadas para el nomograma a 1, 3 y 5 años. Las comparaciones en el panel A se analizaron mediante la prueba U de Mann-Whitney, y las correlaciones en el panel B se evaluaron mediante análisis de correlación de Spearman. IC50, concentración inhibitoria media; PFI, intervalo libre de progresión; HR, receptor hormonal; HER2, receptor 2 del factor de crecimiento epidérmico humano. *P < 0,05, **P < 0,01, ***P < 0,001 y ****P < 0,0001; ns, no significativo. Haga clic aquí para descargar este archivo.
Tabla suplementaria 1. Secuencias de cebadores utilizadas para la reacción en cadena de la polimerasa cuantitativa por transcripción inversa (RT-qPCR).
Secuencias de cebadores directos e inversos (5′→3′) utilizadas para el análisis mediante RT-qPCR de LINC01871 y el gen de referencia endógeno GAPDH. Haga clic aquí para descargar este archivo.
Tabla suplementaria 2. Anticuerpos primarios y secundarios utilizados para el análisis por inmunotransferencia.
Anticuerpos primarios y secundarios utilizados para el análisis por inmunotransferencia, que incluyen la proteína diana o especificidad del anticuerpo, proveedor, número de catálogo, especie del huésped, dilución de trabajo e Identificador de Recursos de Investigación (RRID). Haga clic aquí para descargar este archivo.
Archivo complementario 1. Secuencias de comandos R utilizadas para los análisis bioinformáticos y estadísticos.
Este archivo complementario contiene las secuencias de comandos R utilizadas para generar los análisis bioinformáticos y las figuras presentadas en este estudio, incluyendo el análisis transcriptómico, el análisis de expresión diferencial, el análisis de red de coexpresión génica ponderada (WGCNA), la regresión mediante el operador de contracción y selección por mínimos absolutos (LASSO), el análisis de supervivencia, el análisis de la curva característica de funcionamiento (ROC), el análisis de enriquecimiento funcional, el análisis de infiltración inmunitaria, el análisis de secuenciación de ARN a nivel de una sola célula y la generación de figuras. Los guiones individuales corresponden a las figuras principales y complementarias presentadas en el manuscrito. Haga clic aquí para descargar este archivo.
Discusión
La creciente comprensión de la biología del cáncer ha permitido identificar nuevos objetivos terapéuticos y ha consolidado las terapias dirigidas como un componente importante del tratamiento del cáncer17. Sin embargo, el desarrollo de resistencia al tratamiento continúa limitando su eficacia a largo plazo. En este estudio, la integración de análisis multi-ómicos con enfoques de aprendizaje automático identificó a LINC01871 como un candidato asociado con la sensibilidad predicha a ribociclib y palbociclib. Análisis experimentales mostraron además que la sobreexpresión de LINC01871 incrementó la sensibilidad a ambos agentes in vitro y suprimió la proliferación de células de cáncer de mama en modelos celulares y de xenoinjertos. Estos efectos se acompañaron de una actividad reducida de la vía NF-κB, lo que sugiere una relación potencial entre LINC01871 y esta vía de señalización. Estas observaciones podrían ser relevantes para el uso creciente de biomarcadores para orientar las decisiones terapéuticas durante la terapia basada en inhibidores de CDK4/6. Sin embargo, la evidencia que respalda a LINC01871 difiere sustancialmente de la disponible para los enfoques guiados por biomarcadores establecidos. Por ejemplo, el monitoreo de ADN tumoral circulante de mutaciones en ESR1 ha sido evaluado prospectivamente como una estrategia para adaptar el tratamiento endocrino. En contraste, LINC01871 sigue siendo un biomarcador candidato y aún no debe considerarse adecuado para la toma de decisiones clínicas. Esta distinción es particularmente importante, ya que las opciones terapéuticas tras la progresión con terapia basada en inhibidores de CDK4/6 en cáncer de mama metastásico positivo para HR y negativo para HER2 ahora incluyen degradadores orales selectivos del receptor de estrógeno, inhibidores de la vía PI3K/AKT y conjugados anticuerpo-fármaco18,19. Dentro de este panorama terapéutico en evolución, los biomarcadores capaces de distinguir diferencias en la sensibilidad a los inhibidores de CDK4/6 podrían ayudar potencialmente en la estratificación del tratamiento. Aunque nuestros hallazgos respaldan una asociación entre LINC01871 y la sensibilidad a ribociclib y palbociclib, actualmente la evidencia proviene de estimaciones computacionales de sensibilidad a fármacos junto con experimentos in vitro. Por lo tanto, se requerirán cohortes prospectivas con exposición documentada a inhibidores de CDK4/6 y resultados clínicos para determinar si LINC01871 tiene valor predictivo en pacientes.
Se ha demostrado el beneficio terapéutico de los inhibidores de CDK4/6 en el cáncer de mama positivo para el receptor de estrógenos y/o receptor de progesterona en múltiples ensayos clínicos4,5,6. Su posible utilidad en el cáncer de mama triple negativo también ha atraído investigación20,21. Por ejemplo, Yang et al. descubrieron que la inhibición simultánea de CDK4/6 y CDK7 suprimía la proliferación de células de cáncer de mama triple negativo22. Otros estudios han identificado alteraciones moleculares que podrían modificar la respuesta a la inhibición de CDK4/6. Se ha informado que la inhibición de GPX4 aumenta la sensibilidad al palbociclib tanto en el cáncer de mama positivo para el receptor de estrógenos como en el triple negativo23, mientras que C9orf142 se ha asociado con resistencia a los inhibidores de CDK4/6 en el cáncer de mama triple negativo20. Por el contrario, se ha reportado que la inhibición de ACAA1 mejora la sensibilidad de las células de cáncer de mama a los inhibidores de CDK4/624. Gran parte del trabajo existente sobre los determinantes moleculares de la respuesta a los inhibidores de CDK4/6 se ha centrado en genes que codifican proteínas, dejando menos caracterizada la contribución de los ARNlnc. Nuestros hallazgos amplían este campo al identificar a LINC01871 como un posible ARN no codificante asociado con la respuesta a los inhibidores de CDK4/6. Los ensayos de citotoxicidad y formación de colonias, junto con la evaluación mediante citometría de flujo y el análisis de proteínas relacionadas con el ciclo celular, asociaron de forma consistente la sobreexpresión de LINC01871 con una mayor sensibilidad al ribociclib y al palbociclib. Ensayos independientes de proliferación y el modelo de xenoinjerto respaldaron además una asociación inhibitoria entre la sobreexpresión de LINC01871 y el crecimiento del cáncer de mama.
Para explorar los mecanismos que podrían subyacer a estas observaciones, examinamos los perfiles funcionales de los genes expresados diferencialmente entre los grupos con alto y bajo nivel de LINC01871, así como de los genes coexpresados con LINC01871. Los análisis GO y KEGG asociaron ambos conjuntos de genes con procesos relacionados con la inmunidad y la señalización de NF-κB. Este hallazgo es relevante para la regulación del ciclo celular, ya que se ha reportado previamente que la señalización de NF-κB aumenta la expresión de la ciclina D y, por tanto, facilita la progresión del ciclo celular25,26. Zhou et al. demostraron además que NF-κB puede interactuar con el promotor de CDK6 y estimular la transcripción de CDK627. También se ha descrito una interacción entre NF-κB y la vía PI3K/AKT/mTOR28, y esta última vía está implicada en la resistencia a los inhibidores de CDK4/611. En conjunto, estas observaciones proporcionan una justificación para examinar la actividad de NF-κB en el contexto de LINC01871. En consonancia con los resultados de enriquecimiento, las células que sobreexpresan LINC01871 mostraron una fosforilación menor de P65. Sin embargo, estos datos establecen una asociación y no un mecanismo regulador directo, y aún queda por determinar cómo LINC01871 influye en la señalización de NF-κB.
El microentorno inmunitario representa otro factor potencial que contribuye a la respuesta a los inhibidores de CDK4/6. Por ejemplo, se ha reportado que las células T γδ facilitan la resistencia mediante efectos mediados por macrófagos CX3CR1⁺29. Luo et al. observaron una mayor infiltración de células T CD8⁺ y células NK en tumores de pacientes que desarrollaron resistencia a los inhibidores de CDK4/6 en momentos posteriores30. Nuestro análisis a nivel de una sola célula mostró que la expresión de LINC01871 era más prominente en células T y células NK que en células epiteliales. Análisis complementarios basados en el transcriptoma asociaron una mayor expresión de LINC01871 con una infiltración estimada más alta de células T CD8⁺, macrófagos M1 y células NK, y con una infiltración estimada más baja de macrófagos M2 y células T reguladoras (Tregs). Las células T CD8⁺, los macrófagos M1 y las células NK se han asociado con actividad inmunitaria antitumoral, mientras que los macrófagos M2 se han relacionado con funciones que favorecen el tumor31,32,33,34. En conjunto, nuestros resultados sugieren que una mayor expresión de LINC01871 podría estar asociada con un microentorno tumoral más inmunológicamente activo. Sin embargo, esta interpretación sigue siendo preliminar, ya que las estimaciones de células inmunitarias se infirieron a partir de perfiles transcriptómicos y no se midieron directamente, y serán necesarios estudios funcionales para determinar si LINC01871 tiene un papel en la modulación del microentorno inmunitario.
Deben reconocerse varias limitaciones al interpretar estos hallazgos. En primer lugar, LINC01871 se identificó mediante un análisis integrador multi-ómico en el que la respuesta al fármaco se infirió computacionalmente, en lugar de obtenerse de pacientes que recibieron inhibidores de CDK4/6. Aunque experimentos in vitro directos mostraron una mayor sensibilidad a palbociclib y ribociclib tras la sobreexpresión de LINC01871, estos resultados no establecen su valor predictivo en pacientes. Por lo tanto, se requerirán cohortes independientes con datos documentados de exposición a inhibidores de CDK4/6 y respuesta clínica para evaluar a LINC01871 como un biomarcador predictivo. En segundo lugar, el análisis de descubrimiento se realizó inicialmente en toda la cohorte TCGA-BRCA, que incluye subtipos clínicamente heterogéneos de cáncer de mama. La asociación entre LINC01871 y la sensibilidad predicha al fármaco también se observó dentro del subgrupo positivo para HR y negativo para HER2; sin embargo, se necesita confirmación en poblaciones clínicamente tratadas con este subtipo. En tercer lugar, nuestros análisis de respuesta al fármaco se limitaron a palbociclib y ribociclib porque no había disponibles datos correspondientes de respuesta a abemaciclib en el conjunto de datos GDSC2 utilizado en este estudio. Por lo tanto, permanece desconocido si la asociación observada se extiende a abemaciclib. En cuarto lugar, a pesar de los efectos supresores tumorales observados en los experimentos con células y xenoinjertos, no se ha establecido el vínculo molecular entre LINC01871 y la señalización de NF-κB. La sobreexpresión de LINC01871 se acompañó de una reducción en la fosforilación de P65, pero el mecanismo responsable de esta asociación requiere mayor investigación. De manera similar, las observaciones relacionadas con el sistema inmunitario se derivaron principalmente de análisis computacionales basados en el transcriptoma y deben interpretarse como asociaciones, no como evidencia de que LINC01871 regule directamente el microambiente inmunitario tumoral. Finalmente, la resistencia a los inhibidores de CDK4/6 implica múltiples procesos biológicos, y es improbable que LINC01871 explique toda la complejidad de la respuesta al tratamiento. Por lo tanto, investigaciones futuras deberían incorporar cohortes específicas por subtipo, evaluación de la respuesta a abemaciclib, validación experimental de las asociaciones inmunitarias, estudios mecanicistas sobre la relación entre LINC01871 y la señalización de NF-κB, y evaluación clínica prospectiva para determinar si LINC01871 tiene utilidad como biomarcador predictivo.
Divulgaciones
Conflicto de intereses:
Los autores declaran que no tienen intereses competidores.
Agradecimientos
Esta investigación fue apoyada por la Fundación de Ciencias Naturales de la Provincia de Fujian (Concesión No. 2022J011056). Los autores agradecen a The Cancer Genome Atlas (TCGA) y al Gene Expression Omnibus (GEO) por proporcionar los conjuntos de datos de acceso público utilizados en este estudio.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Agujas desechables de jeringa de 25 G | Beyotime | FS802-30pcs | Agujas desechables de jeringa utilizadas para el retractor bucal y el aflojamiento opcional del ligamento periodontal |
| Solución de paraformaldehído al 4% | Solarbio | P1110 | Solución de paraformaldehído al 4% utilizada para la fijación de especímenes |
| Etileno al 75% | Ouse Medical Devices Store | N/A | Etileno médico al 75% utilizado para desinfección superficial |
| Ratones C57BL/6 | Charles River | 213 | Ratones macho C57BL/6 de 8 semanas de edad que pesan entre 22–29 g |
| Carprofeno | Solarbio | C5350 | Analgésico posoperatorio administrado por vía subcutánea a 5 mg/kg |
| Bolas de algodón | Ouning Medical Devices | N/A | Bolas de algodón estériles utilizadas para la limpieza bucal y la hemostasia |
| CTAn v1.18.4.0+ | SkyScan | N/A | Software utilizado para el análisis de imágenes de μCT |
| DataViewer v1.5.6.2 | SkyScan | N/A | Software utilizado para visualizar y exportar imágenes de μCT reconstruidas |
| Fundas para dedos | LeSu Office | MEKU-1/2/3B | Fundas para dedos utilizadas para proteger el pulgar durante la extracción |
| Placa de espuma | Dongguan Lijianglong Industrial Co., Ltd. | N/A | Placa de espuma utilizada como plataforma de operación y fijación |
| Dieta en gel | ReadyDietech | J10001 | Dieta posoperatoria proporcionada sobre el suelo de la jaula durante 3 días, cuando se utiliza |
| GraphPad Prism v10.1.2 | GraphPad | RRID: SCR_002798 | Software utilizado para análisis estadístico y generación de gráficos |
| Lámpara frontal | Bazhou Pengen Protective Equipment Factory | N/A | Lámpara frontal utilizada para iluminar el campo quirúrgico |
| Almohadilla térmica | Shijiazhuang Jianuan Electrical Appliances Co., Ltd. | N/A | Almohadilla térmica precalentada a aproximadamente 38 °C para la recuperación posoperatoria |
| Fantoma de hidroxiapatita | QRM | QRM-70127 | Fantoma de calibración utilizado para convertir los valores de atenuación de TC en densidad mineral ósea |
| Dispositivo de aumento | Olympus Corporation | SZX10 | Dispositivo utilizado para inspeccionar las puntas de la pinza dentada y el alvéolo de extracción con aumento |
| Mascarilla | Senlun Medical Devices Specialty Store | N/A | Mascarilla quirúrgica |
| Escáner de microtomografía computarizada | Bruker SkyScan | SkyScan 1276 | Escáner de μCT utilizado a 80 kV, 500 μA y resolución de vóxel de 10 μm |
| Mimics Research v21.0 | Materialise | RRID: SCR_015802 | Software utilizado para reconstrucción tridimensional |
| Pentobarbital sódico | Sigma-Aldrich | P3761 | Sal de pentobarbital sódico utilizada como solución anestésica al 1% |
| Solución salina tamponada con fosfato | Solarbio | P1010 | Polvo de solución salina tamponada con fosfato 0,01 M, pH 7,2–7,4 |
| Solución antiséptica de povidona yodada | Belkon Pharmacy Flagship Store | N/A | Solución de povidona yodada utilizada para desinfección abdominal |
| Ligas elásticas | Foshan Puli Rubber Products Factory | N/A | Ligas elásticas utilizadas para ensamblar el retractor bucal |
| Solución salina | Thermo Fisher | BR0053G | Comprimidos salinos utilizados para preparar la solución para limpieza bucal |
| Dieta estándar para animales | Jiangsu Xietong Pharmaceutical and Biotechnology Engineering Co., Ltd. | XTC01WC-001 | Dieta estándar utilizada para el alojamiento habitual y ablandada para la alimentación posoperatoria |
| Esterilizador de vapor | Instalación institucional | N/A | Equipo utilizado para esterilizar las pinzas dentadas y la solución salina |
| Hisopos de algodón estériles | Kangbailai Medical Devices Store | N/A | Hisopos de algodón estériles de un solo uso |
| Guantes estériles | Senlun Medical Devices Specialty Store | N/A | Guantes estériles de látex |
| Tela no tejida estéril | Shandong Xinhua Infection Control Supplies Hangzhou Store | N/A | Tela no tejida estéril utilizada para cubrir la superficie de operación y la almohadilla térmica |
| Casco quirúrgico estéril | Senlun Medical Devices Specialty Store | N/A | Casco quirúrgico estéril |
| Indumentaria quirúrgica limpia | Senlun Medical Devices Specialty Store | N/A | Indumentaria quirúrgica limpia usada durante el procedimiento |
| Cinta adhesiva | Thermo Fisher | 15947 | Cinta adhesiva utilizada para fijar las extremidades del ratón |
| Pinzas oftálmicas dentadas | Beyotime | FS229 | Pinzas de fuerza oftálmicas dentadas utilizadas como fórceps dentales |
| Ungüento oftálmico veterinario | Dechra Veterinary Products | 143-16 | Ungüento oftálmico aplicado tras la anestesia para prevenir el secado corneal |
Referencias
- Bray F, et al. Global cancer statistics 2022: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2024;74(3):229-63.
- Xiong X, et al. Breast cancer: Pathogenesis and treatments. Signal Transduct Target Ther. 2025;10(1):49.
- Ye F, et al. Advancements in clinical aspects of targeted therapy and immunotherapy in breast cancer. Mol Cancer. 2023;22(1):105.
- Johnston SRD, et al. Abemaciclib plus endocrine therapy for hormone receptor-positive, HER2-negative, node-positive, high-risk early breast cancer (monarchE): Results from a preplanned interim analysis of a randomised, open-label, phase 3 trial. Lancet Oncol. 2023;24(1):77-90.
- Slamon D, et al. Ribociclib plus endocrine therapy in early breast cancer. N Engl J Med. 2024;390(12):1080-91.
- Finn RS, et al. The cyclin-dependent kinase 4/6 inhibitor palbociclib in combination with letrozole versus letrozole alone as first-line treatment of oestrogen receptor-positive, HER2-negative, advanced breast cancer (PALOMA-1/TRIO-18): A randomised phase 2 study. Lancet Oncol. 2015;16(1):25-35.
- Morrison L, Loibl S, Turner NC. The CDK4/6 inhibitor revolution-a game-changing era for breast cancer treatment. Nat Rev Clin Oncol. 2024;21(2):89-105.
- Guo Z, et al. Cyclin-dependent kinase 4 and 6 inhibitors in breast cancer treatment. Oncogene. 2025;44(17):1135-52.
- Vora SR, et al. CDK4/6 inhibitors sensitize PIK3CA-mutant breast cancer to PI3K inhibitors. Cancer Cell. 2014;26(1):136-49.
- Foffano L, et al. Cyclin-dependent kinase 4 and 6 inhibitors (CDK4/6i): Mechanisms of resistance and where to find them. Breast. 2025;79:103863.
- Hao C, et al. PI3K/AKT/mTOR inhibitors for hormone receptor-positive advanced breast cancer. Cancer Treat Rev. 2025;132:102861.
- Bidard FC, et al. Switch to fulvestrant and palbociclib versus no switch in advanced breast cancer with rising ESR1 mutation during aromatase inhibitor and palbociclib therapy (PADA-1): A randomised, open-label, multicentre, phase 3 trial. Lancet Oncol. 2022;23(11):1367-77.
- Bidard FC, et al. First-line camizestrant for emerging ESR1-mutated advanced breast cancer. N Engl J Med. 2025;393(6):569-80.
- Zhang D, et al. Cancer-associated fibroblasts promote tumor progression by lncRNA-mediated RUNX2/GDF10 signaling in oral squamous cell carcinoma. Mol Oncol. 2022;16(3):780-94.
- Chen F, et al. Extracellular vesicle-packaged HIF-1α-stabilizing lncRNA from tumour-associated macrophages regulates aerobic glycolysis of breast cancer cells. Nat Cell Biol. 2019;21(4):498-510.
- Chen X, et al. Estrogen-induced lncRNA LINC02568 promotes estrogen receptor-positive breast cancer development and drug resistance through both in trans and in cis mechanisms. Adv Sci (Weinh). 2023;10(25):e2206663.
- Huang R, Zhou PK. DNA damage repair: Historical perspectives, mechanistic pathways and clinical translation for targeted cancer therapy. Signal Transduct Target Ther. 2021;6(1):254.
- Güren AK, et al. Post-CDK4/6 inhibitor treatment landscape in metastatic hormone receptor-positive breast cancer: A narrative review. Expert Rev Anticancer Ther. 2026;26(4):425-35.
- Güren AK, et al. Efficacy and safety of sacituzumab govitecan in hormone receptor-positive metastatic breast cancer: A systematic review and meta-analysis. J Oncol Pharm Pract. 2026. doi:10.1177/10781552261462434.
- Liao L, et al. C9orf142 transcriptionally activates MTBP to drive progression and resistance to CDK4/6 inhibitors in triple-negative breast cancer. Clin Transl Med. 2023;13(11):e1480.
- Zhu X, et al. Efficacy and mechanism of the combination of PARP and CDK4/6 inhibitors in the treatment of triple-negative breast cancer. J Exp Clin Cancer Res. 2021;40(1):122.
- Yang Y, et al. Dual inhibition of CDK4/6 and CDK7 suppresses triple-negative breast cancer progression via epigenetic modulation of SREBP1-regulated cholesterol metabolism. Adv Sci (Weinh). 2025;12(5):e2413103.
- Herrera-Abreu MT, et al. Inhibition of GPX4 enhances CDK4/6 inhibitor and endocrine therapy activity in breast cancer. Nat Commun. 2024;15(1):9550.
- Peng WT, et al. Inhibition of ACAA1 restrains proliferation and potentiates the response to CDK4/6 inhibitors in triple-negative breast cancer. Cancer Res. 2023;83(10):1711-24.
- Joyce D, et al. NF-κB and cell-cycle regulation: The cyclin connection. Cytokine Growth Factor Rev. 2001;12(1):73-90.
- Iwanaga R, et al. Activation of the cyclin D2 and CDK6 genes through NF-κB is critical for cell-cycle progression induced by HTLV-I Tax. Oncogene. 2008;27(42):5635-42.
- Zhou B, et al. Bortezomib suppresses self-renewal and leukemogenesis of leukemia stem cells by NF-κB-dependent inhibition of CDK6 in MLL-rearranged myeloid leukemia. J Cell Mol Med. 2021;25(6):3124-35.
- Yu M, et al. Baicalein increases cisplatin sensitivity of A549 lung adenocarcinoma cells via the PI3K/AKT/NF-κB pathway. Biomed Pharmacother. 2017;90:677-85.
- Petroni G, et al. IL-17A-secreting γδ T cells promote resistance to CDK4/CDK6 inhibitors in HR-positive/HER2-negative breast cancer via CX3CR1-positive macrophages. Nat Cancer. 2025;6(10):1656-75.
- Luo L, et al. Single-cell RNA sequencing identifies molecular biomarkers predicting late progression to CDK4/6 inhibition in patients with HR-positive/HER2-negative metastatic breast cancer. Mol Cancer. 2025;24(1):48.
- Komuro H, et al. Single-cell sequencing of CD8-positive tumor-infiltrating lymphocytes revealed the nature of exhausted T cells recognizing neoantigens and cancer/testis antigens in non-small cell lung cancer. J Immunother Cancer. 2023;11(8):e007180.
- Rafei H, et al. CREM is a regulatory checkpoint of CAR and IL-15 signalling in NK cells. Nature. 2025;643(8073):1076-86.
- Van Elsas MJ, et al. Immunotherapy-activated T cells recruit and skew late-stage activated M1-like macrophages that are critical for therapeutic efficacy. Cancer Cell. 2024;42(6):1032-50.e1010.
- Yang J, et al. STK11 coordinates IL-4 signaling with metabolic reprogramming to control M2 macrophage polarization and antitumor immunity. Sci Adv. 2025;11(39):eadx5495.