Aquí, describimos un enfoque para producir embriones modificados genéticamente mediante la edición génica CRISPR-Cas9 y la transferencia nuclear de células somáticas para generar modelos ovinos de enfermedades humanas. Este enfoque es ideal para realizar ediciones génicas precisas en células donantes y producir embriones clonados sin mosaicismo genético.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de método
Generación de embriones modificados genéticamente mediante edición génica y transferencia nuclear de células somáticas para la producción de modelos ovinos de enfermedades humanas
En este artículo
Resumen
Resumen
Los modelos de animales grandes son herramientas valiosas para investigar enfermedades humanas. Las ovejas, cerdos y cabras suelen reproducir mejor la anatomía y fisiología de los órganos humanos y la complejidad de las enfermedades humanas, aumentando así su relevancia clínica en comparación con los roedores. CRISPR-Cas9 y la transferencia nuclear de células somáticas (SCNT) permiten generar modelos de animales grandes con mayor precisión, versatilidad y uniformidad genética. La principal ventaja de este enfoque, en comparación con la microinyección en cigotos, es la capacidad de confirmar in vitro si la modificación genética deseada y posibles mutaciones fuera del blanco están presentes en las células editadas antes de la producción del animal. Además, la SCNT elimina la posibilidad de mosaicismo genético, que con frecuencia resulta de la microinyección en cigotos. Aquí describimos la generación de células ovinas modificadas genéticamente mediante unión de extremos no homólogos (NHEJ) y reparación dirigida por homología (HDR), seguida de la producción de embriones clonados que portan las mutaciones de interés. Las modificaciones genéticas se introducen transfectando células somáticas cultivadas, típicamente fibroblastos fetales, con el sistema CRISPR-Cas9. La eficiencia de mutación en células agrupadas se evalúa mediante reacción en cadena de la polimerasa (PCR) y secuenciación de Sanger de los genes editados, y se analiza utilizando el software Tracking of Indels by DEcomposition (TIDE)/Tracking of Insertions, Deletions, and Recombination events (TIDER). Se realiza una dilución límite de las células agrupadas para obtener colonias derivadas de una sola célula, que se analizan mediante PCR y secuenciación de ADN de los genes editados. Las células donantes con la(s) edición(es) de interés se amplían posteriormente y se utilizan para la generación de embriones mediante SCNT. Tras la dilución límite y el cribado celular, 22/114 (19,3 %) de las colonias modificadas mediante NHEJ contenían mutaciones de tipo knockout (KO) y 4/56 (7,1 %) de las colonias modificadas con HDR contenían la mutación F508del. Se crearon un total de 370 embriones modificados genéticamente a partir de cuatro colonias. Estos métodos se utilizan con éxito para la edición genética precisa en fibroblastos fetales y la generación de embriones genéticamente modificados para producir modelos ovinos de enfermedades humanas.
Introducción
Los modelos animales son herramientas esenciales para comprender los mecanismos biológicos de las enfermedades humanas y para el desarrollo de nuevos tratamientos terapéuticos. Los modelos in vitro, como los cultivos celulares u organoides, no reproducen la complejidad de los subtipos celulares y las interacciones célula-célula que ocurren in vivo en los órganos1,2. Por lo tanto, los animales proporcionan modelos de organismo completo con mayor detalle en cuanto a interacciones a nivel celular y sistémico, progresión de la enfermedad y seguridad de los tratamientos terapéuticos. Los roedores son organismos modelo prácticos debido a su bajo costo, corto tiempo de generación y caracterización genética completa. Sin embargo, los modelos de roedores para enfermedades humanas están limitados por diferencias fisiológicas y anatómicas con los humanos, así como por su metabolismo más rápido y menor longevidad3,4. Esto queda demostrado por la alta proporción de terapias evaluadas en modelos animales que fracasan en ensayos clínicos, la mayoría de los cuales utilizan roedores5,6,7,8. Ovejas, cerdos, cabras, perros y primates no humanos se han utilizado para generar modelos de una amplia variedad de enfermedades humanas, lo cual podría ayudar a aumentar la tasa de traslación clínica de nuevos tratamientos y medicamentos3,9,10,11,12. Estas especies también ofrecen numerosas ventajas frente a los modelos de roedores debido a su mayor similitud con los humanos. Por lo tanto, los modelos animales grandes para enfermedades humanas proporcionan los modelos más precisos disponibles y desempeñan un papel fundamental en la traslación de estudios animales a aplicaciones clínicas.
Los repeticiones palindrómicas cortas agrupadas y regularmente interespaciadas (CRISPR)-Cas9 es un método versátil y programable para la modificación genética de células animales y la introducción de mutaciones causantes de enfermedades precisas. La edición génica mediada por CRISPR-Cas9 emplea un ARN guía (gRNA) complementario al sitio diana, permitiendo que la proteína asociada a CRISPR 9 (Cas9) genere un corte de doble cadena (DSB) de manera específica13. La reparación celular de los DSB ocurre principalmente mediante dos mecanismos: unión de extremos no homólogos (NHEJ) y reparación dirigida por homología (HDR). La vía NHEJ repara un DSB uniendo los extremos del ADN, un mecanismo propenso a errores que puede resultar en la formación de inserciones o deleciones aleatorias (indels) en el sitio del corte14. Estas mutaciones pueden inactivar (KO) el gen al crear una mutación por corrimiento del marco de lectura o un codón de terminación prematuro, lo que interrumpe la función del gen. La HDR, que ocurre principalmente durante las fases S y G2 del ciclo celular, se produce cuando la célula repara un DSB utilizando un alelo homólogo como molde de reparación15,16. Es posible incorporar inserciones, deleciones o sustituciones específicas, conocidas como inserciones dirigidas (KI), introduciendo un oligodesoxinucleótido monocatenario sintético (ssODN) u otra molécula de ADN molde que contenga la edición deseada, la cual la célula puede utilizar para reparar el corte. CRISPR-Cas9 también puede emplearse para edición multiplexada, con el fin de introducir múltiples mutaciones simultáneamente para modelar enfermedades multigénicas3. En comparación con técnicas previas de edición génica, como las nucleasas con dedos de zinc (ZFNs) o las nucleasas efectores similares a activadores de transcripción (TALENs), CRISPR-Cas9 es mucho más sencillo y eficiente en cuanto al uso de recursos en células de animales grandes17. Es posible dirigirse fácilmente a diferentes loci mediante el diseño de un nuevo gRNA, lo que ha ayudado a acelerar la creación de nuevos modelos animales grandes utilizando CRISPR-Cas93,13. Sin embargo, aún persisten varias limitaciones, incluyendo la eficiencia de edición de CRISPR-Cas9, que puede variar considerablemente según la especie, el entorno celular y la naturaleza de la edición18,19. Las tasas de HDR, en particular, son más bajas que las de NHEJ y dependen en gran medida del tipo celular, los loci genómicos y la fase del ciclo celular20,21. Además, la introducción de ediciones no deseadas en loci fuera del blanco, o incluso en el blanco mismo, sigue siendo un problema22. A pesar de ello, CRISPR-Cas9 se ha convertido en la plataforma principal para la edición génica en la producción de modelos animales grandes modificados genéticamente.
La transferencia nuclear de células somáticas (SCNT) facilita la creación de embriones genéticamente modificados con alta precisión y homogeneidad. Este proceso, realizado por primera vez con éxito en mamíferos en 1997, implica la transferencia de un núcleo celular a un ovocito enucleado23. La SCNT posee muchas ventajas frente a otras técnicas, como la microinyección en cigoto, en la cual se inyectan directamente material genético o sistemas de edición de ADN en el cigoto o en el embrión temprano24,25,26. La microinyección en cigoto conlleva el riesgo inherente de heterogeneidad genética, o mosaicismo, entre las células del embrión, lo cual puede ocurrir si la replicación del ADN o la división celular ocurre antes de la modificación genética27,28,29. El valor de tales embriones mosaicistas como modelos animales se reduce debido a la dificultad de genotipificación y caracterización fenotípica29. En la SCNT, la edición genética se separa de la producción de embriones; cada embrión clonado se deriva de una sola célula, eliminando así el riesgo de mosaicismo y asegurando que el embrión sea genéticamente homogéneo30,31,32. Además, las células donadoras se editan y examinan cuidadosamente in vitro para confirmar la clonalidad y la presencia de la modificación deseada antes del procedimiento de SCNT, lo que ahorra tiempo y recursos25,26. Esto es especialmente importante al introducir inserciones específicas (KIs). El cribado celular también permite identificar posibles mutaciones en sitios fuera del blanco, reduciendo así el riesgo de alteraciones genéticas en otros loci. Estas ventajas abordan muchas de las preocupaciones asociadas con CRISPR-Cas9. Por lo tanto, la SCNT ofrece un mayor control sobre la genética de los embriones resultantes en comparación con la microinyección en cigoto, especialmente para ediciones más complejas, como ediciones múltiples, inserciones grandes y alelos humanizados33. Aunque la SCNT está limitada por una baja eficiencia de clonación, requisitos técnicos y una reprogrmación epigenética anormal, esta última puede provocar alteraciones moleculares y fenotípicas en los clones, lo que potencialmente enmascara los efectos de la modificación genética en los animales fundadores. Sin embargo, estas alteraciones epigenéticas no se transmiten a la descendencia32,33. A pesar de estas limitaciones, la combinación de SCNT con CRISPR-Cas9 permite una ingeniería genómica precisa con un control estricto sobre la genética de los embriones, favoreciendo la producción confiable de modelos de enfermedades en animales grandes sin mosaicismo. A continuación, describimos un enfoque detallado para la modificación genética de fibroblastos fetales de oveja (SFF) utilizando ya sea NHEJ o HDR, seguido de SCNT para la producción de embriones clonados, con el objetivo final de generar modelos de oveja para enfermedades humanas. Este enfoque es ampliamente aplicable a otras especies de ganado, aunque la edición genética puede requerir optimización en diferentes tipos celulares, sirviendo este protocolo como un punto de partida útil.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Protocolo
Todos los procedimientos con animales fueron aprobados por el Comité Institucional de Cuidado y Uso de Animales (IACUC: #15508 y #10089) de la Universidad Estatal de Utah y se realizaron de acuerdo con las directrices de los Institutos Nacionales de Salud (NIH). En este estudio, se utilizaron ovejas domésticas Romney (Ovis aries) para aislar fibroblastos fetales de oveja (Archivo Suplementario 134). Véase la Figura 1 para una visión general del protocolo.
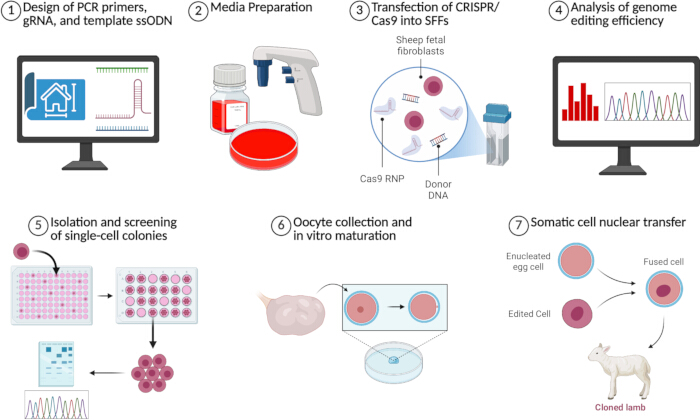
Figura 1: Resumen de los métodos CRISPR-Cas9 y TCNI utilizados para generar embriones modificados genéticamente. Se muestra un resumen de cada uno de los siete pasos principales del protocolo. Creado en BioRender. Perisse, I. (2026). Haga clic aquí para ver una versión más grande de esta figura.
1. Diseño de cebadores de PCR, ARN-g y ADNc de cadena sencilla de plantilla
- Abra la región genómica que se va a editar en Benchling (https://www.benchling.com/academic).
- Diseñe cebadores de PCR para amplificar y secuenciar la región genómica de interés.
- Resalte la región diana que se amplificará, más 200 pares de bases aguas arriba y aguas abajo de la región diana para asegurar una distancia suficiente que permita llamadas de trazas de alta calidad y un análisis preciso de la eficiencia de mutación con el software TIDE.
- En la barra de navegación derecha, haga clic en Primers > Create Primers > Wizard.
- En Region, haga clic en Use Selection. En Amplicon, ajuste el Size según corresponda y modifique cualquier otro parámetro según desee.
- Haga clic en Generate Primers. Seleccione uno o más pares de cebadores con puntuaciones de penalización bajas para encargarlos.
NOTA: Dependiendo de la edición que se introduzca, se recomienda diseñar cebadores que se unan únicamente al ADN editado correctamente, lo que permitirá una cribado más rápido de colonias positivas.
- Diseñe el ARN guía (gRNA) para editar el ADN con CRISPR-Cas9.
- En Benchling, resalte la región genómica que se va a editar, luego en la barra de navegación derecha, haga clic en CRISPR > Design and analyze guides.
- Haga clic en el menú desplegable Genome y seleccione o importe el genoma del organismo modelo. Ajuste cualquier otro parámetro según desee.
- Haga clic en Finish > +.
- En Genome Region, haga clic en No region set y seleccione o introduzca la región genómica que contiene el sitio diana. Haga clic en Set genome region.
- Seleccione una o más guías con puntuaciones altas tanto en el sitio objetivo como fuera del sitio objetivo para encargarlas.
- Si va a realizar ediciones de inserción (KI), diseñe una plantilla ssODN.
- En la barra de navegación derecha, haga clic en CRISPR > Design HR template (ssODN).
- Haga clic en el menú desplegable Genome y seleccione o importe el genoma del organismo modelo. Haga clic en Create.
- Haga clic en la pestaña SEQUENCE MAP, resalte las bases que se editarán y cree la versión modificada de la secuencia de ADN escribiendo las ediciones deseadas desde el teclado. Vuelva a la pestaña DESIGN HR TEMPLATE y haga clic en Next.
- Ajuste la Template region para incluir al menos 50 pares de bases de brazos de homología a cada lado de la edición, luego haga clic en Next.
- Introduzca la secuencia del gRNA seleccionado en el paso 1.3.5 en el cuadro Guide para introducir mutaciones silenciosas que interrumpan el motivo adyacente al protoespaciador (PAM). Haga clic en Next.
- Haga clic en Copy the template y encargue la plantilla ssODN generada.
NOTA: Las secuencias de los cebadores de PCR, los gRNA de CRISPR-Cas9 y las plantillas ssODN diseñadas utilizando Benchling para la generación de un modelo ovino de fibrosis quística que porta una mutación de tipo knockout (KO) o la mutación F508del se presentan en la Tabla 1.
2. Preparación del medio
- Prepare el medio de cultivo celular suplementando el medio de Eagle modificado por Dulbecco (DMEM) con alta concentración de glucosa con 15% de suero bovino fetal (SBF) y 1% de penicilina-estreptomicina (Pen/Estrept) (v/v). Precaliente en un baño de agua a 37 °C antes del uso.
- Prepare el medio de congelación suplementando el DMEM con 45 % de FBS y 10 % de dimetilsulfóxido (DMSO).
- Prepare el medio de recolección de ovocitos suplementando el medio M199 con 1% de Pen/Strep, 0,3% de albúmina sérica bovina (BSA) fracción V, 1% de SFB y 0,06% de heparina sodio.
- Encargue los medios de maduración in vitro (IVM) y cultivo in vitro (IVC), que son medios libres de suero disponibles comercialmente y formulados para la maduración de ovocitos bovinos y el cultivo de embriones, respectivamente.
NOTA: Los cultivos posteriores a la fusión y los de IVC se preparan con siete 40 µL gotas de medio IVC y cubiertas con aceite mineral testado para embriones. - Prepare el medio de ayuno celular suplementando el DMEM con alta glucosa con 0,5 % de FBS y 1 % de Pen/Strep (v/v). Precaliente en un baño de agua a 37 °C antes del uso.
- Preparar el medio de fluido oviductal sintético suplementado con HEPES (HSOF) como se describió previamente35.
- Prepare el medio de enucleación suplementando 500 µL de medio HSOF con 4,5 mM de sacarosa y 10 µg/mL Citocalasina B (CB).
- Preparar el medio de inyección suplementando 500 µL de medio HSOF con 10 µg/mL Citocalasina B (CB).
NOTA: Los medios de enucleación e inyección se preparan frescos el día de la TCNS. Una gota (200 µL) de cada medio se coloca en placas de 100 mm y se cubre con aceite mineral probado para embriones. - Prepare el medio de fusión como se describió previamente35. Retire 5–10 mL del medio de fusión de 4 °C y mantener a temperatura ambiente hasta su uso.
- Preparar el medio CB suplementando el medio IVC con 10 µg/mL CB.
NOTA: Un plato de CB se prepara con siete 40 µL gotas de medio CB y cubiertas con aceite mineral probado en embriones. - Prepare el medio de ionomicina suplementando el medio HSOF con 5 µM sal de calcio de ionomicina
- Prepare el medio de activación suplementando el medio IVC con 2 mM de 6-dimetilaminopurina (DMAP) y 10 µg/mL Cicloheximida (CHX).
NOTA: Un plato de activación se prepara con siete 40 µL gotas de medio de activación y cubierto con aceite mineral probado para embriones.
3. Transfección de CRISPR-Cas9 en SFFs
- (Condiciones) Realice todos los procedimientos de cultivo celular en una cabina de seguridad biológica o en una campana de flujo laminar. Cultive los fibroblastos de piel fetal (SFF) en un matraz T-25 con medio de cultivo celular a 37 °C en una atmósfera de 5% CO2, 5% O2 y 90% N2 hasta que alcancen una confluencia aproximada del 70%–80% antes de la transfección.
- Retire todo el medio del matraz y lave las células una vez con 5 mL de solución salina tamponada con fosfato de Dulbecco (DPBS). Incube con 1 mL de enzima de disociación tipo tripsina durante 5–10 min hasta que las células se disocien.
- Diluya la enzima de disociación tipo tripsina utilizando un volumen igual de medio de cultivo celular y centrifugue las células a 200 × g durante 5 min.
- (Momento) Prepare el complejo ribonucleoproteico (RNP) de ARN-guía:Cas9 incubando 2,5 µL de ARN-guía a 100 µM con 2,5 µL de proteína Cas9 a 5 µg/µL durante 10 min a temperatura ambiente.
NOTA: Las proporciones de RNP Cas9:ARN-guía podrían requerir optimización dependiendo del tipo celular, el gen diana y el número de dianas. - Prepare la solución de nucleofección mezclando 82 µL de solución de nucleofección con 18 µL de solución suplemento.
- Combine la solución de nucleofección con el complejo RNP y, si se utiliza un ssODN, agregue 2 µL de ssODN a 200 µM, luego mezcle suavemente mediante pipeteo.
- Después de la centrifugación, deseche cuidadosamente el sobrenadante y coloque el tubo boca abajo sobre un tejido sin pelusas para eliminar el medio residual.
NOTA: El medio de cultivo residual podría afectar la eficiencia de transfección y la viabilidad celular. Asegúrese de eliminar completamente el exceso de líquido antes de resuspender el sedimento celular en la solución de nucleofección. - (Paso crítico) Resuspenda los fibroblastos en la solución de nucleofección, luego transfiera la mezcla a una nucleocuveta de 100 µL, evitando la formación de burbujas. Toque suavemente la nucleocuveta sobre una superficie dura para hacer que la mezcla descienda al fondo de la misma.
NOTA: Las burbujas dentro de la nucleocuveta podrían interferir con la electroforesis. - (Configuración relevante) Electroforese las células utilizando el programa EH-100 o según las recomendaciones del fabricante. Permita que las células se recuperen durante 10 min a temperatura ambiente.
- Transfiera las células electroforizadas usando una pipeta de transferencia a 5 mL de medio de cultivo celular pre-equilibrado, suplementado con un potenciador de recombinación dirigida (HDR) a una concentración final de 1–2 µM, cuya concentración podría requerir optimización en otros tipos celulares.
- (Condiciones) Cultive las células en medio de cultivo celular a 37 °C en 5% CO2, 5% O2 y 90% N2 durante 48 h antes del aislamiento del ADN genómico.
- Retire el medio de las células, lávelas una vez con DPBS y agregue 1 mL de enzima de disociación tipo tripsina.
- Una vez que las células se hayan desprendido, agregue 1 mL de medio de cultivo celular para diluir la enzima de disociación tipo tripsina.
- Destine aproximadamente dos tercios de la suspensión celular para criopreservación y un tercio para la extracción de ADN genómico, distribuyéndolos en tubos etiquetados de 1,5 mL. Centrifugue todos los tubos a 200 × g durante 5 min.
- Resuspenda el sedimento celular destinado a criopreservación en 500 µL de medio de congelación. Transfiera las células resuspendidas a viales criogénicos y colóquelos en un contenedor de congelación con tasa controlada a -80 °C, minimizando el tiempo que las células permanecen en el medio de congelación antes de su traslado a -80 °C.
- Resuspenda el sedimento celular destinado a la extracción de ADN en 200 µL de DPBS. Extraiga el ADN genómico utilizando un kit de purificación de ADN genómico según las instrucciones del fabricante.
4. Análisis de la eficiencia de edición del genoma
- Amplifique los loci diana a partir del ADN aislado utilizando una ADN polimerasa de alta fidelidad y los cebadores de PCR diseñados previamente.
- Confirme la amplificación por PCR mediante electroforesis en gel de agarosa, utilizando un gel de agarosa al 1 % con una escalera de ADN de 1 kb.
- Purifique los productos de PCR utilizando un kit de purificación de PCR y envíelos para secuenciación Sanger.
- Si se realizó una interrupción génica (KO), utilice el software TIDE (https://apps.datacurators.nl/tide) para evaluar la eficiencia de edición36. Utilice cromatogramas de alta calidad con señal de fondo mínima para un análisis preciso de la eficiencia de edición.
- Abra TIDE y asigne un nombre a la muestra en el cuadro Título de la gráfica. En Secuencia de la guía, introduzca la secuencia del ARN guía utilizado.
- En Cromatograma de la muestra control, haga clic en Examinar y cargue el cromatograma de la muestra control sin editar.
- En Cromatograma de la muestra de prueba, haga clic en Examinar y cargue el cromatograma de la muestra de prueba editada.
- Vaya a la pestaña Descomposición para visualizar el espectro de inserciones y deleciones (indel) y la eficiencia de mutación. Verifique el valor de R2 en la esquina superior derecha del espectro de indel.
- Si el valor de R2 es inferior a 0,9, marque la casilla Configuración avanzada en Parámetros y ajuste los controles deslizantes para la ventana de alineamiento, la ventana de descomposición y el tamaño del indel hasta que el valor de R2 sea superior a 0,9 y se logre un alineamiento adecuado.
- Si se realizó una inserción génica (KI), utilice el software TIDER (https://apps.datacurators.nl/tider) para evaluar la eficiencia de edición37.
- Abra TIDER. Asigne un nombre a la muestra en el cuadro Título de la gráfica. En Secuencia de la guía, introduzca la secuencia del ARN guía utilizado.
- En Cromatograma de la muestra control, haga clic en Examinar y cargue el cromatograma de la muestra control sin editar.
- En Cromatograma de referencia, haga clic en Examinar y cargue un cromatograma de una muestra de referencia que contenga la edición deseada.
NOTA: Si no existe tal secuencia, se puede generar mediante amplificación por PCR utilizando cebadores adicionales diseñados para introducir la mutación en una secuencia de ADN38. - En Cromatograma de la muestra de prueba, haga clic en Examinar y cargue el cromatograma de la muestra de prueba editada.
- Vaya a la pestaña Descomposición para visualizar el espectro de indel, la eficiencia de mutación y la eficiencia de recombinación dirigida (HDR). Verifique el valor de R2 en la esquina superior derecha del espectro de indel.
- Si el valor de R2 es inferior a 0,9, marque la casilla Configuración avanzada en Parámetros y ajuste los controles deslizantes para la ventana de alineamiento, la ventana de descomposición, la distancia aguas arriba del sitio de corte y el tamaño del indel hasta que el valor de R2 sea superior a 0,9 y se logre un alineamiento adecuado.
NOTA: (Crítico) Puede ser necesario realizar una nueva secuenciación si la calidad del archivo de secuenciación es deficiente.
5. Aislamiento y selección de colonias de células individuales
- (Condiciones) Descongele y cultive los SFF transfectados en un matraz T-25 durante la noche a 37 °C con 5% de CO2, 5% de O2 y 90% de N2, o hasta que las células alcancen aproximadamente el 80% de confluencia.
- Retire el medio, lave las células una vez con 5 mL de DPBS y disocie las células con 1 mL de enzima de disociación tipo tripsina.
- Añada medio de cultivo celular para diluir la enzima de disociación tipo tripsina y transfiera la suspensión celular a un tubo cónico de 15 mL. Centrifugue las células a 200 × g durante 5 min.
- Descarte el sobrenadante y resuspenda el sedimento celular en 1 mL de medio de cultivo celular. Mezcle suavemente pero completamente para obtener una suspensión homogénea de células individuales.
- (Crítico) Prepare una dilución 1:10 de la suspensión celular y cuente las células utilizando un hemocitómetro con azul de tripano.
- Calcule el volumen de suspensión celular diluida necesario para sembrar aproximadamente una célula por pocillo.
NOTA: Para cinco placas de 96 pocillos, prepare aproximadamente 500 células. - Prepare 10 mL de medio de cultivo celular por placa de 96 pocillos en un tubo cónico de 50 mL.
- Añada el volumen calculado de la suspensión celular diluida 1:10 al medio de cultivo y mezcle bien mediante pipeteo suave e inversión.
- Vierta la suspensión celular diluida en un depósito estéril para reactivos.
- Dispense 100 µL de la suspensión celular en cada pocillo de una placa de 96 pocillos.
- (Condiciones) Incube las placas a 37 °C en 5% de CO2, 5% de O2 y 90% de N2 durante 5 días.
- Examine cada pocillo bajo el microscopio y marque los que contengan una sola colonia. Excluya los pocillos que contengan más de una colonia.
NOTA: Las colonias derivadas de una sola célula suelen ser redondas, compactas y morfológicamente homogéneas. - Devuelva las placas al incubador y cultive durante 2 días adicionales en las mismas condiciones.
- Después de 7 días totales de cultivo en placas de 96 pocillos, retire el medio de los pocillos que contengan una colonia en crecimiento. Lave cada pocillo seleccionado una vez con DPBS.
- Añada 100 µL de enzima de disociación tipo tripsina a cada pocillo seleccionado e incube hasta que las células se desprendan. Añada 100 µL de medio de cultivo celular a cada pocillo para diluir la enzima de disociación tipo tripsina.
- Transfiera todo el volumen de cada pocillo a un pocillo de una placa de 24 pocillos.
- Lave la placa original de 96 pocillos con medio de cultivo celular adicional y transfiera el lavado al pocillo correspondiente de la placa de 24 pocillos para maximizar la recuperación celular. Ajuste el volumen final en cada pocillo de la placa de 24 pocillos a 500 µL con medio de cultivo celular.
- (Condiciones) Incube las placas de 24 pocillos a 37 °C en 5% de CO2, 5% de O2 y 90% de N2 durante 3 días.
- Examine los pocillos bajo el microscopio y seleccione las colonias cercanas a la confluencia.
- Retire el medio de los pocillos seleccionados para recolección, lávelos una vez con DPBS y añada 500 µL de enzima de disociación tipo tripsina.
- Una vez que las células se hayan desprendido, añada 1 mL de medio de cultivo celular para diluir la enzima de disociación tipo tripsina.
- Congele las células y aísle el ADN genómico según los pasos 3.14–3.16.
- Amplifique los loci diana mediante PCR y confirme el genotipo mediante secuenciación Sanger.
- Identifique las colonias de tipo salvaje, KO y KI según los resultados de secuenciación. Utilice el análisis TIDE/TIDER descrito en los pasos 4.4 y 4.5 para estimar las tasas de HDR y los espectros de indel, con el fin de validar la edición correcta y la identificación de colonias no derivadas de una sola célula.
NOTA: En este paso también se puede realizar un análisis de efectos fuera del blanco (Archivo Suplementario 1). - Expanda únicamente las colonias con el genotipo deseado y morfología celular normal para experimentos posteriores de SCNT.
6. Recolección de ovocitos ovinos y maduración in vitro
- Recoger ovarios de oveja de un matadero local y transportarlos al laboratorio en solución salina al 0,9 % a 25 °C en un plazo de 4 h desde la recolección.
- Óvulos maduros in vitro.
- Liberar los complejos cumulus-ovocito (COC) de los ovarios utilizando una hoja de bisturí, cortando la superficie ovárica mientras está sumergida en medio de recolección de ovocitos.
- (Tiempo) Seleccione COCs con al menos 1–3 capas de células del cumulus compactas y citoplasma uniforme para la MIV. Lave los COCs en medio fresco de recolección de ovocitos y cultive en medio de MIV previamente equilibrado, con hasta 40 COCs por pocillo de 500 µL de medio IVM en una placa de 4 pocillos e incubar a 38.5 °C con 5% CO2 durante 21–22 h.
- Verificar la maduración de los ovocitos.
- Mueva el número deseado de COC utilizando un 200 µL pipetear en un tubo microcentrífugo de 1,5 mL, añadiendo el mismo volumen (1:1) de hialuronidasa 0,6 mg/mL al tubo.
- Aspire y expulse la solución mezclada varias veces hasta que todas las células del cumulus hayan sido eliminadas. Transfiera los ovocitos a una gota de HSOF de 1 mL y lave los ovocitos pasándolos a través de tres gotas adicionales de HSOF.
- Usando una pipeta bucal o una 10 µL pipeta y punta, ruede y seleccione los ovocitos que presenten un cuerpo polar bajo un estereomicroscopio. Las tasas aceptables de extrusión del cuerpo polar son del 50% al 80%.
7. Transferencia nuclear de células somáticas
- Preparar las células donantes antes de la TCNE.
- Descongelar las células criopreservadas 3–5 días antes de la TCNE en un baño de agua a 37 °C durante 1–2 min hasta que no quede hielo en el tubo.
- Retirar la suspensión celular y añadir un volumen igual de medio de cultivo celular en un tubo cónico de 15 mL y centrifugar a 406 x g durante 5 min.
- Eliminar el sobrenadante y resuspender el sedimento celular en 500 µL de medio de cultivo celular.
- (Condiciones) Sembrar las células en diferentes concentraciones en una placa de 4 pocillos con un volumen final de 500 µL por pocillo y cultivar a 37 °C con 5% de CO2, 5% de O2 y 90% de N2.
- Renovar el medio de cultivo celular cada 48 h. Cuando las células alcancen confluencia completa, sustituir por medio de ayuno celular entre 24 h y 48 h antes de la TCNE.
NOTA: El ayuno celular superior a 48 h puede aumentar la proporción de apoptosis39,40.
- Preparar las células donantes (día de la TCNE).
- Eliminar el medio de ayuno del pocillo y lavar una vez con 500 µL de DPBS (-).
- Añadir 250 µL de enzima de disociación tipo tripsina e incubar a 37 °C durante 5 min, o hasta que las células se desprendan del recipiente.
- Añadir 500 µL de medio de cultivo celular para diluir la enzima de disociación tipo tripsina.
- Transferir las células a un tubo cónico de 15 mL y centrifugar a 406 x g durante 5 min.
- Eliminar el sobrenadante y resuspender las células en 60–80 µL de medio HSOF y mantenerlas a 4 °C hasta su uso.
- Enuclear los ovocitos.
- Preparar las pipetas de sujeción tirando capilares de pared fina con un tirador de micropipetas y moldeándolos con un microforjador para obtener un diámetro interno de 30 µm y un diámetro externo de 100 µm.
NOTA: Ambas pipetas también pueden adquirirse de proveedores comerciales. - Preparar las pipetas de inyección tirando capilares de pared fina con un tirador de micropipetas, biselándolas a un ángulo de 45° con un microesmerilador y moldeándolas con un microforjador para obtener un diámetro interno de 20–25 µm. Los parámetros para el tirador de micropipetas, el microforjador y el microesmerilador pueden encontrarse en un informe previo41.
- Transferir los ovocitos en estadio de metafase II (MII) que presenten un cuerpo polar al gota de medio de enucleación. Inmovilizar el ovocito utilizando una pipeta de sujeción mientras el cuerpo polar se encuentra en la posición de las 4–5 en punto.
NOTA: Los procedimientos operativos estándar para la micromanipulación pueden consultarse en el informe anterior41. - (Crítico) Utilizar una pipeta de inyección biselada con punta afilada para perforar la zona pelúcida y aspirar el cuerpo polar y el 10%–20% del citoplasma situado debajo del cuerpo polar.
- Expulsar el citoplasma extraído en la gota y liberar el ovocito de la pipeta de sujeción.
- Repetir los pasos 7.3.2–7.3.4 para todos los ovocitos hasta que todos hayan sido enucleados. Devolver los ovocitos enucleados al medio de MIV e incubar a 38.5 °C y 5% de CO2 durante 30 min.
- Preparar las pipetas de sujeción tirando capilares de pared fina con un tirador de micropipetas y moldeándolos con un microforjador para obtener un diámetro interno de 30 µm y un diámetro externo de 100 µm.
- Inyectar células donantes en ovocitos enucleados.
- Añadir la suspensión celular preparada al fondo de la gota de medio de inyección y transferir los ovocitos enucleados a la misma gota.
- Seleccionar 1–10 células redondas y sanas y aspirarlas en la pipeta de inyección.
- Utilizar la pipeta de sujeción para inmovilizar un ovocito y usar la pipeta de inyección para perforar la zona pelúcida y colocar una célula entre la zona y el ooplasma.
- Repetir los pasos 7.4.2–7.4.3 para todos los ovocitos enucleados y transferirlos a 2–3 mL de medio HSOF en una placa de 35 mm antes de la fusión celular.
- Fundir ovocitos enucleados y células donantes.
- Conectar los cables del generador de pulsos electrofusión a los alambres de la cámara de microdeslizamiento (0.5 mm) y colocar la cámara sobre la platina del microscopio.
- Añadir 600 µL de medio de fusión a la cámara.
- (Ajuste crítico/relevante) Alinear 4–6 pares citoplasma-célula entre los dos alambres de la cámara, con la célula donante en la posición de las 6 o las 12 en punto. Aplicar dos pulsos eléctricos de fusión de corriente continua de 2.0 kV/cm durante 40 µs.
- Retirar los pares citoplasma-célula de la cámara de fusión y mantenerlos en una nueva placa de 35 mm que contenga 2–3 mL de medio HSOF.
- (Condiciones) Repetir los pasos 7.5.3–7.5.4 hasta que todos los ovocitos inyectados hayan completado el proceso de fusión. Lavar los cúmulos en una placa post-fusión e incubar a 38.5 °C con 5% de CO2, 5% de O2 y 90% de N2 durante 30 min. Renovar el medio de fusión en la cámara cada 15–20 min.
- Activar y cultivar embriones.
- (Condiciones) 30 min después de la fusión, todos los embriones fusionados se incuban primero en medio CB a 38.5 °C con 5% de CO2, 5% de O2 y 90% de N2 durante 45 min.
- Posteriormente, los cúmulos se activan en ionomicina 5 µM diluida en HSOF durante 5 min, seguido de incubación en medio de activación durante 4 h.
NOTA: El medio de ionomicina se prepara fresco antes de su uso. Se recomienda realizar la activación entre 24–26 h post-maduración para mejorar el desarrollo hasta término completo. - (Condiciones) Tras la activación, los embriones reconstruidos se lavan y cultivan en medio CIV, con un máximo de 40 embriones por gota de 40 µL a 38.5 °C con 5% de CO2, 5% de O2 y 90% de N2 durante la noche o hasta el trasplante embrionario.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Resultados
Los principales pasos del protocolo se resumen en la Figura 1. Utilizamos CRISPR-Cas9 y TCNE para desarrollar un modelo ovino de fibrosis quística (FQ) que contiene ya sea una mutación indel de interrupción génica (KO) generada mediante reparación por unión de extremos no homólogos (NHEJ), o la mutación F508del mediante recombinación dirigida (HDR). Parte de estos resultados ya han sido publicados previamente42,43. Diseñamos ARN-guía...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
En este procedimiento, el diseño de cebadores, ARN-g y ssODN eficaces es fundamental para una edición génica exitosa. La unión deficiente de estas moléculas puede dificultar la edición génica y la identificación de colonias deseadas, lo que inhibe el avance hacia la transferencia nuclear de células somáticas (SCNT). Se recomienda adquirir varias variantes de cada secuencia para su prueba y optimización antes de proceder al aislamiento de colonias monoclonales. La transfección de plásmidos Cas9 para la eliminación (KO) en...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
Los autores utilizaron Grammarly (Grammarly Inc.) y ChatGPT (OpenAI) para mejorar el lenguaje y la legibilidad del manuscrito según los usos aceptados por las editoriales científicas. Estas herramientas no se utilizaron para generar texto original, conceptos de investigación, datos, imágenes o figuras en esta propuesta. Después de usar estas herramientas, los autores revisaron y editaron el contenido según fuera necesario y asumen toda la responsabilidad sobre este contenido.
Agradecimientos
Este trabajo fue apoyado en parte por la Estación Experimental Agrícola de Utah (UTAO1328) y la Fundación de Fibrosis Quística (premio POLEJA23PO).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Escalera de ADN de 1 kb | Thermo Fisher Scientific | SM0313 | Marcador de tamaño de ADN |
| Tubo centrífugo de 15 mL | Thermo Fisher Scientific | 12-565-269 | |
| Tubo microcentrífugo de 1,5 mL | Thermo Fisher Scientific | 05-408-129 | |
| Unidad 4D-Nucleofector Core | Lonza | AAF-1003B | |
| Unidad 4D-Nucleofector X | Lonza | AAF-1003X | |
| Placa de 4 pocillos | Nunc | 144444 | |
| Tubo centrífugo de 50 mL | Thermo Fisher Scientific | 12-565-270 | |
| 6-DMAP | Sigma-Aldrich | D2629 | |
| Placa de 24 pocillos | Corning | 3524 | Expansión celular |
| Placa de 96 pocillos | Corning | 3596 | Aislamiento de colonias monoclonales |
| Agarosa | Thermo Fisher Scientific | BP160-100 | Electroforesis en gel de agarosa |
| Vaso de precipitados (250 mL) | Kimble | 14000-250 | |
| Software Benchling | Benchling | https://www.benchling.com/academic | Alineación y análisis de secuencias |
| Medio IVC | IVF Bioscience | 71005 | |
| Medio IVM | IVF Bioscience | 71001 | |
| BSA | Gold Bio | A-421-250 | |
| BTX ECM | BTX | ECM-200 | Equipo (descatalogado) |
| Cámara para microporta BTX | BTX | 450103 | |
| Proteína Cas9 | Integrated DNA Technologies | Personalizado | Edición genómica CRISPR-Cas9 |
| Clorhexidina gluconato (2 %) | Aspen Vet | 11584915 | |
| CHX | Sigma-Aldrich | C7698 | |
| Software CRISPOR | CRISPOR | https://crispor.gi.ucsc.edu/ | Software de predicción de efectos fuera de blanco |
| Criovial | Thermo Fisher Scientific | 12-565-163N | |
| Citocalasina B | Sigma-Aldrich | C6762 | |
| DMSO (dimetilsulfóxido) | Fisher Scientific | BP231-100 | Reactivo para criopreservación |
| DMEM con alta glucosa | Cytiva | SH30022 | Medio de cultivo para fibroblastos |
| Kit de purificación de ADN | Thermo Fisher Scientific | K0781 | Purificación de ADN genómico de sangre total |
| DPBS sin Ca/Mg | Cytiva | SH30256 | Utilizado para lavar células y tejidos |
| Ethanol | Pharco | 111000200CSGL | |
| Suero bovino fetal | Cytiva | SH30396 | Suplemento para cultivo celular |
| Pinzas | Skylar | 66-6112 | |
| Kit de purificación de ADN genómico | Qiagen | 69504 | Extracción de ADN genómico |
| Solución de gentamicina | Gibco | 15750-060 | Utilizado en medio de enjuague |
| ARN guía | Integrated DNA Technologies | Personalizado | ARN guía CRISPR |
| Potenciador de reparación por recombinación homóloga (HDR) | Integrated DNA Technologies | 10007921 | Potencia la reparación dirigida por homología |
| Hemocitómetro | Hausser Scientific | 02-671-10 | Conteo celular |
| Hemostatos | Roboz Surgical | RS-7884 | |
| Sales de sodio de heparina | Sigma-Aldrich | H3149 | |
| ADN polimerasa Hot-Start | Promega | M5123 | Amplificación por PCR |
| Hialuronidasa | Sigma-Aldrich | H3506 | |
| Ionomicina | Sigma-Aldrich | I0634 | |
| Medio M199 | Cytiva | SH30253.01 | |
| Pantalla de malla (40 mallas) | Sigma-Aldrich | S-0770 | Tamaño de apertura 380 μm |
| Microforjadora | Narishige | MF-9 | |
| Micromolienda | Narishige | EG-4 | |
| Extractor de micropipetas | Sutter Instrument Co | P-87 | |
| Aceite mineral | Kitazato/Dibimed | 96014 | |
| Pipeta de boca | Thermo Fisher Scientific | 13-678-20D | Pipetas Pasteur desechables |
| Recipiente de congelación Mr. Frosty | Thermo Fisher Scientific | 15-350-50 | Recipiente de congelación con tasa controlada |
| Nucleocubeta | Lonza | V4XP-3032 | Cubeta para electroforesis |
| Kit P3 para células primarias 4D-Nucleofector X, tamaño L | Lonza | V4XP-3024 | Incluye solución de nucleofección, solución suplemento, nucleocubetas y pipetas de transferencia |
| Kit de purificación de PCR | Qiagen | 28006 | Purificación de productos de PCR |
| Penicilina-estreptomicina | Gibco | 15070-063 | Suplemento antibiótico |
| Placa de Petri (100 mm) | Nunc | 172958 | |
| Placa de Petri (35 mm) | Nunc | 150460 | |
| Reservorio de reactivo | CELLTREAT | 3054-1003 | |
| Escalpelo | MedBlades | MB 2-22 | |
| Tijeras | Roboz Surgical | RS-6802 | |
| Plantilla donadora de oligodesoxinucleótidos monocatenarios | Integrated DNA Technologies | Personalizado | Plantilla donadora HDR |
| Cloruro de sodio | Thermo Fisher Scientific | BP358-212 | Para solución salina |
| Sacarosa | Sigma-Aldrich | S1888 | |
| Bandeja quirúrgica | Proveedor aprobado | 74262 | |
| Tinte SYBR Safe para geles de ADN | Thermo Fisher Scientific | S33102 | Tinte para geles de ADN |
| Frascos T-25 | Thermo Fisher Scientific | 156367 | Frascos para cultivo celular |
| Frascos T-75 | Corning | 430641U | Frascos para cultivo celular |
| Capilar de vidrio de pared delgada | World Precision Instruments | TW100-6 | |
| Software TIDE/TIDER | TIDE/TIDER | https://tide.nki.nl/ | Software de análisis de edición genómica |
| Azul de tripano | Cytiva | SV30084 | |
| TrypLE Express | Gibco | 12605-010 | Enzima de disociación tipo tripsina |
Referencias
- Chang MCJ, Grieder FB. The continued importance of animals in biomedical research. Lab Anim (NY). 2024;53(11):295-297.
- Bhaduri A, et al. Cell stress in cortical organoids impairs molecular subtype specification. Nature. 2020;578(7793):142-148.
- Lin Y, et al. Application of CRISPR/Cas9 system in establishing large animal models. Front Cell Dev Biol. 2022;10:919155.
- Seok J, et al. Genomic responses in mouse models poorly mimic human inflammatory diseases. Proc Natl Acad Sci U S A. 2013;110(9):3507-3512.
- Ineichen BV, et al. Analysis of animal-to-human translation shows that only 5% of animal-tested therapeutic interventions obtain regulatory approval for human applications. PLoS Biol. 2024;22(6):e3002667.
- Schuh JCL. Trials, tribulations, and trends in tumor modeling in mice. Toxicol Pathol. 2004;32(1):53-66.
- Mak IW, Evaniew N, Ghert M. Lost in translation: animal models and clinical trials in cancer treatment. Am J Transl Res. 2014;6(2):114-118.
- Domínguez-Oliva A, et al. The importance of animal models in biomedical research: current insights and applications. Animals (Basel). 2023;13(7):1223.
- Li XJ, Lai L. A booming field of large animal model research. Zool Res. 2024;45(2):311-313.
- Pinnapureddy AR, et al. Large animal models of rare genetic disorders: sheep as phenotypically relevant models of human genetic disease. Orphanet J Rare Dis. 2015;10(1):107.
- Polejaeva IA, Rutigliano HM, Wells KD. Livestock in biomedical research: history, current status and future prospective. Reprod Fertil Dev. 2015;28(2):112-124.
- Kelly OM, et al. Towards clinical translation of nanomedicines: formulation scale-up and model systems. Adv Drug Deliv Rev. 2026;234:115862.
- Jinek M, et al. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 2012;337(6096):816-821.
- Pfeiffer P, Vielmetter W. Joining of nonhomologous DNA double strand breaks in vitro. Nucleic Acids Res. 1988;16(3):907-924.
- Thomas KR, Capecchi MR. Site-directed mutagenesis by gene targeting in mouse embryo-derived stem cells. Cell. 1987;51:503-512.
- Takata M, et al. Homologous recombination and non-homologous end-joining pathways of DNA double-strand break repair have overlapping roles in the maintenance of chromosomal integrity in vertebrate cells. EMBO J. 1998;17(18):5497-5508.
- Jiang S, Shen QW. Principles of gene editing techniques and applications in animal husbandry. 3 Biotech. 2019;9(1):28.
- Javaid N, Choi S. CRISPR/Cas system and factors affecting its precision and efficiency. Front Cell Dev Biol. 2021;9:761709.
- Wang J, et al. Application of gene editing technology in livestock: progress, challenges, and future perspectives. Agriculture (Basel). 2025;15(20):2155.
- Saleh-Gohari N, Helleday T. Conservative homologous recombination preferentially repairs DNA double-strand breaks in the S phase of the cell cycle in human cells. Nucleic Acids Res. 2004;32(12):3683-3688.
- Miyaoka Y, et al. Systematic quantification of HDR and NHEJ reveals effects of locus, nuclease, and cell type on genome-editing. Sci Rep. 2016;6:23549.
- Wen W, Zhang XB. CRISPR-Cas9 gene editing induced complex on-target outcomes in human cells. Exp Hematol. 2022;110:13-19.
- Schnieke AE, et al. Human factor IX transgenic sheep produced by transfer of nuclei from transfected fetal fibroblasts. Science. 1997;278(5346):2130-2133.
- Tang L, González R, Dobrinski I. Germline modification of domestic animals. Anim Reprod. 2015;12(1):93-104.
- Perisse IV, et al. Improvements in gene editing technology boost its applications in livestock. Front Genet. 2021;11:614688.
- Kwon DH, Gim GM, Yum SY, Jang G. Current status and future of gene engineering in livestock. BMB Rep. 2024;57(1):50-59.
- Mehravar M, Shirazi A, Nazari M, Banan M. Mosaicism in CRISPR/Cas9-mediated genome editing. Dev Biol. 2019;445(2):156-162.
- Niu Y, et al. Generation of gene-modified cynomolgus monkey via Cas9/RNA-mediated gene targeting in one-cell embryos. Cell. 2014;156(4):836-843.
- Yen ST, et al. Somatic mosaicism and allele complexity induced by CRISPR/Cas9 RNA injections in mouse zygotes. Dev Biol. 2014;393(1):3-9.
- Ni W, et al. Efficient gene knockout in goats using CRISPR/Cas9 system. PLoS One. 2014;9(9):e106718.
- Polejaeva IA. 25th anniversary of cloning by somatic cell nuclear transfer: generation of genetically engineered livestock using somatic cell nuclear transfer. Reproduction. 2021;162(1):F11-F22.
- Hodges CA, Stice SL. Generation of bovine transgenics using somatic cell nuclear transfer. Reprod Biol Endocrinol. 2003;1:81.
- Galli C. Current techniques of gene editing in pigs for xenotransplantation. Transpl Int. 2025;38:13807.
- Concordet JP, Haeussler M. CRISPOR: intuitive guide selection for CRISPR/Cas9 genome editing experiments and screens. Nucleic Acids Res. 2018;46(W1):W242-W245.
- Liu Y, et al. A retrospective analysis of sheep generated by somatic cell nuclear transfer. Theriogenology. 2024;227:102-111.
- Brinkman EK, Chen T, Amendola M, van Steensel B. Easy quantitative assessment of genome editing by sequence trace decomposition. Nucleic Acids Res. 2014;42(22):e168.
- Brinkman EK, et al. Easy quantification of template-directed CRISPR/Cas9 editing. Nucleic Acids Res. 2018;46(10):e58.
- Brinkman EK, Van Steensel B. Rapid quantitative evaluation of CRISPR genome editing by TIDE and TIDER. Methods Mol Biol. 2019;1961:29-44.
- Dalman A, et al. Synchronizing cell cycle of goat fibroblasts by serum starvation causes apoptosis. Reprod Domest Anim. 2010;45(5):e46-e53.
- Sadeghian-Nodoushan F, et al. Mimosine as well as serum starvation can be used for cell cycle synchronization of sheep granulosa cells. Chin J Biol. 2014;2014(1):851736.
- Page RL, Malcuit CM. Micromanipulation techniques for cloning. In: Principles of Cloning. Elsevier; 2014. p. 39-51.
- Viotti Perisse I, et al. Sheep models of F508del and G542X cystic fibrosis mutations show cellular responses to human therapeutics. FASEB Bioadv. 2021;3(10):841-854.
- Fan Z, et al. A sheep model of cystic fibrosis generated by CRISPR/Cas9 disruption of the CFTR gene. JCI Insight. 2018;3(19).
- Berthault C, et al. Highly efficient ex vivo correction of COL7A1 through ribonucleoprotein-based CRISPR/Cas9 and homology-directed repair to treat recessive dystrophic epidermolysis bullosa. J Invest Dermatol. 2024;144(6):1322-1333.e13.
- Martufi M, et al. Single-step, high-efficiency CRISPR-Cas9 genome editing in primary human disease-derived fibroblasts. CRISPR J. 2019;2(1):31-40.
- Bloomer H, Khirallah J, Li Y, Xu Q. CRISPR/Cas9 ribonucleoprotein-mediated genome and epigenome editing in mammalian cells. Adv Drug Deliv Rev. 2022;181:114087.
- Blocher R, et al. Effect of laparoscopic ovum pick-up on ovine in vitro oocyte maturation and somatic cell nuclear transfer embryo development. Anim Reprod Sci. 2026;292:108251.
- Campbell KH, Loi P, Otaegui PJ, Wilmut I. Cell cycle co-ordination in embryo cloning by nuclear transfer. Rev Reprod. 1996;1(1):40-46.
- Chen Y, Niu Y, Ji W. Genome editing in nonhuman primates: approach to generating human disease models. J Intern Med. 2016;280(3):246-251.
- Liu D, Cao D, Han R. Recent advances in therapeutic gene-editing technologies. Mol Ther. 2025;33(6):2619-2644.
- Campbell K, Alberio R. Reprogramming the genome: role of the cell cycle. Biosci Proc. 2019.
- Chia G, et al. Genomic instability during reprogramming by nuclear transfer is DNA replication dependent. Nat Cell Biol. 2017;19(4):282-291.
- Wang X, et al. Epigenetic reprogramming during somatic cell nuclear transfer: recent progress and future directions. Front Genet. 2020;11:205.
- Loi P, Iuso D, Czernik M, Ogura A. A new, dynamic era for somatic cell nuclear transfer? Trends Biotechnol. 2016;34(10):791-797.
- Zhao J, et al. Histone deacetylase inhibitors improve in vitro and in vivo developmental competence of somatic cell nuclear transfer porcine embryos. Cell Reprogram. 2010;12(1):75-83.
- Huang J, et al. BIX-01294 increases pig cloning efficiency by improving epigenetic reprogramming of somatic cell nuclei. Reproduction. 2016;151(1):39-49.
- Han C, et al. Overexpression of TET3 in donor cells enhances goat somatic cell nuclear transfer efficiency. FEBS J. 2018;285(14):2708-2723.
- Wang S, et al. Application of gene editing technology in resistance breeding of livestock. Life (Basel). 2022;12(7):1070.
- Houdebine LM. Production of pharmaceutical proteins by transgenic animals. Comp Immunol Microbiol Infect Dis. 2009;32(2):107-121.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Reimpresiones y permisos
Este artículo ha sido publicado
Video próximamente