Este trabajo presenta un protocolo para obtener embriones clonados de una especie de venado en peligro de extinción utilizando ovocitos enucleados de ganado bovino. Aquí, describimos detalladamente la metodología de transferencia nuclear de células somáticas interespecífica y el uso de ovocitos sin zona pelúcida como citoplasmas. Además, se discuten en detalle los resultados obtenidos.
Artículo de método
Transferencia Nuclear de Células Somáticas Interspecífica Utilizando Oocitos Libres de Zona Pellúcida de Bovino (Bos taurus) y Fibroblastos de Venado (Mazama americana)
En este artículo
Resumen
Resumen
Las biotecnologías reproductivas utilizadas en animales permiten aumentar las poblaciones de especies con alto valor genético. Además, estas tecnologías contribuyen a la conservación, preservación y difusión del material genético de individuos con características superiores. El rescate genético de individuos seleccionados ha llevado a numerosos estudios en especies domésticas cuyos hallazgos se pretende extrapolar a otras poblaciones animales o individuos específicos. Uno de estos enfoques es la transferencia nuclear de células somáticas (SCNT), o clonación, que se utiliza para producir embriones con material genético idéntico al de un espécimen existente. Entre las limitaciones de esta técnica se encuentra la disponibilidad restringida de ovocitos de animales silvestres. Por ello, como alternativa, surgió la transferencia nuclear interspecífica de células somáticas (iSCNT), que utiliza una célula somática (carioplasto) de la especie que se desea clonar como donante nuclear, e inserta dicha célula en un ovocito (citoplasto) enucleado obtenido de una especie perteneciente a un orden o taxón diferente. Este enfoque permite obtener embriones clonados viables. En Brasil existen nueve especies de ciervos, muchas de las cuales están en peligro de extinción debido a la caza indiscriminada, la pérdida de hábitat y otras causas. El venado rojo (Mazama americana) es una de las especies afectadas por estas condiciones. Por lo tanto, este trabajo presenta una metodología para obtener embriones clonados de venado rojo mediante la técnica de iSCNT, con el fin de establecer un banco de embriones para su posterior transferencia a hembras receptoras y así contribuir a garantizar la supervivencia de la especie.
Introducción
La familia Cervidae comprende actualmente 55 especies de mamíferos ungulados con astas verdaderas: estructuras óseas expuestas en la parte superior del cráneo de los machos, con la excepción del reno (Rangifer tarandus), en el cual ambos sexos las poseen1, y el ciervo acuático chino (Hydropotes inermis), en el cual ningún sexo las posee2. Los cérvidos pertenecen al orden Cetartiodactyla, que también incluye a las familias de berrendos, bóvidos, cerdos, tayásidos, camellos, tángidos, jirafas e hipopótamos. En general, los cérvidos son rumiantes herbívoros que habitan una amplia variedad de hábitats en todo el mundo, excepto en el continente antártico3.
Nueve especies pertenecientes a la familia Cervidae son actualmente reconocidas en Brasil: Odocoileus virginianus (venado de cola blanca), Blastocerus dichotomus (ciervo de los pantanos), Ozotoceros bezoarticus (venado de las pampas), Mazama americana, Mazama rufa, Mazama jucunda, Mazama nana, Subulo gouazoubira, y Passalites nemorivagus4.
Esta taxonomía refleja estudios moleculares recientes que demuestran que el género Mazama es polifilético5, lo que llevó al reconocimiento de Subulo6 y Passalites7 como géneros válidos y separados. Muchos de estos ciérvidos neotropicales están cada vez más amenazados por presiones antrópicas, incluida la pérdida de hábitat, la fragmentación del paisaje y la consiguiente reducción de la diversidad genética asociada al aislamiento poblacional8.
Durante los últimos 100 años, las técnicas de reproducción asistida se han implementado con éxito inicialmente en mamíferos de laboratorio, y gradualmente se están trasladando a especies silvestres con alta prioridad de conservación9. En consecuencia, la gran mayoría de las biotecnologías reproductivas se han desarrollado utilizando el modelo de mamíferos, y por lo tanto, este grupo ha recibido la mayor parte de la atención investigadora. Varias tecnologías reproductivas se han adaptado con éxito para mamíferos, incluyendo la inseminación artificial, la transferencia de embriones, la fertilización in vitro, la determinación del sexo de gametos y embriones, y la criopreservación de recursos genéticos10. Sin embargo, una técnica en particular, la transferencia nuclear de células somáticas (SCNT), ha destacado entre las demás debido a sus resultados y su potencial impacto cuando se utiliza en especies en peligro de extinción11.
Entre las biotecnologías reproductivas disponibles, la clonación permite la generación de individuos genéticamente idénticos al animal donante. La transferencia nuclear de células somáticas (SCNT) es la estrategia principal utilizada para la clonación, en la cual se introduce el núcleo de una célula somática en un ovocito enucleado. Sin embargo, en el contexto de especies silvestres, su aplicación frecuentemente se ve limitada por la escasez de donantes de ovocitos y las dificultades técnicas asociadas con la recuperación de ovocitos12. Estas limitaciones han llevado al desarrollo de la transferencia nuclear de células somáticas interespecífica (iSCNT) como un enfoque complementario en programas de conservación, en el que se utilizan ovocitos de animales domésticos como citoplasmas receptores para núcleos derivados de especies en peligro de extinción (Figura 1). La viabilidad de este enfoque se ha demostrado mediante la obtención exitosa de crías viables de varias especies silvestres mediante iSCNT13,14,15.
Se han propuesto diferentes estrategias para la producción de embriones clonados, dependiendo de cómo se manipulen los ovocitos y las células donantes. En el enfoque convencional, los ovocitos con la zona pelúcida intacta son enucleados, tras lo cual la célula donante se introduce en el espacio perivitelino y se fusiona mediante electrofusión16. Otra posibilidad es la inyección directa del núcleo somático en un ovocito rodeado por la zona pelúcida, utilizando técnicas de micromanipulación como la microinyección17. En contraste, los sistemas libres de zona pelúcida (sin ZP) simplifican el procedimiento de clonación al evitar varios pasos de micromanipulación, ya que la enucleación puede realizarse con una pipeta roma sin necesidad de equipos complejos18. En este ensayo, proponemos utilizar ovocitos sin zona pelúcida como citoplasmas durante la iSCNT para obtener embriones clonados empleando citoplasma bovino y carioplasma de ciervo.
Protocolo
Una hembra adulta de venado colorado fue recuperada por las autoridades ambientales en Guaramiranga, Ceará, Brasil (4°13'53.0'' S, 38°56'42.6'' O). El animal fue recibido sin vida en el Laboratorio para la Conservación de Cérvidos Neotropicales (LACCERNE), de la Universidad Estatal de Ceará (UECE), Fortaleza, Brasil. Los hallazgos de la necropsia indicaron que la muerte se debió a múltiples lesiones traumáticas causadas por un proyectil de arma de fuego que ingresó a través de la región abdominal dorsolateral izquierda. El uso de este espécimen fue autorizado por el Comité de Ética en Experimentación Animal de la Universidad Estatal de Ceará (CEUA-UECE, número de protocolo 450620/2022) y por el Instituto Brasileño del Medio Ambiente y de los Recursos Naturales Renovables (IBAMA, número de protocolo 02027.014734/99-34). Además, el uso de ovarios bovinos fue aprobado por el CEUA/UECE (número de protocolo 31032.004671/2024-81). Los detalles de todos los reactivos y equipos utilizados se enumeran en la Tabla de Materiales. Los datos que respaldan este estudio están disponibles en Zenodo con el número DOI 10.5281/zenodo.22129414.
1. Soluciones y medios de cultivo
NOTA: Realice todas las operaciones de filtración mediante un filtro estéril de 0,22 µm y almacene el filtrado a 4 °C durante hasta una semana. Almacene la solución stock a -20 °C.
- Medio de transporte: Añadir 8,1 g de NaCl y 0,045 g de pentabiótico y completar hasta 900 mL con agua destilada.
- Solución salina tamponada con fosfato (PBS): Añadir 0,4 g de NaCl, 0,01 g de KCl, 0,077 g de NaH2PO4 y 0,01 g de KH2PO4, y completar hasta 50 mL con agua ultrapura.
- Medio de cultivo celular: Medio de Eagle modificado por Dulbecco (DMEM) suplementado con 10% (v/v) de suero bovino fetal (FBS) y 1,0% (v/v) de solución de penicilina, estreptomicina y anfotericina B (ATB).
- Solución de criopreservación de fibroblastos: DMEM suplementado con 10% (v/v) de FBS y 10% (v/v) de dimetilsulfóxido (DMSO), y 2,0% (v/v) de solución ATB.
- Tripsina-EDTA (0,25%).
- Medio de manipulación: Medio de Tyrode tamponado con HEPES que contiene albúmina, lactato y piruvato (H-TALP). Utilice este medio para todos los procedimientos realizados fuera del incubador. Para 1 L, añada 6,763 g de NaCl, 0,239 g de KCl, 0,294 g de CaCl2·2H2O, 0,048 g de MgCl2, 0,168 g de NaHCO3 y 3,575 g de HEPES a 981,86 mL de agua estéril probada para embriones. Agite suavemente y añada 10 mL de antibiótico-antimicótico, 1 mL de rojo de fenol, 1,44 mL de lactato de sodio, 1 mL de solución stock de piruvato de sodio 100 mM y 3 g de albúmina sérica bovina (BSA). Ajuste la osmolaridad a 280 mOsm y el pH a un rango de 7,2 a 7,4. Divida en alícuotas de 50 mL y almacene a 4 °C durante un mes.
- Medio de maduración in vitro: Medio 199 (TCM-199) suplementado con 10% (v/v) de FBS, 10 ng/mL de factor de crecimiento epidérmico (EGF), 1 mM de piruvato de sodio, 100 µM de cisteína, 10 µg/mL de hormona foliculoestimulante (FSH), 1 µg/mL de estradiol y 1% (v/v) de solución ATB. Ajuste el pH a 7,2–7,4.
- Solución de hialuronidasa (concentración final: 1 mg/mL): Disuelva 10 mg de hialuronidasa en 10 mL de H-TALP. Prepare alícuotas de 200 µL en tubos de 1,5 mL, listas para usar.
- Solución de pronasa (concentración final: 1,5 mg/mL): Disuelva 15 mg de pronasa en 10 mL de H-TALP. Prepare alícuotas de 200 µL en tubos de 1,5 mL, listas para usar.
- Demecolcina (concentración final: 0,4 µg/mL): Disuelva 5 mg de demecolcina (DMC) en 125 µL de DMSO y prepare alícuotas de 5 µL (solución stock). Congele las alícuotas hasta su uso. Dilúyalas mezclando 2 µL de la solución stock con 1998 µL de fluido sintético de oviducto (SOF). Antes de usar, añada 5 µL de la solución stock de trabajo a 495 µL de SOF.
- Hoechst (concentración final: 10 µg/mL): Disuelva Hoechst 33342 a 1 mg/mL en H-TALP. Prepare alícuotas de 5 µL y diluciones 1:100 en medio de cultivo SOF.
ADVERTENCIA: El Hoechst 33342, utilizado para visualizar el ADN nuclear bajo luz ultravioleta, es un agente intercalante y un potente mutágeno. Manipúlelo con el equipo de protección personal adecuado. - Fitohemaglutinina (concentración final: 1 mg/mL): Disuelva 5 mg de fitohemaglutinina (PHA) en 500 µL de H-TALP. Prepare alícuotas de 10 µL en tubos de 200 µL. Para usar, añada 90 µL de H-TALP.
- Medios para fusión celular: 0,3 M manitol, 0,1 mM MgSO4, 0,05 mM CaCl2, HEPES 0,5 mM y 1 mg/mL de alcohol polivinílico (PVA) en agua ultrapura. Utilice el mismo día de su preparación.
- Ionomycin (concentración final: 5 µM): Añada 1 mL de DMSO al vial de ionomicina (1 mg/vial). Añada 1,67 mL de TCM-199. Congele alícuotas de 10 µL en tubos de 1,5 mL a -20 °C. Para usar, añada 990 µL de H-TALP al contenido de cada tubo de 1,5 mL. Protéjalo de la luz.
- 6-Dimetilaminopurina (concentración final: 2 mM): Disuelva 10 mg de 6-dimetilaminopurina (6-DMAP). Congele alícuotas de 50 µL en tubos de 1,5 mL a -20 °C. Para usar, añada 950 µL de SOF al contenido de cada tubo de 1,5 mL.
- Medio de cultivo embrionario: 0,2 mM L-glutamina, 0,2 mM piruvato de sodio, 2% de aminoácidos esenciales del Medio Basal Eagle (BME), 1% de aminoácidos no esenciales MEM 100×, 1,0% (v/v) de solución ATB, 2,77 mM mio-inositol, 2,5% (v/v) de FBS, 10 µL/mL de ITS (mezcla de insulina, transferrina humana y selenito de sodio) y 3 g/L de BSA.
2. Recolección y manipulación de la muestra de tejido donante
- Lave y afeite la superficie de la oreja de la hembra donante con agua y jabón; luego, desinfecte el área con alcohol (70 %).
- Extraiga una pequeña muestra de la oreja (1 × 2 cm) con una hoja de bisturí, colóquela en una solución de PBS que contenga 4 % de ATB y trasládela al laboratorio manteniéndola a 4 °C.
- Corte la biopsia en fragmentos pequeños usando una hoja de bisturí y colóquelos en una placa de Petri de 35 mm cubierta con medio de cultivo. Incube a 38,5 °C bajo humedad saturada con 5 % de CO₂.
- Renueve el medio de cultivo cada 48 h hasta que las células alcancen confluencia, con el fin de prevenir contaminaciones.
- Retire el medio de cultivo de la placa confluente y añada 1 mL de tripsina-EDTA al 0,25 % a la placa de Petri de 35 mm durante 2 min.
- Para inactivar la tripsina, añada 2 mL de medio de cultivo celular. Transfiera la suspensión celular a un tubo de 15 mL y centrifugue a 200 x g durante 10 min a temperatura ambiente (≈ 25 °C).
- Retire el sobrenadante y re suspenda el botón celular en 10 mL de medio de cultivo. Pase el cultivo de fibroblastos cada 5 días.
- Criopreserve los fibroblastos re suspendiendo el botón celular en 1 mL de solución criopreservante. Transfiera la suspensión celular a viales criogénicos, colóquelos a -80 °C en un recipiente de congelación controlada durante 18 h y luego transfiéralos a un tanque de nitrógeno líquido (-196 °C) hasta su uso. Tras la criopreservación de los fibroblastos, la manipulación celular puede interrumpirse y reanudarse únicamente en el momento de la sincronización del ciclo celular.
- Descongele y cultive los fibroblastos de 1 a 2 semanas antes de su uso para iSCNT.
3. Sincronización del ciclo celular
- Sincronice el ciclo celular por confluencia en la fase G0/G1.
- Retire el medio de cultivo de la placa confluyente y agregue 1 mL de tripsina-EDTA al 0,25 % a una placa de Petri de 35 mm durante 2 min en el incubador de CO₂ a 38,5 °C. Agregue 2 mL de medio de cultivo para inactivar la tripsina.
- Transfiera la suspensión celular a un tubo de 15 mL y centrifugue a 200 x g durante 10 min.
- Retire el sobrenadante y resuspenda el sedimento celular en 1-3 mL de medio de cultivo celular para iSCNT.
4. Recolección de ovocitos
- Recolecte ovarios de vaquillas o vacas inmediatamente después del sacrificio y transpórtelos al laboratorio en un termo que contenga medio de transporte, manteniendo una temperatura de 25-30 °C.
- Lave los ovarios dos veces con medio de cultivo y colóquelos en un vaso de precipitados dentro de un baño de agua a 38,5 °C.
- Aspire el líquido folicular de folículos con un diámetro de 2-8 mm utilizando una aguja de calibre 18 conectada a una jeringa de 10 mL que contenga medio H-TALP.
- Transfiera el líquido folicular aspirado a un tubo cónico de 50 mL y déjelo reposar durante al menos 15 minutos en un baño de agua a 38,5 °C.
5. Maduración y desnudez de ovocitos
- Después de 15 min, transfiera cuidadosamente todo el sedimento utilizando una pipeta Pasteur de plástico a una placa de Petri (100 × 15 mm).
- Utilice un estereomicroscopio para seleccionar los complejos cumulus-ovocito (COC) que tengan al menos tres capas compactas de células del cumulus y correspondan a los grados I a III (Tabla 1)19.
- Lave los COC tres veces con H-TALP al medio y luego dos veces con medio de maduración in vitro.
- Transfiera 20-25 COC a cada gota de 100 µL de medio de maduración in vitro cubierta con aceite mineral. Incúbelos a 38,5 °C en una atmósfera que contenga 5% de CO₂ y humedad saturada durante 20-22 h.
- Elimine las células del grupo de COC pipeteando suavemente durante 2 min en 200 µL de solución de hialuronidasa.
- Lave los ovocitos libres de células del cumulus en 2 mL de medio H-TALP.
- Bajo un estereomicroscopio, seleccione los ovocitos que muestren la extrusión del primer cuerpo polar (metafase II - MII) para los pasos posteriores.
6. Eliminación de la zona pelúcida, enucleación y reconstrucción de ovocitos sin zona pelúcida
- Incubar los ovocitos en estadio MII en una gota de 100 µL de solución de pronasa a 38,5 °C durante 1-2 min. Observar bajo un estereomicroscopio hasta que la zona pelúcida comience a adelgazarse.
- Recuperar inmediatamente los ovocitos y colocarlos en medio de cultivo suplementado con 20 % de suero bovino fetal (FBS) para inactivar la pronasa.
- Incubar los ovocitos sin la zona pelúcida en medio SOF que contenga 0,4 µg/mL de demecolcina durante 20 min para inducir una protrusión citoplasmática que contenga ADN, seguido de una segunda incubación de 20 min en el mismo medio suplementado con 10 µg/mL de Hoechst.
- Transferir los ovocitos sin zona pelúcida a gotas de H-TALP y realizar la enucleación utilizando micromanipuladores acoplados a un microscopio invertido.
- Colocar el ovocito junto a la pipeta de sujeción.
- Rotar el ovocito hasta que la protrusión quede posicionada a las tres en punto y aspirar la protrusión junto con un 5-10 % del citoplasma utilizando una pipeta de inyección de punta roma de 25 µm.
- Confirmar la enucleación exitosa observando el citoplasma aspirado bajo luz ultravioleta (Figura 2).
ADVERTENCIA: La exposición de los ovocitos a colorantes de ADN y luz ultravioleta daña el material genético e induce estrés oxidativo. Minimizar el tiempo de exposición.
7. Fusión celular
- Monte la cámara de fusión bajo un microscopio estereoscópico y llénela con 2 mL de medio de fusión a pH 7.
- En una placa de Petri de 60 mm, prepare cinco gotas de 100 µL y una gota de 30 µL de H-TALP, y añada 50 µL de PHA.
- Añada 5 µL de fibroblastos a la gota de 30 µL de H-TALP, seleccione las células uniformes y refringentes, y transfiéralas a una gota de 100 µL de H-TALP.
- Transfiera los ovocitos enucleados a una gota de 100 µL de H-TALP.
- Exponga el ovocito a la gota de PHA durante 4 s, colóquelo sobre una célula y confirme que ambos se han adherido. Luego, transfiera el complejo a una gota de TALP-H libre de cualquier contenido.
- Después de que el ovocito y la célula se hayan adherido, transfiéralos a una placa que contenga 2 mL de medio de fusión para permitir que se asienten. A continuación, coloque el complejo en la cámara de fusión entre los electrodos, posicionando la célula en la posición de las seis o las doce.
ADVERTENCIA: Los tampones de activación utilizados durante la electrofusión contienen ionomicina, que altera la homeostasis del calcio celular. Los campos eléctricos de alto voltaje representan un riesgo de descarga eléctrica o arco si el equipo está húmedo o se maneja incorrectamente. - Realice la fusión utilizando una cámara de microfusión con una separación de electrodos de 0,2 mm. Con un electro porador, aplique un tren de impulsos único compuesto por dos pulsos de corriente continua unidireccionales a 0,72 kV/cm, cada uno con una duración de 30 µs y un intervalo de 0,1 s entre pulsos.
- Después de aplicar el impulso, transfiera cada par ovocito-célula individualmente a microgotas de 5 µL de SOF suplementado con 2,5 % de suero bovino fetal (FBS) y cultívelos a 38,5 °C en una atmósfera de 5 % de CO₂.
- Evalue la fusión individualmente a los 30 min bajo un microscopio estereoscópico.
- Somete las estructuras no fusionadas a una segunda ronda de fusión.
- Considere los complejos fusionados como embriones reconstituidos sin zona pelúcida e incúbelos durante 2 h hasta la activación (tiempo de reprogramación).
8. Activación de ovocitos y cultivo de embriones
- Incubar las estructuras reconstruidas en gotas de 100 µL de medio H-TALP que contienen 5 µM de ionomicina durante 4 min.
- Lavar las estructuras reconstruidas en cuatro gotas de 100 µL de medio H-TALP.
- Incubar las estructuras reconstruidas en gotas de 100 µL de medio SOF que contienen 2 mM de 6-DMAP durante 3 h.
- Lavar las estructuras reconstruidas en cuatro gotas de 100 µL de medio SOF.
- Producir placas de micropocillos utilizando una capilar de vidrio calentada presionada ligeramente contra el fondo de una placa de Petri de 35 × 10 mm. Producir entre 20 y 25 micropocillos, cada uno con un diámetro de 500 µm y una profundidad de 250 µm20.
- Colocar los embriones reconstruidos individualmente en los pocillos modificados de la microplaca, cubrirlos con 100 µL de medio SOF y finalmente con 3 mL de aceite mineral. Colocar las microplacas en un incubador de gases triples con 5% de CO₂, 5% de O₂ y 90% de N₂ durante 7 días.
Resultados
Los resultados se analizaron utilizando el software R (v.4.5.2). Las tasas de segmentación y blastocisto se compararon entre pares (ciervo/ganado vs ganado/ganado) utilizando la prueba exacta de Fisher. Se realizaron diez réplicas: cuatro del par ciervo/ganado y seis del par ganado/ganado. Además, para todos los análisis, el nivel de significancia se estableció en 5 %.
Durante el ensayo, se utilizaron 472 ovocitos bovinos obtenidos de un matadero local como receptores de citoplasma. Sin embargo, tras la maduración in vitro y la electrofusión subsiguiente, 73 estructuras no lograron fusionarse y fueron excluidas de los pasos posteriores, lo que resultó en 399 estructuras de carioplasma/citoplasma fusionadas con éxito. De este total, se utilizaron los siguientes pares (carioplasma/citoplasma): cuatro réplicas de ciervo/bovino (n = 175) y seis réplicas de bovino/bovino (n = 224) (Tabla 2).
Para evaluar el impacto de la iSCNT, embriones reconstruidos sin zona pelúcida se cultivaron en micropocillos hasta el día 7. Microfotografías representativas de mórula y blastocisto sin zona pelúcida se muestran en la Figura 3.
Tabla 2 presenta las tasas de segmentación y de blastocisto obtenidas en este experimento. La tasa de segmentación no mostró diferencias significativas (P = 0,74) entre los grupos (pares ciervo/ganado y ganado/ganado). Por otro lado, respecto a la tasa de formación de blastocistos, se observó una diferencia estadística (P=0,02), con un porcentaje mayor en el grupo de clonación intraespecífica. Sin embargo, es importante destacar la limitación en el poder estadístico para este tipo de experimento, en el que el número de clones interespecíficos suele ser pequeño.
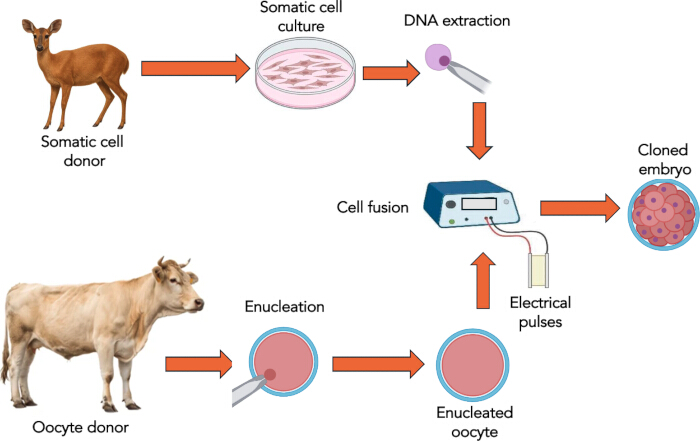
Figura 1: Etapas esquemáticas de la transferencia nuclear de células somáticas interespecífica. Se utilizan vacas como donantes de citoplasma, mientras que ciervos se emplean como donantes de carioplasma. Después de obtener el embrión clonado, este puede transferirse a hembras receptoras o criopreservarse para una transferencia futura. Haga clic aquí para ver una versión más grande de esta figura.
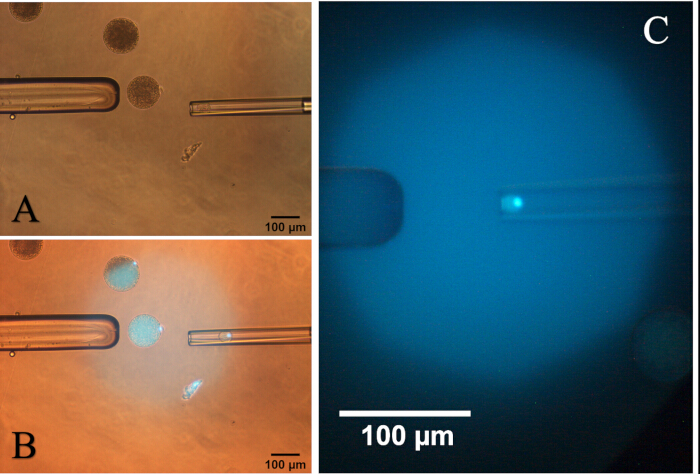
Figura 2: Fotomicrografía de un ovocito activado con una protrusión citoplasmática. (A) Rotación del ovocito para colocar la protrusión en la posición de las tres en punto. (B) Aspiración de la protrusión con un 5-10% del citoplasma bajo exposición a luz ultravioleta. (C) Citoplasma y su protrusión en la pipeta de aspiración bajo luz ultravioleta. Haga clic aquí para ver una versión más grande de esta figura.
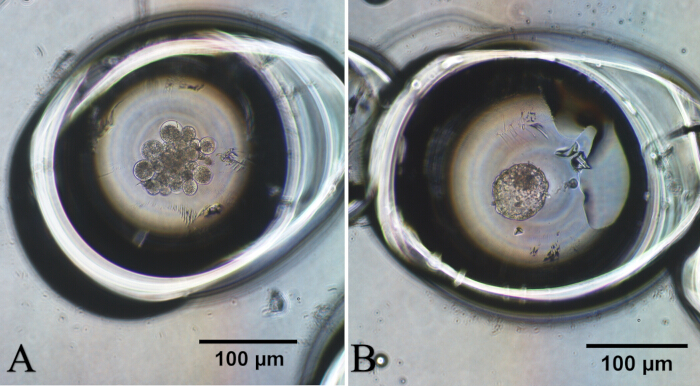
Figura 3: Fotomicrografía de embriones de ciervo producidos mediante transferencia nuclear de células somáticas interespecífica. (A) Embrión clonado en etapa de mórula. (B) Embrión clonado en etapa de blastocisto. Haga clic aquí para ver una versión más grande de esta figura.
| Grado | Número de capas de cumulus | Expansión del cumulus |
| I | > 3 | Cobertura completa del cumulus con varias capas celulares compactas y ligeramente sueltas |
| II | 2 - 3 | Ligera expansión en las capas celulares externas |
| III | 1 | Cobertura parcial del cumulus y capas celulares sueltas |
| IV | 0 | Sin cumulus |
Tabla 1: Clasificación de ovocitos bovinos para ser posteriormente enucleados y utilizados como citoplasmas durante la transferencia interspecífica de núcleos somáticos (adaptado de Aguila et al.)19.
| Grupos (carioplasto/citoplasma) | N.º de réplicas | N.º de embriones reconstruidos | N.º de segmentación (%) | N.º de blastocistos (%) |
| Ciervo/ganado | 4 | 175 | 122 (69,7)a | 8 (4,6)a |
| Ganado/ganado | 6 | 224 | 160 (71,4)a | 24 (10,7)b |
| Letras diferentes en la misma columna indican una diferencia estadística. | ||||
| Tasa de segmentación: P = 0,74 | ||||
| Tasa de blastocisto: P = 0,02 | ||||
Tabla 2: Desarrollo in vitro de embriones clonados de venado rojo utilizando citoplasma bovino. Se realizaron diez réplicas: cuatro pares venado/ganado y seis pares ganado/ganado. Las tasas de división y de blastocisto se calcularon utilizando el número de embriones reconstruidos como denominador.
Discusión
Ya está bien documentado que el genoma de especies en peligro de extinción puede ser reprogramado utilizando ovocitos de animales de granja, especialmente de ganado vacuno y cerdos, que son la fuente más abundante de citoplasmas21. Uno de los avances más importantes logrados en la TCNI fue la clonación de la cabra montés pirenaica (Capra pyrenaica pyrenaica), una subespecie que había desaparecido tras la muerte del último individuo conocido. Los embriones reconstruidos se obtuvieron fusionando células epiteliales de cabra montés con ovocitos de cabra (Capra hircus). Los autores lograron el nacimiento de una hembra sin anomalías morfológicas externas. Sin embargo, la cría presentó una insuficiencia respiratoria grave y murió pocos minutos después del nacimiento22.
Uno de los candidatos más fuertes para la "resurrección" es el mamut lanudo (Mammuthus primigenius). Para que la clonación sea posible, es fundamental disponer de tejido viable con núcleos identificables, lo cual es difícil en una especie que desapareció hace aproximadamente 10 000 años. Aun así, los cuerpos de mamut hallados en las capas de tierra congelada cumplen los requisitos mínimos para la iSCNT23. Sin embargo, quizás las especies en peligro de extinción sean candidatas más adecuadas para beneficiarse del uso de esta técnica.
La tasa de segmentación observada en nuestro estudio demostró que la activación y la primera división embrionaria no se vieron afectadas por la combinación interespecífica de núcleo y citoplasma. Durante la fase de reconstrucción, la manipulación y fusión de las estructuras (carioplasto/citoplasto) presentaron la misma facilidad técnica en ambos grupos, lo que sugiere una compatibilidad estructural entre las especies. En cuanto a la tasa de blastocisto, los resultados indican que, aunque la reconstrucción y la activación temprana del embrión iSCNT no son un factor limitante, existe una incompatibilidad nucleocitoplasmática que se manifiesta en etapas posteriores del desarrollo, probablemente relacionada con una reprogramación epigenética incompleta o con la transición materna- zigótica que afecta la capacidad del embrión híbrido para alcanzar la etapa de blastocisto24. La eficiencia del iSCNT tiende a ser mayor cuando los carioplastos y citoplastos se obtienen de especies filogenéticamente relacionadas, ya que la producción natural de descendencia híbrida viable indica un cierto grado de compatibilidad nucleocitoplasmática entre ambas especies23. Por tanto, ya se ha demostrado que el SCNT entre subespecies puede producir descendencia sana. Los autores utilizaron citoplasma de perra y fibroblastos de lobo, y transfirieron los embriones a 12 hembras, obteniendo el nacimiento de un descendiente25.
El uso de la iSCNT enfrenta una importante «limitación de eficiencia» en su eficacia biológica y desarrollo, que disminuye drásticamente a medida que aumenta la distancia evolutiva entre el núcleo donante y el ovocito receptor. Si bien tiene éxito entre especies estrechamente relacionadas (por ejemplo, ganado doméstico y gaur)26, habitualmente fracasa en producir descendencia viable o líneas celulares embrionarias estables al intentar cruzar límites taxonómicos más distantes.
La clonación representa una herramienta importante para los programas de cría animal y conservación, ya que permite la multiplicación de individuos genéticamente superiores, apoya la generación de animales transgénicos y contribuye a la preservación a largo plazo de recursos genéticos valiosos mediante bancos de genes. Sin embargo, la adopción de la clonación en programas de cría ganadera aún está limitada por el bajo número de animales vivos producidos en relación con el número de embriones transferidos18. Los enfoques actuales para la producción de embriones clonados generalmente se dividen en dos categorías: clonación convencional y clonación sin zona pelúcida (ZP-free). En el enfoque convencional, se requiere un micromanipulador para eliminar el núcleo del ovocito e introducir la célula somática donante en el citoplasma receptor26. A diferencia de la clonación convencional, el método sin zona pelúcida se lleva a cabo sin micromanipulación27. Los resultados obtenidos en nuestro estudio fueron muy similares a los verificados con el uso de iSCNT, tanto en la tasa de división celular como en la producción de blastocistos20,21.
Finalmente, teniendo en cuenta los diferentes pasos de este procedimiento, es importante destacar los puntos críticos y la resolución práctica de problemas. En cuanto a la eliminación de la ZP, la clonación sin ZP ofrece varias ventajas, incluyendo facilidad de operación, rentabilidad y una tasa de nacidos vivos relativamente mejorada por embrión transferido28. Confirmar la eliminación completa del núcleo (enucleación) sin inducir daños citoplasmáticos fatales determina si la estructura reconstruida puede sostener con éxito un embrión clonado. Aunque se sabe que la exposición a la luz ultravioleta tiene efectos perjudiciales29, se ha utilizado rutinariamente en la mayoría de los laboratorios de clonación. Finalmente, el cultivo de embriones sin ZP carece de la capa externa protectora de glucoproteínas, lo que provoca problemas importantes como la alta fragilidad física durante el manejo y la disociación de blastómeros30.
En conclusión, los resultados obtenidos en nuestro estudio deben interpretarse como evidencia preliminar de la viabilidad técnica del protocolo de iSCNT en la combinación ciervo/ganado, más que como prueba definitiva de su eficacia productiva. Por lo tanto, se necesitan estudios adicionales con un mayor número de réplicas para confirmar estos hallazgos.
Divulgaciones
Los autores no tienen conflictos de intereses que declarar.
Agradecimientos
Este trabajo fue apoyado por la Fundación Cearense de Apoyo al Desarrollo Científico y Tecnológico (FUNCAP, Fortaleza, Brasil, número de beca 11212233/2022) y los Institutos Nacionales de Ciencia y Tecnología (INCT/CNPq, número de beca 406866/2022-8).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Aguja de aspiración (18G) | LABIMPORT | 353601 | Aguja desechable, corte corto |
| 6-Dimetilaminopurina (6-DMAP) | Sigma-Aldrich | D2629 | |
| Antibiótico–antimicótico | Gibco, Thermo Fisher Scientific | 15240062 | |
| Albúmina sérica bovina | Sigma-Aldrich | A9647 | |
| Cloruro de calcio dihidrato (CaCl2·2H2O) | Sigma-Aldrich | C7902 | |
| Frasco para cultivo celular T-25 | Corning | 430639 | |
| Microinyector CellTram | Eppendorf | 5196 000.021 | |
| Centrífuga | Eppendorf | 5702 | Utilizada para la centrifugación de células a 200 × g durante 10 minutos para sedimentar y lavar muestras antes de los procedimientos de transferencia nuclear. |
| Tubos para centrífuga (50 mL) | Corning | CLS430291 | |
| Crioviales (1,8 mL) | Nunc / Thermo Fisher | 368632 | |
| Cisteína | Sigma-Aldrich | M9768 | |
| Demecolcina | Sigma-Aldrich | D1925 | |
| Agua destilada. | _ | _ | |
| DMSO (congelación de células) | Sigma-Aldrich | D2650 | Crioprotector al 10 % para la criopreservación de células donantes |
| Medio de Eagle modificado de Dulbecco (DMEM) | Gibco / Thermo Fisher | 11995065 | |
| Pipeta de enucleación (20–25 µm de diámetro interno) | Narishige | GD-1 | |
| Factor de crecimiento epidérmico (EGF) | Sigma-Aldrich | E4127 | |
| Aminoácidos esenciales BME | Sigma-Aldrich | M5550 | |
| Estradiol | Sigma-Aldrich | E8875 | |
| Incubadora EVE (5 % O2, 5 % CO2, 90 % N2) | WTA medical | REF. 23578 | |
| Suero bovino fetal (FBS) | Bio Nutrientes, Induslab | FEN-500 | |
| FSH (Folltropin-V) | Vetoquinol | Q-7090-124 | |
| Capilar de vidrio con filamento | Narishige | GD-1 | Este capilar de vidrio se utiliza para fabricar micropozos en la placa de Petri |
| Placa calefactora | WTA medical | 17656 | |
| Hepes | Sigma-Aldrich | H6147 | |
| Hoechst 33342 (tinción de ADN) | Sigma-Aldrich | B2261 | |
| Pipeta de sujeción (120 μm de diámetro externo) | Narishige | GD-1 | |
| Hialuronidasa | Sigma-Aldrich | H4272 | |
| Microscopio invertido ECLIPSE | Nikon | TE2000-U | |
| Ionomycin (ionóforo de calcio A23187) | Sigma-Aldrich | I0634 | |
| ITS | Sigma-Aldrich | I2771 | |
| KCl | Sigma-Aldrich | P5405 | |
| KH2PO4 | Sigma-Aldrich | P5655 | |
| Cabina de flujo laminar Isocide | Esco | 2120765 | Cabina de flujo laminar que proporciona un entorno de trabajo estéril para procedimientos de cultivo de embriones y células. |
| L-Glutamina | Sigma-Aldrich | G8540 | |
| Dewar de almacenamiento en nitrógeno líquido | Nitroagro | Varía | |
| Sulfato de magnesio (MgSO4) | Sigma-Aldrich | M2643 | |
| Medio de fusión de manitol (0,3 M) | Sigma-Aldrich | M9546 | |
| MgCl2 | Sigma-Aldrich | M8266 | |
| Microfórge MF-900 | Narishige | MF-900 | |
| Sistema de micromanipulación | Narishige | MM-89 / TransferMan 4r | |
| Microtirador de pipetas | Narishige | Narishige PC-100 | |
| Micropipetas (10 µL, 20 µL, 100 µL, 200 µL, 1000 µL) | Eppendorf | Research Plus Series | |
| Cámara de microfusión | Eppendorf | 12816532 | Es un accesorio especializado con una separación de 0,2 mm diseñado para aplicaciones de electroforesis |
| Aceite mineral (testado para embriones) | Sigma-Aldrich | M8410 | |
| Multiporador | Eppendorf | 4308 000.015 | |
| Mio-inositol | Sigma-Aldrich | I7508 | |
| NaCl | Sigma-Aldrich | S5886 | |
| NaH2PO4 | Sigma-Aldrich | S5011 | |
| NaHCO3 | Sigma-Aldrich | S4219 | |
| Aminoácidos no esenciales MEM | Sigma-Aldrich | M7145 | |
| Pentabiótico | Zoetis | 10005048 | Frasco de 2.400.000 UI. |
| Placa de Petri de 35 mm (testada para embriones) | Corning | 430165 | |
| Placa de Petri de 60 mm (testada para embriones) | Corning | 430196 | |
| Fenol rojo | Sigma-Aldrich | P0290 | |
| Puntas de pipeta de 1000 µL | Eppendorf | 9401030 | |
| Puntas de pipeta de 200 µL | Eppendorf | 94052300 | |
| Puntas de pipeta sin filtro (0,5–10 µL) | Axygen | T-300 | |
| Poli(vinil alcohol) (PVA) | Sigma-Aldrich | P8136 | |
| Pronasa (proteasa de S. griseus) | Sigma-Aldrich | P8811 | |
| Lactato de sodio | Sigma-Aldrich | L7900 | |
| Piruvato de sodio | Sigma- Aldrich | P4562 | |
| Stereo microscopio | Nikon | SMZ800 | |
| Agua estéril testada para embriones | Sigma-Aldrich | W3500 | |
| Filtro estéril (0,22 μm) | Corning | 431154 | |
| TCM-199 | Sigma-Aldrich | M2154 | |
| Incubadora de tres gases (5 % O2, 5 % CO2, 90 % N2) | WTA medical | REF. 23578 | |
| Tripsina-EDTA (0,25 %) | Gibco / Thermo Fisher | 25200056 | |
| Agua ultrapuraá | Sigma-Aldrich | W3500 | |
| Lámpara UV / Módulo de fluorescencia | Leica / Olympus | Varía | Exposición breve a UV para verificar la enucleación; minimizar la fototoxicidad |
Referencias
- Flagstad O, Roed KH. Refugial origins of reindeer (Rangifer tarandus.) inferred from mitochondrial DNA sequences. Evolution. 2003;57(3):658-70.
- Schilling AM, Rössner GE. The (sleeping) beauty in the beast—a review on the water deer, Hydropotes inermis. Hystrix It J Mamm. 2017;28(2):121-33.
- Newman BA, D’Angelo GJ. A review of cervidae visual ecology. Animals (Basel). 2024;14(3):420.
- Rola LD. Integrating cryobiology and conservation: the role of biobanks for neotropical deer in Latin America. Biopreserv Biobank. 2025;23(6):575-88.
- Duarte JMB, González S, Maldonado JE. The surprising evolutionary history of South American deer. Mol Phylogenet Evol. 2008;49:17-22.
- Bernegossi AM, et al. Resurrection of the genus Subulo. for the gray brocket deer, with designation of a neotype. J Mammal. 2023;104(3):619-33.
- Morales-Donoso JA, et al. Revalidation of Passalites Gloger, 1841 for the Amazon brown brocket deer P. nemorivagus. (Cuvier, 1817) (Mammalia, Artiodactyla, Cervidae). ZooKeys. 2023;1167:241-64.
- El Bizri HR. Exposing illegal hunting and wildlife depletion in the world's largest tropical country through social media data. Conserv Biol. 2024;38:e14334.
- Pasquariello R, et al. Use of assisted reproductive technologies (ARTs) to shorten the generational interval in ruminants: current status and perspectives. Theriogenology. 2024;225(1):16-32.
- Herrick JR. Assisted reproductive technologies for endangered species conservation: developing sophisticated protocols with limited access to animals with unique reproductive mechanisms. Biol Reprod. 2019;100:1158-70.
- Iqbal A, et al. Conservation of endangered species through somatic cell nuclear transfer (SCNT). Conserv Genet Resour. 2021;13:349-57.
- Hwang I. Successful cloning of coyotes through interspecies somatic cell nuclear transfer (iSCNT) using domestic dog oocytes. Biol Reprod. 2012;87(1):56.
- Loi P, et al. Genetic rescue of an endangered mammal by cross-species nuclear transfer using post-mortem somatic cells. Nat Biotechnol. 2001;19:962-4.
- Gómez MC, et al. Birth of African wildcat cloned kittens born from domestic cats. Cloning Stem Cells. 2004;6:247-58.
- Wani NA, Vettical BS, Hong SB. First cloned Bactrian camel (Camelus bactrianus.) calf produced by interspecies somatic cell nuclear transfer: a step towards preserving the critically endangered wild Bactrian camels. PLoS One. 2017;12:e0177800.
- Ross PJ, Cibelli JB. Bovine somatic cell nuclear transfer. Methods Mol Biol. 2010;636:155-77.
- Choi YH, Velez IC, Macias-Garcia B, Hinrichs K. Timing factors affecting blastocyst development in equine somatic cell nuclear transfer. Cell Reprogram. 2015;17:124-30.
- Herrid H, Van Eenennaam H. Application of zona-free cloning technologies to livestock breeding programmes. Anim Reprod Sci. 2026;287:108107.
- Aguila L, et al. Oocyte selection for in vitro embryo production in bovine species: noninvasive approaches for new challenges of oocyte competence. Animals. 2020;10:2196.
- Vajta G, et al. New method for culture of zona-included or zona-free embryos: the well of the well (WOW) system. Mol Reprod Dev. 2000;55(3):256-64.
- Lagutina I, Fulka H, Lazzari G, Galli C. Interspecies somatic cell nuclear transfer: advancements and problems. Cell Reprogram. 2013;15:374-84.
- Folch J, et al. First birth of an animal from an extinct subspecies (Capra pyrenaica pyrenaica.) by cloning. Theriogenology. 2009;71:1026-34.
- Loi P, Saragusty J, Ptak G. Cloning the mammoth: a complicated task or just a dream. Adv Exp Med Biol. 2014;753:489-502.
- Mastromonaco GF, et al. The influence of nuclear content on developmental competence of gaur cattle hybrid in vitro fertilized and somatic cell nuclear transfer embryos. Biol Reprod. 2007;76:514-23.
- Kim MK, et al. Endangered wolves cloned from adult somatic cells. Cloning Stem Cells. 2007;9:130-7.
- Lanza RP, et al. Cloning of an endangered species (Bos gaurus.) using interspecies nuclear transfer. Cloning. 2000;2(2):79-90.
- Hill J, et al. The effect of donor cell serum starvation and oocyte activation compounds on the development of somatic cell cloned embryos. Cloning. 1999;1:201-8.
- Verma G, et al. Handmade cloning: recent advances, potential and pitfalls. J Anim Sci Biotechnol. 2015;6:43.
- Takenaka M, Horiuchi T, Yanagimachi R. Effect of light on development of mammalian zygote. Proc Natl Acad Sci U S A. 2007;104:14289-93.
- Madani S, Machaty Z, Vajta G. An alternative way to improve mammalian embryo development in vitro: culture of zona pellucida-free embryos. Cell Reprogram. 2022;24(3):111-7.
Reimpresiones y permisos
Este artículo ha sido publicado
Video próximamente