Mediante análisis transcriptómicos masivos, de célula individual y espaciales, junto con modelado de supervivencia basado en aprendizaje automático y validación experimental, este estudio propone a PPARG como un gen pronóstico candidato relacionado con la senescencia en osteosarcoma y asocia su expresión reducida con una supervivencia desfavorable en TARGET-OS, así como con características vasculares y del microentorno.
Artículo de investigación
Análisis integrativos de transcriptómica masiva, de célula única y espacial nominan a PPARG como un gen pronóstico candidato relacionado con la senescencia en el osteosarcoma
* These authors contributed equally
En este artículo
Resumen
Resumen
El osteosarcoma sigue siendo un desafío en enfermedades metastásicas, recurrentes o resistentes a la terapia. Este estudio tuvo como objetivo identificar genes pronósticos relacionados con la senescencia y caracterizar sus contextos espaciales. Se realizó un análisis diferencial de expresión pareado en GSE99671 utilizando DESeq2, seguido de la intersección con el conjunto de genes de senescencia CellAge. Los datos transcriptómicos del cohorte TARGET-OS se obtuvieron de UCSC Xena. Los genes candidatos se evaluaron mediante regresión de Cox univariante, análisis de Kaplan-Meier, análisis de características operativas del receptor en función del tiempo, regresión de Cox con LASSO, análisis repetido de LASSO y modelado de bosque de supervivencia aleatorio, incorporando covariables clínicas en modelos de Cox ajustados. Se utilizaron enriquecimiento funcional, análisis del microentorno inmunitario, transcriptómica de célula individual, transcriptómica espacial SP_BS3, validación de expresión en GSE36001 y validación mediante qRT-PCR e inmunotransferencia de proteínas en células de osteosarcoma 143B y células de osteoblastos para su caracterización. En GSE99671, 2.248 genes se expresaron de manera diferencial con una P ajustada < 0,05, y su intersección con los 866 genes CellAge produjo 105 genes expresados diferencialmente relacionados con la senescencia. En TARGET-OS, una expresión más baja de PPARG se asoció con un mayor riesgo de mortalidad (HR univariante = 0,603, IC del 95 % = 0,454–0,802, P = 0,000494; HR ajustado = 0,224, IC del 95 % = 0,085–0,589, P = 0,00241). La inclusión de PPARG en el modelo clínico aumentó el índice C de 0,707 a 0,829. PPARG estuvo regulado a la baja tanto en GSE99671 como en GSE36001, y la qRT-PCR e inmunotransferencia confirmaron una menor expresión de ARNm y proteína de PPARG en las células de osteosarcoma 143B en comparación con las células de osteoblastos. El análisis de célula individual localizó PPARG en células endoteliales, pericitos, macrófagos/monocitos y células estromales asociadas al tumor. El análisis transcriptómico espacial mostró correlaciones positivas débiles pero significativas entre la expresión de PPARG y las puntuaciones relacionadas con la senescencia CellAge, las células endoteliales y los pericitos. Estos hallazgos proponen a PPARG como un biomarcador pronóstico candidato derivado de CellAge, asociado con una supervivencia desfavorable y características del microentorno vascular en el osteosarcoma, y respaldan la investigación sobre su posible relevancia en la estratificación del riesgo y en el microentorno tumoral relacionado con la senescencia. GSE36001 proporcionó únicamente validación externa de expresión; no se realizó validación independiente de supervivencia.
Introducción
El osteosarcoma es el tumor óseo primario maligno más común en niños, adolescentes y adultos jóvenes1. Aunque la quimioterapia con múltiples agentes combinada con cirugía ha mejorado los resultados en enfermedades localizadas2,3, los pacientes con osteosarcoma metastásico, recurrente o resistente al tratamiento continúan teniendo una baja supervivencia a largo plazo3,4. Evidencia reciente indica que la remodelación epigenética inducida por estrés oxidativo puede facilitar la adaptación metastásica y la progresión tumoral, destacando la compleja plasticidad molecular subyacente a los fenotipos agresivos del cáncer5. Los biomarcadores robustos que sean tanto clínicamente interpretables como biológicamente informativos siguen siendo limitados. Por lo tanto, identificar características moleculares que capturen la heterogeneidad del osteosarcoma y el riesgo pronóstico a través de múltiples niveles de datos sigue siendo importante.
La senescencia celular es un programa estable de detención del ciclo celular inducido por la disfunción de los telómeros, daño en el ADN, estrés oxidativo, activación de oncogenes y presión terapéutica6. La senescencia puede restringir la proliferación anómala; sin embargo, las células senescentes también pueden remodelar el microambiente tumoral mediante programas inflamatorios, de quimioquinas, de factores de crecimiento y de remodelación de la matriz extracelular7,8. En el osteosarcoma, los genes relacionados con la senescencia pueden reflejar tanto estados de estrés intrínsecos a las células tumorales como compartimentos microambientales no malignos, aunque su relevancia pronóstica y organización espacial no han sido evaluadas sistemáticamente.
PPARG codifica el receptor gamma activado por proliferadores de peroxisomas, un receptor nuclear activado por ligandos que participa en el metabolismo de lípidos, la regulación inflamatoria, la diferenciación celular y la modulación inmune9. El papel de PPARG en el cáncer depende del contexto10. En algunos entornos, PPARG se asocia con estados de diferenciación y antiinflamatorios, mientras que en otros, puede favorecer programas tumorales o estromales adaptativos. Sin embargo, su patrón de expresión, valor pronóstico y localización celular y espacial en el osteosarcoma permanecen incompletamente caracterizados.
En el presente estudio, se identificaron los genes expresados diferencialmente en GSE99671 y se intersectaron con el conjunto de genes de senescencia CellAge, obteniéndose 105 genes expresados diferencialmente relacionados con la senescencia. Luego, se utilizaron datos de supervivencia de TARGET-OS, múltiples enfoques de aprendizaje automático y modelado de supervivencia, y ajuste clínico para nominar a PPARG como el gen principal. PPARG se caracterizó además mediante análisis funcionales por lotes y del microentorno inmunitario, transcriptómica de célula individual, transcriptómica espacial, validación externa de expresión a partir de GSE36001, y validación mediante qRT-PCR e inmunotransferencia en la línea celular de osteosarcoma 143B y osteoblastos humanos.
Protocolo
Este estudio utilizó conjuntos de datos públicos y líneas celulares para análisis y validación, y no involucró participantes humanos ni muestras de tejido clínico; por lo tanto, no se requirió aprobación ética.
Análisis de expresión diferencial en la intersección de GSE99671 y CellAge
Los datos de conteo brutos y la información de agrupación de muestras para GSE99671 se obtuvieron de GEO11,12. Se analizaron dieciocho pares de muestras de osteosarcoma y tejido normal emparejado. Se realizó un análisis de expresión diferencial pareado utilizando DESeq2 con la fórmula de diseño ~ pair_id + condition, donde pair_id consideró los efectos individuales emparejados y condition comparó tejido tumoral con tejido normal13. Se conservaron los genes con conteos de lecturas de al menos 10 en al menos tres muestras. La expresión diferencial se definió como un valor de P ajustado < 0,05, y se aplicó un umbral más estricto de valor de P ajustado < 0,05 y |log2FC| ≥ 1 para la visualización. Los genes con expresión diferencial se intersectaron con los 866 genes de senescencia de CellAge tras convertir los símbolos génicos a mayúsculas14. El análisis de expresión diferencial se realizó en R (versión 4.3.2) utilizando DESeq2 (versión 1.40.2), y los valores de P ajustados se calcularon mediante el método de Benjamini-Hochberg.
Cohorte TARGET-OS y modelado pronóstico
Los datos transcriptómicos y clínicos de la cohorte TARGET-OS se obtuvieron de UCSC Xena15. Se extrajeron los valores de expresión de los 105 genes relacionados con la senescencia y diferencialmente expresados. Se incluyó a 85 pacientes con datos completos de tiempo de supervivencia, estado de supervivencia y expresión de los genes candidatos, con 27 eventos de muerte. Los valores estandarizados de expresión génica se analizaron mediante regresión de Cox univariante16, análisis de supervivencia de Kaplan-Meier y análisis de características operativas del receptor dependientes del tiempo (ROC)17. Se utilizaron regresión de Cox con penalización LASSO18, análisis repetido de estabilidad LASSO y modelado de bosques aleatorios de supervivencia para evaluar la estabilidad de selección y la importancia de las variables19. La puntuación central integrada y la clasificación integrada clínica se calcularon utilizando los criterios binarios explícitos detallados a continuación. Los análisis de supervivencia se realizaron en R usando los paquetes survival (versión 3.5-7), timeROC (versión 0.4), glmnet (versión 4.1-8) y randomForestSRC (versión 3.2.2). Para el cribado univariante de Cox de los 105 genes candidatos, se aplicó la corrección de tasa de descubrimiento falso (FDR) de Benjamini-Hochberg, y se consideraron estadísticamente significativos los genes con FDR < 0.05.
Preprocesamiento del modelo, agrupación de PPARG y análisis ROC dependiente del tiempo
Entre 85 pacientes con 27 defunciones, se excluyeron los genes con varianza cero, los valores faltantes de expresión de genes candidatos se imputaron mediante la mediana y cada gen candidato se estandarizó mediante puntuaciones z. Para el análisis de Kaplan-Meier, la expresión se dividió en dos categorías en la mediana de la cohorte: los valores estrictamente superiores a la mediana se asignaron al grupo de alta expresión y los valores iguales o inferiores a la mediana al grupo de baja expresión (PPARG: n = 42 alta y n = 43 baja). Las pruebas log-rank fueron bilaterales. Los análisis ROC dependientes del tiempo utilizaron timeROC con causa del evento = 1, ponderación marginal inversa de la probabilidad de censura, tiempos de evaluación de 365, 1.095 y 1.825 días, e iid = FALSE. Para asegurar que valores más altos del marcador indiquen consistentemente un mayor riesgo, se utilizaron valores de expresión estandarizados para los genes con coeficientes de Cox positivos y se multiplicaron por -1 para los genes protectores con coeficientes negativos.
LASSO y LASSO repetido
Se ajustó el modelo Cox LASSO con glmnet utilizando family = "cox", alpha = 1, estandarización previa de los valores z (por lo tanto, standardize = FALSE), validación cruzada de cinco pliegues, type.measure = "deviance" y la semilla aleatoria 123. La solución principal de coeficientes utilizó lambda.min. El análisis de estabilidad repitió la misma validación cruzada de cinco pliegues 300 veces; en la repetición b se utilizó la semilla 1000 + b (b = 1,...,300). Para cada gen, la frecuencia de selección fue la proporción de repeticiones con un coeficiente distinto de cero en lambda.min; también se registró la selección distinta de cero en lambda.1se.
Bosque de supervivencia aleatorio
Se ajustó un bosque de supervivencia a todos los 105 genes candidatos estandarizados mediante randomForestSRC (versión 3.2.2), utilizando la semilla 123, ntree = 1.000, importance = TRUE y na.action = "na.impute". Se mantuvieron los valores predeterminados del paquete para datos de supervivencia: partición por rango logarítmico, mtry = 11 (el techo de la raíz cuadrada de 105 predictores), tamaño mínimo del nodo terminal = 15, nsplit = 10 puntos de división aleatorios, muestreo sin reemplazo con una fracción de muestreo de 0,632 e importancia de variables con división anti-correlacionada.
Puntuación integrada del centro
Cada uno de los 105 genes candidatos relacionados con CellAge y expresados de manera diferencial recibió un punto por cada uno de seis criterios binarios: (1) pertenencia a la intersección de expresión diferencial/CellAge (todos los candidatos recibieron este punto porque se requirió un valor de P ajustado < 0,05 antes de la puntuación); (2) valor de P univariado de Cox nominal < 0,05; (3) valor de P log-rank de Kaplan-Meier < 0,05; (4) área media bajo la curva (AUC) dependiente del tiempo a 3 y 5 años ≥ 0,65; (5) frecuencia de selección lambda.min mediante LASSO repetido igual o superior al percentil 70 entre los candidatos y > 0; y (6) importancia en el bosque aleatorio de supervivencia igual o superior al percentil 70 entre los candidatos y > 0. Todos los criterios tuvieron un peso unitario igual, dando como resultado una puntuación de centro entre 0 y 6; los genes con una puntuación ≥ 4 pasaron al ajuste clínico (18 genes). También se informaron los valores de FDR de Cox univariado, y se utilizó FDR < 0,05 para indicar significancia tras corrección por múltiples pruebas, pero el indicador de puntuación preespecificado utilizó el valor nominal de P < 0,05.
Clasificación integrada clínicamente
Tras combinar los registros de expresión y datos clínicos, los análisis ajustados incluyeron a 40 pacientes con registros completos de covariables y 13 fallecimientos. La puntuación final fue la puntuación inicial de centralidad más un punto por cada uno de los siete criterios siguientes: valor de P ajustado en el modelo de Cox < 0,05, valor de P ajustado en el modelo de Cox < 0,10, valor de P en el análisis de sensibilidad de Cox < 0,05 tras excluir la cirugía definitiva, valor de P en el análisis de sensibilidad de Cox < 0,10, área bajo la curva (AUC) media a 3 y 5 años ≥ 0,65, valor de P < 0,10 en la prueba de razón de verosimilitud para el modelo clínico-más-gen frente al modelo solo clínico, y delta AIC < 0. Dado que los umbrales de 0,05 y 0,10 estaban anidados, un valor de P < 0,05 contribuía con dos puntos, otorgando así mayor peso a la evidencia claramente significativa en los análisis ajustados y de sensibilidad de Cox. El rango total fue de 0 a 13; los empates se resolvieron mediante el valor de P ajustado de Cox más bajo, seguido por la AUC media a 3/5 años más alta. PPARG obtuvo los seis puntos iniciales y los siete puntos de integración clínica (13/13), ocupando el primer lugar. La mejora del índice C se informó de forma descriptiva y no se le asignó ninguna puntuación.
Ajuste clínico
Los genes centrales candidatos se integraron con variables clínicas de TARGET-OS, incluyendo sexo, edad, estado de la enfermedad al diagnóstico, sitio del tumor primario, región tumoral específica y cirugía definitiva. Cuarenta pacientes con registros completos de expresión y datos clínicos, incluyendo 13 fallecimientos, fueron incluidos en los análisis ajustados por factores clínicos. Se compararon modelos de Cox que contenían solo variables clínicas con modelos que incluían variables clínicas más la expresión génica. Se utilizaron el índice C, el criterio de información de Akaike (AIC) y los valores P del test de razón de verosimilitud para evaluar la mejora del modelo. Se realizó un análisis de sensibilidad tras eliminar la variable de cirugía.
Enriquecimiento funcional y análisis del microentorno inmunitario
Las muestras de TARGET-OS se estratificaron según la expresión de PPARG. Se utilizó la expresión diferencial entre los grupos con alta y baja expresión de PPARG para generar listas de genes ordenadas para el análisis de enriquecimiento de conjuntos de genes (GSEA)20. Las vías mostradas fueron Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway y Reactome: Fatty Acids. Se calculó un puntaje de senescencia CellAge en muestras masivas, y se utilizó el análisis de correlación de Spearman para evaluar las asociaciones entre PPARG y genes de senescencia o firmas del microentorno inmunitario21. Las diferencias en los puntajes del microentorno entre los grupos con alta y baja expresión de PPARG se evaluaron mediante pruebas no paramétricas con corrección por múltiples comparaciones.
Análisis transcriptómico a nivel de célula individual
Se analizó un conjunto de datos transcriptómicos publicado de osteosarcoma humano a nivel de célula individual utilizando un objeto preprocesado para el cual ya se había completado el control de calidad, la reducción de dimensionalidad, la agrupación en clusters y la anotación manual22,23,24. En total, se incluyeron 68.336 células y 32.297 genes. Para la interpretación del texto principal, las anotaciones se simplificaron en 13 tipos principales de células: células B, CAFs, células en ciclo, células endoteliales, células eritroides, macrófagos/monocitos, células malignas de osteosarcoma, células miogénicas, neutrófilos, células similares a osteoclastos, pericitos, células T/NK y células estromales asociadas al tumor. Se utilizaron reducción de dimensionalidad, mapas de expresión de características, gráficos de puntos y gráficos de violín para visualizar la localización de PPARG. Las células positivas para PPARG se definieron como aquellas con expresión mayor que cero. Las diferencias entre los tipos celulares se evaluaron mediante las pruebas de Kruskal-Wallis y de suma de rangos de Wilcoxon con corrección de Benjamini-Hochberg. Los análisis a nivel de célula individual se realizaron en R utilizando Seurat (versión 5.0.1).
Análisis transcriptómico espacial
Se utilizó la muestra transcriptómica espacial SP_BS3 para construir un objeto de expresión espacial25,26. Los umbrales de control de calidad fueron nFeature_Spatial ≥ 200 y percent.mt ≤ 30, lo que dejó 4.572 puntos para el análisis. Los datos se normalizaron, se seleccionaron 3.000 genes altamente variables y se realizó la escalación de datos, el análisis de componentes principales, la construcción del grafo de vecindad, la agrupación espacial de puntos y la reducción de dimensionalidad. Se calculó una puntuación espacial de senescencia CellAge tras eliminar PPARG del conjunto de genes para evitar una correlación circular. Se construyeron y puntuaron firmas de endotelio, pericitos, macrófagos/monocitos, estroma asociado al tumor, osteosarcoma maligno y similares a osteoclastos. Se utilizó el análisis de correlación de Spearman para evaluar las asociaciones entre la expresión de PPARG y las puntuaciones espaciales. Se realizó una transferencia de etiquetas utilizando el conjunto de datos de célula individual como referencia y el conjunto de datos espaciales como consulta, para inferir puntuaciones predichas de tipo celular para cada punto23,24. Los análisis transcriptómicos espaciales se realizaron en R utilizando Seurat (versión 5.0.1), y se aplicó la corrección FDR de Benjamini-Hochberg a todos los valores P de correlación espacial.
Validación externa de la expresión en GSE36001
El conjunto de datos GEO GSE36001 se utilizó exclusivamente como una cohorte independiente para la validación de la expresión; debido a que no había disponibles resultados sobre supervivencia, no se empleó para la validación pronóstica11,27. El conjunto de datos incluía 19 muestras de osteosarcoma y seis muestras normales de control. Se utilizó la anotación de la plataforma GPL6102 para convertir los identificadores de sondas en símbolos génicos. Cuando múltiples sondas correspondían al mismo gen, se conservó aquella con la expresión promedio más alta. La expresión diferencial entre los grupos tumorales y normales se evaluó mediante limma28. Los análisis se realizaron en R utilizando limma (versión 3.56.2), y los valores de P ajustados se calcularon mediante el método de Benjamini-Hochberg.
Validación mediante qRT-PCR e inmunotransferencia (Western blot)
La validación experimental se realizó utilizando la línea celular de osteosarcoma humano 143B y células osteoblásticas humanas. Las células de osteosarcoma se cultivaron en medio de Eagle modificado por Dulbecco, suplementado con 10 % de suero bovino fetal y 1 % de penicilina-estreptomicina, a 37 °C en una atmósfera humedecida con 5 % de CO₂, y se pasaron con tripsina-EDTA al 0,25 % al alcanzar una confluencia del 80 % al 90 %. Las células osteoblásticas humanas se mantuvieron en las condiciones de cultivo recomendadas. Todas las líneas celulares se confirmaron libres de contaminación por micoplasma. Para la qRT-PCR, se extrajo ARN total utilizando un reactivo de extracción de ARN basado en fenol-guanidinio, y se evaluó la concentración y pureza del ARN mediante espectrofotometría. Un microgramo de ARN total se retrotranscribió utilizando un reactivo de retrotranscripción según el protocolo recomendado. La qRT-PCR se realizó mediante química basada en colorante fluorescente que se une al ADN, bajo las siguientes condiciones de ciclado: desnaturalización inicial a 95 °C durante 30 s, seguida de 40 ciclos a 95 °C durante 5 s y 60 °C durante 30 s, con análisis de curva de desnaturalización para confirmar la especificidad de la amplificación. Cada reacción se realizó por triplicado técnico, y se llevaron a cabo tres experimentos biológicos independientes. Se utilizó GAPDH como control interno, y la expresión relativa de PPARG se calculó mediante el método 2-ΔΔCt29. El cebador directo de PPARG fue 5'-CGAAGACATTCCATTCACAAGAACAG-3', y el cebador inverso fue 5'-AGATGCAGGCTCCACTTTGATTG-3'.
La transferencia Western se realizó para examinar la expresión proteica de PPARG. Las células se lisaron en tampón de ensayo de inmunoprecipitación con radioinmunoensayo (RIPA) suplementado con inhibidores de proteasas, y las concentraciones de proteína se determinaron mediante un ensayo de ácido bicinconínico. Cantidades iguales de proteína (30 µg por carril) se separaron mediante electroforesis en gel de poliacrilamida al 10 % con dodecilsulfato de sodio y se transfirieron a membranas de difluoruro de polivinilideno. Después de bloquear con leche descremada al 5 % durante 1 h a temperatura ambiente, las membranas se incubaron durante la noche a 4 °C con anticuerpos primarios contra PPARG (1:1.000) y GAPDH (1:5.000), seguido de incubación con un anticuerpo secundario conjugado con peroxidasa de rábano picante (1:5.000) durante 1 h a temperatura ambiente. Las bandas proteicas se visualizaron mediante detección quimioluminiscente, y se realizaron tres experimentos independientes. Las intensidades de las bandas se cuantificaron utilizando software de análisis de imágenes30. Las diferencias entre grupos se analizaron utilizando la prueba t de Student no apareada de dos colas t pruebas. Los datos se presentaron como la media ± desviación estándar (DE) de tres experimentos independientes, y P < Se consideró un valor de p < 0,05 estadísticamente significativo. Los análisis estadísticos de los datos experimentales se realizaron utilizando software de análisis estadístico (versión 9.0).
Análisis estadístico
A menos que se indique lo contrario, todos los análisis bioinformáticos se realizaron en R (versión 4.3.2). Bilaterales P valores < 0.05 se consideraron estadísticamente significativos. Las correlaciones se evaluaron utilizando el coeficiente de correlación de rangos de Spearman (ρ). Se realizó la corrección por múltiples pruebas utilizando el método FDR de Benjamini-Hochberg cuando fue aplicable. Los datos experimentales se presentaron como la media ± SD y se compararon utilizando una prueba t de Student no apareada de dos colas t pruebas. Los análisis estadísticos experimentales se realizaron utilizando software de análisis estadístico (versión 9.0).
Resultados
GSE99671 identificó 105 genes relacionados con la senescencia y expresados diferencialmente en CellAge
GSE99671 incluyó 36 muestras de 18 tejidos apareados. Tras el filtrado por recuentos bajos, se conservaron 16.683 genes. Con un valor de P ajustado < 0,05, 2.248 genes mostraron expresión diferencial. Bajo el umbral más estricto de P ajustado < 0,05 y |log2FC| ≥ 1, 594 genes resultaron significativos, incluyendo 102 genes regulados positivamente y 492 regulados negativamente en tumores (Figura 1A,B). La intersección entre los 2.248 genes expresados diferencialmente y los 866 genes de CellAge arrojó 105 genes expresados diferencialmente y relacionados con la senescencia (Figura 1C). PPARG mostró una regulación negativa en GSE99671, con un log2FC = -0,644, P = 0,00451 y un valor de P ajustado = 0,0309. En 13 de 18 pares, la expresión de PPARG fue mayor en el tejido normal que en el tejido tumoral, con un valor de P de Wilcoxon apareado = 0,0294 (Figura 1D).
El cribado pronóstico multimodal nominó a PPARG como el gen candidato principal
En TARGET-OS, se incluyeron 85 pacientes con 27 eventos de muerte. El cribado integrado de los 105 genes relacionados con la senescencia y diferencialmente expresados mediante regresión de Cox univariante, análisis de Kaplan-Meier, análisis ROC de supervivencia, LASSO, LASSO repetido y modelado de bosques de supervivencia aleatorios arrojó 18 genes centrales candidatos antes del ajuste clínico (Figura 2A). PPARG se asoció con la supervivencia global en el análisis univariante de Cox (HR = 0,603, IC del 95 % = 0,454–0,802, P = 0,000494, FDR = 0,0447), lo que indica que una mayor expresión de PPARG se asoció con un menor riesgo de mortalidad. El análisis de Kaplan-Meier que comparó los grupos de alta y baja expresión arrojó P = 0,00784 (Figura 2B). Las AUC dependientes del tiempo a 1, 3 y 5 años fueron 0,603, 0,760 y 0,776, respectivamente (Figura 2C). PPARG mostró una frecuencia de selección de LASSO repetido de 0,920 y una importancia en el bosque de supervivencia aleatorio de 0,0398 (Figura 2D–F). La puntuación inicial de PPARG como gen central fue de 6/6 porque cumplió los seis criterios de cribado preespecificados.
Ajuste clínico que respalda la asociación pronóstica de PPARG
Después de incorporar las covariables clínicas, PPARG siguió asociado significativamente con la supervivencia global (HR ajustado = 0.224, IC del 95% = 0.085–0.589, P = 0.00241; Figura 2G). El modelo basado únicamente en variables clínicas tuvo un índice C de 0.707 y un AIC de 89.921 (Tabla Suplementaria 1). La inclusión de PPARG aumentó el índice C a 0.829, redujo el AIC a 78.466 y mejoró significativamente el ajuste del modelo según la prueba de razón de verosimilitud (P = 0.000244; Tabla Suplementaria 2, Figura 2H,I). Un análisis de sensibilidad tras la exclusión de cirugía definitiva mantuvo la asociación protectora de PPARG (HR = 0.249, P = 0.00185; Tabla Suplementaria 3, Figura 2J). PPARG obtuvo la puntuación clínica integrada más alta de 13 (puntuación inicial del centro de interacción de 6 más siete puntos de integración clínica) y mostró AUC finales a 3 y 5 años de 0.770 y 0.813 (Figura 2K).
Características funcionales y del microambiente inmunitario asociadas a PPARG
El análisis GSEA que comparó los grupos con expresión alta y baja de PPARG mostró enriquecimiento de las firmas Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway y Reactome: Fatty Acids (Figura 3A). En los datos integrales de TARGET-OS, PPARG no mostró una correlación significativa con la puntuación global de senescencia CellAge (Spearman ρ = 0,022, P = 0,837; Figura 3B), pero sí se correlacionó con varios genes individuales de CellAge (Figura 3C). El análisis del microambiente inmunitario reveló correlaciones positivas entre PPARG y macrófagos (ρ = 0,485, FDR = 2,7 × 10⁻⁵), células T CD8 (ρ = 0,410, FDR = 5,88 × 10⁻⁴), la firma tipo osteoclasto (ρ = 0,383, FDR = 0,00120), neutrófilos (ρ = 0,376, FDR = 0,00120), y células dendríticas (ρ = 0,370, FDR = 0,00123). Los tumores con alta expresión de PPARG mostraron firmas más elevadas de células tipo osteoclasto, macrófagos, células T CD8, células dendríticas, monocitos, neutrófilos, células NK y células endoteliales tras la corrección por FDR (Tabla Suplementaria 4, Figura 3D,E).
La transcriptómica de una sola célula localizó PPARG en compartimentos vasculares y microambientales
El conjunto de datos de una sola célula contenía 68 336 células y 32 297 genes. La expresión de PPARG difería significativamente entre los tipos celulares (Figura 4A). La expresión promedio más alta se observó en células endoteliales (expresión media = 0,540; proporción positiva = 44,33%), pericitos (expresión media = 0,439; proporción positiva = 41,61%), macrófagos/monocitos (expresión media = 0,363; proporción positiva = 31,62%) y células estromales asociadas al tumor (expresión media = 0,361; proporción positiva = 44,10%; Figura 4B–E). Un subconjunto de células malignas de osteosarcoma expresó PPARG (expresión media = 0,163; proporción positiva = 16,70%), pero la expresión en las células malignas de osteosarcoma no fue significativamente mayor que en otras células (FDR = 0,151). Estos hallazgos sugirieron que la expresión de PPARG en el osteosarcoma reflejaba predominantemente estados del microambiente vascular, mieloide y estromal, más que estar restringida a células malignas (Figura 4F).
La transcriptómica espacial vinculó PPARG a estados espaciales relacionados con la senescencia y a nichos vasculares
Tras el control de calidad, se conservaron 4.572 puntos espaciales SP_BS3 y se agruparon en siete cúmulos espaciales (Figura 5A). Figura 5B muestra la distribución espacial de nFeature_Spatial (genes detectados por punto). Por separado, de 866 genes de CellAge, 845 coincidieron en la matriz de expresión espacial (97,58 %). PPARG mostró expresión espacial focal (Figura 5C). La puntuación espacial de senescencia de CellAge, calculada tras eliminar PPARG, mostró una correlación positiva débil pero estadísticamente significativa con la expresión de PPARG (ρ = 0,0692, P = 3,0 × 10⁻⁶, FDR = 1,9 × 10⁻⁵; Figura 5D). El análisis de puntuación de nicho espacial mostró correlaciones positivas entre PPARG y la puntuación endotelial (ρ = 0,0433, FDR = 0,00592) y la puntuación de pericitos (ρ = 0,0367, FDR = 0,0181), mientras que PPARG se correlacionó negativamente con la puntuación de osteosarcoma maligno (ρ = -0,0592, FDR = 0,000219) y con la puntuación estromal tumoral (ρ = -0,0531, FDR = 0,000774; Tabla Suplementaria 5, Figura 5E). El análisis de transferencia de etiquetas mostró asimismo correlaciones positivas con la puntuación de predicción endotelial (ρ = 0,0507, FDR = 0,00120) y con la puntuación de predicción de pericitos (ρ = 0,0394, FDR = 0,0123), junto con una correlación negativa con la puntuación de predicción de células de osteosarcoma maligno (ρ = -0,0699, FDR = 1,1 × 10⁻⁵; Figura 5F–H).
La expresión externa y la validación experimental respaldaron la regulación negativa de PPARG
GSE36001 incluyó 19 muestras de osteosarcoma y seis controles normales. PPARG se encontró significativamente regulado negativamente en el osteosarcoma (logFC = -1.429, P = 0,00730, valor de P ajustado = 0,0435; Figura 6A). En la validación basada en células, la expresión de ARNm de PPARG fue significativamente menor en las células de osteosarcoma 143B que en las células de osteoblastos humanos mediante qRT-PCR (P < 0,001; Figura 6B). La expresión proteica de PPARG también se redujo significativamente en las células 143B mediante inmunotransferencia (Western blotting) (P < 0,01; Figura 6C,D). Estos hallazgos provenientes del cohorte externo, así como a nivel de ARNm y proteína, respaldaron de manera consistente una expresión reducida de PPARG en el osteosarcoma. GSE36001 no incluyó resultados sobre supervivencia y, por lo tanto, proporcionó únicamente validación externa de expresión, no una validación pronóstica independiente.
DISPONIBILIDAD DE LOS DATOS:
Todos los conjuntos de datos utilizados en este estudio están disponibles públicamente. GSE99671 y GSE36001 se obtuvieron de la base de datos Gene Expression Omnibus (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE99671; https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE36001). Los datos transcriptómicos y clínicos de TARGET-OS se descargaron de UCSC Xena (https://xena.ucsc.edu/). Los genes relacionados con la senescencia se obtuvieron de CellAge: La Base de Datos de Genes de Senescencia Celular, parte de los Recursos Genómicos del Envejecimiento Humano (https://genomics.senescence.info/cells/). Los conjuntos de datos transcriptómicos de célula individual y espaciales de osteosarcoma humano se obtuvieron del atlas publicado y su repositorio asociado en GitHub (https://github.com/zhengxj1/A-Single-Cell-and-Spatially-Resolved-Atlas-of-Human-Osteosarcomas). Los conjuntos de genes para el análisis de enriquecimiento se obtuvieron de MSigDB (https://www.gsea-msigdb.org/gsea/msigdb/). Los datos procesados generados en este estudio y los scripts de análisis utilizados para reproducir los resultados informados han sido compilados y enviados como Archivo Suplementario 1.
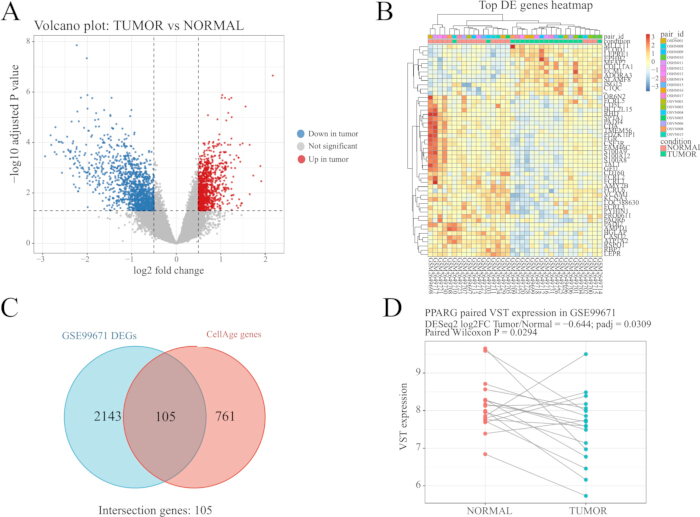
Figura 1: Identificación de genes diferencialmente expresados y genes candidatos relacionados con la senescencia derivados de CellAge en osteosarcoma. (A) Gráfico de volcan mostrando los genes diferencialmente expresados entre tejidos de osteosarcoma y tejidos de control no tumorales emparejados en el conjunto de datos GSE99671. Los genes significativamente sobreexpresados y subexpresados se destacan según los criterios de corte predefinidos. (B) Mapa de calor que muestra los patrones de expresión de genes representativos diferencialmente expresados en muestras de osteosarcoma y muestras de control emparejadas en GSE99671. (C) Diagrama de Venn que muestra la intersección entre los genes diferencialmente expresados en GSE99671 y los genes relacionados con la senescencia en CellAge. (D) Comparación de expresión emparejada de PPARG entre tejidos de osteosarcoma y tejidos de control no tumorales emparejados en GSE99671. Haga clic aquí para ver una versión más grande de esta figura.
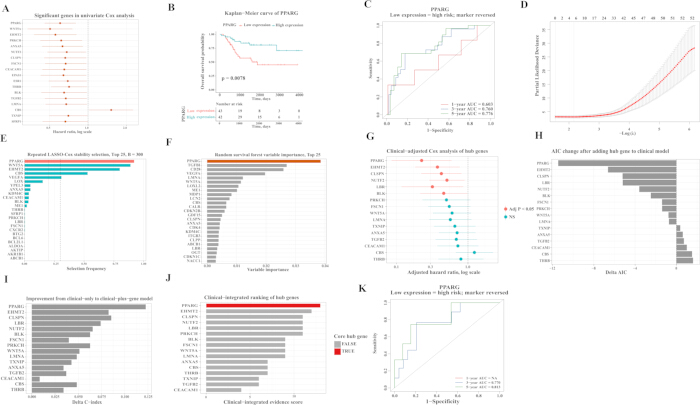
Figura 2: Los análisis de supervivencia ajustados mediante aprendizaje automático e información clínica identifican a PPARG como un gen central pronóstico relacionado con la senescencia en osteosarcoma. (A) Gráfico de bosque que muestra los resultados de la regresión de Cox univariante para los genes candidatos relacionados con la senescencia en la cohorte TARGET-OS. (B) Curva de supervivencia de Kaplan-Meier que compara la supervivencia global entre pacientes con expresión alta y baja de PPARG. (C) Curvas ROC dependientes del tiempo para evaluar el desempeño predictivo de PPARG respecto a la supervivencia global. (D) Curva de validación cruzada de la regresión de Cox con penalización LASSO para la selección de genes candidatos pronósticos. (E) Análisis de estabilidad LASSO repetido que muestra las frecuencias de selección de lambda.min en 300 repeticiones de cinco pliegues. (F) Análisis de bosques aleatorios de supervivencia que muestra las puntuaciones de importancia de las variables obtenidas a partir de 1.000 árboles. (G) Gráfico de bosque que muestra los resultados de la regresión de Cox ajustada clínicamente para los genes centrales candidatos. (H) Cambios en el AIC tras la adición de genes centrales individuales al modelo clínico. (I) Mejora del índice C tras la adición de genes centrales individuales al modelo clínico. (J) Clasificación del puntaje integrado final (rango 0–13) del gen central candidato. (K) Curvas ROC dependientes del tiempo de PPARG en el subconjunto de 40 pacientes para el análisis clínico, mostrando las AUC a 3 y 5 años; la AUC a 1 año no fue estimable. Haga clic aquí para ver una versión ampliada de esta figura.
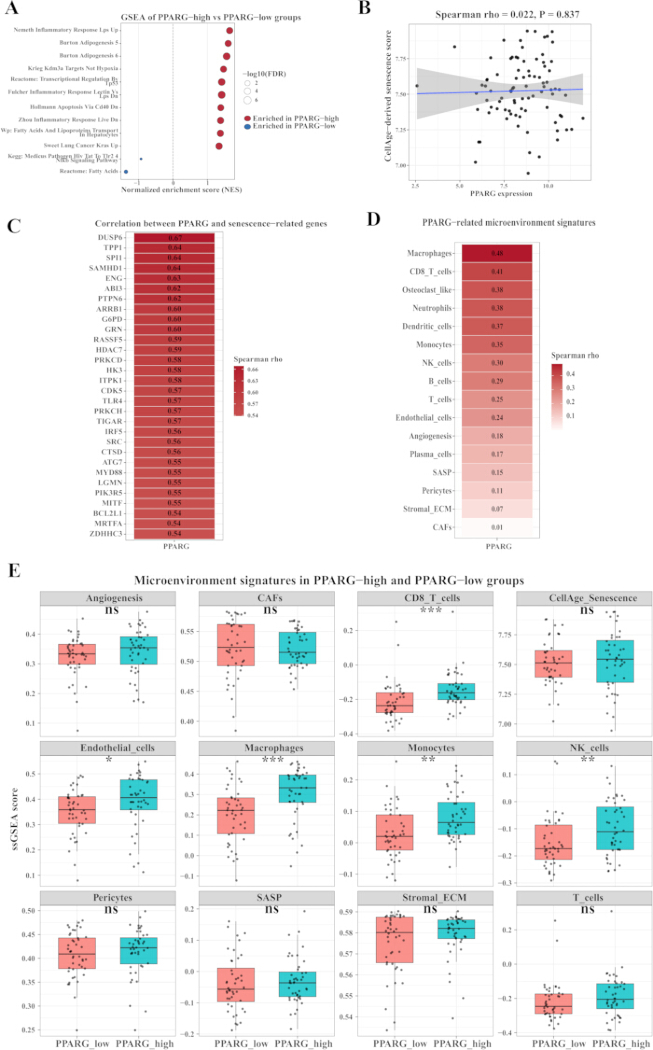
Figura 3: Enriquecimiento funcional asociado a PPARG y análisis del microentorno inmunitario. (A) Gráfico de burbujas de GSEA que compara los grupos con expresión alta y baja de PPARG, que muestra la respuesta inflamatoria de Nemeth por LPS hacia arriba, adipogénesis de Burton 5, adipogénesis de Burton 6, objetivos de KDM3A de Krieg no hipoxia, vía de señalización de TP53 en Reactome, respuesta inflamatoria de Fulcher por lectina frente a LPS hacia abajo, apoptosis mediante CD40 de Hollmann hacia abajo, respuesta inflamatoria viva de Zhou hacia abajo, vía de transporte de ácidos grasos y lipoproteínas en hepatocitos (WP), cáncer de pulmón por KRAS hacia arriba, vía de señalización de TLR2/4-NF-kB por Tat del VIH en KEGG Medicus y ácidos grasos en Reactome. (B) Correlación entre PPARG y la puntuación global de senescencia CellAge en datos bulk de TARGET-OS. (C) Correlaciones entre PPARG y genes individuales de CellAge. (D) Correlaciones entre PPARG y firmas del microentorno inmunitario. (E) Diferencias en las puntuaciones del microentorno entre los grupos con expresión alta y baja de PPARG. Las correlaciones se evaluaron mediante el coeficiente de correlación de rangos de Spearman (ρ), y los valores P ajustados se calcularon utilizando el método de Benjamini-Hochberg. Abreviaturas: GSEA = análisis de enriquecimiento de conjuntos de genes; NF-κB = factor nuclear kappa-B; JAK-STAT = cinasa Janus-transductor de señal y activador de la transcripción; IL-12 = interleucina-12; FDR = tasa de falsos descubrimientos. Haga clic aquí para ver una versión ampliada de esta figura.
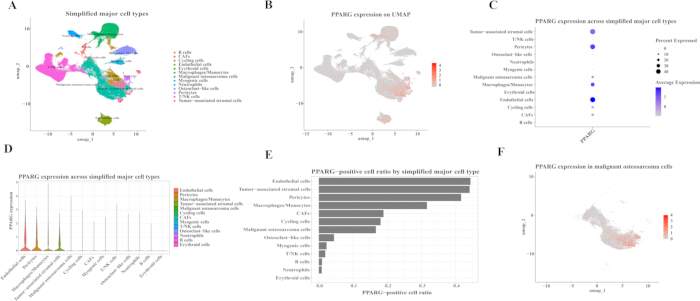
Figura 4: Localización de PPARG en los compartimentos celulares en datos transcriptómicos de célula individual de osteosarcoma. (A) Visualización UMAP de los principales tipos celulares en el conjunto de datos transcriptómicos de célula individual de osteosarcoma humano tras una anotación manual simplificada. (B) FeaturePlot que muestra la distribución global de la expresión de PPARG en células individuales. (C) DotPlot que muestra la expresión de PPARG en los principales tipos celulares. (D) Gráfico de violín que muestra los niveles de expresión de PPARG en diferentes tipos celulares. (E) Gráfico de barras que muestra la proporción de células positivas para PPARG en cada tipo celular principal. (F) Visualización UMAP que muestra la expresión de PPARG en células de osteosarcoma malignas. Abreviatura: UMAP = aproximación y proyección uniforme de variedades. Haga clic aquí para ver una versión más grande de esta figura.
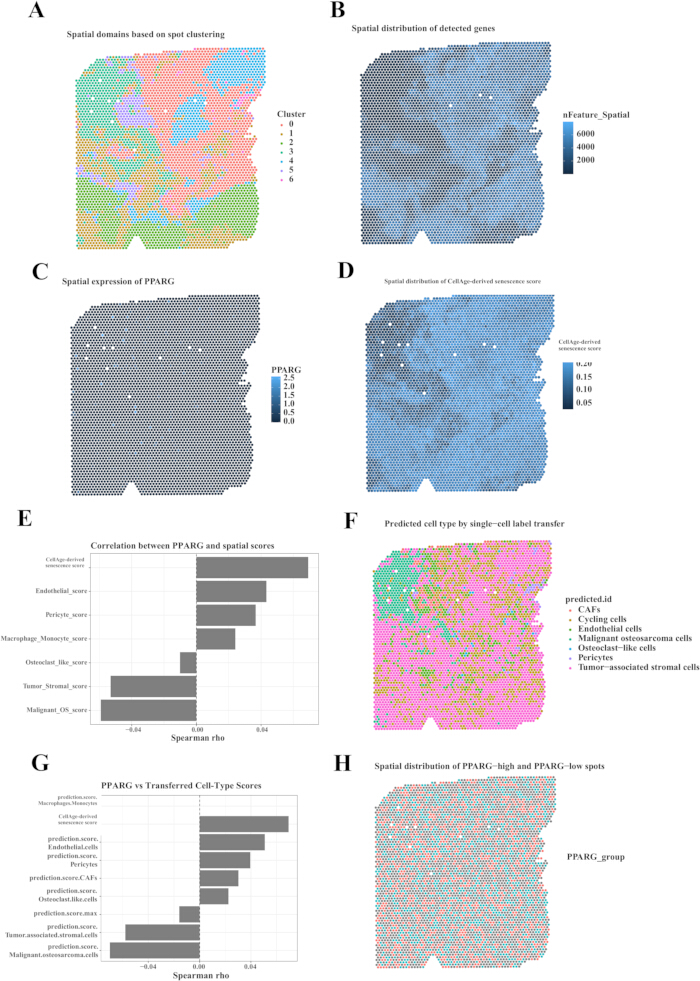
Figura 5: Localización transcriptómica espacial de PPARG y características espaciales relacionadas con la senescencia en osteosarcoma. (A) Distribución espacial de los grupos definidos por el transcriptoma en la sección transcriptómica espacial de osteosarcoma SP_BS3. (B) Distribución espacial de los genes detectados por punto, mostrada mediante nFeature_Spatial. (C) Patrón de expresión espacial de PPARG a lo largo de los puntos SP_BS3. (D) Distribución espacial del puntaje de senescencia derivado de CellAge. (E) Análisis de correlación entre la expresión de PPARG y el puntaje de senescencia espacial derivado de CellAge o los puntajes de nicho ecológico celular. (F) Mapa de predicción por transferencia de etiquetas que muestra el tipo celular dominante derivado de célula única para cada punto espacial. (G) Análisis de correlación entre la expresión de PPARG, el puntaje de senescencia derivado de CellAge y los puntajes de predicción de tipo celular derivados de la transferencia de etiquetas. (H) Distribución espacial de los puntos con alta y baja expresión de PPARG. Haga clic aquí para ver una versión más grande de esta figura.
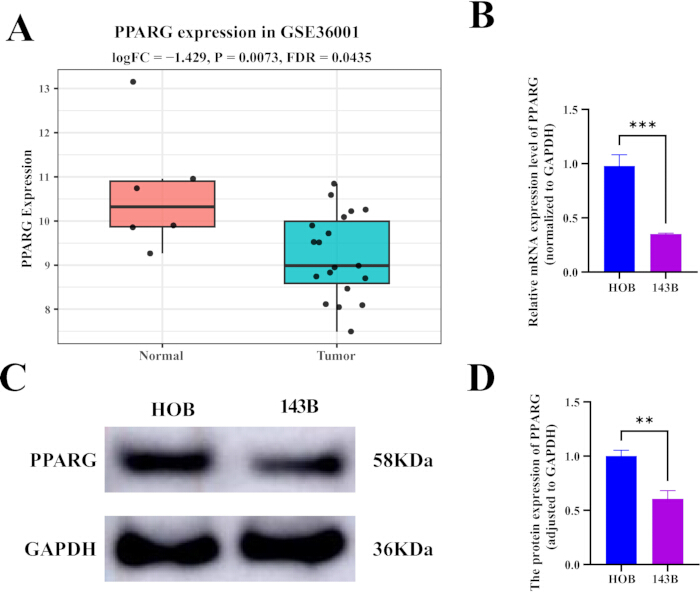
Figura 6: Expresión externa y validación experimental de la regulación negativa de PPARG en osteosarcoma. (A) Diagrama de caja que muestra los niveles de expresión de PPARG en muestras de osteosarcoma (n = 19) y muestras normales de control (n = 6) en el conjunto de datos GSE36001. (B) Análisis de qRT-PCR de la expresión de ARNm de PPARG en células humanas de osteosarcoma 143B y células de control humanas de osteoblastos. (C) Inmunotransferencia representativa que muestra la expresión proteica de PPARG y GAPDH en células osteoblásticas humanas de control y en células de osteosarcoma 143B. GAPDH se utilizó como control de carga.D) Cuantificación densitométrica de las bandas de inmunotransferencia Western que muestran los niveles relativos de la proteína PPARG normalizados respecto a GAPDH. En (B) y (D), los datos se presentan como la media ± Desviación estándar de tres experimentos independientes. P < 0,01 y P < 0,001 frente al grupo control de osteoblastos humanos, según se determinó mediante una prueba t de Student no pareada de dos colas t-prueba. Abreviaturas: qRT-PCR = reacción en cadena de la polimerasa con transcripción inversa cuantitativa; GAPDH = deshidrogenasa de gliceraldehído-3-fosfato; DE = desviación estándar. Haga clic aquí para ver una versión más grande de esta figura.
Tabla suplementaria 1: Rendimiento del modelo Cox solo clínico en la cohorte TARGET-OS. Índice C, AIC y resumen del modelo del modelo Cox construido utilizando únicamente variables clínicas, incluyendo sexo, edad, estado de la enfermedad al diagnóstico, sitio del tumor primario, región tumoral específica y estado de cirugía definitiva. Abreviatura: AIC = criterio de información de Akaike. Haga clic aquí para descargar este archivo.
Tabla suplementaria 2: Comparación entre modelos de Cox clínicos únicamente y clínicos más genéticos. Resultados de la comparación de modelos tras la adición de genes centrales candidatos individuales al modelo clínico, incluyendo el índice C, AIC, estadísticas de la prueba de razón de verosimilitud y métricas de mejora del modelo. Abreviatura: AIC = criterio de información de Akaike. Haga clic aquí para descargar este archivo.
Tabla suplementaria 3: Análisis de sensibilidad tras la eliminación de la variable de cirugía definitiva. Resultados de la regresión de Cox sobre sensibilidad que evalúan si las asociaciones pronósticas de los genes centrales candidatos, particularmente PPARG, se mantuvieron estables tras excluir la variable de cirugía definitiva del modelo clínico ajustado. Haga clic aquí para descargar este archivo.
Tabla suplementaria 4: Firmas del microentorno inmunitario y estromal asociadas a PPARG en TARGET-OS. Resultados de correlación y comparación entre grupos de la expresión de PPARG con firmas de ssGSEA relacionadas con inmunidad, estroma, vasos sanguíneos, inflamación y SASP, incluyendo coeficientes de correlación de Spearman, valores de P, valores de P ajustados y comparaciones entre grupos con alta y baja expresión de PPARG. Abreviaturas: SASP = fenotipo secretor asociado a la senescencia; ssGSEA = análisis de enriquecimiento de conjuntos de genes en una sola muestra. Haga clic aquí para descargar este archivo.
Tabla suplementaria 5: Análisis de correlación transcriptómica espacial de PPARG en SP_BS3. Resultados de la correlación entre la expresión de PPARG y la puntuación de senescencia derivada de CellAge espacial, las puntuaciones de nicho ecológico celular y las puntuaciones de predicción de tipo celular derivadas de transferencia de etiquetas en la sección transcriptómica espacial de osteosarcoma SP_BS3. Haga clic aquí para descargar este archivo.
Discusión
Este estudio nominó a PPARG como un gen candidato relacionado con la senescencia y pronóstico en osteosarcoma mediante la integración de análisis de expresión diferencial, intersección con genes de CellAge, modelado de supervivencia en TARGET-OS, ajuste clínico, localización multi-ómica y validación experimental. Este marco analítico fue coherente con el énfasis actual en la investigación del osteosarcoma basada en información molecular y en recursos curados de genes de senescencia para interpretar la biología relacionada con la senescencia14,31. PPARG estuvo subexpresado en osteosarcoma en comparación con tejido normal, y una expresión más baja de PPARG se asoció con una peor supervivencia global en TARGET-OS. Estos hallazgos sugirieron que PPARG no solo estaba alterado transcripcionalmente en osteosarcoma, sino que también podría portar información pronóstica clínicamente relevante. Sin embargo, dado que la selección de candidatos y la evaluación del modelo se realizaron en la misma cohorte de TARGET-OS (85 pacientes, 27 eventos de muerte), la mejora observada en el desempeño del modelo fue susceptible de sesgo optimista y sobreajuste; por lo tanto, el valor pronóstico de PPARG debe considerarse como generador de hipótesis hasta su validación en una cohorte independiente de supervivencia en osteosarcoma. No obstante, la biología de PPARG debe interpretarse de manera dependiente del contexto, ya que estudios experimentales en osteosarcoma han reportado tanto efectos antitumorales de la modulación del receptor nuclear PPAR-gamma como programas de PPARG asociados a osteoclastos que podrían favorecer la progresión de la enfermedad32,33,34.
Una matización importante fue que PPARG no debería interpretarse como un simple sustituto del puntaje global de CellAge. En los datos bulk de TARGET-OS, PPARG no mostró correlación significativa con el puntaje global de senescencia CellAge, mientras que en la transcriptómica espacial, PPARG mostró una correlación débil pero significativa con un puntaje CellAge calculado tras excluir a PPARG. Esta diferencia podría reflejar efectos de la composición celular en los datos bulk, la naturaleza multifuncional de los conjuntos de genes de senescencia y el enriquecimiento local de nichos del microambiente en los puntos espaciales. Estudios de consenso y transcriptómicos han enfatizado que la senescencia celular es heterogénea, dinámica y dependiente del tipo celular, el agente estresante y el contexto tisular, mientras que los programas SASP pueden ejercer efectos opuestos durante la progresión del cáncer25,35,36,37. Por lo tanto, PPARG se definió de manera conservadora como un gen pronóstico relacionado con la senescencia derivado de CellAge, más que como un impulsor demostrado de la senescencia. En consecuencia, la designación relacionada con la senescencia de PPARG reflejaba la pertenencia al conjunto de genes de CellAge, y no su participación mecanicista demostrada en la senescencia, y PPARG no debería utilizarse como un sustituto cuantitativo de la actividad global de senescencia.
Más en general, estos resultados espaciales ilustraron la distinción entre significancia estadística y relevancia biológica. Con 4.572 puntos espaciales, incluso correlaciones muy débiles podrían superar los umbrales convencionales de significancia; por ejemplo, la correlación entre PPARG y la puntuación espacial de senescencia CellAge (ρ = 0,0692) explicaba solo aproximadamente el 0,48 % de la varianza, pero alcanzó un valor de P de 3,0 × 10⁻⁶ debido a que el gran número de puntos proporcionó una potencia estadística considerable. Por lo tanto, estas asociaciones a nivel de punto deben considerarse como señales estadísticamente detectables pero biológicamente modestas, con fines generadores de hipótesis, y sus tamaños del efecto, más que sus valores de P por sí solos, deben guiar la interpretación biológica. La significancia estadística en conjuntos de datos extensos a nivel de punto no debe equipararse a efectos biológicos fuertes.
Los análisis unicelulares y espaciales proporcionaron un contexto biológico para PPARG. PPARG se enriqueció en células endoteliales, pericitos, macrófagos/monocitos y células estromales asociadas al tumor, y estuvo espacialmente asociado con las puntuaciones de células endoteliales y pericitos. Estos resultados sugirieron que la información pronóstica que lleva PPARG podría estar relacionada con compartimentos vasculares y microambientales en el osteosarcoma. Esta interpretación fue compatible con los atlas recientes unicelulares/espaciales del osteosarcoma y con evidencia más amplia de que los nichos inmunitarios, vasculares y estromales moldean la heterogeneidad tumoral, la respuesta al tratamiento y la progresión25,38,39. Dado que las células malignas de osteosarcoma expresaron PPARG solo en un subconjunto de células y no mostraron una expresión significativamente más alta que otras células, una interpretación basada únicamente en células tumorales habría sido incompleta. Por el contrario, la regulación a la baja a nivel global de PPARG observada en GSE99671 y GSE36001 podría haber reflejado en parte diferencias en la composición de células estromales, vasculares, de médula ósea, adipogénicas o inmunitarias entre tejidos tumorales y normales, más que una regulación a la baja genuina en las células malignas de osteosarcoma. Dado que la pureza tumoral y la abundancia de tipos celulares no se ajustaron explícitamente en los análisis globales, esta posibilidad no pudo descartarse y requirió una investigación específica.
Los análisis funcionales y del microentorno inmunitario fueron coherentes con esta interpretación. PPARG se correlacionó con firmas de macrófagos, células T CD8, células dendríticas, neutrófilos, células NK y endoteliales, y el GSEA destacó vías relacionadas con inflamación, NF-κB, señalización JAK-STAT/IL-12, regulación de TP53 y puntos de control de daño al ADN. En conjunto, estos resultados sugirieron que PPARG podría marcar un estado microambiental compuesto que involucra estrés asociado a senescencia, infiltración inmunitaria y compartimentos vasculares y estromales. Esta interpretación fue biológicamente plausible porque PPAR-gamma tiene funciones establecidas en la supresión de la activación inflamatoria de macrófagos/monocitos, incluyendo efectos sobre programas transcripcionales relacionados con AP-1, STAT y NF-κB, y porque el microentorno inmunitario del osteosarcoma contiene elementos mieloides, linfoides y vasculares con funciones tanto promotoras como supresoras del tumor38,40,41. Estas observaciones a nivel de célula individual y espaciales fueron descriptivas y generadoras de hipótesis; por sí solas no establecieron mecanismos del nicho vascular, programas de senescencia ni vías pronósticas.
Se deben reconocer varias limitaciones. En primer lugar, el análisis pronóstico principal se basó en la cohorte pública retrospectiva TARGET-OS, con un tamaño muestral limitado y un número reducido de eventos; por lo tanto, el valor pronóstico de PPARG debe validarse en cohortes independientes de acuerdo con los principios aceptados de informe y validación de marcadores tumorales42. En particular, la selección de candidatos se realizó en 85 pacientes con TARGET-OS con 27 defunciones, mientras que la evaluación del modelo ajustado clínicamente utilizó el subconjunto solapado de 40 pacientes con 13 defunciones. Dado que ambos análisis se derivaron de la misma cohorte fuente, es probable que la mejora del índice C reportada (0,707 a 0,829) y la reducción del AIC sean demasiado optimistas. No se dispuso de una cohorte de supervivencia independiente para validar externamente el valor pronóstico de PPARG; GSE36001 se utilizó únicamente para la validación de la expresión tumor frente a normal. Además, el puntaje integrado del nodo central fue una heurística interna exploratoria de clasificación, y no un instrumento pronóstico validado. En segundo lugar, el análisis transcriptómico espacial se basó en una única muestra SP_BS3; aunque las correlaciones fueron estadísticamente significativas, los tamaños del efecto fueron pequeños y requieren validación en muestras espaciales adicionales. En particular, aumentar el número de muestras transcriptómicas espaciales procedentes de pacientes independientes será esencial para obtener estimaciones más robustas de estas asociaciones débiles, y se justifican estudios basados en cohortes espaciales más grandes. La transcriptómica espacial proporciona un contexto molecular valioso in situ, pero su interpretación sigue estando influenciada por la resolución de la plataforma, la estrategia de muestreo, la calidad del tejido y las decisiones computacionales de integración43. Además, el análisis espacial dependió de un objeto público de célula única preprocesado con anotaciones simplificadas, así como de puntuaciones computacionales y transferencia de etiquetas; dados los tamaños del efecto mínimos, estos datos respaldaron afirmaciones descriptivas sobre localización, más que afirmaciones mecanicistas sobre nichos vasculares o programas de senescencia. En tercer lugar, la validación experimental se basó en la línea celular de osteosarcoma 143B y osteoblastos humanos; se necesitan líneas celulares adicionales de osteosarcoma y muestras clínicas, y la validación en una única línea celular no puede establecer especificidad por tipo celular, relevancia pronóstica clínica ni biología de la senescencia. En cuarto lugar, este estudio demostró una asociación, no una causalidad. Será necesario realizar perturbaciones funcionales de PPARG en células de osteosarcoma y en modelos del microentorno para determinar si PPARG regula directamente programas relacionados con la senescencia, nichos vasculares o la progresión tumoral. En quinto lugar, la relación con la senescencia se definió por la superposición con el conjunto génico CellAge, y PPARG no mostró correlación con la puntuación global de senescencia CellAge en TARGET-OS. Además, las comparaciones globales tumor frente a normal no se ajustaron por la pureza tumoral ni por la composición de tipos celulares, por lo que la subregulación observada puede reflejar en parte diferencias en la composición del microentorno, más que cambios intrínsecos a las células malignas.
PPARG es un gen derivado de CellAge cuya expresión reducida se asocia con una supervivencia general desfavorable en la cohorte TARGET-OS. Su regulación negativa en comparaciones de osteosarcoma en conjunto, junto con su enriquecimiento en compartimentos vasculares, mieloides y estromales, sugiere que los niveles globales de PPARG podrían reflejar en parte la composición celular del microambiente más que la expresión intrínseca en células malignas. Los hallazgos a nivel de célula individual y espaciales son descriptivos, y la asociación pronóstica no se validó independientemente respecto a la supervivencia, por lo que requiere validación en una cohorte externa con resultados de supervivencia. Estos hallazgos proponen a PPARG como un biomarcador candidato para la evaluación pronóstica en osteosarcoma y para la investigación sobre microambientes relacionados con la senescencia, pendiente de validación externa y estudios funcionales. En la transcriptómica espacial, las correlaciones entre PPARG y las puntuaciones de nicho relacionadas con senescencia o vascularización tuvieron un tamaño del efecto débil, aunque fueron estadísticamente significativas debido al gran número de puntos espaciales, por lo que deben interpretarse con cautela.
Divulgaciones
Los autores declaran que no tienen intereses en competencia.
APORTES DE LOS AUTORES:
Yongwen Li y Wentao Qin concibieron y diseñaron el estudio. Yongwen Li realizó los análisis bioinformáticos y computacionales. Tuo Liang realizó la validación experimental. Rubiao Qiu y Zide Zhang contribuyeron a la preparación de las figuras. Rubiao Qiu y Zide Zhang supervisaron el estudio y revisaron críticamente el manuscrito. Todos los autores revisaron y aprobaron el manuscrito final
Agradecimientos
Los autores agradecen sinceramente a los investigadores y colaboradores de los proyectos GEO, TARGET-OS, UCSC Xena, CellAge, MSigDB y el atlas transcriptómico unicelular y espacial del osteosarcoma humano por proporcionar conjuntos de datos y recursos de acceso público que permitieron este estudio. Este trabajo fue apoyado por la Fundación de Ciencias Naturales de Guangxi (No. 2023GXNSFAA026111).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Anticuerpo primario anti-GAPDH | Proteintech Group, Wuhan, China | 10494-1-AP | Anticuerpo primario utilizado para detectar GAPDH como control de carga en el inmunotransferencia; dilución 1:5.000. |
| Anticuerpo primario anti-PPARG | Proteintech Group, Wuhan, China | 16643-1-AP | Anticuerpo primario utilizado para la detección de la proteína PPARG mediante inmunotransferencia; dilución 1:1.000. |
| Kit de ensayo de proteínas BCA | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | PC0020 | Ensayo colorimétrico utilizado para determinar la concentración total de proteína antes de la electroforesis. |
| DESeq2 | Bioconductor | Version 1.40.2 | Paquete de R utilizado para el análisis diferencial de expresión génica de datos transcriptómicos basados en conteos. |
| Medio de Eagle modificado de Dulbecco (DMEM) | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | 11995 | Medio de cultivo basal utilizado para el mantenimiento de células de osteosarcoma 143B. |
| Reactivo de detección ECL | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | PE0010 | Sustrato quimioluminiscente utilizado para la detección de anticuerpos conjugados con peroxidasa de rábano picante en inmunotransferencia. |
| Suero bovino fetal (FBS) | Zhejiang Tianhang Biotechnology Co., Ltd. (Sijiqing), Huzhou, Zhejiang, China | 11011-8611 | Suplemento de suero añadido al medio de cultivo para favorecer el crecimiento y la viabilidad celular. |
| glmnet | CRAN | Version 4.1-8 | Paquete de R utilizado para análisis de regresión penalizada, incluyendo modelos LASSO y red elástica. |
| GraphPad Prism | GraphPad Software, San Diego, CA, USA | Version 9.0 | Software utilizado para análisis estadístico, generación de gráficos y visualización de datos experimentales. |
| Anticuerpo secundario conjugado con HRP | Proteintech Group, Wuhan, China | SA00001-2 | Anticuerpo secundario conjugado con peroxidasa de rábano picante utilizado para la detección en inmunotransferencia; dilución 1:5.000. |
| Células de osteoblastos humanos | Cell Applications, Inc., San Diego, CA, USA | 406-05A | Células primarias de osteoblastos humanos utilizadas como tipo celular no maligno para comparación/control. |
| Línea celular de osteosarcoma humano 143B | American Type Culture Collection (ATCC), Manassas, VA, USA | CRL-8303 | Línea celular de osteosarcoma humano utilizada para experimentos de validación in vitro y ensayos moleculares. |
| ImageJ | National Institutes of Health (NIH), USA | Version 1.53 | Software de análisis de imágenes utilizado para el análisis cuantitativo de imágenes experimentales. |
| limma | Bioconductor | Version 3.56.2 | Paquete de R utilizado para análisis de expresión diferencial y pruebas estadísticas basadas en modelos lineales. |
| Penicilina-estreptomicina | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | P1400 | Suplemento antibiótico utilizado en el medio de cultivo celular para reducir la contaminación bacteriana. |
| Primers de PPARG y GAPDH | Sangon Biotech (Shanghai) Co., Ltd., Shanghai, China | Síntesis personalizada; las secuencias se proporcionan en el apartado Métodos | Primers de oligonucleótidos personalizados utilizados para el análisis de expresión de PPARG y GAPDH mediante qPCR. |
| Membranas de PVDF, 0,45 µm | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | YA1701 | Membranas utilizadas para la transferencia de proteínas durante la inmunotransferencia. |
| Software estadístico R | R Foundation for Statistical Computing, Vienna, Austria | Version 4.3.2 | Entorno de computación estadística utilizado para análisis bioinformáticos, construcción de modelos y visualización. |
| randomForestSRC | CRAN | Version 3.2.2 | Paquete de R utilizado para modelado de bosques de supervivencia aleatorios y análisis de importancia de características. |
| Kit de transcripción inversa | Beyotime Biotech Inc., Shanghai, China | D7168M | Utilizado para la síntesis de ADN complementario (cADN) a partir de ARN aislado antes de la PCR cuantitativa. |
| Tampón de lisis RIPA | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | R0010 | Tampón de extracción de proteínas utilizado para lisar células para análisis por inmunotransferencia. |
| Seurat | Satija Laboratory | Version 5.0.1 | Paquete de R utilizado para el procesamiento, integración, agrupamiento y visualización de datos de secuenciación de ARN a nivel de célula individual. |
| survival | CRAN | Version 3.5-7 | Paquete de R utilizado para análisis de supervivencia, incluyendo modelos de riesgos proporcionales de Cox. |
| Mezcla maestra SYBR Green qPCR | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | SR1110 | Mezcla maestra fluorescente utilizada para la amplificación por PCR en tiempo real cuantitativa. |
| timeROC | CRAN | Version 0.4 | Paquete de R utilizado para generar curvas de características operativas del receptor dependientes del tiempo y calcular el rendimiento predictivo a lo largo del tiempo. |
| Reactivo TRIzol | Invitrogen, Thermo Fisher Scientific, Waltham, MA, USA | 15596026CN | Reactivo utilizado para la extracción de ARN total de células en cultivo. |
| Tripsina-EDTA, 0,25% | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | T1300 | Reactivo de disociación celular utilizado para el pase y recolección de células adherentes. |
Referencias
- Mirabello L, Troisi RJ, Savage SA. Osteosarcoma incidence and survival rates from 1973 to 2004: data from the Surveillance, Epidemiology, and End Results Program. Cancer. 2009;115:1531-1543.
- Bielack SS, et al. Prognostic factors in high-grade osteosarcoma of the extremities or trunk: an analysis of 1,702 patients treated on neoadjuvant cooperative osteosarcoma study group protocols. J Clin Oncol. 2002;20:776-790.
- Isakoff MS, Bielack SS, Meltzer P, Gorlick R. Osteosarcoma: Current Treatment and a Collaborative Pathway to Success. J Clin Oncol. 2015;33:3029-3035.
- Kansara M, Teng MW, Smyth MJ, Thomas DM. Translational biology of osteosarcoma. Nat Rev Cancer. 2014;14:722-735.
- Peng P, et al. Epigenetic remodeling under oxidative stress: Mechanisms driving tumor metastasis. MedComm - Oncology. 2024;3.
- Muñoz-Espín D, Serrano M. Cellular senescence: from physiology to pathology. Nat Rev Mol Cell Biol. 2014;15:482-496.
- Coppé JP, Desprez PY, Krtolica A, Campisi J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annu Rev Pathol. 2010;5:99-118.
- Collado M, Serrano M. Senescence in tumours: evidence from mice and humans. Nat Rev Cancer. 2010;10:51-57.
- Lehrke M, Lazar MA. The many faces of PPARgamma. Cell. 2005;123:993-999.
- Peters JM, Shah YM, Gonzalez FJ. The role of peroxisome proliferator-activated receptors in carcinogenesis and chemoprevention. Nat Rev Cancer. 2012;12:181-195.
- Barrett T, et al. NCBI GEO: archive for functional genomics data sets--update. Nucleic Acids Res. 2013;41.
- Ho XD, et al. Whole transcriptome analysis identifies differentially regulated networks between osteosarcoma and normal bone samples. Exp Biol Med (Maywood). 2017;242:1802-1811.
- Love MI, Huber W, Anders S. Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2. Genome Biol. 2014;15:550.
- Avelar RA, et al. A multidimensional systems biology analysis of cellular senescence in aging and disease. Genome Biol. 2020;21:91.
- Goldman MJ, et al. Visualizing and interpreting cancer genomics data via the Xena platform. Nat Biotechnol. 2020;38:675-678.
- Prentice RL, Zhao S. Regression Models and Multivariate Life Tables. J Am Stat Assoc. 2021;116:1330-1345.
- Heagerty PJ, Lumley T, Pepe MS. Time-dependent ROC curves for censored survival data and a diagnostic marker. Biometrics. 2000;56:337-344.
- Tibshirani R. The lasso method for variable selection in the Cox model. Stat Med. 1997;16:385-395.
- Jaeger BC, et al. OBLIQUE RANDOM SURVIVAL FORESTS. Ann Appl Stat. 2019;13:1847-1883.
- Subramanian A, et al. Gene set enrichment analysis: a knowledge-based approach for interpreting genome-wide expression profiles. Proc Natl Acad Sci U S A. 2005;102:15545-15550.
- Newman AM, et al. Robust enumeration of cell subsets from tissue expression profiles. Nat Methods. 2015;12:453-457.
- Zhou Y, et al. Single-cell RNA landscape of intratumoral heterogeneity and immunosuppressive microenvironment in advanced osteosarcoma. Nat Commun. 2020;11:6322.
- Stuart T, et al. Comprehensive Integration of Single-Cell Data. Cell. 2019;177:1888-1902.e21.
- Hao Y, et al. Integrated analysis of multimodal single-cell data. Cell. 2021;184:3573-3587.e29.
- Zheng X, et al. A single-cell and spatially resolved atlas of human osteosarcomas. J Hematol Oncol. 2024;17:71.
- Ståhl PL, et al. Visualization and analysis of gene expression in tissue sections by spatial transcriptomics. Science. 2016;353:78-82.
- Kresse SH, et al. Integrative analysis reveals relationships of genetic and epigenetic alterations in osteosarcoma. PLoS One. 2012;7.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 2001;25:402-408.
- Schneider CA, Rasband WS, Eliceiri KW. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 2012;9:671-675.
- Gill J, Gorlick R. Advancing therapy for osteosarcoma. Nat Rev Clin Oncol. 2021;18:609-624.
- Sun L, et al. Single-cell RNA sequencing revealed PPARG promoted osteosarcoma progression: based on osteoclast proliferation. Front Immunol. 2024;15:1506225.
- Yuan B, et al. Nuclear receptor modulators inhibit osteosarcoma cell proliferation and tumour growth by regulating the mTOR signaling pathway. Cell Death Dis. 2023;14:51.
- Lu Y, et al. Oridonin exerts anticancer effect on osteosarcoma by activating PPAR-γ and inhibiting Nrf2 pathway. Cell Death Dis. 2018;9:15.
- Gorgoulis V, et al. Cellular Senescence: Defining a Path Forward. Cell. 2019;179:813-827.
- Faget DV, Ren Q, Stewart SA. Unmasking senescence: context-dependent effects of SASP in cancer. Nat Rev Cancer. 2019;19:439-453.
- Hernandez-Segura A, et al. Unmasking Transcriptional Heterogeneity in Senescent Cells. Curr Biol. 2017;27:2652-2660.e4.
- Tian H, et al. Managing the immune microenvironment of osteosarcoma: the outlook for osteosarcoma treatment. Bone Res. 2023;11:11.
- Hanahan D. Hallmarks of Cancer: New Dimensions. Cancer Discov. 2022;12:31-46.
- Ricote M, Li AC, Willson TM, Kelly CJ, Glass CK. The peroxisome proliferator-activated receptor-gamma is a negative regulator of macrophage activation. Nature. 1998;391:79-82.
- Jiang C, Ting AT, Seed B. PPAR-gamma agonists inhibit production of monocyte inflammatory cytokines. Nature. 1998;391:82-86.
- McShane LM, et al. REporting recommendations for tumour MARKer prognostic studies (REMARK). Br J Cancer. 2005;93:387-391.
- Moses L, Pachter L. Publisher Correction: Museum of spatial transcriptomics. Nat Methods. 2022;19:628.